综述

瘤胃纤维素降解细菌、纤维素酶及纤维素降解机制研究进展

  • 张言馨 , 1 ,
  • 张鑫 2 ,
  • 汤少勋 3 ,
  • 王梦芝 , 1, 2, *
展开
  • 1 扬州大学动物科学与技术学院, 扬州 225100
  • 2 新疆农垦科学院, 石河子 832000
  • 3 中国科学院亚热带农业生态研究所, 长沙 410125
* 王梦芝,教授,博士生导师,E-mail:

张言馨(2002—),女,黑龙江哈尔滨人,硕士,从事营养学瘤胃微生物研究。E-mail:

Office editor: 武海龙

收稿日期: 2025-12-12

  网络出版日期: 2026-07-14

基金资助

科技部十四五国家重点研发专项(2023YFD1301705)

兵团重点领域科技攻关项目(2024AB033)

广西自然科学基金项目(2024JJA130009)

Research Progress on Rumen Cellulose Degrading Bacteria, Cellulases and Mechanisms of Cellulose Degradation

  • ZHANG Yanxin , 1 ,
  • ZHANG Xin 2 ,
  • TANG Shaoxun 3 ,
  • WANG Mengzhi , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Yangzhou University, Yangzhou 225100, China
  • 2 Xinjiang Academy of Agricultural and Reclamation Sciences, Shihezi 832000, China
  • 3 Institute of Subtropical Agriculture and Ecology, Chinese Academy of Sciences, Changsha 410125, China
* professor, E-mail:

Received date: 2025-12-12

  Online published: 2026-07-14

摘要

瘤胃细菌在反刍动物对纤维素的消化过程中发挥着关键作用。本文聚焦瘤胃主要纤维素降解细菌、细菌产生的纤维素酶类型,并阐述了瘤胃细菌对纤维素降解的特性和机制及其与纤维素酶的协同作用。瘤胃细菌分泌的内切葡聚糖酶、外切葡聚糖酶和β-葡萄糖苷酶协同作用,依次断裂长链、产生寡糖、水解寡糖并解除反馈抑制,推动纤维素降解;纤维小体可提升酶解效率,微生物黏附底物、种间交叉喂养和跨物种氢转移进一步优化降解进程。实际应用中,纤维素酶可提升反刍动物饲料消化率,但面临瘤胃环境致酶活性流失、与饲料适配性差异大及成本较高等挑战,本综述为理解瘤胃纤维素降解过程、推动反刍动物营养领域研究与应用提供参考。

本文引用格式

张言馨 , 张鑫 , 汤少勋 , 王梦芝 . 瘤胃纤维素降解细菌、纤维素酶及纤维素降解机制研究进展[J]. 动物营养学报, 2026 , 38(7) : 4827 -4840 . DOI: 10.12418/CJAN2026.387

Abstract

Rumen bacteria play a key role in the digestion of cellulose in ruminants. This review focuses on the major cellulose degrading bacteria in the rumen and the types of cellulases produced by these bacteria, and elaborates on the characteristics and mechanisms of cellulose degradation by rumen bacteria, as well as the synergistic effects of their cellulases. Endoglucanases, exoglucanases and β-glucosidases secreted by rumen bacteria act synergistically, they cleave long cellulose chains sequentially, produce oligosaccharides, hydrolyze oligosaccharides and relieve feedback inhibition, thereby driving cellulose degradation. Cellulosomes can enhance the efficiency of enzymatic hydrolysis, and microbial substrate adhesion, interspecies cross-feeding and interspecific hydrogen transfer further optimize the degradation process. In practical applications, cellulase preparations can improve the digestibility of ruminant diets, but they face challenges such as reduced enzyme activity caused by the rumen environment, large variations in adaptability to different feeds and relatively high costs. This review provides a reference for understanding the process of ruminal cellulose degradation and promoting research and application in the field of ruminant nutrition.

反刍动物瘤胃内微生物可以分为细菌、古细菌、原生动物和真菌4个种类[1]。瘤胃中的细菌、真菌和原生动物都能够降解纤维素,其中细菌和真菌发挥了主要作用,它们可以降解纤维素和半纤维素,并产生挥发性脂肪酸和可消化的简单化合物[2]。厚壁菌门和纤维杆菌门在瘤胃中占主导地位,螺旋菌门、变形菌门、放线菌门和拟杆菌门也较为丰富[3]。其中,拟杆菌门的产琥珀酸纤维杆菌(Fibrobacter succinogenes)以及厚壁菌门的白色瘤胃球菌(Ruminococcus albus)和黄色瘤胃球菌(Ruminococcus flavefaciens)为降解纤维素的优势菌[4-5]。瘤胃中主要纤维素降解细菌的分类、主要产物及其他特性见表1,它们可以产生糖苷水解酶(glycoside hydrolases,GH)、多糖裂解酶(polysaccharide lyases,PL)及碳水化合物酯酶(carbohydrate esterases,CE)等对应不同聚合物的一系列广泛的酶[6]。纤维素在这些瘤胃微生物产生的一系列纤维素酶的协同作用下降解并被动物利用。
表1 瘤胃中主要纤维素降解细菌的分类、主要产物及其他特性

Table 1 Classification, main products and other characteristics of major cellulose degrading bacteria in rumen


Phyla

Genera

Species
核心结构
Core structure
降解底物
Degraded substrate
主要产物
Main products
特性
Characteristics
参考文献
References
纤维杆菌门
Fibrobacteres
纤维杆菌属 产琥珀酸
纤维杆菌
无纤维小体,
含碱性末端结构域
纤维素、
多种半纤维素
琥珀酸、乙酸、
甲酸
纤维素降解,移除
半纤维素暴露底物
[5,7]


厚壁菌门
Firmicutes
瘤胃球菌属 黄色瘤
胃球菌
具蜂窝小体,
产黄色色素
纤维素、纤维二糖,
部分利用单糖
乙酸盐、琥珀酸盐及微量
氢气或二氧化碳
产耐热抑菌物质,
定植组织特异性强
[8-11]
瘤胃球菌属 白色瘤
胃球菌
含CBM37模块,
单/双球菌形态
降解纤维素、
纤维二糖
乙酸盐、乙醇、
氢气、二氧化碳
乙醇合成标志性,
具益生菌效应
[12-14]
梭菌属 热纤梭菌 分泌纤维小体 高效降解
结晶纤维素
葡萄糖、纤维二糖、
乙酸、乙醇
嗜热耐酸碱,通过物理分离
纤维素微纤丝实现降解
[15]
丁酸弧菌属 溶纤维
丁酸弧菌
无纤维小体,含催化
不饱和脂肪酸生物
氢化的酶系
木聚糖、纤维糊精,
少数菌株显著分解纤维
丁酸、乙酸、
甲酸,少量乳酸
调控乳酸/丁酸的产率,
部分菌株可利用或消耗乙酸
[16-18]
拟杆菌门
Bacteroidetes
普雷沃氏菌属 产琥珀酸
普雷沃氏菌
含琥珀酸脱
氢酶等关键酶
降解半纤维素、
木聚糖、果胶等,
参与纤维素预处理
琥珀酸、丙酸及
少量短链脂肪酸
以产琥珀酸为显著表型,通过
琥珀酸途径消耗氢离子合成丙酸,
与产甲烷古菌竞争氢气,
降低甲烷排放
[19]

1 瘤胃主要纤维素降解细菌及其在纤维降解中的特性

1.1 产琥珀酸纤维杆菌

产琥珀酸纤维杆菌属于纤维杆菌门,与肠道纤维杆菌(Fibrobacter intestinalis)同属,且16S rRNA相似度达92%,是胃肠道能量代谢中关键的纤维素高效分解型细菌;3.84 Mbp的环形基因组编码134个碳水化合物活性酶(carbohydrate-active enzymes,CAZymes),涵盖49个GH、碳水化合物结合模块(carbohydrate-binding modules,CBM)等家族。
核心酶分属GH5、GH8、GH9、GH10等家族,无典型纤维小体及黏附域(cohesin domain,Cohesin)/锚定域(dockerin domain,Dockerin)结构域,31个纤维素酶不含与结晶纤维素结合的CBM1/2/3结构域,部分GH含可与细胞表面相互作用的碱性末端结构域[5]。产琥珀酸纤维杆菌是专注于纤维素降解的代谢特化菌,优先降解纤维素并将其水解为纤维二糖、纤维糊精等产物,经转运蛋白摄入细胞后代谢,葡萄糖用于糖原储存和能量产生,部分纤维二糖会偏离糖酵解途径用于纤维糊精合成及葡萄糖-6-磷酸积累,最终产生琥珀酸、乙酸和甲酸等发酵产物;能水解木聚糖、葡甘聚糖等多种半纤维素,但不利用产物。产琥珀酸纤维杆菌通过移除这些多糖暴露纤维素,能降解所有纤维素同素异形体[7]

1.2 黄色瘤胃球菌

黄色瘤胃球菌是厚壁菌门的一种革兰氏阳性厌氧菌,也是瘤胃中唯一已被证明具有确定性蜂窝小体的物种[9],可以产生黄色色素,在纤维素基质上表现尤为显著。黄色瘤胃球菌优先降解纤维素和纤维二糖,部分菌株还能够代谢葡萄糖、麦芽糖、木糖等。代谢产物以乙酸盐、琥珀酸盐为主,同时还会产生甲酸盐、乳酸盐,伴有微量的氢气(H2)或二氧化碳(CO2)[10]。在附着力特异性方面,黄色瘤胃球菌在黑麦草中既能定植于叶片或茎秆的表皮细胞外表面,也可以附着于厚壁组织,包括韧皮部细胞的木质化部分及切割边缘;在鸭茅、百慕大草中还可以附着于薄壁组织束鞘[8]

1.3 白色瘤胃球菌

白色瘤胃球菌属于厚壁菌门、梭菌目、瘤胃球菌科,菌体呈单球菌或双球菌形态,直径在0.8~2.0 μm,在瘤胃内的丰度较黄色瘤胃球菌更高,代谢与生态功能多样且重要。作为纤维素分解细菌,白色瘤胃球菌在牛、绵羊和山羊等反刍动物瘤胃的纤维分解过程中发挥关键作用。白色瘤胃球菌有着高度专一性,产生的多种GH含有独特的CBM37,对多种多糖具有结合能力[13],仅能降解纤维素和纤维二糖,对其他糖类无利用能力[8],能将碳水化合物转化为乙酸盐、乙醇、甲酸盐、H2和C ${{\mathrm{O}}_{2}}^{\left[14\right]}$;其中,产H2的白色瘤胃球菌在健康个体肠道微生物群中含量丰富,具有益生菌效应和潜在的神经保护作用[12],它的乙醇合成能力为其标志性特征。

1.4 纤维素

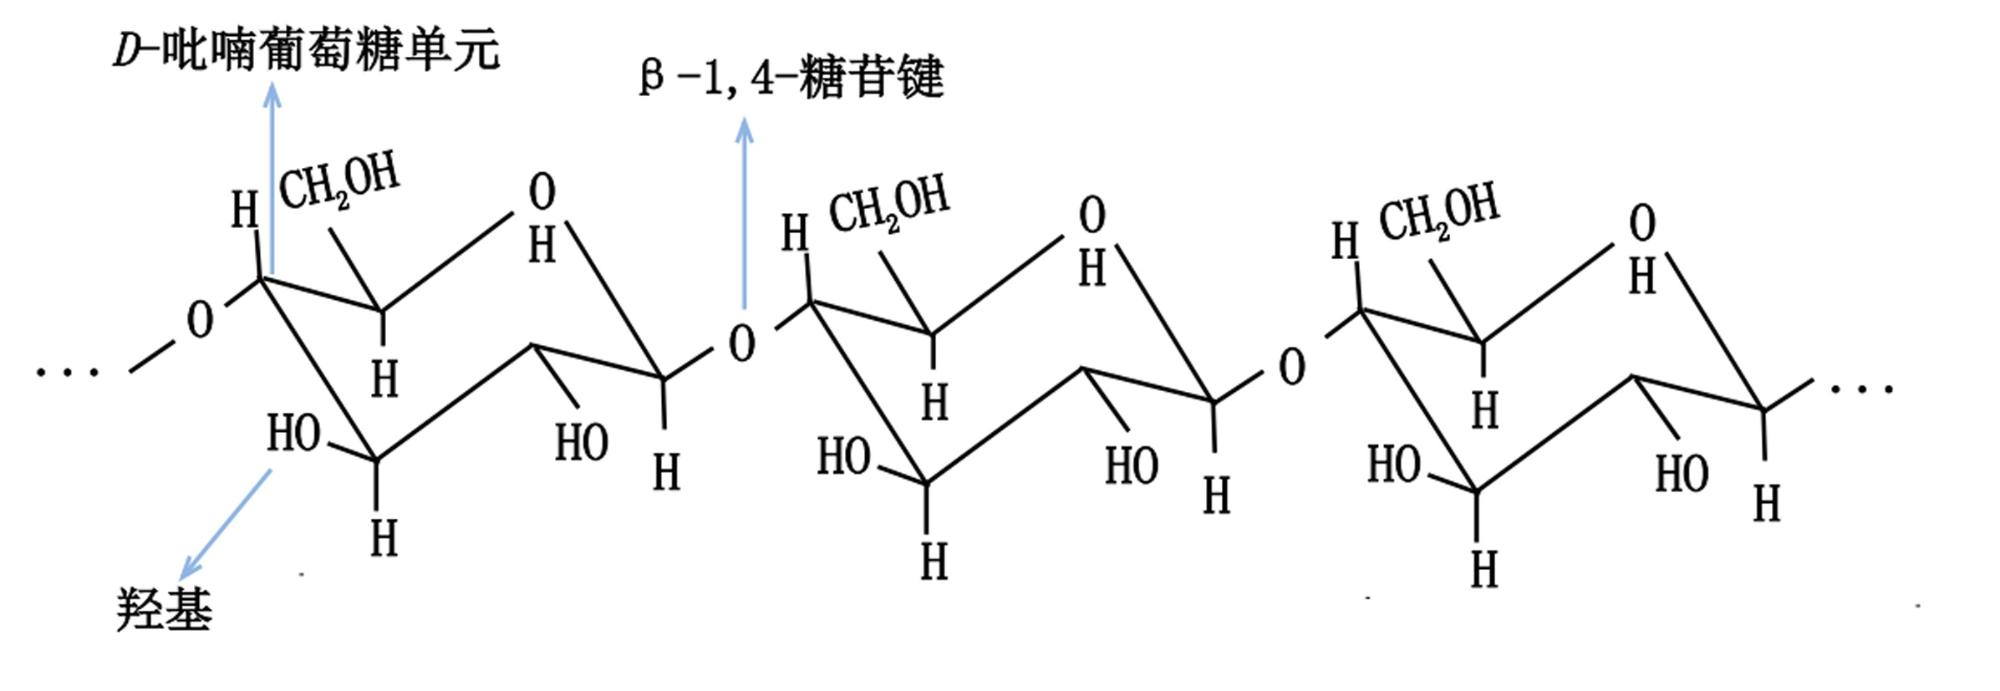
纤维素是一种复杂的多糖,也是植物细胞壁的主要结构成分,其化学式为(C6H10O5 ${{)}_{n}}^{\left[20\right]}$(图1),其长链由β-D-吡喃葡萄糖作为重复单元,通过β-1,4-糖苷键连接而成。其中,每个葡萄糖单元相对前一单元旋转180°构成笔直长链,链间平行排列形成含结晶区与无定形区的半结晶结构。羟基位于C2、C3和C6位置,可形成分子内与分子间氢键,与β-1,4-糖苷键共同维系结构稳定。在纤维素链的末端葡萄糖单元中,C4-OH基团为非还原端,C1-OH基团为还原端[21]
图1 纤维素的化学结构

Fig.1 Chemical structure of cellulose

2 瘤胃细菌纤维素酶类型

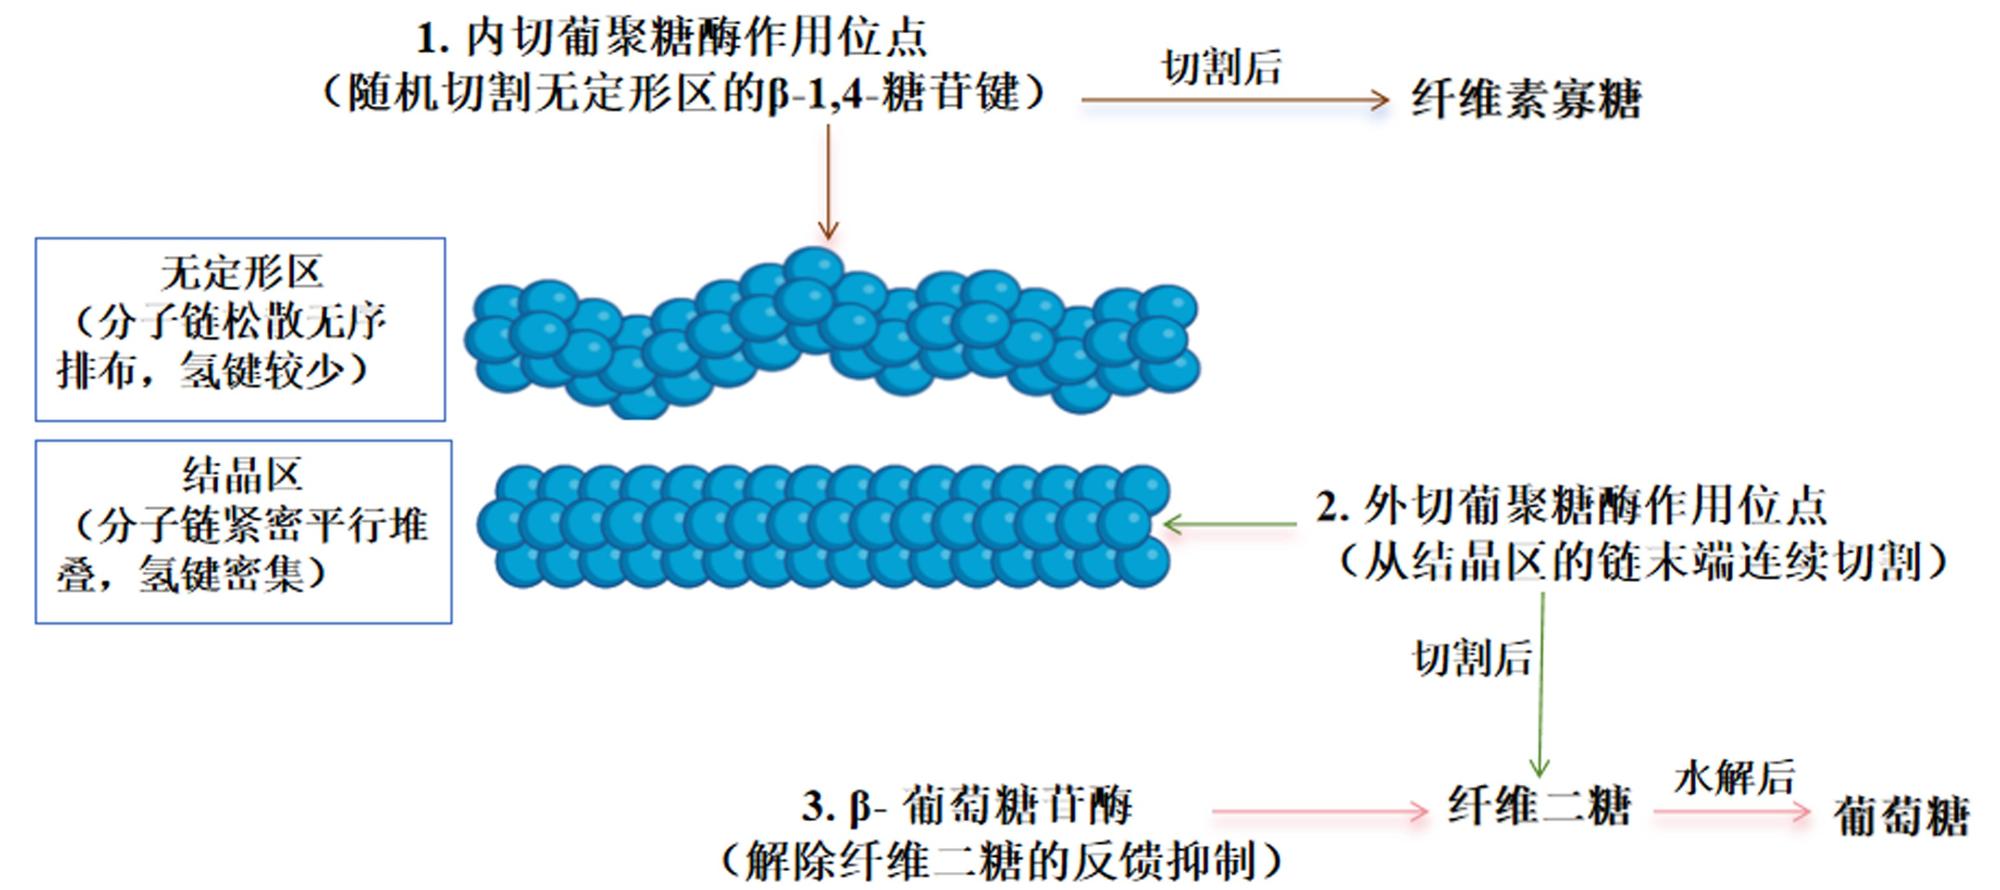
瘤胃细菌是纤维素酶的重要来源之一[22],在瘤胃环境中,黄色瘤胃球菌、白色瘤胃球菌和产琥珀酸纤维杆菌是极为关键的纤维素降解细菌[23]。这些细菌不仅能产生内切葡聚糖酶(endoglucanase,EG)、外切葡聚糖酶(cellobiohydrolase,CBH)和β-葡萄糖苷酶(β-glucosidase,BGL),还具备生成半纤维素酶的能力,在瘤胃内纤维素的降解过程中发挥着不可或缺的作用。大多数纤维素酶属于GH家族,该家族能够水解碳水化合物分子内的糖苷键,其作用于纤维素时,可特异性裂解纤维素分子中葡萄糖基团间的β-1,4-糖苷键,进而将纤维素逐步降解为单体葡萄糖[8]。依据作用位点和功能的差异(图2),纤维素酶可分为EG、CBH和BGL[22]。通过对瘤胃微生物进行宏基因组分析,Brulc等[24]检测到多种与纤维素酶相关的基因,这些基因所编码的酶分别来自不同的GH家族,EG主要来源于GH5和GH9家族,CBH大多来源于GH家族6中,BGL则主要来源于GH1和GH3家族。
图2 纤维素酶作用位点和产物

Fig.2 Action sites and products of cellulase

2.1 EG

EG以不作用链末端、从内部切割的方式,特异性水解纤维素无定形区域的β-1,4-糖苷键,将长链纤维素断为短链纤维寡糖及少量纤维二糖,为后续降解奠定基础。GH5和GH9家族的EG都拥有特定的折叠结构,基本组成单元均包含螺旋和环,二者都有与底物结合的相关结构。GH5家族EG的催化结构域(catalytic domain,CD)具有典型的(βα)8-桶状结构,由8个(βα)模块组成,每个模块包含1个β-折叠股和1个α-螺旋,通过βα-环相连。8个β-折叠股组装成中心β-片层,即桶状结构,周围环绕着8个α-螺旋[25]。各模块对酶的稳定性和活性至关重要,其中的催化氨基酸位于蛋白质活性位点周围的环中,不同模块的组合和相互作用影响酶的整体性能,不同来源GH5家族的EG热稳定性差异大[26]。EG在生物质转化中起重要作用,能作用于多种寡糖底物,通过水解纤维素内部β-1,4-糖苷键创造新的糖链末端,便于后续外切纤维素酶进一步解聚提供作用位点,参与多糖的降解过程。
GH9家族EG具有(α/α)6-桶状折叠结构[27],如AtCelR和TfCel9A。此结构由特定排列的螺旋和环构成,其中螺旋形成活性位点裂隙的底部,为钙离子(Ca2+)提供配体,而环则组成活性位点的表面。活性位点位于CD的裂隙内,包含关键的催化残基。CBM常见的有CBM3c和CBM3a。CBM3c呈β-三明治折叠结构,能辅助引导寡糖进入活性位点裂隙,结合表面朝着活性位点裂隙延伸,通过少量氢键和芳香族残基与纤维素链相互作用,协助CD与底物结合[28]。CBM3a同样具有与纤维素结合的能力,对结晶纤维素有较高的结合亲和力。CD的Ca2+结合位点处于活性位点裂隙附近。
适宜的pH不仅能避免酶蛋白质提前变性,还能改善细胞通透性、维持酶合成的负反馈机制,进而刺激产酶菌株生长。当pH处于6.5~7.5的适宜范围时,菌株生长代谢活跃,纤维素酶产量显著提升。温度通过影响细胞物质运输效率和代谢稳定性调控EG产生,低于最适温度时,细胞对营养物质的运输受阻,产酶相关代谢通路受到抑制,导致EG产量减少,而高于最适温度时,菌株细胞结构和产酶相关蛋白发生变性、构象改变,EG合成能力逐渐下降[29]。羧甲基纤维素(carboxymethyl cellulose,CMC)作为EG产生的最佳碳源和有效诱导剂,对其产量具有关键调控作用,Islam等[30]研究证实,在不同底物中,CMC降解过程会促进产EG微生物的增殖,进而使EG的活性同步增加;Takizawa等[1]在瘤胃液处理CMC的试验中也发现,瘤胃微生物群落的EG功能特征随CMC降解发生显著变化,间接反映了CMC对EG产生的诱导效应。
EG的活性受环境条件、作用底物及时间的综合影响。pH通过改变酶蛋白空间构象和稳定性发挥作用,pH处于6.5~7.5内EG活性最佳,可显著水解纤维素,偏离该范围酶蛋白易变性、活性大幅降低;温度直接决定EG催化效率,温度过高或过低均会破坏活性中心构象,导致活性下降。此外,EG活性与CMC降解速率高度同步且受时间动态调控,Takizawa等[1]通过化学分析、十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)及酶谱分析证实,分子质量为42、50、52、53和101 ku的EG活性呈动态变化,在CMC降解中发挥关键催化作用;在瘤胃复杂环境中,EG活性还会与pH等因素协同作用,共同影响纤维素水解效率。

2.2 CBH

CBH是纤维素降解过程中的限速酶,又被称作纤维二糖水解酶,它是纤维素解聚纤维素酶混合物的关键成分。CBM可以提高纤维素酶对底物的可及性,从而促进纤维素酶的酶促水解[31]。以纤维二糖水解酶TrCel7A为例[32],单分子追踪技术研究其降解纤维素的纳米级动力学发现,里氏木霉Cel7A通过在静态状态和进行性状态间交替来降解细菌纤维素,且可在2种状态下与纤维素结合或解离,其降解纤维素的限速步骤是从静态状态过渡,方式包括从纤维素表面解离或开始进行性运行。这表明加速里氏木霉Cel7A从静态状态的转变,是提升纤维素酶效率的潜在关键路径。纤维二糖水解酶TrCel7A是CBH的一种多结构域酶,由CBM和CD组成,二者通过连接子相连。它由小的CBM、较大的CD和1个短的27个氨基酸的连接子结构域(linker domain,LD)组成[33]。CBM负责结合纤维素,对酶的运动有一定阻碍,但在增强底物结合方面发挥重要作用,进而影响酶的整体活性。温度升高也可以提高酶的活性,酶在运动过程中除利用糖苷键能量外,还借助纤维素解结晶、氢键和纤维二糖溶剂化等能量来维持活性。CD是酶发挥催化和运动功能的关键结构域,它能独立实现与完整酶相似的步移和连续运动,具备完整的运动循环机制。LD则在CBM和CD之间起连接作用,使2个结构域协同工作,共同完成对纤维素的降解。

2.3 BGL

BGL是一种水解纤维素降解产生纤维二糖、纤维三糖等的纤维素酶,大多数生物体利用这种酶将低聚糖水解成葡萄糖。BGL与CBH和EG协同作用,将纤维素聚合物分解为小糖片段,这个过程称为糖化。该过程始于EG的作用,它随机切割纤维素聚合物并释放小片段,然后这些片段被CBH水解形成纤维二糖,最后BGL通过水解β-1,4-糖苷键将纤维二糖转化为葡萄糖。BGL可以根据底物特异性和核苷酸序列同一性进行分类[34]。根据底物特异性,可分为芳基-β-葡萄糖苷酶、纤维二糖酶和具有广泛底物特异性的葡萄糖苷酶[23];BGL主要存在于GH1和GH3家族,还可以根据葡萄糖对催化活性的影响进行功能分类,分为强抑制、葡萄糖耐受、低浓度刺激高浓度抑制和高浓度无抑制[35]。不同家族的BGL在结构上存在差异,但同一家族的催化域具有相似性。属于GH1、GH5和GH30家族的BGL,催化域具有相同的(β/α)8-桶状结构,在活性位点有2个保守的羧酸(-COOH)残基。在GH3家族的活性位点,由2个(β/α)8-桶状结构域、1个六链β-折叠片和两侧的3个α-螺旋组成,活性位点位于(β/α)8和(α/β)6之间。GH9家族的部分BGL含有(α/α)6-桶状结构。这些结构特征决定了酶的催化活性和底物特异性,不同家族的结构差异使得BGL能够作用于不同类型的底物,参与多样化的生化反应。对于GH1家族的BGL,催化过程包含糖基化和去糖基化。在糖基化步骤中,活性位点的一个-COOH基团作为亲核试剂,对底物的异头碳进行攻击,形成葡萄糖-酶中间体[36];另一个-COOH基团作为质子供体,通过向O-糖苷键的氧原子提供氢离子,裂解糖苷键,形成糖基-酶中间体,并释放出糖苷配基[34]。在去糖基化步骤中,之前作为质子供体的-COOH基团此时作为碱基,接受来自水、单糖、二糖等亲核试剂的质子,打破葡萄糖-酶中间复合物,释放出第2个产物,使酶恢复自由状态,完成催化过程[37]。该过程涉及活性位点2个-COOH基团的双置换,底物的异头碳构型在催化过程中保持不变。GH9家族的BGL催化机制为单步反应,属于反转机制,活化水对异头碳进行亲核攻击,导致糖苷配基的单步置换。被置换的糖苷配基通过催化酸(质子供体)进行质子化,水分子中的质子被催化碱(质子受体)提取[38]

3 瘤胃细菌降解纤维素的过程及机制

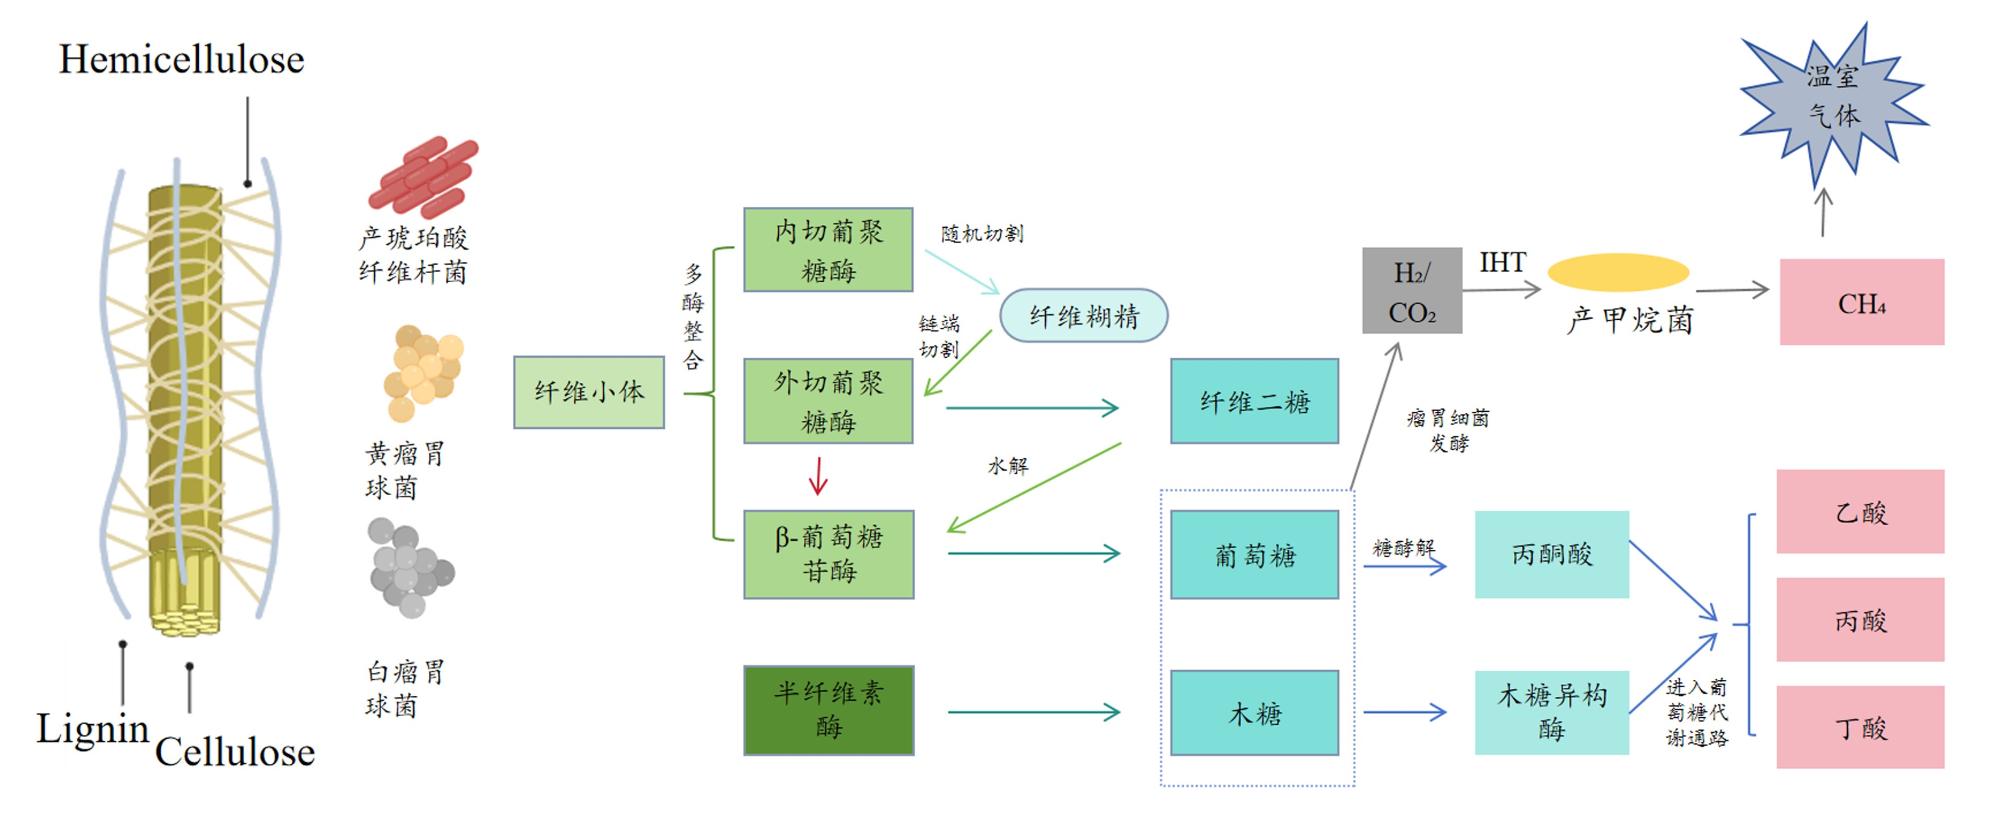
植物细胞壁中,纤维素先被产琥珀酸纤维杆菌、白色或黄色瘤胃球菌黏附,其中,产琥珀酸纤维杆菌借纤维黏液、菌毛及T9ss途径将酶转运至细胞表面,白色瘤胃球菌依赖Ⅳ型菌毛等附着,黄色瘤胃球菌通过Cohesin和Dockerin互作形成纤维小体,与3类纤维素酶协同降解。然后,EG切割纤维素无定形区开链,CBH从链端产纤维二糖,BGL水解其为葡萄糖并解除反馈抑制。产物中纤维糊精、葡萄糖经代谢生成丙酮酸,木糖经异构酶处理后参与代谢;产氢菌生成的H2/CO2通过跨物种氢转移被产甲烷古菌转化为甲烷(CH4),最终生成乙酸、丙酸等挥发性脂肪酸(图3)。
图3 瘤胃内纤维素降解过程

Hemicellulose:半纤维素;Cellulose:纤维素;Lignin:木质素;IHT:跨物种氢转移 interspecies hydrogen transfer;H2:氢气 hydrogen;CO2:二氧化碳 carbon dioxide;CH4:甲烷 methane。

Fig.3 Cellulose degradation process in rumen

3.1 黏附机制

产琥珀酸纤维杆菌、白色或黄色瘤胃球菌产生纤维素酶并在瘤胃微生物群落的纤维素降解中起关键作用。细菌黏附纤维素的能力十分重要,是纤维素快速分解的前提。瘤胃微生物生长速度越快,对纤维素的黏附性越强。Weimer[39]研究表明,黏附具有多方面益处,可以减少纤维素酶浪费、优先获取水解产物、延长细胞在瘤胃的保留时间等,部分细菌在无法黏附纤维素时不能降解纤维素。
在整个降解机制过程中,产琥珀酸纤维杆菌S85先通过纤维黏液、菌毛和特定纤维素结合蛋白黏附在纤维素底物上;接着产生纤维素酶,部分通过T9ss途径转移到细胞表面水解纤维素,生成纤维糊精等产物;之后纤维糊精经特定机制运输到周质进一步加工,产物再进入细胞质参与代谢。Raut等[40]通过定量蛋白质组学分析揭示,产琥珀酸纤维杆菌S85不依赖纤维素小体或细胞外游离酶系统降解纤维素,而是在感应葡萄糖限制时,增强黏附蛋白和降解机制相关蛋白的产生,借助T9ss途径将纤维素酶易位到细胞表面形成多蛋白复合物实现降解。降解产物纤维糊精经特定机制运输加工,过程中细胞包膜重排,环二鸟苷酸(cyclic-di-GMP)参与调节[41];Burnet等[42]运用RNA测序、蛋白质组学和透射电子显微镜,发现产琥珀酸纤维杆菌S85通过纤维黏液和菌毛附着在纤维素纤维上,细胞外分泌纤维素酶,将纤维素降解为纤维糊精后输入周质进一步消化;Neumann等[43]则发现,以Fisuc_1859(Cel9B基因)为代表的部分纤维素酶基因,在纤维素黏附和浮游种群中表达升高,且与纤维素生长速率正相关;Fakih等[44]指出,产琥珀酸纤维杆菌S85紧密黏附底物,通过产生特定纤维素结合蛋白及可能的菌毛介导黏附,在结晶纤维素水解中表现优异,对小麦秸秆纤维素的无定形和结晶区域降解速率一致,可将纤维素降解为纤维糊精、纤维二糖和葡萄糖,且在纤维糊精利用上具明显优势。
白色瘤胃球菌依赖细胞表面的Ⅳ型菌毛使其能够有效附着于纤维素表面,从而为纤维素的降解创造条件。Yeoman等[45]体外研究表明,白色瘤胃球菌在瘤胃纤维素分解过程中,对纤维素的黏附能力突出,通过特定的结构和酶系统可以实现对纤维素的黏附与分解。依赖细胞表面的Ⅳ型菌毛、含有CBM37的GH以及糖萼等细胞外附属物,这些结构协同作用,使其能够有效附着于纤维素表面,在体内纤维素黏附过程中发挥关键作用。白色瘤胃球菌的纤维素酶在初级序列分析和亚细胞定位中,纤维素酶呈中等酸性,具有稳定且热稳定的特性,同时表现出较强的亲水性,并且多被预测为细胞外蛋白[46]

3.2 纤维素酶的协同作用

厌氧细菌和真菌对纤维素有较强的黏附性,通过形成纤维素-酶-微生物复合物促进纤维素水解[47]。瘤胃细菌产生纤维素酶首先需要适宜的生长环境和碳源,不同碳源会影响细菌的生长和相关基因的表达。在基因表达方面,涉及多个基因家族编码不同功能的蛋白质,包括水解糖苷键的GH、参与糖基转移的糖基转移酶,以及具有CBM、促进酶与底物结合的蛋白质等。这些基因表达产生的蛋白质相互协作,完成对纤维素的黏附和降解过程[40]
在纤维素的水解过程中,EG、CBH和BGL相互协作,共同促进纤维素的完全水解。EG首先打开纤维素结构,随机分解纤维素的无定形区域[48],产生新的链端,然后CBH进一步分解多糖链,攻击EG产生的纤维素或纤维四糖的非还原端,产生纤维二糖和纤维三糖作为产物。最终产物通过BGL解除抑制,水解成葡萄糖[8]。三者相互配合,共同促进纤维素降解为葡萄糖[49]
EG被认为在纤维素化合物的几个内部位点引发随机攻击,使聚合物更容易受到其他纤维水解酶的水解。EG可随机切割纤维素无定形区β-1,4-糖苷键,生成短链寡糖并瓦解晶体结构。EG随机水解纤维素链成较短的多糖,纤维二糖水解酶从非还原端或还原端水解β-1,4-糖苷键以释放纤维糖和BGL,将纤维糖消化成葡萄糖[50]。CBH(EC3.2.1.91)在降解纤维素时,作用位点为从纤维素链的非还原端连续切割,每次释放纤维二糖或纤维三糖[1],且特异性地优先作用于EG预处理的链端,避免对结晶区进行直接攻击[8]。BGL(EC3.2.1.21)主要功能为水解纤维二糖、纤维三糖等寡糖的末端β-1,4键,将其分解为单体葡萄糖[8]。这一作用不仅实现了寡糖的最终降解,更重要的是能够有效解除纤维二糖对前2类纤维素酶的反馈抑制。由于纤维二糖的积累会阻碍EG和CBH的活性,而BGL通过及时水解纤维二糖,缓解了这种反馈抑制[1],进而提升了整个纤维素水解过程的效率,在纤维素降解过程中发挥着关键的限速调节作用。

3.3 纤维小体对纤维素的降解

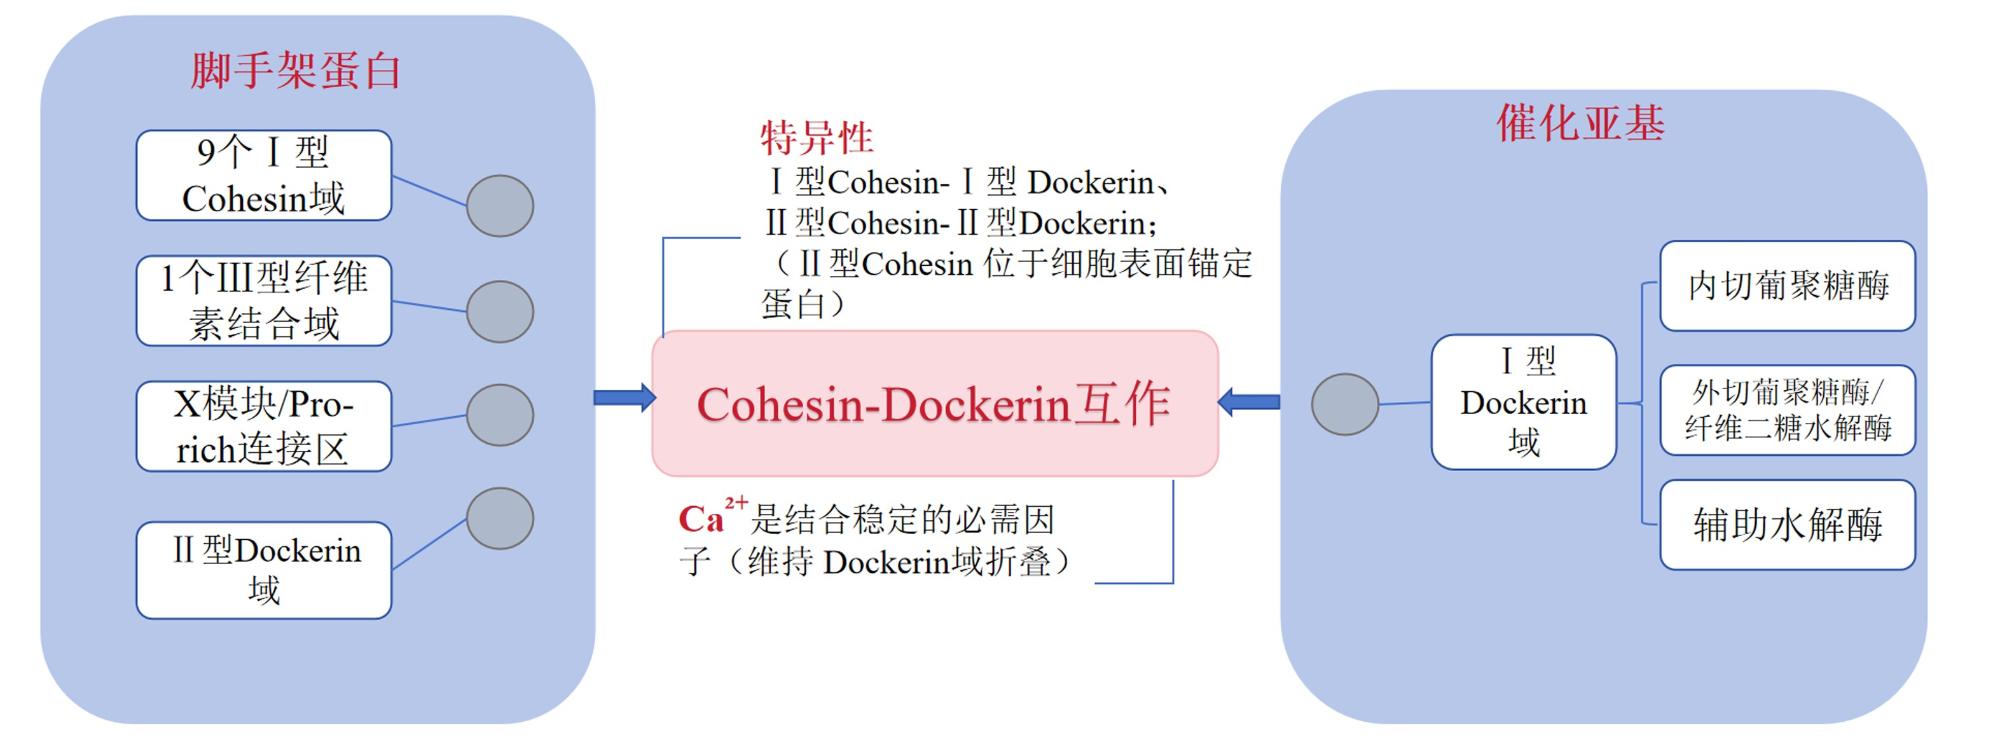
在瘤胃中,核心的纤维素降解细菌依赖纤维小体高效分解植物纤维,这一复合体作为厌氧微生物特有的多酶协同系统,实现高度依赖、高特异性、强结合力的Cohesin-Dockerin互作[51](图4)。互作需Ca2+维持结构稳定,黄色瘤胃球菌的纤维小体结构最为复杂,依赖多个支架蛋白与酶的协同作用发挥功能。其中,CBM模块是纤维小体靶向底物的关键,可特异性结合纤维素表面,减少酶扩散损失[52];作为锚定蛋白的ScaE通过分选酶基序将整个复合体固定在细胞表面,初级支架蛋白ScaA借助CBM3靶向纤维素并暴露降解位点,多价衔接支架蛋白ScaB则通过增加Cohesin数量整合更多降解酶,单价衔接支架蛋白ScaC进一步调节Cohesin特异性以优化酶的组成(适配GH48、GH9、GH10等[53]),这类纤维小体多采用特化的Type Ⅲ Cohesin-Dockerin互作,部分黄色瘤胃球菌的Dockerin还含有额外的螺旋与结构插入,以适应瘤胃复杂的多糖环境;在降解过程中,不同酶促亚基分工明确且协同高效,GH9负责切断纤维素链产生末端,GH48沿链逐步水解。CBH是纤维素降解的限速酶,需整合到纤维小体中才能发挥高效催化作用,游离状态活性显著降低。BGL分解纤维寡糖以避免产物抑制,GH10/GH11则降解半纤维素去除物理屏障,这种高效协同正是依赖Dockerin与Cohesin的强互作,确保酶在空间上的紧密邻近,纤维小体“空间邻近效应提升降解效率”的核心机制对结晶纤维素的降解协同效率比游离酶混合体系提升2~3倍。同时,纤维小体的表达与组装可响应底物变化进行动态调控,遵循碳源、生长速率对纤维小体相关基因表达的调控规律,如葡萄糖等小分子碳源会通过碳代谢阻遏抑制基因表达,低生长速率下纤维小体基因转录水平显著升高[52],未分类Cohesin和多功能Dockerin蛋白等在瘤胃微生物中广泛分布,部分未培养菌还会释放可溶性糖供其他菌株利用,形成互利的降解网络;而白色瘤胃球菌虽仅含1个Cohesin,但凭借大量含Dockerin的蛋白仍在纤维素降解中发挥辅助作用,最终黄色瘤胃球菌和白色瘤胃球菌共同支撑了瘤胃高效的纤维分解功能,适配瘤胃厌氧环境下微生物的能量代谢策略。
图4 纤维小体的结构和组成

Cohesin:黏附域 cohesin domain;Dockerin:锚定域 dockerin domain;Ca2+:钙离子 calcium ion。

Fig.4 Structure and composition of cellulosome

3.4 微生物的协同作用

3.4.1 初级降解菌与次级降解菌的互作

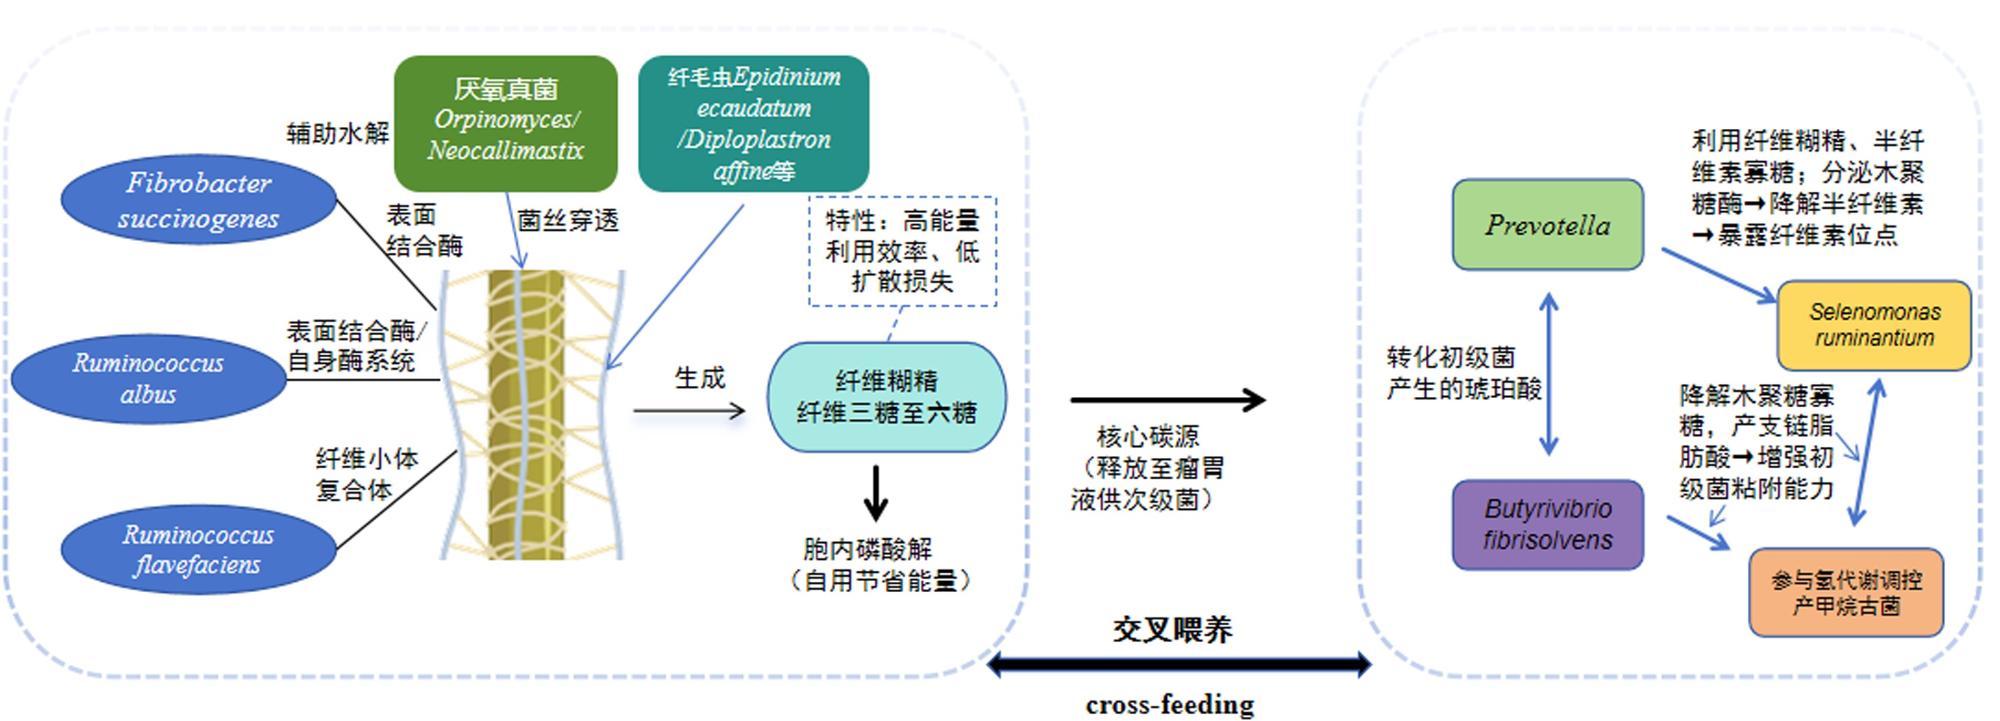
瘤胃内初级降解菌与次级降解菌的互作核心为交叉喂养(cross-feeding)[39],初级降解菌产生营养底物与次级降解菌优化降解环境的协同,是瘤胃高效降解纤维素及维持微生态稳定的关键机制(图5)。初级降解菌以产琥珀酸纤维杆菌、白色瘤胃球菌、黄色瘤胃球菌3类优势细菌为主供给营养,以新美鞭菌属(Neocallimastix)、奥氏甲烷杆菌属(Orpinomyces)等厌氧真菌及无尾艾氏纤毛虫(Epidinium ecaudatum)、亲和双膜纤毛虫(Diploplastron affine)等纤毛虫辅助。这类微生物可通过表面结合酶、纤维小体复合体或菌丝穿透作用,将难降解的结晶纤维素水解为小分子糖类。次级降解菌则以营养泛化微生物为主,负责互作中的环境调控,无法直接降解纤维素但依赖初级降解菌的水解产物生长,核心类群包括瘤胃优势菌属普雷沃氏菌属(Prevotella),它可以可利用纤维糊精与半纤维素寡糖;反刍月形单胞菌(Selenomonas ruminantium)能转化初级降解菌产生的琥珀酸;溶纤维丁酸弧菌(Butyrivibrio fibrisolvens)降解木聚糖寡糖及产甲烷古菌,代谢活动可反向优化初级降解菌的降解条件。
图5 瘤胃内初级降解菌与次级降解菌交叉喂养示意图

Fibrobacter succinogenes:产琥珀酸纤维杆菌;Ruminococcus albus:白色瘤胃球菌;Ruminococcus flavefaciens:黄色瘤胃球菌;Orpinomyces:奥氏甲烷杆菌属;Neocallimastix:新美鞭菌属;Epidinium ecaudatum:无尾艾氏纤毛虫;Diploplastron affine:亲和双膜纤毛虫;Prevotella:普雷沃氏菌属;Butyrivibrio fibrisolvens:溶纤维丁酸弧菌;Selenomonas ruminantium:反刍月形单胞菌。

Fig.5 Schematic diagram of cross-feeding between primary degrading bacteria and secondary degrading bacteria in rumen

初级降解菌水解纤维素的主要产物为纤维糊精,以纤维三糖至纤维六糖为主。初级降解菌可通过胞内磷酸解途径优先利用纤维糊精节省能量,同时仍有部分纤维糊精进入瘤胃液中,为次级降解菌提供核心碳源。次级降解菌通过多途径优化初级降解菌的降解环境:溶纤维丁酸弧菌产生的分支链脂肪酸是白色瘤胃球菌等初级降解菌生长的必需营养,可增强初级降解菌对纤维素的黏附能力。

3.4.2 跨物种氢转移

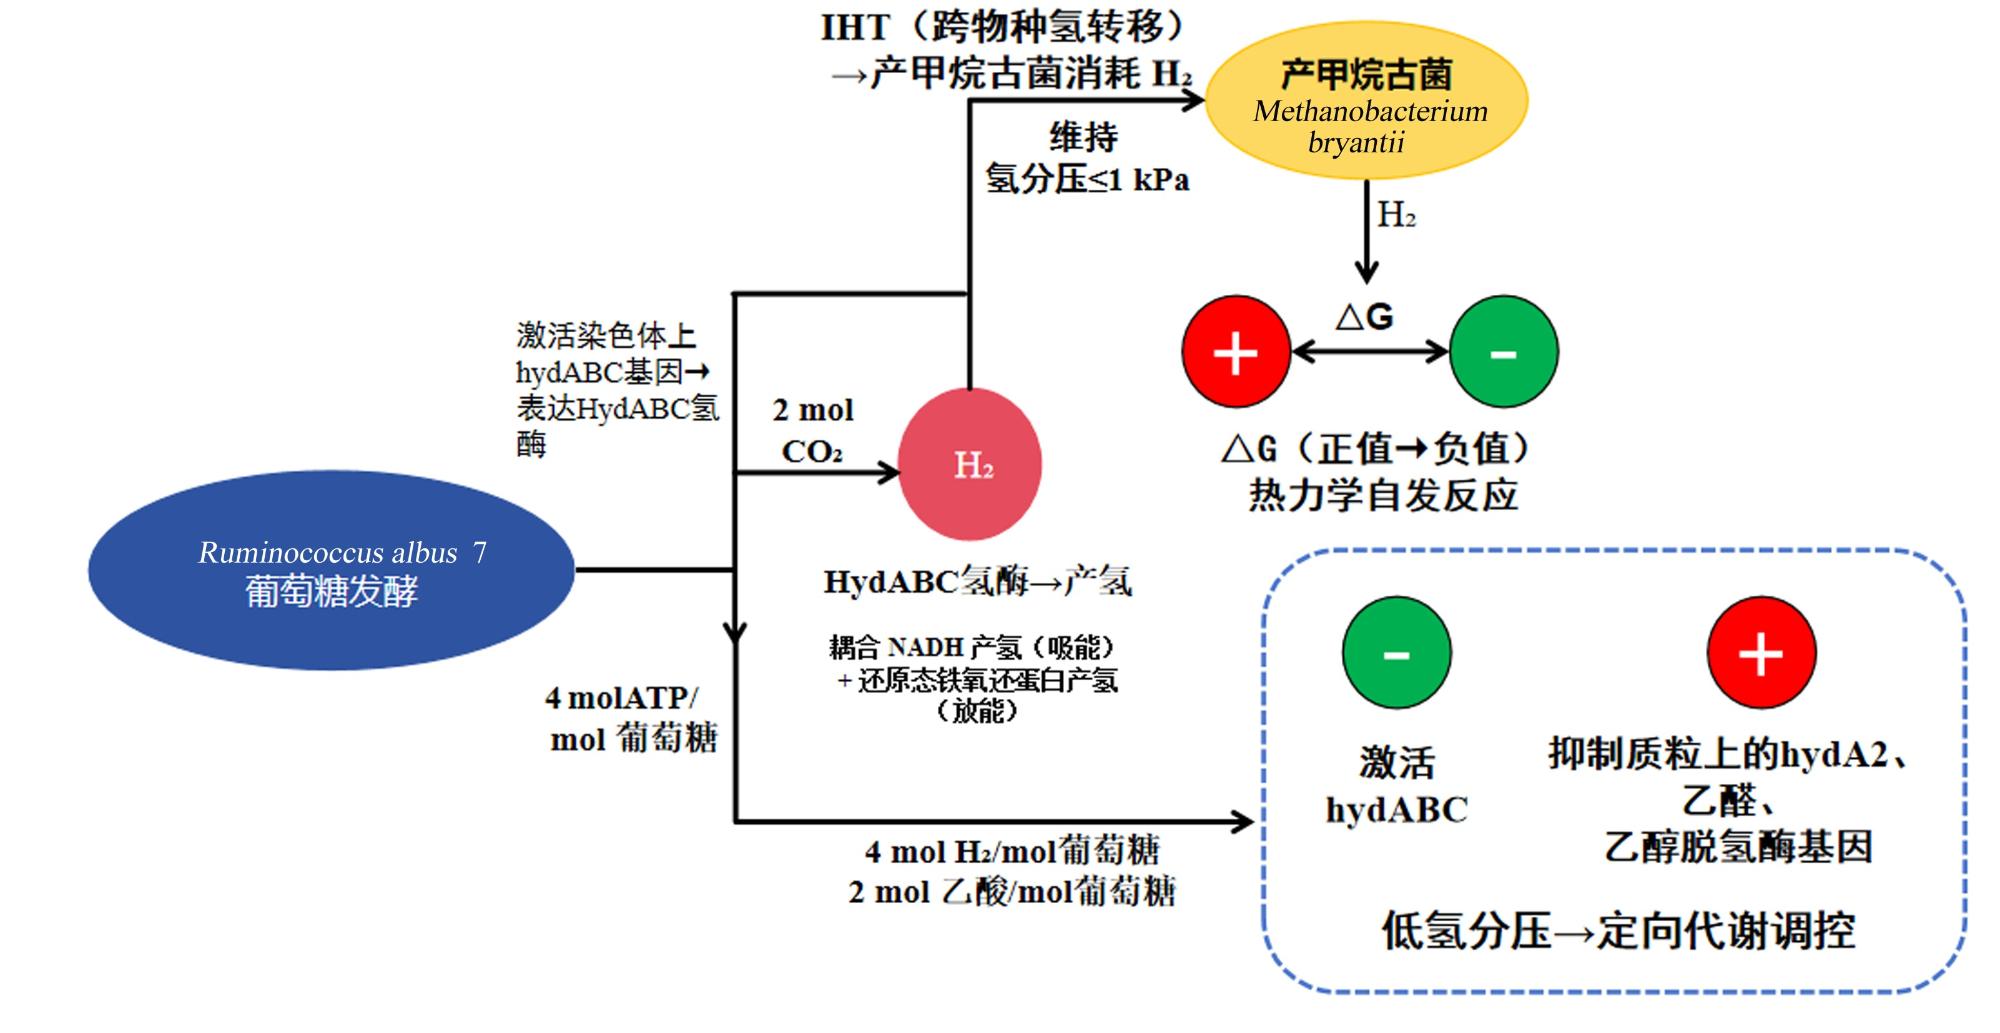
Bryant等[54]首次在瘤胃中观察到产甲烷古菌与产氢菌的跨物种氢转移现象,提出该过程是厌氧环境中维持低氢分压的关键,可驱动纤维素降解的热力学反应。在Zheng等[55]研究中,这一理论得到进一步实证。瘤胃内以产甲烷古菌为代表的次级微生物,通过跨物种氢转移主动消耗初级降解菌在纤维素降解过程中产生的H2,将瘤胃氢分压精准维持在1 kPa以下,这一低氢分压环境直接改变了初级降解菌代谢的热力学条件。以白色瘤胃球菌7为例(图6),白色瘤胃球菌7葡萄糖发酵的吉布斯自由能(ΔG)由正值转为负值,不仅让纤维素降解反应具备自发进行的热力学基础,更为核心氢酶HydABC氢化酶(HydABC)的功能发挥提供了必要条件。低氢分压环境对白色瘤胃球菌7的氢酶系统与发酵路径具有定向调控作用:低氢分压可激活白色瘤胃球菌7染色体上HydABC基因编码的HydABC,通过耦合还原型烟酰胺腺嘌呤二核苷酸(NADH)产氢吸能反应与还原态铁氧还蛋白产氢放能反应高效催化H2生成,同时驱动白色瘤胃球菌7的发酵产生乙酸,提高ATP产率。1 mol葡萄糖可产生2 mol乙酸、2 mol CO2与4 mol H2,ATP产量达4 mol,既满足白色瘤胃球菌7自身生长需求,又能为产甲烷古菌持续提供稳定氢源。低氢分压还通过氧化还原传感转录抑制因子抑制质粒pRumal01上hydA2基因与双功能乙醛、乙醇脱氢酶基因的表达,避免白色瘤胃球菌7生成乙醇,从而维持高效的乙酸代谢。
图6 瘤胃内白色瘤胃球菌7与产甲烷古菌的跨物种氢转移及代谢调控机制示意图

Ruminococcus albus 7:白色瘤胃球菌7;IHT:跨物种氢转移 interspecies hydrogen transfer;HydABC:HydABC氢化酶 HydABC hydrogenase;H2:氢气 hydrogen;CO2:二氧化碳 carbon dioxide;NADH:还原型烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide (reduced form)。

Fig.6 Schematic diagram of interspecies hydrogen transfer and metabolic regulation mechanism between

Ruminococcus albus 7 and methanogenic archaea in rumen

瘤胃次级微生物的作用不局限于氢消耗,还有对降解底物的辅助功能。例如,普雷沃氏菌属作为瘤胃优势次级降解菌,不能直接降解纤维素,但其分泌的木聚糖酶可高效降解半纤维素,解除半纤维素对纤维素的物理屏障作用,为初级降解菌暴露更多可降解位点,间接提升纤维素降解效率,与产甲烷古菌的跨物种氢转移形成底物优化和氢代谢调控的双重作用。这种以跨物种氢转移为核心的初级和次级降解菌互作可以实现纤维素、纤维糊精到挥发性脂肪酸的营养转化,挥发性脂肪酸作为宿主主要能量来源,完整衔接植物生物质、微生物代谢物和宿主营养。并且,即便某些初级降解菌丰度出现波动,其他初级降解菌与次级降解菌可通过代谢互补维持整体降解效率,避免单一菌群变化对瘤胃纤维降解功能的冲击,保障瘤胃微生态的长期稳定。

4 瘤胃纤维素酶在反刍动物生产中的应用与挑战

瘤胃纤维素酶在反刍动物生产中主要以纤维降解酶复合体为核心应用形式,该复合体包含纤维素酶、半纤维素酶、BGL等关键组分,酶源主要分为真菌和细菌两大类,不同来源的酶在底物特异性与环境适应性上存在显著差异;其中,里氏木霉发酵提取物以木聚糖酶和纤维素酶为核心成分,最适作用条件为pH 4.8、50 ℃,其突变菌株SCB18所产纤维素酶的BGL活性最高可达2 169 U/mL,黑曲霉来源的木聚糖酶活性达50 000 U/g,对非淀粉多糖具备较强的降解能力[56]
瘤胃纤维素酶除常规的饲粮添加、直接灌服外,体外饲料底物预处理、青贮过程添加或与饲料提前形成稳定复合物的预处理策略也有应用。饲粮添加可根据养殖对象灵活调整剂量,直接灌服多用于消化功能较弱的反刍动物个体,能确保精准作用于瘤胃[57],青贮过程添加或复合物预处理则能促进饲料的同型乳酸发酵,提前降解植物细胞壁结构[58]。肉牛饲粮中添加纤维酶复合制剂可显著提高干物质和酸性洗涤纤维的采食量,还能降低瘤胃平均pH,提高瘤胃丙酸摩尔比例,呈降低瘤胃乙酸/丙酸比值,对高质量饲粮的总挥发性脂肪酸产量有提升趋势,但不会影响体外甲烷产量,同时也可以通过增加低质量饲粮的半纤维素采食量,弥补反刍动物的营养摄入缺陷;李菁等[59]、许莹等[60]、李奎[61]的研究也均证实,基础饲粮中添加酶制剂或复合酶制剂可显著提升肉牛生长性能、养分表观消化率和平均日增重,改善屠宰性能和胴体品质,提高养殖经济效益,同时对血清总蛋白、甘油三酯含量存在提升趋势。
然而,该技术仍面临诸多挑战,瘤胃内pH与温度波动及胃蛋白酶的作用易导致外源酶活性流失,酶制剂与饲料类型的适配性差异显著。高效酶制剂的发酵生产与定制化开发成本较高,且受养殖对象品种、瘤胃微生物群落差异影响,应用效果一致性难以保障,限制了其规模化推广与精准应用。

5 小结与展望

瘤胃细菌纤维素降解系统兼具复杂性与高效性,复杂性体现在优势降解菌产琥珀酸纤维杆菌、黄色瘤胃球菌、白色瘤胃球菌分属不同门类,且进化出独特降解策略,例如,产琥珀酸纤维杆菌的T9ss途径、黄色瘤胃球菌的纤维小体、白色瘤胃球菌的特异性CBM。多级协同下,EG、CBH与BGL形成“断裂长链-产生寡糖-水解寡糖”的阶梯式协同酶系,初级降解菌与次级降解菌的交叉喂养、产氢菌与产甲烷古菌的跨物种氢转移构成复杂微生物互作网络;高效性则源于纤维小体Cohesin-Dockerin互作的空间邻近效应,它的结晶纤维素降解效率较游离酶高2~3倍,低氢分压下反应热力学优化及群落功能互补。
多组学技术是解析该系统完整机制的关键,宏基因组鉴定纤维素酶相关功能基因,宏转录组揭示基因表达调控规律,例如,产琥珀酸纤维杆菌葡萄糖限制下的基因表达变化。宏蛋白质组明确酶复合体组成与作用途径,代谢组捕捉物质交换与代谢流动,例如,交叉喂养中的纤维糊精传递。未来可基于这些认知,通过筛选高效降解菌株、基因工程改造优势菌、开发复合酶制剂与优化饲料预处理、调控跨物种氢转移,精准调控瘤胃微生态,进而提升反刍动物生产性能并减少甲烷排放,助力畜牧业可持续发展。
[1]
TAKIZAWA S, ASANO R, FUKUDA Y, et al. Change of endoglucanase activity and rumen microbial community during biodegradation of cellulose using rumen microbiota[J]. Frontiers in Microbiology, 2020,11:603818.

[2]
冯薇, 王加启, 刘开朗, 等. 参与瘤胃内纤维素降解过程的主要微生物研究进展[J]. 中国畜牧兽医, 2011, 38(2):37-42.

FENG W, WANG J Q, LIU K L, et al. The research advance of the processes of cellulose degradation in rumen and related microoganisms[J]. China Animal Husbandry & Veterinary Medicine, 2011, 38(2):37-42. (in Chinese)

[3]
LI J H, ZHONG H Z, RAMAYO-CALDAS Y, et al. A catalog of microbial genes from the bovine rumen unveils a specialized and diverse biomass-degrading environment[J]. GigaScience, 2020, 9(6):giaa057.

[4]
JUN H S, QI M, HA J K, et al. Fibrobacter succinogenes,a dominant fibrolytic ruminal bacterium:transition to the post genomic era[J]. Asian-Australasian Journal of Animal Sciences, 2007, 20(5):802-810.

DOI

[5]
QI M, NELSON K E, DAUGHERTY S C, et al. Novel molecular features of the fibrolytic intestinal bacterium Fibrobacter intestinalis not shared with Fibrobacter succinogenes as determined by suppressive subtractive hybridization[J]. Journal of Bacteriology, 2005, 187(11):3739-3751.

DOI

[6]
RUSSELL J B, MUCK R E, WEIMER P J. Quantitative analysis of cellulose degradation and growth of cellulolytic bacteria in the rumen[J]. FEMS Microbiology Ecology, 2009, 67(2):183-197.

DOI PMID

[7]
SUEN G, WEIMER P J, STEVENSON D M, et al. The complete genome sequence of Fibrobacter succinogenes S85 reveals a cellulolytic and metabolic specialist[J]. PLoS One, 2011, 6(4):e18814.

DOI

[8]
HUA D K, HENDRIKS W H, XIONG B H, et al. Starch and cellulose degradation in the rumen and applications of metagenomics on ruminal microorganisms[J]. Animals, 2022, 12(21):3020.

DOI

[9]
BULE P, ALVES V D, LEITÃO A, et al. Single binding mode integration of hemicellulose-degrading enzymes via adaptor scaffoldins in Ruminococcus flavefaciens cellulosome[J]. Journal of Biological Chemistry, 2016, 291(52):26658-26669.

DOI

[10]
STEWART C S, DUNCAN S H, RICHARDSON A J, et al. The inhibition of fungal cellulolysis by cell-free preparations from Ruminococci[J]. FEMS Microbiology Letters, 1992, 76(1/2):83-87.

DOI

[11]
FONDEVILA M, DEHORITY B A. Interactions between Fibrobacter succinogenes,Prevotella ruminicola,and Ruminococcus flavefaciens in the digestion of cellulose from forages[J]. Journal of Animal Science, 1996, 74(3):678-684.

DOI

[12]
CEREIJO A E, ASENCION D M D, BALLICORA M A, et al. Regulatory properties of the ADP-glucose pyrophosphorylase from the clostridial Firmicutes member Ruminococcus albus[J]. Journal of Bacteriology, 2018, 200(17):e00172-18.

[13]
EZER A, MATALON E, JINDOU S, et al. Cell surface enzyme attachment is mediated by family 37 carbohydrate-binding modules,unique to Ruminococcus albus[J]. Journal of Bacteriology, 2008, 190(24):8220-8222.

DOI

[14]
PARK J, LEE J, YEOM Z, et al. Neuroprotective effect of Ruminococcus albus on oxidatively stressed SH-SY5Y cells and animals[J]. Scientific Reports, 2017, 7(1):14520.

DOI

[15]
RESCH M G, DONOHOE B S, BAKER J O, et al. Fungal cellulases and complexed cellulosomal enzymes exhibit synergistic mechanisms in cellulose deconstruction[J]. Energy & Environmental Science, 2013, 6(6):1858.

[16]
POLAN C E, MCNEILL J J, TOVE S B. Biohydrogenation of unsaturated fatty acids by rumen bacteria[J]. Journal of Bacteriology, 1964, 88(4):1056-1064.

DOI

[17]
MILLER T L, JENESEL S E. Enzymology of butyrate formation by Butyrivibrio fibrisolvens[J]. Journal of Bacteriology, 1979, 138(1):99-104.

DOI

[18]
DALRYMPLE B P, SWADLING Y, LAYTON I, et al. Distribution and evolution of the xylanase genes xynA and xynB and their homologues in strains of Butyrivibrio fibrisolvens[J]. Applied and Environmental Microbiology, 1999, 65(8):3660-3667.

DOI

[19]
BETANCUR-MURILLO C L, AGUILAR-MARÍN S B, JOVEL J. Prevotella:a key player in ruminal metabolism[J]. Microorganisms, 2022, 11(1):1.

DOI

[20]
MARINHO E. Cellulose:a comprehensive review of its properties and applications[J]. Sustainable Chemistry for the Environment, 2025,11:100283.

[21]
NAOMI R, BT HJ IDRUS R, FAUZI M B. Plant-vs. bacterial-derived cellulose for wound healing:a review[J]. International Journal of Environmental Research and Public Health, 2020, 17(18):6803.

DOI

[22]
WAN X R, SUNKANG Y J, CHEN Y J, et al. Co-expression of endoglucanase and cellobiohydrolase from yak rumen in lactic acid bacteria and its preliminary application in whole-plant corn silage fermentation[J]. Frontiers in Microbiology, 2024,15:1442797.

[23]
CAI S C, LI J B, HU F Z, et al. Cellulosilyticum ruminicola,a newly described rumen bacterium that possesses redundant fibrolytic-protein-encoding genes and degrades lignocellulose with multiple carbohydrate- borne fibrolytic enzymes[J]. Applied and Environmental Microbiology, 2010, 76(12):3818-3824.

DOI

[24]
BRULC J M, ANTONOPOULOS D A, BERG MILLER M E, et al. Gene-centric metagenomics of the fiber-adherent bovine rumen microbiome reveals forage specific glycoside hydrolases[J]. Proceedings of the National Academy of Sciences, 2009, 106(6):1948-1953.

DOI

[25]
ZHENG F, VERMAAS J V, ZHENG J, et al. Activity and thermostability of GH5 endoglucanase chimeras from mesophilic and thermophilic parents[J]. Applied and Environmental Microbiology, 2019, 85(5):e02079-18.

[26]
ODENYO A A, MACKIE R I, STAHL D A, et al. The use of 16S rRNA-targeted oligonucleotide probes to study competition between ruminal fibrolytic bacteria:development of probes for Ruminococcus species and evidence for bacteriocin production[J]. Applied and Environmental Microbiology, 1994, 60(10):3688-3696.

DOI

[27]
KUCH N J, KUTSCHKE M E, PARKER A, et al. Contribution of calcium ligands in substrate binding and product release in the Acetovibrio thermocellus glycoside hydrolase family 9 cellulase CelR[J]. Journal of Biological Chemistry, 2023, 299(5):104655.

DOI

[28]
ALI E, ZHAO G S, SAKKA M, et al. Functions of family-22 carbohydrate-binding module in Clostridium thermocellum Xyn10C[J]. Bioscience,Biotechnology & Biochemistry, 2005, 69(1):160-165.

[29]
IBRAHIM A M, HAMOUDA R A, EL-NAGGAR N E A, et al. Bioprocess development for enhanced endoglucanase production by newly isolated bacteria,purification,characterization and in-vitro efficacy as anti-biofilm of Pseudomonas aeruginosa[J]. Scientific Reports, 2021, 11(1):9754.

DOI

[30]
ISLAM F, ROY N. Screening, purification and characterization of cellulase from cellulase producing bacteria in molasses[J]. BMC Research Notes, 2018, 11(1):445.

DOI

[31]
HU Y M, LI H N, RAN Q P, et al. Effect of carbohydrate binding modules alterations on catalytic activity of glycoside hydrolase family 6 exoglucanase from Chaetomium thermophilum to cellulose[J]. International Journal of Biological Macromolecules, 2021,191:222-229.

[32]
HAVILAND Z K, NONG D G, VASQUEZ KUNTZ K L, et al. Nanoscale dynamics of cellulose digestion by the cellobiohydrolase TrCel7A[J]. The Journal of Biological Chemistry, 2021, 297(3):101029.

DOI

[33]
BRADY S K, SREELATHA S, FENG Y N, et al. Cellobiohydrolase 1 from Trichoderma reesei degrades cellulose in single cellobiose steps[J]. Nature Communications, 2015, 6(1):10149.

DOI

[34]
SRIVASTAVA N, RATHOUR R, JHA S, et al. Microbial beta glucosidase enzymes:recent advances in biomass conversation for biofuels application[J]. Biomolecules, 2019, 9(6):220.

DOI

[35]
RAJAN S S, YANG X J, COLLART F, et al. Novel catalytic mechanism of glycoside hydrolysis based on the structure of an NAD+/Mn2+ -dependent phospho-alpha-glucosidase from Bacillus subtilis[J]. Structure, 2004, 12(9):1619-1629.

DOI

[36]
SINGH G, VERMA A K, KUMAR V. Catalytic properties,functional attributes and industrial applications of β-glucosidases[J]. 3 Biotech, 2016, 6(1):3.

DOI

[37]
LITZINGER S, FISCHER S, POLZER P, et al. Structural and kinetic analysis of Bacillus subtilis N-acetylglucosaminidase reveals a unique Asp-His dyad mechanism[J]. Journal of Biological Chemistry, 2010, 285(46):35675-35684.

DOI

[38]
MELEIRO L P, SALGADO J C S, MALDONADO R F, et al. Engineering the GH1 β-glucosidase from Humicola insolens:insights on the stimulation of activity by glucose and xylose[J]. PLoS One, 2017, 12(11):e0188254.

DOI

[39]
WEIMER P J. Degradation of cellulose and hemicellulose by ruminal microorganisms[J]. Microorganisms, 2022, 10(12):2345.

DOI

[40]
RAUT M P, KARUNAKARAN E, MUKHERJEE J, et al. Influence of substrates on the surface characteristics and membrane proteome of Fibrobacter succinogenes S85[J]. PLoS One, 2015, 10(10):e0141197.

DOI

[41]
RAUT M P, COUTO N, KARUNAKARAN E, et al. Deciphering the unique cellulose degradation mechanism of the ruminal bacterium Fibrobacter succinogenes S85[J]. Scientific Reports, 2019, 9(1):16542.

DOI

[42]
BURNET M C, DOHNALKOVA A C, NEUMANN A P, et al. Evaluating models of cellulose degradation by fibrobacter succinogenes S85[J]. PLoS One, 2015, 10(12):e0143809.

DOI

[43]
NEUMANN A P, WEIMER P J, SUEN G. A global analysis of gene expression in Fibrobacter succinogenes S85 grown on cellulose and soluble sugars at different growth rates[J]. Biotechnology for Biofuels, 2018, 11(1):295.

DOI

[44]
FAKIH I, GOT J, ROBLES-RODRIGUEZ C E, et al. Dynamic genome-based metabolic modeling of the predominant cellulolytic rumen bacterium Fibrobacter succinogenes S85[J]. mSystems, 2023, 8(3):e0102722.

DOI

[45]
YEOMAN C J, FIELDS C J, LEPERCQ P, et al. In vivo competitions between Fibrobacter succinogenes,Ruminococcus flavefaciens,and Ruminoccus albus in a gnotobiotic sheep model revealed by multi-omic analyses[J]. mBio, 2021, 12(2):e03533-20.

[46]
HODA A, TAFAJ M, SALLAKU E. In silico structural,functional and phylogenetic analyses of cellulase from Ruminococcus albus[J]. Journal of Genetic Engineering and Biotechnology, 2021, 19(1):58.

DOI

[47]
LYND L R, WEIMER P J, VAN ZYL W H, et al. Microbial cellulose utilization:fundamentals and biotechnology[J]. Microbiology and Molecular Biology Reviews, 2002, 66(3):506-577.

DOI

[48]
YOSHIMATSU M, TOYODA A, ONIZAWA N, et al. Biochemical characterization of cellulose-binding proteins (CBPA and CBPB) from the rumen cellulolytic bacterium Eubacterium cellulosolvens 5[J]. Bioscience,Biotechnology & Biochemistry, 2007, 71(10):2577-2580.

[49]
XIE Y Y, SUN H Z, XUE M Y, et al. Metagenomics reveals differences in microbial composition and metabolic functions in the rumen of dairy cows with different residual feed intake[J]. Animal Microbiome, 2022, 4(1):19.

DOI PMID

[50]
NGUYEN K H V, DAO T K, NGUYEN H D, et al. Some characters of bacterial cellulases in goats’ rumen elucidated by metagenomic DNA analysis and the role of fibronectin 3 module for endoglucanase function[J]. Animal Bioscience, 2021, 34(5):867-879.

DOI

[51]
BAYER E A, BELAICH J P, SHOHAM Y, et al. The cellulosomes:multienzyme machines for degradation of plant cell wall polysaccharides[J]. Annual Review of Microbiology, 2004,58:521-554.

[52]
PERCIVAL ZHANG Y H, HIMMEL M E, MIELENZ J R. Outlook for cellulase improvement:screening and selection strategies[J]. Biotechnology Advances, 2006, 24(5):452-481.

DOI

[53]
ARTZI L, BAYER E A, MORAÏS S. Cellulosomes:bacterial nanomachines for dismantling plant polysaccharides[J]. Nature Reviews Microbiology, 2017, 15(2):83-95.

DOI

[54]
BRYANT M P, WOLIN E A, WOLIN M J, et al. Methanobacillus omelianskii,a symbiotic association of two species of bacteria[J]. Archiv für Mikrobiologie, 1967, 59(1):20-31.

DOI

[55]
ZHENG Y N, KAHNT J, KWON I H, et al. Hydrogen formation and its regulation in Ruminococcus albus:involvement of an electron-bifurcating [FeFe]-hydrogenase,of a non-electron-bifurcating [FeFe]-hydrogenase,and of a putative hydrogen-sensing [FeFe]-hydrogenase[J]. Journal of Bacteriology, 2014, 196(22):3840-3852.

DOI

[56]
KONDRATOVICH L B, SARTURI J O, HOFFMANN C A, et al. Effects of dietary exogenous fibrolytic enzymes on ruminal fermentation characteristics of beef steers fed high- and low-quality growing diets[J]. Journal of Animal Science, 2019, 97(7):3089-3102.

DOI

[57]
KARIMIPOUR M, SALARI S, AGHAEI A. Effects of dietary xylanase supplementation and insoluble fiber on growth performance,cecal microbial population and intestinal histomorphology in broiler chickens fed wheat-based diet[J]. Poultry Science, 2025, 104(11):105749.

DOI

[58]
LI K H, LI R, ZHANG J X, et al. Achieving high-concentration lignocellulosic sugars by using the Trichoderma reesei strain with high β-glucosidase activity for inducer synthesis and cellulase production[J]. Chemical Engineering Journal, 2025,522:167764.

[59]
李菁, 李翔, 马玉俊, 等. 复合酶制剂对肉牛生长性能、屠宰性能、养分表观消化率和胴体品质的影响[J]. 饲料工业, 2024, 45(17):52-55.

LI J, LI X, MA Y J, et al. Effects of composite enzyme preparations on growth performance,slaughter performance,nutrient apparent digestibility,and ketone body quality of beef cattle[J]. Feed Industry, 2024, 45(17):52-55. (in Chinese)

[60]
许莹, 吴东龙. 不同水平酶制剂对肉牛生长性能、养分表观消化率及经济效益的影响[J]. 中国饲料, 2024(24):53-56.

XU Y, WU D L. The effects of different levels of enzyme preparation on the growth performance,nutrient apparent digestibility,and economic benefits of beef cattle[J]. China Feed, 2024(24):53-56. (in Chinese)

[61]
李奎. 酶制剂在肉牛日粮中的应用效果研究[D]. 硕士学位论文. 石河子: 石河子大学, 2016.

LI K. Application effect of enzyme preparation in beef cattle diets[D]. Master’s Thesis. Shihezi: Shihezi University, 2016. (in Chinese)

文章导航

/