研究论文

铁死亡调控脂肪肝综合征蛋鸭肝损伤的分子机制

  • 林浩 , 1, 2 ,
  • 杨雪 1 ,
  • 黄雪冰 1 ,
  • 李凯潮 1 ,
  • 夏伟光 1 ,
  • 张亚男 1 ,
  • 王爽 1 ,
  • 郑春田 1 ,
  • 陈伟 , 1, * ,
  • 靳二辉 , 2, *
展开
  • 1 广东省农业科学院动物科学研究所, 猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室, 广州 510640
  • 2 安徽科技学院动物科学学院, 安徽省动物营养调控与健康重点实验室, 凤阳 233100
* 陈 伟,研究员,硕士生导师,E-mail: ;
靳二辉,教授,硕士生导师,E-mail:

林 浩(2000—),男,浙江湖州人,硕士研究生,研究方向为动物营养调控。E-mail:

Office editor: 陈燕

收稿日期: 2025-12-04

  网络出版日期: 2026-07-13

基金资助

国家自然科学基金(32472915)

国家自然科学基金(32172816)

广东省饲料产业技术体系(2024CXTD14)

安徽省教育厅高等学校自然科学研究重大项目(2AH040032)

梅州市科技计划(2024A0301017)

猪禽种业学科建设项目(ZX202501-06)

安徽科技学院兽医学重点学(XK-XJGF002)

猪禽种业全国重点实验室PI项目(GDNKY-ZQQZ-KO9)

Molecular Mechanisms of Ferroptosis Regulating Liver Injury in Laying Ducks with Fatty Liver Syndrome

  • LIN Hao , 1, 2 ,
  • YANG Xue 1 ,
  • HUANG Xuebing 1 ,
  • LI Kaichao 1 ,
  • XIA Weiguang 1 ,
  • ZHANG Ya’nan 1 ,
  • WANG Shuang 1 ,
  • ZHENG Chuntian 1 ,
  • CHEN Wei , 1, * ,
  • JIN Erhui , 2, *
Expand
  • 1 Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 Anhui Province Key Laboratory of Animal Nutrition Regulation and Health, College of Animal Science, Anhui Science and Technology University, Fengyang 233100, China
* CHEN Wei, professor, E-mail: ;
JIN Erhui, professor, E-mail:

Received date: 2025-12-04

  Online published: 2026-07-13

摘要

本研究旨在阐明铁死亡在脂肪肝综合征(FLS)蛋鸭肝损伤中的作用及分子关联机制。选取来源于同一批次且饲养于相同营养、环境与管理条件下的700日龄龙岩山麻鸭蛋鸭群,随机抽取鸭群中体重相近的48只蛋鸭进行屠宰和采样,根据肝脏解剖学观察及病变评分标准进行分组筛选,选取具有肝脏肿大、出血、呈土黄色等典型脂肪肝病变的6只麻鸭为FL组,选取肝脏外观红润、形态正常的6只健康麻鸭为NL组。结果表明:1)与NL组相比,FL组肝脏组织中空泡面积百分比极显著升高(P<0.01),肝脏出现明显脂质蓄积,并可见线粒体嵴皱缩等铁死亡超微结构改变。2)与NL组相比,FL组肝脏总胆固醇(TC)、甘油三酯(TG)和丙二醛(MDA)含量以及谷丙转氨酶(ALT)和谷草转氨酶(AST)活性均显著升高(P<0.05);还原型谷胱甘肽(GSH)含量、谷胱甘肽过氧化物酶(GSH-Px)活性和总抗氧化能力(T-AOC)均显著降低(P<0.05)。3)与NL组相比,FL组肝脏白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)、白细胞介素-12(IL-12)和转化生长因子-β(TGF-β)含量均显著或极显著升高(P<0.05或P<0.01);肝脏总铁离子、三价铁离子(Fe3+)和二价铁离子(Fe2+)含量极显著升高(P<0.01)。4)分子水平上,与NL组相比,FL组的谷胱甘肽过氧化物酶4(GPX4)、铁蛋白重链(FTH1)和溶质载体家族7成员11(SLC7A11)mRNA相对表达量极显著下调(P<0.01),而酰基辅酶a合成酶长链家族成员4(ACSL4)和转铁蛋白受体1(TFRC)mRNA相对表达量则显著或极显著上调(P<0.05或P<0.01)。综上所述,蛋鸭FLS伴随显著的铁代谢紊乱与抗氧化系统失衡,肝脏组织呈现典型的铁死亡特征,提示铁死亡与蛋鸭FLS肝细胞损伤密切相关,可能是介导肝脏损伤的重要机制之一。

本文引用格式

林浩 , 杨雪 , 黄雪冰 , 李凯潮 , 夏伟光 , 张亚男 , 王爽 , 郑春田 , 陈伟 , 靳二辉 . 铁死亡调控脂肪肝综合征蛋鸭肝损伤的分子机制[J]. 动物营养学报, 2026 , 38(7) : 5130 -5141 . DOI: 10.12418/CJAN2026.411

Abstract

This study aimed to elucidate the role and molecular mechanisms of ferroptosis in liver injury of laying ducks with fatty liver syndrome (FLS). A total of 48 laying ducks with similar body weight were randomly selected from a flock of 700-day-old Longyan Shanma ducks raised under identical nutritional, environmental and management conditions from the same batch for slaughter and sample collection. The ducks were grouped according to liver anatomical observation and lesion scoring criteria. Six ducks with typical fatty liver lesions (hepatomegaly, hemorrhage and clay-yellow coloration) were assigned to the FL group, and six healthy ducks with normal red and smooth liver appearance were assigned to the control (NL) group. The results showed as follows: 1) compared with the NL group, the FL group exhibited a highly significant increase in percentage area of vacuoles in liver tissue (P<0.01), obvious lipid droplet accumulation, and ultrastructural changes characteristic of ferroptosis, including mitochondrial cristae shrinkage. 2) Compared with the NL group, the FL group showed significantly increased contents of total cholesterol (TC), triglycerides (TG), malondialdehyde (MDA), as well as the activities of alanine aminotransferase (ALT) and aspartate aminotransferase (AST) (P<0.05), while glutathione (GSH) content, glutathione peroxidase (GSH-Px) activity, and total antioxidant capacity (T-AOC) of the FL group were significantly decreased (P<0.05). 3) Compared with the NL group, the FL group showed significantly or highly significantly increased contents of liver interleukin-1β (IL-1β), interleukin-6 (IL-6), interleukin-10 (IL-10), interleukin-12 (IL-12) and transforming growth factor-β (TGF-β) (P<0.05 or P<0.01). The contents of total iron ions, ferric iron ions (Fe3+) and ferrous iron ions (Fe2+) in the liver were highly significantly increased (P<0.01). 4) At the molecular level, compared with the NL group, the FL group showed highly significant downregulation of the mRNA relative expression levels of glutathione peroxidase 4 (GPX4), ferritin heavy chain (FTH1) and solute carrier family 7 member 11 (SLC7A11) (P<0.01), while the mRNA relative expression levels of acyl-CoA synthetase long-chain family member 4 (ACSL4) and transferrin receptor 1 (TFRC) were significantly or highly significantly upregulated (P<0.05 or P<0.01). In conclusion, FLS in laying ducks is accompanied by significant iron metabolism disorders and an imbalance in the antioxidant system. The liver tissue exhibits typical characteristics of ferroptosis, suggesting that ferroptosis is closely associated with hepatocyte injury in FLS and may be one of the important mechanisms mediating pathological liver damage.

随着蛋鸭集约化养殖模式的普及,营养代谢性疾病已成为制约产业健康发展的关键因素之一。其中,蛋鸭脂肪肝综合征(fatty liver syndrome,FLS)是常见且危害严重的代谢性疾病,其主要病理特征为肝细胞内大量脂质异常蓄积,导致肝脏肿大、质地变脆,严重时甚至引发肝脏细胞膜破裂出血和急性死亡[1-3]。FLS不仅严重影响蛋鸭的健康与福利,还导致产蛋性能下降,造成显著的经济损失[4-5]。FLS的病因复杂,是遗传、营养、管理及环境因素共同作用的结果。笼养模式下的运动受限、产蛋高峰期激素水平变化、氧化应激等都被认为是其重要的诱因[6-10]。目前,随着集约化养殖规模的不断扩大,FLS发病率呈逐年上升趋势,这给家禽业造成了严重的经济损失,成为家禽产业的难点问题。
近年来,随着细胞死亡机制研究的深入,铁死亡作为一种新发现的以铁依赖性、脂质过氧化驱动的程序性细胞死亡方式,在代谢性肝病中的作用逐渐受到关注。值得注意的是,哺乳动物的非酒精性脂肪肝病(non-alcoholic fatty liver disease,NAFLD)与非酒精性脂肪性肝炎(non-alcoholic steatohepatitis,NASH)在肝脏脂质蓄积、氧化应激和炎症反应等核心病理特征上与蛋鸭FLS高度相似[11-12]。铁死亡的本质特征是细胞内游离铁蓄积、谷胱甘肽过氧化物酶4(glutathione peroxidase 4,GPX4)活性抑制及脂质过氧化物清除障碍,最终导致细胞膜系统崩溃[13-15]。研究提示,在人类相关研究与啮齿动物模型中,抑制肝细胞铁死亡可能对NAFLD的干预具有一定潜在作用[16]。Shen等[17]研究发现,NAFLD的发展与铁死亡密切相关,其中多不饱和脂肪酸(PUFAs)在铁死亡过程中起关键作用;机制上,PUFAs在酰基辅酶A合成酶长链家族成员4(ACSL4)等酶作用下被催化形成多不饱和脂肪酰辅酶A(PUFA-CoAs),进而生成过氧化氢磷脂,促进铁死亡的发生。Tsurusaki等[18]研究提示,铁死亡可能促进单纯脂肪肝向NASH阶段进展并加重肝细胞损伤。Wei等[19]研究发现,饲喂小鼠缺乏蛋氨酸和胆碱的饲粮,可成功诱导NAFLD和NASH模型,并观察到肝脏中二价铁离子(Fe2+)含量明显上升,提示脂肪肝状态下铁稳态的变化可能与铁死亡相关。此外,铁死亡过程中伴随的线粒体体积缩小、外膜不规则或碎裂等典型超微结构变化,也为其在肝脏组织中的发生提供了形态学证据[20-22]
然而,尽管哺乳动物NAFLD及其进展阶段NASH与蛋鸭FLS在脂质蓄积、氧化应激与炎症反应等方面具有相似的病理表型[11-12],二者在发病代谢背景与诱发因素方面存在差异。哺乳动物NAFLD/NASH多以胰岛素抵抗为核心,与肥胖、糖尿病、高脂饮食等密切相关,病程相对缓慢;而蛋鸭FLS常发生于产蛋期能量与脂代谢高度活跃阶段,雌激素促进肝脏脂肪合成以满足卵黄生成需求,高能饲粮或营养失衡等因素可进一步诱发或加重肝脏脂质沉积。相应地,两者氧化应激的主要来源可能并不完全一致:哺乳动物更多与脂肪酸β-氧化障碍导致活性氧(ROS)过量生成及线粒体功能损伤相关[23];而蛋鸭在卵黄前体合成及极低密度脂蛋白(VLDL)装配与分泌负荷增加的背景下,肝脏代谢应激可能促进ROS生成并加重线粒体负荷。鉴于上述物种差异,目前关于铁死亡的研究主要集中在哺乳动物模型,其在禽类尤其是蛋鸭FLS肝损伤中的作用与地位仍缺乏直接证据。基于FLS与NAFLD的病理相似性及铁死亡的核心作用,本研究提出如下假设:铁死亡是蛋鸭FLS肝损伤的关键驱动机制,FLS发生过程与肝脏铁稳态失衡、脂代谢紊乱及抗氧化防御系统崩溃密切相关。因此,本试验以龙岩山麻鸭为研究对象,通过比较正常蛋鸭与FLS蛋鸭在肝脏组织病理学、生化与抗氧化指标、线粒体超微结构、炎症指标与铁含量以及铁死亡相关基因表达方面的差异,系统探讨铁死亡在FLS蛋鸭肝损伤发生中的作用,为深入解析FLS发病机理及开发防治新策略提供试验依据。

1 材料与方法

1.1 试验设计及饲养管理

动物试验方案经广东省农业科学院动物科学研究所实验动物伦理委员会审核通过(批准号:SJ2023020)。
选取来源于同一批次且饲养于相同营养、环境与管理条件下的700日龄龙岩山麻鸭蛋鸭群,随机抽取鸭群中体重相近的48只蛋鸭进行屠宰和采样,根据肝脏解剖学观察及病变评分标准[24]进行分组筛选,选取具有肝脏肿大、出血、呈土黄色等典型脂肪肝病变的6只麻鸭为FL组,选取肝脏外观红润、形态正常的6只健康麻鸭为NL组。随后采集2组蛋鸭的肝脏组织样本进行后续指标检测。
蛋鸭饲养于广东省农业科学院白云动物实验基地,饲养环境与管理条件保持一致,统一采用笼养方式并饲喂相同基础饲粮,自由采食与饮水。基础饲粮参照《蛋鸭营养需要量》(GB/T 41189—2021)配制,其饲粮组成及营养水平见表1。饲粮代谢能、氨基酸和非植酸磷含量参考《中国饲料成分及营养价值表(2024年第35版)》计算;粗蛋白质含量按照GB/T 6432—2018的凯氏定氮法测定,钙含量按照GB/T 6436—2018的乙二胺四乙酸二钠络合滴定法测定,总磷含量按照GB/T 6437—2018的分光光度法测定。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
玉米Corn 48.70 代谢能ME/(MJ/kg) 10.46
小麦麸Wheat bran 16.48 粗蛋白质CP 16.89
大豆粕Soybean meal 23.00 钙Ca 3.73
DL-蛋氨酸DL-Met 0.14 总磷TP 0.66
L-赖氨酸L-Lys 0.03 非植物磷NPP 0.37
石粉Limestone 9.05 赖氨酸Lys 0.88
磷酸氢钙CaHPO4 1.30 蛋氨酸Met 0.42
食盐NaCl 0.30
预混料Premix1) 1.00
合计Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 6 500 IU,VD 3 000 IU,VE 20 IU,VK 2.5 mg,VB1 3.0 mg,VB2 6.0 mg,VB6 2.5 mg,VB12 0.02 mg,烟酸 nicotinic acid 27 mg,泛酸 pantothenic acid 20 mg,叶酸 folic acid 1.0 mg,胆碱 choline 600 mg,Fe 50 mg,Cu 20 mg,Mn 70 mg,Zn70 mg,I 0.40 mg,Se 0.3 mg。

2)粗蛋白质、钙、总磷为实测值;其余均为计算值,参照《中国饲料成分及营养价值表(2024年第35版)》计算。CP, Ca, TP were measured values, while the others were calculated values, all determined with reference to the Tables of Feed Composition and Nutritive Values in China (35th edition, 2024).

1.2 样品采集与处理

试验结束后对所有试验鸭禁食12 h后称重记录。屠宰分离肝脏组织后进行称重记录,用生理盐水进行清洗,透射电镜样本取自肝脏左侧大叶中部1 mm3,立即投入2.5%戊二醛电镜固定液中,于室温(25 ℃)固定2 h后,转移至4 ℃保存。苏木精-伊红(HE)染色固定样本取自肝脏左侧大叶中部1 cm3,并用4%多聚甲醛固定。用于试剂盒与基因相对表达量检测的肝脏组织样取自左侧大叶中部,立即放入液氮中冷冻,之后转移至-80 ℃冰箱保存。

1.3 指标测定与方法

1.3.1 肝脏组织病理学检查

取4%多聚甲醛固定后肝脏组织进行石蜡包埋,依照标准流程制作石蜡切片,进行HE染色,通过显微镜观察肝脏组织病理学特征,并使用ImageJ(1.54f)软件分析切片中脂滴的空泡面积百分比,计算公式为:
空泡面积百分比(%)=(视野内空泡面积/该视野总面积)×100。

1.3.2 肝脏生化及抗氧化指标检测

采用胆固醇氧化酶-过氧化物酶(COD-PAP)比色法测定肝脏组织匀浆中总胆固醇(TC)含量,采用磷酸甘油氧化酶-过氧化物酶(GPO-PAP)比色法测定肝脏组织匀浆中甘油三酯(TG)含量,采用赖氏法测定肝脏组织匀浆中谷丙转氨酶(ALT)、谷草转氨酶(AST)活性,采用硫代巴比妥酸(TBA)比色法测定肝脏组织匀浆中丙二醛(MDA)含量,采用分光光度法测定肝脏组织匀浆中还原型谷胱甘肽(GSH)含量,采用比色法测定肝脏组织匀浆中谷胱甘肽过氧化物酶(GSH-Px)活性和总抗氧化能力(T-AOC),肝脏组织样本匀浆制备及检测的详细步骤均按照试剂盒说明书进行。所用试剂盒来自南京建成生物工程研究所。

1.3.3 肝细胞线粒体的超微结构检查

取2.5%戊二醛固定后肝脏组织进行脱水包埋,依照标准流程制作超薄切片,重金属染色后在透射电镜下进行肝细胞线粒体的超微结构观察。

1.3.4 肝脏炎症指标与铁含量检测

采用酶联免疫吸附试验(ELISA)试剂盒测定肝脏组织匀浆中白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(interleukin-6,IL-6)、白细胞介素-10(interleukin-10,IL-10)、白细胞介素-12(interleukin-12,IL-12)、转化生长因子-β(transforming growth factor-beta,TGF-β)含量,采用比色法测定肝脏组织匀浆中总铁离子、Fe2+和三价铁离子(Fe3+)含量,肝脏样本组织匀浆制备及检测的详细步骤均参考试剂盒说明书进行。所用试剂盒来自江苏酶免实业有限公司。

1.3.5 肝脏铁死亡相关基因表达检测

通过TRIzol®试剂(货号:15596018,Thermo Fisher Scientific,美国)提取肝脏总RNA并采用紫外吸收法检测RNA浓度和纯度,光密度(OD)260/OD280比值和OD260/OD230比值为1.8~2.0。并使用RNA反转录试剂盒(货号:AG11705,武汉艾瑞科生物科技有限公司)将RNA反转录成cDNA,保存于-80 ℃待测。目的基因包括溶质载体家族7成员11(solute carrier family 7 member 11,SLC7A11)、转铁蛋白受体1(transferrinreceptor,TFRC)、ACSL4、核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)、GPX4、铁蛋白重链1(ferritin heavy chain,FTH1)、血红素加氧酶1(heme oxygenase 1,HMOX1)。目的基因和内参基因由生工生物工程(上海)股份有限公司合成,引物序列见表2。使用SYBR Green Premix Pro Taq HS qPCR试剂盒(货号:AG11701,武汉艾瑞科生物科技有限公司),利用合成的cDNA作为模板,20 μL的反应体系如下:10 μL 2×SYBR Green Pro Taq HS Premix,上、下游引物各0.4 μL,2 μL cDNA,7.2 μL ddH2O。反应条件:95 ℃预变性30 s;95 ℃扩增5 s,60 ℃退火30 s,72 ℃延伸30 s,循环40次。以β-肌动蛋白(β-actin)作为内参基因,采用2-△△Ct法计算目的基因mRNA相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
序列号
Serial number
引物序列
Primer sequences (5'—3')
退火温度
Annealing
temperature/℃
产物大小
Product
size/bp
溶质载体家族7成员11
SLC7A11
XM_005027130.6 F:CCGACAGCGTCTAATGGGAG
R:TCAAGGACATGCCCACACTG
60.3
60.3
220
转铁蛋白受体1
TFRC
XM_027464143.2 F:GGAGACTCCTGATGCTATCGTT
R:AGGGTCTCCAGTTCCAAGGT
62.4
62.9
196
酰基辅酶A合成酶
长链家族成员4
ACSL4
XM_005015219.5 F:GAACTGTCCGTTGATTGA
R:TTGTCTGCCACTTCTTTA
52.2
50.8
198
核因子E2相关因子2
Nrf2
NM_001310777.1 F:CATGGGAACTTTAGAGGCAGAGG
R:TCACCTGTCTCCTCGTCTAACT
60.7
60.0
236
谷胱甘肽过氧化物酶4
GPX4
XM_038169022.1 F:CGACGGCAACGATGTGAG
R:CCCAGGATGCGTAAACCC
58.9
57.8
150
铁蛋白重链1
FTH1
NM_001310377.1 F:CGCCAGAACTACCACCAG
R:TCAGAGCCACATCATCCC
57.4
56.0
121
血红素加氧酶1
HMOX1
XM_005015345.5 F:ATGTCTCAGGACCTGTCGGA
R:CCCTCCAGTTTCTGCCGTAG
60.0
60.1
283
β-肌动蛋白
β-actin
XM_038165305.1 F:ACCGGACTGTTACCAACACC
R:ACTGCTGCTGATACCTTCACC
59.9
60.1
150

1.4 数据统计分析

试验数据采用SPSS 26.0统计软件进行分析,经检验符合正态分布与方差齐性后,采用独立样本t检验比较组间差异,结果以“平均值±标准误”形式呈现。采用Spearman秩相关分析对组间合并数据(n=12)的肝脏关键指标进行关联性检验。计算两两变量间的Spearman相关系数(ρ)及其显著性(P值,双侧检验),结果以相关矩阵热图可视化展示。P<0.05表示差异显著。鉴于样本量较小且为合并组数据,相关性结果用于描述变量间协同变化趋势,不直接推断因果关系。

2 结果与分析

2.1 FLS蛋鸭肝脏组织病理学特征

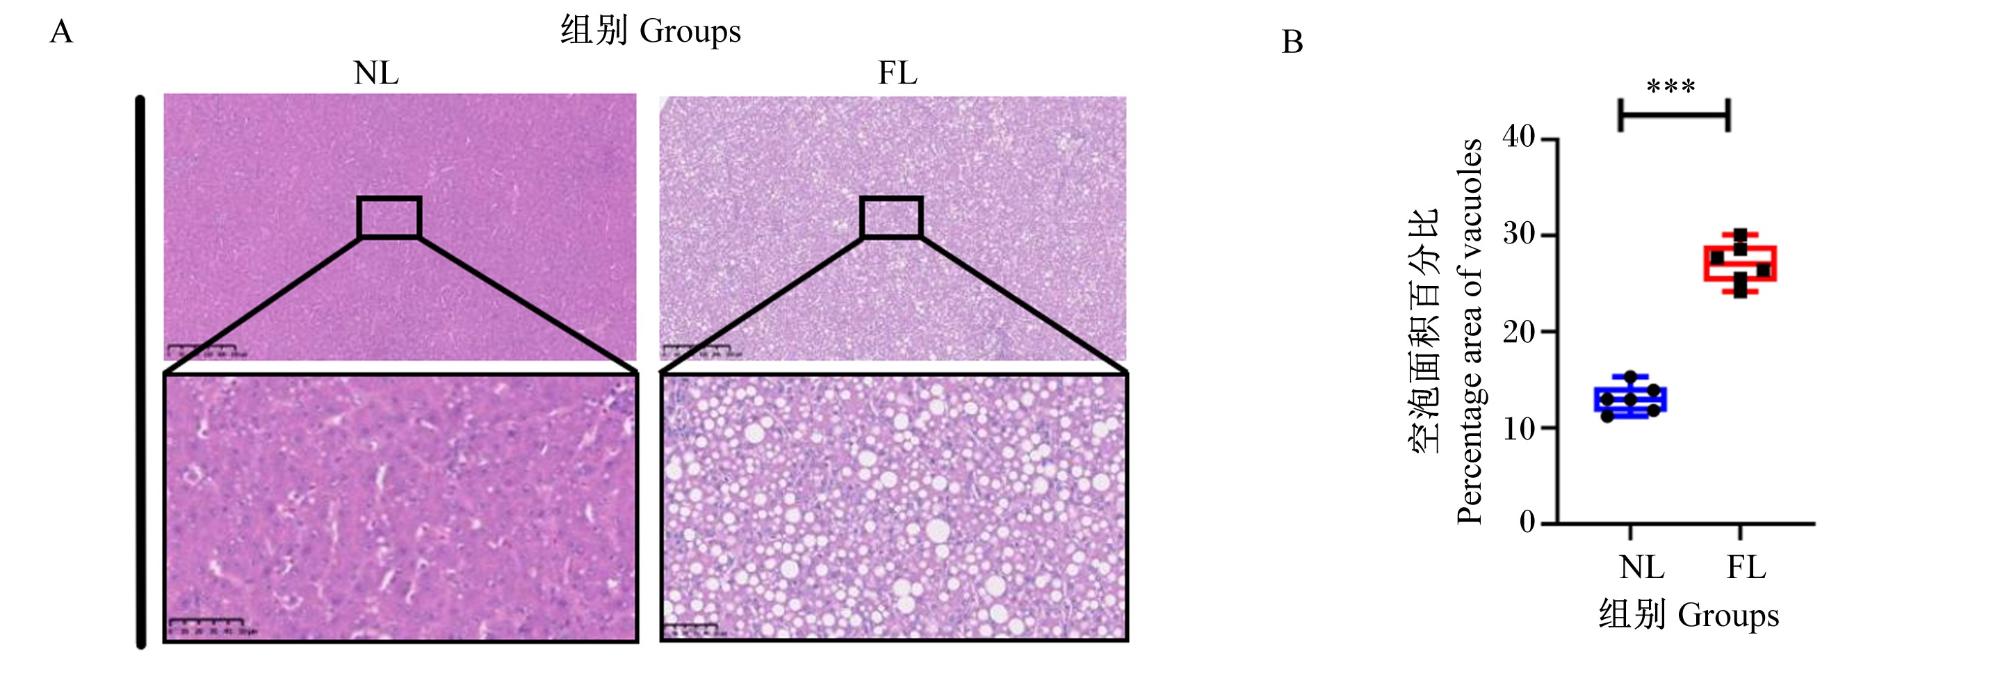
图1-A所示,NL组肝脏组织中肝细胞排列有序,细胞质染色均匀,无明显脂质蓄积,细胞核清晰可见;FL组中肝细胞分布受到破坏,组织内可见大量大小不一的圆形空泡脂滴。采用ImageJ软件量化脂滴的空泡面积百分比(图1-B),发现FL组肝脏组织中空泡面积百分比极显著高于NL组(P<0.01)。
图1 脂肪肝综合征蛋鸭肝脏组织病理学特征

A为蛋鸭肝脏组织HE染色图,标尺=50 μm;B为空泡面积百分比结果(n=6)。

Fig.1 Histopathological characterization of liver tissues in laying ducks with FLS

A represents HE staining images of laying duck liver tissues, with a scale bar of 50 μm; B represents results of percentage area of vacuoles (n=6).
***:P<0.001。

2.2 FLS蛋鸭肝脏生化及抗氧化指标

表3所示,与NL组相比,FL组肝脏的脂质代谢指标TC和TG含量、肝功能酶指标ALT和AST活性以及脂质过氧化产物MDA含量均显著升高(P<0.05);同时,抗氧化指标GSH含量、GSH-Px活性和T-AOC均显著降低(P<0.05)。此结果说明肝脏中肝细胞实质损伤,肝脏抗氧化能力降低,对自由基的清除能力下降,表明肝脏处于氧化应激的状态。
表3 脂肪肝综合征蛋鸭肝脏生化及抗氧化指标

Table 3 Hepatic biochemical and antioxidant indicators of laying ducks with FLS (n=6)

项目
Items
NL组
NL group
FL组
FL group
P
P-value
总胆固醇TC/(mmol/g prot) 0.623±0.009 0.705±0.007 <0.001
甘油三酯TG/(mmol/g prot) 0.369±0.023 0.431±0.011 0.034
谷丙转氨酶ALT/(U/g prot) 7.24±0.46 9.42±0.57 0.014
谷草转氨酶AST/(U/g prot) 11.57±0.35 15.93±1.18 0.005
丙二醛MDA/(mmol/mg prot) 4.84±0.70 6.86±0.47 0.037
还原型谷胱甘肽GSH/(μmol/g prot) 84.10±4.89 60.90±9.17 0.036
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 26.42±4.70 14.02±1.49 0.031
总抗氧化能力T-AOC/(U/mg prot) 1.24±0.06 1.05±0.06 0.048

2.3 FLS蛋鸭肝细胞线粒体的超微结构

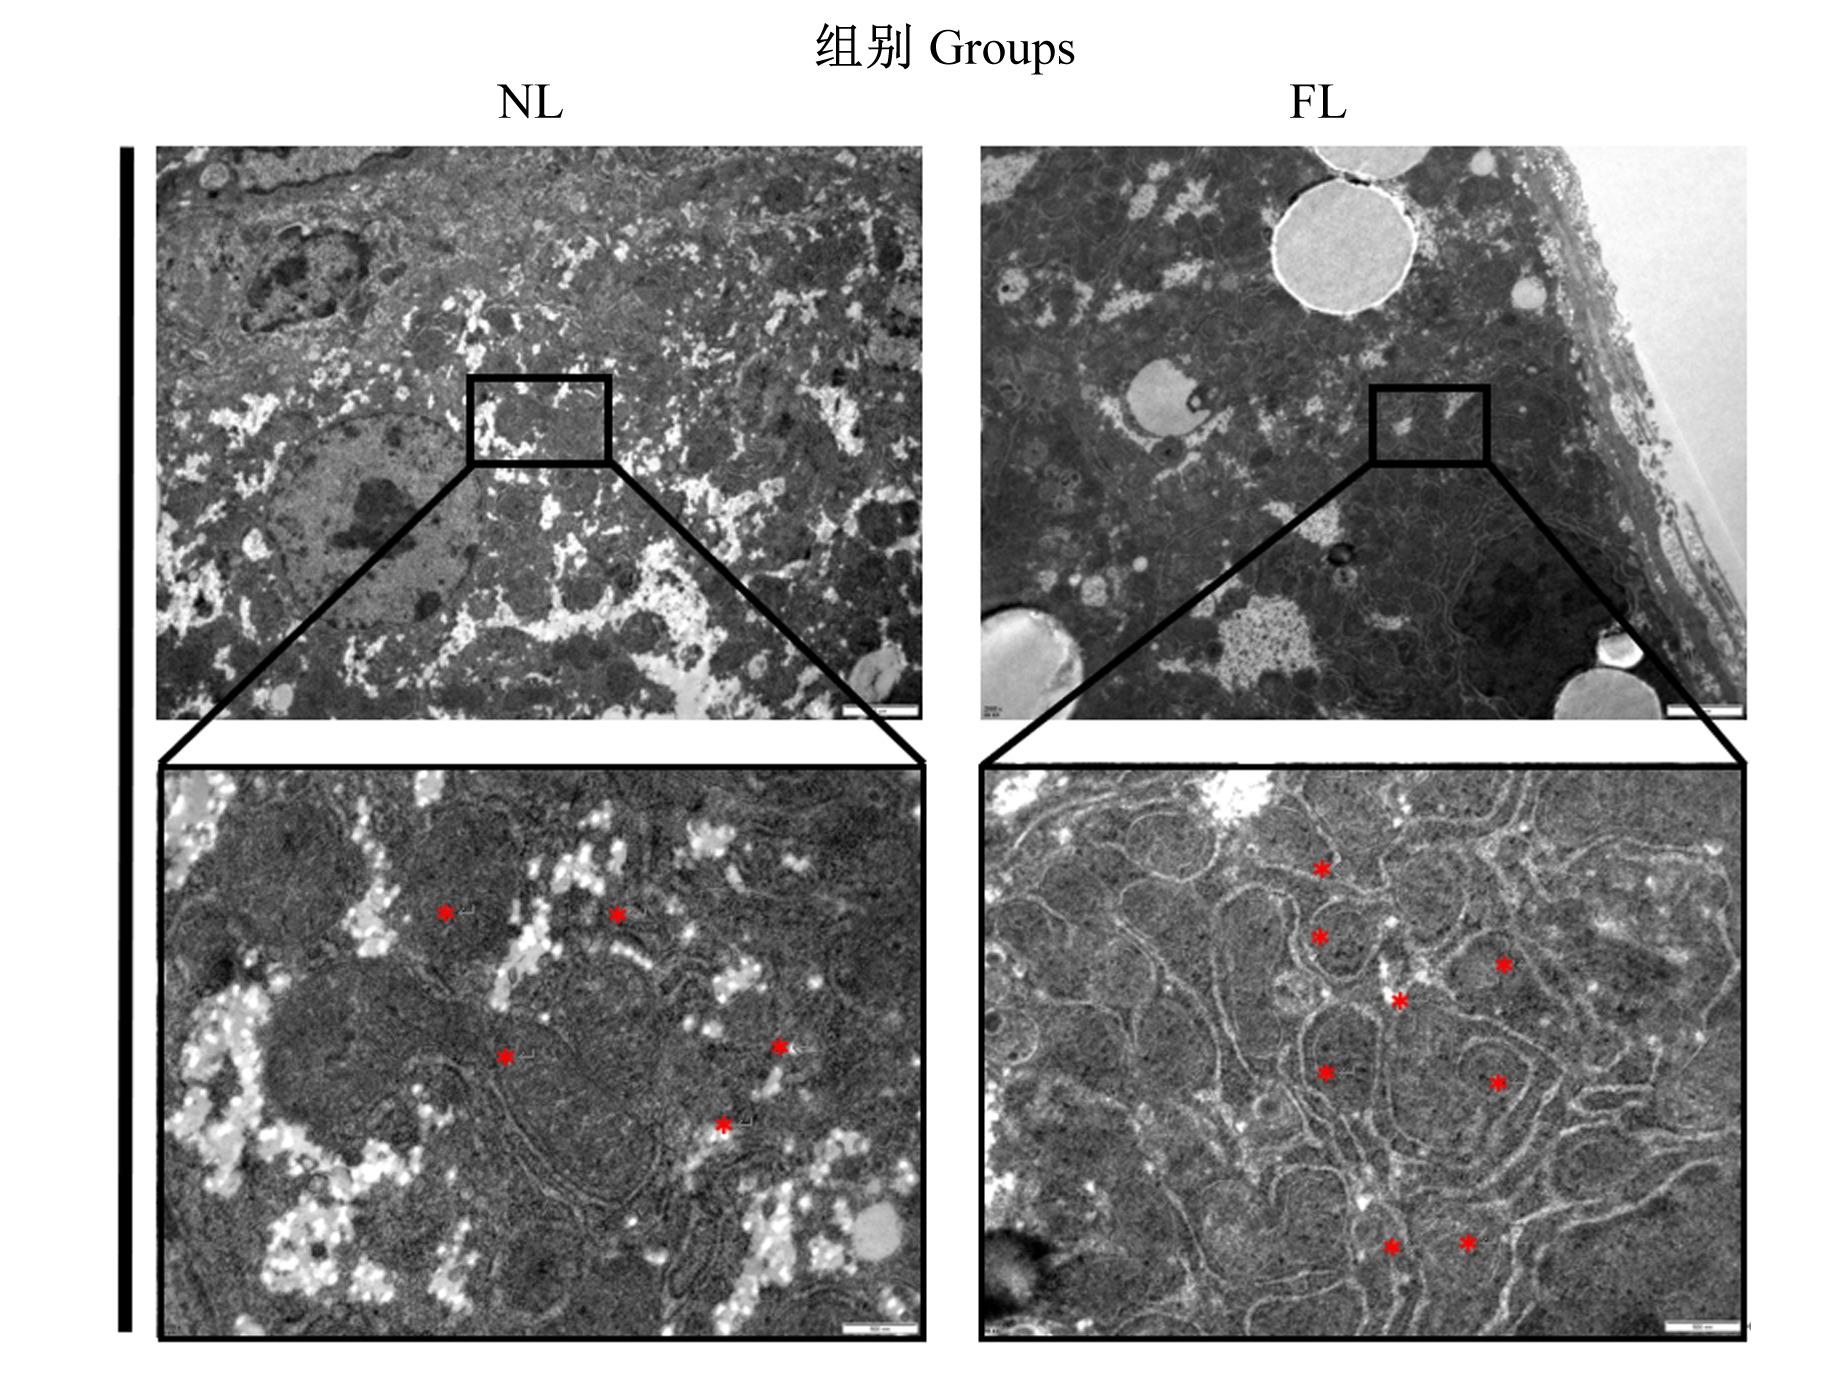
透射电镜结果显示(图2),NL组肝细胞线粒体形态正常且分布于整个细胞质中,线粒体内外膜结构完整光滑,内部基质分布均匀,嵴结构清晰完整。与之相比,FL组肝细胞线粒体表现出明显的超微结构异常,包括线粒体变小、嵴减少或消失、线粒体膜间隙扩张等现象,同时,FL组细胞质中可见大量脂滴,表明FL组线粒体呈现典型的铁死亡超微结构特征。
图2 脂肪肝综合征蛋鸭肝细胞线粒体的超微结构

红色*代表线粒体,标尺=500 nm。

Fig.2 Ultrastructure of hepatocyte mitochondria in laying ducks with FLS

Red * represents mitochondria, scale=500 nm.

2.4 FLS蛋鸭肝脏炎症指标与铁含量

表4所示,与NL组相比,FL组肝脏中所有检测的炎症指标(IL-1β、IL-6、IL-10、IL-12、TGF-β含量)均显著或极显著升高(P<0.05或P<0.01)。同时,与NL组相比,FL组肝脏的总铁离子、Fe3+和Fe2+含量也极显著升高(P<0.01)。上述结果提示FL组肝脏正在发生炎症,脂质过氧化和肝细胞损伤加剧。
表4 脂肪肝综合征蛋鸭肝脏炎症指标与铁含量

Table 4 Inflammatory indicators and iron content in liver of laying ducks with FLS (n=6)

项目
Items
NL组
NL group
FL组
FL group
P
P-value
白细胞介素-1β IL-1β/(ng/L) 7.66±0.37 10.05±0.69 0.016
白细胞介素-6 IL-6/(ng/L) 34.97±1.09 41.62±0.97 <0.001
白细胞介素-10 IL-10/(ng/L) 16.79±0.32 18.13±0.32 0.014
白细胞介素-12 IL-12/(ng/L) 15.83±0.59 18.44±0.56 0.004
转化生长因子-β TGF-β/(ng/L) 449.6±23.0 539.5±25.5 0.017
总铁离子Total iron ions/(μmol/kg FW) 410.3±25.3 753.6±40.4 <0.001
二价铁离子Fe2+/(μmol/kg FW) 251.5±20.6 353.5±11.6 0.002
三价铁离子Fe3+/(μmol/kg FW) 158.8±20.5 400.1±33.9 <0.001

2.5 FLS蛋鸭肝脏铁死亡通路关键基因表达

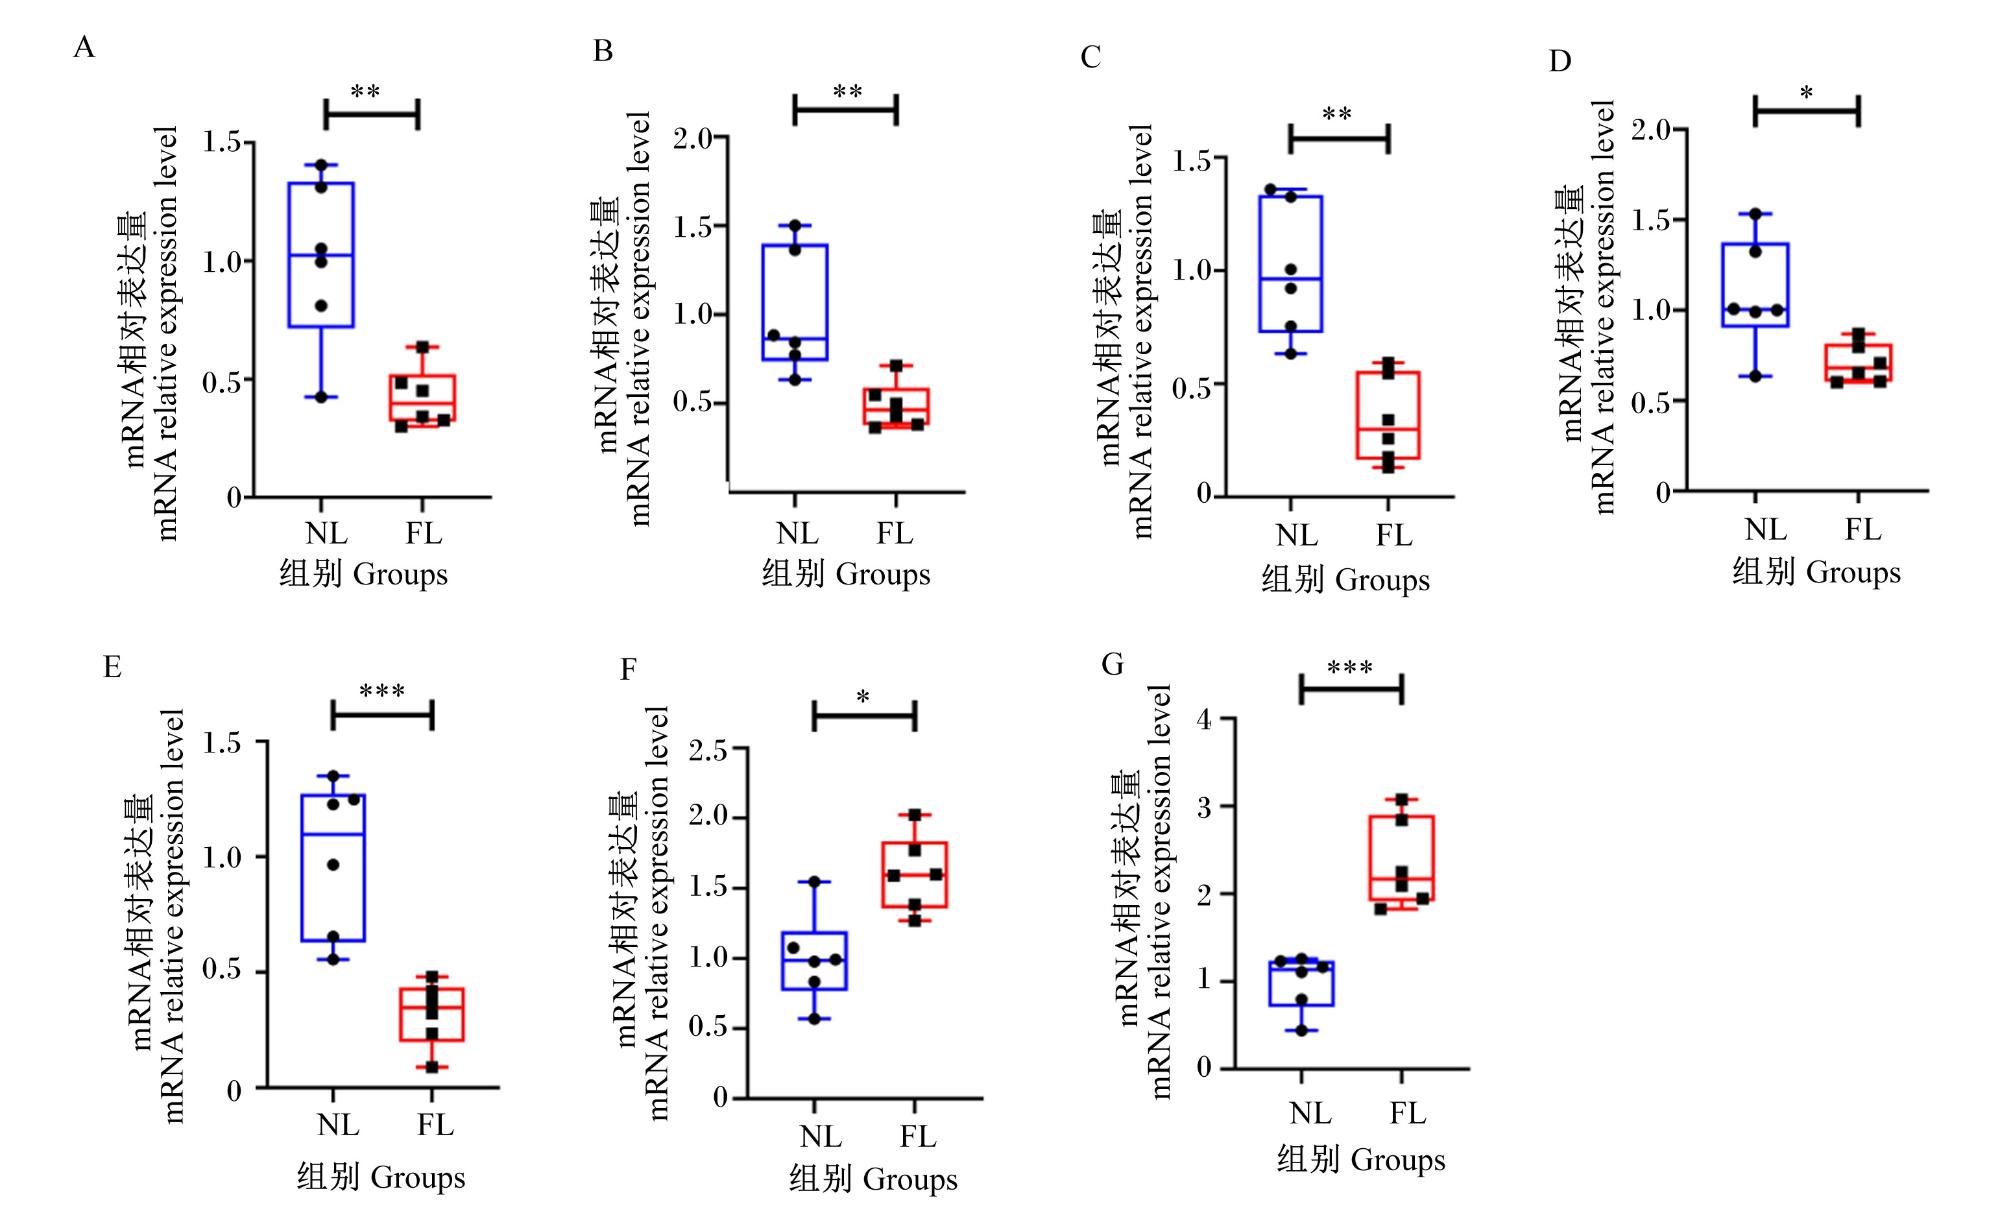
图3所示,与NL组相比,FL组肝脏中抗铁死亡相关基因GPX4、FTH1、SLC7A11、Nrf2和HMOX1的mRNA相对表达量显著或极显著下调(P<0.05或P<0.01);相反,促铁死亡基因TFRCACSL4的mRNA相对表达量则显著或极显著上调(P<0.05或P<0.01)。上述结果提示,FL组肝脏呈现促铁死亡的分子特征环境。
图3 脂肪肝综合征蛋鸭肝脏铁死亡通路关键基因的表达

A:谷胱甘肽过氧化物酶4 mRNA相对表达量 mRNA relative expression level of GPX4;B:铁蛋白重链1 mRNA相对表达量 mRNA relative expression level of FTH1;C:溶质载体家族7成员11 mRNA相对表达量 mRNA relative expression level of SLC7A11;D:核因子E2相关因子2 mRNA相对表达量 mRNA relative expression level of Nrf2;E:血红素加氧酶1 mRNA相对表达量 mRNA relative expression level of HMOX1;F:转铁蛋白受体1 mRNA相对表达量 mRNA relative expression level of TFRC;G:酰基辅酶A合成酶长链家族成员4 mRNA相对表达量 mRNA relative expression level of ACSL4。
*:P<0.05;**:P<0.01;***:P<0.001。

Fig.3 Expression of key genes in the hepatic ferroptosis pathway of laying ducks with FLS (n=6)

2.6 关键指标间的相关性分析

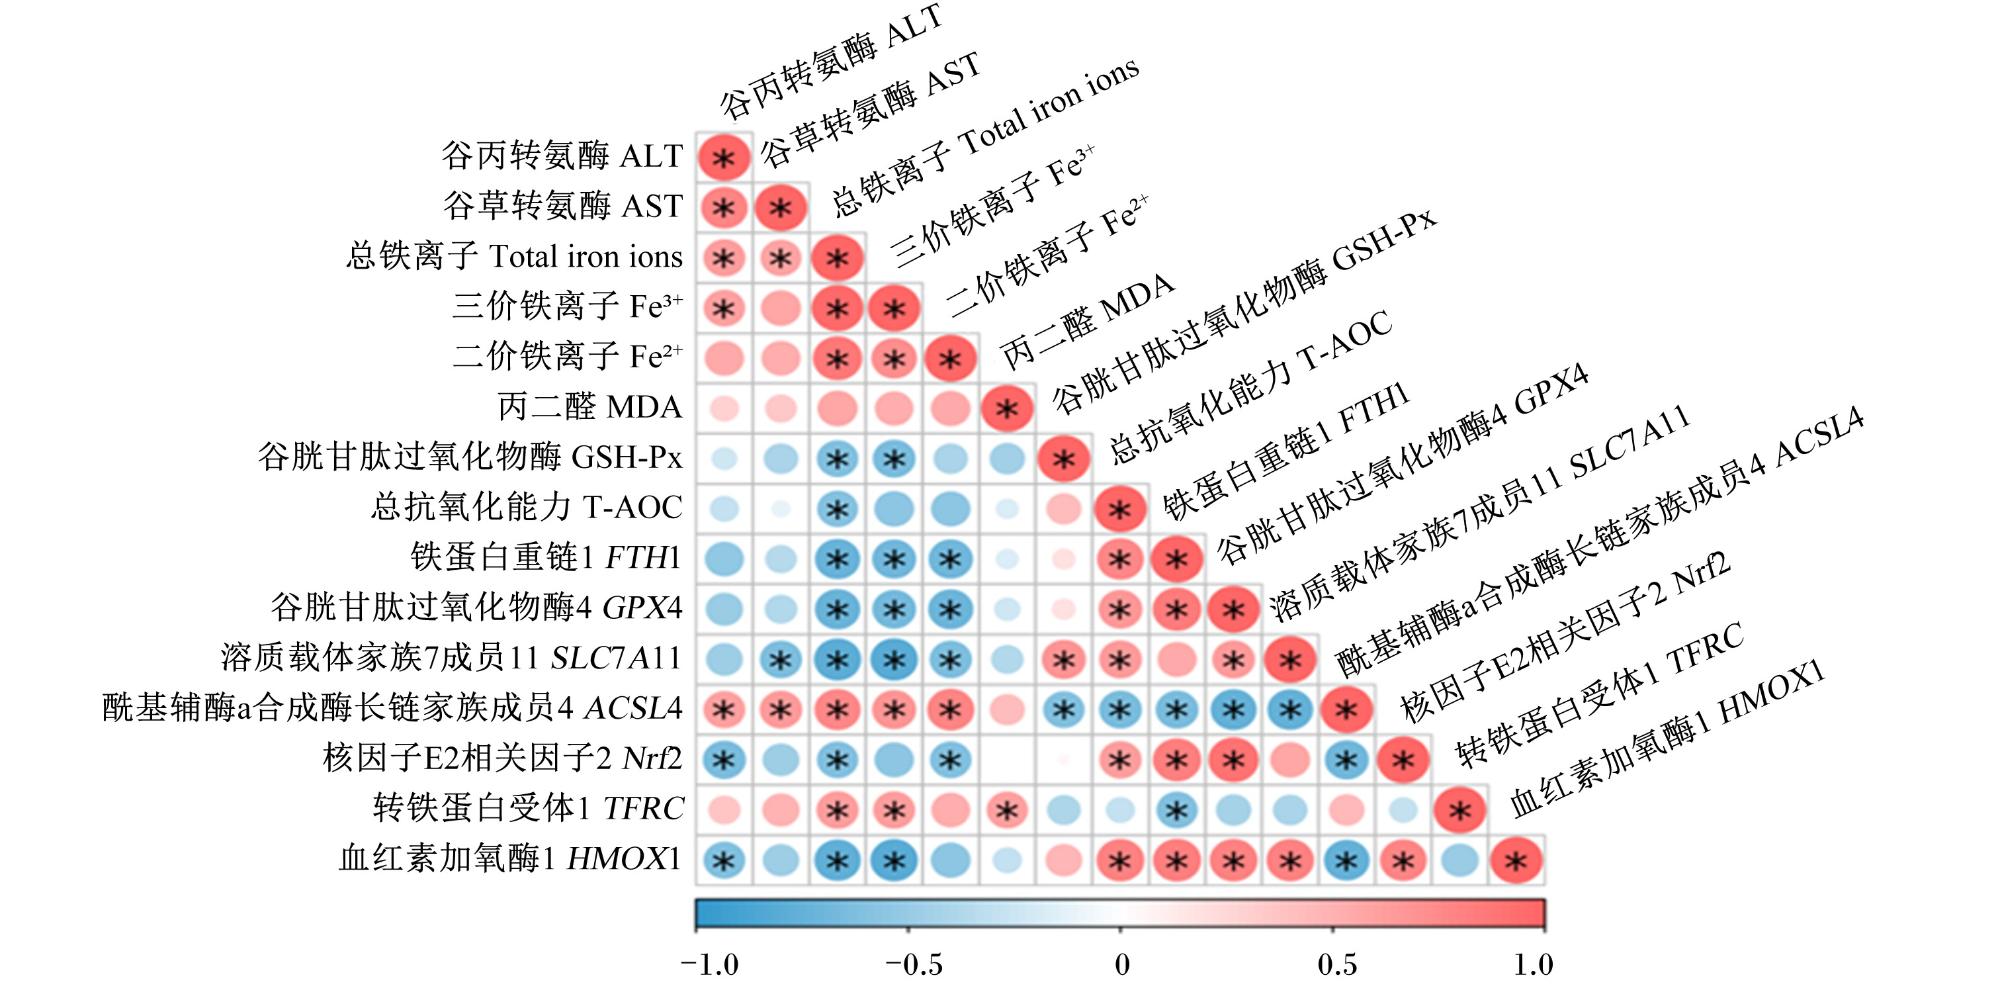
图4所示,在NL与FL组合并数据(n=12)中,多项肝损伤指标、铁代谢指标、抗氧化指标及铁死亡相关基因表达之间存在显著相关关系(P<0.05)。总体而言,肝损伤标志酶(ALT)活性与铁负荷相关指标(总铁离子、Fe3+含量)呈显著正相关(P<0.05),提示铁负荷升高与肝细胞损伤程度增加相伴随。在分子层面,SLC7A11 mRNA相对表达量与抗氧化酶GSH-Px活性和T-AOC呈显著正相关(P<0.05),GPX4 mRNA相对表达量同样与T-AOC呈显著正相关(P<0.05),同时SLC7A11与GPX4 mRNA相对表达量呈显著正相关(P<0.05)。相反,ACSL4与SLC7A11、GPX4 mRNA相对表达量以及GSH-Px活性和T-AOC呈显著负相关(P<0.05),提示脂质过氧化底物生成相关因子与抗氧化系统呈相反变化方向。此外,铁代谢相关基因与铁含量指标之间也存在显著相关性:FTH1 mRNA相对表达量与总铁离子、Fe3+、Fe2+含量呈显著负相关(P<0.05),HMOX1 mRNA相对表达量与总铁离子、Fe3+含量呈显著负相关(P<0.05),而TFRC mRNA相对表达量与总铁离子、Fe3+含量呈显著正相关(P<0.05)。上述结果提示,铁摄入、铁储存及应激反应相关分子与肝脏铁含量密切相关。
图4 关键指标间的Spearman相关性分析

红色圆点表示为正相关,蓝色圆点表示为负相关;圆点大小和颜色深浅表示相关强度(|ρ|越大,圆点越大、颜色越深)。

Fig.4 Spearman correlation analysis among key indicators (n=12)

Red dots represent positive correlation, and blue dots represent negative correlation; the size and shade of dots indicate correlation strength (the larger absolute value of ρ, the bigger and darker the dot).
*:P<0.05。

3 讨论

本研究首次在蛋鸭FLS中系统证实,铁死亡可能是驱动肝细胞损伤的关键机制。我们发现,蛋鸭脂肪肝存在着铁代谢紊乱、脂质过氧化累积及组织炎症的等病理特征,揭示了铁死亡在蛋鸭FLS发病过程中的潜在作用。

3.1 铁稳态失衡是蛋鸭FLS中铁死亡的上游启动因素

铁代谢紊乱是铁死亡发生的上游驱动力。Fe2+是引起铁死亡的关键因子,肝脏中Fe2+含量升高会促进脂质过氧化,从而加重脂代谢紊乱[25]。铁离子主要通过转铁蛋白(transferrin,TFR)和TFRC介导的内吞作用进入细胞,储存在不稳定的铁池或铁蛋白中发挥作用。TFRC mRNA表达量上调,提示肝细胞铁摄入增加,多余的Fe2+可通过铁转运蛋白排泄到细胞外循环中,从而达到铁稳态的平衡[26]。本研究中,与NL组相比,FL组肝脏总铁离子与Fe2+含量显著升高,提示肝脏已出现明显的铁蓄积现象。其中TFRC是细胞最主要的铁摄入通道,它与血液中携带铁的TFR结合,通过内吞作用将Fe3+送入细胞内,TFRC mRNA相对表达量上调会导致细胞过量摄入铁,为铁死亡提供原料[27];Nrf2作为调节蛋白家族细胞氧化还原功能的转录因子,在诱导机体的氧化应答中起着重要作用。同时Nrf2可以通过铁蛋白的合成或降解来调控铁的平衡,进而决定细胞内的铁含量[28];FTH1是细胞内主要的铁储存蛋白,能够以无害的形式储存数千个铁原子,当FTH1 mRNA相对表达量下调时,会导致细胞内“游离铁”含量升高,显著增加对铁死亡的敏感性。当细胞摄取过多或输出更少铁时,都会使细胞对铁死亡的敏感性增加,当细胞内过载的铁和过氧化氢发生芬顿反应,导致羟基自由基和过氧化物的形成及细胞膜磷脂的破坏,从而引发铁死亡[29]。此外,HMOX1 mRNA相对表达量下降可能会影响血红素代谢与铁的再循环,导致铁稳态的失衡[30]。在本研究中,与NL组相比,FL组肝脏铁死亡基因中TFRC的mRNA相对表达量显著上调,FTH1、Nrf2和HMOX1的mRNA相对表达量显著下调,共同构成了导致肝脏铁超载的分子网络,为铁死亡的发生提供了关键的启动信号。

3.2 脂质过氧化与线粒体损伤构成铁死亡的中心环节

在铁超载的基础上,脂质过氧化的急剧升高与线粒体的特征性损伤,标志着铁死亡进程进入核心执行阶段。在健康动物体内的肝脏脂质代谢应处于动态平衡状态,当能量过剩时,大量的游离脂肪酸以TG的形式在肝脏中积累[31],储存于脂滴之内,引发脂肪变性,使脂质代谢出现问题,从而引发线粒体等功能障碍,ROS大量生成,抗氧化防御系统崩溃引发氧化应激,导致细胞铁死亡[32]。铁死亡是一种铁依赖性脂质过氧化驱动的程序性细胞死亡[33],形态学上表现为细胞线粒体嵴减少或消失[34-36]。本研究的电镜结果显示,FL组肝细胞线粒体出现嵴皱缩、膜分离等典型铁死亡超微结构特征,与既往研究中对铁死亡线粒体形态的描述高度一致。这说明脂质代谢紊乱是禽类脂肪肝的共同特征,也为本次在蛋鸭模型中探讨其下游的铁死亡机制提供了前提。值得注意的是,Fe2+通过芬顿反应催化PUFAs发生过氧化,生成具有细胞毒性的脂质过氧化产物,是铁死亡发生的直接机制之一[16,37-38]。本研究中,与NL组相比,FL组肝脏TC、TG含量及ALT、AST活性显著升高,这与Wei等[39]、Qiu等[40]在蛋鸡中的研究结果相一致。本研究结果中,FL组肝脏MDA含量的显著上升与GSH-Px活性、T-AOC的下降,表明FLS蛋鸭肝脏正处于严重的氧化应激状态,脂质过氧化已超出机体自身的清除能力。这一过程与本研究在蛋鸭模型中观察到的线粒体损伤相一致,表明脂质过氧化与线粒体功能障碍在铁死亡中的重要作用。

3.3 抗氧化防御体系失能决定了肝细胞对铁死亡的敏感性

随着脂质过氧化程度的加深,细胞依赖的抗氧化系统逐渐崩溃,肝细胞对铁死亡的敏感性提高。本研究结果显示,与NL组相比,FL组肝脏中SLC7A11与GPX4 mRNA相对表达量显著下调,同时GSH含量与T-AOC下降,表明机体在应对氧化应激时已出现防御系统的全面瓦解。SLC7A11作为胱氨酸/谷氨酸反向转运体,负责摄取胱氨酸以合成GSH,而GSH作为动物细胞中的过氧化剂可以降低ROS的积累从而缓解氧化应激,SLC7A11 mRNA相对表达量下调直接导致细胞内GSH耗竭,进而削弱GPX4活性[33,41]。GPX4作为关键的抗氧化酶,能够催化脂质过氧化物的还原,其功能丧失将导致脂质过氧化物大量积累,最终诱发铁死亡。与此同时,本研究中FL组肝脏中ACSL4 mRNA相对表达量显著上调,进一步增强了细胞对铁死亡的敏感性。ACSL4负责将PUFAs转化为带有多不饱和脂肪酸链的磷脂酰乙醇胺(PUFA-PE),后者是脂质过氧化的主要底物,ACSL4 mRNA相对表达量上调会促进脂质过氧化物的生成,从而放大铁死亡信号。本研究结果与Wang等[42]在哺乳动物模型中的发现一致,说明在不同物种的脂肪肝病变中,抗氧化系统的崩溃与铁死亡的激活具有高度保守的分子基础。因此,在FLS蛋鸭中,促死亡因子(ACSL4)与抗死亡因子(SLC7A11-GPX4轴)的平衡被彻底打破,最终决定了肝细胞向铁死亡发展。

3.4 炎症反应与铁死亡形成恶性循环加剧肝损伤

铁死亡不仅直接导致肝细胞脂质过氧化损伤,还通过激发和放大炎症反应,形成协同放大的肝损伤机制。本研究显示,与NL组相比,FL组肝脏中促炎因子IL-1β、IL-6含量以及调节性细胞因子IL-10、IL-12和TGF-β含量均显著升高,提示在铁死亡发生过程中,肝细胞损伤释放的损伤相关分子模式(damage-associated molecular patterns,DAMPs)可能激活肝脏Kupffer细胞及其他免疫细胞,引发局部乃至全身性炎症反应[43]。近年研究表明,铁死亡过程中积累的脂质过氧化物及其代谢副产物可作为内源性信号分子,激活NOD样受体家族pyrin结构域蛋白3(NOD-like receptor family pyrin domain containing 3,NLRP3)炎症小体等信号通路,促进IL-1β等促炎因子的成熟与释放[44-45]。本研究中,铁死亡相关指标(铁蓄积、脂质过氧化和GPX4 mRNA相对表达量下调)与炎症因子含量同步升高,强烈提示二者之间存在互为因果、协同放大的恶性循环。一方面,铁死亡导致细胞膜破裂与细胞内容物释放,直接激活免疫反应;另一方面,炎症细胞释放的ROS与细胞因子又可进一步促进脂质过氧化与铁死亡。此外,TGF-β含量的上升提示肝脏可能已启动病理性修复与纤维化进程,这与FLS后期常伴发的肝脏组织重塑与功能丧失密切相关。

4 结论

本研究通过组织病理学、超微结构观察、生理生化及分子生物学检测,证实了FLS蛋鸭肝脏中存在典型的铁死亡特征。研究结果表明FLS蛋鸭伴随严重的肝脏脂质蓄积与铁代谢稳态失衡,同时表现出脂质过氧化物堆积为特征的抗氧化能力下降。此外,肝细胞线粒体呈现嵴皱缩等铁死亡特异性超微结构改变。这些结果揭示了铁死亡与蛋鸭FLS肝细胞损伤密切相关,铁代谢紊乱与脂质过氧化可能是介导该病理过程的重要因素。本研究为从铁死亡角度解析禽类FLS的发病机理提供了试验证据,也为未来开发靶向铁死亡通路的防治策略提供了理论参考。
[1]
李海姗. 宁夏引种水飞蓟“北蓟1号”适应性评价及其预防蛋鸡脂肪肝出血综合征研究[D]. 硕士学位论文. 银川: 宁夏大学, 2025.

LI H S.Adaptability evaluation of introduced Silybum marianumBeiji No.1” in Ningxia and study on the prevention of fatty liver hemorrhagic syndrome in laying hens[D]. Master’s Thesis. Yinchuan: Ningxia University, 2025. (in Chinese)

[2]
SHINI S, SHINI A, BRYDEN W L. Unravelling fatty liver haemorrhagic syndrome:2.Inflammation and pathophysiology[J]. Avian Pathology, 2020, 49(2):131-143.

DOI

[3]
陈新军, 贾宁. 脂肪肝鸭重要实质器官病理损伤观察[J]. 中兽医医药杂志, 2013, 32(3):37-39.

CHEN X J, JIA N. Observation on pathological lesions of ducks suffering from fatty liver[J]. Journal of Traditional Chinese Veterinary Medicine, 2013, 32(3):37-39. (in Chinese)

[4]
郑晓会. 分析蛋鸡脂肪肝出血综合征病因及防治措施[J]. 吉林畜牧兽医, 2023, 44(2):61-62.

ZHENG X H. Analyze the etiology and prevention and treatment measures of fatty liver hemorrhage syndrome in laying hens[J]. Jilin Animal Husbandry and Veterinary Medicine, 2023, 44(2):61-62. (in Chinese)

[5]
连泞泞, 白晓欢, 韩梓晨, 等. 中药对蛋鸡脂肪肝出血综合征的防治研究进展[J]. 中国家禽, 2025, 47(2):123-128.

LIAN N N, BAI X H, HAN Z C, et al. Research progress on effect of traditional Chinese medicine on fatty liver hemorrhagic syndrome in laying hens[J]. China Poultry, 2025, 47(2):123-128. (in Chinese)

[6]
JULIAN R J. Production and growth related disorders and other metabolic diseases of poultry:a review[J]. Veterinary Journal, 2005, 169(3):350-369.

DOI

[7]
STAKE P E, FREDRICKSON T N, BOURDEAU C A. Induction of fatty liver-hemorrhagic syndrome in laying hens by exogenous beta-estradiol[J]. Avian Diseases, 1981, 25(2):410-422.

DOI

[8]
ZHUANG Y, XING C H, CAO H B, et al. Insulin resistance and metabonomics analysis of fatty liver haemorrhagic syndrome in laying hens induced by a high-energy low-protein diet[J]. Scientific Reports, 2019, 9(1):10141.

DOI PMID

[9]
WANG X Y, LI S C, LUO M J, et al. Flavonoids in non-alcoholic fatty liver disease:classification,therapeutic potential,and underlying mechanisms[J]. Journal of Chinese Pharmaceutical Sciences, 2025, 34(9):801-820.

DOI

[10]
SHINI A, SHINI S, BRYDEN W L. Fatty liver haemorrhagic syndrome occurrence in laying hens:impact of production system[J]. Avian Pathology, 2019, 48(1):25-34.

DOI

[11]
ESLAM M, NEWSOME P N, SARIN S K, et al. A new definition for metabolic dysfunction-associated fatty liver disease:an international expert consensus statement[J]. Journal of Hepatology, 2020, 73(1):202-209.

DOI

[12]
DAY C P, JAMES O F W. Steatohepatitis:a tale of two “hits”?[J]. Gastroenterology, 1998, 114(4):842-845.

DOI

[13]
JIANG X J, STOCKWELL B R, CONRAD M. Ferroptosis:mechanisms,biology and role in disease[J]. Nature Reviews Molecular Cell Biology, 2021, 22(4):266-282.

DOI

[14]
DIXON S J, OLZMANN J A. The cell biology of ferroptosis[J]. Nature Reviews Molecular Cell Biology, 2024, 25(6):424-442.

DOI PMID

[15]
TONG J, LI D J, MENG H B, et al. Targeting a novel inducible GPX4 alternative isoform to alleviate ferroptosis and treat metabolic-associated fatty liver disease[J]. Acta Pharmaceutica Sinica B, 2022, 12(9):3650-3666.

DOI PMID

[16]
ZHANG H, ZHANG E X, HU H B. Role of ferroptosis in non-alcoholic fatty liver disease and its implications for therapeutic strategies[J]. Biomedicines, 2021, 9(11):1660.

DOI

[17]
SHEN X, YU Z Q, WEI C L, et al. Iron metabolism and ferroptosis in nonalcoholic fatty liver disease:what is our next step?[J]. American Journal of Physiology:Endocrinology and Metabolism, 2024, 326(6):E767-E775.

[18]
TSURUSAKI S, TSUCHIYA Y, KOUMURA T, et al. Hepatic ferroptosis plays an important role as the trigger for initiating inflammation in nonalcoholic steatohepatitis[J]. Cell Death & Disease, 2019, 10(6):449.

[19]
WEI S, QIU T M, WANG N N, et al. Ferroptosis mediated by the interaction between Mfn2 and IREα promotes arsenic-induced nonalcoholic steatohepatitis[J]. Environmental Research, 2020, 188:109824.

DOI

[20]
魏爽, 章文春, 邢欢, 等. 黄芪葛根配伍通过调控线粒体自噬抑制铁死亡改善T2DM大鼠IR的机制研究[J]. 中国医院药学杂志, 2025, 45(9):1006-1014.

DOI

WEI S, ZHANG W C, XING H, et al. Mechanism of astragali radix-puerariae lobatae radix compatibility in improving insulin resistance in rats with type 2 diabetes mellitus by regulating mitochondrial autophagy and inhibiting ferroptosis[J]. Chinese Journal of Hospital Pharmacy, 2025, 45(9):1006-1014. (in Chinese)

DOI

[21]
GAO M H, YI J M, ZHU J J, et al. Role of mitochondria in ferroptosis[J]. Molecular Cell, 2019, 73(2):354-363.e3.

DOI PMID

[22]
RAMANATHAN R, ALI A H, IBDAH J A. Mitochondrial dysfunction plays central role in nonalcoholic fatty liver disease[J]. International Journal of Molecular Sciences, 2022, 23(13):7280.

DOI

[23]
张瑞, 李荣荣, 王腊梅, 等. 氧化应激在非酒精性脂肪肝发病机制中的作用和潜在治疗靶点[J]. 动物营养学报, 2022, 34(12):7602-7615.

DOI

ZHANG R, LI R R, WANG L M, et al. Role of oxidative stress in pathogenesis of non-alcoholic fatty liver disease and potential therapeutic targets[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7602-7615. (in Chinese)

DOI

[24]
BEDOSSA P, POITOU C, VEYRIE N, et al. Histopathological algorithm and scoring system for evaluation of liver lesions in morbidly obese patients[J]. Hepatology, 2012, 56(5):1751-1759.

DOI PMID

[25]
LI X Y, WANG T X, HUANG X M, et al. Targeting ferroptosis alleviates methionine-choline deficient (MCD)-diet induced NASH by suppressing liver lipotoxicity[J]. Liver International, 2020, 40(6):1378-1394.

DOI PMID

[26]
VOGT A C S, ARSIWALA T, MOHSEN M, et al. On iron metabolism and its regulation[J]. International Journal of Molecular Sciences, 2021, 22(9):4591.

DOI

[27]
PARK E, CHUNG S W. ROS-mediated autophagy increases intracellular iron levels and ferroptosis by ferritin and transferrin receptor regulation[J]. Cell Death & Disease, 2019, 10(11):822.

[28]
张慧, 何彦山, 苏惠霞. 铁死亡相关调控信号通路在非酒精性脂肪肝中的研究进展[J]. 现代医学与健康研究(电子版), 2023, 7(24):134-137.

ZHANG H, HE Y S, SU H X. Research progress of ferroptosia-related regulatory signaling pathways in non-alcoholic fatty liver disease[J]. Modern Medicine and Health Research(Electronic Edition), 2023, 7(24):134-137. (in Chinese)

[29]
张小雅, 沈起艳, 石春霞, 等. 铁死亡在肝脏疾病中的研究进展[J]. 肝脏, 2024, 29(6):739-742.

ZHANG X Y, SHEN Q Y, SHI C X, et al. Research progress of ferroptosis in liver diseases[J]. Chinese Hepatology, 2024, 29(6):739-742. (in Chinese)

[30]
LANCETA L, LI C, CHOI A M, et al. Haem oxygenase-1 overexpression alters intracellular iron distribution[J]. Biochemical Journal, 2013, 449(1):189-194.

DOI PMID

[31]
GLUCHOWSKI N L, BECUWE M, WALTHER T C, et al. Lipid droplets and liver disease:from basic biology to clinical implications[J]. Nature Reviews Gastroenterology & Hepatology, 2017, 14(6):343-355.

[32]
GAO M H, MONIAN P, PAN Q H, et al. Ferroptosis is an autophagic cell death process[J]. Cell Research, 2016, 26(9):1021-1032.

DOI PMID

[33]
DIXON S J, LEMBERG K M, LAMPRECHT M R, et al. Ferroptosis:an iron-dependent form of nonapoptotic cell death[J]. Cell, 2012, 149(5):1060-1072.

DOI

[34]
MOU Y H, WANG J, WU J C, et al. Ferroptosis,a new form of cell death:opportunities and challenges in cancer[J]. Journal of Hematology & Oncology, 2019, 12(1):34.

[35]
WANG N, QUE H Y, LUO Q L, et al. Mechanisms of ferroptosis in nonalcoholic fatty liver disease and therapeutic effects of traditional Chinese medicine:a review[J]. Frontiers in Medicine, 2024, 11:1356225.

DOI

[36]
张新. 铁死亡引发小鼠非酒精性脂肪肝病的分子机制及黄芪甲苷的调控作用研究[D]. 硕士学位论文. 沈阳: 辽宁中医药大学, 2022.

ZHANG X. Study on the molecular mechanism of ferroptosis inducing non-alcoholic fatty liver disease in mice and the regulatory effect of astragaloside IV[D]. Master’s Thesis. Shenyang: Liaoning University of Traditional Chinese Medicine, 2022. (in Chinese)

[37]
LI M N, LIAO J B, WANG N, et al. The relationship between ferroptosis and non-alcoholic fatty liver disease[J]. Gastroenterology & Hepatology Research, 2024, 6(2):7.

[38]
ARROYAVE-OSPINA J C, WU Z M, GENG Y N, et al. Role of oxidative stress in the pathogenesis of non-alcoholic fatty liver disease:implications for prevention and therapy[J]. Antioxidants, 2021, 10(2):174.

DOI

[39]
WEI F X, YANG X Y, ZHANG M H, et al. Akkermansia muciniphila enhances egg quality and the lipid profile of egg yolk by improving lipid metabolism[J]. Frontiers in Microbiology, 2022, 13:927245.

DOI

[40]
QIU K, ZHAO Q, WANG J, et al. Effects of pyrroloquinoline quinone on lipid metabolism and anti-oxidative capacity in a high-fat-diet metabolic dysfunction-associated fatty liver disease chick model[J]. International Journal of Molecular Sciences, 2021, 22(3):1458.

DOI

[41]
LIU J Y, XIA X J, HUANG P. xCT:a critical molecule that links cancer metabolism to redox signaling[J]. Molecular Therapy, 2020, 28(11):2358-2366.

DOI

[42]
WANG H, SHAN C L, GUO G J, et al. Therapeutic potential of palmitoleic acid in non-alcoholic fatty liver disease:targeting ferroptosis and lipid metabolism disorders[J]. International Immunopharmacology, 2024, 142(Pt A):113025.

[43]
ZHU B W, SUN C, LUO D R, et al. Coptisine improves liver inflammation in sepsis by regulating STAT1/IRF1/GPX4 signaling-mediated Kupffer cells ferroptosis[J]. Phytotherapy Research, 2025, 39(9):4308-4326.

DOI

[44]
HUANG H C, LEE P N, HUANG W C, et al. Partial replacement of diet with dehulled adlay ameliorates hepatic steatosis,inflammation,oxidative stress,and gut dysbiosis in rats with nonalcoholic fatty liver disease[J]. Nutrients, 2023, 15(20):4375.

DOI

[45]
CHEN Y, FANG Z M, YI X, et al. The interaction between ferroptosis and inflammatory signaling pathways[J]. Cell Death & Disease, 2023, 14(3):205.

文章导航

/