研究论文

哺乳期补饲精料补充料对放牧牦牛犊牛生长性能、血液指标和瘤胃代谢功能的影响

  • 梅成兰 ,
  • 薄夫全 * ,
  • 张智安 ,
  • 刘书杰 ,
  • 孙璐 ,
  • 闫忠心 ,
  • 吕佳颖 ,
  • 崔占鸿 , **
展开
  • 青海大学畜牧兽医科学院, 农业农村部青藏高原放牧牦牛藏羊动物营养与饲草料重点实验室,青海省牦牛工程技术研究中心,青海省高原放牧家畜动物营养与饲料科学重点实验室, 西宁 810016
** 崔占鸿,研究员,博士生导师,E-mail:

* 同等贡献作者

梅成兰(1999—),女,青海门源人,硕士研究生,从事反刍动物营养与饲料科学研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-12-10

  网络出版日期: 2026-07-14

基金资助

青海省科技计划项目(2025-NK-124)

Effects of Supplemented Feeding of Concentrate Supplement during Suckling Period on Growth Performance, Blood Indices and Rumen Metabolic Function of Grazing Yak Calves

  • MEI Chenglan ,
  • BO Fuquan * ,
  • ZHANG Zhi’an ,
  • LIU Shujie ,
  • SUN Lu ,
  • YAN Zhongxin ,
  • LYU Jiaying ,
  • CUI Zhanhong , **
Expand
  • Key Laboratory of Animal Nutrition and Feed Science for Grazing Livestock on the Qinghai Plateau of Qinghai Province, Qinghai Provincial Engineering Research Center for Yak, Key Laboratory of Animal Nutrition and Forage for Grazing Yaks and Tibetan Sheep on the Qinghai-Tibet Plateau, Ministry of Agriculture and Rural Affairs, College of Animal Science and Veterinary Medicine, Qinghai University, Xining 810016, China
** professor, E-mail:

* Contributed equally

Received date: 2025-12-10

  Online published: 2026-07-14

摘要

为了探究哺乳期补饲精料补充料对放牧牦牛犊牛生长性能、血液指标和瘤胃代谢功能的影响,本试验选取14头健康、体重[(36.55±1.89) kg]相近的公牦牛犊牛,随机分为2个组(每组7头,n=7),其中对照组饲喂代乳粉+放牧,补饲组饲喂代乳粉+放牧+补饲精料补充料。预试期12 d,正试期60 d。试验前犊牛均随母哺乳(80±7) d,在预试期开始时将犊牛与母牦牛隔离实现断奶,犊牛空腹称重并随机分组,开始采用代乳粉(代乳粉∶温水=1∶5)代替母乳进行饲喂。在正试期,犊牛每日饲喂2次代乳粉(07:00—08:30和17:30—18:30),补饲组犊牛于07:00—08:30饲喂1次精料补充料,其他时间均在天然草场进行放牧。代乳粉(以干物质计)每天饲喂量为犊牛体重的1.2%,精料补充料每天饲喂量为犊牛体重的2.5%。采用单桶饲喂,每15 d根据体重增长调整1次饲喂量。结果显示:1)补饲组的终末体重、净增重和平均日增重极显著高于对照组(P<0.01),胸围显著高于对照组(P<0.05)。2)补饲组的血清免疫球蛋白A和胰岛素生长因子-Ⅰ含量极显著高于对照组(P<0.01),尿素氮、白细胞介素-2和胰岛素含量显著高于对照组(P<0.05)。3)补饲组瘤胃内氨态氮浓度极显著高于对照组(P<0.01),丙酸浓度显著高于对照组(P<0.05),蛋白酶活性极显著高于对照组(P<0.01)。4)瘤胃微生物16S rRNA测序分析显示,在门水平上,2组优势菌门均为拟杆菌门、厚壁菌门和变形菌门,但补饲组厚壁菌门的相对丰度显著高于对照组(P<0.05);在属水平上,优势菌属均为普雷沃氏菌属、未分类的F082和理研菌科RC9肠道群等,补饲组鼠杆菌科的相对丰度极显著高于对照组(P<0.01)。5)瘤胃代谢组学分析显示,补饲组与对照组有857个差异代谢物。KEGG通路富集分析显示,差异代谢物主要富集在精氨酸和脯氨酸代谢、核黄素代谢和蛋白质消化与吸收等通路。综上得出,在放牧条件下,针对哺乳期牦牛犊牛,补饲精料补充料能提高其生长性能,增加血液中免疫因子的含量,改善瘤胃代谢功能,最终促进牦牛犊牛的生长发育。

本文引用格式

梅成兰 , 薄夫全 , 张智安 , 刘书杰 , 孙璐 , 闫忠心 , 吕佳颖 , 崔占鸿 . 哺乳期补饲精料补充料对放牧牦牛犊牛生长性能、血液指标和瘤胃代谢功能的影响[J]. 动物营养学报, 2026 , 38(7) : 5197 -5212 . DOI: 10.12418/CJAN2026.417

Abstract

To investigate the effects of supplemental feeding of concentrate supplement during suckling period on the growth performance, blood indexes and rumen metabolic function of grazing yak calves, fourteen healthy male yak calves with similar body weight [(36.55±1.89) kg] were selected and randomly divided into two groups (seven calves per group, n=7). The control group was fed milk replacer+grazing, while the supplemental feeding group was fed milk replacer+grazing+supplemental feeding of concentrate supplement. The preliminary feeding period lasted for 12 days, and the formal experimental period lasted for 60 days. Prior to the experiment, all calves were suckling with their mothers for (80±7) days. At the beginning of the preliminary feeding period, the calves were separated from their mothers to achieve weaning. The calves were weighed on an empty stomach and randomly assigned to groups, and then milk replacer (milk replacer∶warm water =1∶5) was used to replace maternal milk. During the formal experimental period, the calves were fed milk replacer twice daily (07:00—08:30 and 17:30—18:30). Calves in the supplemental feeding group were fed concentrate supplement once daily at 07:00—08:30. At other times, all calves grazed in natural pasture. The daily feeding amount of milk replacer (on a dry matter basis) was 1.2% of the calf’s body weight, and the daily supplemental feeding amount of concentrate supplement was 2.5% of the calf’s body weight. A single bucket was used for feeding, and the feeding amount was adjusted every 15 days based on body weight gain. The results showed as follows: 1) the final body weight, net weight gain and average daily gain in the supplemental feeding group were extremely significantly higher than those in the control group (P<0.01), and the chest circumference was significantly higher than that in the control group (P<0.05). 2) The serum contents of immunoglobulin A and insulin-like growth factor-Ⅰ in the supplemental feeding group were extremely significantly higher than those in the control group (P<0.01), and the serum contents of blood urea nitrogen, interleukin-2, and insulin were significantly higher than those in the control group (P<0.05). 3) In the rumen, the ammonia nitrogen concentration in the supplemental feeding group was extremely significantly higher than that in the control group (P<0.01), the propionic acid concentration was significantly higher than that in the control group (P<0.05), and the protease activity was extremely significantly higher than that in the control group (P<0.01). 4) 16S rRNA sequencing analysis of rumen microbiota showed that, at the phylum level, the dominant phyla in both groups were Bacteroidota, Firmicutes and Proteobacteria, and the relative abundance of Firmicutes in the supplemental feeding group was significantly higher than that in the control group (P<0.05); at the genus level, the dominant genera were Prevotella, unclassified_F082 and Rikenellaceae_RC9_gut_group, etc., and the relative abundance of Muribaculaceae in the supplemental feeding group was extremely significantly higher than that in the control group (P<0.01). 5) Rumen metabolomics analysis showed that there were 857 differential metabolites between the supplemental feeding group and the control group. KEGG pathway enrichment analysis revealed that the differential metabolites were mainly enriched in pathways such as arginine and proline metabolism, riboflavin metabolism, and protein digestion and absorption. In conclusion, under grazing conditions, supplemental feeding of concentrate supplement to suckling yak calves can improve their growth performance, increase the contents of immune factors in the blood, enhance rumen metabolic function, and ultimately promote the growth and development of yak calves.

牦牛是青藏高原牧民的重要生产资源和收入来源[1-2],对当地经济发展与社会稳定具有重要意义。成年牦牛的生产性能优劣与犊牛阶段的饲养质量密切相关,并受其直接调控[3],因此,做好犊牛早期培育工作是推动牦牛产业长期可持续发展的重要支撑[4]。目前,青藏高原牦牛主要依靠放牧饲养,但由于牧草供给的季节性失衡[5-6]以及养殖水平参差不齐,牦牛普遍存在营养不足、严重掉膘等问题,极端气候条件下甚至发生犊牛冻死或饥饿致死现象[7],长期制约着牦牛产业的稳步发展。为突破传统饲养方式的瓶颈,优化现有技术体系与饲养管理模式已成为当务之急[8]。针对牧草季节性枯荣所引起的营养供给不平衡,补饲是一项必要的管理策略,其目的在于弥补单一放牧模式的营养缺陷,确保牦牛获得全面均衡的营养,从而维持正常生长发育、繁殖性能及健康水平。目前,虽有学者对牦牛犊牛的人工代乳技术及补饲策略开展了基础性探索[9],但在实际放牧条件下,关于人工代乳与精料补充料协同应用的营养调控机制及其实践效果,仍存在明显的研究空白与完善空间。科学补饲精料补充料有助于为犊牛提供充足营养,缓解断奶应激,保障按时断奶,并促进后期生长发育的质量与效率[10]。为此,本试验在放牧条件下,采用代乳粉配合精料补充料饲喂牦牛犊牛,旨在探讨哺乳期补饲精料补充料对其生长性能、血液指标及瘤胃代谢功能的影响,以期为哺乳期牦牛犊牛精料补充料的早期营养补饲应用提供理论依据。

1 材料与方法

1.1 试验设计

本试验已通过青海省畜牧兽医科学院试验动物管理委员会批准,审批号:2026-QHMKY-015。
动物试验于2024年7月至2024年9月在青海省海北藏族自治州西海镇南拉太家庭牧场进行。选取14头身体健康、体重[(36.55±1.89) kg]相近的哺乳期公牦牛犊牛(平均80日龄)作为试验动物,随机分为2组,即对照组和补饲组,每组7头。对照组饲喂代乳粉+放牧,补饲组饲喂代乳粉+放牧+精料补充料。预试期12 d,正试期60 d。试验开始前,犊牛均随母哺乳(80±7) d。预试期开始时,首先将母牦牛与犊牛分离以实现断奶,随后对所有犊牛进行空腹称重,并依据随机化原则完成分组,开始使用代乳粉替代母乳进行饲喂,代乳粉与温水的配制比例为1∶5。在正式试验期间,每日对犊牛进行2次代乳粉饲喂(时间为07:00—08:30和17:30—18:30),补饲组犊牛饲喂1次精料补充料(时间为07:00—08:30)。代乳粉(以干物质计)每日每头饲喂量为犊牛体重的1.2%,精料补充料每日每头饲喂量为犊牛体重的2.5%,均通过专用料桶单独投喂。每15 d根据犊牛体重变化调整1次饲喂量。每次饲喂代乳粉或精料补充料后,将犊牛放牧于同一草场,草场位于青海省海北藏族自治州西海镇,占地约800亩(1亩≈667 m2),主要植物物种包括早熟禾(Poa annua)、芨芨草(Achnatherum splendens)及狼毒花(Stellera chamaejasme)等。所有哺乳牦牛犊牛均保证自由饮水。试验所用精料补充料的组成见表1,代乳粉、精料补充料和天然牧草的营养成分含量见表2
表1 精料补充料的组成(干物质基础)

Table 1 Composition of concentrate supplement (DM basis) %

项目Items 含量Content
玉米Corn 46.5
豆粕Soybean meal 27.0
膨化大豆Expanded soybean 8.0
麸皮Bran 9.5
乳清粉Whey powder 5.0
石粉Limestone 1.6
预混料Premix 1.0
脂肪粉Fat power 0.5
磷酸氢钙CaHPO4 0.5
食盐NaCl 0.4
合计Total 100.0

预混料为每千克精料补充料提供 The premix supplied the following per kg of concentrate supplement:Fe 22.1 mg,Mn 9.82 mg,Cu 2.25 mg,Zn 27.0 mg,Se 0.19 mg,I 0.54 mg,Co 0.09 mg,VA 30 000 IU,VD 30 000 IU,VE 4 000 IU。

表2 代乳粉、精料补充料和天然牧草的营养成分含量(干物质基础)

Table 2 Nutrient contents of milk replacer, concentrate supplement and natural grass (DM basis) %

项目
Items
代乳粉
Milk replacer
精料补充料
Concentrate supplement
天然牧草
Natural grass
粗蛋白质CP 28.23 23.18 7.85
粗脂肪EE 27.91 4.35 3.38
粗灰分Ash 5.37 5.86 8.31
酸性洗涤纤维ADF 5.78 34.66
中性洗涤纤维NDF 17.04 51.91
钙Ca 2.46 0.82 0.22
磷P 1.48 0.43 0.12

表中各营养成分含量均为实测值。

All nutrient contents in the table were measured values.

1.2 样品采集

1.2.1 饲料样品采集

于正式试验的前期(第1天)、中期(第30天)和末期(第60天),分别采集代乳粉、天然牧草和精料补充料样品,并将同一饲料在各阶段所采集的样品混合均匀后作为待测样品。

1.2.2 血液采集与血清制备

在正试期最后1天清晨,在犊牛空腹状态下使用真空采血管采10 mL颈静脉血,再转移至15 mL离心管内,1 207×g离心10 min,取血清分装到1.5 mL离心管,-20 ℃条件下冻存待测。

1.2.3 瘤胃液采集

于正试期最后1天的08:00,在犊牛空腹状态下采用口腔采样方式,使用瘤胃液采集管采集瘤胃液。抽取的瘤胃液首先经无菌洁净纱布(121 ℃高压灭菌20 min)过滤,以去除未消化的饲料颗粒及杂质。过滤后,立即使用经pH标准缓冲液校准的便携式pH计精确测定瘤胃液pH并记录。剩余瘤胃液样品分装至无菌5 mL冻存管中,每管分装3.5 mL,密封后即刻投入液氮中低温保存,以维持样品稳定性。

1.3 指标测定及方法

1.3.1 饲料营养成分分析

精料补充料和天然牧草样品先采用粉碎机进行研磨粉碎,经过筛处理后,再进行营养成分分析。粗蛋白质、粗脂肪、中性洗涤纤维、酸性洗涤纤维、粗灰分、钙和总磷含量分别参照GB/T 6432—2018[11]、GB/T 6433—2025[12]、GB/T 20806—2022[13]、NY/T 1459—2022[14]、GB/T 6438—2025[15]、GB/T 6436—2018[16]和GB/T 6437—2018[17]测定。

1.3.2 生长性能测定

在正试期第1天和最后1天晨饲前,逐头称量犊牛体重,记录初始体重和终末体重,计算各组犊牛的净增重、平均日增重,具体计算方法如下:
净增重(kg)=终末体重-初始体重;
平均日增重(g/d)=(终末体重-初始体重)/试验天数。
体尺指标:在正试期第1天和最后1天晨饲前,使用卷尺逐头测量犊牛的体高、体斜长、胸围和管围。

1.3.3 血液指标测定

血清生化指标:采用全自动血液生化分析仪,对血清中谷丙转氨酶(ALT)、谷草转氨酶(AST)、碱性磷酸酶(ALP)、总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、尿素氮(BUN)、葡萄糖(GLU)、总胆固醇(TC)和甘油三酯(TG)的活性或含量进行检测。
血清免疫和激素指标:采用江苏酶标生物科技有限公司生产的酶联免疫吸附试验(ELISA)试剂盒检测血清中免疫球蛋白G(IgG)、免疫球蛋白A(IgA)、免疫球蛋白M(IgM)、白细胞介素-2(IL-2)、白细胞介素-4(IL-4)、肿瘤坏死因子-α(TNF-α)、生长激素(GH)、胰岛素(INS)及胰岛素样生长因子-Ⅰ(IGF-Ⅰ)含量。

1.3.4 瘤胃代谢指标测定

瘤胃发酵参数:氨态氮(NH3-N)浓度的测定参照文献[18]的方法并稍作优化,采用TU-1810型紫外可见分光光度计进行比色分析。微生物蛋白(MCP)和挥发性脂肪酸(VFA)各组分的浓度参照文献[19]的方法检测。其中,MCP采用考马斯亮蓝法显色后测定吸光度值,换算得到浓度数据;使用日本岛津GC-2014型气相色谱仪,采用程序升温分离模式进行VFA各组分分离与定量分析。
瘤胃消化酶活性:采用ELISA法检测瘤胃液中5种关键消化酶的活性,包括蛋白酶、果胶酶、淀粉酶、纤维素酶及木聚糖酶。检测前,将冷冻保存的瘤胃液样品采用梯度解冻法(-20 ℃→4 ℃→室温)解冻,避免反复冻融导致酶活性损失。检测过程严格遵循江苏酶标生物科技有限公司ELISA试剂盒说明书操作,通过标准品建立浓度-吸光度标准曲线,根据样品吸光度值换算得到各酶的活性。
瘤胃微生物区系:瘤胃液样本经筛选后,每组随机选取6个瘤胃液样本,送至上海欧易生物技术有限公司进行微生物区系检测。使用MagPure Soil DNA LQ Kit试剂盒(广州美基生物科技有限公司)提取样本基因组DNA,并采用NanoDrop 2000超微量分光光度计(Thermo Fisher Scientific,美国)检测DNA的浓度与纯度[260与280 nm处吸光度之比(A260/A280)为1.8~2.0],并通过1×TAE琼脂糖凝胶电泳验证其完整性。合格的DNA保存于-20 ℃备用。以提取的DNA为模板,使用带Barcode的引物(343F/798R)和TaKaRa Ex Taq酶,扩增16S rRNA基因的V3~V4区。PCR产物经1.5%琼脂糖凝胶电泳检测后,用AMPure XP磁珠进行纯化,并完成二次PCR。纯化后的PCR产物经Qubit定量,在Illumina NovaSeq 6000平台上采用双末端(PE)测序模式进行分析,设定序列读段长度为250 bp。上述全部测序流程均由上海欧易生物技术有限公司严格按照标准操作规程完成。
瘤胃代谢物:瘤胃液样本经筛选后,选取6份代表性样本密封保存,送至上海欧易生物技术有限公司进行代谢组学分析,相关分析流程严格遵循非靶向代谢组学的标准方法。精确称量样本后,加入含内标(L-2-氯苯丙氨酸)的预冷甲醇-水溶液,依次进行研磨、冰水浴超声、-40 ℃静置,随后于4 ℃条件下离心10 min。取300 μL上清液转移至液相色谱-质谱联用(LC-MS)进样瓶中,经氮气吹干;复溶后,再次进行冰水浴超声、静置、复溶及离心,上清液经0.22 μm滤膜过滤后置于进样瓶中,于-80 ℃保存待测。质控样本(QC)由所有样本提取液等体积混合制备。采用ACQUITY UPLC I-Class超高效液相色谱仪(Waters,美国)与Q-Exactive高分辨质谱仪(Thermo Fisher Scientific,美国)联用系统进行代谢谱分析,该质谱仪配备加热电喷雾电离源(ESI)。分别在ESI正离子和负离子模式下进行检测。色谱柱采用ACQUITY UPLC HSS T3(Waters,美国),流动相为0.1%甲酸水溶液与0.1%甲酸乙腈溶液,采用梯度洗脱。

1.4 数据处理与统计分析

使用SPSS 26.0统计软件进行独立样本t检验。所有数据均以“平均值±标准差”表示,P<0.01表示差异极显著,P<0.05表示差异显著,0.05≤P<0.10表示具有显著变化的趋势,P>0.05表示差异不显著。

2 结果与分析

2.1 哺乳期补饲精料补充料对放牧牦牛犊牛生长性能的影响

表3可知,补饲组的初始体重、体斜长、管围和体高与对照组无显著差异(P>0.05),终末体重、净增重和平均日增重极显著高于对照组(P<0.01),胸围显著高于对照组(P<0.05),体斜长有高于对照组的趋势(P=0.096)。
表3 哺乳期补饲精料补充料对放牧牦牛犊牛生长性能的影响

Table 3 Effects of supplemented feeding of concentrate supplement during suckling period on growth performance of grazing yak calves

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
初始体重Initial body weight/kg 38.20±0.44 39.70±0.82 0.143
终末体重Final body weight/kg 52.40±0.68 56.80±0.58 0.001
净增重Net weight gain/kg 14.20±0.54 17.10±0.58 0.006
平均日增重Average daily gain/(g/d) 458.10±17.37 551.60±18.67 0.006
胸围Chest circumference/cm 92.58±1.06 95.75±2.46 0.016
体斜长Body oblique length/cm 77.00±4.20 81.00±3.29 0.096
管围Cannon circumference/cm 11.15±0.31 11.20±0.41 1.000
体高Body height/cm 80.83±2.78 81.33±3.26 0.781

2.2 哺乳期补饲精料补充料对牦牛犊牛血液指标的影响

表4可知,补饲组血清中UN含量显著高于对照组(P<0.05),包括ALT、AST、ALP活性及TP和GLU含量在内的其他血清生化指标与对照组无显著差异(P>0.05)。
表4 哺乳期补饲精料补充料对放牧牦牛犊牛血清生化指标的影响

Table 4 Effects of supplemented feeding of concentrate supplement during suckling period on serum biochemical indices of grazing yak calves

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
谷丙转氨酶ALT/(U/L) 47.04±2.11 47.90±4.27 0.861
谷草转氨酶AST/(U/L) 93.80±6.24 112.68±8.43 0.110
碱性磷酸酶ALP/(U/L) 3.28±0.63 3.06±0.24 0.751
总蛋白TP/(g/L) 68.30±2.08 66.37±1.36 0.455
白蛋白ALB/(g/L) 34.33±0.48 34.35±0.50 0.981
球蛋白GLB/(g/L) 35.56±1.83 32.03±1.14 0.806
尿素BUN/(mmol/L) 3.84±0.23 4.70±0.23 0.036
葡萄糖GLU/(mmol/L) 4.17±0.24 4.09±0.14 0.772
总胆固醇TC/(mmol/L) 2.45±0.11 2.50±0.07 0.715
甘油三酯TG/(mmol/L) 0.20±0.01 0.18±0.01 0.226
表5可知,补饲组血清中IgA和IGF-Ⅰ含量极显著高于对照组(P<0.01),IL-2和INS含量显著高于对照组(P<0.05),IgG、IgM、IL-4、TNF-α和GH含量与对照组差异不显著(P>0.05)。
表5 哺乳期补饲精料补充料对放牧牦牛犊牛血清免疫和激素指标的影响

Table 5 Effects of supplemented feeding of concentrate supplement during suckling period on serum immune and hormone indices of grazing yak calves

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
免疫球蛋白G IgG/(mg/mL) 27.55±6.62 30.43±2.41 0.213
免疫球蛋白A IgA/(μg/mL) 968.07±23.31 1 112.61±91.78 0.009
免疫球蛋白M IgM/(μg/mL) 1 982.59±92.89 2 028.49±100.89 0.743
白细胞介素-2 IL-2/(pg/mL) 304.80±66.15 347.02±27.88 0.046
白细胞介素-4 IL-4/(pg/mL) 49.85±6.23 49.10±9.88 0.843
肿瘤坏死因子-α TNF-α/(pg/mL) 65.36±6.23 69.72±7.35 0.160
生长激素GH/(ng/mL) 13.05±2.86 14.35±1.54 0.174
胰岛素INS/(mIU/L) 24.91±1.72 29.81±0.89 0.017
胰岛素生长因子-Ⅰ IGF-Ⅰ/(ng/mL) 253.47±15.32 309.75±7.44 0.002

2.3 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃发酵参数和消化酶活性的影响

表6可知,补饲组瘤胃内NH3-N浓度极显著高于对照组(P<0.01),丙酸浓度显著高于对照组(P<0.05),MCP、乙酸、丁酸、戊酸和总挥发性脂肪酸浓度以及乙丙比与对照组无显著差异(P>0.05)。由表7可知,补饲组瘤胃内蛋白酶活性极显著高于对照组(P<0.01),果胶酶、淀粉酶、纤维素酶及木聚糖酶活性与对照组无显著差异(P>0.05)。
表6 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃发酵参数的影响

Table 6 Effects of supplemented feeding of concentrate supplement during suckling period on rumen fermentation parameters of grazing yak calves

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
pH 6.30±0.19 6.46±0.40 0.272
氨态氮NH3-N/(mg/dL) 4.21±0.49 5.06±0.33 0.005
微生物蛋白MCP/(mg/dL) 16.75±1.29 18.75±2.38 0.190
乙酸Acetate/(mmol/L) 31.77±2.14 35.25±2.71 0.318
丙酸Propionate/(mmol/L) 5.05±0.86 7.02±1.63 0.011
丁酸Butyrate/(mmol/L) 6.26±1.21 7.15±1.54 0.128
戊酸Valerate/(mmol/L) 1.71±0.20 1.92±0.25 0.512
乙丙比Acetate/propionate ratio 5.37±0.54 5.42±0.28 0.817
总挥发性脂肪酸TVFA/(mmol/L) 46.06±6.10 48.92±3.28 0.670
表7 哺乳期补饲精料补充料对牦牛犊牛瘤胃消化酶活性的影响

Table 7 Effects of supplemented feeding of concentrate supplement during suckling period on rumen digestive enzyme activities of grazing yak calves

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
蛋白酶Protease/(U/mL) 680.94±37.95 794.84±50.46 0.002
果胶酶Pectinase/(U/mL) 62.56±7.10 67.14±5.15 0.135
淀粉酶Amylase/(U/L) 413.94±20.54 424.71±42.91 0.823
纤维素酶Cellulase/(U/mL) 386.93±8.51 391.12±19.60 0.346
木聚糖酶Xylanase/(U/mL) 481.73±6.20 483.84±15.35 0.894

2.4 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃微生物区系的影响

2.4.1 瘤胃微生物Alpha多样性指数

表8可知,2组间Chao1指数、Shannon指数、Simpson指数均无显著差异(P>0.05)。
表8 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃微生物alpha多样性指数的影响

Table 8 Effects of supplemented feeding of concentrate supplement during suckling period on rumen microbial alpha diversity indexes of grazing yak calves

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
Chao1指数Chao1 index 683.61±31.22 667.47±45.22 0.775
Shannon指数Shannon index 7.62±0.21 7.79±0.18 0.561
Simpson指数Simpson index 0.98±0.02 0.99±0.01 0.498

2.4.2 瘤胃微生物优势菌门和菌属相对丰度

表9可知,在门水平上,2组的优势菌门均为拟杆菌门、厚壁菌门、螺旋体门和变形菌门等,但相对丰度不同,补饲组厚壁菌门的相对丰度显著高于对照组(P<0.05),其他优势菌门的相对丰度2组间的差异均不显著(P>0.05);在属水平上,2组的优势菌属为普雷沃氏菌属、未分类的F082和理研菌科RC9肠道群等,其中补饲组鼠杆菌科的相对丰度极显著高于对照组(P<0.01),其他优势菌属的相对丰度2组间的差异均不显著(P>0.05)。
表9 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃优势菌门和菌属相对丰度的影响

Table 9 Effects of supplemented feeding of concentrate supplement during suckling period on relative abundances of dominant bacterial phyla and genera in rumen of grazing yak calves %

项目
Items
组别Groups P
P-value
对照Control 补饲Supplemented feeding
优势菌门Dominant bacterial phyla
拟杆菌门Bacteroidota 73.01±5.37 71.97±2.74 0.862
厚壁菌门Firmicutes 18.67±1.69 24.15±1.42 0.047
螺旋体门Spirochaetota 1.31±0.57 1.53±0.11 0.718
变形菌门Proteobacteria 1.31±0.24 0.80±0.18 0.118
脱硫杆菌门Desulfobacterota 0.57±0.11 0.60±0.06 0.772
放线菌门Actinobacteriota 0.12±0.04 0.17±0.09 0.629
优势菌属Dominant bacterial genera
普雷沃氏菌属Prevotella 27.08±5.76 22.95±0.64 0.398
未分类的F082 F082_unclassified 11.69±5.04 18.85±4.63 0.214
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 8.51±2.44 10.72±1.22 0.156
普雷沃氏菌科UCG-001 Prevotellaceae_UCG-001 3.16±0.41 2.95±0.38 0.727
克里斯滕森菌科R-7群Christensenellaceae_R-7_group 2.22±0.15 1.88±0.13 0.124
鼠杆菌科Muribaculaceae 1.50±0.13 5.58±0.73 0.001
普雷沃氏菌科UCG-003 Prevotellaceae_UCG-003 3.50±0.51 2.55±0.85 0.104

2.5 哺乳期补饲精料补充料对牦牛犊牛瘤胃代谢物的影响

2.5.1 正交偏最小二乘方-判别分析(OPLS-DA)
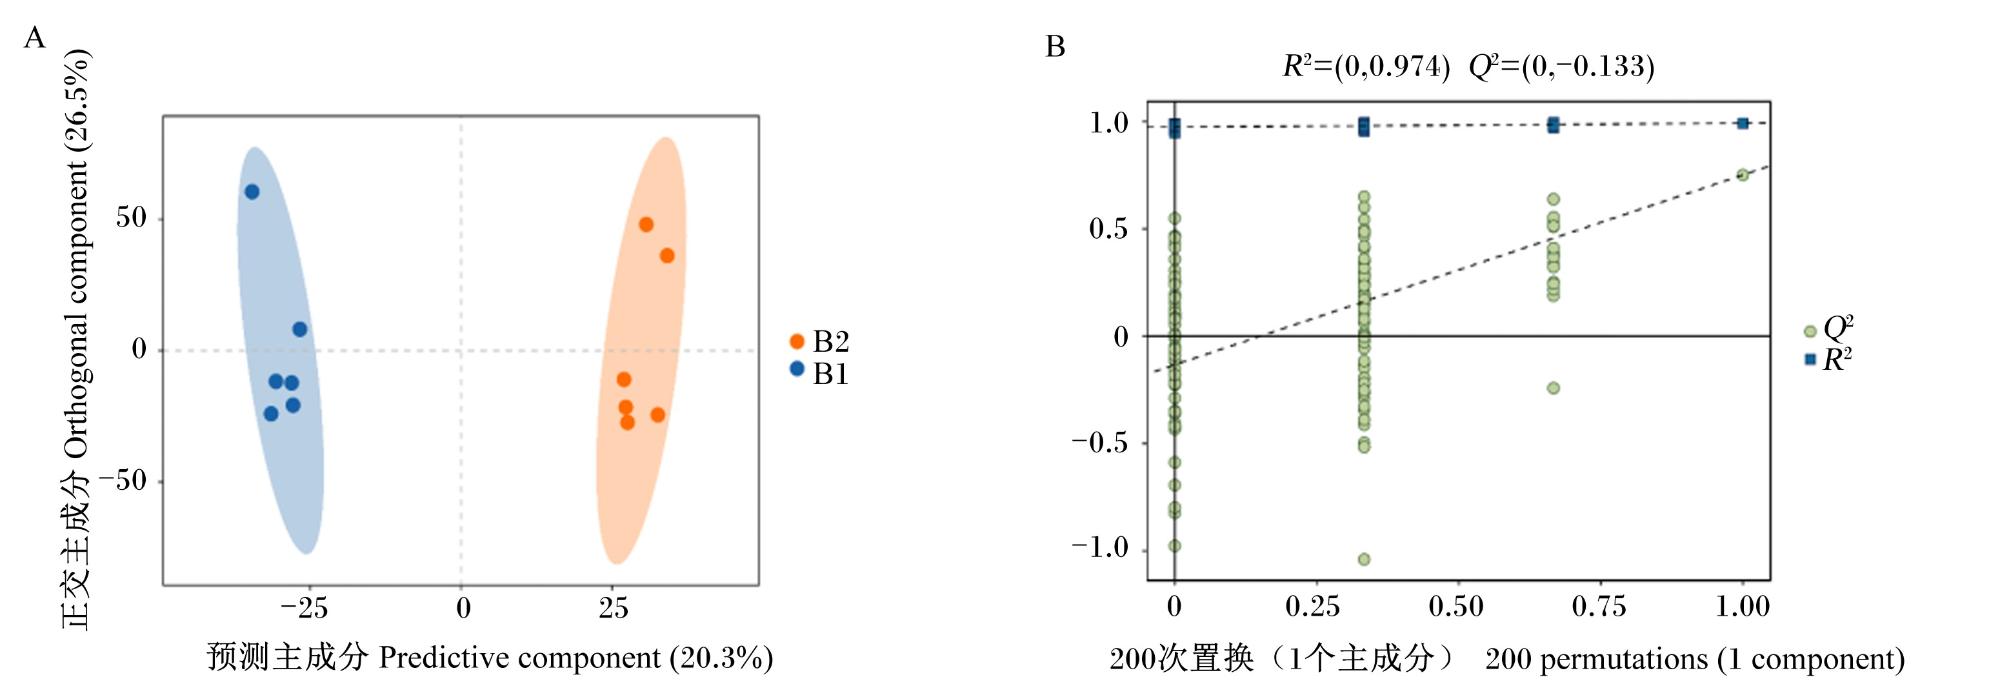
2组样本在OPLS-DA得分图上呈现显著分离(图1-A);使用200次响应排序检验对模型可靠性进行验证,结果显示,左侧所有绿色Q2值均低于右边的原始模型的Q2值,且绿色Q2回归线与纵轴相交的截距低于0(图1-B),说明模型并未发生过拟合,具有较好的预测可靠性。
图1 正交偏最小二乘方-判别分析得分图(A)和置换检验图(B)

补饲组在图上表示为B1,对照组表示为B2。图3同。

Fig.1 OPLS-DA score plot (A) and permutation test plot (B)

The supplemented feeding group was indicated as B1 in the figure, and the control group as B2. The same as Fig.3.

2.5.2 瘤胃差异代谢物

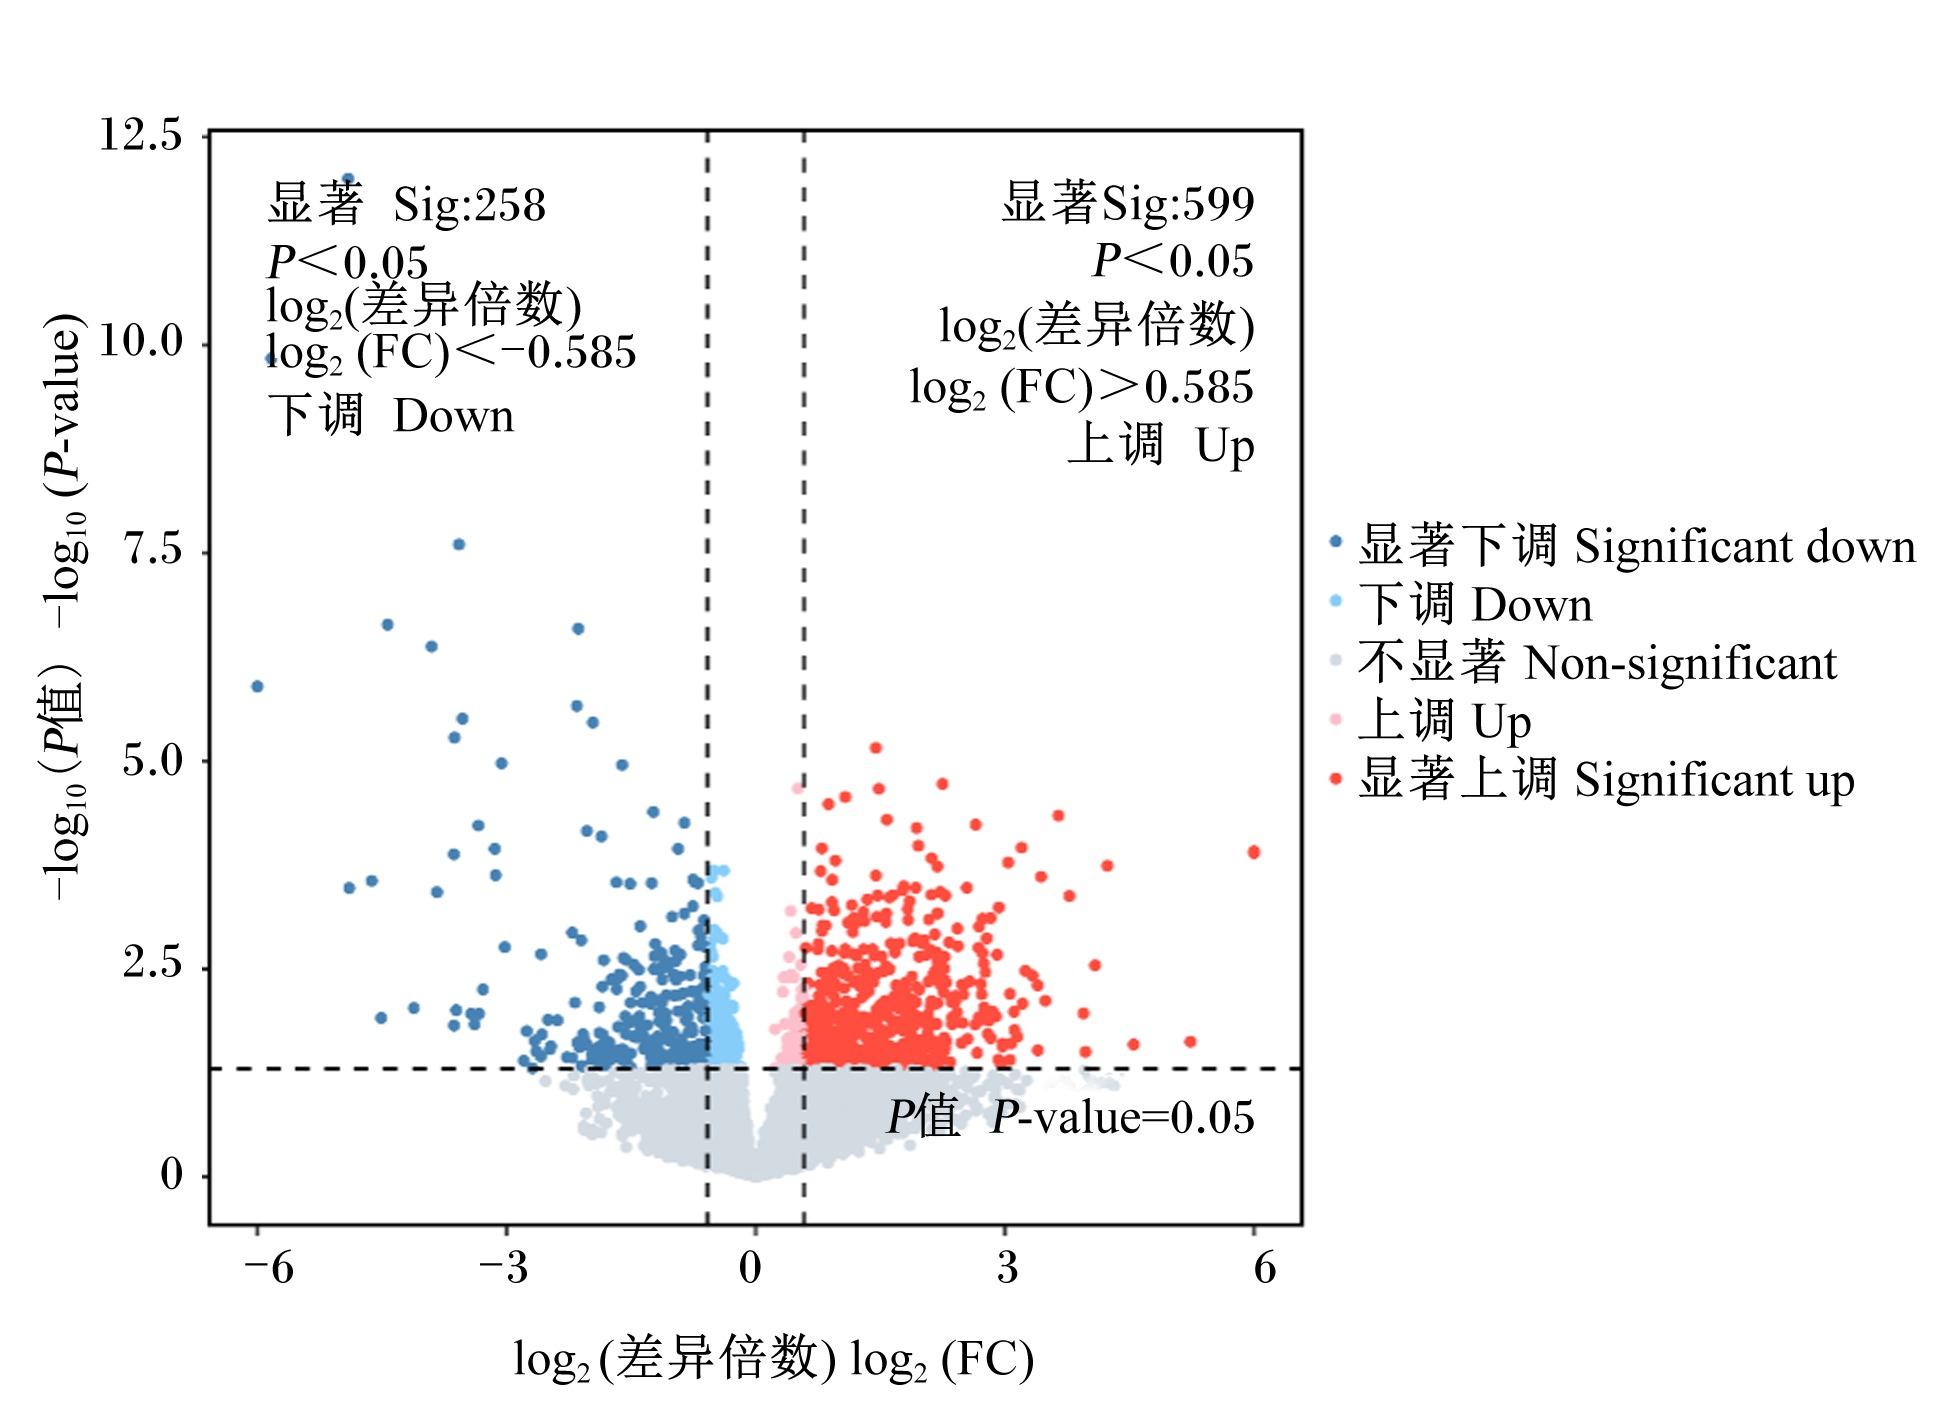
P<0.05和|log2(差异倍数)|[|log2(FC)|]>0.585为标准筛选2组样本的差异代谢物,由图2可知,补饲组与对照组之间有857个差异代谢物,其中有599个是上调差异代谢物,258个是下调差异代谢物。
图2 正、负离子模式下的代谢物火山图

图中每个点对应1个代谢物,红色圆点表示补饲组内相较于对照组上调的差异代谢物,蓝色圆点则表示下调的差异代谢物,灰色圆点表示2组间无显著差异的代谢物。

Fig.2 Volcano plots of metabolites under positive and negative ion modes

Each dot in the plot represented a metabolite. Red dots indicated significantly upregulated differential metabolites in the supplemented feeding group compared with the control group, while blue dots indicated significantly downregulated differential metabolites, and gray dots represent metabolites with no significant difference between the two groups.

2.5.3 KEGG代谢通路分析

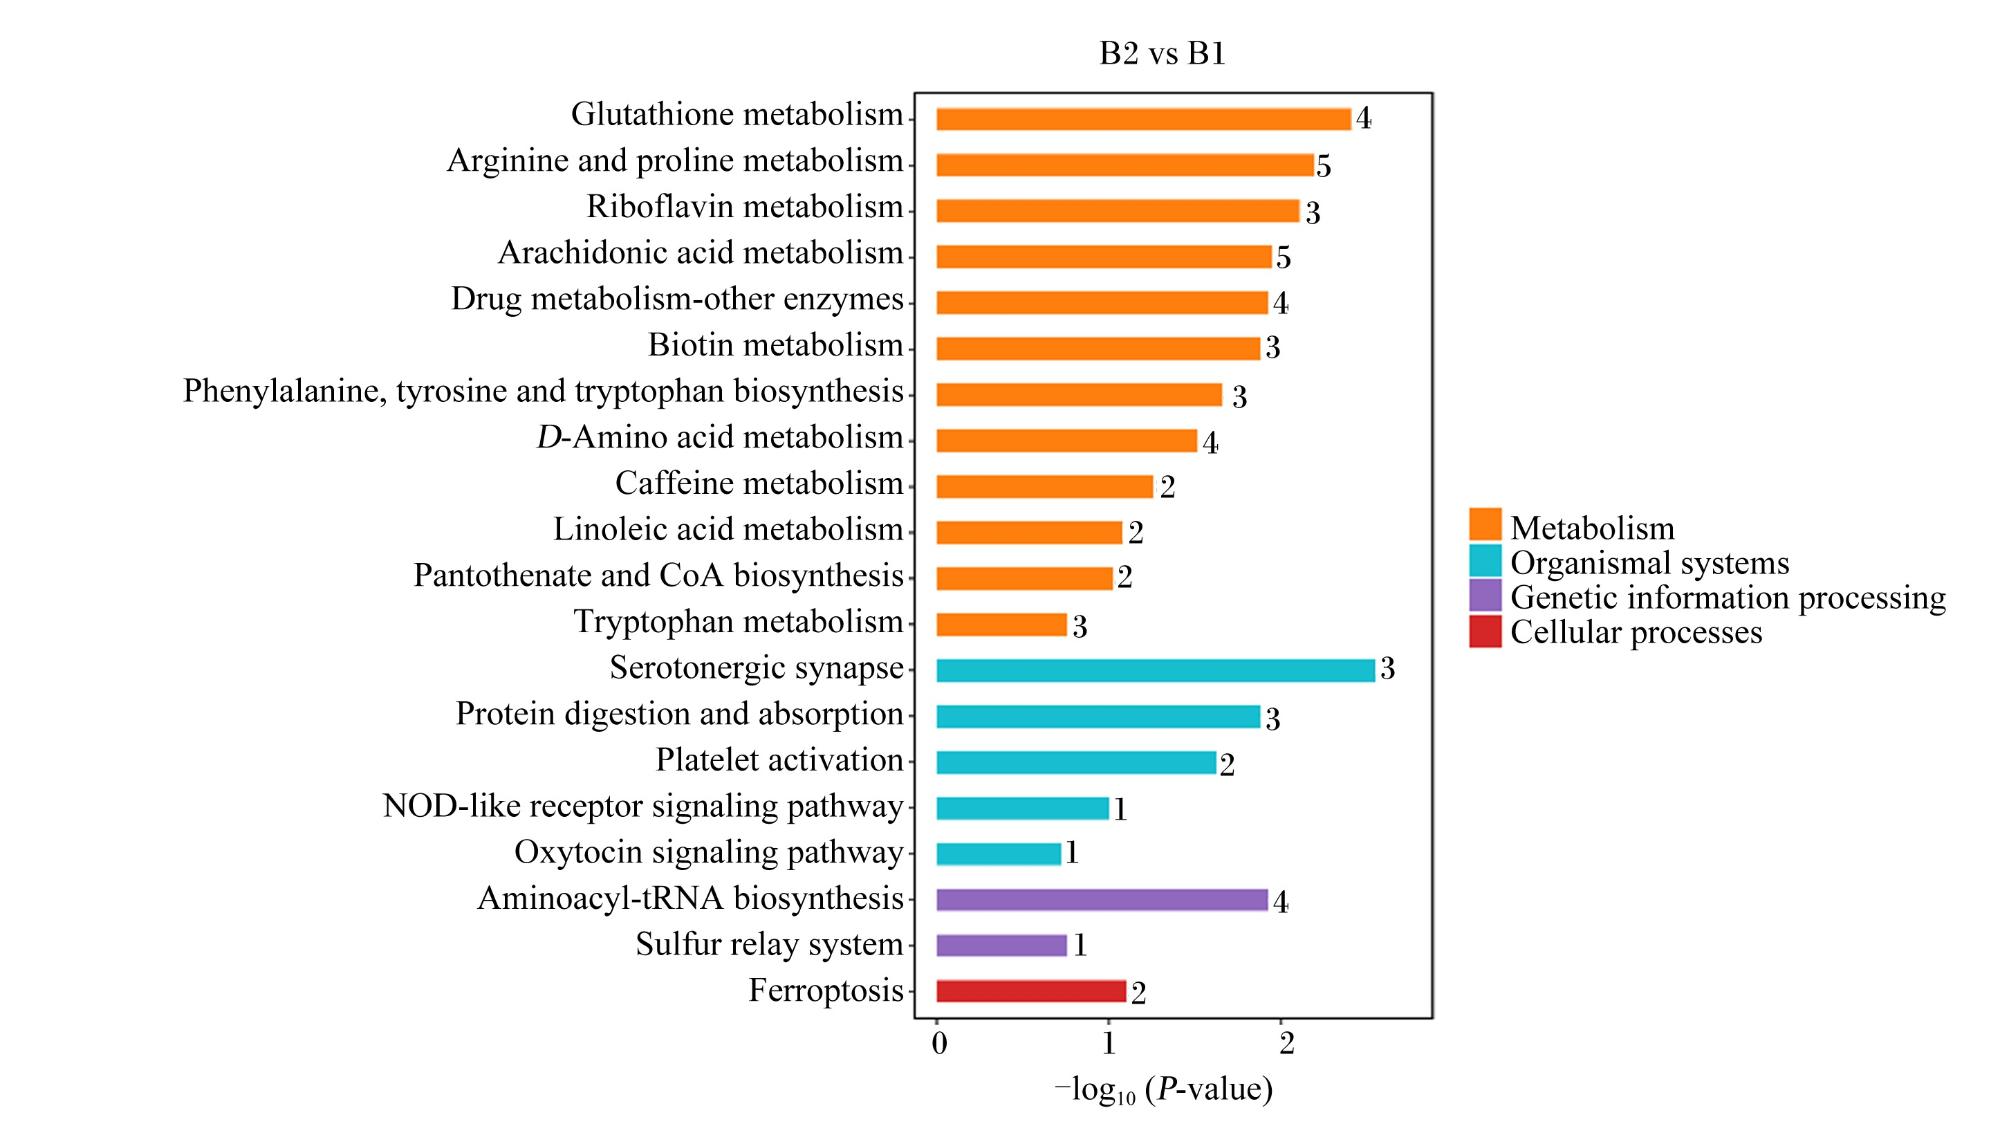
对差异代谢物进行KEGG通路富集分析,如图3所示,富集到的差异代谢物参与的主要通路为代谢(metabolism)、有机体系统(organismal systems)、遗传信息处理(genetic information processing)和细胞过程(cellular processes)。
图3 KEGG通路富集分析柱状图(前20)

Metabolism:代谢;Organismal systems:有机体系统;Genetic information processing:遗传信息处理;Cellular processes:细胞过程;Glutathione metabolism:谷胱甘肽代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Riboflavin metabolism:核黄素代谢;Arachidonic acid metabolism:花生四烯酸代谢;Drug metabolism-other enzymes:药物代谢-其他酶;Biotin metabolism:生物素代谢;Phenylalanine, tyrosine and tryptophan biosynthesis:苯丙氨酸、酪氨酸和色氨酸生物合成;D-Amino acid metabolism:D-氨基酸代谢;Caffeine metabolism:咖啡因代谢;Linoleic acid metabolism:亚油酸代谢;Pantothenate and CoA biosynthesis:泛酸和辅酶A生物合成;Tryptophan metabolism:色氨酸代谢;Serotonergic synapse:血清素能突触通路;Protein digestion and absorption:蛋白质消化与吸收;Platelet activation:血小板激活通路;NOD-like receptor signaling pathway:NOD样受体信号通路;Oxytocin signaling pathway:催产素信号通路;Aminoacyl-tRNA biosynthesis:氨酰-tRNA合成;Sulfur relay system:硫传递系统;Ferroptosis:铁死亡;-log10(P-value):-log10(P值)。

Fig.3 Bar plot of KEGG pathway enrichment analysis (top 20)

表10为KEGG富集的主要通路及对应的差异代谢物,从表中可以看出,对照组与补饲组的差异代谢物主要富集在精氨酸和脯氨酸代谢、核黄素代谢和蛋白质消化与吸收等。
表10 KEGG富集的主要通路及对应差异代谢物

Table 10 Major KEGG enriched pathways and corresponding differential metabolites

代谢通路
Metabolic pathways
P
P-value
对应的差异代谢物
Corresponding differential metabolites
精氨酸和脯氨酸代谢
Arginine and proline metabolism
0.006 S-腺苷甲硫氨酸↓、L-脯氨酸↓、精胺↓、
磷酸胍基乙酸↓、N-阿魏酰基-1,4-丁二胺↓
核黄素代谢
Riboflavin metabolism
0.008 核黄素5″-单磷酸↓、核糖醇↓、光色素↓
蛋白质消化与吸收
Protein digestion and absorption
0.013 L-赖氨酸↓、L-苯丙氨酸↓、L-脯氨酸↓
氨酰-tRNA生物合成
Aminoacyl-tRNA biosynthesis
0.011 L-赖氨酸↓、L-色氨酸↓、L-苯丙氨酸↓
苯丙氨酸、酪氨酸和色氨酸的生物合成
Phenylalanine, tyrosine and tryptophan biosynthesis
0.022 L-色氨酸↓、L-苯丙氨酸↓、莽草酸-3-磷酸酯↓

↓代表下调。

↓ represented down-regulation.

3 讨论

3.1 哺乳期补饲精料补充料对放牧牦牛犊牛生长性能和血液指标的影响

鉴于哺乳期的牦牛犊牛的瘤胃等消化器官发育和功能尚不完善,对粗纤维饲粮的消化能力有限,在哺乳期适时补饲精料补充料可有效促进牦牛犊牛的生长发育。例如,孙大明等[20]的研究表明,给12日龄的羔羊补饲精料补充料可显著提高羔羊的日增重。杨彬彬等[21]的研究也证实,补饲精料补充料可以促进羔羊胃肠道的发育,具体表现为增大瘤胃乳头宽度、降低瘤胃乳头密度等。本试验结果显示,补饲精料补充料可改善牦牛犊牛的生长性能,表明在自然放牧条件下,对哺乳期牦牛犊牛补饲精料补充料能够有效改善其营养摄取状况,进而提高牦牛犊牛的生长性能和发育质量。其潜在机制可能是补饲的精料补充料能够平衡饲粮营养,提高饲料转化效率,从而激发牦牛犊牛的生长潜力,最终表现为体重的增加。血清生化指标可间接反映动物机体的健康状况、内环境稳态及营养代谢水平。血清中ALT和AST活性主要反映肝细胞的受损程度[22],ALP活性则与骨骼及肝胆系统的功能状态相关[23]。在本试验中,补饲与不补饲精料补充料的牦牛犊牛在血清ALT和AST活性上差异未达统计学显著水平,其潜在原因可能在于精料补充料的主要作用机制是侧重于改善动物的能量、蛋白质及其他必需营养物质的摄入,未对肝脏造成代谢的负担或损伤。血清中BUN含量是反映机体蛋白质代谢水平的重要参数[24]。补饲精料补充料的牦牛犊牛血清中BUN含量的显著升高提示精料补充料摄入量的增加可能导致了牦牛犊牛体内蛋白质分解代谢的增强[25]。TG和TC含量是反映血脂代谢状况的关键指标,二者在血清中的含量通常与脂肪肝的严重程度呈正相关[26]。本研究结果显示,补饲与不补饲精料补充料的牦牛犊牛血清中TG和TC含量差异不显著,提示在放牧条件下补饲精料补充料未诱发显著的脂肪堆积,进而表明肝脏脂质代谢未发生紊乱[27]。此外,补饲组牦牛犊牛血清中INS和IGF-Ⅰ含量显著或极显著升高,表明补饲精料补充料促进了能量代谢和蛋白质合成,为组织生长提供了物质基础;与此同时,补饲组牦牛犊牛血清中IgA和IL-2含量显著或极显著增加,提示补饲精料补充料有助于增强体液和细胞免疫功能,在改善早期免疫状态的基础下提高对病原微生物的抵御能力。

3.2 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃发酵参数和消化酶活性的影响

本试验结果显示,补饲组与对照组牦牛犊牛的瘤胃pH无显著差异并均处于健康范围,表明补饲精料补充料不会影响哺乳期牦牛犊牛的瘤胃pH;补饲组牦牛犊牛瘤胃内NH3-N浓度极显著提升,表明在放牧条件下补饲精料补充料能够有效促进牦牛犊牛瘤胃微生物的生长,为其补充必需氨基酸,促进其生长发育。VFA是反刍家畜吸收能量的主要形式,其中丙酸是糖异生作用最关键的前体物质,丙酸则可在肝脏经糖异生途径转化为葡萄糖,成为反刍家畜的主要能量来源。当瘤胃内非结构性碳水化合物(如淀粉、单糖等)的含量增加时,瘤胃发酵速率会加快,丙酸的产量也随之提升[28]。研究表明,补饲精料补充料或提高饲粮精粗比均可导致瘤胃内丙酸浓度升高,进而提高反刍家畜血糖浓度和代谢水平[29]。在本试验中,补饲组牦牛犊牛瘤胃内VFA丙酸浓度显著升高,表明补饲精料补充料能够有效促进瘤胃丙酸发酵,这与朱昊鹏等[30]的研究结果相符。其可能机制为,丙酸经瘤胃壁吸收进入血液后,在肝脏中进行糖异生作用,转化为可以直接利用的血糖,可为牦牛犊牛的生长提供能量。
蛋白酶作为瘤胃内的关键酶类之一,在蛋白质分解与代谢中发挥核心功能。该酶主要由瘤胃细菌(如芽孢杆菌属细菌)分泌[31],能够水解蛋白质为小肽和氨基酸,为反刍家畜提供可吸收的氮源,并间接提供能量。研究表明,高蛋白质饲粮可显著提升瘤胃内蛋白酶活性,进而促进蛋白质的消化[32]。本试验结果表明,补充精料补充料极显著提升了牦牛犊牛瘤胃内蛋白酶活性,这暗示精料补充料的补饲可能促进了瘤胃内蛋白酶分泌菌的活性,进而加速了氮源的合成,该发现与瘤胃发酵过程中NH3-N浓度的升高趋势相对应。

3.3 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃微生物区系的影响

饲粮的组成是调控反刍家畜瘤胃微生物群落结构与功能的核心因素,其中精料水平的改变会影响瘤胃微生物的组成与数量特征[33-34]。研究证实,拟杆菌门和厚壁菌门是构成反刍家畜瘤胃菌群的优势类群。拟杆菌门所属细菌是瘤胃内降解非纤维性碳水化合物的主要功能群,而厚壁菌门主要是参与纤维性物质的分解代谢[35];二者通过协同作用,在瘤胃发酵过程中发挥着关键的作用[36]。本试验结果显示,拟杆菌门在牦牛犊牛瘤胃中占据着优势的地位,这与已知的反刍家畜瘤胃菌群特征一致;补饲精料补充料的牦牛犊牛瘤胃中厚壁菌门的相对丰度呈现显著升高。此现象的潜在机制可能为,精料补充料通常富含淀粉及可溶性非纤维性碳水化合物,这些营养物质在瘤胃内被吸收之后迅速发酵,从而显著提升VFA的整体产量,促进了丙酸和丁酸的生成[37]。以丙酸生成菌[如产琥珀酸丝状杆菌(Succinatimonas amylolytica)]为例,其通过丙酸途径消耗更多的氢气,在抑制甲烷生成的同时,为宿主提供了高效的能量来源,这种代谢优势最终驱动了厚壁菌门在补饲组瘤胃菌群中的相对丰度上升。已有研究证实,投喂高能量精料可显著增加肉牛瘤胃内丙酸浓度,并伴随厚壁菌门相对丰度的提升[38]
在属水平上,本研究结果显示多数菌属在2组间的相对丰度差异不显著,但值得注意的是,鼠杆菌科在补饲精料补充料牦牛犊牛中呈现出相对丰度显著高于不补饲牦牛犊牛的现象。从分类学角度来看,鼠杆菌科隶属于拟杆菌门下的拟杆菌纲拟杆菌目[39-40],该科最初在小鼠肠道中被鉴定,随后被证实广泛存在于哺乳动物的肠道及反刍动物的瘤胃生态系统中[41-42];在瘤胃微生物群落的结构中,鼠杆菌科与普雷沃氏菌科并列为拟杆菌门内的两大主要类群,然而两者在功能上存在显著分化[43]。相关的研究表明,部分鼠杆菌科细菌与宿主健康的改善以及代谢稳态的维持紧密相关。这可能与其高效的代谢能力相关,鼠杆菌科细菌能够有效地利用内源性(如黏膜糖苷)和外源性多糖(如膳食纤维)作为能量的来源[44]。考虑到本试验中补饲的精料补充料通常富含高比例的谷物成分,如玉米和豆粕等,以及淀粉类的碳水化合物,这些易于快速发酵的底物无疑为鼠杆菌科的生长提供了直接且充足的能量来源。研究表明,补充铁皮石斛多糖能够显著提升鼠杆菌科的相对丰度[45],进一步印证了其代谢活动与多糖类底物的高度关联。需要注意的是,鼠杆菌科在代谢的过程中产生的短链脂肪酸被认为能够有效增强瘤胃上皮屏障的功能[46],并对病原菌[如棒状杆菌属(Corynebacterium)]的增殖起到抑制作用[47],从而在瘤胃微环境中构建一种有利于自身定植的优势环境。因此,在牦牛哺乳期补饲精料补充料的试验背景下,鼠杆菌科在补饲组中的显著富集现象可能暗示,补饲的精料补充料不仅为牦牛犊牛提供了必要的能量和营养物质,还可能对瘤胃的健康水平以及代谢功能的稳态调节产生了潜在的积极影响。

3.4 哺乳期补饲精料补充料对放牧牦牛犊牛瘤胃代谢功能的影响

本研究通过KEGG通路富集分析探究了哺乳期牦牛犊牛在补饲精料补充料的条件下,瘤胃代谢功能的变化特征,结果显示,相较于补饲精料补充料的补饲组,对照组牦牛犊牛瘤胃内中的多个关键营养代谢通路呈现出活性降低的趋势。这些受到抑制的代谢通路主要集中于精氨酸和脯氨酸代谢、核黄素代谢以及蛋白质消化与吸收通路,表明在放牧条件下,哺乳期牦牛犊牛若缺乏精料补充料,可能会对其瘤胃营养代谢功能产生消极影响。
精氨酸和脯氨酸代谢通路在对照组出现下调,提示不补饲精料补充料可能会导致牦牛犊牛瘤胃内源性及外源性精氨酸与脯氨酸生物转化速率的降低。在对照组中,作为该通路关键节点的差异代谢物,如L-脯氨酸、精胺、磷酸胍基乙酸、N-阿魏酰基-1,4-丁二胺以及S-腺苷甲硫氨酸等呈现下调的特征,可能反映出不补饲精料补充料对牦牛犊牛瘤胃组织及微生物菌体蛋白合成效能的降低,以及细胞生长、增殖与分化等重要生理代谢活动的减弱[48-50]。S-腺苷甲硫氨酸的相对匮乏,暗示瘤胃的整体合成代谢水平可能会降低,这或许与不补饲精料补充料所造成的能量及营养物质供给不足有关[51-52]。核黄素代谢通路在对照组的下调提示,哺乳期不补饲精料补充料可能导致瘤胃核黄素的代谢途径受阻。核黄素5'-单磷酸、核糖醇以及光色素在内的核黄素代谢关键中间体的浓度下降,预示着瘤胃整体能量代谢的潜能可能会受到限制[53]。鉴于核黄素作为能量代谢中不可或缺的辅酶组分,其代谢活性的降低可能会导致瘤胃内的碳水化合物、脂质及蛋白质等三大营养物质的代谢效率降低[54-55],进而导致瘤胃的产能水平下降,这与补饲组能量摄入充足的情况形成对比。
对照组瘤胃中的蛋白质消化与吸收通路中的代谢物下调,证实了不补饲精料补充料对瘤胃蛋白质营养利用效率可能存在负面效应。对照组瘤胃代谢物中,包括L-赖氨酸、L-苯丙氨酸以及L-脯氨酸的浓度显著降低,表明对照组瘤胃内源及外源性蛋白质降解速率可能减缓,氨基酸释放与吸收过程可能受阻,最终可能导致瘤胃蛋白质消化与吸收效率降低[56]。此种状况可能会影响牦牛犊牛机体蛋白质的有效供给,制约牦牛犊牛生长发育过程中对氨基酸类营养物质的需求。
对照组瘤胃中的氨酰-tRNA生物合成通路及苯丙氨酸、酪氨酸和色氨酸生物合成通路中代谢物的下调,从瘤胃代谢物的层面证明了不补饲精料补充料可能系统性地抑制了瘤胃氨基酸代谢及蛋白质合成相关的多个关键代谢支路[57]L-赖氨酸、L-色氨酸和L-苯丙氨酸等重要氨基酸的相对匮乏,以及莽草酸-3-磷酸酯浓度的降低,提示对照组瘤胃微生物及牦牛犊牛自身蛋白质合成能力可能受到消极的影响,包括芳香族氨基酸在内的多种重要生物活性分子的合成亦可能受到影响[58]。因此,从维持瘤胃高效营养代谢功能的角度出发,在哺乳期对牦牛犊牛实施必要的精料补充饲养策略具有科学依据与实践意义,这将有助于维系并提升瘤胃的营养代谢效率,为牦牛犊牛健康快速生长提供营养保障。

4 结论

综上得出,针对放牧饲养的哺乳期牦牛犊牛,补饲精料补充料能提升其生长性能,这主要通过增加血液中免疫因子含量,并积极调控瘤胃发酵、微生物群落组成及代谢功能来实现,最终促进牦牛犊牛的生长发育。
[1]
孟庆辉, 陈永杏, 董红敏, 等. 牦牛分布特点及其种群数量[J]. 家畜生态学报, 2017, 38(3):80-85.

MENG Q H, CHEN Y X, DONG H M, et al. The distribution characteristics and populations of yak[J]. Acta Ecologiae Animalis Domastici, 2017, 38(3):80-85. (in Chinese)

[2]
和占星, 黄梅芬, 雷波, 等. 中国牦牛的生态行为研究进展[J]. 家畜生态学报, 2019, 40(4):1-9.

HE Z X, HUANG M F, LEI B, et al. Research progress on ecological behavior of Chinese yaks[J]. Acta Ecologiae Animalis Domastici, 2019, 40(4):1-9. (in Chinese)

[3]
张博, 潘浩, 刘书杰, 等. 饲喂水平对泌乳期牦牛生产性能、瘤胃发酵和血清生化指标的影响[J]. 饲料研究, 2021, 44(15):11-15.

ZHANG B, PAN H, LIU S J, et al. Effect of feeding level on production performance,rumen fermentation and serum biochemical indicators of yak during lactation[J]. Feed Research, 2021, 44(15):11-15. (in Chinese)

[4]
崔占鸿. 牦牛犊牛培育方式对生长和消化道发育的影响[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2020.

CUI Z H. Effects of rearing patterns on growth and digestive tract development in yak calves[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[5]
石红梅, 杨勤, 马登录, 等. 甘南牦牛繁殖性能调查及提高繁殖性能的技术措施[J]. 中国牛业科学, 2013, 39(1):80-83.

SHI H M, YANG Q, MA D L, et al. Investigations of reproductive performance and technical measures to improve reproductive performance for Gannan yak[J]. China Cattle Science, 2013, 39(1):80-83. (in Chinese)

[6]
张潭瑛, 杨勤, 马桂琳, 等. 甘南牦牛种质资源保护及开发利用[J]. 畜牧兽医杂志, 2016, 35(4):78-79,81.

ZHANG T Y, YANG Q, MA G L, et al. Conservation and utilization of Gannan yak germplasm resources[J]. Journal of Animal Science and Veterinary Medicine, 2016, 35(4):78-79,81. (in Chinese)

[7]
郑群英, 肖冰雪, 吴伟生, 等. 传统放牧下牦牛冷季补饲体重变化[J]. 草业与畜牧, 2016(6):47-48,52.

ZHENG Q Y, XIAO B X, WU W S, et al. The weight change of yak in cold season of supplementary feeding for yak under traditional grazing model[J]. Pruataculture & Animal Husbandry, 2016(6):47-48,52. (in Chinese)

[8]
郭文杰. 哺乳期补饲精料对牦牛犊牛肠道发育和微生物区系的影响[D]. 硕士学位论文. 西宁: 青海大学, 2022.

GUO W J. Effect of concentrate supplementation on intestinal development and microbiota of yak calves in suckling stage[D]. Master’s Thesis. Xining: Qinghai University, 2022. (in Chinese)

[9]
焦洋. 饲粮组成及营养水平对哺乳期牦牛犊牛胰腺发育的影响[D]. 硕士学位论文. 西宁: 青海大学, 2023.

JIAO Y. Effect of diet composition and nutrient level on pancreatic development of preweaning yak calves[D]. Master’s Thesis. Xining: Qinghai University, 2023. (in Chinese)

[10]
郝文君, 崔占鸿, 刘书杰. 补饲开食料对哺乳期牦牛犊牛生长性能和血清指标的影响[J]. 饲料研究, 2021, 44(16):1-5.

HAO W J, CUI Z H, LIU S J. Effect of supplying starter feed on growth performance and serum index of lactation yak calves[J]. Feed Research, 2021, 44(16):1-5. (in Chinese)

[11]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, National Standardization Administration.Determination of crude protein in feed—Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[12]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中粗脂肪的测定:GB/T 6433—2025[S]. 北京: 中国标准出版社, 2025.

State Administration for Market Regulation, National Standardization Administration.Determination of crude fat in feeds:GB/T 6433—2025[S]. Beijing: Standards Press of China, 2025. (in Chinese)

[13]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中中性洗涤纤维(NDF)的测定:GB/T 20806—2022[S]. 北京: 中国标准出版社, 2022.

State Administration for Market Regulation, National Standardization Administration.Determination of neutral detergent fiber (NDF) in feeds:GB/T 20806—2022[S]. Beijing: Standards Press of China, 2022. (in Chinese)

[14]
中华人民共和国农业农村部.饲料中酸性洗涤纤维的测定:NY/T 1459—2022[S]. 北京: 中国农业出版社, 2022.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China.Determination of acid detergent fiber (NDF) in feeds:NY/T 1459—2022[S]. Beijing: China Agricultural Press, 2022. (in Chinese)

[15]
国家市场监督管理总局, 国家标准化管理委员会.饲料中粗灰分的测定:GB/T 6438—2025[S]. 北京: 中国标准出版社, 2025.

State Administration for Market Regulation, Standardization Administration of China.Determination of crude ash in feeds:GB/T 6438—2025[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[16]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, National Standardization Administration.Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[17]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, National Standardization Administration.Determination of phosphorus in feeds-spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[18]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

DOI

[19]
TIAN K, LIU J H, SUN Y W, et al. Effects of dietary supplementation of inulin on rumen fermentation and bacterial microbiota,inflammatory response and growth performance in finishing beef steers fed high or low-concentrate diet[J]. Animal Feed Science and Technology, 2019,258:114299.

[20]
孙大明, 殷雨洋, 吴建良, 等. 早期补饲粉状精料和颗粒料对羔羊生长性能及胃肠道发育的影响[J]. 草业学报, 2020, 29(7):184-192.

DOI

SUN D M, YIN Y Y, WU J L, et al. Effect of early mashed and pelleted concentrate starter supplementation on animal performance and development of the gastrointestinal tract in lambs[J]. Acta Prataculturae Sinica, 2020, 29(7):184-192. (in Chinese)

[21]
杨彬彬, 郭春华, 王之盛, 等. 精料补饲水平对早期断奶羔羊复胃发育的影响[J]. 动物营养学报, 2010, 22(6):1757-1761.

YANG B B, GUO C H, WANG Z S, et al. Effects of supplemental level of concentrate on complex stomach development of early-weaned lambs[J]. Chinese Journal of Animal Nutrition, 2010, 22(6):1757-1761. (in Chinese)

[22]
王天成, 汪冰, 丰伟悦, 等. 纳米锌对小鼠血清生化指标的影响[J]. 中国公共卫生, 2006, 22(8):934-935.

WANG T C, WANG B, FENG W Y, et al. Effect of nano-zinc powder on mice serum biochemical indexes[J]. Chinese Journal of Public Health, 2006, 22(8):934-935. (in Chinese)

[23]
BOVER J, UREÑA P, AGUILAR A, et al. Alkaline phosphatases in the complex chronic kidney disease-mineral and bone disorders[J]. Calcified Tissue International, 2018, 103(2):111-124.

DOI PMID

[24]
朱琪, 张歌, 张泽宇, 等. 不同消化速率的淀粉和蛋白质组合对断奶仔猪生长性能和血清尿素氮含量的影响[J]. 动物营养学报, 2025, 37(2):893-905.

DOI

ZHU Q, ZHANG G, ZHANG Z Y, et al. Effects of combinations of starch and protein with different digestibility on growth performance and serum urea nitrogen contents of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):893-905. (in Chinese)

DOI

[25]
陈胜昌, 夏先林, PEANGKOUN P. 日粮蛋白浓度对肉牛瘤胃代谢与血液尿素氮的影响[J]. 贵州农业科学, 2011, 39(8):120-124.

CHEN S C, XIA X L, PEANGKOUN P. Effects of dietary protein level on ruminal metabolism and blood urea nitrogen in beef[J]. Guizhou Agricultural Sciences, 2011, 39(8):120-124. (in Chinese)

[26]
张建. 脂肪肝与血脂肝功能指标变化的关系分析[J]. 内蒙古医学杂志, 2014, 46(3):288-290.

ZHANG J. Analysis of the relationship between fatty liver and blood-fat,liver function indicators change[J]. Inner Mongolia Medical Journal, 2014, 46(3):288-290. (in Chinese)

[27]
DU T T, SUN X X, YU X F. Non-HDL cholesterol and LDL cholesterol in the dyslipidemic classification in patients with nonalcoholic fatty liver disease[J]. Lipids in Health and Disease, 2017, 16(1):229.

DOI PMID

[28]
ROSMALIA A, PERMANA I G, DESPAL D. Synchronization of rumen degradable protein with non-fiber carbohydrate on microbial protein synthesis and dairy ration digestibility[J]. Veterinary World, 2022, 15(2):252-261.

DOI PMID

[29]
NOCEK J E, TAMMINGA S. Site of digestion of starch in the gastrointestinal tract of dairy cows and its effect on milk yield and composition[J]. Journal of Dairy Science, 1991, 74(10):3598-3629.

PMID

[30]
朱昊鹏, 郑月, 颜培实. 精料补饲水平对锦江黄牛生长性能和瘤胃液理化指标的影响[J]. 畜牧与兽医, 2017, 49(3):24-29.

ZHU H P, ZHENG Y, YAN P S. Effects of different concentrate supplemental levels on production performance,rumen fluid physicochemical index of Jinjiang cattle[J]. Animal Husbandry & Veterinary Medicine, 2017, 49(3):24-29. (in Chinese)

[31]
GHEIBIPOUR M, GHIASI S E, BASHTANI M, et al. Screening the rumen of Balochi camel (Camelus dromedarius) and cashmere goat (Capra hircus) to isolate enzyme-producing bacteria as potential additives for animal feed[J]. Indian Journal of Microbiology, 2024, 64(2):572-582.

DOI

[32]
WU Z L, ZHANG F S, SU Q Y G M, et al. Integrating 16S rRNA sequencing and LC-MS-based metabolomics to evaluate the effects of dietary crude protein on ruminal morphology,fermentation parameter and digestive enzyme activity in Tibetan sheep[J]. Animals, 2024, 14(15):2149.

DOI

[33]
ABDELSATTAR M M, ZHAO W, SALEEM A M, et al. Physical,metabolic,and microbial rumen development in goat kids:a review on the challenges and strategies of early weaning[J]. Animals, 2023, 13(15):2420.

DOI

[34]
荣辉, 余成群, 孙维, 等. 瘤胃微生物对结构性碳水化合物的降解机制研究进展[J]. 草业科学, 2010, 27(9):134-143.

RONG H, YU C Q, SUN W, et al. Progress review on degradation mechanism of structural carbohydrate by rumen microbes[J]. Pratacultural Science, 2010, 27(9):134-143. (in Chinese)

[35]
TAPIO I, SNELLING T J, STROZZI F, et al. The ruminal microbiome associated with methane emissions from ruminant livestock[J]. Journal of Animal Science and Biotechnology, 2017, 8(1):7.

DOI

[36]
杨宏波, 刘红, 占今舜, 等. 不同精粗比颗粒饲料对断奶公犊牛瘤胃发酵参数和微生物的影响[J]. 草业学报, 2015, 24(12):131-138.

DOI

YANG H B, LIU H, ZHAN J S, et al. Effects of diet pellets with different concentrate-roughage ratios on rumen fermentation parameters and microorganism abundance in weaned bull calves[J]. Acta Prataculturae Sinica, 2015, 24(12):131-138. (in Chinese)

[37]
SOMMAI S, CHERDTHONG A, SUNTARA C, et al. In vitro fermentation characteristics and methane mitigation responded to flavonoid extract levels from Alternanthera sissoo and dietary ratios[J]. Fermentation, 2021, 7(3):109.

DOI

[38]
张海波, 王之盛. 精料补充料能量水平对肉牛瘤胃发酵特性及微生物菌群的影响[J]. 中国畜牧杂志, 2017, 53(9):97-101.

ZHANG H B, WANG Z S. Rumen fermentation and rumen microbes in beef cattle receiving diets with different dietary energy level of concentrate supplement[J]. Chinese Journal of Animal Science, 2017, 53(9):97-101. (in Chinese)

[39]
BHATTACHARYA T, GHOSH T S, MANDE S S. Global profiling of carbohydrate active enzymes in human gut microbiome[J]. PLoS One, 2015, 10(11):e0142038.

DOI

[40]
VERBRUGGHE P, BRYNJÓLFSSON J, JING X J, et al. Evaluation of hypoglycemic effect,safety and immunomodulation of Prevotella copri in mice[J]. Scientific Reports, 2021, 11(1):21279.

DOI

[41]
龙淼, 邢欣, 逢晓阳, 等. 犊牛瘤胃内黏膜乳杆菌的分离鉴定及生物学特性研究[J]. 畜牧与兽医, 2009, 41(3):70-72.

LONG M, XING X, FENG X Y, et al. Isolation,identification and biological characteristics of Lactobacillus mucosae from calf rumen[J]. Animal Husbandry & Veterinary Medicine, 2009, 41(3):70-72. (in Chinese)

[42]
DERRIEN M, VAUGHAN E E, PLUGGE C M, et al. Akkermansia muciniphila gen. nov., sp. nov.,a human intestinal mucin-degrading bacterium[J]. International Journal of Systematic and Evolutionary Microbiology, 2004, 54(Pt 5):1469-1476.

DOI

[43]
FUKUI H. Leaky gut and gut-liver axis in liver cirrhosis:clinical studies update[J]. Gut and Liver, 2021, 15(5):666-676.

DOI

[44]
JACKSON D N, THEISS A L. Gut bacteria signaling to mitochondria in intestinal inflammation and cancer[J]. Gut Microbes, 2020, 11(3):285-304.

DOI PMID

[45]
谢果珍, 唐圆, 宁晓妹, 等. 铁皮石斛多糖对正常小鼠肠道菌群的影响[J]. 湖南农业大学学报(自然科学版), 2021, 47(4):449-454.

XIE G Z, TANG Y, NING X M, et al. Effects of Dendrobium officinale polysaccharides on gut microbiota of mice[J]. Journal of Hunan Agricultural University(Natural Sciences), 2021, 47(4):449-454. (in Chinese)

[46]
MEISSNER S, HAGEN F, DEINER C, et al. Key role of short-chain fatty acids in epithelial barrier failure during ruminal acidosis[J]. Journal of Dairy Science, 2017, 100(8):6662-6675.

DOI PMID

[47]
谢骁. 低质粗饲料日粮干预对湖羊瘤胃发酵和微生物菌群的影响[D]. 博士学位论文. 杭州: 浙江大学, 2018.

XIE X. Effects of dietary intervention on rumen fermentation and microbiota in sheep fed low quality forage[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2018. (in Chinese)

[48]
NAKATANI S, HORIMOTO Y, NAKABAYASHI N, et al. Spermine suppresses adipocyte differentiation and exerts anti-obesity effects in vitro and in vivo[J]. International Journal of Molecular Sciences, 2022, 23(19):11818.

DOI

[49]
刘若祎, 谢洁, 乔晓婷, 等. 生物标志物胍基乙酸与肌酸的研究进展[J]. 计量学报, 2023, 44(10):1631-1638.

LIU R Y, XIE J, QIAO X T, et al. Research progress on the detection methods of guanidinoacetic acid and creatine in biological samples[J]. Acta Metrologica Sinica, 2023, 44(10):1631-1638. (in Chinese)

[50]
SHUVALOV O, PETUKHOV A, DAKS A, et al. One-carbon metabolism and nucleotide biosynthesis as attractive targets for anticancer therapy[J]. Oncotarget, 2017, 8(14):23955-23977.

DOI PMID

[51]
MCFADDEN J W, GIRARD C L, TAO S, et al. Symposium review:one-carbon metabolism and methyl donor nutrition in the dairy cow[J]. Journal of Dairy Science, 2020, 103(6):5668-5683.

DOI

[52]
张显东. 补饲淀粉对反刍动物饲料组合效应的影响及其机理研究[D]. 博士学位论文. 杭州: 浙江大学, 2008.

ZHANG X D. Influence of supplementary starch on associative effects in ruminants and approach to the mechanisms[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2008. (in Chinese)

[53]
王成发, 陈春明. 核黄素与蛋白质代谢的关系——Ⅰ.核黄素缺乏对于肝、肌肉和血浆中蛋白质再生作用的影响[J]. 营养学报, 1958, 3(2):61-69.

WANG C F, CHEN C M. Studies on the interrelationship of riboflavin and protein metabolism-Ⅰ.Effect of riboflavin deficiency on protein regeneration in liver,muscle and plasma[J]. Acta Nutrimenta Sinica, 1958, 3(2):61-69. (in Chinese)

[54]
HART E H, CREEVEY C J, HITCH T, et al. Meta-proteomics of rumen microbiota indicates niche compartmentalisation and functional dominance in a limited number of metabolic pathways between abundant bacteria[J]. Scientific Reports, 2018, 8(1):10504.

DOI PMID

[55]
O’CALLAGHAN B, BOSCH A M, HOULDEN H. An update on the genetics,clinical presentation,and pathomechanisms of human riboflavin transporter deficiency[J]. Journal of Inherited Metabolic Disease, 2019, 42(4):598-607.

DOI

[56]
杨顺楷. L-苯丙氨酸酶法生产新工艺[J]. 精细与专用化学品, 2001, 9(2):18-19,17.

YANG S K. A novel enzymatic process for L-phenylalanine[J]. Fine and Specialty Chemicals, 2001, 9(2):18-19,17. (in Chinese)

[57]
ANTONIEWICZ A M, KOSMALA I. Predicting ruminal degradability of lucerne and grass forage protein from in vitro solubility with non-specific bacterial protease or pancreatin[J]. Journal of Animal and Feed Sciences, 1995, 4(4):341-350.

DOI

[58]
贾捷, 金由辛. 氨酰tRNA合成酶的分子网络和功能[J]. 生物化学与生物物理进展, 2004, 31(4):291-295.

JIA J, JIN Y X. Macromolecular network and new function of aminoacyl-tRNA synthetases[J]. Progress in Biochemistry and Biophysics, 2004, 31(4):291-295. (in Chinese)

文章导航

/