研究论文

葡萄籽原花青素对滩羊生长性能、肝脏抗氧化指标及代谢组的影响

  • 张宁 , 1, 2, 3 ,
  • 姜彦飞 4 ,
  • 郭引弟 2, 3, 5 ,
  • 徐倩 2, 3, 5 ,
  • 韩微 1, 2, 3 ,
  • 杨文治 2, 3, 5 ,
  • 辛国省 , 2, 3, 5, *
展开
  • 1 宁夏大学动物科技学院, 银川 750021
  • 2 宁夏大学饲料工程技术研究中心, 银川 750021
  • 3 宁夏大学西部特色生物资源保护与利用教育部重点实验室, 银川 750021
  • 4 银川市畜牧技术推广服务中心, 银川 750021
  • 5 宁夏大学生命科学学院, 银川 750021
* 辛国省,教授,博士生导师,E-mail:

张 宁(1996—),女,宁夏固原人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 靳爽

收稿日期: 2025-12-15

  网络出版日期: 2026-07-13

基金资助

宁夏重点研发计划项目(2023BCF01037)

校企联合开发项目(202204089007)

Effects of Grape Seed Proanthocyanidins on Growth Performance, Liver Antioxidant Indices and Metabolome of Tan Sheep

  • ZHANG Ning , 1, 2, 3 ,
  • JIANG Yanfei 4 ,
  • GUO Yindi 2, 3, 5 ,
  • XU Qian 2, 3, 5 ,
  • HAN Wei 1, 2, 3 ,
  • YANG Wenzhi 2, 3, 5 ,
  • XIN Guosheng , 2, 3, 5, *
Expand
  • 1 School of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Feed Engineering Technology Research Center, Ningxia University, Yinchuan 750021, China
  • 3 Key Lab of Ministry of Education for Protection and Utilization of Special Biological Resources in Western China, Ningxia University, Yinchuan 750021, China
  • 4 Yinchuan Livestock Technology Extension Service Center, Yinchuan 750021, China
  • 5 College of Life Sciences, Ningxia University, Yinchuan 750021, China
* professor, E-mail:

Received date: 2025-12-15

  Online published: 2026-07-13

摘要

本试验旨在探究葡萄籽原花青素对滩羊生长性能、肝脏抗氧化指标及代谢组的影响。选取体重[(25.22±2.26) kg]相近、健康的3月龄雄性滩羊40只,随机分为4组,每组10个重复,每个重复1只。对照组(NC组)饲喂基础饲粮,试验组分别在基础饲粮中添加0.3%(LD组)、0.6%(MD组)及1.2%(HD组)的葡萄籽原花青素。试验期70 d,其中预试期10 d,正试期60 d。结果表明:1)与NC组相比,LD组末重极显著降低(P<0.01),平均日增重(ADG)显著降低(P<0.05),料重比(F/G)极显著升高(P<0.01);MD组和HD组末重、ADG和F/G均无显著变化(P>0.05)。2)与NC组相比,各试验组粗蛋白质(CP)、中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)表观消化率均显著或极显著降低(P<0.05或P<0.01)。3)与NC组相比,LD组血清天门冬氨酸氨基转移酶(AST)活性显著升高(P<0.05),肝脏碱性磷酸酶(ALP)活性极显著降低(P<0.01);MD组肝脏丙氨酸氨基转移酶(ALT)活性极显著降低(P<0.01);HD组肝脏ALT和AST活性极显著降低(P<0.01)。4)HD组肝脏过氧化氢酶(CAT)活性极显著高于NC组和LD组(P<0.01)。5)与NC组相比,3个试验组的肝脏差异代谢物以甘油磷脂类为主。其中1,2-二十四烷酰基-sn-甘油-3-磷酸胆碱与甲萘醌为各组共有差异代谢物。KEGG通路富集结果显示,差异代谢物显著富集于α-亚麻酸代谢、花生四烯酸代谢及癌症中的胆碱代谢等通路。综上所述,饲粮中添加0.3%葡萄籽原花青素会降低舍饲育肥滩羊的生长性能,当添加剂量提升至0.6%、1.2%时,可提高滩羊肝脏抗氧化能力,改善肝脏功能;葡萄籽原花青素可能通过调控α-亚麻酸代谢、花生四烯酸代谢和胆碱代谢等通路及1,2-二十四烷酰基-sn-甘油-3-磷酸胆碱、甲萘醌等关键差异代谢物,调节肝脏抗氧化能力与肝脏功能。

本文引用格式

张宁 , 姜彦飞 , 郭引弟 , 徐倩 , 韩微 , 杨文治 , 辛国省 . 葡萄籽原花青素对滩羊生长性能、肝脏抗氧化指标及代谢组的影响[J]. 动物营养学报, 2026 , 38(7) : 5252 -5267 . DOI: 10.12418/CJAN2026.421

Abstract

This experiment was conducted to explore the effects of grape seed proanthocyanidins on growth performance,liver antioxidant indices and metabolome of Tan sheep. A total of 40 healthy 3-month-old male Tan sheep with similar body weight of (25.22±2.26) kg were randomly divided into four groups with 10 replicates per group and one sheep per replicate. Sheep in the control group (NC group) were fed a basal diet, and those in experimental groups were fed the basal diets supplemented with 0.3% (LD group), 0.6% (MD group) and 1.2% (HD group) grape seed proanthocyanidins, respectively. The trial lasted for 70 days including a 10-day preliminary trial period and a 60-day formal trial period. The results showed as follows: 1) compared with the NC group, the final body weight of the LD group was extremely significantly decreased (P<0.01), the average daily gain (ADG) was significantly decreased (P<0.05), and the feed/gain ratio (F/G) was extremely significantly increased (P<0.01); no significant changes were observed in final body weight, ADG or F/G in the MD and HD groups (P>0.05). 2) Compared with the NC group, the apparent digestibility of crude protein (CP), neutral detergent fiber (NDF) and acid detergent fiber (ADF) in all experimental groups were significantly or extremely significantly decreased (P<0.05 or P<0.01). 3) Compared with the NC group, the serum aspartate aminotransferase (AST) activity of the LD group was significantly increased (P<0.05), and the liver alkaline phosphatase (ALP) activity was extremely significantly decreased (P<0.01); the liver alanine aminotransferase (ALT) activity of the MD group was extremely significantly decreased (P<0.01); the liver ALT and AST activities of the HD group were extremely significantly decreased (P<0.01). 4) The liver catalase (CAT) activity of the HD group was extremely significantly higher than that of the NC and LD groups (P<0.01). 5) Compared with the NC group, the hepatic differential metabolites in the three experimental groups were mainly glycerophospholipids. Among them, 1,2-tetracosanoyl-sn-glycero-3-phosphocholine and menadione were common differential metabolites across all groups. KEGG pathway enrichment analysis showed that differential metabolites were significantly enriched in pathways such as alpha-linolenic acid metabolism, arachidonic acid metabolism, and choline metabolism in cancer. In conclusion, dietary supplementation with 0.3% grape seed proanthocyanidins reduces the growth performance of housed fattening Tan sheep. When the supplementation dosage is increased to 0.6% and 1.2%, it can enhance the liver antioxidant capacity and improve liver function in Tan sheep. Grape seed proanthocyanidins may regulate liver antioxidant capacity and liver function through pathways including alpha-linolenic acid metabolism, arachidonic acid metabolism, choline metabolism, and key differential metabolites such as 1,2-tetracosanoyl-sn-glycero-3-phosphocholine and menadione.

目前,由于草地生态恢复的紧迫需求,养殖业逐渐从传统放牧转向大规模集约饲养。然而,由于空间限制和饮食变化,集约化舍饲模式易使反刍动物发生氧化应激,导致活性氧等氧自由基大量生成,进而破坏机体氧化还原稳态,对动物健康及生长性能产生潜在负面影响[1]。因此,通过营养调控提升舍饲反刍动物的抗氧化水平、改善生产性能,具有重要的现实意义。外源补充抗氧化剂是提升畜禽机体抗氧化能力、防御体内氧化还原失衡最为直接有效的方式。相较于合成抗氧化剂可能存在的残留与安全性问题,植物源抗氧化剂具有天然、绿色、无残留等优势,是未来饲料添加剂研发的重要方向[2-3]。宁夏作为葡萄酒产业重要产区,拥有丰富的葡萄籽副产物。原花青素是葡萄籽的主要活性成分,是由黄烷-3-醇单体(如儿茶素、表儿茶素)通过不同聚合度缩合而成的一种天然植物多酚,具备较强的抗氧化活性,其抗氧化能力分别是维生素C和维生素E的20和50倍,在缓解动物氧化应激方面备受关注[4]
肝脏作为机体抗氧化防御系统的核心器官,也是原花青素B2结合与代谢的主要场所[5]。肝脏内存在多种抗氧化保护机制,其中最重要的抗氧化酶包括谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)。研究表明,饲粮中添加葡萄籽原花青素能够提升高精料育肥绵羊肝脏总抗氧化能力(T-AOC)和GSH-Px活性,减少肝脏丙二醛(MDA)含量,并可能通过调节肝脏脂质代谢、胆碱代谢及肝细胞自噬共同应答肝脏氧化应激[6]。尽管葡萄籽原花青素作为缩合单宁具有一定抗营养特性,但近年研究表明,在适宜添加量下其可有效提高动物的生长性能。Mu等[7]研究发现,饲粮中添加适量葡萄籽原花青素可显著提升育肥羔羊的干物质采食量和平均日增重(ADG);杨文军[8]研究发现,饲粮中添加适量葡萄籽原花青素可提升羔羊的胴体重,增大眼肌面积。代谢组学通过系统分析生物体内小分子代谢物的动态变化,能够直观描绘外界干预下机体的全局性代谢响应,为解析动物营养代谢途径与作用机制提供了独特视角。虽然代谢组学技术已被应用于探究葡萄籽原花青素的作用机制,但是现有研究大多停留在通路富集层面,而对驱动这些通路的关键核心代谢物的鉴定尚属空白。滩羊作为宁夏地区的特色畜种,其育肥期代谢旺盛,对营养与氧化平衡变化较为敏感,在集约化舍饲模式下更易受到氧化应激的影响。因此,推动其健康养殖与生长性能提升对区域经济发展具有重要意义。基于此,本试验以舍饲育肥滩羊为研究对象,通过在饲粮中添加不同剂量的葡萄籽原花青素,探究其对滩羊生长性能、肝脏抗氧化指标及代谢组的影响,旨在为葡萄籽副产物的资源化利用及舍饲滩羊抗氧化能力与生长性能提升提供理论依据。

1 材料与方法

1.1 试验材料与试验动物

试验所用葡萄籽原花青素纯度≥95%,其CAS号为4856-22-6。饲料原料及颗粒化全混合日粮(TMR)由宁夏盐池滩羊产业集团丰牧饲料科技服务有限公司提供。滩羊由宁夏回族自治区贺兰县祥鑫泰养殖专业合作社提供。

1.2 试验设计与饲养管理

动物试验方案已通过宁夏大学科技伦理委员会审批(审批编号:NXU-2024-143)。选取体重[(25.22±2.26) kg]相近、健康的3月龄雄性滩羊40只,经统一鉴定、驱虫、免疫后,随机分为4组,每组10个重复,每个重复1只。对照组(NC组)饲喂基础饲粮,试验组分别在基础饲粮中添加0.3%(LD组)、0.6%(MD组)及1.2%(HD组)的葡萄籽原花青素。试验期70 d,其中预试期10 d,正试期60 d。
基础饲粮参照《肉羊营养需要量》(NY/T 816—2021)并结合生产实践进行配制,其组成及营养水平见表1。试验开展前对羊舍进行全面清扫和消毒处理;试验全程采用单栏饲养模式,饲粮以TMR形式投喂,每日07:00、18:00定时饲喂,羊只自由采食和饮水。日常饲养管理遵循羊场规范流程,保持圈内清洁干燥,定期进行消毒。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 38.00
豆粕Soybean meal 3.00
菜籽粕Rapeseed meal 2.00
喷浆玉米皮Sprayed corn pell 4.00
大豆油Soybean oil 0.80
碳酸氢钠NaHCO3 1.00
花生壳粉Peanut shell powder 23.00
干酒糟及其可溶物DDGS 4.00
棉籽粕Cottonseed meal 2.50
氨基酸渣Amino acid residue 1.00
氯化铵NH4Cl 1.00
次粉Wheat middlings 6.00
糖蜜Molasses 2.00
石粉Limestone 0.80
磷酸氢钙CaHPO4 1.50
食盐NaCl 0.50
乙氧基喹啉Ethoxyquin 0.50
玉米芯粉Corn cob meal 7.00
预混料Premix1) 1.40
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 6.78
粗蛋白质CP 14.75
中性洗涤纤维NDF 34.38
酸性洗涤纤维ADF 23.72
粗脂肪EE 2.26
粗灰分Ash 8.81
钙Ca 1.21
磷P 0.55

1)每千克预混料含有 One kilogram of the premix contained the following:维生素A乙酸酯 VA acetate 633 000 IU,VD3 251 000 IU,DL-α-生育酚乙酸酯 DL-α-tocopherol acetate 3 690 IU,烟酰胺 nicotinamide 1 710 mg,Fe (as ferrous sulfate) 10 500 mg,Cu (as copper sulfate) 640 mg,Zn (as zinc sulfate) 3 900 mg,Mn (as manganese sulfate) 5 800 mg,I (as potassium iodide) 58.8 mg,Se (as sodium selenite) 13.49 mg,Co (as cobalt chloride) 71.2 mg。

2)代谢能为根据《肉羊营养需要量》(NY/T 816—2021)所得计算值,其余为实测值。ME was a calculated value according to Nutrient Requirements of Meat-Type Sheep and Goat (NY/T 816—2021), while the others were measured values.

1.3 样品采集与指标测定

1.3.1 饲粮营养成分含量

采用四分法称取约400 g饲粮样品,置于65 ℃烘箱内烘至恒重,粉碎后备用。饲粮粗蛋白质(CP)、粗脂肪(EE)、粗灰分(Ash)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)、钙(Ca)和磷(P)含量分别参照GB/T 6432—2018、GB/T 6433—2025、GB/T 6438—2007、GB/T 20806—2022、NY/T 1459—2022、GB/T 6436—2018和GB/T 6437—2018的方法进行测定。

1.3.2 生长性能

于正试期第1天和第60天晨饲前,对所有试验羊进行空腹称重,分别记为初重和末重,并计算ADG;每日晨饲前清理料槽、收集剩料并称量记录,用于测定平均日采食量(ADFI);根据ADG和ADFI计算料重比(F/G)。相关计算公式如下:
ADG=(末重-初重)/试验天数;
ADFI=总耗料量/试验天数;
F/G=ADFI/ADG。

1.3.3 养分表观消化率

于正试期第58~60天每日定时采集粪样,将连续3 d采集的粪样混合均匀,取部分样品加入10%稀硫酸溶液进行固氮处理(用于CP含量检测),其余样品不做处理,置于65 ℃烘箱烘至恒重,制成风干样备用。采用盐酸不溶灰分(AIA)作为内源指示剂测定养分表观消化率。饲粮及粪便中AIA和干物质(DM)含量参照GB/T 23742—2009和GB/T 6435—2014的方法进行测定,CP、EE、ADF、NDF含量测定方法同1.3.1。养分表观消化率计算公式如下:
某养分表观消化率(%)=100-100×[(粪便中该养分含量/饲粮中该养分含量)×(饲粮中AIA含量/粪便中AIA含量)]。

1.3.4 屠宰性能和器官指数

饲养试验结束后,每组随机选取8只体重接近、体况良好的试验羊,禁食24 h、禁水2 h后进行屠宰。屠宰前对羊只称重并记录,即为宰前活重;屠宰放血后去除试验羊毛皮、头部、前肢膝关节及后肢趾关节以下部位与内脏(保留肾脏及肾周脂肪),躯体静置30 min后称重并记录,即为胴体重;根据宰前活重和胴体重计算屠宰率[屠宰率(%)=(胴体重/宰前活重)×100]。在左侧胴体第12、13胸椎结合处采用游标卡尺测量皮下脂肪层厚度,重复测定3次取平均值,即为背膘厚度;用硫酸纸描绘第1、2腰椎间背最长肌横断面,再使用数字式面积测量仪测定面积,即为眼肌面积;在第12、13肋骨间隙距脊柱中线外侧11 cm处测定组织厚度,重复测定3次取平均值,即为GR值。分别称量心脏、肝脏、肾脏、肺脏重,并计算器官指数[器官指数(%)=(器官重/宰前活重)×100]。

1.3.5 血清谷丙转氨酶(ALT)、谷草转氨酶(AST)、碱性磷酸酶(ALP)活性

屠宰前采集试验羊颈静脉血液,室温静置30 min,经1 006×g离心15 min后分离血清,分装至EP管并做好标记,置于-20 ℃保存。将血清样品送至宁夏迪安乐嘉医学检验中心有限公司,检测ALT、AST和ALP活性,所用试剂盒均由南京建成生物工程研究所提供。

1.3.6 肝脏ALT、AST、ALP活性

屠宰解剖后采集肝脏组织:从右侧肝脏的同一位置剥离表皮,取3份组织样本,每份约1 g。经生理盐水冲洗后,将肝脏组织分别收集于2 mL外旋冻存管中,放入液氮暂存,随后转移至实验室-80 ℃冰箱保存。将肝脏组织样本干冰低温送至武汉塞维尔生物科技有限公司,检测肝脏ALT、AST、ALP活性。其中ALT活性采用丙氨酸底物速率法测定,检测主、次波长分别为340、405 nm;AST活性采用天门冬氨酸底物速率法测定,检测主、次波长分别为340、405 nm;ALP活性采用对硝基苯磷酸(NPP)底物-2-氨基-2-甲基-1-丙醇(AMP)缓冲液速率法测定,检测主、次波长分别为405、505 nm。

1.3.7 肝脏抗氧化指标

取1.3.6中肝脏组织样品,采用南京建成生物工程研究所提供的试剂盒测定肝脏过氧化氢酶(CAT)、GSH-Px、SOD活性和MDA含量及T-AOC,并进行总蛋白定量。

1.3.8 肝脏代谢组学分析

取1.3.6中肝脏组织样品,干冰低温送至武汉迈维代谢生物科技股份有限公司进行非靶向代谢组学检测。先将-80 ℃冻存的样本置于冰上解冻,于液氮环境中研磨为均匀粉末;精确称取(20±1) mg样本,加入400 μL 70%甲醇水内标提取液(Merck,德国),涡旋振荡5 min,冰浴静置15 min。于4 ℃、3 300×g条件下离心10 min,吸取300 μL上清液至离心管中,-20 ℃静置30 min;再次在4 ℃、3 300×g条件下离心3 min,吸取200 μL上清液至进样瓶内衬管中,用于上机检测分析。本研究代谢组学原始数据已上传至中国国家生物信息中心/国家基因组科学数据中心(CNCB-NGDC)OMIX数据库,数据访问号:OMIX011985。以变量重要性投影(VIP)>1、P<0.05、差异倍数(FC)≥2或FC≤0.5作为筛选条件,筛选获得差异代谢物。使用KEGG数据库对差异代谢物进行通路富集分析。

1.4 数据统计分析

试验数据经Excel 2016初步整理后,使用SPSS 21.0软件进行统计分析。符合正态分布的数据进行单因素方差分析(one-way ANOVA),并通过Duncan氏法进行事后多重比较;不符合正态分布的数据采用Kruskal-Wallis非参数检验,并通过Dunn检验结合Bonferroni校正进行事后多重比较。采用正交多项式回归分析进一步探究各指标的线性与二次变化趋势。结果数据以“平均值±标准差”表示,P<0.01表示差异极显著,P<0.05表示差异显著。

2 结果与分析

2.1 葡萄籽原花青素对滩羊生长性能和养分表观消化率的影响

表2可知,与NC组相比,LD组末重极显著降低(P<0.01),ADG显著降低(P<0.05),F/G极显著升高(P<0.01),且F/G随葡萄籽原花青素添加量的提高呈先升高后降低的极显著二次变化(P<0.01)。MD组和HD组末重、ADG和F/G较NC组均无显著变化(P>0.05),且各组间ADFI无显著差异(P>0.05)。
表2 葡萄籽原花青素对滩羊生长性能的影响

Table 2 Effects of grape seed proanthocyanidins on growth performance of Tan sheep

项目
Items
组别Groups PP-value
NC LD MD HD 处理
Treatment
线性
Linear
二次
Quadratic
初重IBW/kg 26.44±0.53 25.91±0.48 26.46±0.33 26.17±1.02 0.905 0.909 0.832
末重FBW/kg 42.52±0.51Aa 37.94±0.17Bb 42.07±0.43Aa 40.80±1.07Aa <0.001 0.802 0.054
平均日增重
ADG/(kg/d)
0.27±0.01a 0.22±0.01b 0.25±0.01ab 0.23±0.02ab 0.040 0.150 0.256
平均日采食量
ADFI/(kg/d)
1.94±0.08 1.68±0.11 1.85±0.07 1.86±0.07 0.218 0.910 0.122
料重比F/G 6.48±0.13Bb 7.80±0.18Aa 6.82±0.13ABab 6.52±0.28ABab <0.001 0.146 <0.001

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same lowercase letter superscripts mean no significant difference (P>0.05), while with different lowercase letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

表3可知,随着葡萄籽原花青素添加量的提高,CP表观消化率呈极显著线性下降(P<0.01),NDF和ADF表观消化率呈显著或极显著线性和二次变化(P<0.05或P<0.01)。与NC组相比,各试验组CP、NDF和ADF表观消化率均显著或极显著降低(P<0.05或P<0.01);各组间DM和EE表观消化率无显著差异(P>0.05)。
表3 葡萄籽原花青素对滩羊养分表观消化率的影响

Table 3 Effects of grape seed proanthocyanidins on nutrient apparent digestibility of Tan sheep %

项目
Items
组别Groups PP-value
NC LD MD HD 处理
Treatment
线性
Linear
二次
Quadratic
干物质DM 77.46±1.71 77.83±0.32 75.17±0.56 75.76±1.17 0.457 0.206 0.947
粗蛋白质CP 75.58±1.85Aa 70.21±0.63ABb 66.86±1.91BCb 62.89±1.25Cc <0.001 <0.001 0.622
中性洗涤纤维NDF 54.13±0.50Aa 44.89±1.51Bb 41.06±0.27Cc 36.25±0.50Dd <0.001 <0.001 0.008
酸性洗涤纤维ADF 52.10±1.47Aa 39.65±0.97Bb 37.60±1.73BCb 32.23±1.16Cc <0.001 <0.001 0.018
粗脂肪EE 95.63±0.77 94.18±0.65 94.24±0.89 94.99±0.67 0.390 0.616 0.174

2.2 葡萄籽原花青素对滩羊屠宰性能和器官指数的影响

表4表5可知,与NC组相比,LD组宰前活重极显著降低(P<0.01),MD组和HD组则无显著变化(P>0.05);3个试验组胴体重、屠宰率、背膘厚度、GR值、眼肌面积及各器官指数均无显著变化(P>0.05)。
表4 葡萄籽原花青素对滩羊屠宰性能的影响

Table 4 Effects of grape seed proanthocyanidins on slaughter performance of Tan sheep

项目
Items
组别Groups PP-value
NC LD MD HD 处理
Treatment
线性
Linear
二次
Quadratic
宰前活重
Live weight before
slaughter/kg
40.66±0.82Aa 36.48±0.71Bb 39.39±0.66Aa 37.85±1.04Aa 0.007 0.144 0.118
胴体重
Carcass weight/kg
20.24±0.56 19.14±0.50 20.09±0.63 19.59±0.66 0.550 0.708 0.616
屠宰率
Dressing percentage/%
49.91±1.61 52.51±1.25 50.92±0.87 51.73±0.84 0.462 0.470 0.455
GR值GR value/mm 21.63±1.03 18.11±0.85 20.97±1.29 20.24±0.65 0.068 0.695 0.088
背膘厚度
Backfat thickness/mm
8.82±0.63 7.50±0.70 8.84±1.09 9.78±0.96 0.335 0.282 0.203
眼肌面积
Eye muscle area/cm2
17.79±0.56 19.83±2.02 19.14±0.75 20.10±0.14 0.541 0.246 0.737
表5 葡萄籽原花青素对滩羊器官指数的影响

Table 5 Effects of grape seed proanthocyanidins on organ indices of Tan sheep

项目
Items
组别Groups PP-value
NC LD MD HD 处理
Treatment
线性
Linear
二次
Quadratic
器官重Organ weight/g
肝脏Liver 802.50±24.18 744.29±25.90 772.50±24.84 755.00±41.40 0.560 0.384 0.535
肺脏Lung 402.50±28.89 337.50±20.59 455.00±28.35 367.50±36.04 0.119 0.954 0.966
心脏Heart 170.00±7.79 165.00±6.81 182.50±10.81 168.75±17.87 0.737 0.794 0.710
肾脏Kidney 126.25±10.61 117.50±19.82 122.50±16.69 115.00±13.09 0.478 0.249 0.910
器官指数Organ indices/%
肝脏Liver 1.97±0.03 2.04±0.08 1.96±0.06 1.99±0.08 0.815 0.933 0.756
肺脏Lung 0.99±0.07 0.92±0.05 1.12±0.07 0.98±0.11 0.454 0.692 0.727
心脏Heart 0.42±0.02 0.45±0.02 0.47±0.03 0.44±0.04 0.715 0.499 0.353
肾脏Kidney 0.31±0.01 0.32±0.02 0.31±0.01 0.30±0.01 0.780 0.573 0.484

2.3 葡萄籽原花青素对滩羊血清和肝脏ALT、AST、ALP活性的影响

表6可知,随着葡萄籽原花青素添加量的提高,血清AST活性呈先升高后降低的显著二次变化(P<0.05),肝脏AST和ALT活性呈极显著线性下降(P<0.01)。与NC组相比,LD组血清AST活性显著升高(P<0.05),肝脏ALP活性极显著降低(P<0.01);MD组肝脏ALT活性极显著降低(P<0.01);HD组肝脏ALT和AST活性极显著降低(P<0.01)。
表6 葡萄籽原花青素对滩羊血清和肝脏ALT、AST、ALP活性的影响

Table 6 Effects of grape seed proanthocyanidins on activities of ALT, AST and ALP in serum and liver of Tan sheep

项目
Items
组别Groups PP-value
NC LD MD HD 处理
Treatment
线性
Linear
二次
Quadratic
血清Serum/(U/L)
丙氨酸氨基转移酶
ALT
21.00±1.18 20.67±1.20 19.50±0.88 16.80±1.52 0.238 0.054 0.545
天门冬氨酸
氨基转移酶
AST
126.16±7.07b 148.57±7.53a 133.33±3.34ab 123.00±5.37b 0.038 0.422 0.019
碱性磷酸酶
ALP
357.50±23.86 310.00±13.17 338.60±15.89 274.40±28.39 0.070 0.037 0.698
肝脏Liver/(U/g prot)
丙氨酸氨基转移酶
ALT
129.64±1.64Aa 127.19±3.39Aa 124.76±1.78Ba 117.33±2.53Bb 0.009 <0.001 0.281
天门冬氨酸
氨基转移酶
AST
359.20±20.08Aa 321.25±11.98ABab 316.23±9.94ABab 281.84±9.92Bb 0.008 <0.001 0.902
碱性磷酸酶
ALP
214.39±18.50Aa 129.59±12.27Bb 215.68±5.17Aa 214.08±17.14Aa <0.001 0.029 <0.001

2.4 葡萄籽原花青素对滩羊肝脏抗氧化指标的影响

表7可知,随着葡萄籽原花青素添加量的提高,肝脏CAT活性呈极显著线性(P<0.01)和显著二次(P<0.05)变化,其中HD组肝脏CAT活性极显著高于NC组和LD组(P<0.01)。与NC组相比,各试验组肝脏GSH-Px、SOD活性和MDA含量及T-AOC均无显著变化(P>0.05)。
表7 葡萄籽原花青素对滩羊肝脏抗氧化指标的影响

Table 7 Effects of grape seed proanthocyanidins on antioxidant indices in liver of Tan Sheep

项目
Items
组别Groups PP-value
NC LD MD HD 处理
Treatment
线性
Linear
二次
Quadratic
谷胱甘肽过氧化物酶
GSH-Px/
(U/mg prot)
53.65±4.12 42.58±0.91 48.67±3.31 50.67±4.52 0.264 0.930 0.120
过氧化氢酶
CAT/(U/mg prot)
191.86±21.06Bb 164.28±20.81Bb 221.85±17.65ABab 282.06±13.46Aa 0.006 0.002 0.037
超氧化物歧化酶
SOD/(U/mg prot)
39.29±2.28 46.99±2.48 42.95±2.40 42.63±1.74 0.160 0.781 0.099
丙二醛
MDA/
(nmol/mg prot)
0.46±0.03 0.48±0.07 0.42±0.02 0.41±0.03 0.705 0.347 0.749
总抗氧化能力
T-AOC/
(U/mg prot)
1.31±0.21 1.25±0.32 1.04±0.21 1.37±0.14 0.839 0.968 0.507

2.5 葡萄籽原花青素对滩羊肝脏代谢组的影响

2.5.1 肝脏代谢物主成分分析
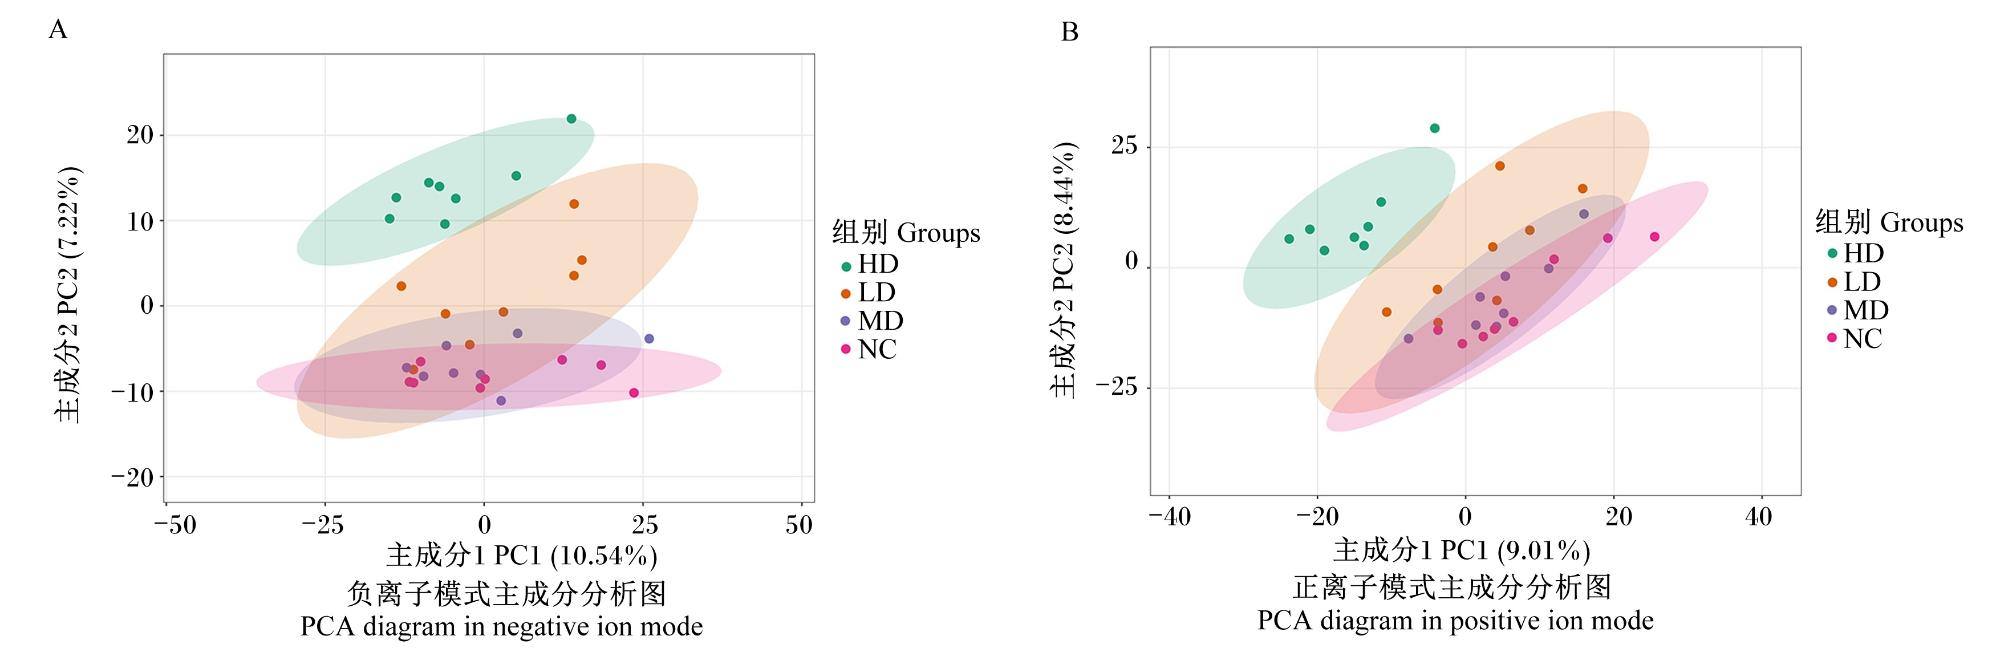
通过对所有样本(含质控样本)的代谢组学数据进行主成分分析(PCA),初步评估了各组样本间的整体代谢物差异及组内样本之间的变异程度。如图1所示,在正、负离子模式下,NC组、LD组、MD组代谢物分布存在交叉现象,但仍显现一定分离趋势;HD组与其余组别分离趋势明显,这表明随着葡萄籽原花青素添加量的提高,对滩羊肝脏代谢谱的影响逐渐增强。
图1 主成分分析图

Fig.1 PCA diagram

2.5.2 肝脏差异代谢物筛选

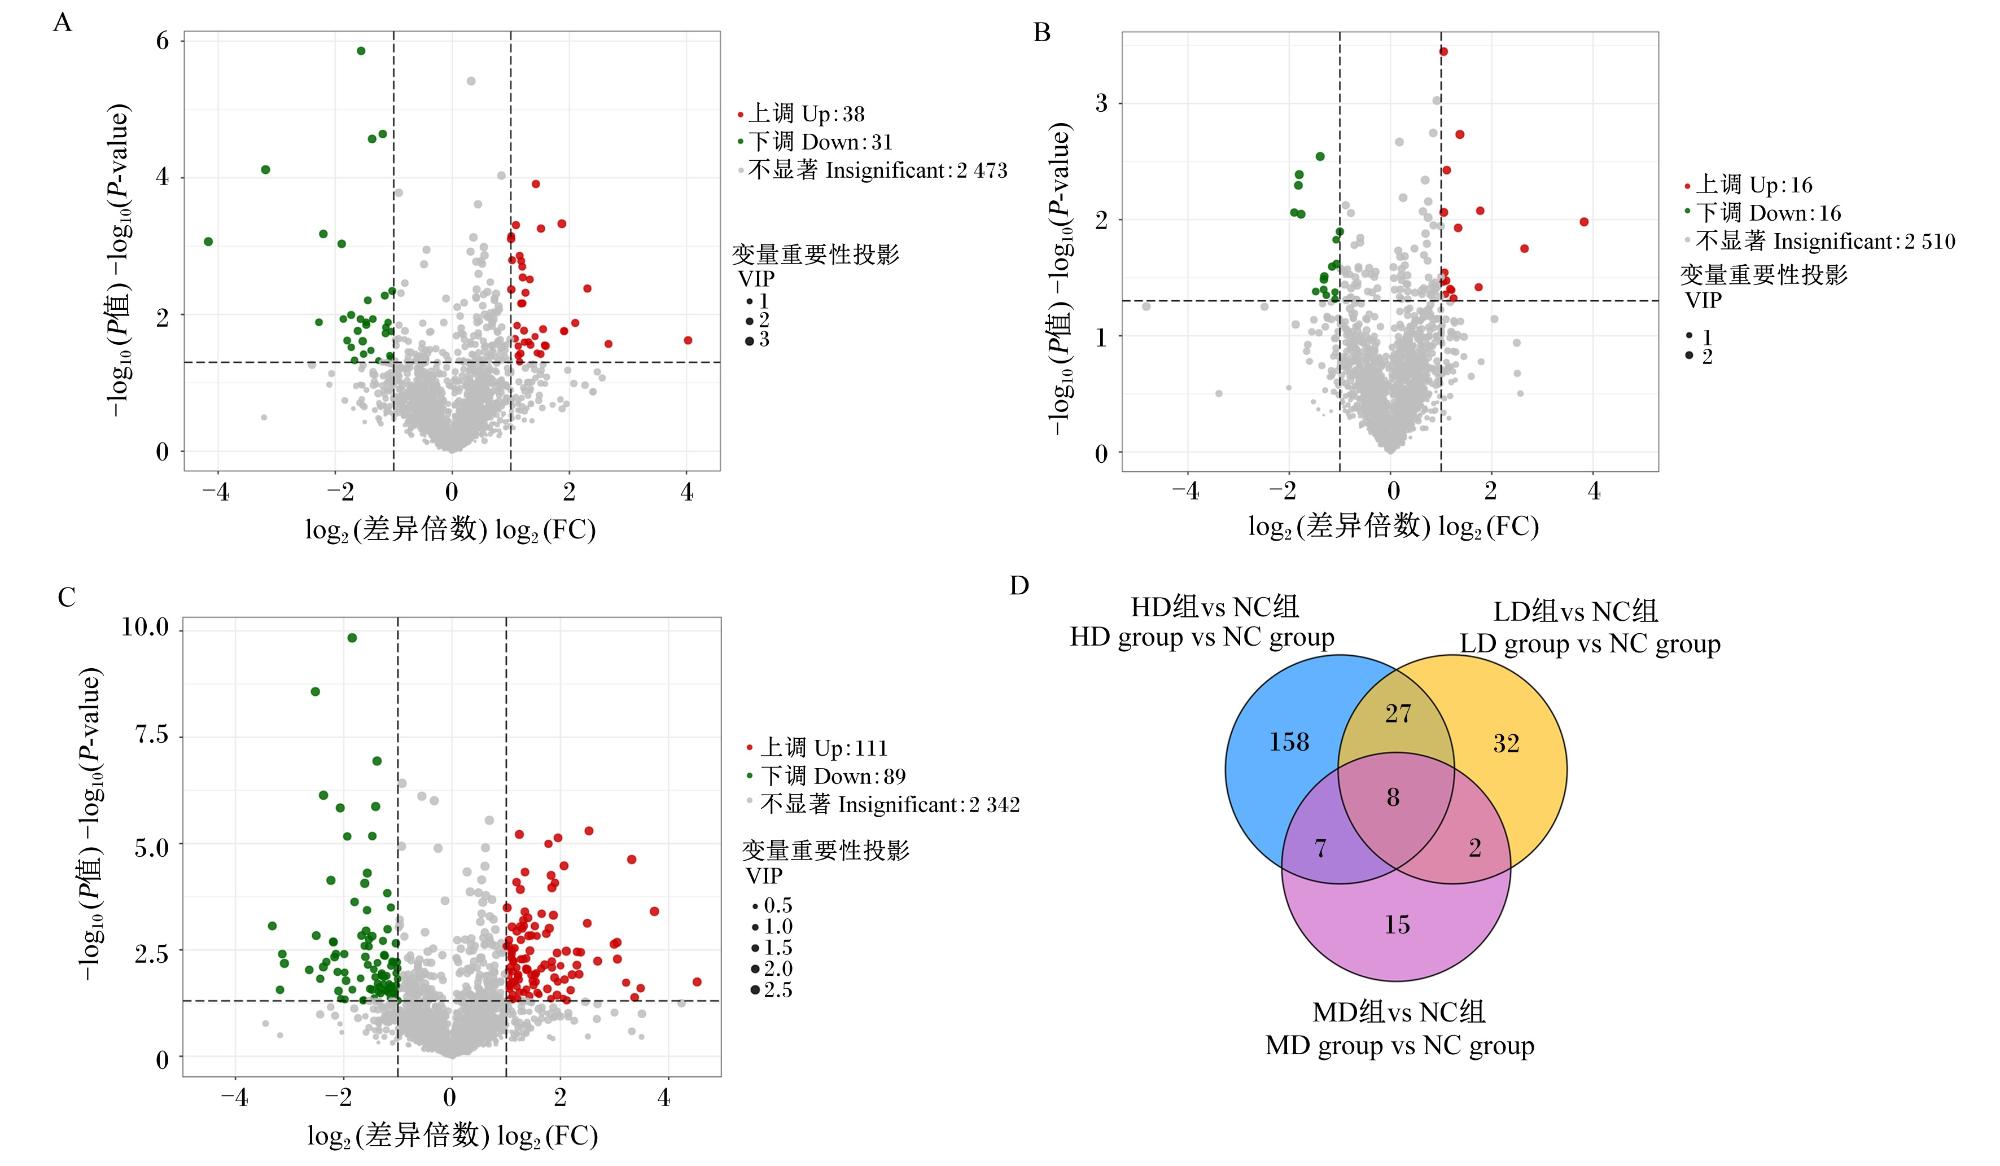
以VIP>1、P<0.05、FC≥2或FC≤0.5为筛选条件,在LD组与NC组之间鉴定出69个差异代谢物,其中38个上调,31个下调(图2-A);在MD组与NC组之间鉴定出32个差异代谢物,其中16个上调,16个下调(图2-B);在HD组与NC组之间鉴定出200个差异代谢物,其中111个上调,89个下调(图2-C)。3个试验组中鉴定出的差异代谢物主要为甘油磷脂类物质(表8)。通过韦恩图分析上述3个比较组(LD组vs NC组、MD组vs NC组、HD组vs NC组)的差异代谢物,共筛选得到8个共有差异代谢物(图2-D)。其中,仅1,2-二十四烷酰基-sn-甘油-3-磷酸胆碱与甲萘醌同时具备KEGG代谢物编号及通路注释信息(表9),这2个代谢物在LD组、MD组和HD组中相较于NC组均显著上调(P<0.05),推测二者可能为葡萄籽原花青素调控滩羊肝脏生理代谢、发挥生物学效应的潜在关键代谢物。
图2 肝脏差异代谢物火山图和韦恩图

A:LD组vs NC组差异代谢物火山图;B:MD组vs NC组差异代谢物火山图;C:HD组vs NC组差异代谢物火山图;D:LD组vs NC组、MD组vs NC组、HD组vs NC组差异代谢物韦恩图。

Fig.2 Volcano plots and Venn diagram of differential metabolites in liver

A: volcano plot of differential metabolites in LD group vs NC group; B: volcano plot of differential metabolites in MD group vs NC group; C: volcano plot of differential metabolites in HD group vs NC group; D: Venn diagram of differential metabolites in LD group vs NC group, MD group vs NC group, and HD group vs NC group.

表8 肝脏差异代谢物的一级分类统计

Table 8 Statistics on primary classification of differential metabolites in liver

一级分类
Primary classification
LD组vs NC组
LD group vs
NC group
MD组vs NC组
MD group vs
NC group
HD组vs NC组
HD group vs
NC group
甘油磷脂类Glycerophospholipids 20(29.0%) 5(15.6%) 66(33.0%)
氨基酸及其代谢物Amino acids and metabolites 11(15.9%) 3(9.4%) 28(14.0%)
杂环化合物Heterocyclic compounds 8(11.6%) 3(9.4%) 11(5.5%)
苯及其衍生物Benzene and derivatives 6(8.7%) 2(6.2%) 21(10.5%)
醛、酮、酯类Aldehydes, ketones and esters 6(8.7%) 6(18.8%) 12(6.0%)
醇、胺类Alcohols and amines 4(5.8%) 1(3.1%) 9(4.5%)
核苷酸及其代谢物Nucleotides and metabolites 3(4.3%) 3(9.4%) 2(1.0%)
有机酸及其衍生物Organic acids and derivatives 3(4.3%) 3(9.4%) 15(7.5%)
辅酶和维生素Coenzymes and vitamins 1(1.5%) 1(3.1%) 1(0.5%)
脂肪酰类Fatty acyls 0(0.0%) 1(3.1%) 8(4.0%)
激素及激素相关物质
Hormones and hormone-related substances
0(0.0%) 1(3.1%) 3(1.5%)
鞘脂类Sphingolipids 1(1.5%) 0(0.0%) 2(1.0%)
甘油脂类Glycerolipids 1(1.5%) 0(0.0%) 6(3.0%)
胆汁酸Bile acids 0(0.0%) 0(0.0%) 2(1.0%)
黄酮Flavonoids 0(0.0%) 0(0.0%) 1(0.5%)
生物碱Alkaloids 0(0.0%) 0(0.0%) 1(0.5%)
萜类Terpenoids 0(0.0%) 0(0.0%) 2(1.0%)
碳水化合物及其代谢物Carbohydrates and their metabolites 0(0.0%) 0(0.0%) 2(1.0%)
其他Others 5(7.2%) 3(9.4%) 8(4.0%)
合计Total 69(100%) 32(100%) 200(100%)

括号外数据为差异代谢物数量,括号内数据为该类别差异代谢物占总差异代谢物的百分比。

The data outside the brackets represented the number of differential metabolites, while the data inside the brackets represented the percentage of each category in the total differential metabolites.

表9 LD组vs NC组、MD组vs NC组、HD组vs NC组共有的差异代谢物

Table 9 Common differential metabolites in LD group vs NC group, MD group vs NC group and HD group vs NC group

物质
Compounds
代谢物编号
Metabolite ID
KEGG通路
KEGG pathways
类型Type
LD组vs
NC组
LD group
vs NC
group
MD组vs
NC组
MD group
vs NC
group
HD组vs
NC组
HD group
vs NC
group
1,2-二十四烷酰基-sn-
甘油-3-磷酸胆碱
1,2-tetracosanoyl-sn-
glycero-3-phosphocholine
C00157 ko00564(甘油磷脂代谢),
ko00590(花生四烯酸代谢),
ko00591(亚油酸代谢),
ko00592(α-亚麻酸代谢),
ko01100(代谢通路),
ko04723(逆行内源性大麻素信号),
ko05231(癌症中的胆碱代谢)
上调 上调 上调
卡泊三醇Calcipotriol - - 下调 下调 下调
2'-O-甲基腺苷
2'-O-methyladenosine
- - 上调 上调 上调
甲萘醌
Menadione
C00828 ko00130(泛醌和其他萜
烯醌生物合成),
ko01100(代谢通路),
ko01240(辅因子的生物合成),
ko04977(维生素的消化与吸收)
上调 上调 上调
双去甲氧基姜黄素
Bisdemethoxycurcumin
- - 下调 下调 下调
右雷佐生
Dexrazoxane
- - 上调 上调 上调
(2S)-2-羟基-3,4-
二酮戊基磷酸酯
(2S)-2-hydroxy-3,4-
dioxopentyl phosphate
C20959 - 上调 上调 上调
磷脂酰甘油(16∶0/18∶1(9Z)
PG(16∶0/18∶1(9Z))
- - 下调 下调 下调

“-”表示无对应的代谢物编号或KEGG通路。KEGG通路中,括号外为通路编号,括号内为通路名称。

“-” indicated no corresponding metabolite ID or KEGG pathway. In KEGG pathways, codes outside the brackets represented pathway ID, and those inside indicated the corresponding pathway names.

2.5.3 肝脏差异代谢物的生物学功能分析

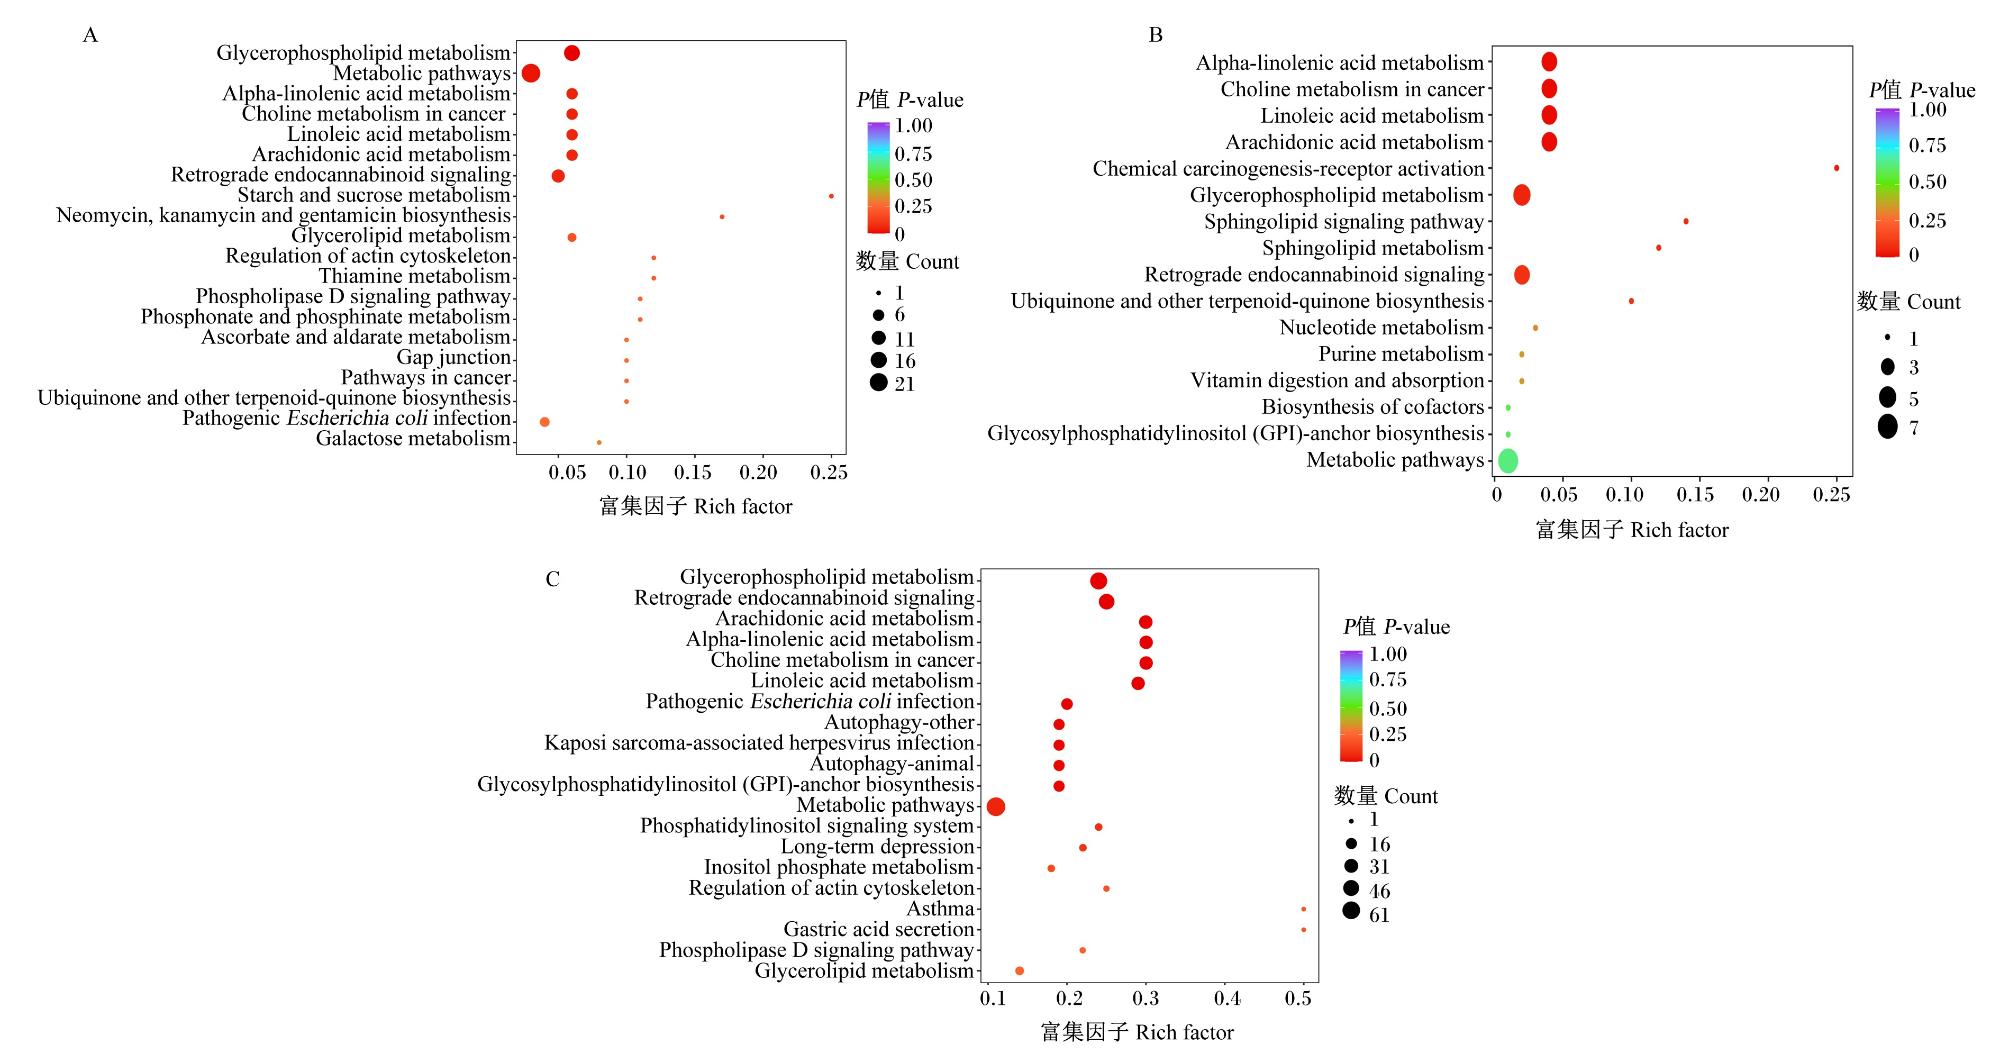
基于上述差异代谢物,进一步开展KEGG通路富集分析,按P值从小到大排序,选取显著富集的前20条通路进行展示。其中,LD组与NC组之间的差异代谢物在甘油磷脂代谢、α-亚麻酸代谢和癌症中的胆碱代谢等通路中显著富集(图3-A);MD组与NC组之间的差异代谢物在花生四烯酸代谢、亚油酸代谢、α-亚麻酸代谢、癌症中的胆碱代谢等通路中显著富集(图3-B);HD组与NC组之间的差异代谢物在甘油磷脂代谢、花生四烯酸代谢、亚油酸代谢、α-亚麻酸代谢、逆行内源性大麻素信号和癌症中的胆碱代谢等通路中显著富集(图3-C)。
图3 肝脏差异代谢物KEGG通路富集图

A:LD组vs NC组差异代谢物KEGG通路富集图;B:MD组vs NC组差异代谢物KEGG通路富集图;C:HD组vs NC组差异代谢物KEGG通路富集图。A: KEGG pathway enrichment plot of differential metabolites in LD group vs NC group; B: KEGG pathway enrichment plot of differential metabolites in MD group vs NC group; C: KEGG pathway enrichment plot of differential metabolites in HD group vs NC group.
Glycerophospholipid metabolism:甘油磷脂代谢;Metabolic pathways:代谢通路;Alpha-linolenic acid metabolism:α-亚麻酸代谢;Choline metabolism in cancer:癌症中的胆碱代谢;Linoleic acid metabolism:亚油酸代谢;Arachidonic acid metabolism:花生四烯酸代谢;Retrograde endocannabinoid signaling:逆行内源性大麻素信号;Starch and sucrose metabolism:淀粉和蔗糖代谢;Neomycin, kanamycin and gentamicin biosynthesis:新霉素、卡那霉素和庆大霉素生物合成;Glycerolipid metabolism:甘油脂代谢;Regulation of actin cytoskeleton:肌动蛋白细胞骨架的调节;Thiamine metabolism:硫胺素代谢;Phospholipase D signaling pathway:磷脂酶D信号通路;Phosphonate and phosphinate metabolism:膦酸酯和次膦酸酯代谢;Ascorbate and aldarate metabolism:抗坏血酸和醛糖酸代谢;Gap junction:间隙连接;Pathways in cancer:癌症中的通路;Ubiquinone and other terpenoid-quinone biosynthesis:泛醌和其他萜烯醌生物合成;Pathogenic Escherichia coli infection:致病性大肠杆菌感染;Galactose metabolism:半乳糖代谢;Chemical carcinogenesis-receptor activation:化学致癌-受体激活;Sphingolipid signaling pathway:鞘脂信号通路;Sphingolipid metabolism:鞘脂代谢;Nucleotide metabolism:核苷酸代谢;Purine metabolism:嘌呤代谢;Vitamin digestion and absorption:维生素的消化与吸收;Biosynthesis of cofactors:辅因子的生物合成;Glycosylphosphatidylinositol (GPI)-anchor biosynthesis:糖基磷脂酰肌醇锚定生物合成;Autophagy-other:自噬-其他;Autophagy-animal:自噬-动物;Kaposi sarcoma-associated herpesvirus infection:卡波西肉瘤相关疱疹病毒感染;Phosphatidylinositol signaling system:磷脂酰肌醇信号系统;Long-term depression:长时程抑制;Inositol phosphate metabolism:肌醇磷酸代谢;Asthma:哮喘;Gastric acid secretion:胃酸分泌。

Fig.3 KEGG pathway enrichment plots of differential metabolites in liver

3 讨论

3.1 葡萄籽原花青素对滩羊生长性能和养分表观消化率的影响

动物生长性能直接决定养殖效益,其中ADG可直观反映动物机体的生长情况[9],F/G作为衡量饲料利用效率的核心指标,其数值越低,表明饲料转化率越高。酚类物质作为植物提取物的重要类别,在改善动物生长性能方面具有积极作用。Mu等[7]、牟春堂等[10]及云艳虹等[11]在育肥羔羊与黑山羊的研究中表明,饲喂葡萄籽原花青素可显著提高羊的末重、干物质采食量及ADG,并降低F/G。然而,本试验结果显示,与NC组相比,LD组滩羊的末重极显著降低,ADG显著降低,F/G极显著升高;MD组与HD组则无显著变化。随着葡萄籽原花青素添加量的提高,生长性能整体呈现“先降低后趋于平稳”的趋势。这与其他文献报道的葡萄籽原花青素促进羊生长性能的结论存在差异,推测该差异可能与试验羊的品种、生理阶段及葡萄籽原花青素的添加剂量有关。葡萄籽原花青素作为缩合单宁,易在动物口腔内产生苦涩感,可能降低饲粮适口性并影响动物采食[12]。但本试验中,各试验组滩羊的ADFI较NC组均无显著变化,说明LD组生长性能的抑制并非由采食量下降直接导致。饲粮养分表观消化率可反映饲粮利用程度,并影响动物生长性能。本试验结果显示,随着葡萄籽原花青素添加量的提高,滩羊CP、NDF和ADF表观消化率均呈线性降低,这与Al-Dobaib等[13]和Zhao等[14]的研究结果相似,说明葡萄籽原花青素在滩羊消化道中确实存在一定的抗营养作用。值得注意的是,MD组与HD组的生长性能并未表现出显著负面效应,其具体机制仍有待进一步研究。

3.2 葡萄籽原花青素对滩羊屠宰性能和器官指数的影响

屠宰性能是评判肉用畜禽产肉性能与胴体品质的重要指标,对衡量畜牧业经济效益和畜禽健康水平具有重要意义。其中,屠宰率与眼肌面积可直观体现畜禽产肉能力,背膘厚度和GR值则常用于衡量动物的营养状况和脂肪沉积水平。已有研究证实,饲粮中添加葡萄籽原花青素可提升肉鸡屠宰率[15],增大羔羊眼肌面积[8],降低育肥牛背膘厚度[16]
本试验结果显示,与NC组相比,各试验组滩羊的胴体重、屠宰率、GR值、背膘厚度及眼肌面积均无显著变化,该差异或与试验动物品种、生理阶段、试验饲喂周期及葡萄籽原花青素的添加剂量有关。本试验中LD组GR值较NC组出现明显数值下降,与该组滩羊生长性能偏低的结果相一致,提示饲粮中添加低剂量葡萄籽原花青素可能会在一定程度上影响滩羊胴体脂肪沉积。器官指数是评估动物生长发育状况以及内脏生理功能的重要指标,可为养殖生产实践提供指导。在正常生理条件下,器官发育与整体生长保持协调和同步。田华勤等[17]研究表明,饲粮中添加不同剂量葡萄渣提取物对羔羊心脏、肾脏和肺脏重量均无显著影响,与本研究结果相似。本试验结果显示,饲粮中添加不同剂量葡萄籽原花青素未显著改变滩羊的器官指数,说明在本试验条件下,滩羊的器官发育与整体生长过程相协调,这可能是动物机体固有生长调节机制的自然体现。

3.3 葡萄籽原花青素对滩羊肝脏功能和抗氧化能力的影响

肝脏内存在多种抗氧化酶,其协同作用可维持肝脏自由基的动态平衡[18-19]。多酚类物质及其代谢物具有显著的抗氧化活性[20-21]。研究表明,葡萄籽原花青素可以提高鲤鱼肝脏SOD、GSH-Px活性及T-AOC[22],增加肉鸡肝脏GSH-Px活性及谷胱甘肽含量[23],还能提升高精料育肥绵羊肝脏T-AOC和GSH-Px活性,减少肝脏MDA积累[6]。本试验结果显示,随着葡萄籽原花青素添加量的提高,肝脏CAT活性呈线性升高,其中HD组极显著高于NC组和LD组;肝脏SOD活性呈先升高后降低趋势,整体数值高于NC组,但组间差异不显著。这一结果与以往研究中葡萄籽原花青素广泛提升肝脏抗氧化酶活性的结果存在一定差异,这可能源于不同品种动物肝脏基础氧化状态存在区别,且机体对内源抗氧化系统的调控响应模式也不尽相同。但从整体来看,肝脏CAT及SOD活性的变化趋势仍说明饲粮中添加适量葡萄籽原花青素可以增强滩羊肝脏的抗氧化能力,这也可能是MD组和HD组生长性能未出现负面效应的重要原因。
ALT、AST主要存在于肝脏组织中,当肝脏发生病变或损伤时,肝细胞通透性会大幅增加,大量ALT、AST从肝细胞内释放入血,导致血清中ALT、AST活性升高,因此二者是临床上判断肝脏损伤的重要指标[24]。本试验结果显示,随着葡萄籽原花青素添加量的提高,滩羊肝脏AST和ALT活性呈极显著线性下降;血清AST活性呈先升高后降低的显著二次变化,其中LD组显著高于NC组和HD组,而各组血清ALT活性均无显著差异。这表明饲粮中添加低剂量葡萄籽原花青素可能会引起轻微的肝脏细胞膜通透性改变,导致AST释放入血增多;但随着葡萄籽原花青素添加量的提高,其抗氧化活性逐渐增强,有助于清除体内自由基、减轻肝脏细胞氧化应激损伤,进而发挥肝脏保护作用[25]。ALP同样是反映肝脏健康状况的重要理化指标。本试验结果显示,与NC组相比,LD组滩羊肝脏ALP活性极显著降低,且血清ALP活性随葡萄籽原花青素添加量的提高呈线性降低趋势,提示葡萄籽原花青素可有效改善滩羊肝脏功能。综上所述,葡萄籽原花青素可通过提高滩羊肝脏CAT、SOD活性增强肝脏抗氧化能力,同时改善肝脏功能,对维持滩羊肝脏健康具有积极作用。

3.4 葡萄籽原花青素对滩羊肝脏代谢组的影响

基于代谢组学分析,可筛选出介导葡萄籽原花青素调控滩羊肝脏抗氧化能力的关键差异代谢物。甘油磷脂是动物体内含量最为丰富的磷脂类物质,它不仅在细胞膜的结构和功能中发挥关键作用,还参与调控细胞信号传导。本试验结果显示,饲粮中添加不同剂量葡萄籽原花青素均可调控滩羊肝脏甘油磷脂类代谢物水平,说明葡萄籽原花青素可能会通过调控甘油磷脂代谢,维持肝脏细胞膜结构与功能的完整。1,2-二十四烷酰基-sn-甘油-3-磷酸胆碱属于磷脂酰胆碱类物质,广泛分布于各类细胞器膜中,是极低密度脂蛋白、低密度脂蛋白及高密度脂蛋白组装与分泌的重要组成成分,也是甘油二酯、鞘磷脂等信号分子的前体物,在调控血脂代谢、修复受损肝细胞等生理过程中发挥重要作用[26-28]。此外,磷脂酰胆碱还可以提高组织中抗氧化酶活性,降低脂质过氧化物MDA含量,进而提高机体抗氧化能力[29]。甲萘醌(维生素K3)属于维生素原,是脂溶性维生素K化合物家族的合成形式[30]。维生素K对于许多生理过程至关重要,除可保护线粒体功能、调节机体免疫外,还能通过直接清除活性氧来缓解氧化应激,其抗氧化潜力较α-生育酚高出10~100倍[31-32]。本试验中,1,2-二十四烷酰基-sn-甘油-3-磷酸胆碱和甲萘醌在3个试验组中均显著上调,二者作为葡萄籽原花青素干预下稳定应答的共有差异代谢物,推测可在增强滩羊肝脏抗氧化能力、改善肝脏生理功能等方面发挥关键作用。
为深入阐明葡萄籽原花青素调控滩羊肝脏生理状态的内在机制,本研究对差异代谢物进行了KEGG通路富集分析。牟春堂等[6]通过肝脏代谢组学研究发现,葡萄籽原花青素主要对高精料育肥绵羊的癌症中的胆碱代谢、甘油磷脂代谢、逆行内源性大麻素信号等通路产生了影响,与本研究结果类似。本试验中,KEGG通路富集结果显示,各试验组肝脏差异代谢物显著富集于α-亚麻酸代谢、花生四烯酸代谢、癌症中的胆碱代谢及甘油磷脂代谢等多条关键通路,这些通路均与机体抗氧化、肝脏功能调控密切相关。α-亚麻酸作为一种omega-3多不饱和脂肪酸,可抑制促炎细胞因子增殖,同时具备较强的抗氧化活性与自由基清除能力,能够有效减少细胞损伤、抑制细胞凋亡并减轻炎症反应[33-34]。研究表明,α-亚麻酸可通过激活核因子E2相关因子2(Nrf2)/血红素氧合酶-1(HO-1)/c-Jun氨基末端激酶(JNK)信号通路,降低小鼠大脑活性氧积累,进而减轻氧化损伤[35]。花生四烯酸是机体重要的多不饱和脂肪酸,通过环氧合酶代谢可形成不同类型的类花生酸,对提升机体抗氧化能力与免疫功能具有积极作用。吴金平[36]研究表明,饲料添加花生四烯酸纯化油能有效增强子二代中华鲟的抗氧化能力。肝脏是机体胆碱代谢的主要场所,胆碱缺乏常导致氧化应激、降低机体抗氧化能力;反之,合理补充胆碱可有效预防或改善肝脏脂肪病变与氧化应激[37],还可作为辅助抗氧化剂增强维生素E的抗氧化效果[38]。综上所述,葡萄籽原花青素可能通过调控α-亚麻酸代谢、花生四烯酸代谢及胆碱代谢等通路增强机体的抗氧化能力及改善肝脏功能。

4 结论

饲粮中添加0.3%葡萄籽原花青素会降低舍饲育肥滩羊的生长性能,当添加剂量提升至0.6%、1.2%时,可提高滩羊肝脏抗氧化能力,改善肝脏功能。肝脏代谢组学分析表明,葡萄籽原花青素可能通过调控α-亚麻酸代谢、花生四烯酸代谢和胆碱代谢等通路及1,2-二十四烷酰基-sn-甘油-3-磷酸胆碱、甲萘醌等关键差异代谢物,调节肝脏抗氧化能力与肝脏功能。
[1]
NTAWUBIZI M, MUKAMUHIRWA M L. A reflexion on the oxidative stress and animal welfare:a review[J]. Tropical Animal Health and Production, 2024, 56(9):396.

DOI

[2]
张宁, 杨洁, 郭引弟, 等. 植物多糖的生物学功能及其在畜禽生产中的应用研究进展[J]. 中国畜牧杂志, 2025, 61(5):50-55.

ZHANG N, YANG J, GUO Y D, et al. Advance in biological functions of plant polysaccharides and their application in livestock and poultry production[J]. Chinese Journal of Animal Science, 2025, 61(5):50-55. (in Chinese)

[3]
CAO S T, WANG C C, YAN J T, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology & Medicine, 2020, 147:8-22.

DOI

[4]
CERBARO A F, RODRIGUES V S B, RIGOTTI M, et al. Grape seed proanthocyanidins improves mitochondrial function and reduces oxidative stress through an increase in sirtuin 3 expression in EA.hy926 cells in high glucose condition[J]. Molecular Biology Reports, 2020, 47(5):3319-3330.

DOI PMID

[5]
肖瀛, 尹志婷, 胡中志, 等. 原花青素B2代谢产物在小鼠体内组织的分布[J]. 食品科学, 2017, 38(9):168-172.

XIAO Y, YIN Z T, HU Z Z, et al. Distribution of procyanidin B2 metabolites in mice[J]. Food Science, 2017, 38(9):168-172. (in Chinese)

DOI

[6]
牟春堂, 谢蕴哲, 申玉萍, 等. 葡萄籽原花青素对高精料育肥绵羊肝脏炎症反应、抗氧化功能的影响及代谢组学分析[J]. 动物营养学报, 2024, 36(7):4447-4461.

DOI

MU C T, XIE Y Z, SHEN Y P, et al. Effects of grape seed proanthocyanidins on liver inflammation and antioxidant function of fattening sheep fed a high-concentrate diet and metabolomic analysis[J]. Chinese Journal of Animal Nutrition, 2024, 36(7):4447-4461. (in Chinese)

DOI

[7]
MU C T, YANG W J, WANG P J, et al. Effects of high-concentrate diet supplemented with grape seed proanthocyanidins on growth performance,liver function,meat quality,and antioxidant activity in finishing lambs[J]. Animal Feed Science and Technology, 2020, 266:114518.

DOI

[8]
杨文军. 葡萄籽原花青素对高精料舍饲育肥绵羊营养物质消化代谢、生长及屠宰性能的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2020.

YANG W J. Effects of high-concentrate diet supplemented with grape seed proanthocyanidins on nutrient digestion and metabolism,growth andslaughter performance in fattening lambs[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2020. (in Chinese)

[9]
ZHANG X, LI G, LI F, et al. Effect of feed efficiency on growth performance,body composition,and fat deposition in growing Hu lambs[J]. Animal Biotechnology, 2023, 34(2):183-198.

DOI

[10]
牟春堂, 杨文军, 王鹏举, 等. 葡萄籽原花青素对公羔羊生长性能、精液品质及睾丸和附睾抗氧化指标的影响[J]. 动物营养学报, 2020, 32(5):2241-2250.

DOI

MU C T, YANG W J, WANG P J, et al. Effects of grape seed procyanidins on growth performance,semen quality,antioxidant indexes in testis and epididymis of ram[J]. Chinese Journal of Animal Nutrition, 2020, 32(5):2241-2250. (in Chinese)

[11]
云艳虹, 石惠宇, 张元锌, 等. 葡萄籽原花青素对海南黑山羊生长性能、屠宰性能、肉品质及抗氧化性能的影响[J]. 饲料研究, 2023, 46(23):1-6.

YUN Y H, SHI H Y, ZHANG Y X, et al. Effect of grape seed proanthocyanidins on growth performance,slaughter performance,meat quality and antioxidant performance of Hainan black goats[J]. Feed Research, 2023, 46(23):1-6. (in Chinese)

[12]
刘玥玥, 刘志杰, 王奇林, 等. 单宁对反刍动物生产性能、瘤胃发酵及微生物区系影响的研究进展[J]. 畜牧兽医学报, 2026, 57(4):1864-1875.

DOI

LIU Y Y, LIU Z J, WANG Q L, et al. Research progress on the effects of tannins on ruminant production performance,rumen fermentation and microflora[J]. Acta Veterinaria et Zootechnica Sinica, 2026, 57(4):1864-1875. (in Chinese)

[13]
AL-DOBAIB S N. Effect of different levels of quebracho tannin on nitrogen utilization and growth performance of najdi sheep fed alfalfa (Medicago sativa) hay as a sole diet[J]. Animal Science Journal, 2009, 80(5):532-541.

DOI

[14]
ZHAO M D, DI L F, TANG Z Y, et al. Effect of tannins and cellulase on growth performance,nutrients digestibility,blood profiles,intestinal morphology and carcass characteristics in Hu sheep[J]. Asian-Australasian Journal of Animal Sciences, 2019, 32(10):1540-1547.

DOI

[15]
侯福银, 杨智青, 陈长宽, 等. 原花青素对肉鸡肠道及屠宰性能、脂质代谢和肉品质的影响[J]. 浙江大学学报(农业与生命科学版), 2019, 45(1):119-125.

HOU F Y, YANG Z Q, CHEN C K, et al. Effect of grape seed proanthocyanidin extract on intestine,slaughter performance,lipid metabolism and meat quality of broilers[J]. Journal of Zhejiang University(Agriculture & Life Sciences), 2019, 45(1):119-125. (in Chinese)

[16]
AREND F A, MURDOCH G K, DOUMIT M E, et al. Inclusion of grape pomace in finishing cattle diets:carcass traits,meat quality and fatty acid composition[J]. Animals, 2022, 12(19):2597.

DOI

[17]
田华勤. 葡萄渣提取物和亚麻籽油对湖羊羔羊生产性能和养分消化代谢的影响[D]. 硕士学位论文. 兰州: 甘肃农业大学, 2016.

TIAN H Q. Effects of grape pomace extract and linseed oil on growth performance and nutrient digestibility of Hu lambs[D]. Master’s Thesis. Lanzhou: Gansu Agricultural University, 2016. (in Chinese)

[18]
ALLAMEH A, NIAYESH-MEHR R, ALIARAB A, et al. Oxidative stress in liver pathophysiology and disease[J]. Antioxidants, 2023, 12(9):1653.

DOI

[19]
JI M Y, GONG X, LI X, et al. Advanced research on the antioxidant activity and mechanism of polyphenols from Hippophae species-a review[J]. Molecules, 2020, 25(4):917.

DOI

[20]
GEBICKI J M, NAUSER T. Fast antioxidant reaction of polyphenols and their metabolites[J]. Antioxidants, 2021, 10(8):1297.

DOI

[21]
ZHAO J X, LI Q, ZHANG R X, et al. Effect of dietary grape pomace on growth performance,meat quality and antioxidant activity in ram lambs[J]. Animal Feed Science and Technology, 2018, 236:76-85.

DOI

[22]
JIA R, HOU Y R, FENG W R, et al. Multi-omics analysis to understand the effects of dietary proanthocyanidins on antioxidant capacity,muscle nutrients,lipid metabolism,and intestinal microbiota in Cyprinus carpio[J]. Antioxidants, 2023, 12(12):2095.

DOI

[23]
ALI RAJPUT S, SUN L H, ZHANG N Y, et al. Ameliorative effects of grape seed proanthocyanidin extract on growth performance,immune function,antioxidant capacity,biochemical constituents,liver histopathology and aflatoxin residues in broilers exposed to aflatoxin B1[J]. Toxins, 2017, 9(11):371.

DOI

[24]
MCGILL M R. The past and present of serum aminotransferases and the future of liver injury biomarkers[J]. EXCLI Journal, 2016, 15:817-828.

DOI PMID

[25]
KRESNAMURTI A, RAKHMA D N, DAMAYANTI A, et al. AST/ALT levels,MDA,and liver histopathology of Echinometra mathaei ethanol extract on paracetamol-induced hepatotoxicity in rats[J]. Journal of Basic and Clinical Physiology and Pharmacology, 2021, 32(4):511-516.

DOI

[26]
GHYCZY M, TORDAY C, KASZAKI J, et al. Oral phosphatidylcholine pretreatment decreases ischemia-reperfusion-induced methane generation and the inflammatory response in the small intestine[J]. Shock, 2008, 30(5):596-602.

DOI PMID

[27]
MATSUMOTO K, SHIMMURA S, GOTO E, et al. Lecithin-bound superoxide dismutase in the prevention of neutrophil-induced damage of corneal tissue[J]. Investigative Ophthalmology & Visual Science, 1998, 39(1):30-35.

[28]
ĆWIKLIŃSKA A, GLIWIŃSKA A, SENDEROWSKA Z, et al. Impact of phosphatidylcholine liposomes on the compositional changes of VLDL during lipoprotein lipase (LPL)-mediated lipolysis[J]. Chemistry and Physics of Lipids, 2016, 195:63-70.

DOI PMID

[29]
LEE H S, KIM B K, NAM Y, et al. Protective role of phosphatidylcholine against cisplatin-induced renal toxicity and oxidative stress in rats[J]. Food and Chemical Toxicology, 2013, 58:388-393.

DOI PMID

[30]
OZAKI I, ZHANG H, MIZUTA T, et al. Menatetrenone,a vitamin K2 analogue,inhibits hepatocellular carcinoma cell growth by suppressing cyclin D1 expression through inhibition of nuclear factor kappaB activation[J]. Clinical Cancer Research, 2007, 13(7):2236-2245.

DOI

[31]
VERVOORT L M, RONDEN J E, THIJSSEN H H. The potent antioxidant activity of the vitamin K cycle in microsomal lipid peroxidation[J]. Biochemical Pharmacology, 1997, 54(8):871-876.

PMID

[32]
MYNENI V D, MEZEY E. Immunomodulatory effect of vitamin K2:implications for bone health[J]. Oral Diseases, 2018, 24(1/2):67-71.

DOI

[33]
SIMOPOULOS A P. Omega-3 fatty acids and antioxidants in edible wild plants[J]. Biological Research, 2004, 37(2):263-277.

DOI PMID

[34]
ALI Y M, KADIR A A, AHMAD Z, et al. Free radical scavenging activity of conjugated linoleic acid as single or mixed isomers[J]. Pharmaceutical Biology, 2012, 50(6):712-719.

DOI PMID

[35]
ALAM S I, KIM M W, SHAH F A, et al. Alpha-linolenic acid impedes cadmium-induced oxidative stress,neuroinflammation,and neurodegeneration in mouse brain[J]. Cells, 2021, 10(9):2274.

DOI

[36]
吴金平. 花生四烯酸对Ⅱ期雌性中华鲟性类固醇激素调控的影响及机制分析[D]. 博士学位论文. 荆州: 长江大学, 2022.

WU J P. The analysis of effects and mechanisms of dietary ARA on sex steroid hormone regulation of stage Ⅱ female Chinese sturgeon[D]. Ph.D.Thesis. Jingzhou: Yangtze University, 2022. (in Chinese)

[37]
ZHANG L M, KRISHNAN P, EHRESMAN D J, et al. Editor’s highlight:perfluorooctane sulfonate-choline ion pair formation:a potential mechanism modulating hepatic steatosis and oxidative stress in mice[J]. Toxicological Sciences, 2016, 153(1):186-197.

DOI

[38]
SHEA T B, EKINCI F J, ORTIZ D, et al. Efficacy of vitamin E,phosphatidyl choline,and pyruvate on buffering neuronal degeneration and oxidative stress in cultured cortical neurons and in central nervous tissue of apolipoprotein E-deficient mice[J]. Free Radical Biology & Medicine, 2002, 33(2):276-282.

DOI

文章导航

/