研究论文

高棉籽粕饲料中添加干酪乳杆菌对草鱼生长、免疫和肠道健康的影响

  • 牛文洁 ,
  • 胡毅 ,
  • 陈开健 ,
  • 杨程浩 ,
  • 龙文豪 ,
  • 戴济鸿 , *
展开
  • 湖南农业大学水产学院, 长沙 410128
* 戴济鸿,讲师,硕士生导师,E-mail:

牛文洁(2001—),男,湖南常德人,硕士研究生,研究方向为水产动物营养与饲料。E-mail:

Office editor: 武海龙

收稿日期: 2025-11-30

  网络出版日期: 2026-07-14

基金资助

湖南省自然科学基金青年基金(2023JJ40310)

国家自然科学基金(32403044)

湖南省农业科学院专项基金(HARS-07)

Effects of High Cottonseed Meal Diet Adding Lactobacillus casei on Growth, Immune and Intestinal Health of Grass Carp

  • NIU Wenjie ,
  • HU Yi ,
  • CHEN Kaijian ,
  • YANG Chenghao ,
  • LONG Wenhao ,
  • DAI Jihong , *
Expand
  • College of Fisheries, Hunan Agricultural University, Changsha 410128, China
* lecturer, E-mail:

Received date: 2025-11-30

  Online published: 2026-07-14

摘要

本试验旨在探究高棉籽粕饲料中添加干酪乳杆菌(Lactobacillus casei)对草鱼(Ctenopharyngodon idella)生长性能、血清免疫指标、肝脏抗氧化指标、肠道组织结构和基因表达的影响。选取360尾初始体重为(28.29±0.04) g的草鱼,随机分为3组,每组3个重复,每个重复40尾。对照组(CON组)饲喂以鱼粉和大豆浓缩蛋白为主要蛋白质源的试验饲料,棉籽粕组(CM组)饲喂以棉籽粕完全替代大豆浓缩蛋白的试验饲料,干酪乳杆菌(LC组)在CM组的试验饲料基础上添加1×10⁸ CFU/g的干酪乳杆菌。3组饲料等氮等脂(粗蛋白质水平约为28%,粗脂肪水平约为6%)。试验期8周。结果表明:1)与CON组相比,CM组的增重率和特定生长率显著降低(P<0.05),饲料转化率显著增加(P<0.05);LC组的增重率、特定生长率和饲料转化率差异不显著(P>0.05)。2)与CON组相比,CM组的血清补体3(C3)、补体4(C4)、免疫球蛋白M(IgM)含量和溶菌酶(LZM)活性显著降低(P<0.05);与CM组相比,LC组的血清C3、IgM含量和LZM活性显著增加(P<0.05)。3)与CON组相比,CM组和LC组的肝脏超氧化物歧化酶(SOD)活性和总抗氧化能力(T-AOC)显著提高(P<0.05)。4)与CON组相比,CM组的草鱼肠道绒毛损伤,凋亡和炎症相关基因表达上调,紧密连接蛋白基因表达下调,诱导肠道炎症;与CM组相比,LC组的草鱼肠道屏障完整性得到恢复,肠道炎症缓解。5)与CM组相比,LC组的肠道芽孢杆菌纲(Bacilli)和乳杆菌属(Lactobacillus)相对丰度显著升高(P<0.05)。综上所述,饲料中添加干酪乳杆菌缓解了高棉籽粕饲料对草鱼生长性能、免疫功能、抗氧化能力和肠道健康的不利影响。

本文引用格式

牛文洁 , 胡毅 , 陈开健 , 杨程浩 , 龙文豪 , 戴济鸿 . 高棉籽粕饲料中添加干酪乳杆菌对草鱼生长、免疫和肠道健康的影响[J]. 动物营养学报, 2026 , 38(7) : 5280 -5294 . DOI: 10.12418/CJAN2026.423

Abstract

This experiment was conducted to study the effects of high cottonseed meal diet adding Lactobacillus casei on the growth performance, serum immune indices, liver antioxidant indices, intestinal histological structure and gene expression of grass carp (Ctenopharyngodon idella). A total of 360 grass carp with initial weight of (28.29±0.04) g were randomly divided into 3 groups with 3 replicates per group and 40 fish per replicate. The control group (CON group) was fed an experimental diet which used fish meal and soy protein concentrate as the main protein sources, the cottonseed meal group (CM group) was fed an experimental diet which used cottonseed meal completely replaced soy protein concentrate, and the Lactobacillus casei group (LC group) fed the experimental diet of CM group supplemented with 1×10⁸ CFU/g Lactobacillus casei. Diets in 3 groups were isonitrogenous and isolipidic (crude protein level was about 28%, crude fat level was about 6%). The experimental period was 8 weeks. The results showed as follows: 1) compared with the CON group, the weight gain rate and specific growth rate of CM group were significantly decreased (P<0.05), and feed conversion rate was significantly increased (P<0.05); the weight gain rate, specific growth rate and feed conversion rate were not significant (P>0.05). 2) Compared with the CON group, the serum complement 3 (C3), complement 4 (C4), immunoglobulin M (IgM) contents and lysozyme (LZM) activity of CM group were significantly decreased (P<0.05); compared with the CM group, the serum C3, IgM contents and LZM activity of LC group were significantly increased (P<0.05). 3) Compared with the CON group, the liver superoxide dismutase (SOD) activity and total antioxidant capacity (T-AOC) of CM group and LC group were significantly increased (P<0.05). 4) Compared with the CON group, the intestinal villi in grass carp of CM group were damage, the apoptosis and inflammation related gene expressions were up-regulated, the tight junction protein gene expressions were down-regulated, inducing intestinal inflammation; compared with the CM group, the integrity of intestinal barrier in grass carp of LC group was restored, relieving intestinal inflammation. 5) Compared with the CM group, the relative abundances of Bacilli and Lactobacillus in intestine of LC group were significantly increased (P<0.05). Overall, dietary Lactobacillus casei alleviates the detrimental effects on growth performance, immune function, antioxidant capacity and intestinal health of grass carp by high cottonseed meal diet.

鱼粉作为蛋白质来源,虽营养优势显著,但其高昂成本与有限供应对水产养殖业构成了持续挑战。在此背景下,豆粕因其高蛋白质含量、均衡的氨基酸组成及良好的适口性,成为替代鱼粉的主要植物蛋白质源,并得到广泛应用。然而,我国豆粕产量相对有限,水产养殖业每年对其进口依赖度较高[1]。这一现状凸显出我国作为世界最大水产品生产国,亟需开发其他植物蛋白质原料的迫切性。棉籽粕是棉籽榨油后的副产物,蛋白质含量丰富,适口性较好,已成为全球仅次于豆粕和菜粕的第三大植物蛋白质来源[2]。在我国主要棉花产区如新疆、山东等地,棉籽粕资源丰富[3]。据统计,2023年棉籽国内产量达到1 168.2万t[4]。基于棉籽粕的上述优势以及其资源可获得性,它被认为是一种具有潜力的可持续蛋白质原料,可在水产饲料中部分替代豆粕和鱼粉。
草鱼(Ctenopharyngodon idella)以其鲜嫩的肉质和较高的营养价值成为重要的水产养殖物种。作为我国产量最高的养殖鱼类,2024年草鱼总产量达656.81万t,较上年增长11.23%[5-6]。作为一种草食性鱼类,草鱼配合饲料通常含有较高比例的植物蛋白质,其中豆粕为主要蛋白质来源[7]。在此背景下,以棉籽粕部分替代豆粕,有助于减轻我国对大豆进口的依赖程度。然而,棉籽粕中存在游离棉酚、单宁等抗营养因子,限制了其在水产饲料中的广泛应用[8-9]。研究表明,过高水平的棉籽粕在饲料中会导致草鱼[10-11]、卡特拉鲃(Catla catla)[12]和多鳞鱚(Sillago sihama)[13]等鱼类肠道炎症、氧化应激和免疫降低,损害水产动物的健康,限制了其在水产饲料中的应用。
干酪乳杆菌(Lactobacillus casei)是一种常见益生菌。研究表明,在适宜添加剂量下,干酪乳杆菌可促进多种鱼类生长,保护肠道黏膜屏障并增强免疫功能[14-16]。前期的研究表明,饲料中添加干酪乳杆菌能够提高大菱鲆(Scophthalmus maximus)的生长性能并改善肠道健康[15]。此外,体外试验表明,干酪乳杆菌能够有效缓解棉酚诱导的大菱鲆肠道上皮细胞凋亡,具有缓解棉籽粕对鱼类造成负面作用的潜力[17]。因此,本研究旨在系统评估干酪乳杆菌对摄食高水平棉籽粕饲料草鱼生长、免疫和肠道健康的影响,为改善养殖鱼类健康、提高棉籽粕在饲料中的利用提供理论依据。

1 材料与方法

1.1 伦理声明

本试验获得了湖南农业大学生物医学研究伦理委员会批准,试验参与人员严格遵守道德伦理规范,并按照湖南农业大学生物医学研究伦理委员会制定的规章制度执行,批准号:湖南农业大学伦审科第(121)号。

1.2 试验设计

选取360尾初始体重为(28.29±0.04) g的草鱼,随机分为3组,每组3个重复,每个重复40尾。对照组(CON组)饲喂以鱼粉和大豆浓缩蛋白为主要蛋白质源的试验饲料,棉籽粕组(CM组)饲喂以棉籽粕完全替代大豆浓缩蛋白的试验饲料,干酪乳杆菌(LC组)在CM组的试验饲料基础上添加1×10⁸ CFU/g的干酪乳杆菌。3组饲料等氮等脂(粗蛋白质水平约为28%,粗脂肪水平约为6%)。试验期8周。
所用干酪乳杆菌菌株购自中国工业微生物菌种保藏中心(CICC),菌株保藏编号:CICC 6117,是该菌种的模式菌株。干酪乳杆菌的添加参照Dai等[18]的方法并稍作修改:将活化后的干酪乳杆菌于MRS培养基中扩大培养,收集菌体并重悬于磷酸盐缓冲液(PBS),通过标准曲线校准菌液浓度;随后将菌液均匀喷涂于饲料表面,使终浓度达1×10⁸ CFU/g(每2周补喷菌液以维持活菌数);其他饲料则喷涂等量无菌PBS。
所有饲料原料经粉碎过60目筛,按配比逐步投料,采用V型混合机充分混匀;随后加入豆油并适量加水揉搓均匀,经单螺杆挤压膨化机制成直径2.00 mm颗粒饲料,室温风干后4 ℃贮存。试验饲料组成及营养水平见表1。饲料营养水平参照AOAC(1995)[19]的方法进行测定。
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
组别Groups
CON CM
原料Ingredients
鱼粉Fish meal 6.00 6.00
大豆浓缩蛋白
Soy protein concentrate
32.00
棉籽粕Cottonseed meal 44.00
米糠Rice bran 8.00 8.00
小麦粉Wheat meal 28.00 28.00
玉米干酒糟及其可溶物
Corn DDGS
6.00 6.00
微晶纤维素
Microcrystalline cellulose
2.26 2.54
麦麸Wheat bran 12.00
胆碱Choline 0.20 0.20
豆油Soybean oil 3.00 2.72
磷酸二氢钙Ca(H2PO4)2 1.50 1.50
预混料Premix1) 1.00 1.00
防霉剂Mold inhibitor 0.03 0.03
抗氧化剂Antioxidant 0.01 0.01
合计Total 100.00 100.00
营养水平Nutrient levels2)
干物质Dry matter 92.10 93.09
粗蛋白质Crude protein 28.46 28.55
粗脂肪Crude fat 5.67 5.72

1)每千克预混料包含 One kg of the premix contained the following:Fe 6.0 g,Cu 0.3 g,Mn 1.5 g,Zn 4.0 g,Se 0.02 g,I 0.07 g,Co 0.007 g,VA 375 000 IU,VD3 150 000 IU,VE 4 000 mg,VK3 400 mg,VB1 600 mg,VB2 1 000 mg,VB6 850 mg,VB12 2 mg,烟酸 niacin acid 10 000 mg,叶酸 folic acid 200 mg,肌醇 inositol 12 000 mg,D-生物素 D-biotin 8 mg,D-泛酸钙 D-calcium pantothenate 2 200 mg,VC 14 000 mg。

2)营养水平为实测值。Nutrient levels were measured values.

1.3 饲养管理

试验在常德市西洞庭的水产养殖基地进行。健康活跃的草鱼幼鱼购买自当地养殖场,并在近似试验条件下驯养14 d,此期间投喂CON组的试验饲料。驯养结束后,选取360尾初始均重为(28.29±0.04) g的草鱼,随机分配至9个规格为2.0 m×2.0 m×2.0 m的网箱中,每箱40尾。每日于06:30、12:30和18:30表观饱食投喂3次,日投喂量约为鱼体总重的3.0%。试验期间,水体的关键环境指标维持稳定,平均水温30.2 ℃,氨氮含量0.02 mg/L,亚硝酸盐含量0.01 mg/L,pH 8.3,溶氧量7.3 mg/L。

1.4 样本采集

每重复随机取3尾经麻醉的草鱼,自尾静脉采集血液,于4 ℃静置后离心分离血清,分装后于-80 ℃冻存,用于血清指标分析。每重复随机取3尾经麻醉的草鱼,无菌摘取后肠段组织,经4%中性甲醛固定,用于肠道组织形态观察。每重复随机取3尾经麻醉的草鱼,无菌摘取肝脏和肠道组织,迅速置于液氮中速冻,随后转移至-80 ℃超低温冰箱保存,用于肝脏抗氧化指标和肠道基因表达分析。每重复随机取3尾经麻醉的草鱼,以75%酒精轻拭腹部表面,于酒精灯下无菌采集后肠内容物,置于2 mL无菌离心管中,用于肠道菌群分析。

1.5 指标测定

1.5.1 生长性能

试验结束后,测定每个重复草鱼的终末体重和最终尾数,以评估生长性能。相关指标计算公式如下:
存活率(SR,%)=100×(最终尾数/初始尾数);
增重率(WGR,%)=100×(终末均重-初始均重)/初始均重;
特定生长率(SGR,%/d)=100×[ln(终末均重)-ln(初始均重)]/试验天数;
饲料转化率(FCR)=摄食饲料总量/(终末总体重-初始总体重)。

1.5.2 血清指标

血清酸性磷酸酶(acid phosphatase,ACP)、溶菌酶(lysozyme,LZM)、二胺氧化酶(diamine oxidase,DAO)活性及补体3(complement 3,C3)、补体4(complement 4,C4)、免疫球蛋白M(immunoglobulin M,IgM)、D-乳酸(D-lactic acid,D-LA)含量均采用南京建成生物工程研究所提供的商业试剂盒进行测定,按照说明书进行操作,所用仪器为Thermo-1510型酶标仪(Thermo Fisher Scientific,美国)。

1.5.3 肝脏抗氧化指标

草鱼肝脏组织经过称重,按照重量(g)∶体积(mL)=1∶9的比例加入9倍体积的生理盐水,匀浆进4 ℃、1 160×g离心10 min,吸取上清液存储于-80 ℃。肝脏超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GPX)、过氧化氢酶(catalase,CAT)活性和总抗氧化能力(total antioxidant capacity,T-AOC)以及丙二醛(malondialdehyde,MDA)含量均采用南京建成生物工程研究所提供的商业试剂盒进行测定,按照说明书进行操作,所用仪器为UV-5200型分光光度计(上海元析仪器有限公司)。

1.5.4 肠道组织形态

将草鱼的后肠组织在4%的多聚甲醛溶液中固定24 h,并按照标准组织学程序进行处理,包括脱水、透明和石蜡包埋。采用切片机制备7 μm的组织切片,并用苏木精-伊红(HE)染色法处理。根据既定标准[20],在EX2000型光学显微镜下(重庆中显光电仪器有限公司)进行形态学评估,评估指标包括绒毛高度和融合程度、炎症细胞浸润情况、固有层和黏膜下层的宽度、肠上皮细胞空泡化以及上皮细胞核位置。

1.5.5 肠道基因表达

采用TRIzolTM试剂提取草鱼肠道组织总RNA。取样后在液氮条件下将组织研磨成粉末,后续步骤按试剂盒说明书进行。通过1.2%琼脂糖凝胶电泳评估RNA完整性,使用(Thermo Fisher Scientific,美国)检测其浓度与纯度。随后利用PrimeScriptTM RT试剂盒配合gDNA去除酶进行基因组DNA去除及cDNA合成。实时荧光定量PCR反应体系为20 μL,包含2.5 μL cDNA模板(600 ng/μL),上、下游特异性引物各1 μL,10 μL TB Green PCR Master Mix,5.5 μL焦碳酸二乙酯(DEPC)水。反应程序设置为:95 ℃预变性30 s;95 ℃ 5 s、60 ℃ 30 s,共40个循环。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法计算目的基因[半胱氨酸-天冬氨酸蛋白酶-3(Cas-3)、半胱氨酸-天冬氨酸蛋白酶-7(Cas-7)、半胱氨酸-天冬氨酸蛋白酶-9(Cas-9)、B细胞淋巴瘤-2相关的X蛋白(Bax)、B细胞淋巴瘤-2(Bcl-2)、B细胞淋巴瘤-2相关的死亡促进因子(Bad)、闭合蛋白(Occludin)、封闭蛋白-3(Claudin-3)、封闭蛋白-4(Claudin-4)、肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、干扰素-γ(IFN-γ)、核因子-κB(NF-κB)、转化生长因子-β2(TGF-β2)、κB抑制激酶α(IKKα)]的mRNA相对表达水平。引物序列见表2
表2 引物序列

Table 2 Primer sequences

基因
Genes
上游引物
Forward primer (5'—3')
下游引物
Reverse primer (5'—3')
登录号
Accession number
β-actin GGGCATAACCCTCGTAGAT GGCTGTGCTGTCCCTGTA XM_051886219.1
Cas-3 CATCTGAATGTGGTTTGGCATC GCACAAAAGAGTGATGACGGAG XM_051859990.1
Cas-7 GCCATTACAGGATTGTTTCACC CCTTATCTGTGCCATTGCGT KT_625601.1
Cas-9 TGGCCATTGAGGTAGTTTGTG TACTGAGGCAAACCACAATCG XM_051880869.1
Bax TTTATGGCTGGGGTCACACA CATCTATGAGCGGGTTCGTC XM_051887450.1
Bcl-2 AGGAAAATGGAGGTTGGGAT CTGAGCAAAAAAGGCGATG JQ_713862.1
Bad GTCTCAGGTGTATACAGTCAGCC AGAACGACCTCTGAATGGAAGTC MZ_171243.1
Occludin CCTTTGACGGGTTTTAATGGC GTTTTGGGCTTTATTGTCACCG XM_051910436.1
Claudin-3 ATCACTCGGGACTTCTA CAGCAAACCCAATGTAG KF_193858.1
Claudin-4 ATGTGGAGTGTGTCGGCTT AGACCTTGCACTGCATCTG XM_051877446.1
TNF-α CGCTGCTGTCTGCTTCAC CCTGGTCCTGGTTCACTC XM_051871731.1
IL-1β GAGCACCTCTTCTTCACCAAAC AGCTGCCGATGCAACATG XM_051908150.1
IFN-γ ATGACATATGCCGAGGCCAG CAGGAAGACAGGATGTGCGT JX_657682.1
NF-κB CCGTTTCCTCCTTGAGTTTATC AAAAGCAAGCCAATCACAGG XM_051880333.1
TGF-β2 ATGACCCTCACATTCCTACTGC CCGCATAAAGGTCCTACAAAAC XM_051874929.1
IKKα CGGACCTCGCCATTCATA GGCTACGCCAAAGACCTG XM_051916423.1

β-actin:β-肌动蛋白;Cas-3:半胱氨酸-天冬氨酸蛋白酶-3 cysteine-aspartic acid protease-3;Cas-7:半胱氨酸-天冬氨酸蛋白酶-7 cysteine-aspartic acid protease-7;Cas-9:半胱氨酸-天冬氨酸蛋白酶-9 cysteine-aspartic acid protease-9;Bax:B细胞淋巴瘤-2相关的X蛋白 B-cell lymphoma-2-associated X protein;Bcl-2:B细胞淋巴瘤-2 B-cell lymphoma-2;Bad:B细胞淋巴瘤-2相关的死亡促进因子 B-cell lymphoma-2-associated death promoter;Occludin:闭合蛋白;Claudin-3:封闭蛋白-3;Claudin-4:封闭蛋白-4;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-1β:白细胞介素-1β interleukin-1β;IFN-γ:干扰素-γ interferon-γ;NF-κB:核因子-κB nuclear factor-κB;TGF-β2:转化生长因子-β2 transforming growth factor-β2;IKKα:κB抑制激酶α inhibitor of κB kinase α。表7表9同 the same as Table 7 to Table 9

1.5.6 肠道菌群结构分析

采用OMEGA土壤DNA提取试剂盒(M5635-02,Omega Bio-Tek,美国)对草鱼肠道内容物进行细菌基因组DNA提取。使用引物314F/805R扩增细菌16S rRNA基因的V3~V4高变区,并通过(Thermo Fisher Scientific,美国)(Thermo Fisher Scientific,美国)与1%琼脂糖凝胶电泳对DNA质量进行检测。扩增子测序由上海派森诺生物科技股份有限公司完成,基于Illumina NovaSeq平台进行双端测序,读长为2×250 bp。下机数据经DADA2流程处理,包括质量过滤、去噪、序列合并及嵌合体去除,从而获得高质量有效序列并生成扩增子序列变异(ASVs)。利用MAFFT对ASVs进行多序列比对,并通过FastTree2构建系统发育树。后续数据分析与可视化在QIIME2及R语言环境(v3.2.0)中完成。

1.6 数据处理与分析

统计分析采用SPSS 24.0软件进行。在分析之前,首先评估数据的正态性和方差齐性。使用单因素方差分析(one-way ANOVA)评估组间差异,并随之进行Turkey氏多重比较检验。统计显著性水平设定为P<0.05,结果以平均值±标准误(mean±SE)形式呈现。

2 结果

2.1 高棉籽粕饲料中添加干酪乳杆菌对草鱼生长性能的影响

表3可知,与CON组相比,CM组的增重率和特定生长率显著降低(P<0.05),饲料转化率显著增加(P<0.05);LC组的增重率、特定生长率和饲料转化率差异不显著(P>0.05)。与CM组相比,LC组的增重率和特定生长率有所升高,饲料转化率有所降低,但均差异不显著(P>0.05)。各组之间存活率无显著差异(P>0.05)。
表3 高棉籽粕饲料中添加干酪乳杆菌对草鱼生长性能的影响

Table 3 Effects of high cottonseed meal diet adding Lactobacillus casei on growth performance of grass carp

项目
Items
增重率
WGR/%
特定生长率
SGR/(%/d)
饲料转化率
FCR
存活率
SR/%
组别Groups
CON 315.62±7.28b 2.85±0.03b 1.39±0.03a 92.50±1.44
CM 286.98±5.16a 2.71±0.03a 1.53±0.03b 93.33±2.20
LC 303.09±6.47ab 2.79±0.03ab 1.44±0.03ab 93.33±2.20
PP-value 0.041 0.049 0.039 0.943

同列数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 高棉籽粕饲料中添加干酪乳杆菌对草鱼血清免疫指标的影响

表4可知,与CON组相比,CM组的血清C3、C4、IgM含量和LZM活性显著降低(P<0.05);LC组的血清C3、C4、IgM含量和LZM活性无显著差异(P>0.05)。与CM组相比,LC组的血清C3、IgM含量和LZM活性显著增加(P<0.05),血清C4含量无显著差异(P>0.05)。各组之间血清ACP活性无显著差异(P>0.05)。
表4 高棉籽粕饲料中添加干酪乳杆菌对草鱼血清免疫指标的影响

Table 4 Effects of high cottonseed meal diet adding Lactobacillus casei on serum immune indices of grass carp

项目
Items
补体3
C3/(μg/mL)
补体4
C4/(μg/mL)
免疫球蛋白M
IgM/(μg/mL)
溶菌酶
LZM/(U/mL)
酸性磷酸酶
ACP/(金氏单位/dL)
组别Groups
CON 165.97±11.23b 163.41±6.72b 275.88±5.38b 83.09±4.50b 2.93±0.08
CM 125.97±3.03a 136.43±6.60a 243.45±6.93a 58.19±2.05a 2.61±0.17
LC 172.09±2.33b 160.47±4.82ab 276.95±5.92b 83.06±2.97b 2.83±0.16
PP-value 0.006 0.039 0.013 0.003 0.344

2.3 高棉籽粕饲料中添加干酪乳杆菌对草鱼肝脏抗氧化指标的影响

表5可知,与CON组相比,CM组和LC组的肝脏SOD活性和T-AOC显著提高(P<0.05);CM组的肝脏MDA含量显著增加(P<0.05),肝脏CAT活性无显著差异(P>0.05);LC组的肝脏CAT活性显著提高(P<0.05),肝脏MDA含量无显著差异(P>0.05)。与CM组相比,LC组的肝脏T-AOC和CAT活性显著提高(P<0.05),肝脏MDA含量和SOD活性无显著差异(P>0.05)。各组之间肝脏GPX活性无显著差异(P>0.05)。
表5 高棉籽粕饲料中添加干酪乳杆菌对草鱼肝脏抗氧化指标的影响

Table 5 Effects of high cottonseed meal diet adding Lactobacillus casei on liver antioxidant indices of grass carp

项目
Items
总抗氧化能力
T-AOC/
(U/mg prot)
过氧化氢酶
CAT/
(U/mg prot)
丙二醛
MDA/
(nmol/mg prot)
谷胱甘肽过氧化物酶
GPX/
(U/mg prot)
超氧化物歧化酶
SOD/
(U/mg prot)
组别Groups
CON 3.46±0.18a 22.60±0.30a 4.62±0.17a 238.14±22.04 39.36±3.78a
CM 5.29±0.15b 23.64±0.35a 5.67±0.13b 266.47±13.15 55.64±1.68b
LC 6.49±0.29c 25.13±0.30b 5.09±0.17ab 241.18±18.62 60.52±3.42b
PP-value <0.001 0.004 0.047 0.524 0.007

2.4 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道组织结构的影响

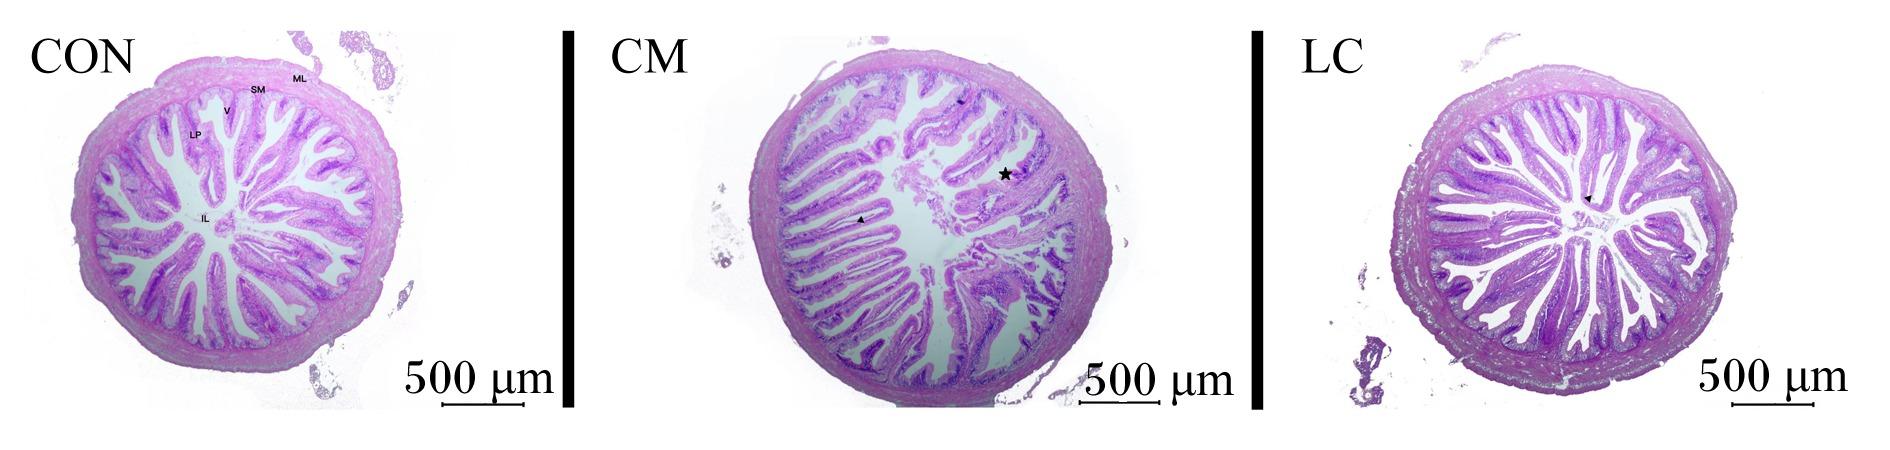
图1可知,组织学检查显示,与CON组相比,CM组的肠道结构遭到了破坏,表现出明显固有层增宽、紊乱且稀疏的绒毛,以及绒毛边缘溶解和破碎的迹象。与CM组相比,LC组的肠道绒毛结构完整、排列紧密,且固有层的宽度与CON组无差异,表明干酪乳杆菌有效维持了肠道结构的完整性。
图1 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道组织结构的影响

V:肠道绒毛;ML:肌肉层;LP:固有层;SM:黏膜下层;IL:肠腔。黑色箭头表示肠道绒毛固有层增宽,★表示肠道绒毛损伤。比例尺:500 μm。V: intestinal villi; ML: muscle layer; LP: lamina propria; SM: submucosa; IL: intestinal lumen. Black arrows indicated thickening of the mucosa lamina propria, ★ indicated damage to intestinal villi. Scale bar: 500 μm.
CON:CON组 CON group;CM:CM组 CM group;LC:LC组 LC group。下图同 the same as below。

Fig.1 Effects of high cottonseed meal diet adding Lactobacillus casei on intestine tissue morphology of grass carp

2.5 高棉籽粕饲料中添加干酪乳杆菌对草鱼血清DAO活性与D-LA含量的影响

表6可知,与CON组相比,CM组的血清DAO活性和D-LA含量显著升高(P<0.05);LC组的血清DAO活性显著升高(P<0.05),血清D-LA含量无显著差异(P>0.05)。与CM组相比,LC组的血清DAO活性和D-LA含量显著降低(P<0.05)。
表6 高棉籽粕饲料中添加干酪乳杆菌对草鱼血清DAO活性与D-LA含量的影响

Table 6 Effects of high cottonseed meal diet adding Lactobacillus casei on serum DAO activity and D-LA content of grass carp

项目
Items
二胺氧化酶
DAO/(U/L)
D-乳酸
D-LA/(mmol/L)
组别Groups
CON 152.55±1.02a 55.41±0.73a
CM 221.17±1.96c 64.29±1.14b
LC 159.56±1.27b 56.26±1.68a
PP-value <0.001 0.004

2.6 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道基因表达的影响

表7可知,与CON组相比,CM组的肠道Cas-7、Cas-9、BaxBad的mRNA相对表达水平显著提高(P<0.05),肠道Bcl-2的mRNA相对表达水平显著降低(P<0.05);LC组的肠道Cas-3、Cas-7、Cas-9、BaxBcl-2和Bad的mRNA相对表达水平无显著差异(P>0.05)。与CM组相比,LC组的肠道Cas-3和Bad的mRNA相对表达水平显著降低(P<0.05),肠道Cas-7、Cas-9、BaxBcl-2的mRNA相对表达水平无显著差异(P>0.05)。
表7 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道凋亡基因表达的影响

Table 7 Effects of high cottonseed meal diet adding Lactobacillus casei on intestinal apoptotic gene expression of grass carp

项目Items Cas-3 Cas-7 Cas-9 Bax Bcl-2 Bad
组别Groups
CON 1.05±0.07ab 0.99±0.04a 0.96±0.02a 0.99±0.04a 1.02±0.03b 1.04±0.03a
CM 1.32±0.07b 1.27±0.05b 1.17±0.04b 1.18±0.04b 0.84±0.05a 1.28±0.04b
LC 0.97±0.09a 1.12±0.02ab 1.03±0.03ab 1.05±0.02ab 0.99±0.03ab 1.07±0.02a
PP-value 0.044 0.046 0.043 0.038 0.039 0.003
表8可知,与CON组相比,CM组的肠道Claudin-3、Claudin-4和Occludin的mRNA相对表达水平显著降低(P<0.05);LC组的肠道Claudin-3、Claudin-4和Occludin的mRNA相对表达水平无显著差异(P>0.05)。与CM组相比,LC组的肠道Claudin-3和Claudin-4的mRNA相对表达水平显著升高(P<0.05)。
表8 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道紧密连接蛋白基因表达的影响

Table 8 Effects of high cottonseed meal diet adding Lactobacillus casei on intestinal tight junction protein gene expression of grass carp

项目Items Claudin-3 Claudin-4 Occludin
组别Groups
CON 0.98±0.05b 1.02±0.03b 1.06±0.03b
CM 0.67±0.04a 0.82±0.04a 0.79±0.09a
LC 1.05±0.04b 1.15±0.08b 1.02±0.02ab
PP-value 0.001 0.010 0.036
表9可知,与CON组相比,CM组的肠道TNF-αIL-1βNF-κBTGF-β2的mRNA相对表达水平显著升高(P<0.05),肠道IKKα的mRNA相对表达水平显著降低(P<0.05);LC组肠道TNF-αIL-1βNF-κBTGF-β2和IKKα的mRNA相对表达水平无显著差异(P>0.05)。与CM组相比,LC组的肠道TNF-αIL-1βNF-κBTGF-β2的mRNA相对表达水平显著降低(P<0.05),肠道IKKα的mRNA相对表达水平显著升高(P<0.05)。各组之间肠道IFN-γ的mRNA相对表达水平无显著差异(P>0.05)。
表9 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道炎症基因表达的影响

Table 9 Effects of high cottonseed meal diet adding Lactobacillus casei on intestinal inflammatory gene expression of grass carp

项目Items TNF-α IL-1β IFN-γ NF-κB TGF-β2 IKKα
组别Groups
CON 1.02±0.03a 1.00±0.04a 1.00±0.06 0.99±0.04a 1.02±0.04a 1.00±0.04b
CM 1.41±0.02b 1.22±0.03b 1.02±0.07 1.19±0.05b 1.35±0.06b 0.87±0.05a
LC 1.12±0.04a 1.06±0.02a 1.01±0.03 1.07±0.02a 1.04±0.04a 1.03±0.06b
PP-value 0.002 0.007 0.966 0.030 0.004 0.003

2.7 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道微生物群组成的影响

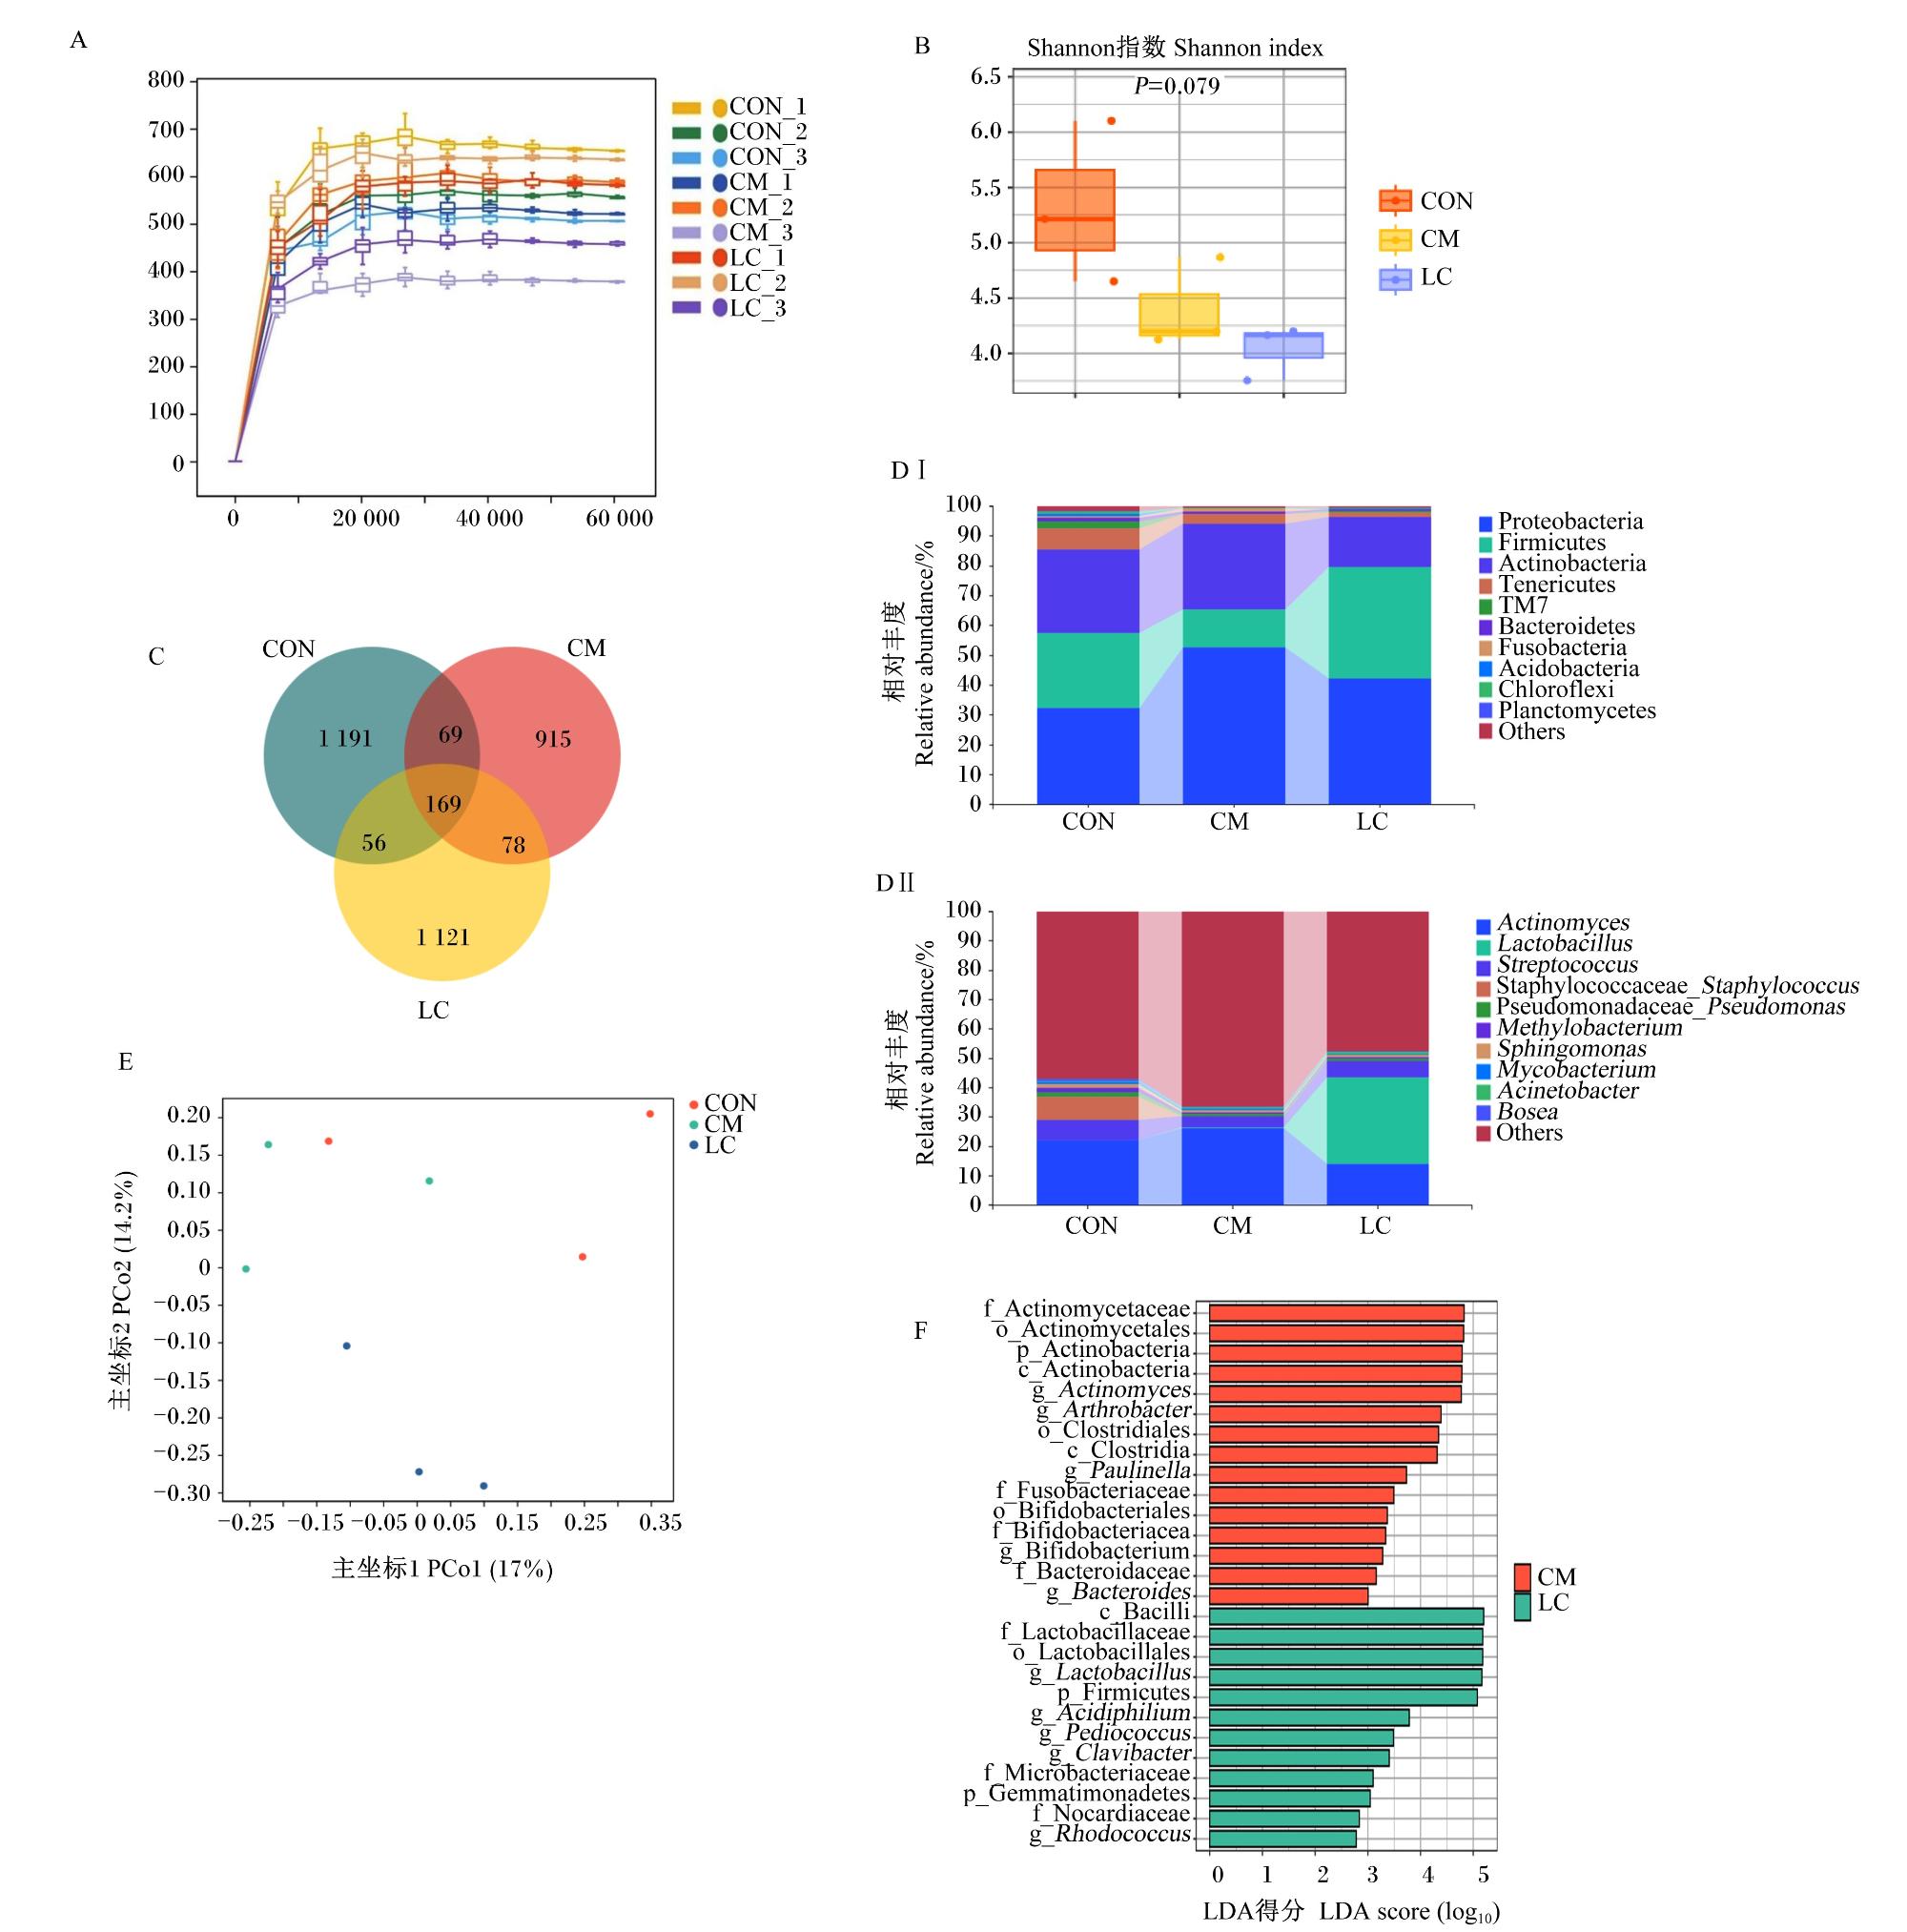
图2可知,稀疏曲线趋于平缓,表明当前测序深度已能够覆盖样本中绝大多数的微生物多样性(图2-A)。香农指数分析显示,与CON组相比,CM组和LC组的肠道微生物多样性均有所降低(图2-B)。维恩图揭示了CON组、CM组和LC组之间共有169个操作分类单元(OTUs),其中CON组有1 191个独特OTUs,CM组有915个独特OTUs,LC组有1 121个独特OTUs(图2-C)。在门水平上,变形菌门(Proteobacteria)、厚壁菌门(Firmicutes)和放线菌门(Actinobacteria)是各组中肠道微生物群的优势菌门;与CON组相比,CM组的厚壁菌门相对丰度降低;与CM组相比,LC组的厚壁菌门相对丰度增加(图2-DⅠ)。在属水平上,放线菌属(Actinomyces)、乳杆菌属(Lactobacillus)、链球菌属(Streptococcus)和葡萄球菌属(Staphylococcus)是各组中肠道微生物群的优势菌属;与CON组和CM组相比,LC组的乳杆菌属相对丰度增加(图2-DⅡ)。基于Bray-Curtis距离的主坐标分析(PCoA)图显示,LC组与CON组和CM组之间明显分离(图2-E)。线性判别分析效应大小(LEfSe)分析显示,与CM组相比,LC组的肠道芽孢杆菌纲(Bacilli)和乳杆菌属相对丰度显著升高(P<0.05)(图2-F)。
图2 高棉籽粕饲料中添加干酪乳杆菌对草鱼肠道微生物组成的影响

主要注释如下 The main notes were as follows。Proteobacteria:变形菌门;Firmicutes:厚壁菌门;Actinobacteria:放线菌门;Tenericutes:软壁菌门;Bacteroidetes:拟杆菌门;Fusobacteria:梭杆菌门;Acidobacteria:酸杆菌门;Chloroflexi:绿弯菌门;Planctomycetes:浮霉菌门;Others:其他;Actinomyces:放线菌属;Lactobacillus:乳杆菌属;Streptococcus:链球菌属;Staphylococcaceae_Staphylococcus:葡萄球菌科-葡萄球菌属;Pseudomonadaceae_Pseudomonas:假单胞菌科-假单胞菌属;Methylobacterium:甲基杆菌属;Sphingomonas:鞘氨醇单胞菌属;Mycobacterium:分枝杆菌属;Acinetobacter:不动杆菌属;Bosea:博赛氏菌属;Bacilli:芽孢杆菌纲;Clostridia:梭菌纲。

Fig.2 Effects of high cottonseed meal diet adding Lactobacillus casei on intestinal microbial composition of grass carp

3 讨论

本研究结果表明,饲料中添加高水平的棉籽粕降低了草鱼的生长性能,具体表现为增重率、特定生长率下降及饲料转化率升高。该结果与前期在草鱼及其他硬骨鱼类中的研究结论一致,进一步证实高棉籽粕饲料对鱼类生长具有抑制作用[21-22]。高水平棉籽粕引起的生长抑制可能归因于其氨基酸组成不平衡及内源性抗营养因子的存在,二者共同作用降低了水产动物对营养物质的消化与吸收效率[23]。干酪乳杆菌的补充有效缓解了由棉籽粕引起的生长性能与饲料利用效率下降。该结果与既有研究相一致。例如,Li等[24]报道指出,干酪乳杆菌可通过提升胰蛋白酶、糜蛋白酶等关键蛋白水解酶的活性,提高饲料蛋白质转化效率。在其研究中,向高植物蛋白质饲料中添加300~600 mg/kg干酪乳杆菌,可使草鱼增重率提高19.09%,饲料转化率降低8.57%。类似的促生长作用也在多种鱼类中被记录,例如,用干酪乳杆菌饲喂56 d后,显著提高了鲫鱼(Carassius auratus)的增重率和特定生长率,同时降低饲料转化率,其机制可能与增强消化酶活性及营养物质吸收有关[25]。此外,在斑马鱼(Danio rerio)中,干酪乳杆菌显著上调了与生长相关基因胰岛素样生长因子-1(IGF-1)和生长激素(GH)的表达[26]。上述研究共同表明,干酪乳杆菌作为一种有效的饲料添加剂,能够改善多种硬骨鱼类的生长性能与饲料转化效率。
本研究表明,与CON组相比,CM组草鱼的血清补体成分(C3、C4)和IgM含量及LZM活性显著降低。有研究表明,高水平棉籽粕的添加会导致青鱼(Mylopharyngodon piceus)血液中红细胞和白细胞数量显著下降,同时C3含量、LZM活性等主要血清免疫指标也会显著降低[27],与本研究结果一致。值得注意的是,干酪乳杆菌的添加有效缓解了这种免疫抑制作用,改善了上述免疫指标。Shi等[28]报道,干酪乳杆菌及其代谢产物可以通过上调关键免疫指标(如C3、C4、IgM含量和LZM活性)来增强非特异性免疫,从而提高对疾病的抵抗力。在斑点叉尾鮰(Ictalurus punctatus)中,干酪乳杆菌的添加显著提高了血清LZM活性[29];在虹鳟(Oncorhynchus mykiss)中,酪乳杆菌的添加则显著提高了血清IgM和黏膜IgM含量[30]。干酪乳杆菌的免疫调节机制可能通过以下2方面实现:其一,其细胞壁组分(如肽聚糖与脂磷壁酸)可与免疫细胞表面的模式识别受体(如Toll样受体)结合,激活下游信号通路,进一步激活先天性与适应性免疫应答[31-32];其二,菌体代谢产物(特别是短链脂肪酸)能够刺激巨噬细胞并促进肝脏补体合成,进而提高全身C3和C4含量[33-34]
T-AOC及CAT、GPX和SOD活性是评价鱼类抗氧化状态的关键指标。T-AOC反映了机体抵抗脂质过氧化的整体能力[2],而CAT、GPX和SOD共同作用以消除氧自由基,减轻活性氧引起的氧化损伤[35]。MDA作为脂质过氧化的最终产物,则是衡量氧化损伤程度的公认标志物[36]。本研究中,与CON组相比,CM组草鱼肝脏抗氧化酶活性增加,可能是由于高水平棉籽粕造成了草鱼氧化应激,鱼体通过增加抗氧化酶活性来抵抗氧化损伤。饲料中添加干酪乳杆菌进一步增强了投喂高水平棉籽粕饲料草鱼的全身抗氧化能力,表现为T-AOC及CAT和SOD活性升高,同时MDA含量降低。这些结果表明,除了增强宿主的抗氧化能力外,干酪乳杆菌在减轻脂质过氧化过程方面也表现出了优越性。本研究结果与多项鱼类研究结论一致,证实了干酪乳杆菌在多种鱼类中的抗氧化作用,例如鲤鱼(Cyprinus carpio)[37]、虹鳟[38]、罗非鱼(Labeo rohita)[39]和真鲷(Pagrus major)[40]。最近,Cai等[41]研究报道,戊糖乳杆菌(Lactobacillus pentosus)的添加显著提升了杂交石斑鱼(Epinephelus fuscoguttatus ♀×E.lanceolatus ♂)的肝脏T-AOC及CAT、GPX和SOD活性,同时降低了MDA含量。干酪乳杆菌的抗氧化机制具有多因素参与的特点:一方面,其可直接分泌SOD[42],以及硫醇、胞外多糖、生物活性肽等具抗氧化活性的代谢物,协助清除自由基并抑制脂质过氧化反应[43];另一方面,干酪乳杆菌能够螯合亚铁离子(Fe2+)、铜离子(Cu2+)等金属离子,从而减少活性氧生成、脂质过氧化及DNA损伤[44-45]。除直接作用外,干酪乳杆菌还可通过调控宿主抗氧化通路,例如上调肠道细胞中谷胱甘肽过氧化物酶基因的表达[46];部分菌株亦可激活核因子E2相关因子2(Nrf2)-Kelch样环氧氯丙烷关联蛋白1(Keap1)-抗氧化反应元件(ARE)信号通路,该信号通路为抗氧化基因表达的核心调控途径,并通过Nrf2介导的机制改善氧化应激状态下的线粒体功能[47]
HE染色结果显示,饲料中添加棉籽粕诱发了草鱼肠道明显的炎性病理反应,其主要组织学特征表现为固有层显著增宽。上述结构异常伴随炎症相关基因表达的上调。病原侵袭与随之激活的炎症反应进一步引起肠上皮细胞凋亡,直接破坏了紧密连接结构的完整性。由此导致的肠道屏障功能受损促进了炎症细胞的迁移,进而放大了炎症级联反应。而在饲料中补充干酪乳杆菌则有效改善了上述组织病理状态,并缓解了肠道炎症反应。具体而言,饲料中添加干酪乳杆菌下调了草鱼肠道组织中NF-κB的表达,表明其抗炎机制涉及抑制NF-κB转录活性及下游过量促炎细胞因子(如TNF-α和IL-1β)的产生。这一抗炎特性在不同试验模型中均得到了验证。例如,乳杆菌属通过增强黏液分泌并降低炎症标志物,减轻了2,4,6-三硝基苯磺酸(TNBS)诱导的斑马鱼肠道炎症症状[13]。同样,在斑马鱼中,使用干酪乳杆菌进行预处理通过下调白细胞介素-8(IL-8)的表达,缓解了由沙门氏菌-志贺氏菌诱导的炎症反应[48]
干酪乳杆菌抑制NF-κB的分子机制可能涉及多条途径:其代谢产物可通过抑制κB抑制激酶β(IκKβ)的活性,阻止核因子-κB抑制蛋白α(IκBα)的磷酸化与降解,从而有效抑制NF-κB p65亚基的核转位[49];细胞壁成分如脂磷壁酸与Toll样受体4(TLR4)竞争性结合,从而抑制由脂多糖(LPS)诱发的TLR4/髓样分化因子88(MyD88)/NF-κB信号通路[50];生态位竞争减少了病原性芽孢杆菌属的定植,导致草鱼肠道内LPS浓度降低25%[51],最终限制了病原体相关分子模式(PAMP)的识别和NF-κB的激活。同时,干酪乳杆菌通过激活5'-磷酸腺苷激活蛋白激酶(AMPK)信号通路增强肠道物理屏障功能,并上调紧密连接蛋白如Occludin和闭锁小带蛋白-1(zonula occluden-1,ZO-1)的表达。在大菱鲆中的研究显示,干酪乳杆菌能缓解棉籽粕引起的上皮细胞凋亡,并逆转紧密连接蛋白下调。肠道屏障功能的改善进一步得到血清生物标志物验证:DAO活性和D-LA含量下降,且其合生元的形式可上调大菱鲆后肠中ZO-1、Claudin-3、Claudin-4和Occludin的表达[17],这与本研究结果一致。该机制在鱼类中具有保守性,如干酪乳杆菌BL23能显著上调斑马鱼肠道中的紧密连接蛋白基因的表达[52],因此,除了前述的抗炎作用,干酪乳杆菌的抗凋亡活性是其保护肠道屏障完整性的另一关键机制。活化的半胱氨酸-天冬氨酸蛋白酶(Caspase)与基质金属蛋白酶可在凋亡过程中直接切割Occludin、ZO-1等紧密连接蛋白[53],因此抑制凋亡有助于维持屏障完整性。前期研究证实干酪乳杆菌能缓解棉酚诱导的大菱鲆肠道上皮细胞凋亡[17]。这种抗凋亡效应与其抗炎机制协同作用:TLR4和NOD样受体的下调抑制NF-κB信号通路,减少促炎细胞因子的释放,从而缓解炎症反应。例如,添加鼠李糖乳杆菌(Lactobacillus rhamnosus)GCC-3改善了草鱼因水霉感染引发的肠道炎症和细胞凋亡,其机制在于抑制TLR4/NF-κB信号级联反应[54]。乳酸菌还可调节凋亡相关基因表达,下调促凋亡因子Bax并上调抗凋亡因子Bcl-2的表达,进而维持细胞稳态[55]
在门水平上,各组后肠黏膜中的优势菌门均为变形菌门、厚壁菌门和放线菌门,这与先前关于草鱼肠道微生物群的结果[56-57]一致。微生物群落分析表明,与CON组相比,CM组草鱼的厚壁菌门相对丰度降低,这一变化可能与棉籽粕饲料中较高的纤维含量有关[58]。已有研究指出,膳食纤维可通过厌氧发酵作为短链脂肪酸的生成底物,降低肠道pH,从而抑制适宜中性或弱碱性环境生长的厚壁菌门[59]。反之,LC组中肠道厚壁菌门相对丰度较CM组回升,主要得益于外源添加的干酪乳杆菌在肠道的优势定植,使其取代放线菌门成为与变形菌门并列的主要门类。香农指数表明,CON组微生物多样性最高,CM组次之,LC组最低。该多样性下降与干酪乳杆菌的相对丰度上升密切相关:因其相对丰度的上升,使得在提升厚壁菌门比例的同时,也压缩了其他类群的生态位,导致群落多样性降低。Bray-Curtis距离主坐标分析进一步支持了该结论,相同饲料组样本明显聚集,而LC组与CON、CM组明显分离,表明干酪乳杆菌的添加重塑了肠道菌群结构,这与观察到的多样性及门水平组成变化相一致。值得注意的是,微生物分析显示LC组的芽孢杆菌纲相对丰度较CM组显著升高。该类杆菌具有独特的芽孢形成能力[60],并能利用干酪乳杆菌在酸性条件下产生的代谢物[61-62]。LC组中乳杆菌属与芽孢杆菌纲的同步富集,证实补充的干酪乳杆菌对肠道微生物组成产生了实质性影响。上述菌群结构的优化与前期观察到的肠道屏障功能增强、免疫指标改善等结果相互呼应,共同说明干酪乳杆菌有助于在LC组中构建更健康的肠道微生态环境。

4 结论

干酪乳杆菌可通过缓解炎症反应、恢复肠道屏障完整性,缓解高棉籽粕饲料对草鱼造成的不良影响。干酪乳杆菌通过调节免疫应答、增强肠道上皮细胞紧密连接及重塑肠道菌群平衡发挥其保护作用,最终提升了饲料利用效率和生长性能,证明了其作为棉籽粕饲料中功能性添加剂的应用潜力。
[1]
MAROUŠKOVÁ A, CUDLÍNOVÁ E. Promising concepts to increase the competitiveness of the insect business in central Europe[J/OL]. Environment,Development and Sustainability,2024,doi:10.1007/s10668-024-05661-8.

[2]
HUANG J N, WEN B, LI X X, et al. Astaxanthin mitigates oxidative stress caused by microplastics at the expense of reduced skin pigmentation in discus fish[J]. Science of the Total Environment, 2023,874:162494.

[3]
张莹, 吴兆海, 卜登攀, 等. 不同来源棉籽粕和菜籽粕有效能值和营养物质表观消化率相关参数研究[J]. 动物营养学报, 2023, 35(7):4706-4718.

ZHANG Y, WU Z H, BU D P, et al. Relevant parameters of effective energy values and nutrient apparent digestibility of cottonseed meal and rapeseed meal from different sources[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4706-4718. (in Chinese)

[4]
LI B W, SU L H, SUN Y, et al. Evaluation of cottonseed meal as an alternative to fish meal in diet for juvenile Asian red-tailed catfish Hemibagrus wyckioides[J]. Aquaculture Nutrition, 2023, 2023(1):1741724.

[5]
HU C J, HUANG Z, LIU H K, et al. A comparison of white muscle quality in grass carp Ctenopharyngodon idellus fed with commercial feeds and barley malt[J]. Fishes, 2025, 10(4):185.

[6]
HOSSAIN M M, ALI M L, KHAN S, et al. Use of Asian watergrass as feed of grass carp[J]. Aquaculture Reports, 2020,18:100434.

[7]
CAO Y Z, XU M W, LU J, et al. Simultaneous microbial fermentation and enzymolysis:a biotechnology strategy to improve the nutritional and functional quality of soybean meal[J]. Food Reviews International, 2024, 40(5):1296-1311.

[8]
LIU Y L, ZHONG L, CHEN T, et al. Dietary sanguinarine supplementation on the growth performance,immunity and intestinal health of grass carp (Ctenopharyngodon idellus) fed cottonseed and rapeseed meal diets[J]. Aquaculture, 2020,528:735521.

[9]
YIN B, LIU H Y, TAN B P, et al. Preliminary study of mechanisms of intestinal inflammation induced by plant proteins in juvenile hybrid groupers (♀Epinephelus fuscoguttatus×♂E. lanceolatu)[J]. Fish & Shellfish Immunology, 2020,106:341-356.

[10]
WANG S, CAI M L, WANG Y, et al. Dietary Clostridium butyricum metabolites mitigated the disturbances in growth,immune response and gut health status of Ctenopharyngodon idella subjected to high cottonseed and rapeseed meal diet[J]. Fish & Shellfish Immunology, 2024,154:109934.

[11]
LIU H C, CHEN S Y, LIN Y, et al. Ferrous ion alleviates lipid deposition and inflammatory responses caused by a high cottonseed meal diet by modulating hepatic iron transport homeostasis and controlling ferroptosis in juvenile Ctenopharyngodon idellus[J]. Antioxidants, 2023, 12(11):1968.

[12]
ASLAM M H, KHAN N, FATIMA M, et al. Strategic replacement of soybean meal with local cotton seed meal on growth performance,body composition,and metabolic health status indicators in the major South Asian carp Catla catla for aquaculture[J]. PLoS One, 2023, 18(12):e0296220.

[13]
NI Y H, ZHANG Y, ZHENG L J, et al. Bifidobacterium and Lactobacillus improve inflammatory bowel disease in zebrafish of different ages by regulating the intestinal mucosal barrier and microbiota[J]. Life Sciences, 2023,324:121699.

[14]
BACHARUDDIN M, FATIMAH, ANDRIYONO S, et al. Effect of Lactobacillus casei FNCC 0090 to improve gastrointestinal bacterial abundance,immune system and water quality in catfish farming[J]. Biodiversitas, 2024, 25(5):2130-2138.

[15]
ALAVINEJAD S S, KAKOOLAKI S, KAZEMPOOR R, et al. Effect of dietary supplementation of potential probiotic Lacticaseibacillus casei on immune-related genes expression,intestinal microbiota and gut histology of zebrafish (Danio rerio) during Aeromonas hydrophila infection[J]. Iranian Journal of Fisheries Sciences, 2023, 22(1):156-177.

[16]
WANG J S, ZHU Z Y, LI R, et al. Impact of supplementary Lactobacillus casei K17 on growth and gut health of largemouth bass Micropterus salmoides[J]. Aquaculture Reports, 2021,20:100734.

[17]
DAI J H, ZHANG Y J, OU W H, et al. Stachyose protects intestinal mucosal barrier via promotion of tight junction and Lactobacillus casei-drived inhibition of apoptosis in juvenile turbot,Scophthalmus maximus L.[J]. Aquaculture, 2022,556:738280.

[18]
DAI J H, YU G J, OU W H, et al. Dietary supplementation of stachyose and Lactobacillus casei improves the immunity and intestinal health of turbot (Scophthalmus maximus. L)[J]. Aquaculture Nutrition, 2021, 27(S1):48-60.

[19]
CUNNIFF P. Official methods of analysis of official analytical chemists international[M]. 16th ed. Arlington: AOAC International,1995.

[20]
KROGDAHL Å, BAKKE-MCKELLEP A M, BAEVERFJORD G. Effects of graded levels of standard soybean meal on intestinal structure,mucosal enzyme activities,and pancreatic response in Atlantic salmon (Salmo salar L.)[J]. Aquaculture Nutrition, 2003, 9(6):361-371.

[21]
SHI Y, ZHONG L, LIU Y X, et al. Gossypol is the main limiting factor in the application of cottonseed meal in grass carp feed production:involvement of growth,intestinal physical and immune barrier,and intestinal microbiota[J]. Water Biology and Security, 2024, 3(4):100287.

[22]
LIU H, DONG X H, TAN B P, et al. Effects of fish meal replacement by low-gossypol cottonseed meal on growth performance,digestive enzyme activity,intestine histology and inflammatory gene expression of silver sillago (Sillago sihama forsskál)(1775)[J]. Aquaculture Nutrition, 2020, 26(5):1724-1735.

[23]
ZHENG X C, LIU B, WANG N, et al. Low fish meal diet supplemented with probiotics ameliorates intestinal barrier and immunological function of Macrobrachium rosenbergii via the targeted modulation of gut microbes and derived secondary metabolites[J]. Frontiers in Immunology, 2022,13:1074399.

[24]
李晋南, 范泽, 吴迪, 等. 高糖饲料中添加益生菌对松浦镜鲤生长性能、肠道消化酶和抗氧化酶活性及免疫基因表达的影响[J]. 动物营养学报, 2023, 35(2):1123-1133.

LI J N, FAN Z, WU D, et al. Effects of adding probiotics in high carbohydrate diet on growth performance,intestinal digestive enzyme and antioxidant enzyme activities and immune-related gene expression of Songpu mirror carp (Cyprinus carpio L.)[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1123-1133. (in Chinese)

[25]
KONG Y D, LI M, TIAN J X, et al. Effects of recombinant Lactobacillus casei on growth performance,immune response and disease resistance in crucian carp,Carassius auratus[J]. Fish & Shellfish Immunology, 2020,99:73-85.

[26]
SAFARI R, IMANPOUR M R, HOSEINIFAR S H, et al. Effects of dietary Lactobacillus casei on the immune,growth,antioxidant,and reproductive performances in male zebrafish (Danio rerio)[J]. Aquaculture Reports, 2022,25:101176.

[27]
HU Y, HUANG Y, FENG F X, et al. Effect of soybean meal replacement by cottonseed meal on growth,feed utilization and some blood physiological/biochemical indices of juvenile black carp,Mylopharyngodon piceus[J]. Aquaculture Research, 2015, 46(10):2490-2500.

[28]
SHI Y, LIU Y X, XIE K, et al. Dietary sanguinarine ameliorates growth impairment and intestinal dysfunction in Ctenopharyngodon idellus fed a high cottonseed meal diet[J]. Aquaculture, 2023,576:739864.

[29]
ZHANG H Y, WANG H B, HU K, et al. Effect of dietary supplementation of Lactobacillus casei YYL3 and L. plantarum YYL5 on growth,immune response and intestinal microbiota in channel catfish[J]. Animals, 2019, 9(12):1005.

[30]
SUN J H, ZHANG M M, ZHAO D D, et al. Immunological effects of recombinant Lactobacillus casei expressing IHNV G protein and rainbow trout (Oncorhynchus mykiss) chemokine CK 6 as an oral vaccine[J]. Frontiers in Immunology, 2022,13:927443.

[31]
VILLENA J, KITAZAWA H. Modulation of intestinal TLR4-inflammatory signaling pathways by probiotic microorganisms:lessons learned from Lactobacillus jensenii TL2937[J]. Frontiers in Immunology, 2014,4:512.

[32]
GALDEANO C M, PERDIGÓN G. The probiotic bacterium Lactobacillus casei induces activation of the gut mucosal immune system through innate immunity[J]. Clinical and Vaccine Immunology, 2006, 13(2):219-226.

[33]
FACCHIN S, BERTIN L, BONAZZI E, et al. Short-chain fatty acids and human health:from metabolic pathways to current therapeutic implications[J]. Life, 2024, 14(5):559.

[34]
GUO W L, CUI S M, TANG X, et al. Intestinal microbiomics and metabolomics insights into the hepatoprotective effects of Lactobacillus paracasei CCFM1222 against the acute liver injury in mice[J]. Probiotics and Antimicrobial Proteins, 2023, 15(5):1063-1077.

[35]
CHOWDHURY S, SAIKIA S K. Oxidative stress in fish:a review[J]. Journal of Scientific Research, 2020, 12(1):145-160.

[36]
PHROMPANYA P, PANASE P, SAENPHET S, et al. Histopathology and oxidative stress responses of Nile tilapia Oreochromis niloticus exposed to temperature shocks[J]. Fisheries Science, 2021, 87(4):491-502.

[37]
ZHANG C N, ZHANG J L, GUAN W C, et al. Effects of Lactobacillus delbrueckii on immune response,disease resistance against Aeromonas hydrophila,antioxidant capability and growth performance of Cyprinus carpio Huanghe var[J]. Fish & Shellfish Immunology, 2017,68:84-91.

[38]
HOSEINIFAR S H, HOSEINI S M, BAGHERI D. Effects of galactooligosaccharide and Pediococcus acidilactici on antioxidant defence and disease resistance of rainbow trout,Oncorhynchus mykiss[J]. Annals of Animal Science, 2017, 17(1):217-227.

[39]
GIRI S S, SUKUMARAN V, SEN S S, et al. Effects of dietary supplementation of potential probiotic Bacillus subtilis VSG1 singularly or in combination with Lactobacillus plantarum VSG3 or/and Pseudomonas aeruginosa VSG2 on the growth,immunity and disease resistance of Labeo rohita[J]. Aquaculture Nutrition, 2014, 20(2):163-171.

[40]
DAWOOD M A O, KOSHIO S, ISHIKAWA M, et al. Effects of dietary supplementation of Lactobacillus rhamnosus or/and Lactococcus lactis on the growth,gut microbiota and immune responses of red sea bream,Pagrus major[J]. Fish & Shellfish Immunology, 2016,49:275-285.

[41]
CAI W S, LI Z H, HUANG W B, et al. Effects of dietary Lactobacillus pentosus supplementation on growth performance,serumbiochemistry and liver function of hybrid grouper (♀Epinephelus fuscoguttatus× ♂Epinephelus lanceolatus) fed with oxidized fish oil diet[J]. Aquaculture Reports, 2025, 42:102736.

[42]
HOFFMANN A, KLENIEWSKA P, PAWLICZAK R. Antioxidative activity of probiotics[J]. Archives of Medical Science, 2021, 17(3):792-804.

[43]
KANMANI P, SATISH KUMAR R, YUVARAJ N, et al. Probiotics and its functionally valuable products-a review[J]. Critical Reviews in Food Science and Nutrition, 2013, 53(6):641-658.

[44]
BRYUKHANOV A L, KLIMKO A I, NETRUSOV A I. Antioxidant properties of lactic acid bacteria[J]. Microbiology, 2022, 91(5):463-478.

[45]
KIM S, LEE J Y, JEONG Y, et al. Antioxidant activity and probiotic properties of lactic acid bacteria[J]. Fermentation, 2022, 8(1):29.

[46]
FINAMORE A, AMBRA R, NOBILI F, et al. Redox role of Lactobacillus casei Shirota against the cellular damage induced by 2,2’-azobis (2-amidinopropane) dihydrochloride-induced oxidative and inflammatory stress in enterocytes-like epithelial cells[J]. Frontiers in Immunology, 2018,9:1131.

[47]
XU C L, QIAO L, MA L, et al. Biogenic selenium nanoparticles synthesized by Lactobacillus casei ATCC 393 alleviate intestinal epithelial barrier dysfunction caused by oxidative stress via Nrf2 signaling-mediated mitochondrial pathway[J]. International Journal of Nanomedicine, 2019,14:4491-4502.

[48]
KAZEMPOUR A, KAZEMPOOR R. The effect of Lacticaseibacillus casei on inflammatory cytokine (IL-8) gene expression induced by exposure to Shigella sonnei in zebrafish (Danio rerio)[J]. Arquivo Brasileiro de Medicina Veterinária e Zootecnia, 2022, 74(2):211-218.

[49]
LIU M L, DING J H, ZHANG H M, et al. Lactobacillus casei LH23 modulates the immune response and ameliorates DSS-induced colitis via suppressing JNK/p-38 signal pathways and enhancing histone H3K9 acetylation[J]. Food & Function, 2020, 11(6):5473-5485.

[50]
SUN K Y, XU D H, XIE C, et al. Lactobacillus paracasei modulates LPS-induced inflammatory cytokine release by monocyte-macrophages via the up-regulation of negative regulators of NF-kappaB signaling in a TLR2-dependent manner[J]. Cytokine, 2017,92:1-11.

[51]
HUO Y, WANG Y H, MA N N, et al. Dietary supplementation of Lactobacillus casei alleviates permethrin exposure-induced zebrafish testis damage through modulation of TLR4/NF-κB and AKT/Nrf2 pathways:oxidative stress,inflammation and ferroptosis[J]. Pesticide Biochemistry and Physiology, 2025,212:106450.

[52]
QIN C B, XIE Y D, WANG Y B, et al. Impact of Lactobacillus casei BL23 on the host transcriptome,growth and disease resistance in larval zebrafish[J]. Frontiers in Physiology, 2018,9:1245.

[53]
BOJARSKI C, WEISKE J, SCHÖNEBERG T, et al. The specific fates of tight junction proteins in apoptotic epithelial cells[J]. Journal of Cell Science, 2004, 117(Pt 10):2097-2107.

[54]
CHEN Z, FENG L, WU P, et al. From growth promotion to intestinal inflammation alleviation:unraveling the potential role of Lactobacillus rhamnosus GCC-3 in juvenile grass carp (Ctenopharyngodon idella)[J]. Fish & Shellfish Immunology, 2024,148:109511.

[55]
WANG J, WANG L, WANG Q, et al. Lacticaseibacillus rhamnosus GG enhances fin regeneration under oxytetracycline exposure via activating Wnt signaling and modulating gut microbiota[J]. Fish & Shellfish Immunology, 2023,142:109155.

[56]
LI Y, LI W, ZHENG H L, et al. Antibiotic resistance and microbiota in the gut of Chinese four major freshwater carp from retail markets[J]. Environmental Pollution, 2019, 255(Pt 2):113327.

[57]
ZHAO X, PACK M. Modeling intestinal disorders using zebrafish[J]. Methods in Cell Biology, 2017,138:241-270.

[58]
WANG L, GAO W J, SHI H W, et al. Effects of replacing fishmeal and soybean protein concentrate with degossypolized cottonseed protein in diets on growth performance,nutrient digestibility,intestinal morphology,cecum microbiome and fermentation of weaned piglets[J]. Animals, 2022, 12(13):1667.

[59]
HUANG Z, BOEKHORST J, FOGLIANO V, et al. Distinct effects of fiber and colon segment on microbiota-derived indoles and short-chain fatty acids[J]. Food Chemistry, 2023,398:133801.

[60]
QI Z Z, ZHANG X H, BOON N, et al. Probiotics in aquaculture of China—current state,problems and prospect[J]. Aquaculture, 2009, 290(1/2):15-21.

[61]
LU S, NA K, LI Y R, et al. Bacillus-derived probiotics:metabolites and mechanisms involved in bacteria-host interactions[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(6):1701-1714.

[62]
BRESSUIRE-ISOARD C, BROUSSOLLE V, CARLIN F. Sporulation environment influences spore properties in Bacillus:evidence and insights on underlying molecular and physiological mechanisms[J]. FEMS Microbiology Reviews, 2018, 42(5):614-626.

文章导航

/