研究论文

饲粮添加后生元对英国短毛猫生长性能、血清指标及粪便微生物群落和代谢物的影响

  • 林慧娴 ,
  • 黄鸿灿 ,
  • 颜佳怡 ,
  • 邓百川 , *
展开
  • 华南农业大学动物科学学院, 广东省动物营养调控重点实验室, 广州 510642
* 邓百川,副教授,硕士生导师,E-mail:

林慧娴(2000—),女,广东梅州人,硕士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 田艳明

收稿日期: 2025-12-25

  网络出版日期: 2026-07-14

基金资助

国家自然科学基金项目(32472927)

广东省饲料产业技术体系(2024CXTD14)

Effects of Dietary Supplementation with Postbiotics on Growth Performance, Serum Indices, and Fecal Microbiota and Metabolites of British Shorthair Cats

  • LIN Huixian ,
  • HUANG Hongcan ,
  • YAN Jiayi ,
  • DENG Baichuan , *
Expand
  • Key Laboratory of Animal Nutrition Regulation of Guangdong Province, College of Animal Science, South China Agricultural University, Guangzhou 510642, China
* associate professor, E-mail:

Received date: 2025-12-25

  Online published: 2026-07-14

摘要

本试验旨在探究饲粮添加后生元对英国短毛猫(下称“英短猫”)生长性能、血清指标及粪便微生物群落和代谢物的影响。选取身体状况良好的12只成年(4~5岁)英短猫,根据性别和初始体重一致原则分为2组,每组6只(公母各占1/2)。对照组饲喂基础饲粮,试验组饲喂基础饲粮+0.5%后生元干粉制剂。预试期7 d,正试期56 d。结果表明:1)与对照组相比,试验组终末体重、平均日采食量、粪便评分、养分表观消化率和血清生化指标均无显著差异(P>0.05)。2)试验第56天,与对照组相比,试验组血清白细胞介素-8含量显著降低(P<0.05),血清过氧化氢酶(CAT)活性有提高趋势(0.05≤P<0.10);与试验第1天相比,试验组试验第56天血清白细胞介素-6含量显著降低(P<0.05),血清CAT活性显著提高(P<0.05)。3)与对照组相比,在门水平上,试验组粪便厚壁菌门相对丰度降低;在属水平上,试验组粪便亮杆菌属、未定级奇异菌科、未定级红蝽菌目和Parvibacter相对丰度显著提高(P<0.05),粪便消化球菌属和不动杆菌属相对丰度显著降低(P<0.05)。4)与试验第1天相比,试验组试验第56天粪便丁酸含量有提高趋势(0.05≤P<0.10),粪便异丁酸和异戊酸含量显著提高(P<0.05);试验第56天,与对照组相比,试验组粪便粪臭素含量显著降低(P<0.05)。5)代谢组学分析表明,与对照组相比,试验组血清原卟啉Ⅸ、西酞普兰、甘油磷酰胆碱和核黄素等显著上调(P<0.05),粪便磷酸羟基丙酮酸和苯并[a]芘-7,8-二醇等显著上调(P<0.05),粪便4-(2-氨基苯基)-2,4-二氧代丁酸等显著下调(P<0.05)。综上所述,饲粮添加0.5%后生元对英短猫生长性能、养分表观消化率和血清生化指标无负面影响,同时能提高机体抗氧化和抗炎能力,调节微生物群落,改善血清和粪便代谢物组成,对肠道健康产生积极影响。

本文引用格式

林慧娴 , 黄鸿灿 , 颜佳怡 , 邓百川 . 饲粮添加后生元对英国短毛猫生长性能、血清指标及粪便微生物群落和代谢物的影响[J]. 动物营养学报, 2026 , 38(7) : 5388 -5404 . DOI: 10.12418/CJAN2026.431

Abstract

This experiment was conducted to explore the effects of dietary supplementation with postbiotics on growth performance, serum indices, and fecal microbiota and metabolites of British shorthair cats. Twelve adult (4 to 5 years old) British shorthair cats in good physical condition were selected and divided into two groups according to the principle of gender and initial weight consistency, with 6 cats in each group (half male and half female). The control group was fed a basal diet, while the experimental group was fed the basal diet+0.5% postbiotics dry powder preparation. The pre-experiment was 7 days and the formal experiment was 56 days. The results showed as follows: 1) compared with the control group, there were no significant differences in the final body weight, average daily feed intake, fecal score, apparent nutrient digestibility and serum biochemical indices in the experimental group (P>0.05). 2) On day 56 of the experiment, compared with the control group, the serum interleukin-8 content in the experimental group was significantly decreased (P<0.05), and the serum catalase (CAT) activity showed an increasing trend (0.05≤P<0.10). Compared with day 1 of the experiment, the serum interleukin-6 content in the experimental group was significantly decreased on day 56 of the experiment (P<0.05), and the serum CAT activity was significantly increased (P<0.05). 3) Compared with the control group, at the phylum level, the Firmicutes relative abundance in feces in the experimental group was decreased; at the genus level, the relative abundances of Leucobacter, norank_f_Atopobiaceae, norank_f_Coriobacteriales_incertae_sedis and Parvibacter in feces in the experimental group were significantly increased (P<0.05), while the relative abundances of Peptococcus and Acinetobacter in feces were significantly decreased (P<0.05). 4) Compared with day 1 of the experiment, the fecal butyric acid content in the experimental group showed an increasing trend on day 56 of the experiment (0.05≤P<0.10), and the contents of fecal isobutyric acid and isovaleric acid were significantly increased (P<0.05). On day 56 of the experiment, compared with the control group, the fecal skatole content in the experimental group was significantly decreased (P<0.05). 5) Metabolomics analysis indicated that compared with the control group, the levels of serum protoporphyrin Ⅸ, citalopram, glycerophosphocholine and riboflavin in the experimental group were significantly upregulated (P<0.05), the levels of fecal phosphohydroxypyruvic acid and benzo[a]pyrene-7,8-diol were significantly upregulated (P<0.05), and the fecal 4-(2-aminophenyl)-2,4-dioxobutanoic acid level was significantly downregulated (P<0.05). In conclusion, dietary supplementation with 0.5% postbiotics has no negative effects on the growth performance, apparent nutrient digestibility and serum biochemical indices of British shorthair cats. At the same time, it can enhance the antioxidant and anti-inflammatory capabilities of the body, regulate the microbiota, improve the composition of serum and fecal metabolites, and have a positive effect on intestinal health.

随着社会的进步以及人们生活质量的提高,宠物健康日益受到关注。肠道作为营养物质吸收和免疫调节的关键器官,其健康状况直接影响猫的整体健康状态。在过去,抗生素常被用来治疗宠物的肠道疾病问题,但在治疗的同时会导致肠道正常微生物群落及其功能被破坏等新的问题[1]。通常情况下,健康猫的肠道以厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、变形菌门(Proteobacteria)、放线菌门(Actinobacteriota)和梭杆菌门(Fusobacteriota)为主导菌群[2],它们可以通过发酵膳食纤维产生短链脂肪酸[3],在调节肠道稳态中发挥重要作用。先前的研究证实,肠道菌群失调可能会引发犬、猫胃肠道疾病,例如炎症性肠病和腹泻等[4-5]。目前市面上益生菌、益生元等在治疗宠物肠道健康问题上应用广泛,它们具有安全无毒、无残留和不产生耐药性等优点。然而,大多数益生菌制剂的成分会随时间的迁移而发生变化,其中可能存在大量死亡或失活的微生物,这些失活的微生物是否会对益生菌功效产生影响尚未得到证实[6]。研究发现,益生菌制剂在停止饲喂后,其效果在犬胃肠道中持久性较低[7]
后生元是一种被定义为“能够为宿主带来健康益处的无生命微生物和/或其成分制剂”,包括灭活菌体细胞、菌体成分和菌体代谢产物[8]。与益生菌(元)相比,后生元更具有稳定性、安全性和保质期长等优点[9]。临床上已经证实,后生元具有抗菌、抗氧化和免疫调节特性,可以作为益生菌和益生元的替代品[10]。目前有相关研究证实,后生元能够通过增加肠道有益菌数量、减少肠道病原体数量及降低腹泻相关代谢物的产生来改善人体慢性腹泻[11]。先前的研究表明,后生元能够减轻葡聚糖硫酸钠(DSS)诱导的炎症小鼠的肠道损伤、结肠炎症和氧化应激,并以剂量依赖性方式调节肠道菌群,缓解炎症性肠病症状[12]。在断奶仔猪饲粮中添加后生元能够增强有益微生物群落的多样性和丰富度,减少肠道绒毛损伤[13]。关于犬的试验结果表明,后生元对粪便代谢物能够产生有益影响,并能够改善粪便稠度,提高粪便微生物群落多样性,对犬胃肠道健康产生积极作用[14-15],但现阶段后生元在猫胃肠道健康中的应用研究仍较为缺乏。因此,本试验旨在探究饲粮添加后生元干粉制剂对成年英国短毛猫(下称“英短猫”)生长性能、血清指标及粪便微生物群落和代谢物的影响,从而评估后生元是否对猫肠道健康产生有益影响。

1 材料与方法

1.1 试验材料

后生元干粉制剂为市购产品,含酿酒酵母(Saccharomyces cerevisiae)ATCC® 727TM、瑞士乳杆菌(Lactobacillus helveticus)ATCC® 521TM、嗜热链球菌(Streptococcus thermophilus)ATCC® 14485TM、菊糖芽孢乳杆菌(Sporolactobacillus inulinus)ATCC® 15538TM、凝结海因德里希氏菌(Heyndrickxia coagulans)ATCC® 7050TM、副干酪乳杆菌(Lacticaseibacillus paracasei)ATCC® 334TM和双歧双歧杆菌(Bifidobacterium bifidum)ATCC® 11863TM,总菌数为9×10⁵ CFU/kg。

1.2 试验设计和饲粮

本试验由华南农业大学实验动物伦理委员会批准(批准号:2025a025)。选取身体状况良好的12只成年(4~5岁)英短猫,根据性别和初始体重一致原则分为2组,每组6只(公母各占1/2)。对照组饲喂基础饲粮,试验组饲喂基础饲粮+0.5%后生元干粉制剂。预试期7 d,正试期56 d。基础饲粮符合美国饲料管理协会(Association of American Feed Control Officials,AAFCO)猫的营养需要标准,为烘焙粮,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
鲜鸡肉Fresh chicken 76.00
鲜鸡肝Fresh chicken liver 12.00
鲜鸡心Fresh chicken heart 5.00
马铃薯全粉Whole potato flour 2.00
三文鱼油Salmon oil 1.00
纤维素Cellulose 1.00
碳酸氢钙Ca(HCO3)2 0.35
亚麻籽粉Flaxseed meal 0.30
苹果Apples 0.20
蓝莓Blueberries 0.20
红薯Sweet potatoes 0.20
胡萝卜Carrots 0.20
南瓜Pumpkins 0.20
天然类固醇Nature steroids1) 0.10
氯化胆碱Choline chloride 0.08
迷迭香提取物Rosemary extract 0.05
西红柿Tomatoes 0.03
蔓越莓粉Cranberries powder 0.03
牛磺酸Taurine 0.06
预混料Premix2) 1.00
合计Total 100.00
营养水平Nutrient levels3)
干物质(风干基础)
Dry matter (air-dry basis)
97.58
粗蛋白质Crude protein 47.28
粗脂肪Ether extract 22.36
粗灰分Crude ash 7.12
粗纤维Crude fiber 2.90
钙Calcium 1.43
总磷Total phosphorus 1.03
水溶性氯化物Water-soluble chloride 0.58
牛磺酸Taurine 0.43

1)天然类固醇源自丝兰。Natural steroids were derived from yucca。

3)营养水平为实测值。Nutrient levels were measured values.

2)每千克预混料含有 One kilogram of the premix contained the following:VA 5 000 000 IU,VD3 1 000 000 IU,VE 20 000 IU,VB1 8 000 mg,VB2 1 200 mg,VB6 6 000 mg,VB12 30 mg,烟酸 nicotinic acid 30 000 mg,叶酸 folic acid 1 200 mg,泛酸钙 calcium pantothenate 80 000 mg,D-生物素 D-biotin 300 mg,生物锌 bio-zinc 60 000 mg,铜蛋白 copper protein 3 000 mg,铁蛋白 ferritin 45 000 mg,酵母硒 selenium yeast 25 000 mg。

1.3 饲养管理

所有试验猫在试验前已进行必要的免疫和驱虫处理,并在试验开始前1个月内没有接受任何可能影响肠道菌群结构和功能的药物,如抗生素、抗真菌药物,或其他已知可干扰肠道微生物稳态的药剂。试验期间,每只试验猫被单独饲养在猫笼(1.2 m×0.7 m×0.6 m)中,置于恒温恒湿(温度23~25 ℃,相对湿度40%~60%)环境,每天08:30放置80 g饲粮供其自由采食,并保证动物自由饮用干净的水;每天打扫卫生和消毒,保持宠物圈舍内的清洁,并保证试验猫在非喂食时间内能够与人互动1 h。

1.4 测定指标及方法

1.4.1 饲粮营养水平

饲粮干物质、粗蛋白质、粗脂肪、粗灰分、粗纤维、钙、总磷、水溶性氯化物和牛磺酸含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 6438—2007、GB/T 6434—2022、GB/T 6436—2018、GB/T 6437—2018、GB/T 6439—2023和农业部2483号公告-5—2016中方法进行测定。

1.4.2 生长性能

每天早上记录所有试验猫的日采食量和粪便评分,计算平均日采食量(ADFI),其中粪便评分采取5分制进行[16];分别于正试期第1天和第56天对试验猫进行空腹称重。

1.4.3 养分表观消化率

试验期间,收集200 g饲粮样品,置于干燥器中保存待测;于正试期最后4 d,收集试验猫所有粪便,加入10%盐酸进行固氮,65 ℃恒温烘干48 h,回潮24 h,粉碎过40目筛得到粪便待测样品,用于养分表观消化率的测定。养分表观消化率计算公式如下:
某养分表观消化率(%)=100×(食入饲粮该养分含量-排出粪便该养分含量)/食入饲粮该养分含量。

1.4.4 血液样本收集和指标测定

1.4.4.1 血液样本收集

分别于正试期第1天和第56天,对所有试验猫进行空腹采血。采血方法为从前肢静脉采血,用普通采血管收集3 mL血液,静置30 min后进行离心,离心力为860×g,离心时间为15 min;离心后小心吸取上层血清,分装到微量离心管中,并储存于-80 ℃以进行血清指标的分析[17]

1.4.4.2 血清生化指标

血清样品在4 ℃条件下进行解冻,采用试剂盒(成都斯马特科技股份有限公司)测定血清总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、天冬氨酸转氨酶(AST)、丙氨酸转氨酶(ALT)、淀粉酶(AMY)、肌酸激酶(CK)、肌酐(CREA)、尿素氮(UN)、葡萄糖(GLU)、钙和磷含量或活性,并计算白球比(A/G)和尿素氮/肌酐(UN/CR)值;每个试剂盘内加入100 μL血清,采用犬猫专用全自动生化分析仪[SMT-120VP,斯马特诊断技术(成都)有限公司]获取数据。

1.4.4.3 血清抗氧化和炎症指标

采用试剂盒(南京建成生物工程研究所)测定血清过氧化氢酶(CAT)活性和一氧化氮(NO)含量。取100 μL血清样品加入配有200 μL试剂1的试剂盒并充分混匀,然后加入100 μL试剂2,涡旋充分混匀后静置10 min,在136×g下离心15 min,取上清液160 μL。设置空白孔、标准孔和测定孔,分别加入0.16 mL双蒸水、20 μmol/L亚硝酸盐钠标准液和上清液,然后每孔加入显色剂0.08 mL,混匀后静置15 min,最后采用酶标仪(VarioskanTM LUX,Thermo Fisher Scientific,美国)在550 nm波长处测定各孔吸光度(OD)值。
采用猫酶联免疫吸附测定(ELISA)试剂盒(江苏酶免实业有限公司)测定血清白细胞介素-6(IL-6)、白细胞介素-8(IL-8)、白细胞介素-10(IL-10)和免疫球蛋白G(IgG)含量。试剂盘在室温平衡20 min后从铝箔中取出,设置标准品孔和样品孔;标准品孔内加入50 μL标准品,样品孔先加入10 μL待测样品,再加入40 μL样本稀释液;随后所有孔内加入辣根过氧化物酶标记的检测抗体100 μL,用封板膜封住反应孔,在37 ℃恒温箱中培育60 min;培育结束后,弃去液体,在吸水纸上拍干,每孔加满洗涤液,静置1 min,甩去洗涤液,在吸水纸上拍干,如此反复洗板5次;随后每孔加入底物A、底物B各50 μL,37 ℃避光孵育15 min;最后每孔加入50 μL终止液,在15 min内采用酶标仪(VarioskanTM LUX Thermo Fisher Scientific,美国)在450 nm波长处测定各孔OD值。

1.4.4.4 血清代谢物

血清样品在4 ℃条件下解冻后,涡旋2 min使其充分均质;每组取200 μL血清样本于无菌无酶EP管中,加入800 μL甲醇(冷冻,色谱级)除去蛋白,涡旋2 min,随后在4 ℃、14 120×g条件下离心15 min;离心后取上清液1 000 μL,真空离心6 h吹干,吹干后加入200 μL甲醇∶水=1∶1(体积比,色谱级)复溶,涡旋2 min,冰浴超声10~15 min后,在4 ℃、14 120×g条件下离心15 min;最后取上清液经0.22 μm微孔滤膜过滤后,加入带有内衬管的进样瓶中,采用液相色谱-串联质谱(LC-MS/MS)法进行分析。

1.4.5 粪便样本采集及分析

1.4.5.1 粪便发酵产物

分别于正试期第1天和第56天,收集每只试验猫的新鲜粪便样本(排便后15 min内)。准确称取0.2 g湿粪于2 mL离心管中,加入1 mL超纯水,涡旋混匀5 min,冰浴超声10 min,然后在4 ℃、11 350×g条件下离心10 min;将上清液全部倒入新的2 mL离心管中,加入20 μL 25%偏磷酸和0.25 g无水硫酸钠,涡旋混匀1 min进行酸化及盐析;再加入1 mL甲基叔丁基醚,涡旋混匀5 min,在4 ℃、11 350×g条件下离心10 min,收集上层甲基叔丁基醚萃取液,用0.22 μm微孔滤膜过滤后加入带有内衬管的进样瓶中,采用液相色谱-质谱(LC-MS)法测定短链脂肪酸、粪臭素和吲哚含量。

1.4.5.2 粪便代谢物

于正试期第56天,收集每只试验猫的新鲜粪便样本(排便后15 min内)。冰冻的粪便样本在4 ℃下解冻,准确称取60 mg湿粪于2 mL离心管中,加入600 μL甲醇去除蛋白,振荡混匀5 min(涡旋),4 ℃冰浴超声10 min后,在-20 ℃下放置 30 min;然后将样品在4 ℃、14 120×g条件下离心15 min,吸取200 μL上清液真空离心3 h,在常温下用氮气吹干;吹干后再加入200 μL甲醇∶水=1∶1(体积比)复溶,振荡混匀2 min,4 ℃冰浴超声10 min,在4 ℃、14 120×g条件下离心15 min;收集上清液用0.22 μm微孔滤膜过滤后,加入带有内衬管的进样瓶中,采用LC-MS/MS法进行分析。

1.4.5.3 粪便微生物16S rRNA基因测序

于正试期第56天,收集每只试验猫的新鲜粪便样本(排便后15 min内)。采用十六烷基三甲基溴化铵(CTAB)法对样本进行微生物组总DNA的提取,通过琼脂糖凝胶电泳检测DNA提取的质量,同时采用紫外分光光度法对DNA进行定量。扩增V3~V4区域片段使用的引物序列为338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCAAAT-3')。依据PCR反应体系(25 μL)和反应条件,对引物进行PCR扩增,通过2%琼脂糖凝胶电泳对PCR扩增产物进行检测。PCR程序如下:98 ℃预变性30 s;98 ℃ 10 s、54 ℃ 30 s、72 ℃ 45 s,共32个循环;最后72 ℃延伸10 min。PCR产物经AMPure XP磁珠(Beckman Coulter,美国)纯化、Qubit精确定量后,采用Illumina文库定量试剂盒(Kapa Biosystems,美国)质检,浓度在2 nmol/L以上为合格的文库浓度。测序由上海美吉生物医药科技有限公司完成,平台为Illumina NextSeq 2000。所有数据分析均在上海美吉生物医药科技有限公司云平台上进行。

1.5 数据统计分析

试验原始数据采用Excel 2019进行初步处理,然后采用SPSS 20软件进行独立样本t检验,结果数据采用“平均值±标准误”形式表示,P<0.05表示显著差异,0.05≤P<0.10表示差异具有显著趋势;采用GraphPad Prism 10.0软件进行图形绘制。

2 结果与分析

2.1 饲粮添加后生元对英短猫生长性能的影响

表2可知,与对照组相比,试验组英短猫终末体重、ADFI和粪便评分均无显著差异(P>0.05),表明饲粮添加后生元对英短猫生长性能无显著影响。
表2 饲粮添加后生元对英短猫生长性能的影响

Table 2 Effects of dietary supplementation with postbiotics on growth performance of British shorthair cats

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
初始体重Initial BW/kg 4.78±0.57 4.62±0.60 0.850
终末体重Final BW/kg 5.23±0.59 4.72±0.60 0.561
平均日采食量ADFI/g 60.57±12.44 52.99±15.64 0.375
粪便评分Fecal score 3.05±0.06 3.02±0.03 0.621

2.2 饲粮添加后生元对英短猫养分表观消化率的影响

表3可知,与对照组相比,试验组英短猫干物质、粗蛋白质、粗脂肪和有机物表观消化率均无显著差异(P>0.05),表明饲粮添加后生元对养分表观消化率无显著影响。
表3 饲粮添加后生元对英短猫养分表观消化率的影响

Table 3 Effects of dietary supplementation with postbiotics on nutrient apparent digestibility of British shorthair cats %

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
干物质DM 76.80±5.99 78.15±5.41 0.692
粗蛋白质CP 84.88±3.93 84.58±4.32 0.907
粗脂肪EE 89.44±5.13 93.81±2.44 0.124
有机物OM 83.12±4.68 84.15±3.70 0.680

2.3 饲粮添加后生元对英短猫血清生化指标的影响

表4可知,在试验开始和结束时,与对照组相比,试验组英短猫各血清生化指标均无显著差异(P>0.05)。
表4 饲粮添加后生元对英短猫血清生化指标的影响

Table 4 Effects of dietary supplementation with postbiotics on serum biochemical indices of British shorthair cats

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
第1天Day 1
总蛋白TP/(g/L) 78.63±4.10 72.00±1.84 0.171
白蛋白ALB/(g/L) 30.73±2.07 27.73±2.16 0.340
球蛋白GLB/(g/L) 47.90±3.76 44.23±3.17 0.414
白球比A/G 0.67±0.07 0.66±0.10 0.958
天冬氨酸转氨酶AST/(U/L) 35.67±10.30 21.83±6.02 0.273
丙氨酸转氨酶ALT/(U/L) 55.17±6.98 66.50±20.43 0.611
淀粉酶AMY/(U/L) 829.00±62.68 845.83±63.44 0.854
肌酸激酶CK/(U/L) 185.17±49.36 176.50±47.10 0.901
肌酐CREA/(μmol/L) 103.80±12.67 102.02±11.34 0.919
尿素氮UN/(mmol/L) 7.47±0.55 6.08±0.45 0.080
尿素氮/肌酐UN/CR 81.71±18.46 62.07±5.69 0.333
葡萄糖GLU/(mmol/L) 5.04±0.91 3.50±0.43 0.137
钙Ca/(mmol/L) 2.18±0.16 2.09±0.08 0.632
磷P/(mmol/L) 1.84±0.15 1.83±0.08 0.947
第56天Day 56
总蛋白TP/(g/L) 78.15±2.31 77.48±2.71 0.855
白蛋白ALB/(g/L) 30.58±1.33 28.53±1.57 0.343
球蛋白GLB/(g/L) 47.58±3.44 48.95±4.04 0.802
白球比A/G 0.66±0.06 0.62±0.09 0.667
天冬氨酸转氨酶AST/(U/L) 15.83±3.40 19.50±4.60 0.536
丙氨酸转氨酶ALT/(U/L) 48.00±5.59 61.00±18.85 0.523
淀粉酶AMY/(U/L) 713.83±27.61 717.70±45.76 0.944
肌酸激酶CK/(U/L) 169.50±51.12 220.80±90.09 0.631
肌酐CREA/(μmol/L) 120.28±4.49 116.30±8.20 0.682
尿素氮UN/(mmol/L) 7.98±0.51 6.83±0.51 0.143
尿素氮/肌酐UN/CR 66.58±4.31 60.03±5.93 0.393
葡萄糖GLU/(mmol/L) 3.99±0.22 4.02±0.13 0.908
钙Ca/(mmol/L) 2.16±0.07 2.19±0.07 0.809
磷P/(mmol/L) 1.94±0.13 2.00±0.06 0.675

2.4 饲粮添加后生元对英短猫血清抗氧化和炎症指标的影响

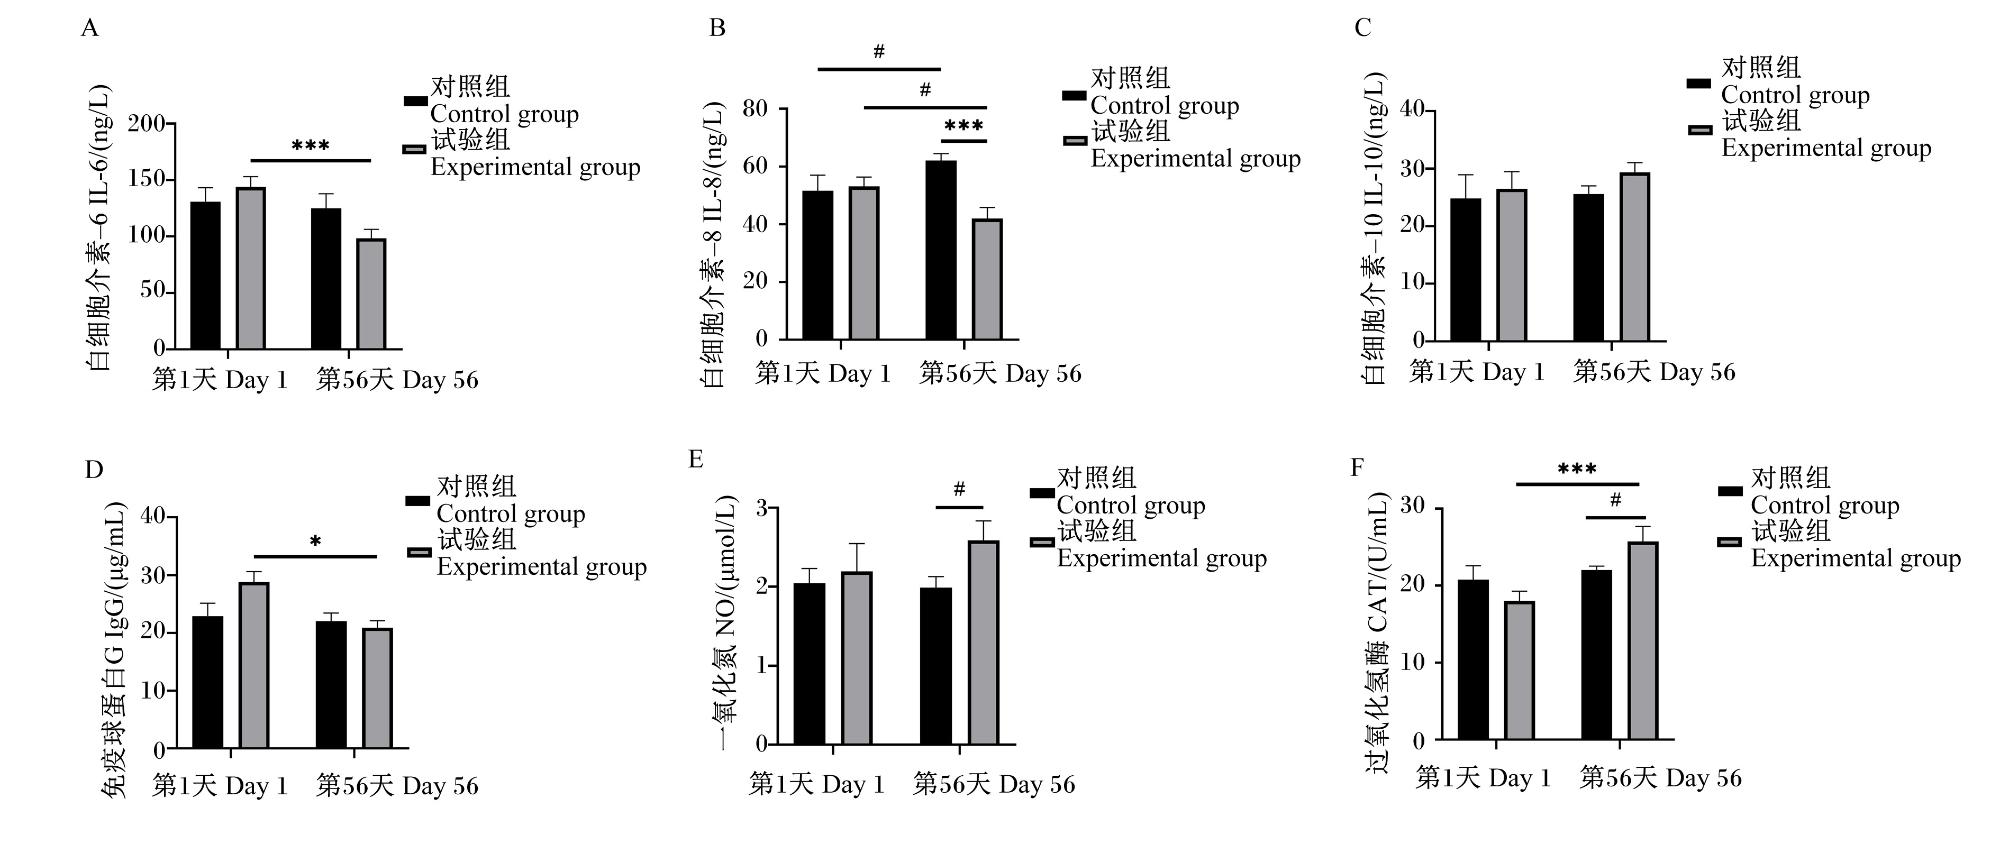
图1所示,试验第56天,与对照组相比,试验组英短猫血清IL-8含量显著降低(P<0.05),血清NO含量和CAT活性有提高趋势(0.05≤P<0.10)。与试验第1天相比,对照组试验第56天血清IL-8含量有提高趋势(0.05≤P<0.10);试验组试验第56天血清IL-6和IgG含量显著降低(P<0.05),血清IL-8含量有降低趋势(0.05≤P<0.10),血清CAT活性显著提高(P<0.05)。
图1 饲粮添加后生元对英短猫血清抗氧化和炎症指标的影响

#表示0.05≤P<0.10,*表示P<0.05,**表示P<0.01,***表示P<0.001。图4图5同。

Fig.1 Effects of dietary supplementation with postbiotics on serum antioxidant and inflammatory indices of British shorthair cats

# indicated 0.05≤P<0.10, * indicated P<0.05, ** indicated P<0.01, and *** indicated P<0.001. The same as Fig.4 and Fig.5.

2.5 饲粮添加后生元对英短猫血清代谢物的影响

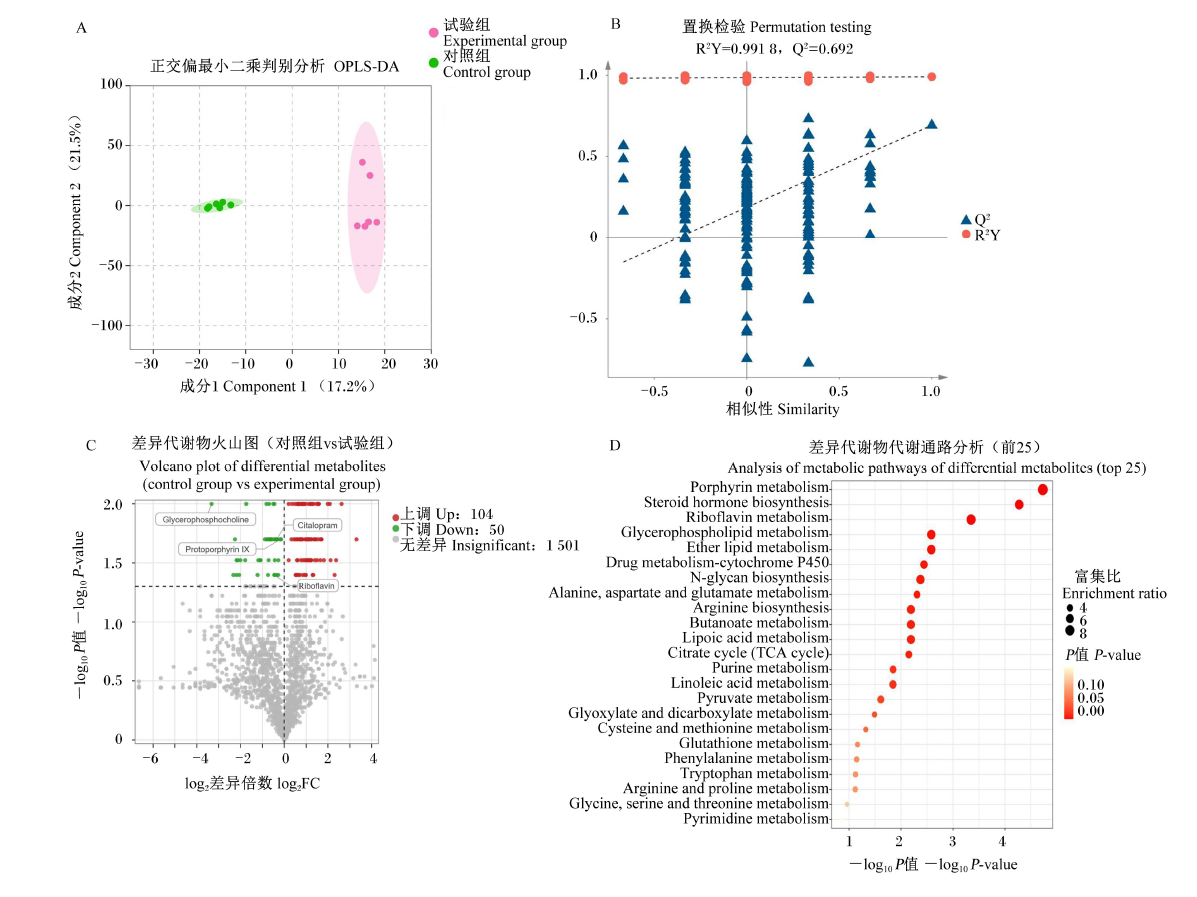
图2-A所示,正交偏最小二乘判别分析(OPLS-DA)结果表明,对照组与试验组之间英短猫血清代谢物明显分离。如图2-B所示,置换检验的Q2=0.692、R2Y=0.991,表明OPLS-DA模型具有较高的精确度。如图2-C所示,以变量重要性投影(VIP)值>1、P<0.05为标准筛选2组间血清差异代谢物,结果发现与对照组相比,试验组血清有104个代谢物下调,50个代谢物上调。如图2-D所示,京都基因与基因组百科全书(KEGG)代谢通路富集分析结果表明,血清差异代谢物显著富集在17条代谢通路(P<0.05),包括卟啉代谢、类固醇激素生物合成、核黄素代谢、甘油磷脂代谢、醚酯代谢、药物代谢-细胞色素P450、N-聚糖生物合成以及丙氨酸、天冬氨酸和谷氨酸代谢等。
图2 饲粮添加后生元对英短猫血清代谢物的影响

Glycerophosphocholine:甘油磷酰胆碱;Citalopram:西酞普兰;Protoporphyrin Ⅸ:原卟啉Ⅸ;Riboflavin:核黄素;Porphyrin metabolism:卟啉代谢;Steroid hormone biosynthesis:类固醇激素生物合成;Riboflavin metabolism:核黄素代谢;Glycerophospholipid metabolism:甘油磷脂代谢;Ether lipid metabolism:醚酯代谢;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;N-glycan biosynthesis:N-聚糖生物合成;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;Arginine biosynthesis:精氨酸生物合成;Butanoate metabolism:丁酸代谢;Lipoic acid metabolism:硫辛酸代谢;Citrate cycle (TCA cycle):柠檬酸循环(三羧酸循环);Purine metabolism:嘌呤代谢;Linoleic acid metabolism:亚油酸代谢;Pyruvate metabolism:丙酮酸代谢;Glyoxylate and dicarboxylate metabolism:乙醛酸和二羧酸代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Glutathione metabolism:谷胱甘肽代谢;Phenylalanine metabolism:苯丙氨酸代谢;Tryptophan metabolism:色氨酸代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Pyrimidine metabolism:嘧啶代谢。

Fig.2 Effects of dietary supplementation with postbiotics on serum metabolites of British shorthair cats

2.6 饲粮添加后生元对英短猫粪便微生物群落的影响

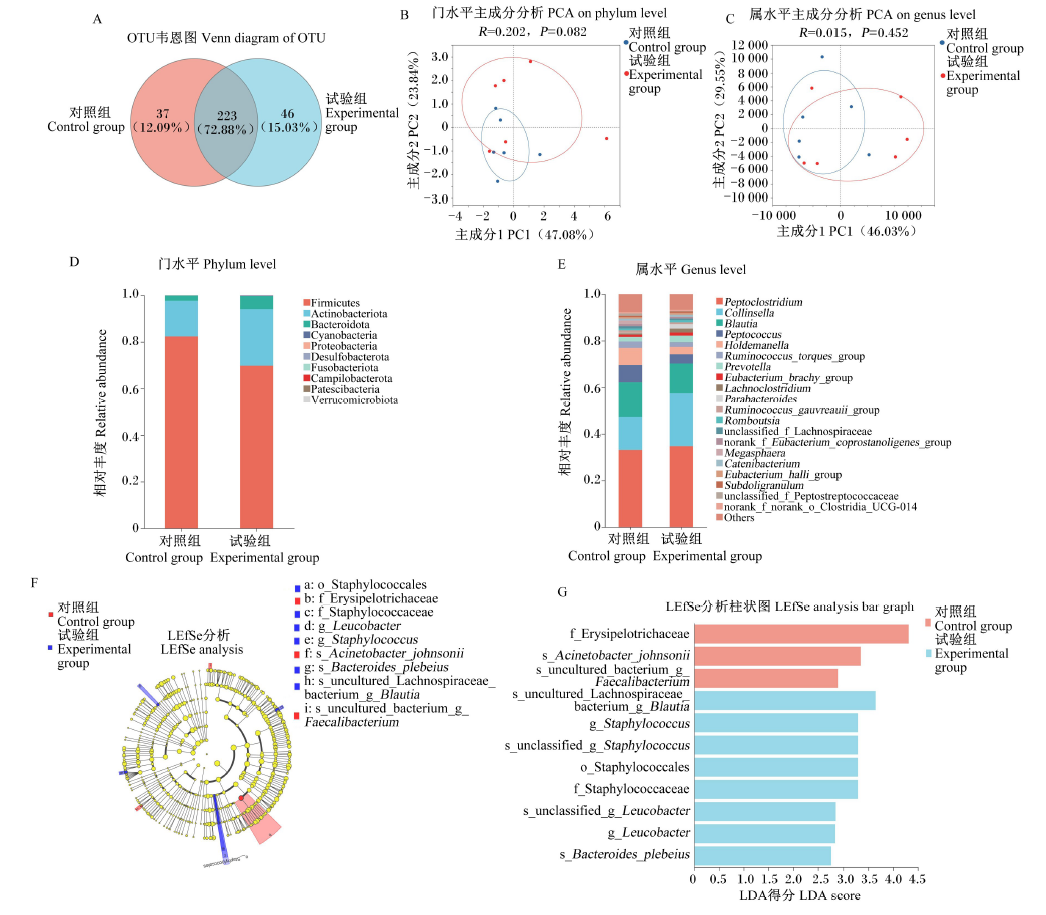
图3-A所示,操作分类单元(OTU)韦恩图显示,2组英短猫粪便微生物群落共有223个OTU,对照组和试验组分别独有37和46个OTU。如图3-B图3-C所示,基于加权UniFrac距离的主成分分析(PCA)结果显示,2组粪便微生物群落在门和属水平上存在明显分离。如图3-D所示,在门水平上,2组粪便微生物群落均以厚壁菌门、放线菌门和拟杆菌门为主;其中,与对照组相比,试验组粪便厚壁菌门相对丰度降低,粪便放线菌门和拟杆菌门相对丰度提高。如3-E所示,在属水平上,2组粪便微生物群落优势菌属为消化梭菌属(Peptoclostridium)、柯林斯氏菌属(Collinsella)和布劳特氏菌属(Blautia)等。如图3-F图3-G所示,线性判别分析(LDA)效应大小(LEfSe)分析结果表明,丹毒丝菌科(Erysipelotrichaceae)在对照组中最为丰富,布劳特氏菌属在试验组中最为丰富。
图3 饲粮添加后生元对英短猫粪便微生物群落的影响

Firmicutes:厚壁菌门;Actinobacteriota:放线菌门;Bacteroidota:拟杆菌门;Cyanobacteria:蓝细菌门;Proteobacteria:变形菌门;Desulfobacterota:脱硫杆菌门;Fusobacteriota:梭杆菌门;Campilobacterota:弯曲杆菌门;Patescibacteria:髌骨菌门;Verrucomicrobiota:疣微菌门;Peptoclostridium:消化梭菌属;Collinsella:柯林斯氏菌属;Blautia:布劳特氏菌属;Peptococcus:消化球菌属;Holdemanella:霍尔德曼氏菌属;Ruminococcus_torques_group:瘤胃球菌属扭链群;Prevotella:普雷沃氏菌属;Eubacterium_brachy_group:短真杆菌群;Lachnoclostridium:乳梭菌属;Parabacteroides:副拟杆菌属;Ruminococcus_gauvreauii_group:高夫氏瘤胃球菌群;Romboutsia:罗姆布茨菌属;unclassified_f_Lachnospiraceae:未分类毛螺菌科;norank_f_Eubacterium_coprostanoligenes_group:未定级产粪甾醇真杆菌群;Megasphaera:巨球型菌属;Catenibacterium:链型杆菌属;Eubacterium_halli_group:霍氏真杆菌群;Subdoligranulum:罕见小球菌属;unclassified_f_Peptostreptococcaceae:未分类消化链球菌科;norank_f_norank_o_Clostridia_UCG-014:未定级梭菌纲UCG-014;Others:其他;Staphylococcales:葡萄球菌目;Erysipelotrichaceae:丹毒丝菌科;Staphylococcaceae:葡萄球菌科;Leucobacter:亮杆菌属;Staphylococcus:葡萄球菌属;Acinetobacter_johnsonii:约氏不动杆菌属;Bacteroides_plebeius:普通拟杆菌;uncultured_Lachnospiraceae_bacterium_g_Blautia:未培养毛螺菌科细菌布劳特氏菌属;uncultured_bacterium_g_Faecalibacterium:未培养细菌粪杆菌属;unclassified_g_Staphylococcus:未分类葡萄球菌属;unclassified_g_Leucobacter:未分类亮杆菌属。

Fig.3 Effects of dietary supplementation with postbiotics on fecal microbiota of British shorthair cats

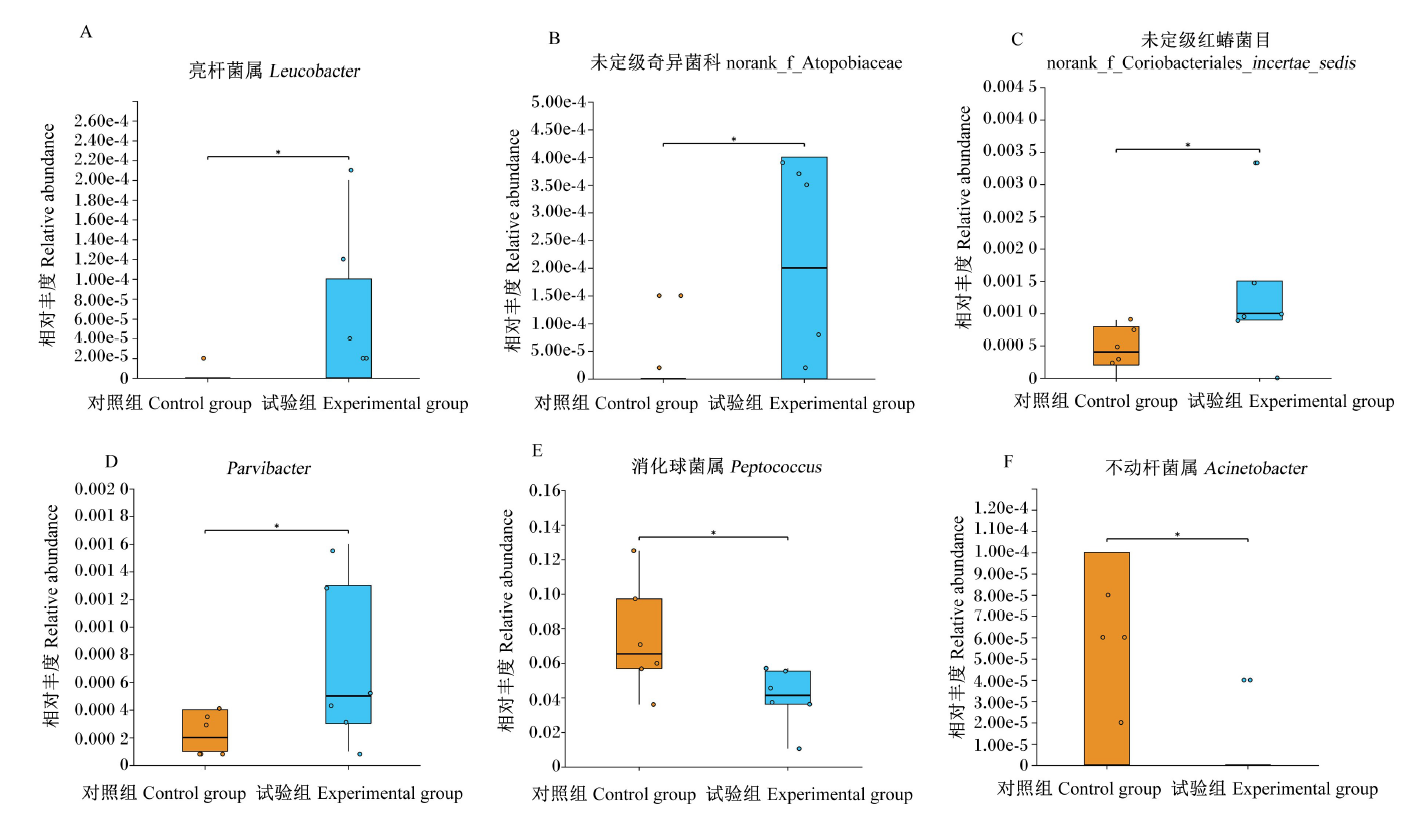
图4所示,在属水平上,与对照组相比,试验组英短猫粪便亮杆菌属(Leucobacter)、未定级奇异菌科(norank_f_Atopobiaceae)、未定级红蝽菌目(norank_f_Coriobacteriales_incertae_sedis)和Parvibacter相对丰度显著提高(P<0.05),粪便消化球菌属(Peptococcus)和不动杆菌属(Acinetobacter)相对丰度显著降低(P<0.05)。
图4 英短猫粪便微生物群落差异菌属分析

Fig.4 Analysis of differential bacterial genera in fecal microbiota of British shorthair cats

2.7 饲粮添加后生元对英短猫粪便发酵产物的影响

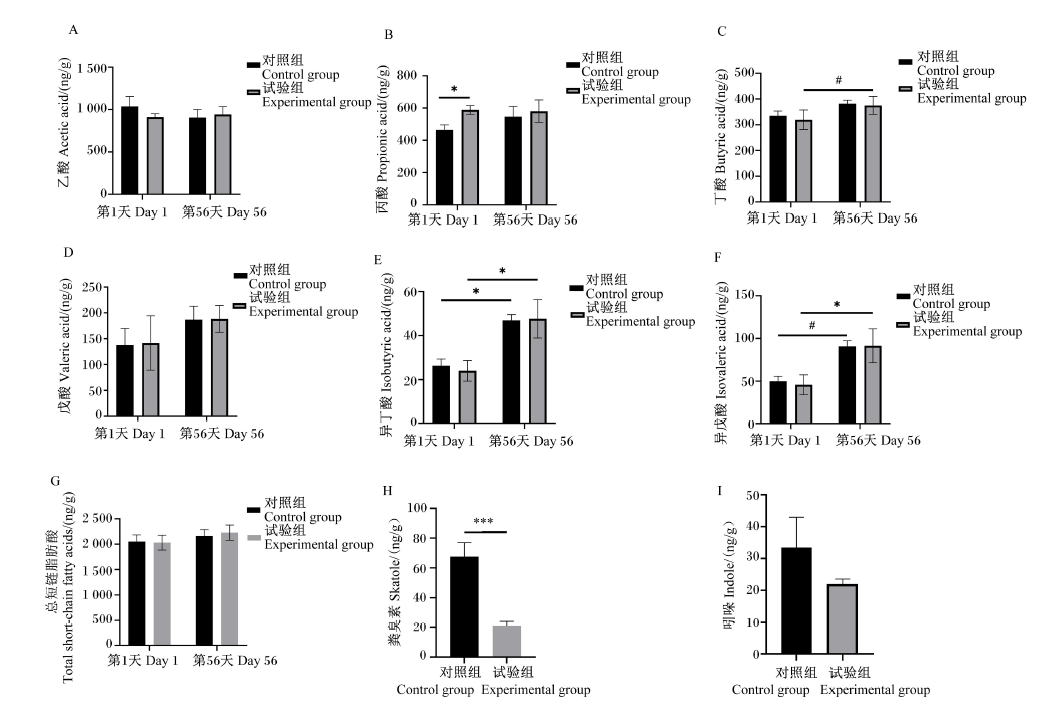
图5所示,试验第1天,与对照组相比,试验组英短猫粪便丙酸含量显著提高(P<0.05)。与试验第1天相比,试验组试验第56天粪便丁酸含量有提高趋势(0.05≤P<0.10),粪便异丁酸和异戊酸含量显著提高(P<0.05);对照组第56天粪便异丁酸含量显著提高(P<0.05),粪便异戊酸含量有提高趋势(0.05≤P<0.10)。试验第56天,与对照组相比,试验组粪便粪臭素含量显著降低(P<0.05)。
图5 饲粮添加后生元对英短猫粪便发酵产物的影响

Fig.5 Effects of dietary supplementation with postbiotics on fecal fermentation products of British shorthair cats

2.8 饲粮添加后生元对英短猫粪便代谢物的影响

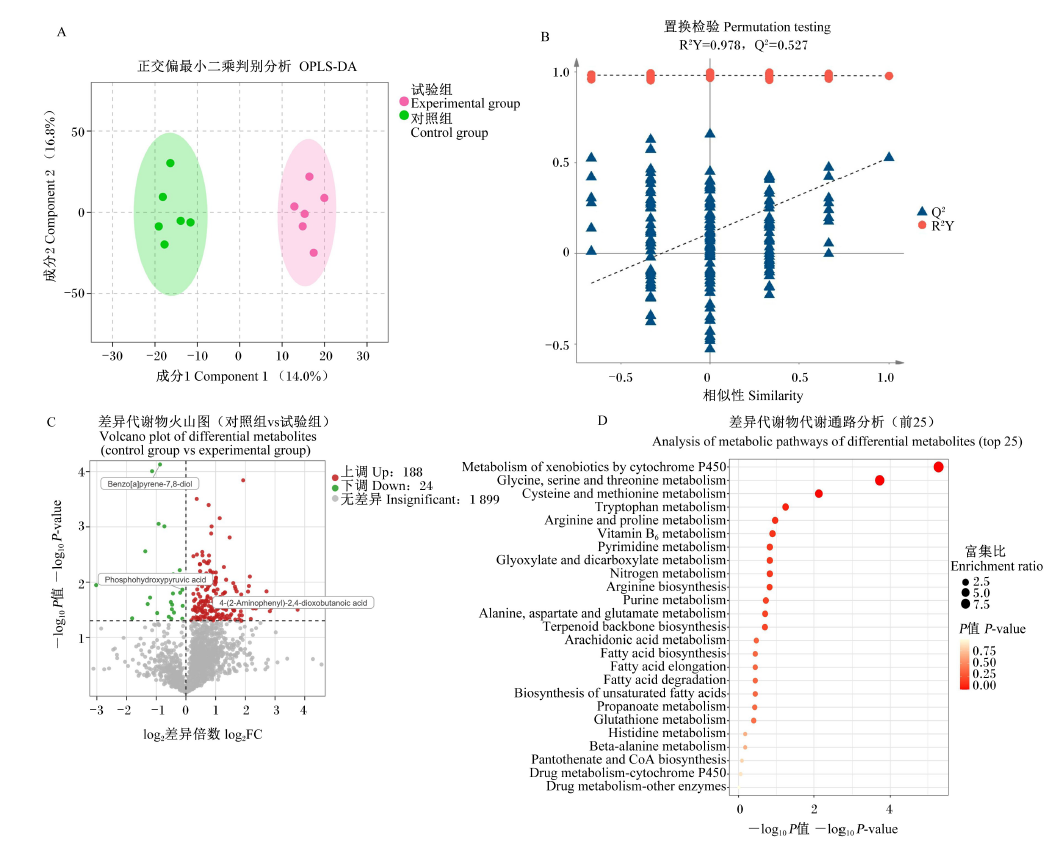
图6-A所示,OPLS-DA结果表明对照组与试验组之间英短猫粪便代谢物明显分离。如图6-B所示,置换检验的Q2=0.527、R2Y=0.978,表明OPLS-DA模型具有较高的精确度。如图6-C所示,以VIP值>1、P<0.05为标准筛选2组间粪便差异代谢物,结果发现与对照组相比,试验组粪便有188个代谢物下调,24个代谢物上调。如图6-D所示,KEGG代谢通路富集分析结果表明,粪便差异代谢物显著富集在3条代谢通路(P<0.05),包括细胞色素P450对外源性物质的代谢,甘氨酸、丝氨酸和苏氨酸代谢,以及半胱氨酸和蛋氨酸代谢。
图6 饲粮添加后生元对英短猫粪便代谢物的影响

Benzo[a]pyrene-7,8-diol:苯并[a]芘-7,8-二醇;Phosphohydroxypyruvic acid:磷酸羟基丙酮酸;4-(2-Aminophenyl)-2,4-dioxobutanoic acid:4-(2-氨基苯基)-2,4-二氧代丁酸;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源性物质的代谢;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Tryptophan metabolism:色氨酸代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Vitamin B6 metabolism:维生素B6代谢;Pyrimidine metabolism:嘧啶代谢;Glyoxylate and dicarboxylate metabolism:乙醛酸和二羧酸代谢;Nitrogen metabolism:氮代谢;Arginine biosynthesis:精氨酸生物合成;Purine metabolism:嘌呤代谢;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;Terpenoid backbone biosynthesis:萜类骨架生物合成;Arachidonic acid metabolism:花生四烯酸代谢;Fatty acid biosynthesis:脂肪酸生物合成;Fatty acid elongation:脂肪酸延长;Fatty acid degradation:脂肪酸降解;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸生物合成;Propanoate metabolism:丙酸代谢;Glutathione metabolism:谷胱甘肽代谢;Histidine metabolism:组氨酸代谢;Beta-alanine metabolism:β-丙氨酸代谢;Pantothenate and CoA biosynthesis:泛酸和辅酶A生物合成;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;Drug metabolism-other enzymes:药物代谢-其他酶。

Fig.6 Effects of dietary supplementation with postbiotics on fecal metabolites of British shorthair cats

3 讨论

与益生菌相比,后生元具有更稳定、更安全的特性,其在增强免疫力、调节炎症反应和改善肠道屏障功能等方面体现出显著作用[10,18],因此越来越多的研究将后生元应用于伴侣动物饲粮中。本研究评估了后生元对成年英短猫生长性能、血清指标及粪便微生物群落和代谢物的影响,结果显示,饲粮添加后生元不会对试验猫体重、粪便评分、养分表观消化率和血清生化指标产生显著影响,表明后生元不会对猫的生长和健康产生不利影响。
细胞因子在维持机体生命健康中发挥着关键的生理作用,包括参与免疫调节、炎症反应及代谢调控等[19]。在生理学上,细胞因子根据其对免疫系统的促进或抑制作用可分为促炎因子和抗炎因子2大类。白细胞介素是细胞因子的重要成员。研究表明,IL-6、IL-8和IL-10与肠道炎症密切相关[20-22]。在DSS诱导的结肠炎大鼠模型中进行剂量依赖性后生元干预试验,结果发现后生元能够显著提高血清IL-10含量,并有降低血清IL-6含量的趋势,大鼠肠道炎症得到缓解[23]。酿酒酵母来源的后生元通过降低血清IL-6含量、同时提高血清IgG和IL-10含量,实现增强免疫力和调节肠道健康的双重功效[24]。本研究与以上研究结果基本一致,证实后生元能够通过降低促炎因子IL-6和IL-8含量,并提高IgG和IL-10含量,从而改善猫的健康状况。
肠道菌群紊乱与氧化应激存在关联,其中CAT是抗氧化防御的关键酶机制之一[25]。Humam等[26]报道,后生元作为膳食补充剂能够增强家禽和小型反刍动物的抗氧化防御能力,并改善肠道健康。本研究中,饲粮添加后生元能够提高试验猫血清CAT活性,但血清生化指标无显著变化,这可能是因为所有试验猫是健康的,并不存在肠道问题。
脂肪酸是肠道细菌产生的代谢产物之一,主要包括短链脂肪酸和支链脂肪酸。短链脂肪酸主要来源于肠道细菌对膳食纤维的厌氧发酵;支链脂肪酸广泛存在于动物脂肪和乳汁中,也可由支链氨基酸(如缬氨酸、亮氨酸、异亮氨酸)代谢产生,它们对维持肠道健康都发挥重要作用[27-28]。研究表明,支链脂肪酸能够抑制肠道炎症、降低促炎细胞因子的表达并增强抗炎细胞因子的表达[29-30]。本研究中,试验组猫在食用添加后生元制剂的饲粮后,粪便异丁酸和异戊酸含量显著提高。这表明,后生元可能通过促进肠道微生物的发酵产生短链脂肪酸来抑制肠道炎症,促进肠道健康。此外,与对照组相比,试验组粪便粪臭素含量显著降低。动物粪便中的气味化合物是由微生物在后肠进行芳香族氨基酸厌氧分解过程中产生的,主要由粪臭素、吲哚等挥发性物质组成,这些物质含量的降低可能对肠道健康产生积极作用[31-32]
研究发现,后生元能够调节肠道微生物群落结构、减少病原菌数量并提高菌群多样性[33]。本研究中,饲喂添加后生元饲粮的试验猫粪便厚壁菌门相对丰度降低。厚壁菌门包含与炎症相关的微生物,先前的研究表明,炎症性肠病患者的肠道厚壁菌门/拟杆菌门的比值显著提高,且厚壁菌门/拟杆菌门的比值提高可能导致肥胖和自闭症谱系障碍[34-35]。由此表明,后生元对维持宿主肠道健康可能具有有益作用。本研究结果显示,与对照组相比,试验组粪便亮杆菌属、未定级奇异菌科、未定级红蝽菌目和Parvibacter相对丰度显著提高。研究发现,Parvibacter相对丰度提高与溃疡性结肠炎的缓解相关,其可通过增强紧密连接蛋白和抗炎因子的表达来增强肠道屏障[36]。此外,研究还发现,Parvibacter能够促进结肠癌前致癌物质的代谢,预防结肠癌[37]。未定级红蝽菌目与短链脂肪酸的产生呈正相关[38],短链脂肪酸能够维持结肠上皮细胞完整以及抑制炎性细胞因子的表达,对维持肠道健康具有重要作用[27]。同时,与对照组相比,试验组粪便消化球菌属和不动杆菌属相对丰度显著降低。研究表明,不动杆菌属相对丰度提高与腹泻[39-40]和结肠炎[41-42]相关。此外,LEfSe分析结果表明,布劳特氏菌属在试验组富集。据报道,布劳特氏菌属可以缓解炎症性疾病和代谢性疾病,并具有潜在的益生菌功能[43]。研究表明,在腹泻犬和猫中均观察到布劳特氏菌属相对丰度降低,而在治疗后可以得到恢复[44-45]
肠道微生物衍生的代谢物通常与宿主生理状态密切相关,包括营养状况、新陈代谢和应激反应[46]。本研究中,2组间英短猫粪便差异代谢物主要富集在细胞色素P450对外源性物质的代谢,甘氨酸、丝氨酸和苏氨酸代谢,以及半胱氨酸和蛋氨酸代谢。细胞色素P450家族成员在抗炎、促进凋亡、维持肠道稳态以及缓解急性结肠炎中起重要作用[47-48]。苯并[a]芘是一种常见于环境污染物中的多环芳烃,其代谢主要依赖于细胞色素P450[49]。本试验中,与对照组相比,试验组粪便中苯并[a]芘-7,8-二醇(benzo[a]pyrene-7,8-diol)的上调可能反映了肠道对苯并[a]芘代谢能力的增强,从而产生更多的中间代谢产物。同时,试验组血清西酞普兰(citalopram)的上调及其醛类代谢产物的减少也证实了细胞色素P450介导的代谢途径可能发生了改变[50]。综合血清和粪便代谢物的变化可知,后生元通过增强细胞色素P450代谢等解毒途径,并通过调控关键氨基酸及血红素相关代谢过程,对试验猫肠道健康产生积极影响。
此外,血清代谢物分析结果显示,与对照组相比,试验组英短猫血清原卟啉Ⅸ(protoporphyrin Ⅸ)、甘油磷酰胆碱(glycerophosphocholine)和核黄素(riboflavin)显著上调,且2组间血清差异代谢物主要富集于卟啉代谢、类固醇激素生物合成、核黄素代谢及甘油磷脂代谢等通路。这与既往研究结果一致,卟啉代谢与抗炎及免疫调节相关[51],原卟啉Ⅸ的积累可抑制结肠癌发展[52]。磷脂酰胆碱是肠道黏液层的重要成分,甘油磷酰胆碱作为磷脂酰胆碱的中间代谢产物,其上调可能反映肠上皮细胞更新加速,即老旧细胞膜降解加快[53],后生元由此促进肠道屏障修复并加速细胞更新周转[54]。核黄素可由肠道菌群合成[55],通过调节免疫系统及肠道菌群组成与代谢改善肠道炎症[56],其血清代谢组水平的上调可能表明后生元通过促进益生菌增殖,从而增强维生素B2的合成和吸收,间接改善肠上皮能量代谢[57]。同时,与对照组相比,试验组粪便代谢组中在甘氨酸、丝氨酸和苏氨酸代谢以及半胱氨酸和蛋氨酸代谢通路中的磷酸羟基丙酮酸(phosphohydroxypyruvic acid)上调,这些变化可能共同指示了后生元为机体提供了更多用于合成谷胱甘肽等抗氧化物质的前体,从而增强了肠道的抗氧化能力[58]。此外,色氨酸代谢途径中的4-(2-氨基苯基)-2,4-二氧代丁酸[4-(2-aminophenyl)-2,4-dioxobutanoic acid]作为菌群-宿主共代谢物,其下调可减少促炎信号、增强肠道耐受性[59]。本试验中,与对照组相比,试验组粪便4-(2-氨基苯基)-2,4-二氧代丁酸下调,这与肠道疾病患者治疗后的代谢变化趋势相似[60]。上述血清和粪便代谢物的结果整体上反映了后生元通过其抗氧化、抗炎等多重功能,对猫的肠道健康产生积极作用。

4 结论

饲粮添加0.5%后生元对英短猫生长性能、养分表观消化率和血清生化指标无负面影响,同时能提高机体抗氧化和抗炎能力,调节微生物群落,改善血清和粪便代谢物组成,对肠道健康产生积极影响。
[1]
段晓燕, 胡明扬, 刘旭乐, 等. 饲粮中添加不同来源微生态制剂替代抗生素对断奶仔猪生长性能、血清生化指标、养分表观消化率和粪便微生物的影响[J]. 动物营养学报, 2024, 36(10):6279-6292.

DOI

DUAN X Y, HU M Y, LIU X L, et al. Effects of adding different sources of microecological preparations instead of antibiotics to diets on growth performance,serum biochemical indexes,nutrient apparent digestibility,and fecal microbiota of weaned piglets[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6279-6292. (in Chinese)

[2]
张美婷, 牛玉, 王国明, 等. 犬猫肠道菌群特点及益生菌对肠道菌群的调控研究进展[J]. 中国畜牧杂志, 2026, 62(2):38-43.

ZHANG M T, NIU Y, WANG G M, et al. Research progress on the characteristics of gut microbiota in dogs and cats and the regulatory effects of probiotics[J]. Chinese Journal of Animal Science, 2026, 62(2):38-43. (in Chinese)

[3]
DEN BESTEN G, VAN EUNEN K, GROEN A K, et al. The role of short-chain fatty acids in the interplay between diet,gut microbiota,and host energy metabolism[J]. Journal of Lipid Research, 2013, 54(9):2325-2340.

DOI

[4]
WILSON S M, SWANSON K S. The influence of ‘biotics’ on the gut microbiome of dogs and cats[J]. The Veterinary Record, 2024,195 (Suppl.2):2-12.

[5]
ZIESE A L, SUCHODOLSKI J S. Impact of changes in gastrointestinal microbiota in canine and feline digestive diseases[J]. Veterinary Clinics of North America:Small Animal Practice, 2021, 51(1):155-169.

DOI

[6]
FIORE W, ARIOLI S, GUGLIELMETTI S. The neglected microbial components of commercial probiotic formulations[J]. Microorganisms, 2020, 8(8):1177.

DOI

[7]
CIARAVOLO S, MARTÍNEZ-LÓPEZ L M, ALLCOCK R J N, et al. Longitudinal survey of fecal microbiota in healthy dogs administered a commercial probiotic[J]. Frontiers in Veterinary Science, 2021,8:664318.

[8]
SALMINEN S, COLLADO M C, ENDO A, et al. The international scientific association of probiotics and prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics[J]. Nature Reviews Gastroenterology & Hepatology, 2021, 18(9):649-667.

[9]
KAVITA, OM H, CHAND U, et al. Postbiotics:an alternative and innovative intervention for the therapy of inflammatory bowel disease[J]. Microbiological Research, 2024,279:127550.

[10]
AGGARWAL S, SABHARWAL V, KAUSHIK P, et al. Postbiotics:from emerging concept to application[J]. Frontiers in Sustainable Food Systems, 2022,6:887642.

[11]
GUO S, MA T, KWOK L Y, et al. Effects of postbiotics on chronic diarrhea in young adults:a randomized,double-blind,placebo-controlled crossover trial assessing clinical symptoms,gut microbiota,and metabolite profiles[J]. Gut Microbes, 2024, 16(1):2395092.

DOI

[12]
ZHANG J, DUAN X L, CHEN X H, et al. Lactobacillus rhamnosus 1.0320 postbiotics ameliorate dextran sodium sulfate-induced colonic inflammation and oxidative stress by regulating the intestinal barrier and gut microbiota[J]. Journal of Agricultural and Food Chemistry, 2024, 72(45):25078-25093.

DOI

[13]
XU X Y, DUARTE M E, KIM S W. Postbiotic effects of Lactobacillus fermentate on intestinal health,mucosa-associated microbiota,and growth efficiency of nursery pigs challenged with F18+Escherichia coli[J]. Journal of Animal Science, 2022, 100(8):skac210.

[14]
LIN C Y, ALEXANDER C, STEELMAN A J, et al. Effects of a Saccharomyces cerevisiae fermentation product on fecal characteristics,nutrient digestibility,fecal fermentative end-products,fecal microbial populations,immune function,and diet palatability in adult dogs[J]. Journal of Animal Science, 2019, 97(4):1586-1599.

DOI

[15]
KOZIOL S A, OBA P M, SOTO-DIAZ K, et al. Effects of a Lactobacillus fermentation product on the fecal characteristics,fecal microbial populations,immune function,and stress markers of adult dogs[J]. Journal of Animal Science, 2023,101:skad160.

[16]
DETWEILER K B, HE F, MANGIAN H F, et al. Extruded feline diets formulated with high inclusion of soybean hulls:effects on apparent total tract macronutrient digestibility,and fecal quality and metabolites[J]. Journal of Animal Science, 2019, 97(3):1042-1051.

DOI

[17]
温超宇, 肖再利, 唐超, 等. 宠物食品中以鲜肉替代肉粉对猫粮的适口性、消化率的影响[J]. 饲料工业, 2023, 44(22):99-103.

WEN C Y, XIAO Z L, TANG C, et al. Effect of fresh meat instead of meat meal in diets on the palatability,nutrient digestibility of diets for cats[J]. Feed Industry, 2023, 44(22):99-103. (in Chinese)

[18]
FRANCO W. Postbiotics and parabiotics derived from bacteria and yeast:current trends and future perspectives[J]. CyTA-Journal of Food, 2024, 22(1):2425838.

DOI

[19]
HIRANO T. IL-6 in inflammation,autoimmunity and cancer[J]. International Immunology, 2021, 33(3):127-148.

DOI

[20]
蔚晓霞, 刘占举, 胡艺, 等. 炎症性肠病患者的肠道菌群分布与血清TNF-α与IL-6水平的相关性[J]. 现代生物医学进展, 2017, 17(16):3076-3078,3102.

WEI X X, LIU Z J, HU Y, et al. Correlation of the intestinal flora distribution with the serum TNF-α and IL-6 levels in the inflammatory bowel disease[J]. Progress in Modern Biomedicine, 2017, 17(16):3076-3078,3102. (in Chinese)

[21]
龙艳. 内质网应激通过P38 MAPK通路上调Gro-α、IL-8促进克罗恩病肠道炎症[D]. 硕士学位论文. 衡阳: 南华大学, 2019.

LONG Y. ER stress promotes intestinal inflammation by up-regulating the expression Gro-α and IL-8 via P38 MAPK pathway in Crohn’s disease[D]. Master’s Thesis. Hengyang: University of South China, 2019. (in Chinese)

[22]
苏利国, 周国华. 白细胞介素8、白细胞介素10与肠道炎症关系研究进展[J]. 医学综述, 2008, 14(22):3378-3380.

SU L G, ZHOU G H. The progress of the relationship between IL-8,IL-10 and the inflammation of intestinal tract[J]. Medical Recapitulate, 2008, 14(22):3378-3380. (in Chinese)

[23]
FENG C J, PENG C T, ZHANG W Q, et al. Postbiotic administration ameliorates colitis and inflammation in rats possibly through gut microbiota modulation[J]. Journal of Agricultural and Food Chemistry, 2024, 72(16):9054-9066.

[24]
YAN H, XING Q, XIAO X R, et al. Effect of Saccharomyces cerevisiae postbiotics and essential oil on growth performance and intestinal health of weanling pigs during K88 ETEC infection[J]. Journal of Animal Science, 2024,102:skae007.

[25]
SOHEILI M, ALINAGHIPOUR A, SALAMI M. Good bacteria,oxidative stress and neurological disorders:possible therapeutical considerations[J]. Life Sciences, 2022,301:120605.

[26]
HUMAM A M, LOH T C, FOO H L, et al. Supplementation of postbiotic RI11 improves antioxidant enzyme activity,upregulated gut barrier genes,and reduced cytokine,acute phase protein,and heat shock protein 70 gene expression levels in heat-stressed broilers[J]. Poultry Science, 2021, 100(3):100908.

DOI

[27]
GILL P A, VAN ZELM M C, MUIR J G, et al. Review article:short chain fatty acids as potential therapeutic agents in human gastrointestinal and inflammatory disorders[J]. Alimentary Pharmacology & Therapeutics, 2018, 48(1):15-34.

[28]
LU H J, WANG Z, CAO B, et al. Dietary sources of branched-chain fatty acids and their biosynthesis,distribution,and nutritional properties[J]. Food Chemistry, 2024,431:137158.

[29]
RAN-RESSLER R R, KHAILOVA L, ARGANBRIGHT K M, et al. Branched chain fatty acids reduce the incidence of necrotizing enterocolitis and alter gastrointestinal microbial ecology in a neonatal rat model[J]. PLoS One, 2011, 6(12):e29032.

DOI

[30]
EZZINE C, LOISON L, MONTBRION N, et al. Fatty acids produced by the gut microbiota dampen host inflammatory responses by modulating intestinal SUMOylation[J]. Gut Microbes, 2022, 14(1):2108280.

DOI

[31]
MEINERI G, MARTELLO E, ATUAHENE D, et al. Effects of Saccharomyces boulardii supplementation on nutritional status,fecal parameters,microbiota,and mycobiota in breeding adult dogs[J]. Veterinary Sciences, 2022, 9(8):389.

DOI

[32]
DU L, QIU X Y, ZHU S Y, et al. Soybean oligosaccharides combined with probiotics reduce faecal odour compound content by improving intestinal microbiota in pigs[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(3):839-849.

DOI

[33]
ZHANG T, ZHANG W Q, FENG C J, et al. Stronger gut microbiome modulatory effects by postbiotics than probiotics in a mouse colitis model[J]. NPJ Science of Food, 2022, 6(1):53.

DOI PMID

[34]
LI S S, ZHANG F Z, ZHANG Q X. Pathological features-based targeted delivery strategies in IBD therapy:a mini review[J]. Biomedecine & Pharmacotherapie, 2022,151:113079.

[35]
WANG F, MEI X Y, WANG Q, et al. Compound bacillus alleviates diarrhea by regulating gut microbes,metabolites,and inflammatory responses in pet cats[J]. Animal Microbiome, 2023, 5(1):49.

DOI

[36]
PANG B, JIN H, LIAO N, et al. Vitamin A supplementation ameliorates ulcerative colitis in gut microbiota-dependent manner[J]. Food Research International, 2021,148:110568.

[37]
WANG X, ZHU B Y, HUA Y Z, et al. Astragalus mongholicus Bunge and Curcuma aromatica Salisb. modulate gut microbiome and bile acid metabolism to inhibit colon cancer progression[J]. Frontiers in Microbiology, 2024,15:1395634.

[38]
ZHAO Y H, ZHAO M, ZHANG Y M, et al. Bile acids metabolism involved in the beneficial effects of Danggui Shaoyao san via gut microbiota in the treatment of CCl4 induced hepatic fibrosis[J]. Journal of Ethnopharmacology, 2024, 319(Pt 3):117383.

DOI

[39]
XU B Y, YAN Y Q, HUANG J C, et al. Cortex Phellodendri extract’s anti-diarrhea effect in mice related to its modification of gut microbiota[J]. Biomedecine & Pharmacotherapy, 2020,123:109720.

[40]
LAI Y, DENG H L, FANG Q, et al. Water-insoluble polysaccharide extracted from Poria cocos alleviates antibiotic-associated diarrhea based on regulating the gut microbiota in mice[J]. Foods, 2023, 12(16):3080.

DOI

[41]
HE S Y, LI X Y, LI C Q, et al. Isoorientin attenuates benzo[a]pyrene-induced colonic injury and gut microbiota disorders in mice[J]. Food Research International, 2019,126:108599.

[42]
GUO W L, TANG X, ZHANG Q X, et al. Mitigation of dextran-sodium-sulfate-induced colitis in mice through oral administration of microbiome-derived inosine and its underlying mechanisms[J]. International Journal of Molecular Sciences, 2023, 24(18):13852.

DOI

[43]
LIU X M, MAO B Y, GU J Y, et al. Blautia-a new functional genus with potential probiotic properties?[J]. Gut Microbes, 2021, 13(1):1875796.

DOI

[44]
BELL J A, KOPPER J J, TURNBULL J A, et al. Ecological characterization of the colonic microbiota of normal and diarrheic dogs[J]. Interdisciplinary Perspectives on Infectious Diseases, 2008, 2008(1):149694.

[45]
LEE T W, CHAO T Y, CHANG H W, et al. The effects of Bacillus licheniformis-fermented products on the microbiota and clinical presentation of cats with chronic diarrhea[J]. Animals, 2022, 12(17):2187.

DOI

[46]
YANG K, JIAN S Y, GUO D, et al. Fecal microbiota and metabolomics revealed the effect of long-term consumption of gallic acid on canine lipid metabolism and gut health[J]. Food Chemistry:X, 2022,15:100377.

[47]
GHOSH S, MOORTHY B, HARIBABU B, et al. Cytochrome P 450 1A1 is essential for the microbial metabolite,urolithin A-mediated protection against colitis[J]. Frontiers in Immunology, 2022,13:1004603.

[48]
DUAN D Z, DU Z Z, ZHAO L. Galangin alleviates alcoholic liver disease by regulating the gut-liver axis[J]. Journal of Functional Foods, 2024,122:106506.

[49]
LYU Y, REN X K, GUO C C, et al. Benzo(a)pyrene-7,8-dihydrodiol-9,10-epoxide induces ferroptosis in neuroblastoma cells through redox imbalance[J]. The Journal of Toxicological Sciences, 2022, 47(12):519-529.

DOI

[50]
ESTEVES F, RUEFF J, KRANENDONK M. The central role of cytochrome P450 in xenobiotic metabolism-a brief review on a fascinating enzyme family[J]. Journal of Xenobiotics, 2021, 11(3):94-114.

DOI PMID

[51]
YADAV V, MAI Y, MCCOUBREY L E, et al. 5-aminolevulinic acid as a novel therapeutic for inflammatory bowel disease[J]. Biomedicines, 2021, 9(5):578.

DOI

[52]
YANG G J, LI G, DU X M, et al. Down-regulation of IGHG1 enhances protoporphyrin Ⅸ accumulation and inhibits hemin biosynthesis in colorectal cancer by suppressing the MEK-FECH axis[J]. Open Life Sciences, 2021, 16(1):930-936.

DOI

[53]
STREMMEL W, WEISKIRCHEN R. Phosphatidylcholine in intestinal mucus protects against mucosal invasion of microbiota and consequent inflammation[J]. Livers, 2024, 4(3):479-494.

DOI

[54]
CHEN S Y, INUI S, AISYAH R, et al. Role of gpcpd1 in intestinal alpha-glycerophosphocholine metabolism and trimethylamine N-oxide production[J]. Journal of Biological Chemistry, 2024, 300(12):107965.

DOI

[55]
ZHU Y Y, THAKUR K, FENG J Y, et al. Riboflavin-overproducing Lactobacilli for the enrichment of fermented soymilk:insights into improved nutritional and functional attributes[J]. Applied Microbiology and Biotechnology, 2020, 104(13):5759-5772.

DOI

[56]
ZHANG W W, THAKUR K, ZHANG J G, et al. Riboflavin ameliorates intestinal inflammation via immune modulation and alterations of gut microbiota homeostasis in DSS-colitis C57BL/6 mice[J]. Food & Function, 2024, 15(8):4109-4121.

[57]
ZHU Y Y, THAKUR K, FENG J Y, et al. Riboflavin bioenriched soymilk alleviates oxidative stress mediated liver injury,intestinal inflammation,and gut microbiota modification in B2 depletion-repletion mice[J]. Journal of Agricultural and Food Chemistry, 2022, 70(12):3818-3831.

DOI

[58]
CIRCU M L, AW T Y. Redox biology of the intestine[J]. Free Radical Research, 2011, 45(11/12):1245-1266.

DOI

[59]
MIYAMOTO K, SUJINO T. Microbiota-derived D-amino acids in intestinal homeostasis and inflammatory bowel disease[J]. Inflammation and Regeneration, 2026,46:3.

[60]
KIM J, CHO K, KIM J S, et al. Probiotic treatment induced change of inflammation related metabolites in IBS-D patients/double-blind,randomized,placebo-controlled trial[J]. Food Science and Biotechnology, 2019, 29(6):837-844.

DOI

文章导航

/