研究论文

断奶后腹泻对仔猪肠道孕烷X受体表达及细胞焦亡和坏死性凋亡变化的影响

  • 林姝含 ,
  • 孙雅婕 ,
  • 陆俞含 ,
  • 张恩丞 ,
  • 余金文 ,
  • 孟梓妍 ,
  • 刘瑞孜 ,
  • 郑雨微 , * ,
  • 吕红明 , *
展开
  • 黑龙江八一农垦大学动物科技学院, 农业农村部东北寒区牛病防治重点实验室(部省共建),黑龙江省牛病防制重点实验室, 大庆 163319
* 郑雨微,讲师,E-mail: ;
吕红明,教授,博士生导师,E-mail:

林姝含(2004—),女,安徽来安人,本科生,动物医学专业。E-mail:

Office editor: 菅景颖

收稿日期: 2025-11-20

  网络出版日期: 2026-07-14

基金资助

国家自然科学基金面上项目(32202862)

国家级大学生创新创业训练计划项目“天然棉籽糖防御仔猪呕吐毒素性肠炎的损伤作用”(202510223127)

大庆市“青雁”人才扶持计划项目(DQXY202405)

Effects of Post-Weaning Diarrhea on Expression of Pregnane X Receptor and Changes of Pyroptosis and Necroptosis in Intestine of Piglets

  • LIN Shuhan ,
  • SUN Yajie ,
  • LU Yuhan ,
  • ZHANG Encheng ,
  • YU Jinwen ,
  • MENG Ziyan ,
  • LIU Ruizi ,
  • ZHENG Yuwei , * ,
  • LYU Hongming , *
Expand
  • Heilongjiang Provincial Key Laboratory of Prevention and Control of Bovine Diseases, Key Laboratory of Bovine Disease Control in Northeast China, Ministry of Agriculture and Rural Affairs, College of Animal Science and Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
* ZHENG Yuwei, lecturer, E-mail: ;
LYU Hongming, professor, E-mail:

Received date: 2025-11-20

  Online published: 2026-07-14

摘要

本试验以断奶后腹泻(PWD)仔猪为研究对象,系统评估PWD所致仔猪肠道炎症损伤过程中,孕烷X受体(PXR)的表达情况及与细胞焦亡和坏死性凋亡相关的病理改变。根据断奶后3 d是否发生腹泻,选取12头21日龄断奶去势仔猪,分为腹泻组(6头)和健康组(6头),屠宰后采集十二指肠、空肠、回肠组织样本,采用组织学观察、免疫荧光、免疫组化及蛋白质印迹等方法,评价PWD对肠黏膜结构、炎症反应及细胞程序性死亡的影响。结果显示:1)PWD导致仔猪肠绒毛萎缩,结构紊乱,空肠组织中闭锁小带蛋白-1(ZO-1)和闭合蛋白(Occludin)的表达水平显著下降(P<0.05),肠黏膜屏障受损。2)与健康组相比,腹泻组仔猪空肠组织中促炎因子[诱导型一氧化氮合酶(iNOS)、环氧合酶-2(COX-2)、白细胞介素-6(IL-6)、高迁移率族蛋白B1(HMGB1)、肿瘤坏死因子-α(TNF-α)、成熟型白细胞介素-1β(IL-1β)、成熟型白细胞介素-18(IL-18)]的表达水平均显著升高(P<0.05),Toll样受体4(TLR4)/核因子-κB(NF-κB)/丝裂原活化蛋白激酶(MAPK)信号通路被激活。3)与健康组相比,腹泻组仔猪空肠组织中多种焦亡和坏死性凋亡相关蛋白的表达均显著或极显著上调(P<0.05或P<0.01)。其中,焦亡相关蛋白包括NOD样受体热蛋白结构域相关蛋白3(NLRP3)、半胱天冬酶-1前体(pro-Caspase-1)、剪切的半胱天冬酶-1(cleaved-Caspase-1)、消皮素D-F(GSDMD-F)、消皮素D-N(GSDMD-N);坏死性凋亡相关蛋白包括磷酸化受体相互作用蛋白激酶1(p-RIPK1)、磷酸化受体相互作用蛋白激酶3(p-RIPK3)、磷酸化混合谱系激酶域样蛋白(p-MLKL)及FAS相关死亡结构域蛋白(FADD)。4)与健康组相比,腹泻组仔猪空肠组织中PXR的表达显著下调(P<0.05)。上述研究结果表明,PWD通过下调仔猪肠道中PXR的表达,并激活细胞焦亡与坏死性凋亡通路,进而加剧肠道炎症与屏障功能损伤。

本文引用格式

林姝含 , 孙雅婕 , 陆俞含 , 张恩丞 , 余金文 , 孟梓妍 , 刘瑞孜 , 郑雨微 , 吕红明 . 断奶后腹泻对仔猪肠道孕烷X受体表达及细胞焦亡和坏死性凋亡变化的影响[J]. 动物营养学报, 2026 , 38(7) : 5405 -5415 . DOI: 10.12418/CJAN2026.432

Abstract

This study focused on piglets with post-weaning diarrhea (PWD) as the research subjects to systematically evaluate the expression of the pregnane X receptor (PXR) and the pathological changes associated with pyroptosis and necroptosis during PWD-induced intestinal inflammatory injury. Based on the presence or absence of diarrhea 3 days post-weaning, twelve 21-day-old weaned castrated piglets were selected and divided into a diarrhea group (n=6) and a healthy control group (n=6). Following euthanasia, tissue samples from the duodenum, jejunum and ileum were collected. Histological observation, immunofluorescence, immunohistochemistry, and Western blot were employed to evaluate the effects of PWD on intestinal mucosal structure, inflammatory response and programmed cell death. The results showed as follows: 1) PWD led to jejunal villus atrophy and structural disorganization, significantly decreased the expression levels of zonula occludens-1 (ZO-1) and Occludin in the jejunum (P<0.05), indicating damage to the intestinal mucosal barrier. 2) Compared with the healthy group, the expression levels of pro-inflammatory factors [inducible nitric oxide synthase (iNOS), cyclooxygenase-2 (COX-2), interleukin-6 (IL-6), high mobility group box 1 (HMGB1), tumor necrosis factor-alpha (TNF-α), mature interleukin-1β (mature-IL-1β) and mature interleukin-18 (mature-IL-18)] in the jejunum of the diarrhea group were significantly increased (P<0.05), and the Toll-like receptor 4 (TLR4)/nuclear factor-κB (NF-κB)/mitogen-activated protein kinase (MAPK) signaling pathways were activated. 3) Compared with the healthy group, the expression levels of multiple proteins related to pyroptosis and necroptosis were significantly or extremely significantly upregulated in the jejunum of the diarrhea group (P<0.05 or P<0.01). Pyroptosis-related proteins included NOD-like receptor thermal protein domain associated protein 3 (NLRP3), pro-Caspase-1, cleaved-Caspase-1, gasdermin D-F (GSDMD-F) and gasdermin D-N (GSDMD-N). Necroptosis-related proteins included phosphorylated receptor-interacting protein kinase 1 (p-RIPK1), phosphorylated receptor-interacting protein kinase 3 (p-RIPK3), phosphorylated mixed lineage kinase domain-like protein (p-MLKL), and Fas-associated death domain protein (FADD). 4) Compared with the healthy group, PXR expression in the jejunum of the diarrhea group was significantly downregulated (P<0.05). In conclusion, these findings indicate that PWD exacerbates intestinal inflammation and barrier damage by downregulating PXR expression and activating the pyroptosis and necroptosis pathways in the piglet intestine.

在集约化养殖模式下,仔猪被迫提前断奶,此时其肠道功能尚未发育完全,需快速完成从母乳到固体饲料的过渡,加之母仔分离带来的应激,极易引发仔猪产生一系列生理功能紊乱与行为异常[1-2]。仔猪断奶后多重应激的叠加效应会破坏肠道屏障功能,诱发炎症反应,显著增加腹泻风险。断奶后腹泻(PWD)已成为制约生猪产业效益提升的关键瓶颈,亟需有效解决方案[3-4]。因此,深入解析仔猪发生PWD过程中肠道结构损伤与免疫失衡的核心调控机制,对于提升仔猪健康水平、保障猪肉稳产增产具有重要的科学意义与应用价值。
细胞程序性死亡在肠道稳态维持及炎症损伤过程中发挥核心调控作用,包括凋亡(apoptosis)、细胞焦亡(pyroptosis)和坏死性凋亡(necroptosis)等多种形式[5-6]。Fu等[7]研究表明,腹泻仔猪肠道中NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎性小体活化水平显著升高,可触发半胱氨酸天冬氨酸蛋白酶-1(Caspase-1)介导的细胞焦亡,促使白细胞介素-1β(IL-1β)、白细胞介素-18(IL-18)等促炎因子大量释放,进而加剧肠黏膜损伤。Chao等[8]证实,由受体相互作用蛋白激酶1(RIPK1)、受体相互作用蛋白激酶3(RIPK3)及混合谱系激酶域样蛋白(MLKL)组成的信号通路介导的坏死性凋亡,可破坏肠上皮细胞完整性,诱导炎性细胞浸润并放大肠道炎症反应。此外,目前已有研究表明,细胞焦亡与坏死性凋亡在肠炎进程中常被协同激活,二者共同参与肠黏膜屏障破坏与腹泻发生发展[9]
孕烷X受体(PXR)是核受体超家族的重要成员,于1998年首次被发现,其表达具有组织特异性,主要分布于肝脏及肠道组织[10-11]。PXR不仅参与外源物代谢过程,还可通过调控核因子-κB(NF-κB)等关键炎症信号通路,减轻肠道炎症反应,维持黏膜屏障稳态[12-13]。既往研究及本团队前期研究结果均表明,PXR激活可改善肠道黏膜结构与功能,并在肠道免疫调节中发挥保护作用[14-15]。鉴于其在肠道黏膜保护与免疫调控中的核心作用,PXR已成为调控肠道健康的关键靶点,为研发天然、安全的肠道炎症干预策略提供了重要方向。多种天然化合物,如生姜提取物呋喃二烯酮、穿心莲内酯等被证实可通过靶向PXR发挥抗炎及调节免疫等生物学效应,为绿色、非抗养殖提供了新的理论依据[16-17]
当前,在国家“生猪稳产保供”“绿色健康养殖”和“减抗替抗”战略背景下,阐明肠道炎症的非抗性调控机制,对推动仔猪健康养殖与生猪产业可持续发展具有重要战略意义。现有研究虽已明确PXR在肠道炎症中的关键作用,但PXR在PWD仔猪肠道中的表达情况,以及PWD状态下仔猪肠道细胞焦亡与坏死性凋亡的激活情况,仍有待进一步阐明。基于此,本试验以PWD仔猪为研究对象,系统分析其肠道组织中PXR的表达变化及细胞程序性死亡信号通路的活化特征,为揭示仔猪肠道炎症的免疫调控机制、研发腹泻防控技术提供新的理论支撑与科学依据。

1 材料与方法

1.1 试剂与仪器

1.1.1 主要试剂

苏木精-伊红(HE)染色试剂盒、BCA浓度测定试剂盒、苯甲基磺酰(PMSF)、NP-40裂解液、十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶配制试剂盒、SDS-PAGE蛋白上样缓冲液(5×)均购于碧云天生物技术有限公司;增强型化学发光液(ECL)、聚偏二氟乙烯(PVDF)膜购于西格玛奥德里奇贸易有限公司。
PXR抗体(A17038)购于武汉爱博泰克生物科技有限公司;肿瘤坏死因子-α(TNF-α)抗体(346654)、磷酸化NF-κB P65(p-P65)抗体(R380738)、核因子-κB抑制蛋白α(IκBα)抗体(R22588)购于成都正能生物科技有限公司;闭锁小带蛋白-1(ZO-1)抗体(21773-1-AP)、闭合蛋白(Occludin)抗体(27206-1-AP)购于武汉三鹰生物技术有限公司;β-肌动蛋白(β-actin)抗体(60008-1-Ig)购于赛默飞世尔科技有限公司。除非有特殊说明,其他抗体均购于武汉爱博泰克生物科技有限生物科技有限公司。

1.1.2 主要仪器

酶标仪(型号:MR-96A)购自深圳迈瑞生物医疗电子股份有限公司;ChemiDoc XRS+化学发光成像系统(型号:Chemi Doc+)购自美国Bio-Rad公司;电泳槽(型号:DYCZ-MINI4)、转膜仪(型号:DYCZ-Trans2)购自于北京六一生物科技有限公司。

1.2 试验设计

所有试验动物均购自黑龙江省畜牧业科技园区,饲喂条件一致。动物试验过程严格遵守黑龙江八一农垦大学实验动物福利与伦理委员会规定,并经过审批(批准号:JXY2022037)。
根据断奶后3 d是否发生腹泻,选取12头21日龄断奶去势仔猪,分为腹泻组[n=6,平均体重(6.29±0.13) kg]和健康组[n=6,平均体重(6.76±0.26) kg]。分别对健康组与腹泻组仔猪进行屠宰采用。屠宰前,使用戊巴比妥钠对仔猪进行麻醉,随后通过颈动脉放血处死后立即剖腹取出完整小肠,置于冰上低温保存。按解剖位置将小肠分为十二指肠、空肠和回肠,分别从十二指肠、空肠中段及回肠远端各截取约2 cm组织,用预冷无菌生理盐水轻轻冲洗肠内容物后,一部分置于4%多聚甲醛中固定,用于组织学观察;另一部分于-80 ℃冷冻保存,用于后续蛋白表达检测。

1.3 指标检测

1.3.1 肠道组织形态学观察

为评价PWD对肠道结构完整性的影响,分别取健康组与腹泻组仔猪的肠道组织,经4%多聚甲醛固定、石蜡包埋后切片,进行HE染色。随后,使用光学显微镜观察肠道黏膜结构变化,并采集图像进行分析。

1.3.2 肠道黏膜屏障相关蛋白表达检测

取健康组与腹泻组仔猪的空肠组织,采用免疫荧光(IF)检测ZO-1的定位分布;采用蛋白质印迹(WB)检测ZO-1与Occludin的表达情况。通过分析荧光信号强度与WB条带灰度值,综合评价PWD对肠黏膜屏障结构与功能的影响。

1.3.3 肠道促炎因子及炎症信号通路相关蛋白表达检测

为阐明PWD引起的炎症反应机制,分别取健康组与腹泻组仔猪的空肠组织,采用WB检测促炎因子——一氧化氮合酶(iNOS)、环氧合酶-2(COX-2)、白细胞介素-6(IL-6)、成熟型IL-1β(mature-IL-1β)、成熟型IL-18(mature-IL-18)、TNF-α、高迁移率族蛋白B1(HMGB1)的表达情况,通过分析WB条带灰度值,分析PWD对肠道促炎因子分泌的影响;此外,采用免疫组化(IHC)和WB检测炎症信号通路相关蛋白——Toll样受体4(TLR4)、p-P65、IκBα、磷酸化细胞外信号调节激酶(p-ERK)、磷酸化P38(p-P38)的定位分布及表达情况,结合IHC和WB结果,综合评估TLR4/NF-κB及MAPK信号通路在PWD导致的肠道性炎症反应中的激活情况。

1.3.4 肠道细胞焦亡及坏死性凋亡相关蛋白表达检测

为探讨PWD导致的细胞程序性死亡类型,分别取健康组与腹泻组仔猪的空肠组织,采用IHC和WB检测焦亡相关蛋白——NLRP3、半胱天冬酶-1前体(pro-Caspase-1)、剪切的半胱天冬酶-1(cleaved-Caspase-1)、消皮素D-N(GSDMD-N)、消皮素D-F(GSDMD-F)以及坏死性凋亡相关蛋白——磷酸化受体相互作用蛋白激酶1(p-RIPK1)、磷酸化受体相互作用蛋白激酶3(p-RIPK3)、磷酸化混合谱系激酶域样蛋白(p-MLKL)和FAS相关死亡结构域蛋白(FADD)的定位分布及表达情况,结合IHC和WB结果,评估PWD对仔猪肠上皮细胞死亡模式的调控作用。

1.3.5 肠道PXR表达检测

分别取健康组与腹泻组仔猪的空肠组织,采用IHC和WB检测空肠组织中PXR的定位分布及表达情况,结合IHC和WB结果,综合分析PWD对仔猪肠道组织中PXR表达的影响。

1.4 数据统计分析

试验数据采用GraphPad Prism 8.0软件进行统计分析,结果以平均值±标准差(mean±SD)表示。采用独立样本t检验分析2组间的差异,P<0.05判定为差异显著,P<0.01判定为差异极显著。

2 结果与分析

2.1 PWD对仔猪小肠各段组织结构的影响

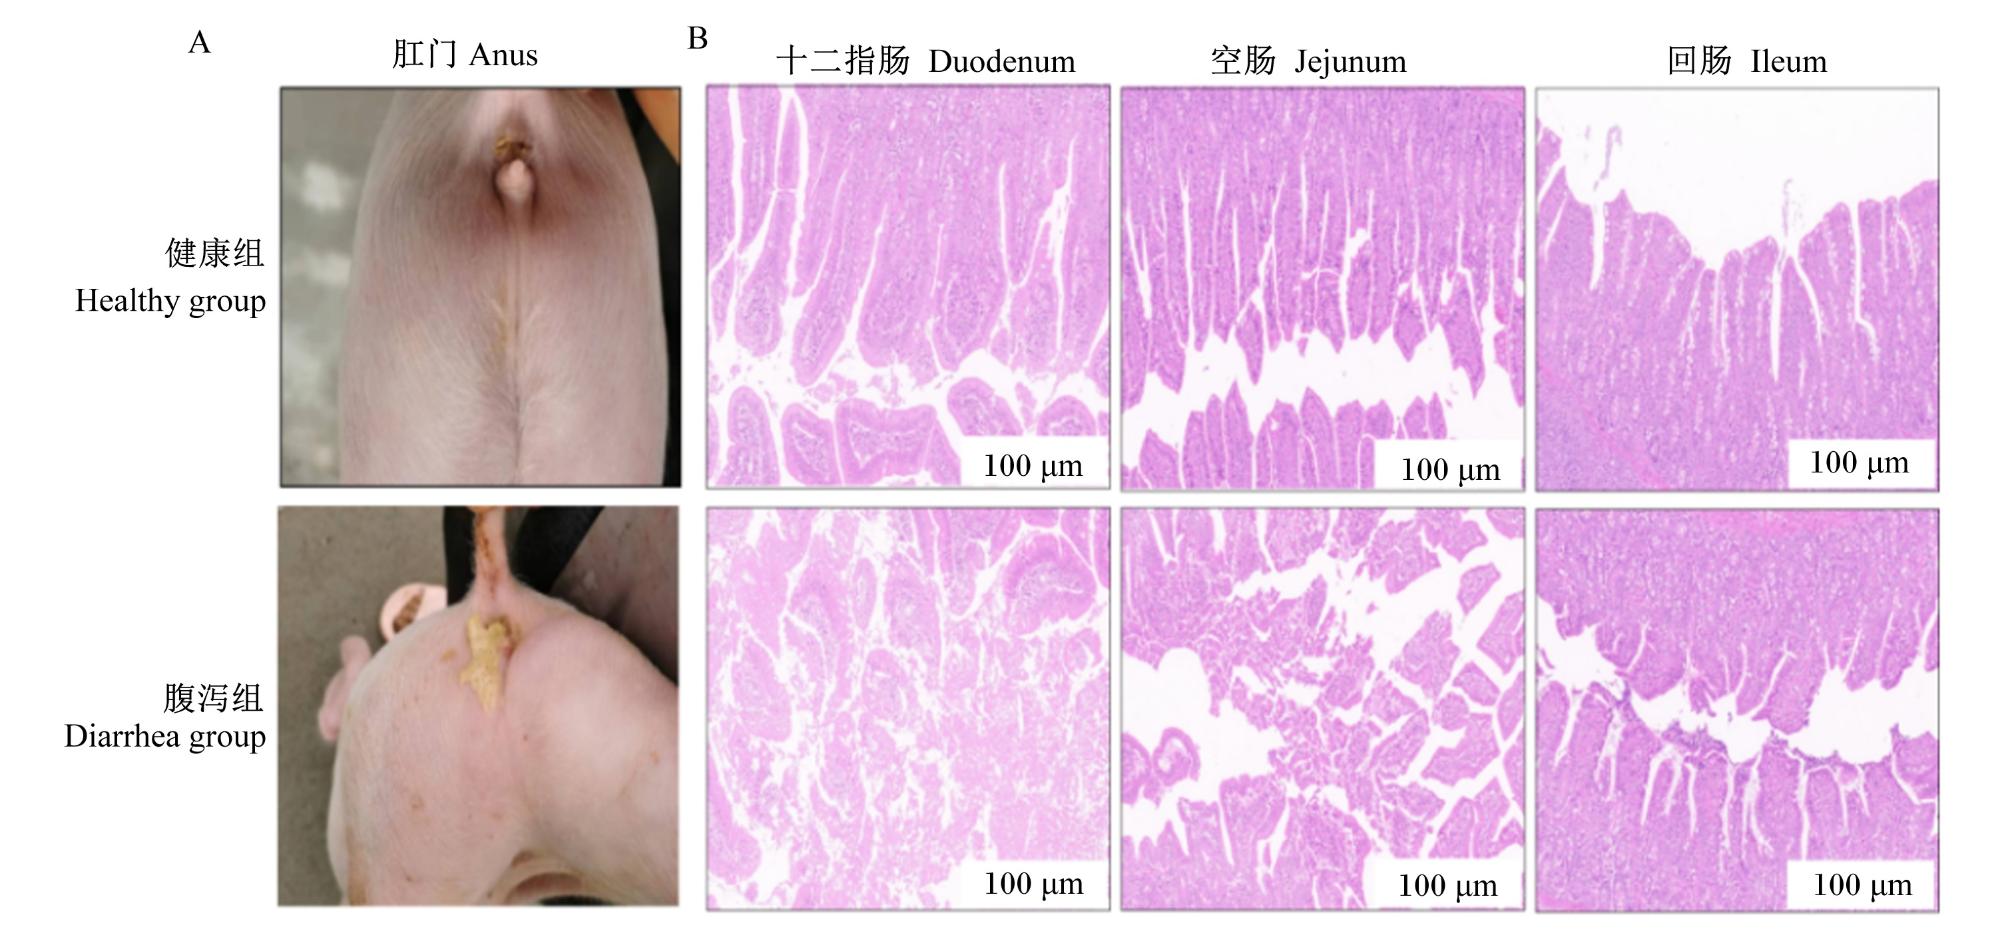
图1-A可以看出,健康组仔猪肛门较为干净,而腹泻组仔猪肛门有明显黄色稀粪排出;同时,对肠道组织HE染色切片(图1-B)进行观察发现,健康组仔猪肠道形态完整,绒毛排列整齐、结构清晰,未见明显损伤;相比之下,腹泻组仔猪肠道绒毛出现明显萎缩与脱落,隐窝结构紊乱,并伴有大量炎性细胞浸润,同时,损伤程度在不同肠段间存在差异,其中以空肠组织的病变最为显著,因此后续分子机制研究均集中于该肠段。以上结果表明,PWD可导致仔猪肠道结构完整性严重受损。
图1 健康组与腹泻组仔猪肛门表观(A)和各段小肠组织HE染色切片(B)

Fig.1 Anal appearance (A) and HE-stained sections of small intestinal segments (B) from piglets in healthy group and diarrhea group (n=6)

2.2 PWD对仔猪肠道黏膜屏障的影响

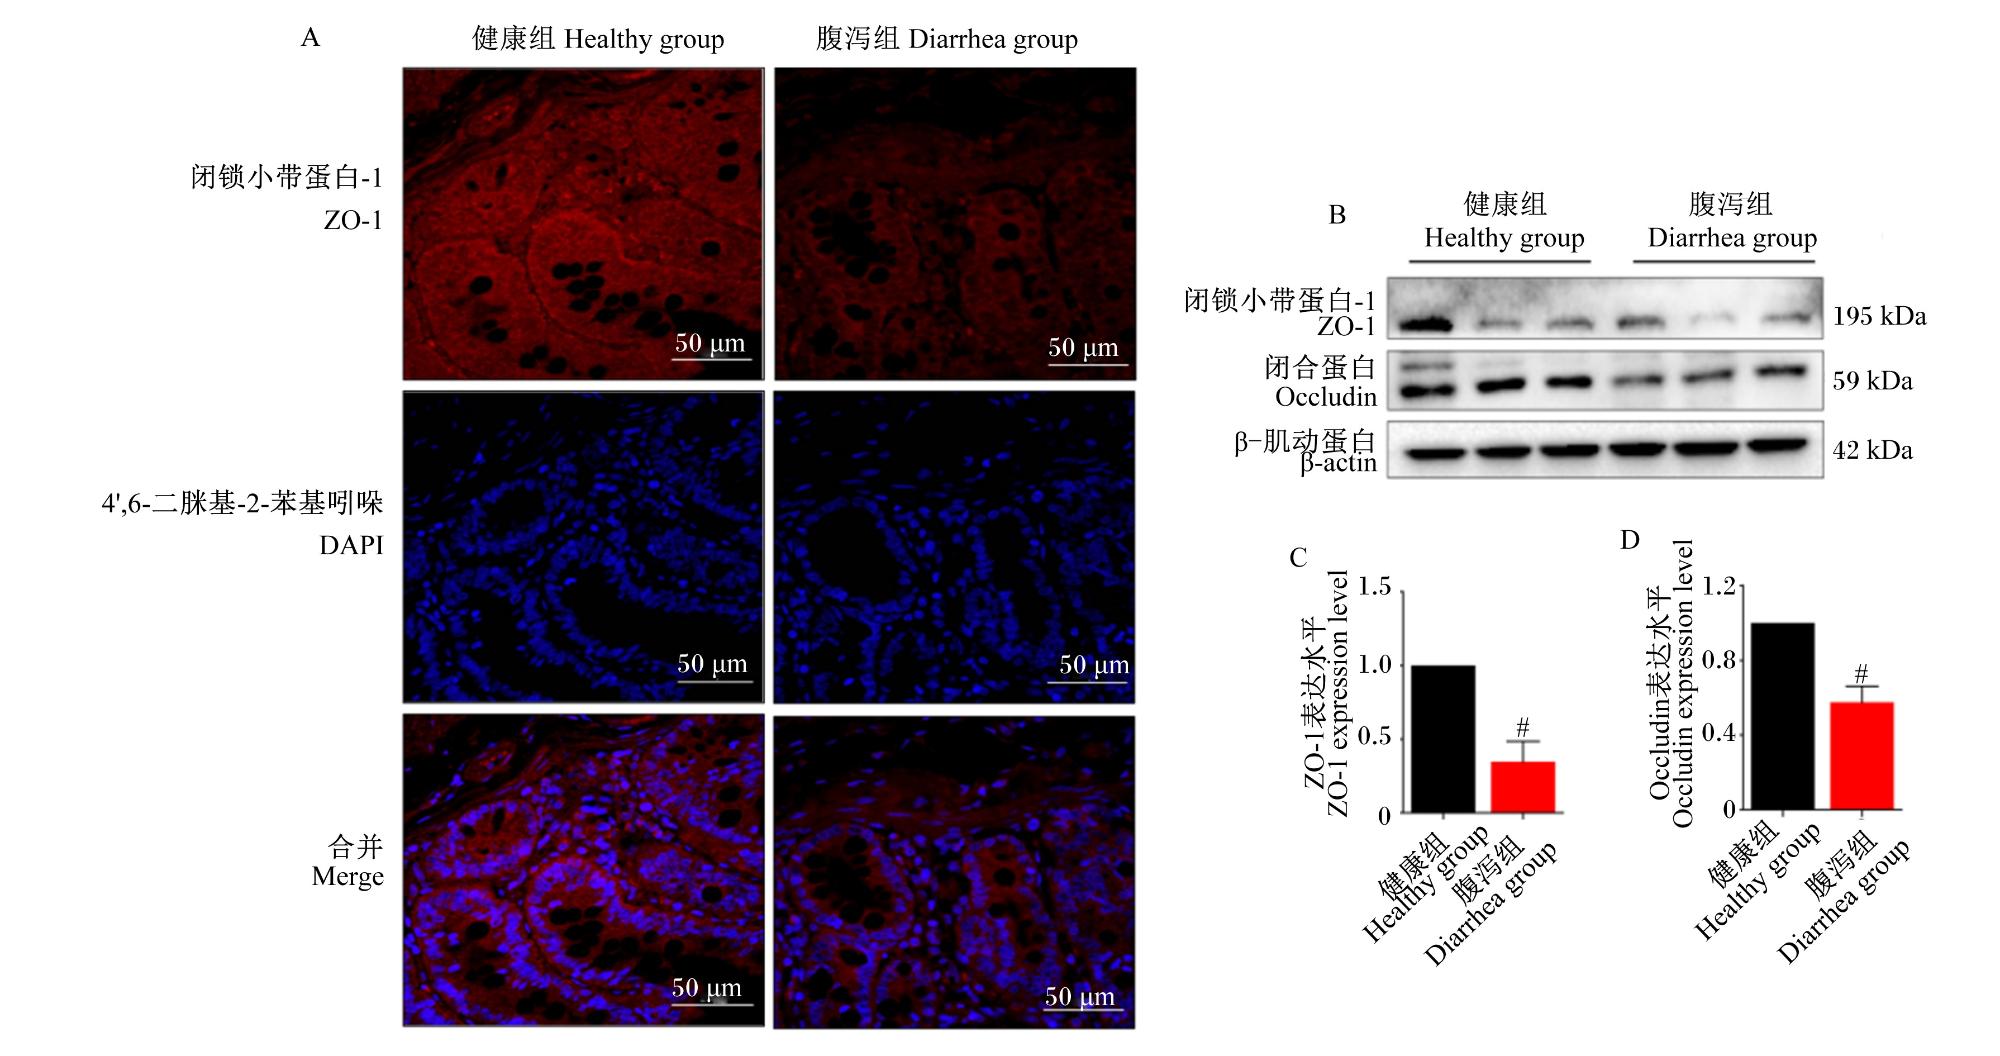
图2-A可知,与健康组相比,腹泻组仔猪空肠组织中ZO-1的荧光信号强度明显减弱,4',6-二脒基-2-苯基吲哚(DAPI)标记的细胞核数量亦明显减少;由图2-B图2-D可知,相较于健康组,腹泻组仔猪空肠组织中ZO-1与Occludin的表达水平均显著降低(P<0.05)。这表明PWD破坏了仔猪空肠上皮细胞间紧密连接结构,导致肠黏膜屏障结构完整性下降,进而加剧了肠道损伤风险。
图2 健康组与腹泻组仔猪空肠组织中黏膜屏障相关蛋白的表达情况

A:免疫荧光检测ZO-1的定位分布;B:蛋白质印迹检测ZO-1与Occludin的表达;C:ZO-1表达的定量分析;D:Occludin表达的定量分析。目的蛋白表达水平以内参β-肌动蛋白校正后,将健康组的表达水平设为1,健康组的数据以健康组的倍数表示。腹泻组数据柱标注“#”表示与健康组相比差异显著(P<0.05),标注“##”表示与健康组相比差异极显著(P<0.01)。下图同。

Fig.2 Expression of mucosal barrier-associated proteins in jejunal tissues of piglets in healthy group and

A: localization and distribution of ZO-1 detected by IF; B: expression of ZO-1 and Occludin detected by WB; C: quantitative analysis of ZO-1 expression; D: quantitative analysis of Occludin expression. The expression level of the target protein was normalized to the internal control β-actin. The expression level in the healthy group was set to 1, and data from the diarrhea group were expressed as fold change relative to the healthy group. Compare with the healthy group, data columns of diarrhea group with “#” indicated significant difference (P<0.05), and with “##” indicated extremely significant difference (P<0.01). The same as below.

diarrhea group (n=6)

2.3 PWD对仔猪肠道促炎因子分泌的影响

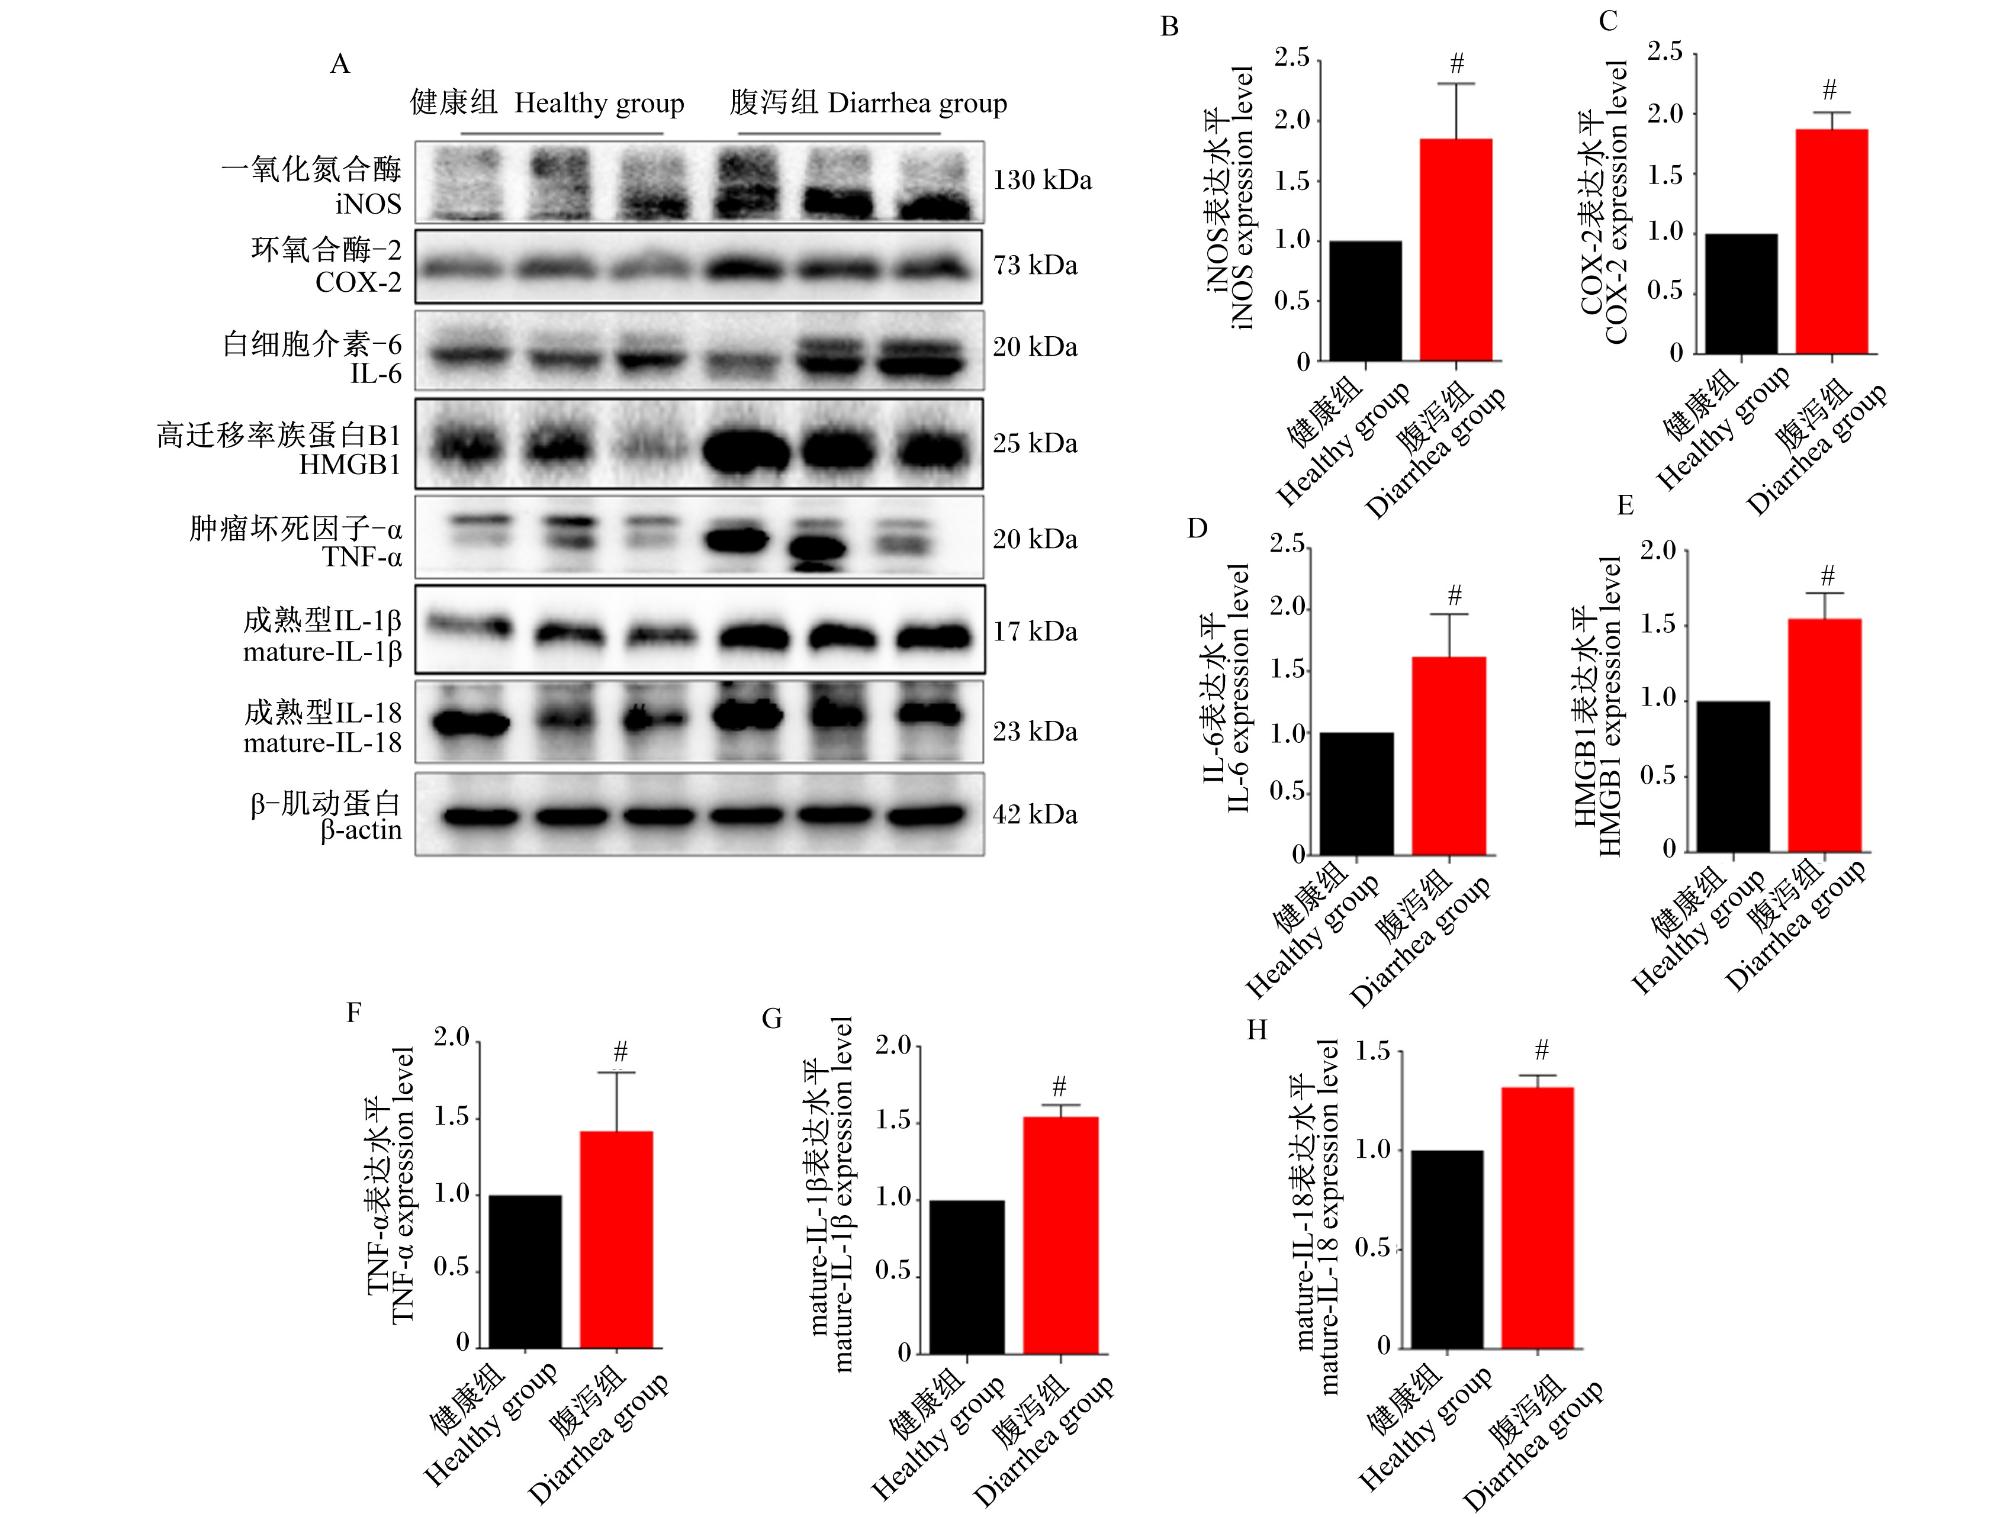
图3可知,相较于健康组,腹泻组仔猪空肠组织中iNOS、COX-2、IL-6、HMGB1、TNF-α、mature-IL-1β、mature-IL-18的表达水平均显著上调(P<0.05)。上述结果表明,PWD可促进仔猪肠道促炎因子的分泌,加剧局部炎症反应,从而进一步加重肠道结构损伤。
图3 健康组与腹泻组仔猪空肠组织中促炎因子的表达情况

A:蛋白质印迹检测iNOS、COX-2、IL-6、HMGB1、TNF-α、成熟型IL-1β、成熟型IL-18的表达;B:iNOS表达的定量分析;C:COX-2表达的定量分析;D:IL-6表达的定量分析;E:HMGB1表达的定量分析;F:TNF-α表达的定量分析;G:成熟型IL-1β表达的定量分析;H:成熟型IL-18表达的定量分析。

Fig.3 Expression of pro-inflammatory cytokines in jejunal tissues of piglets in healthy group and diarrhea group (n=6)

A: expression of iNOS, COX-2, IL-6, HMGB1, TNF-α, mature-IL-1β and mature-IL-18 detected by WB; B: quantitative analysis of iNOS expression; C: quantitative analysis of COX-2 expression; D: quantitative analysis of IL-6 expression; E: quantitative analysis of HMGB1 expression; F: quantitative analysis of TNF-α expression; G: quantitative analysis of mature-IL-1β expression; H: quantitative analysis of mature-IL-18 expression.

2.4 PWD对仔猪肠道炎症信号通路的影响

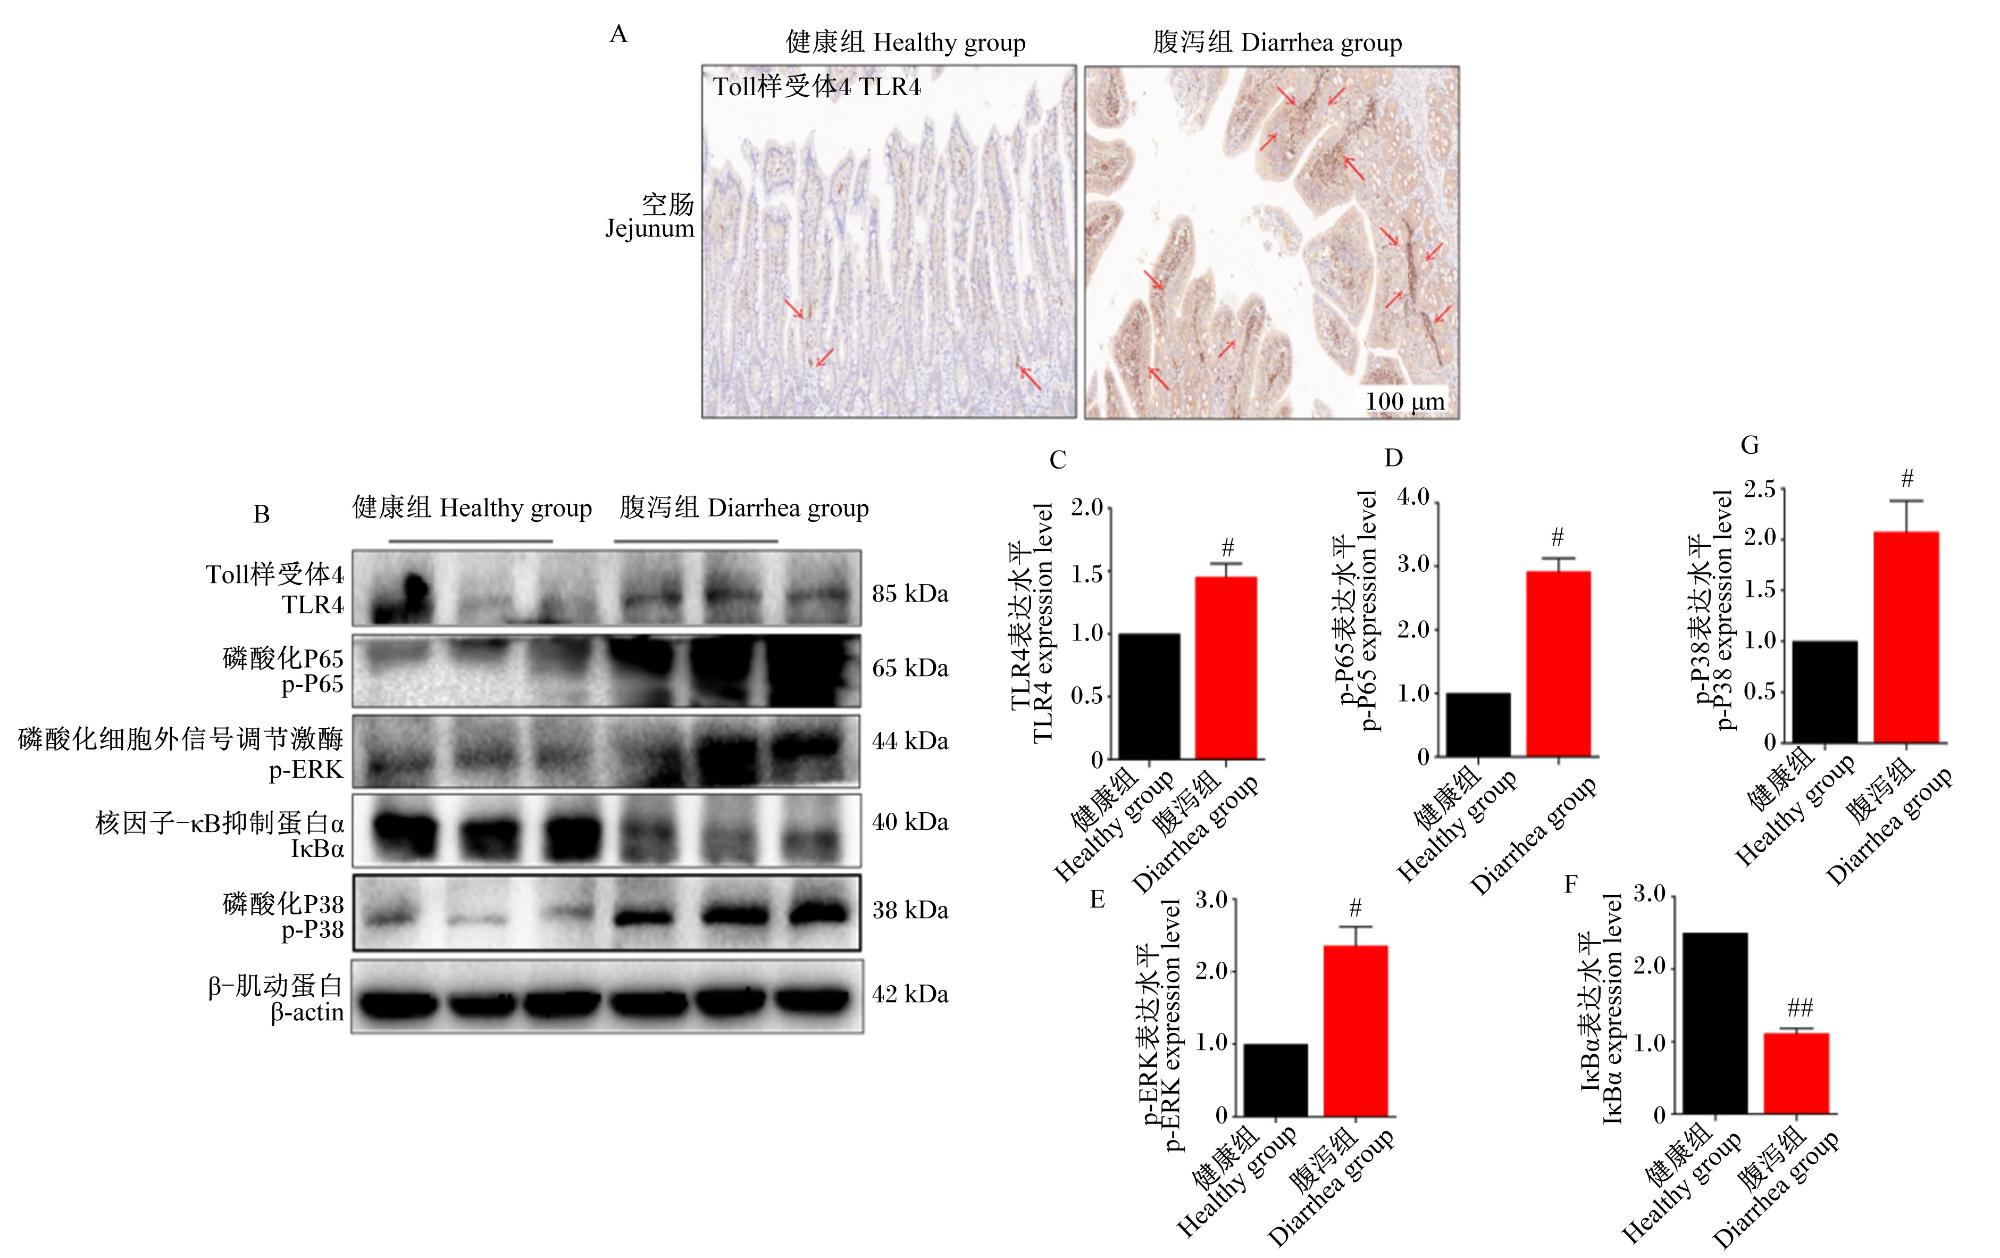
IHC结果(图4-A)显示,与健康组相比,腹泻组仔猪空肠组织中TLR4阳性信号(棕褐色颗粒,图中箭头所示)明显增强,提示其蛋白表达水平升高;由图4-B图4-G可知,腹泻组仔猪空肠组织中TLR4、p-P65、p-ERK及p-P38的表达水平均较健康组显著升高(P<0.05),而IκBα的表达水平较健康组极显著下降(P<0.01)。上述结果提示,PWD可激活TLR4/NF-κB/MAPK信号通路,促进肠道炎症信号转导。
图4 健康组与腹泻组仔猪空肠组织中炎症信号通路相关蛋白的表达情况

A:免疫组化检测TLR4的定位分布;B:蛋白质印迹检测TLR4、p-P65、p-ERK、IκBα及p-P38的表达;C:TLR4表达的定量分析;D:p-P65表达的定量分析;E:p-ERK表达的定量分析;F:IκBα表达的定量分析;G:p-P38表达的定量分析。

Fig.4 Expression of pro-inflammatory cytokines in jejunal tissues of piglets in healthy group and diarrheal group (n=6)

A: localization and distribution of TLR4 detected by IHC; B: expression of TLR4, p-P65, p-ERK, IκBα and p-P38 detected by WB; C: quantitative analysis of TLR4 expression; D: quantitative analysis of p-P65 expression; E: quantitative analysis of p-ERK expression; F: quantitative analysis of IκBα expression; G: quantitative analysis of p-P38 expression.

2.5 PWD对仔猪肠道细胞焦亡的影响

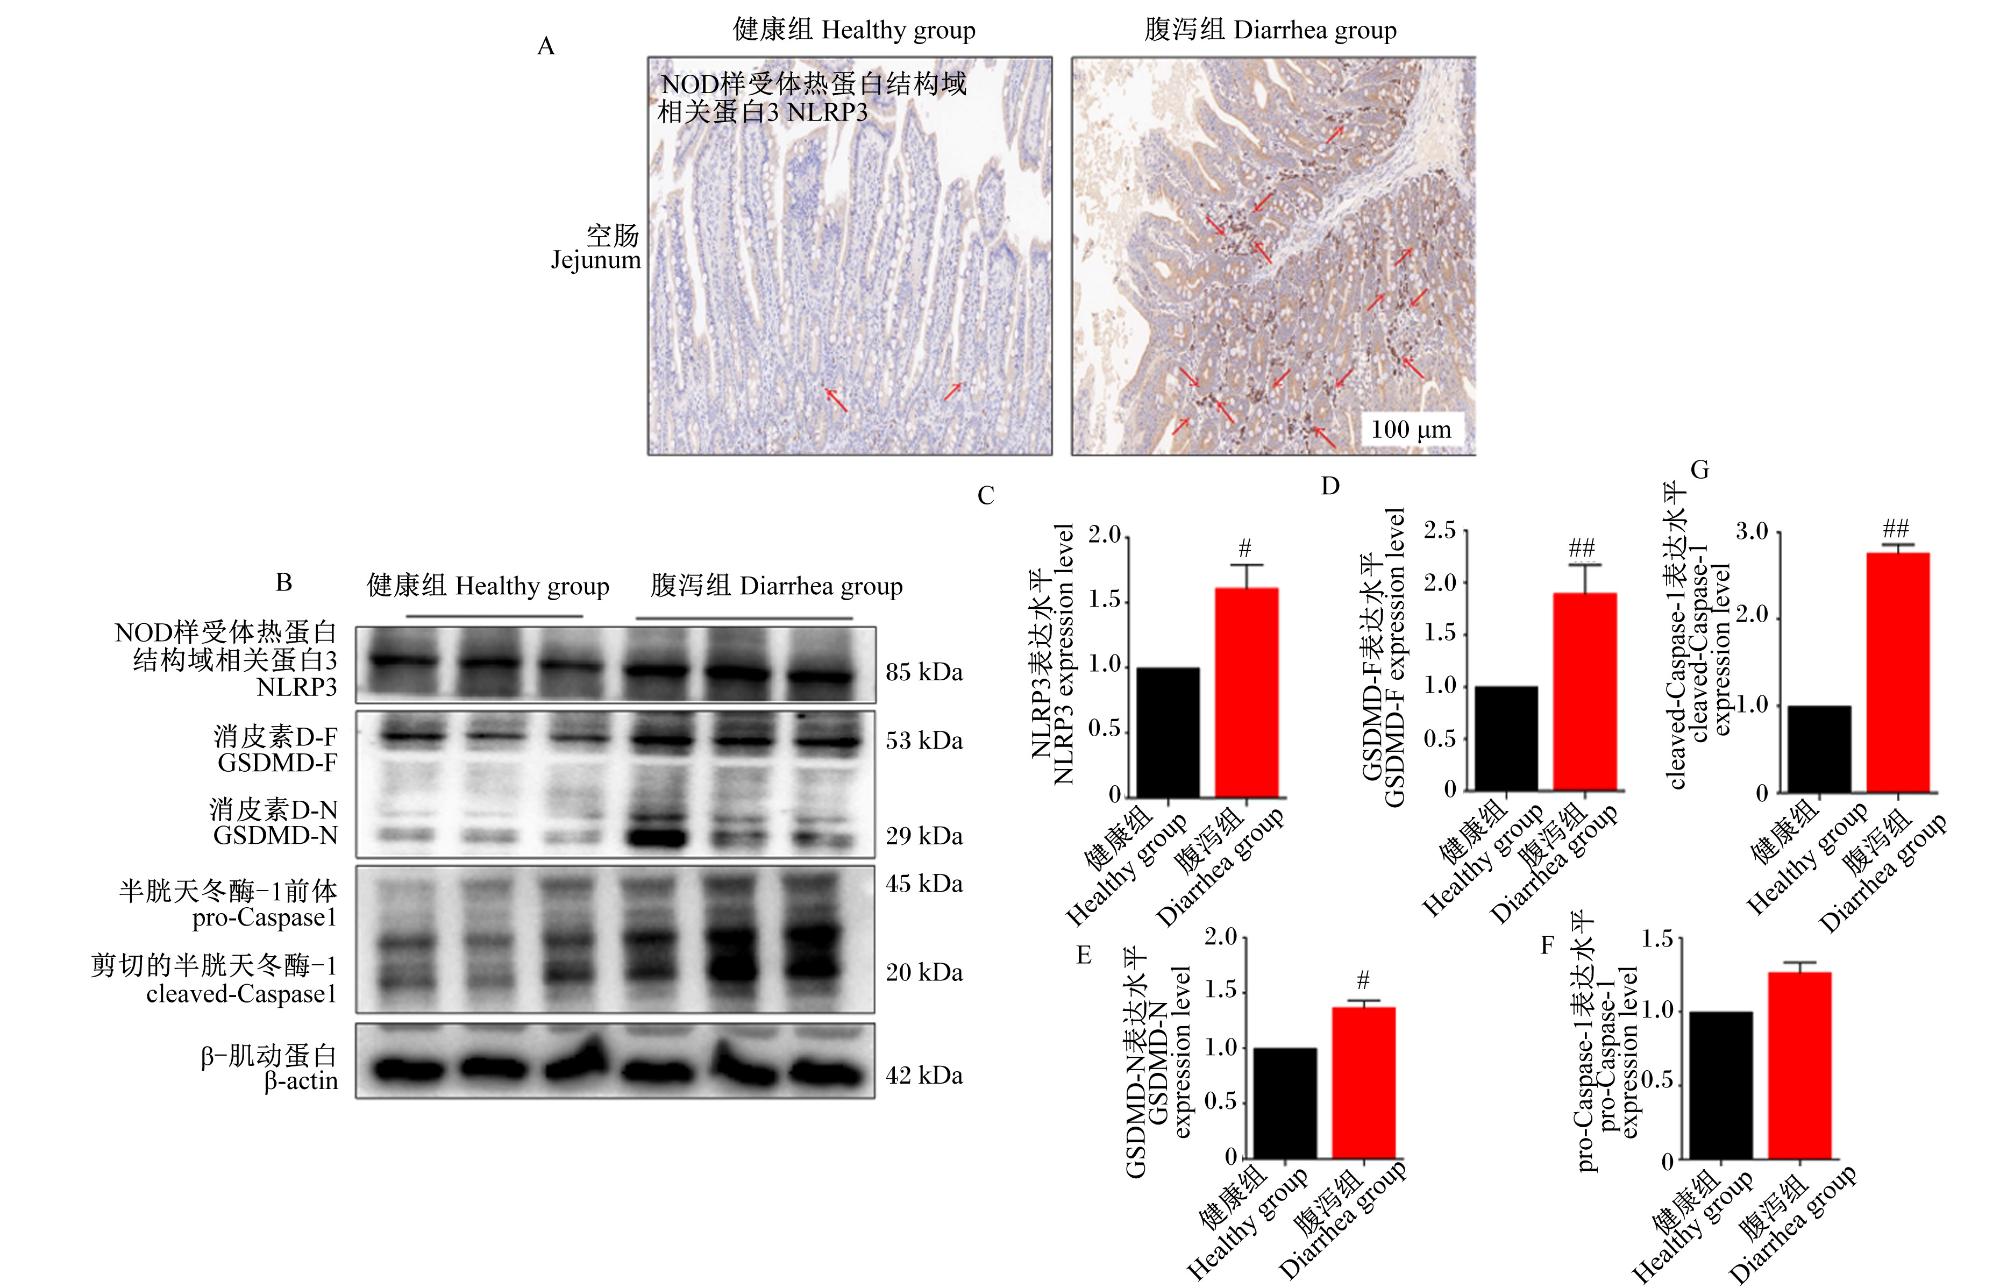
图5-A可知,与健康组相比,腹泻组仔猪空肠组织中NLRP3阳性信号(棕褐色颗粒,图中箭头所示)强度增强,阳性细胞比例明显升高;由图5-B图5-G可知,腹泻组仔猪空肠组织中NLRP3、GSDMD-N的表达水平较健康组显著增加(P<0.05),GSDMD-F、cleaved-Caspase-1的表达水平较健康组极显著升高(P<0.01)。上述结果提示,PWD可激活仔猪肠道中NLRP3/Caspase-1/GSDMD介导的细胞焦亡反应,进而诱发肠道炎症反应。
图5 健康组与腹泻组仔猪空肠组织中细胞焦亡相关蛋白的表达情况

A:免疫组化检测NLRP3的定位分布;B:蛋白质印迹检测NLRP3、GSDMD-F、GSDMD-N、pro-Caspase-1 和cleaved-Caspase-1的表达;C:NLRP3表达的定量分析;D:GSDMD-N表达的定量分析;E:GSDMD-N表达的定量分析;F:pro-Caspase-1表达的定量分析;G:cleaved-Caspase-1表达的定量分析。

Fig.5 Expression of pyroptosis-related proteins in jejunal tissues of piglets in healthy group and diarrheal group (n=6)

A: localization and distribution of NLRP3 detected by IHC; B: expression of NLRP3, GSDMD-F, GSDMD-N, pro-Caspase-1 and cleaved-Caspase-1 detected by WB; C: quantitative analysis of NLRP3 expression; D: quantitative analysis of GSDMD-N expression; E: quantitative analysis of GSDMD-N expression; F: quantitative analysis of pro-Caspase-1 expression; G: quantitative analysis of cleaved-Caspase-1 expression.

2.6 PWD对仔猪肠道坏死性凋亡的影响

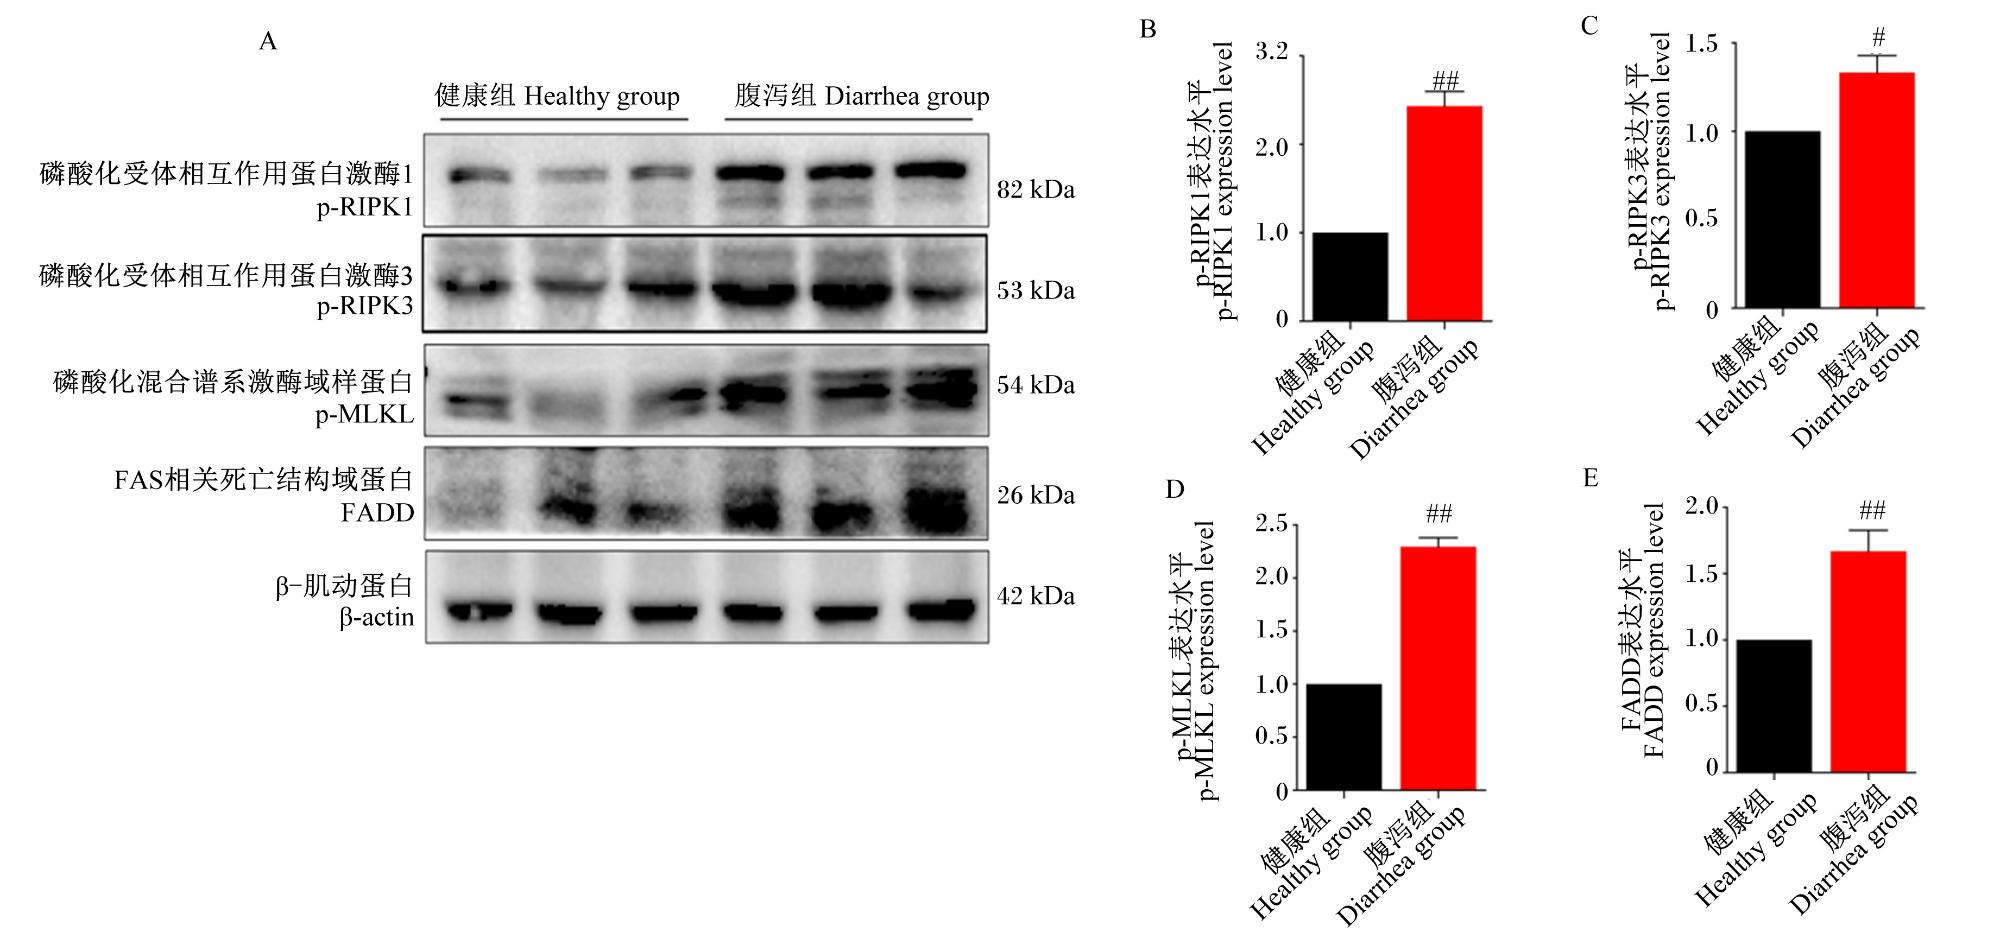
图6可知,与健康组相比,腹泻组仔猪空肠组织中p-RIPK1、p-MLKL和FADD的表达水平均极显著升高(P<0.01),p-RIPK3的表达水平显著升高(P<0.05)。这表明,PWD能够激活肠道RIPK1/RIPK3/MLKL信号通路介导的坏死性凋亡,进而加重肠道炎症反应。
图6 健康组与腹泻组仔猪空肠组织中坏死性凋亡相关蛋白的表达情况

A:蛋白质印迹检测p-RIPK1、p-RIPK3、p-MLKL和FADD的表达;B:p-RIPK1表达的定量分析;C:p-RIPK3表达的定量分析;D:p-MLKL表达的定量分析;E:FADD表达的定量分析。

Fig.6 Expression of necroptosis-related proteins in jejunal tissues of piglets in healthy group and diarrheal group (n=6)

A: expression of p-RIPK1, p-RIPK3, p-MLKL and FADD detected by WB; B: quantitative analysis of p-RIPK1 expression; C: quantitative analysis of p-RIPK3 expression; D: quantitative analysis of p-MLKL expression; E: quantitative analysis of FADD expression.

2.7 PWD对仔猪肠道PXR表达的影响

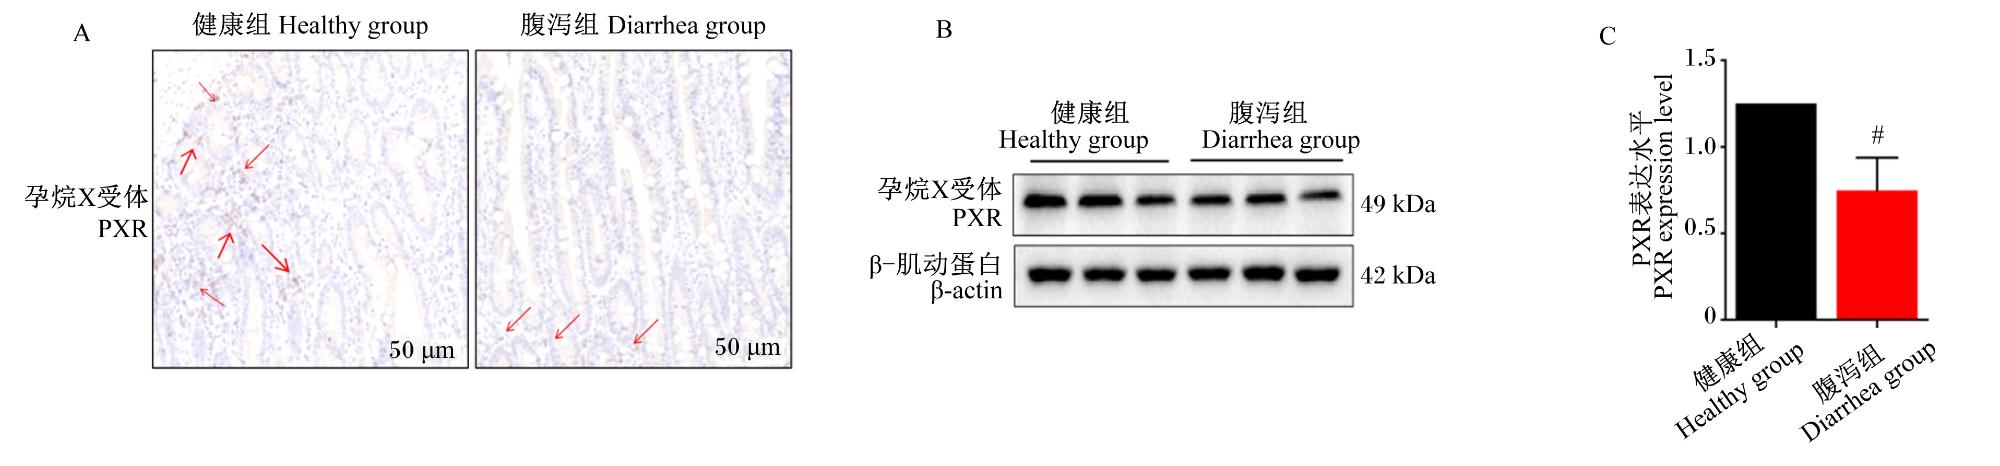
图7-A可知,健康组仔猪空肠组织中PXR阳性信号(棕褐色颗粒,图中箭头所示)强调明显高于腹泻组;由图7-B图7-C可知,腹泻组仔猪空肠组织中PXR的表达水平显著低于健康组(P<0.05)。上述结果表明,PWD可显著抑制仔猪肠道中PXR的表达,进而加重肠道炎症反应。结合前述结果可推测,PWD导致的仔猪肠炎伴随着PXR表达的下调和炎症信号通路及焦亡/坏死性凋亡信号的过度激活,从而加重肠道炎症损伤。
图7 健康组与腹泻组仔猪空肠组织中PXR的表达情况

A:免疫组化检测PXR的定位发布;B:蛋白质印迹检测PXR的表达;C:PXR表达的定量分析。

Fig.7 Expression of PXR in jejunal tissues of piglets in healthy group and diarrheal group (n=6)

A: localization and distribution of PXR detected by IHC; B: expression of PXR detected by WB; C: quantitative analysis of PXR expression.

3 讨论

PWD及其继发的肠道炎症是制约现代猪场生产效率的主要因素之一,病程中普遍存在的屏障破坏、炎症失衡和细胞损伤,使其成为当前“减抗替抗”条件下亟须解决的关键问题。近年来,PXR因参与调控外源物代谢、黏膜免疫和上皮稳态,被认为可能在腹泻性肠炎的进展中发挥调节作用,但其在仔猪PWD中的状态及作用机制尚缺乏系统研究。本研究结果显示,PWD仔猪空肠组织中PXR表达水平显著下调,同时伴随焦亡和坏死性凋亡相关蛋白表达上调、炎症因子(IL-1β、TNF-α等)表达上调以及肠黏膜屏障蛋白(Occludin、ZO-1)表达下调,导致肠道组织结构受损。这提示PXR可能在仔猪肠道炎症损伤中发挥重要保护作用。
PXR作为核受体超家族成员,广泛分布于肠道上皮细胞中,已被证实能够调控炎症反应并维持肠道稳态。例如,Zhang等[18]研究显示,广藿香醇可激活PXR,抑制NF-κB介导的肠道炎症;Yu等[19]报道,PXR是炎症代谢障碍管理中的重要靶点,多种药物可以通过激活PXR等核受体发挥抗炎功能。本研究发现,PWD引发仔猪肠道炎症反应的同时,伴随着PXR表达下调,与Sun等[20]报道的炎症激活伴随PXR表达下调的现象一致,并与IL-1β、TNF-α等的表达水平升高相符;此外,PWD仔猪空肠组织中TLR4、p-P56、p-P38等蛋白的表达水平升高,也验证了TLR4/NF-κB炎症信号通路的激活,提示肠道炎症反应可诱导PXR表达下调,并伴随下游相关炎症信号通路的活化。
在细胞程序性死亡方面,本研究显示,PWD仔猪空肠组织中焦亡相关蛋白NLRP3、cleaved-Caspase-1、GSDMD-N的表达显著上调,坏死性凋亡相关蛋白p-RIPK1、p-RIPK3、p-MLKL及p-FADD的表达亦显著或极显著上调,表明这2类细胞程序性死亡均参与腹泻造成的肠道损伤。研究表明,焦亡和坏死性凋亡可通过破坏肠上皮细胞完整性,促进炎症反应并损伤肠黏膜屏障[21-22]。例如,温瑞瑞等[23]报道,脂多糖(LPS)能够靶向激活炎症小体通路中的Caspase-4/5/11,进而对GSDMD进行特异性切割,最终触发细胞焦亡的发生;Rao等[24]研究表示,炎症可通过激活半胱天冬酶(炎症性Caspase-1/4/5/11、凋亡性Caspase-3/6/8等),介导膜打孔蛋白消皮素(GSDM)家族蛋白切割,进而诱导细胞焦亡这一炎症性程序性细胞死亡。这说明,细胞焦亡可通过炎症小体介导Caspase-1活化及IL-1β、IL-18等细胞因子的释放,在肠炎及其他炎症性疾病的发生过程中发挥重要作用。并且,坏死性凋亡也被证实可调控多种炎症信号通路,进而诱导肠道炎症的发生。例如,Lei等[25]研究证实,硒缺乏所引起的氧化应激可以导致犊牛肠炎及细胞坏死性凋亡;Zhou等[26]研究表明,脱氧雪腐镰刀菌烯醇导致的肠道炎症中也有坏死性凋亡的发生。本研究中,PWD仔猪空肠组织中Occludin和ZO-1的表达水平下降进一步提示肠道屏障功能受损。这说明,PWD仔猪肠道炎症会促进肠道上皮细胞的焦亡和坏死性凋亡,加剧肠道结构损失。另外,近年研究表明,PXR的激活能够抑制炎症相关蛋白的表达,从而影响细胞程序性死亡的进程。例如,Shang等[27]研究表明,PXR的激活可通过上调铁死亡抑制蛋白1(FSP1)的表达来抑制铁死亡相关的细胞程序性死亡。但是,Wang等[28]研究则显示,在人肝肿瘤细胞(HepG2)细胞模型中,激活PXR可上调程序性细胞死亡蛋白4(PDCD4)的表达,从而促进相关细胞凋亡,提示PDCD4可能是PXR的直接靶基因。综上可知,PXR与细胞程序性死亡的调控密切相关,其对细胞程序性死亡的促进或抑制效应可能根据靶向细胞不同而有所不同,具体作用机制仍有待深入探究。
由此可见,PXR表达下调、细胞程序性死亡增强及炎症激活构成了腹泻仔猪肠道损伤的关键机制。另外,Yue等[29]报道,PXR激动剂可通过增强PXR表达抑制肝细胞凋亡。多项研究表明PXR可通过调控TLR4/NF-κB/Caspase-1/GSDMD等轴协调性地抑制焦亡和坏死性凋亡,从而维持肠道稳态[15,30]。结合本研究结果推测,PXR水平降低可能削弱其对细胞程序性死亡信号的调控,使焦亡与坏死性凋亡更易被激活,从而加剧肠道损伤。
综上所述,本研究明确了PWD仔猪肠道中PXR表达下调、细胞程序性死亡增强以及炎症反应放大,三者共同构成了肠黏膜损伤的重要环节。PXR在肠道稳态中的保护作用可能与其对焦亡和坏死性凋亡的调控有关,其表达降低则使炎症与屏障损伤更易扩大。这不仅丰富了PWD的分子病理机制,也为基于PXR靶点的植物源天然激活剂研发提供了理论基础,对养殖业肠道炎症防控的绿色化与精准化具有重要参考价值。

4 结论

PWD可抑制仔猪肠道中PXR的表达,激活肠道炎症通路与细胞程序性死亡途径,破坏肠黏膜屏障并损伤肠道结构,最终共同加剧肠道损伤。
[1]
范毅. 断奶仔猪传染性腹泻的诊断及防治[J]. 中国动物保健, 2023, 25(3):11-12.

FAN Y. Diagnosis and prevention of infectious diarrhea in weaned piglets[J]. China Animal Health, 2023, 25(3):11-12. (in Chinese)

[2]
徐玲瑶, 庄亿铮, 傅奕涵, 等. 猪精神健康性状研究进展[J]. 浙江大学学报(农业与生命科学版), 2024, 50(5):679-688.

XU L Y, ZHUANG Y Z, FU Y H, et al. Research progress on mental health traits of pigs[J]. Journal of Zhejiang University (Agriculture & Life Sciences), 2024, 50(5):679-688. (in Chinese)

[3]
HAN X B, HU X D, JIN W, et al. Dietary nutrition,intestinal microbiota dysbiosis and post-weaning diarrhea in piglets[J]. Animal Nutrition, 2024,17:188-207.

[4]
CAO S T, HOU L, SUN L H, et al. Intestinal morphology and immune profiles are altered in piglets by early-weaning[J]. International Immunopharmacology, 2022,105:108520.

[5]
陈朝红, 刘志红. 细胞程序性死亡研究进展[J]. 肾脏病与透析肾移植杂志, 2025, 34(1):57-64.

CHEN Z H, LIU Z H. The mechanism insights into programmed cell death[J]. Chinese Journal of Nephrology Dialysis & Transplantation, 2025, 34(1):57-64. (in Chinese)

[6]
KETELUT-CARNEIRO N, FITZGERALD K A. Apoptosis, pyroptosis,and necroptosis-oh my!The many ways a cell can die[J]. Journal of Molecular Biology, 2022, 434(4):167378.

DOI

[7]
FU J, JIANG Z P, WEN C Y, et al. Bacterial infection in weaned piglets promotes diarrhea by inducing the NLRP3 inflammasome-pyroptosis pathway[J]. Science China Life Sciences, 2025, 68(10):3021-3036.

DOI

[8]
CHAO L M, ZHANG W J, FENG Y C, et al. Pyroptosis:a new insight into intestinal inflammation and cancer[J]. Frontiers in Immunology, 2024,15:1364911.

[9]
陈纪薇, 王哲奇, 高爱琴, 等. 细胞焦亡在动物肠道炎症损伤中的作用机制研究[J]. 动物营养学报, 2025, 37(3):1480-1488.

DOI

CHEN J W, WANG Z Q, GAO A Q, et al. Study on mechanism of pyroptosis in intestinal inflammatory injury in animals[J]. Chinese Journal of Animal Nutrition, 2025, 37(3):1480-1488. (in Chinese)

DOI

[10]
KLIEWER S A, MOORE J T, WADE L, et al. An orphan nuclear receptor activated by pregnanes defines a novel steroid signaling pathway[J]. Cell, 1998, 92(1):73-82.

PMID

[11]
XIE W, BARWICK J L, DOWNES M, et al. Humanized xenobiotic response in mice expressing nuclear receptor SXR[J]. Nature, 2000, 406(6794):435-439.

DOI

[12]
YU Z L, YUE B, DING L L, et al. Activation of PXR by alpinetin contributes to abrogate chemically induced inflammatory bowel disease[J]. Frontiers in Pharmacology, 2020,11:474.

[13]
DU L W, JIANG W Q, ZHU X Q, et al. Rifaximin alleviates intestinal barrier disruption and systemic inflammation via the PXR/NFκB/MLCK pathway and modulates intestinal Lachnospiraceae abundance in heat-stroke mice[J]. International Immunopharmacology, 2024, 143(Pt 2):113462.

DOI

[14]
ZHANG J H, HUANG Y, LI H, et al. B3galt5 functions as a PXR target gene and regulates obesity and insulin resistance by maintaining intestinal integrity[J]. Nature Communications, 2024, 15(1):5919.

DOI PMID

[15]
ZHENG Y W, QIAO C Y, XIAO W Z, et al. Pregnane X receptor activation attenuates intestinal inflammation:the role of pyroptosis and necroptosis inhibition[J]. International Immunopharmacology, 2025,166:115620.

[16]
WANG X J, ZHANG G H, BIAN Z W, et al. An abundant ginger compound furanodienone alleviates gut inflammation via the xenobiotic nuclear receptor PXR in mice[J]. Nature Communications, 2025, 16(1):1280.

DOI

[17]
ZHANG Y W, HU B F, GUAN S X, et al. Activation of pregnane X receptor sensitizes alcoholic steatohepatitis by transactivating fatty acid binding protein 4[J]. Acta Pharmaceutica Sinica B, 2024, 14(11):4776-4788.

DOI PMID

[18]
ZHANG G H, LIU M J, SONG M, et al. Patchouli alcohol activates PXR and suppresses the NF-κB-mediated intestinal inflammatory[J]. Journal of Ethnopharmacology, 2020,248:112302.

[19]
YU X C, ZHANG Y, WU B X, et al. Multimolecular interactions from Chinese medicines activate nuclear receptor conformational changes:a potential strategy for anti-inflammatory therapy[J]. Drug Metabolism Reviews, 2025, 57(4):535-558.

DOI

[20]
SUN L, SUN Z Z, WANG Q, et al. Role of nuclear receptor PXR in immune cells and inflammatory diseases[J]. Frontiers in Immunology, 2022,13:969399.

[21]
LIU Y L, XU Q, WANG Y, et al. Necroptosis is active and contributes to intestinal injury in a piglet model with lipopolysaccharide challenge[J]. Cell Death & Disease, 2021, 12(1):62.

[22]
WEINLICH R, OBERST A, BEERE H M, et al. Necroptosis in development,inflammation and disease[J]. Nature Reviews Molecular Cell Biology, 2017, 18(2):127-136.

DOI

[23]
温瑞瑞, 李思琦, 李萌新, 等. 中药复方调控细胞焦亡防治溃疡性结肠炎的研究进展[J]. 中国中药杂志, 2025, 50(23):6598-6604.

WEN R R, LI S Q, LI M X, et al. Regulation of pyroptosis by traditional Chinese medicine compound formulas for prevention and treatment of ulcerative colitis:a review[J]. China Journal of Chinese Materia Medica, 2025, 50(23):6598-6604. (in Chinese)

[24]
RAO Z P, ZHU Y T, YANG P, et al. Pyroptosis in inflammatory diseases and cancer[J]. Theranostics, 2022, 12(9):4310-4329.

DOI PMID

[25]
LEI L, MU J, ZHENG Y C, et al. Selenium deficiency causes oxidative stress and activates inflammation,apoptosis,and necroptosis in the intestine of weaned calves[J]. Metallomics, 2023, 15(6).

[26]
ZHOU B, XIAO K, GUO J J, et al. Necroptosis contributes to the intestinal toxicity of deoxynivalenol and is mediated by methyltransferase SETDB1[J]. Journal of Hazardous Materials, 2024,474:134601.

[27]
SHANG Y Y, YAO Q, TAN Y, et al. Pregnane X receptor activation induces ferroptosis resistance through upregulation of FSP1[J]. Molecular Carcinogenesis, 2025, 64(10):1620-1637.

DOI PMID

[28]
WANG S L, LI T, DU J, et al. Pregnane X receptor promotes programmed cell death protein 4 expression in HepG2 cells[J]. Journal of Southern Medical University, 2020, 40(3):370-375.

[29]
YUE F, LIN Z S, WANG H R, et al. 3-indolepropionic acid confers PXR-p53 binding to mitigate deoxynivalenol-induced hepatocyte apoptosis[J]. Science China Life Sciences, 2025, 68(9):2707-2722.

DOI

[30]
LIU Y Y, GAO J, CHEN L, et al. Lithocholic acid ameliorates ulcerative colitis via the PXR/TLR4/NF-κB/NLRP3 signaling pathway and gut microbiota modulation[J]. Cellular and Molecular Life Sciences, 2025, 82(1):336.

DOI PMID

文章导航

/