研究论文

基于网络药理学和体外试验探究竹叶黄酮抗奶牛乳腺氧化应激的关键组分及其机制

  • 赵梓轩 , 1 ,
  • 冶丽花 1 ,
  • 李菲菲 1 ,
  • 郭索依依 1 ,
  • 王志珏 1 ,
  • 吴洲凤 1 ,
  • 张银花 1 ,
  • 王建舫 , 2, * ,
  • 童津津 , 1, *
展开
  • 1 北京农学院动物科学技术学院, 北京 102206
  • 2 北京农学院动物医学院, 北京 102206
* 王建舫,高级实验师,E-mail: ;
童津津,副教授,硕士生导师,E-mail:

赵梓轩(2003—),女,河北石家庄人,硕士研究生,研究方向为反刍动物营养与免疫。E-mail:

Office editor: 田艳明

收稿日期: 2025-12-25

  网络出版日期: 2026-07-14

基金资助

国家自然科学基金项目(32272904)

北京农学院大学生创新创业计划项目

Investigation of Key Components and Mechanisms of Bamboo Leaf Flavonoid in Alleviating Oxidative Stress in Bovine Mammary Gland Based on Network Pharmacology and in Vitro Validation

  • ZHAO Zixuan , 1 ,
  • YE Lihua 1 ,
  • LI Feifei 1 ,
  • GUO Suoyiyi 1 ,
  • WANG Zhijue 1 ,
  • WU Zhoufeng 1 ,
  • ZHANG Yinhua 1 ,
  • WANG Jianfang , 2, * ,
  • TONG Jinjin , 1, *
Expand
  • 1 College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
  • 2 College of Veterinary Medicine, Beijing University of Agriculture, Beijing 102206, China
* WANG Jianfang, senior experimentalist, E-mail: ;
TONG Jinjin, associate professor, E-mail:

Received date: 2025-12-25

  Online published: 2026-07-14

摘要

本研究旨在基于植物非靶向代谢组学、网络药理学、分子对接、分子动力学及体外细胞分子生物学试验方法,系统阐明竹叶黄酮(BLF)对缓解奶牛乳腺氧化应激损伤的有效活性成分及其作用机制。采用超高效液相色谱-四极杆飞行时间质谱(UHPLC-QTOF-MS)鉴定BLF活性成分,结合中药系统药理学数据库与分析平台(TCMSP)、SwissTargetPrediction和PharmMapper数据库预测潜在靶点,并与疾病数据库交叉筛选氧化应激相关靶点。利用Venny绘制韦恩图,STRING数据库构建蛋白质-蛋白质相互作用(PPI)网络,进行基因本体(GO)功能和京都基因与基因组百科全书(KEGG)通路富集分析,并通过分子对接和分子动力学验证核心活性成分与关键靶点的结合模式。此外,建立过氧化氢(H2O2)诱导的奶牛乳腺上皮细胞氧化损伤模型,利用免疫荧光和Western blot技术验证BLF对细胞屏障功能及线粒体自噬相关蛋白表达的影响。结果表明:本试验共鉴定出BLF中异荭草苷、异牡荆苷、木犀草素、槲皮素、芹菜素、苜蓿素和山奈酚等7种主要活性成分,PPI网络分析显示表皮生长因子受体(EGFR)、雌激素受体1(ESR1)、基质金属蛋白酶9(MMP9)、前列腺素内过氧化物合酶2(PTGS2)和SRC原癌基因蛋白(SRC)等为关键靶点。GO功能富集分析表明,BLF可在细胞核、核膜、胰岛素受体复合物等细胞组分,通过脱氢酶活性、结构域结合等分子功能,参与乙酰胆碱分解代谢、脂氧素A4生物合成等生物过程。KEGG通路富集分析揭示,叉头框O(FoxO)信号通路、白细胞介素-17(IL-17)信号通路及核因子-κB(NF-κB)信号通路在BLF抗氧化应激过程中发挥了关键作用。分子对接和分子动力学模拟结果显示,异荭草苷、异牡荆苷与关键靶点EGFR结合能较低,结合更稳定。体外试验表明,BLF能显著恢复连接蛋白表达以维持细胞屏障,并通过上调自噬关键蛋白、促进P62降解,激活磷酸酶和张力蛋白同源物诱导假定激酶1(PINK1)/帕金蛋白(Parkin)介导的线粒体自噬,从而有效缓解氧化应激损伤。综上所述,本研究结合网络药理学预测和体外试验验证,系统阐明了BLF主要通过其核心活性成分异荭草苷和异牡荆苷靶向EGFR,进而激活PINK1/Parkin信号通路介导的线粒体自噬,促进自噬底物P62降解及受损线粒体清除,从而维持细胞屏障功能来缓解奶牛乳腺氧化应激的分子机制。

本文引用格式

赵梓轩 , 冶丽花 , 李菲菲 , 郭索依依 , 王志珏 , 吴洲凤 , 张银花 , 王建舫 , 童津津 . 基于网络药理学和体外试验探究竹叶黄酮抗奶牛乳腺氧化应激的关键组分及其机制[J]. 动物营养学报, 2026 , 38(7) : 5427 -5443 . DOI: 10.12418/CJAN2026.434

Abstract

This study aimed to systematically elucidate the effectively active components and mechanisms of bamboo leaf flavonoid (BLF) in alleviating oxidative stress injury in the bovine mammary gland by integrating plant untargeted metabolomics, network pharmacology, molecular docking, molecular dynamics, and in vitro cellular molecular biology experiments. Ultra-high performance liquid chromatography-quadrupole time-of-flight mass spectrometry (UHPLC-QTOF-MS) was employed to identify the active components of BLF. Potential targets were predicted using Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP), SwissTargetPrediction and PharmMapper databases, and then intersected with disease databases to screen for targets related to oxidative stress. Venn diagram was plotted using Venny, and protein-protein interaction (PPI) network was constructed using STRING database. Gene Ontology (GO) function and Kyoto Encyclopedia of Genes and Genomes (KEGG) pathway enrichment analyses were performed. The binding modes between core components and key targets were verified via molecular docking and molecular dynamics. Additionally, a hydrogen peroxide (H2O2)-induced oxidative injury model in bovine mammary epithelial cells was established. Immunofluorescence and Western blotting were used to verify the effects of BLF on cellular barrier function and mitophagy-related protein expression. The results showed that: a total of 7 main active components in BLF were identified, including homo orientin, isovitexin, luteolin, quercetin, apigenin, tricin and kaempferol. PPI network analysis indicated that epidermal growth factor receptor (EGFR), estrogen receptor 1 (ESR1), matrix metalloproteinase 9 (MMP9), prostaglandin-endoperoxide synthase 2 (PTGS2), and SRC proto-oncogene protein (SRC) were the key targets. GO function enrichment analysis showed that BLF might act in cellular components such as the nucleus, nuclear envelope, and insulin receptor complex, exert molecular functions such as dehydrogenase activity and domain binding, and participate in biological processes such as acetylcholine catabolism and lipoxin A4 biosynthesis. KEGG pathway enrichment analysis revealed that the forkhead box O (FoxO), interleukin-17 (IL-17), and nuclear factor-κB (NF-κB) signaling pathways played key roles in alleviating oxidative stress injury. Molecular docking and molecular dynamics simulation results showed that homo orientin and isovitexin exhibited the lower binding energies with the key target EGFR, indicating the more stable binding. In vitro experiment demonstrated that BLF significantly restored junction protein expression to maintain the cellular barrier. Furthermore, BLF effectively alleviated oxidative stress injury by upregulating key autophagy proteins, promoting P62 degradation, and activating phosphatase and tensin homolog induced putative kinase 1 (PINK1)/Parkin-mediated mitophagy. In conclusion, by combining network pharmacology prediction with in vitro experimental verification, this study systematically elucidates the molecular mechanism by which BLF alleviates the oxidative stress in bovine mammary gland. Specifically, the core active components of BLF, homo orientin and isovitexin, target the EGFR, thereby activating the PINK1/Parkin signaling pathway to mediate mitophagy. This process promotes the degradation of autophagic substrate P62 and the clearance of damaged mitochondria, and ultimately maintains cellular barrier function.

氧化应激是奶牛生产中常见且重要的问题,尤其在高产、围产期、热应激等情况下更为突出[1]。围产期奶牛因能量负平衡、脂肪大量动员,血液中非酯化脂肪酸(NEFA)含量升高,导致肝脏、乳腺等组织产生大量活性氧(ROS),抗氧化系统被耗竭,诱发氧化应激[2]。当饲粮精料比例较高时,奶牛易出现亚急性瘤胃酸中毒,同时伴随瘤胃pH的降低,微生物裂解释放脂多糖(LPS),激活炎症和氧化应激信号通路[3]。因此,氧化应激不仅影响奶牛健康,还会降低产奶量和乳品质量,增加疾病风险[4]。近年来,植物源性天然产物因其较低的副作用和良好的生物活性而受到越来越多的关注。竹叶黄酮(bamboo leaf flavonoid,BLF)作为一种具有抗氧化、抗炎及抗菌等多重生物活性的天然化合物,受到广泛关注[5]。Zhan等[6]在经产荷斯坦奶牛中连续7周每天补充30 g竹叶提取物,结果发现乳蛋白含量显著上升,体细胞数量呈下降趋势。Wu等[7]在饲粮中添加BLF不仅能促进肉鸡生长,还能有效调节其免疫反应,提高血清免疫球蛋白A(IgA)、免疫球蛋白M(IgM)以及抗炎因子白细胞介素-10(IL-10)含量,同时降低血清促炎因子肿瘤坏死因子-α(TNF-α)和白细胞介素-1β(IL-1β)含量。然而,现有的研究多聚焦于BLF对奶牛生产性能、乳品质改善及热应激缓解等宏观表型的描述,或仅局限于常规抗氧化酶活性的测定。BLF如何通过特异性靶点和信号通路调控乳腺上皮细胞氧化应激的深层分子机制尚不清楚,这限制了其作为功能性添加剂的靶向开发和应用拓展。
非靶向代谢组学和网络药理学是近年来迅速发展的2种研究方法,前者能够通过综合分析生物体内代谢产物的变化,揭示药物或活性成分对生物体的整体影响[8];后者则通过构建“药物-靶点-疾病”的复杂网络,探讨药物作用机制及其生物效应[9]。赵梓轩等[10]利用网络药理学结合分子对接技术,对苦参碱抗炎作用机制的多个靶点及多条信号通路进行解析,为其在奶牛生产中的临床转化和应用提供了重要的理论基础。杨嘉睿等[11]运用网络药理学和分子对接技术分析发现,金银花的核心活性成分木樨草素和槲皮素与IL-1β稳定结合,为后续金银花在奶牛生产中开发应用奠定了基础。Gao等[12]通过网络药理学和分子对接技术分析证实,公英散主要通过其活性成分槲皮素、木犀草素和山奈酚,靶向调控肿瘤坏死因子(TNF)、白细胞介素-6(IL-6)等关键炎症因子,并调控TNF和磷脂酰肌醇3-激酶(PI3K)-蛋白激酶B(AKT)信号通路,从而协同发挥其在治疗奶牛乳腺炎中的抗炎作用。Chang等[13]通过网络药理学和试验研究相结合的方法发现,扶正解毒散主要通过其活性成分槲皮素、山奈酚和木犀草素激活PI3K-AKT信号通路来发挥抗病毒作用,是一种有前景的抗猪繁殖与呼吸综合征病毒(PRRSV)的中药方剂。Huang等[14]采用液相色谱-质谱联用(LC-MS)方法对血浆和乳样进行非靶向代谢组学分析,结果发现酮病显著影响甘油磷脂、色氨酸、嘧啶等代谢通路,相关代谢物可作为疾病发生和发展机制的线索。目前,关于BLF的研究多集中在表型观察,缺乏深入的分子机制解析。为了系统揭示其作用机理,本研究采用计算预测与试验验证相结合的策略,利用非靶向代谢组学鉴定活性成分,结合网络药理学筛选关键靶点,并通过分子对接和分子动力学模拟进行初步验证;在此基础上,进一步利用过氧化氢(H2O2)诱导的奶牛乳腺上皮细胞模型,通过免疫荧光和Western blot技术,从细胞屏障功能和线粒体自噬角度对预测结果进行生物学验证,旨在为BLF在奶牛养殖中的应用提供理论依据。

1 材料与方法

1.1 BLF的制备及超高效液相色谱-四极杆飞行时间质谱(UHPLC-QTOF-MS)分析

干燥的竹叶采自浙江省湖州市安吉县。BLF的提取和纯化参照Hu等[15]的方法,经30%乙醇回流提取及正丁醇萃取纯化后,提取率约为6%。样品在提取后存放于-80 ℃备用。
本研究中所用的所有化学试剂均为分析纯级别。UHPLC-QTOF-MS分析所用的活性成分(绿原酸、咖啡酸和木犀草素-7-葡萄糖苷)标准品均购自Sigma公司。BLF样品在冰上解冻并涡旋混合30 s,然后在4 ℃下以13 200×g离心10 min。所有样品均按此前报道的方法[16-17]由上海百趣生物科技有限公司进行UHPLC-QTOF-MS分析。每个样品的300 μL等分样品与1 000 μL提取溶液[甲醇∶水=4∶1(体积比),内标比例为1 000∶10]混合,涡旋混合30 s后,于冰水浴中超声处理10 min。样品在离心(4 ℃,13 200×g,10 min)后,取400 μL上清液过滤(0.22 μm滤膜),随后送至自动进样瓶进行UHPLC-QTOF-MS分析。BLF的代谢谱分析采用1290 UPLC BEH C18柱(1.7 μm×2.1 mm×100 mm,Waters,美国);流动相为0.1%甲酸(相A)和乙腈(相B);流速设定为0.4 mL/min,进样量5 μL;梯度洗脱条件为0~3.5 min(5%~15%相B),3.5~6.0 min(15%~30%相B),6.0~12.0 min(30%~70%相B),12.0~18.0 min(70%~100%相B),18.0~25.0 min(100%相B)。Xcalibur系统连接至Q Exactive Focus质谱仪(Thermo Fisher Scientific,美国),用于获取质谱和串联质谱数据。全质谱分辨率为70 000,串联质谱分辨率为17 500;采用归一化碰撞能量(NCE)模式,碰撞能量设定为15%、30%和45%;喷雾电压分别为+4.0 kV和-3.6 kV。质谱仪在正、负模式下工作。采用二级质谱数据,与上海百趣生物科技有限公司的二级质谱数据库及其裂解特征规律进行比对,以实现物质的鉴定。质量控制(QC)样品通过将所有样品的上清液按等体积分配混合得到。

1.2 BLF活性成分及其抑制氧化应激靶点的筛选

本研究首先通过文献检索及中药系统药理学数据库与分析平台(TCMSP)数据库查询BLF的化学成分,并以口服生物利用度(OB)≥30%和药物相似性(DL)≥0.18为标准筛选活性成分。随后,利用SwissTargetPrediction(https://swisstargetprediction.ch)和PharmMapper(https://lilab-ecust.cn/pharmmapper)数据库预测这些活性成分的作用靶点。同时,以“oxidative stress”为关键词,在DisGeNET(https://disgenet.com)、GeneCards(https://www.genecards.org)及OMIM(https://www.omim.org)数据库中检索疾病相关靶点。最后,将活性成分靶点与疾病靶点取交集,并使用Venny绘制韦恩图,从而确定BLF抑制氧化应激的潜在关键靶点。

1.3 活性成分-交集靶点网络和蛋白质-蛋白质相互作用(PPI)网络构建

将BLF活性成分抑制氧化应激的潜在靶点导入STRING数据库(https://cn.string-db.org),蛋白种类设为“Bos taurus”,置信度为0.40,删除孤立的节点;采用Cytoscape 3.9.1对其进行可视化和拓扑学分析,进而构建交集靶点的PPI网络。再将BLF活性成分与其抑制氧化应激的潜在靶点导入Cytoscape 3.9.1构建活性成分-交集靶点网络。

1.4 基因本体(GO)功能和京都基因与基因组百科全书(KEGG)通路富集分析及相互作用网络构建

为阐明BLF抑制氧化应激的生物学功能和信号通路,本研究将筛选出的潜在靶点上传至DAVID数据库(https://davidbioinformatics.nih.gov),物种限定为“Bos taurus”,进行GO功能注释和KEGG通路富集分析。GO功能分析涵盖生物过程(biological process,BP)、细胞组分(cell component,CC)和分子功能(molecular function,MF),并选取富集程度最高的8个条目。KEGG通路分析在删除人类疾病相关信号通路后共鉴定出14条信号通路,并利用微生信平台进行结果可视化。最后,将BLF、氧化应激、关键靶点及核心KEGG通路信息导入Cytoscape 3.9.1,构建并可视化相互作用网络。

1.5 分子对接和分子动力学模拟

为评估BLF核心活性成分与抑制氧化应激关键靶点的结合能力,本研究首先进行了分子对接。从PDB(https://www.rcsb.org)和PubChem(https://pubchem.ncbi.nlm.nih.gov)数据库获取蛋白质和配体的三维结构,使用PyMOL和AutoDock Tools进行预处理,并通过AutoDock Vina执行对接。随后,为进一步探究复合物的动态相互作用和结合稳定性,利用GROMACS 2022软件进行100 ns的分子动力学模拟。最后,采用PyMOL、VMD和Discovery Studio等软件对整个模拟过程和结果进行分析和可视化。

1.6 免疫荧光检测

将细胞接种于放有细胞爬片的24孔板中,待细胞贴壁生长至适宜密度后,按照试验设计进行分组。试验设置对照组(CON组)、BLF组、模型组(H2O2组)和联合处理组(BLF+H2O2组)。其中,BLF组和BLF+H2O2组首先加入终浓度为80 μg/mL的BLF培养基预处理24 h,随后H2O2组和BLF+H2O2组加入含有800 μmol/L H2O2的培养基继续孵育8 h以诱导氧化应激。吸弃培养基,使用杜氏磷酸盐缓冲液(DPBS)洗涤3次,加入4%多聚甲醛于室温固定15~20 min。DPBS洗涤后,使用0.5% Triton X-100室温通透20 min。再用DPBS洗涤3次,使用含5%山羊血清的封闭液于室温封闭1 h,以阻断非特异性结合。吸去封闭液,滴加稀释好的E-钙黏蛋白(E-cadherin)和β-连环蛋白(β-catenin)一抗工作液,4 ℃湿盒内孵育过夜。次日复温后用DPBS洗涤3次,避光条件下加入荧光标记的二抗工作液,室温孵育1 h。DPBS洗涤后,滴加含有4',6-二脒基-2-苯基吲哚(DAPI)的抗荧光淬灭封片剂对细胞核进行复染并封片。利用激光扫描共聚焦显微镜获取细胞图像,随后借助ImageJ软件测定荧光强度。

1.7 Western blot检测

将细胞以适宜密度接种于培养皿中,观察到细胞融合度接近80%时,按照1.6所述方法进行分组和药物处理:BLF组和BLF+H2O2组给予80 μg/mL BLF预处理24 h,随后H2O2组和BLF+H2O2组给予800 μmol/L H2O2 孵育8 h。处理结束后,采用添加蛋白酶抑制剂和磷酸酶抑制剂的预冷放射免疫沉淀试验(RIPA)裂解液对收集的细胞进行冰上裂解,提取总蛋白,蛋白浓度采用二喹啉甲酸(BCA)蛋白定量试剂盒测定。将蛋白样品加入上样缓冲液煮沸变性,每孔加入20 μg总蛋白样品,经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)实现蛋白分离;当溴酚蓝前沿运行至凝胶末端时终止电泳。随后将分离的蛋白转印至聚偏二氟乙烯(PVDF)膜,并在室温下用三羟甲基氨基甲烷缓冲盐水-吐温20(TBST)配制的5%脱脂奶粉溶液封闭1 h。随后将膜置于稀释好的一抗孵育液中,4 ℃孵育过夜。次日,经TBST洗涤3次(每次10 min)后,加入对应辣根过氧化物酶(HRP)标记的二抗(1∶5 000稀释),室温孵育1 h。膜经TBST冲洗3次后加入增强化学发光(ECL)底物,在凝胶/化学发光成像系统中采集信号。最后采用ImageJ对条带密度进行定量,并以目的蛋白[(苄氯素-1(Beclin-1)、帕金蛋白(Parkin)、磷酸酶和张力蛋白同源物诱导假定激酶1(PINK1)、B细胞淋巴瘤-2/腺病毒E1B 19 kDa相互作用蛋白3(BNIP3)、微管相关蛋白轻链3(LC3)、P62]与内参蛋白[β-肌动蛋白(β-actin)]的密度比值作为相对表达量。

2 结果与分析

2.1 通过UHPLC-QTOF-MS鉴定BLF提取物中的化学成分以及潜在靶点筛选
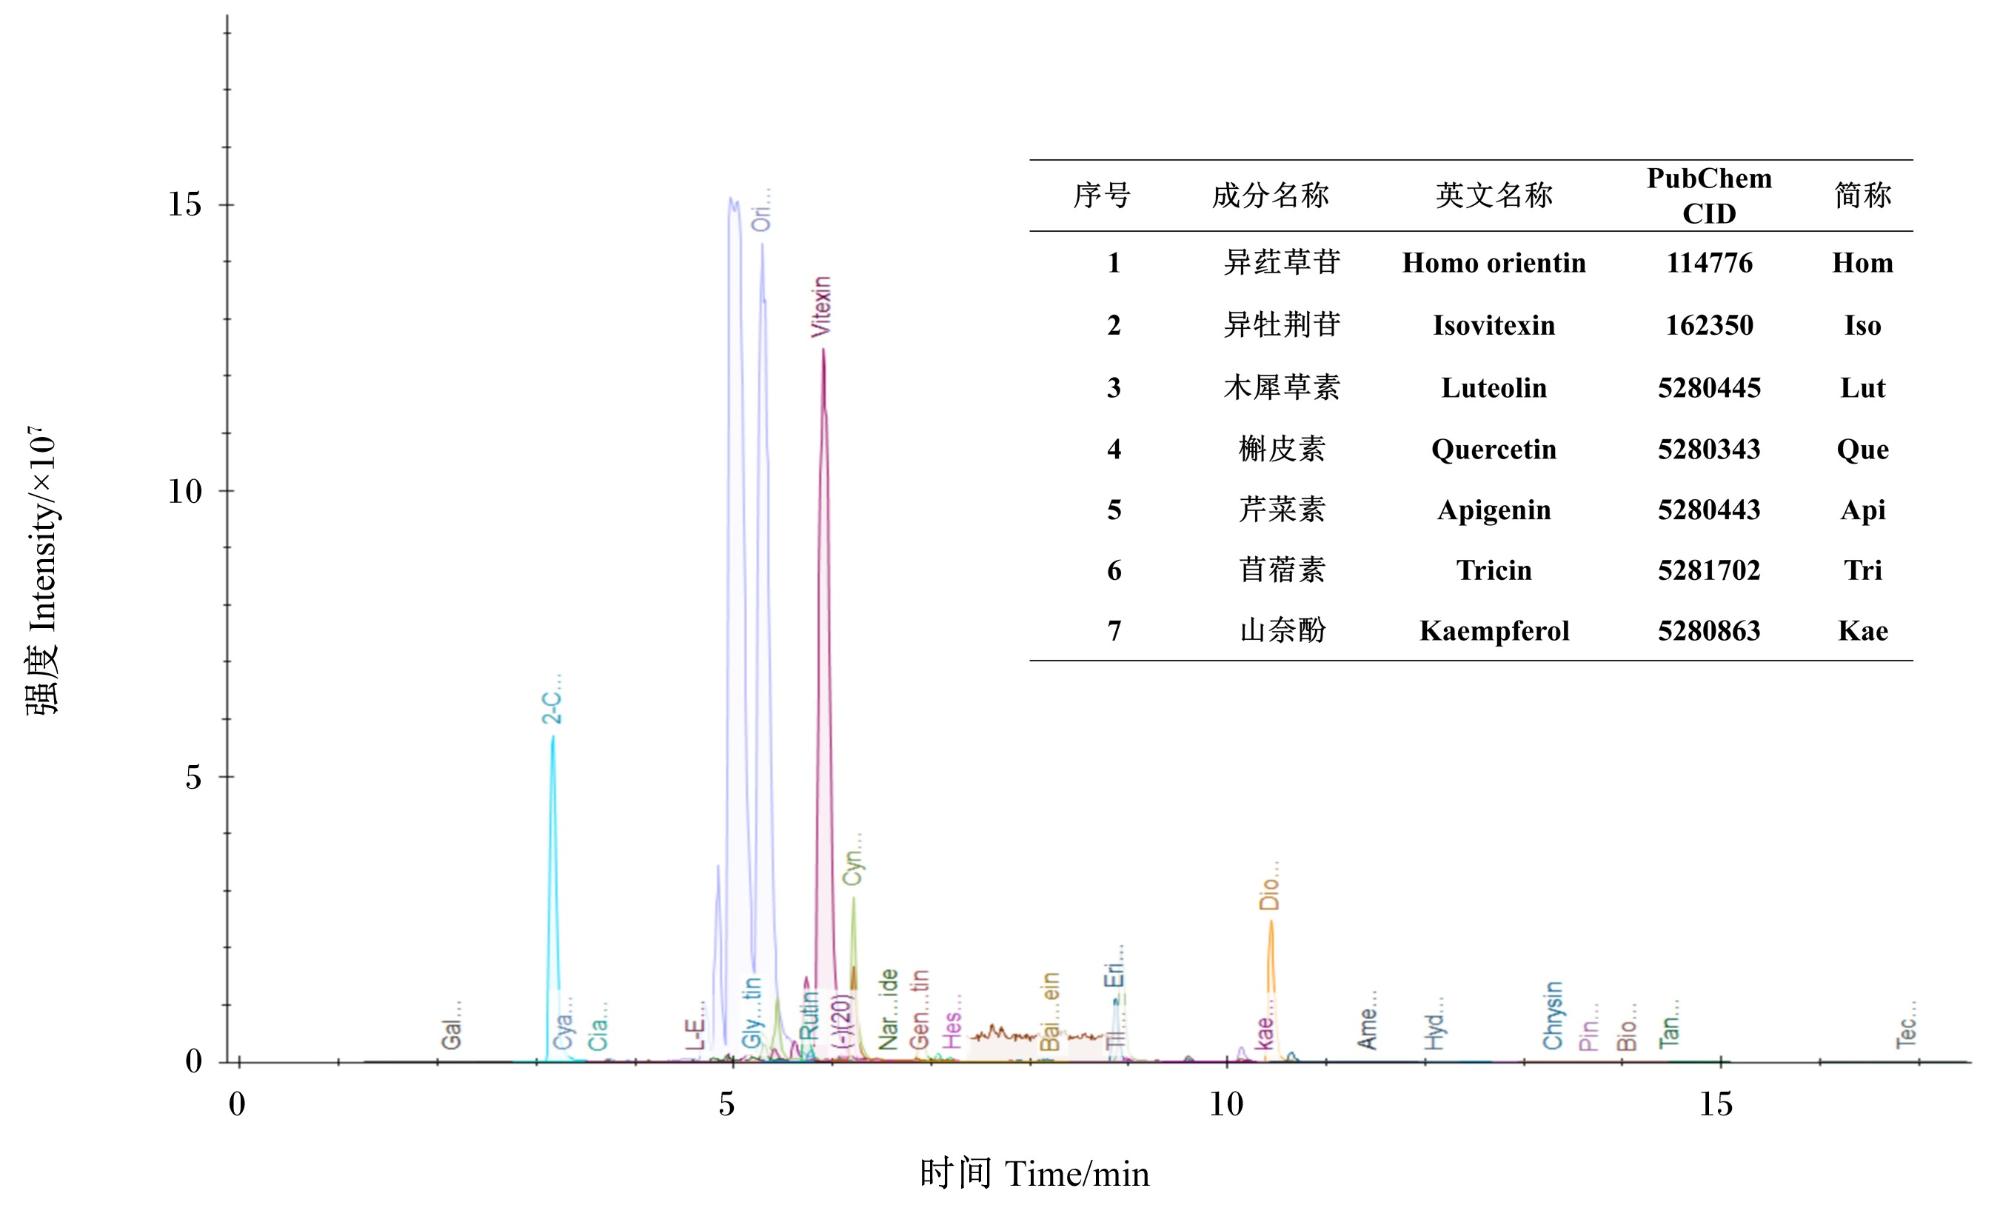
本试验从BLF提取物中检测到24种成分,并进行了初步表征。BLF提取物的典型总离子色谱图(total ion chromatogram,TIC)如图1所示,将得到的代谢组学结果通过使用TCMSP数据库并结合回顾性文献调查验证和补充,共筛选并鉴定出BLF的7种主要有效活性成分。利用BLF核心活性成分在SwissTargetPrediction和PharmMapper数据库筛选得到BLF关键靶点122个。
图1 BLF提取物的典型TIC

Fig.1 Representative TIC of BLF extract

2.2 BLF抑制氧化应激靶点获取结果及PPI网络

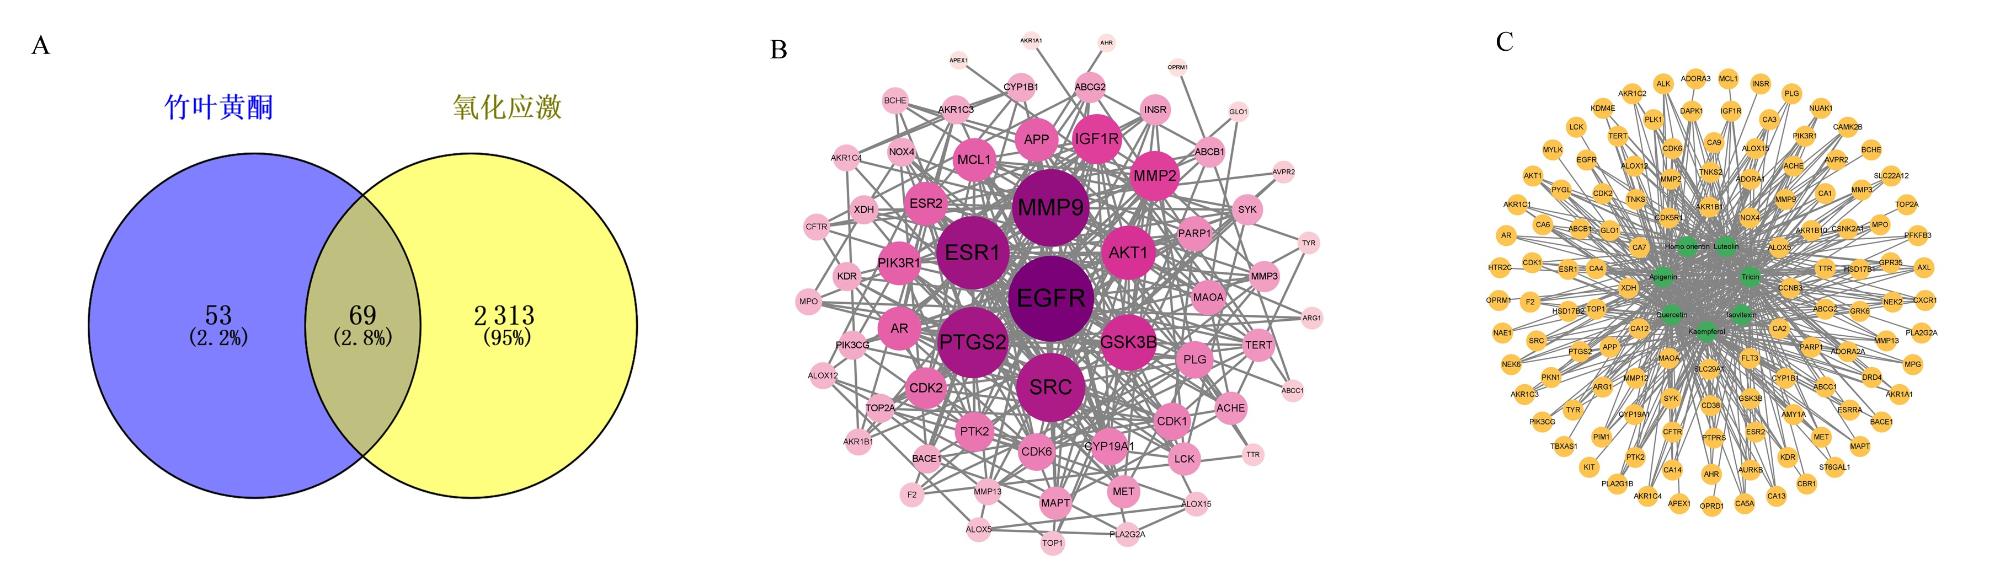
通过DisGeNET、GeneCards和OMIM数据库检索氧化应激相关靶点,共产生2 382个靶点;然后进行Venny分析,确定BLF活性成分与氧化应激之间的交集靶点,发现69个交集靶点(图2-A)。将BLF抑制氧化应激的69个靶点导入STRING数据库,并借助Cytoscape 3.9.1绘制BLF抑制氧化应激关键靶点的PPI网络图(图2-B),网络中节点联系越紧密,通常提示相关基因发挥的作用越明显;圆形的大小与度值成正比,节点颜色越深表明度值越高,度值排名前20的关键靶点见表1。此外,试验构建了BLF核心活性成分抑制氧化应激关键靶点活性成分-交集靶点网络图(图2-C),依据度中心性和介数中心性评估其主要潜在核心活性成分为异荭草苷、异牡荆苷和木犀草素。
图2 BLF抑制氧化应激潜在作用靶点和PPI网络图

A:BLF与氧化应激交集靶点韦恩图;B:PPI网络图;C:活性成分-交集靶点网络图。A: Venn diagram of intersection targets of BLF and oxidative stress; B: PPI network diagram; C: active component-intersection target network diagram.
仅注释度值排名前5的靶点 Only top 5 targets in degree value were annotated。EGFR:表皮生长因子受体 epidermal growth factor receptor;ESR1:雌激素受体1 estrogen receptor 1;MMP9:基质金属蛋白酶9 matrix metalloproteinase 9;PTGS2:前列腺素内过氧化物合酶2 prostaglandin-endoperoxide synthase 2;SRC:SRC原癌基因蛋白 SRC proto-oncogene protein。
Homo orientin:异荭草苷;Luteolin:木犀草素;Apigenin:芹菜素;Tricin:苜蓿素;Quercetin:槲皮素;Isovitexin:异牡荆苷;Kaempferol:山奈酚。

Fig.2 Potential targets of BLF in inhibiting oxidative stress and PPI network diagram

表1 度值排名前20的关键靶点

Table 1 Top 20 key targets in degree value

关键靶点
Key targets
中文名称
Chinese
name
度值
Degree
value
关键靶点
Key targets
中文名称
Chinese
name
度值
Degree
value
EGFR 表皮生长因子受体 33 AR 雄激素受体 13
ESR1 雌激素受体1 29 ESR2 雌激素受体2 13
MMP9 基质金属蛋白酶9 27 MCL1 髓系细胞白血病1 13
PTGS2 前列腺素内过氧化物合酶2 26 PIK3R1 磷脂酰肌醇3-激酶调节亚基1 13
SRC SRC原癌基因蛋白 25 CDK2 细胞周期蛋白依赖性激酶2 12
GSK3B 糖原合成酶激酶3β 19 PTK2 蛋白酪氨酸激酶2 11
AKT1 蛋白激酶B1 18 CDK1 细胞周期蛋白依赖性激酶1 10
IGF1R 胰岛素样生长因子1受体 16 CDK6 细胞周期蛋白依赖性激酶6 10
MMP2 基质金属蛋白酶2 16 CYP19A1 细胞色素P450家族19亚家族A成员1 10
APP β-淀粉样前体蛋白 13 PLG 纤溶酶原 10

2.3 BLF抑制氧化应激靶点的GO功能和KEGG通路富集分析及相互作用网络
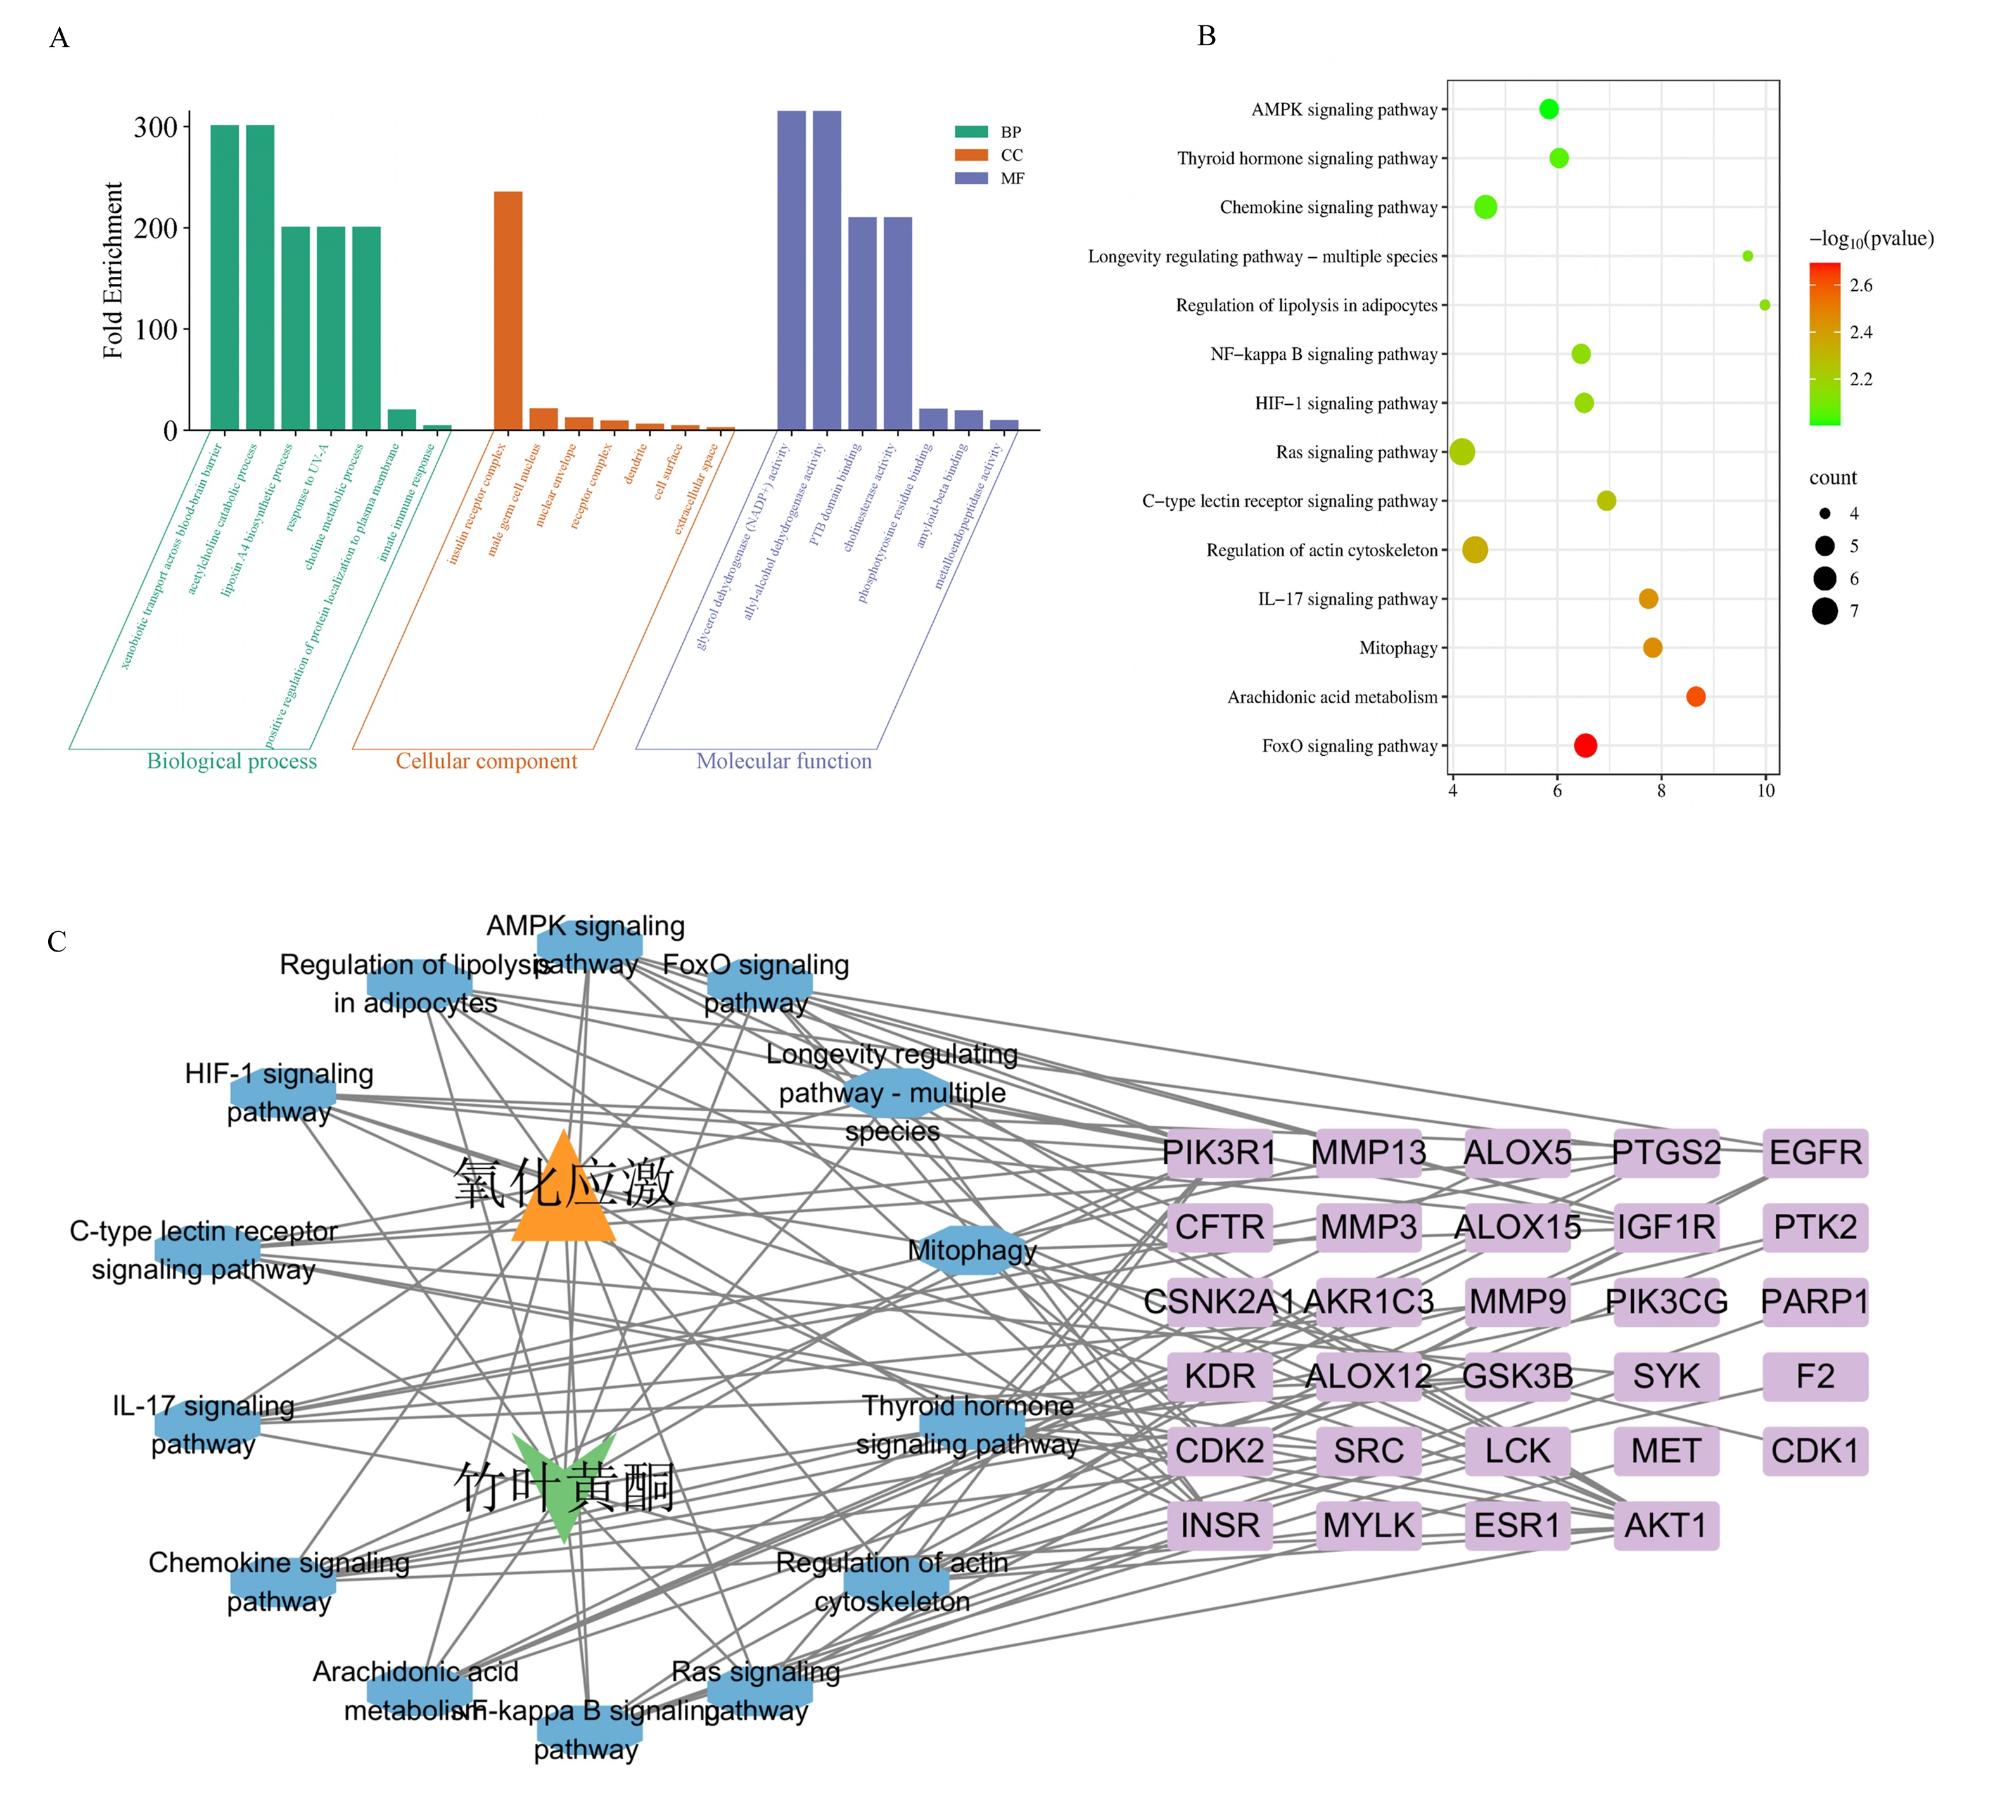
为探究BLF抑制氧化应激的作用机制,本研究将69个交集靶点提交至DAVID数据库进行GO功能注释(图3-A)和KEGG通路富集分析(图3-B)。GO功能分析结果显示,获得33个与BP相关、19个与CC相关以及22个与MF相关的条目。其中,BP条目主要涉及异生物质跨血脑屏障转运、乙酰胆碱分解代谢过程和脂氧素A4生物合成过程等,CC条目主要涉及胰岛素受体复合物、雄性生殖细胞核和核膜等,MF条目主要涉及甘油脱氢酶(烟酰胺腺嘌呤二核苷酸磷酸)活性、烯丙醇脱氢酶活性和磷酸酪氨酸结合(PTB)结构域结合等。KEGG共富集到14条关键信号通路,主要包括叉头框O(FoxO)信号通路、白细胞介素-17(IL-17)信号通路和核因子-κB(NF-κB)信号通路等。为进一步揭示其调控网络,本试验利用Cytoscape 3.9.1构建了BLF-关键靶点-关键通路-氧化应激相互作用网络图(图3-C),结果表明:BLF主要通过29个关键靶点,并通过调控包括FoxO信号通路、花生四烯酸代谢、单磷酸腺苷活化蛋白激酶(AMPK)信号通路、NF-κB信号通路和缺氧诱导因子-1(HIF-1)信号通路在内的14条关键信号通路(这些信号通路与炎症反应、能量代谢、细胞凋亡及免疫调控密切相关),共同构成了其抑制氧化应激的复杂调控网络。该网络呈现出“多靶点-多通路”的特征,即单一信号通路受多个靶点调控,而单个靶点亦可参与多条信号通路调控。这种“多靶点-多通路”的作用模式,体现了BLF在抑制氧化应激中的复杂网络调控特征。其中,表皮生长因子受体(EGFR)、AKT1、SRC原癌基因蛋白(SRC)、雌激素受体1(ESR1)、前列腺素内过氧化物合酶2(PTGS2)和基质金属蛋白酶9(MMP9)等靶点在网络中连接度较高,可能是BLF发挥抗氧化和抗炎等药理效应的关键分子节点。
图3 BLF抑制氧化应激靶点的GO功能和KEGG通路富集分析及相互作用网络

A:GO功能富集分析 GO function enrichment analysis;B:KEGG通路富集分析 KEGG pathway enrichment analysis;C:BLF-关键靶点-关键通路-氧化应激相互作用网络图 BLF-key target-key pathway-oxidative stress interaction network diagram。
Fold Enrichment:富集倍数;BP:生物过程 biological process;CC:细胞组分 cell component;MF:分子功能 molecular function;Biological process:生物过程;Cell component:细胞组分;Molecular function:分子功能;xenobiotic transport across blood-brain barrier:异生物质跨血脑屏障转运;acetylcholine catabolic process:乙酰胆碱分解代谢过程;lipoxin A4 biosynthetic process:脂氧素A4生物合成过程;response to UV-A:对紫外线-A的反应;choline metabolic process:胆碱代谢过程;positive regulation of protein localization to plasma membrane:蛋白定位至质膜的正调控;innate immune response:先天免疫反应;insulin receptor complex:胰岛素受体复合物;male germ cell nucleus:雄性生殖细胞核;nuclear envelope:核膜;receptor complex:受体复合物;dendrite:树突;cell surface:细胞表面;extracellular space:细胞外空间;glycerol dehydrogenase (NADP+) activity:甘油脱氢酶(烟酰胺腺嘌呤二核苷酸磷酸)活性;allyl-alcohol dehydrogenase activity:烯丙醇脱氢酶活性;PTB domain binding:磷酸酪氨酸结合结构域结合;cholinesterase activity:胆碱酯酶活性;phosphotyrosine residue binding:磷酸酪氨酸残基结合;amyloid-beta binding:β-淀粉样蛋白结合;metalloendopeptidase activity:金属内肽酶活性;pvalue:P值;count:计数;AMPK signaling pathway:单磷酸腺苷活化蛋白激酶信号通路;Thyroid hormone signaling pathway:甲状腺激素信号通路;Chemokine signaling pathway:趋化因子信号通路;Longevity regulating pathway-multiple species:长寿调节通路-多物种;Regulation of lipolysis in adipocytes:脂肪细胞脂解调节;NF-kappa B signaling pathway:核因子-kappa B信号通路;HIF-1 signaling pathway:缺氧诱导因子-1信号通路;Ras signaling pathway:Ras信号通路;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;Regulation of actin cytoskeleton:肌动蛋白细胞骨架调节;IL-17 signaling pathway:白细胞介素-17信号通路;Mitophagy:线粒体自噬;Arachidonic acid metabolism:花生四烯酸代谢;FoxO signaling pathway:叉头框O信号通路。
仅注释主要靶点 Only main targets were annotated。EGFR:表皮生长因子受体 epidermal growth factor receptor;AKT1:蛋白激酶B1 protein kinase B1;SRC:SRC原癌基因蛋白 SRC proto-oncogene protein;ESR1:雌激素受体1 estrogen receptor 1;PTGS2:前列腺素内过氧化物合酶2 prostaglandin-endoperoxide synthase 2;MMP9:基质金属蛋白酶9 matrix metalloproteinase 9。

Fig.3 Enrichment analysis of GO function and KEGG pathway of BLF in inhibiting oxidative stress targets and interaction network

2.4 分子对接和分子动力学模拟验证

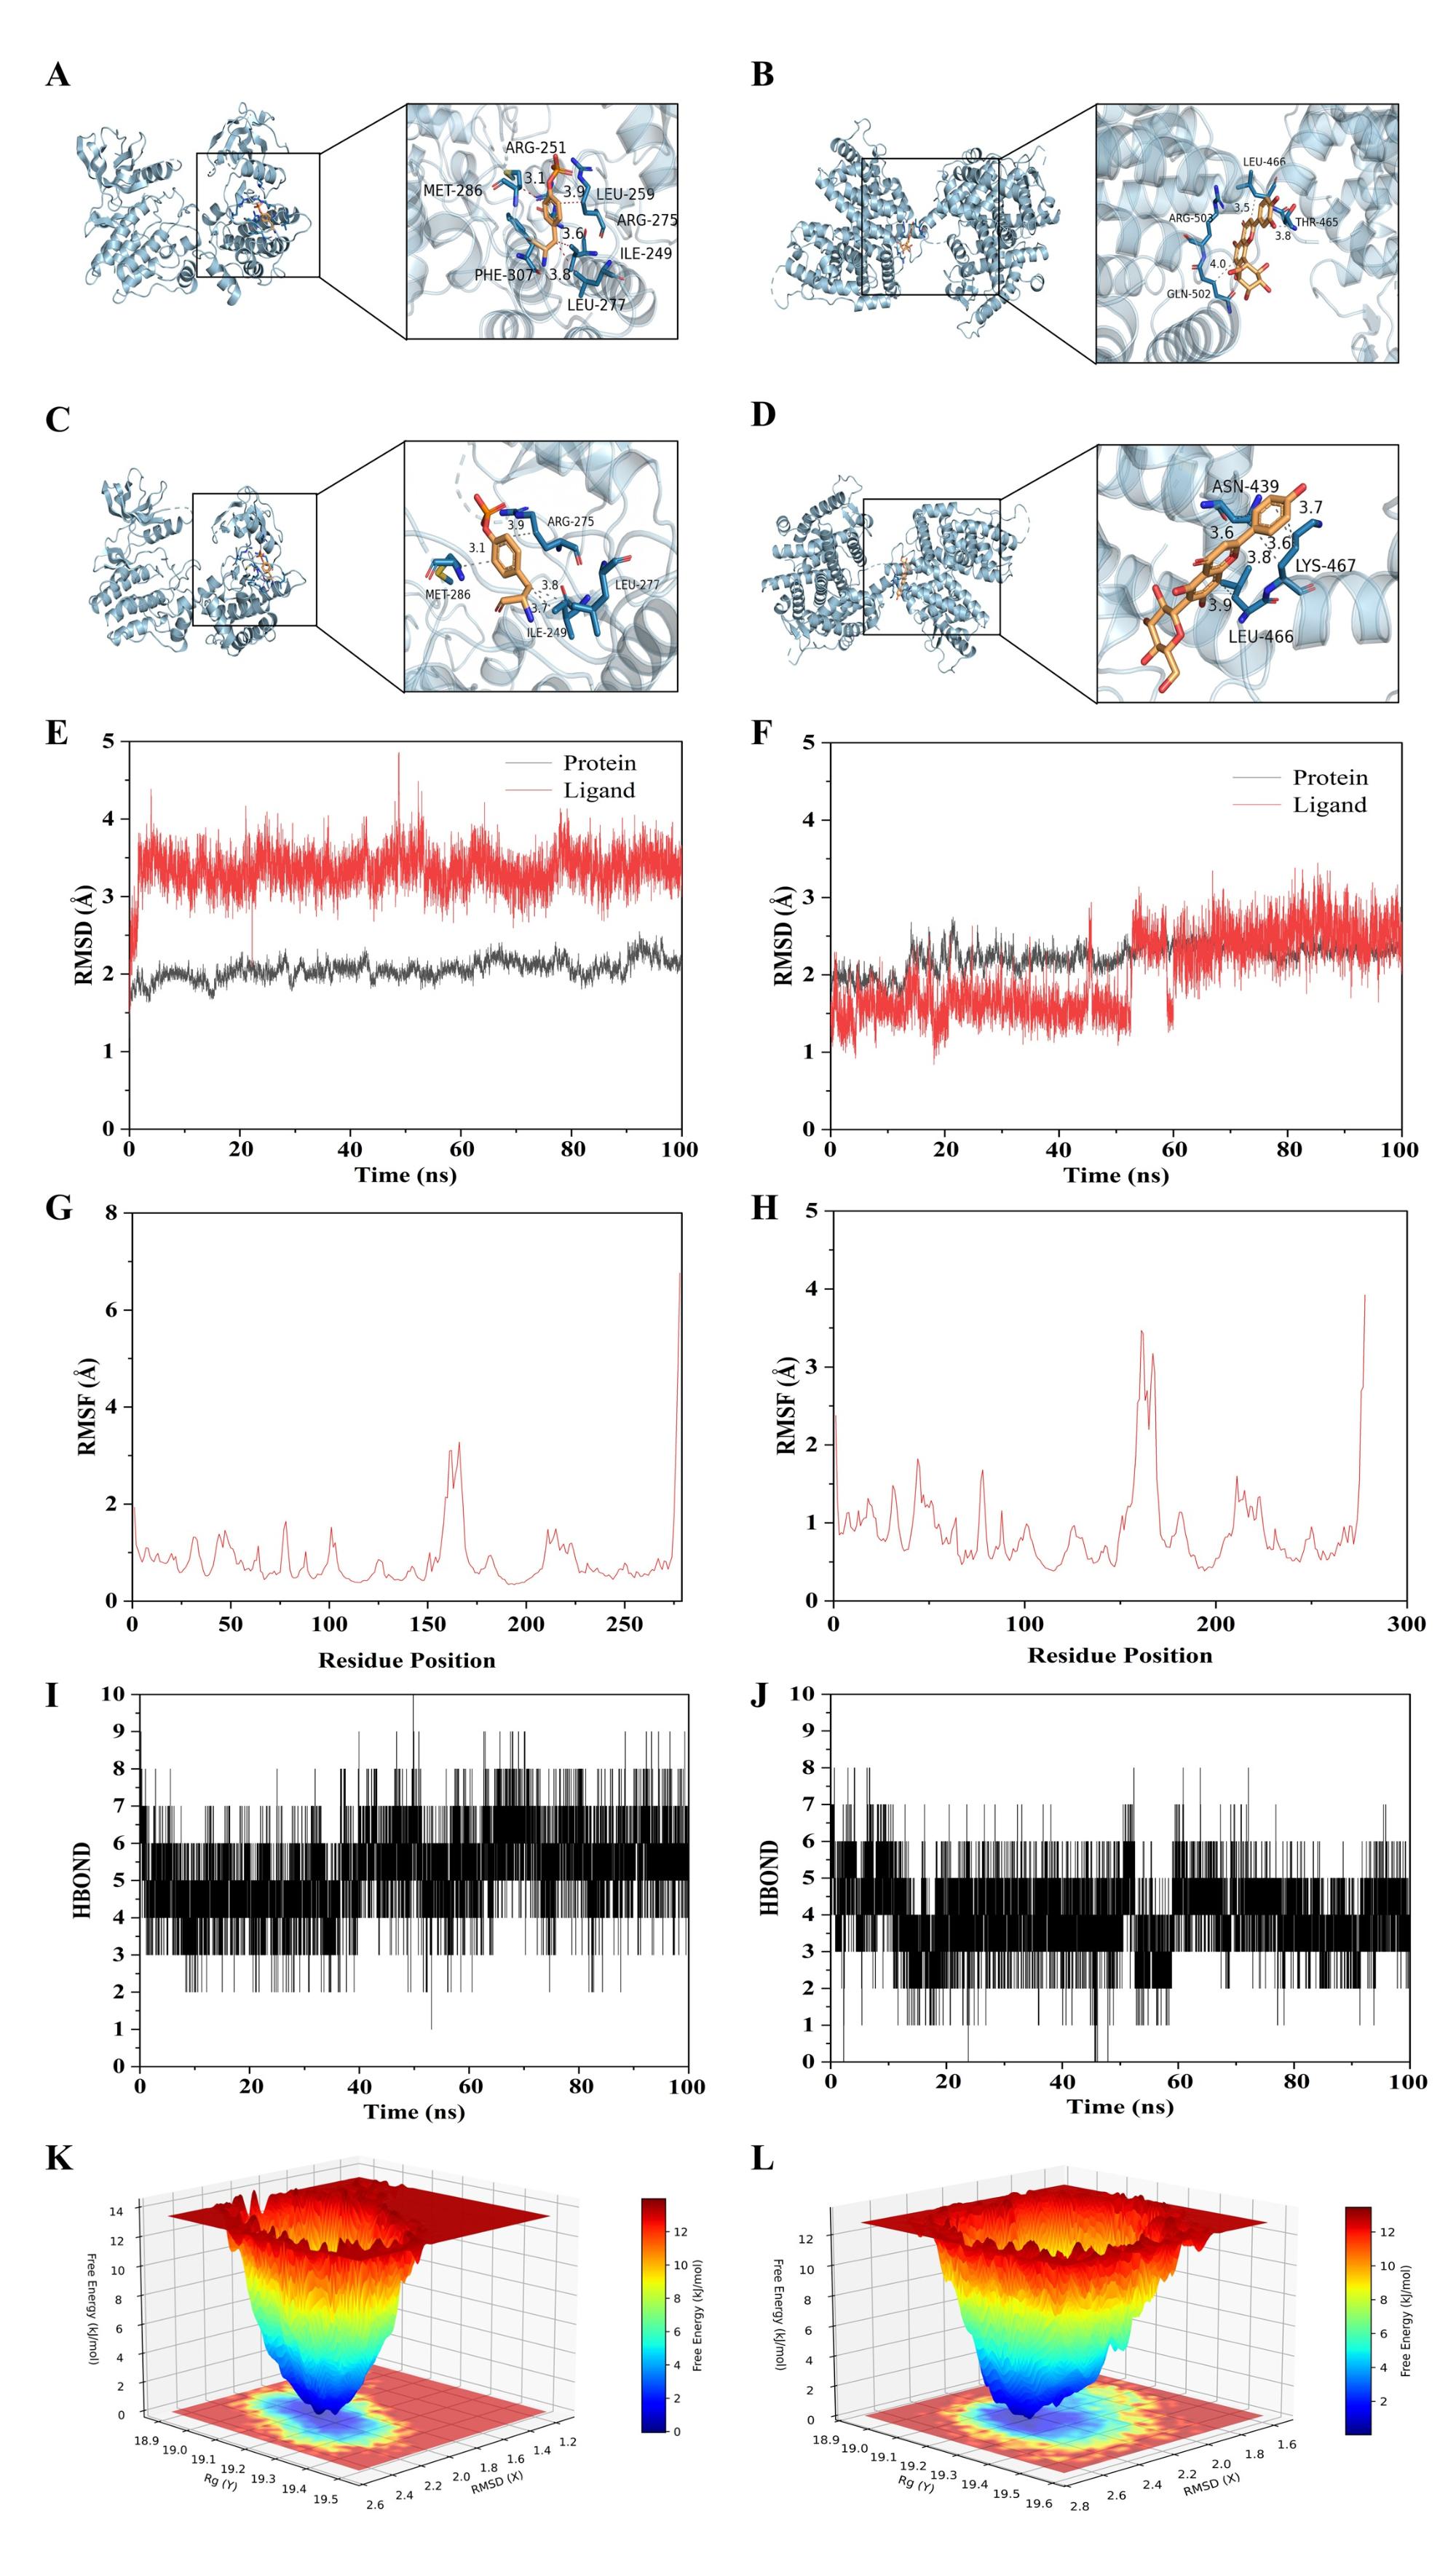
选取度值排名前3的蛋白EGFR、ESR1和MMP9与BLF核心活性成分进行分子对接分析,分子对接结合能结果见表2。一般认为,对接结合能的绝对值>4.25 kcal/mol(1 kcal/mol≈4.184 kJ/mol)表示结合活性中等,>5.00 kcal/mol表示结合活性良好,>7.00 kcal/mol表示结合活性强[18]。本试验中,BLF核心活性成分与关键靶点分子的结合能均低于-5 kcal/mol,具有良好的结合活性。选取结合能从小到大前4的“靶蛋白-化合物”构象使用PyMOL对分子对接结果进行可视化,结果如图4-A图4-D所示。
表2 BLF核心活性成分与关键靶点分子对接结合能

Table 2 Binding energy of core active components of BLF to key target molecules kcal/mol

活性成分
Active components
EGFR结合能
EGFR binding energy
ESR1结合能
ESR1 binding energy
MMP9结合能
MMP9 binding energy
异荭草苷Homo orientin -7.9 -7.3 -7.0
异牡荆苷Isovitexin -8.2 -7.3 -6.5
木犀草素Luteolin -7.1 -7.3 -6.4
槲皮素Quercetin -7.0 -7.1 -6.3
芹菜素Apigenin -7.2 -6.8 -6.2
苜蓿素Tricin -7.2 -6.8 -6.0
山奈酚Kaempferol -7.1 -6.8 -6.1

1 kcal/mol≈4.184 kJ/mol。

图4 分子对接和分子动力学模拟结果

A和B分别表示异荭草苷与EGFR和ESR1的结合,C和D分别表示异牡荆苷与EGFR和ESR1的结合;E和F分别表示异荭草苷和异牡荆苷与EGFR的RMSD图;G和H分别表示异荭草苷和异牡荆苷与EGFR的RMSF图;I和J分别表示异荭草苷和异牡荆苷与EGFR的氢键数量图;K和L分别表示异荭草苷和异牡荆苷与EGFR的自由能形貌图。
A and B represented binding of homo orientin with EGFR and ESR1, and C and D represented binding of isovitexin with EGFR and ESR1, respectively. E and F represented RMSD plots of homo orientin and isovitexin with EGFR, respectively. G and H represented RMSF plots of homo orientin and isovitexin with EGFR, respectively. I and J represented number of hydrogen bonds between homo orientin and isovitexin with EGFR, respectively. K to L represented free energy landscapes of homo orientin and isovitexin with EGFR, respectively.
Protein:蛋白;Ligand:配体;RMSD:均方根偏差 root mean square deviation;Time:时间;RMSF:均方根涨落 root mean square fluctuation;Residue Position:残基位置;HBOND:氢键 hydrogen bond;Free Energy:自由能;Rg:回转半径 radius of gyration。

Fig.4 Molecular docking and molecular dynamics simulation results

为了进一步验证核心活性成分与关键靶点蛋白结合的稳定性,本试验分别选取分子对接结合能较低的2对组合(异荭草苷与EGFR复合物和异牡荆苷与EGFR复合物),并对它们进行为期100 ns的分子动力学模拟;通过分析模拟过程中的均方根偏差(RMSD)、均方根涨落(RMSF)、氢键数量及自由能形貌(free energy landscape,FEL)等关键参数,评估这2个复合物在动态环境下的结合可靠性,结果表明2个体系均表现出高度的稳定性。如图4-E图4-F所示,RMSD分析结果表明,2个复合物的蛋白骨架和配体分子均在模拟初期便迅速达到并维持了动力学平衡,未出现剧烈的构象偏离。同时,如图4-G图4-H所示,RMSF分析结果表明,2个复合物的EGFR蛋白大部分残基都保持着较低的柔性,尤其是在与配体结合的活性口袋区域,证实配体的结合并未破坏蛋白的整体结构。此外,如图4-I图4-J所示,在整个模拟过程中,2个体系均维持了持续且稳定的氢键网络,这是配体能够稳定锚定在靶点活性位点的关键。FEL如图4-K图4-L所示,2个体系均呈现单一深能阱,表明复合物在100 ns模拟中构象高度稳定,始终处于能量最低的构象簇中,这证实了异荭草苷和异牡荆苷与EGFR,即配体与受体结合模式的稳定性和可靠性。综上所述,分子动力学模拟结果从动态角度共同证实了异荭草苷和异牡荆苷与EGFR之间均能形成结构稳固、相互作用可靠的复合物,为阐明其生物学功能的分子机制提供了有力的理论支持。

2.5 BLF对H2O2诱导奶牛乳腺上皮细胞屏障功能及PINK1/P62介导的线粒体自噬的影响
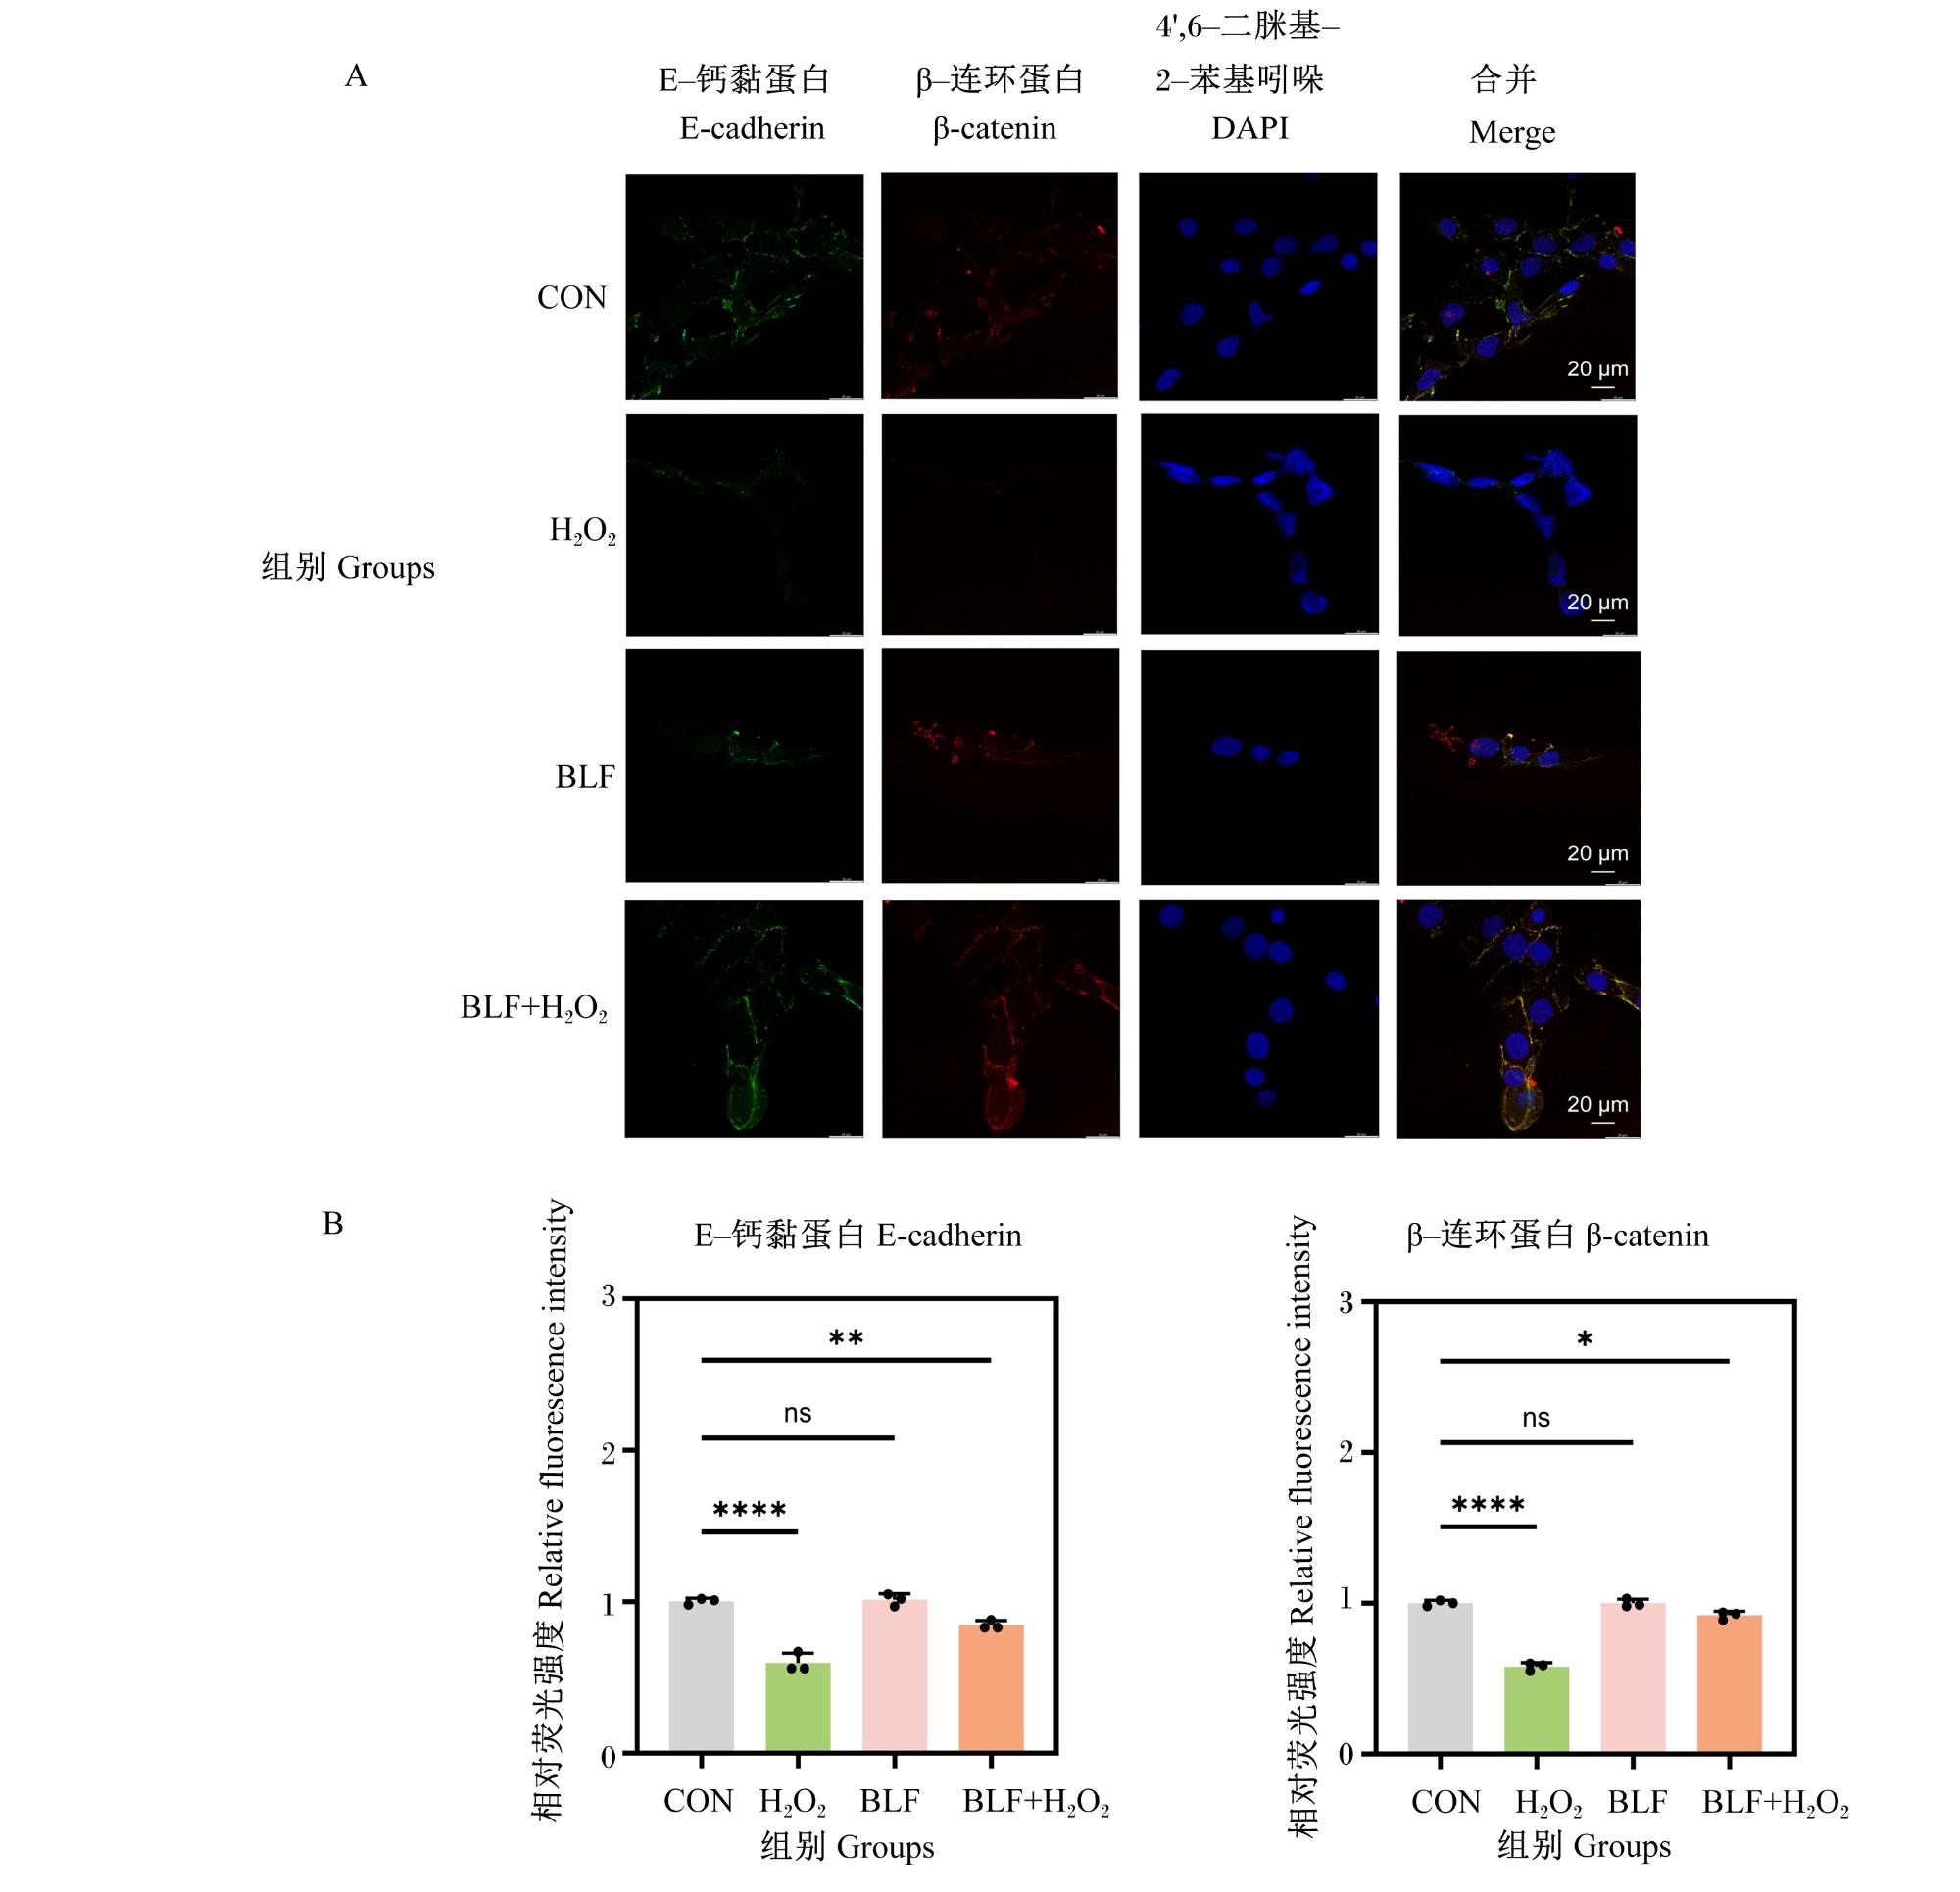
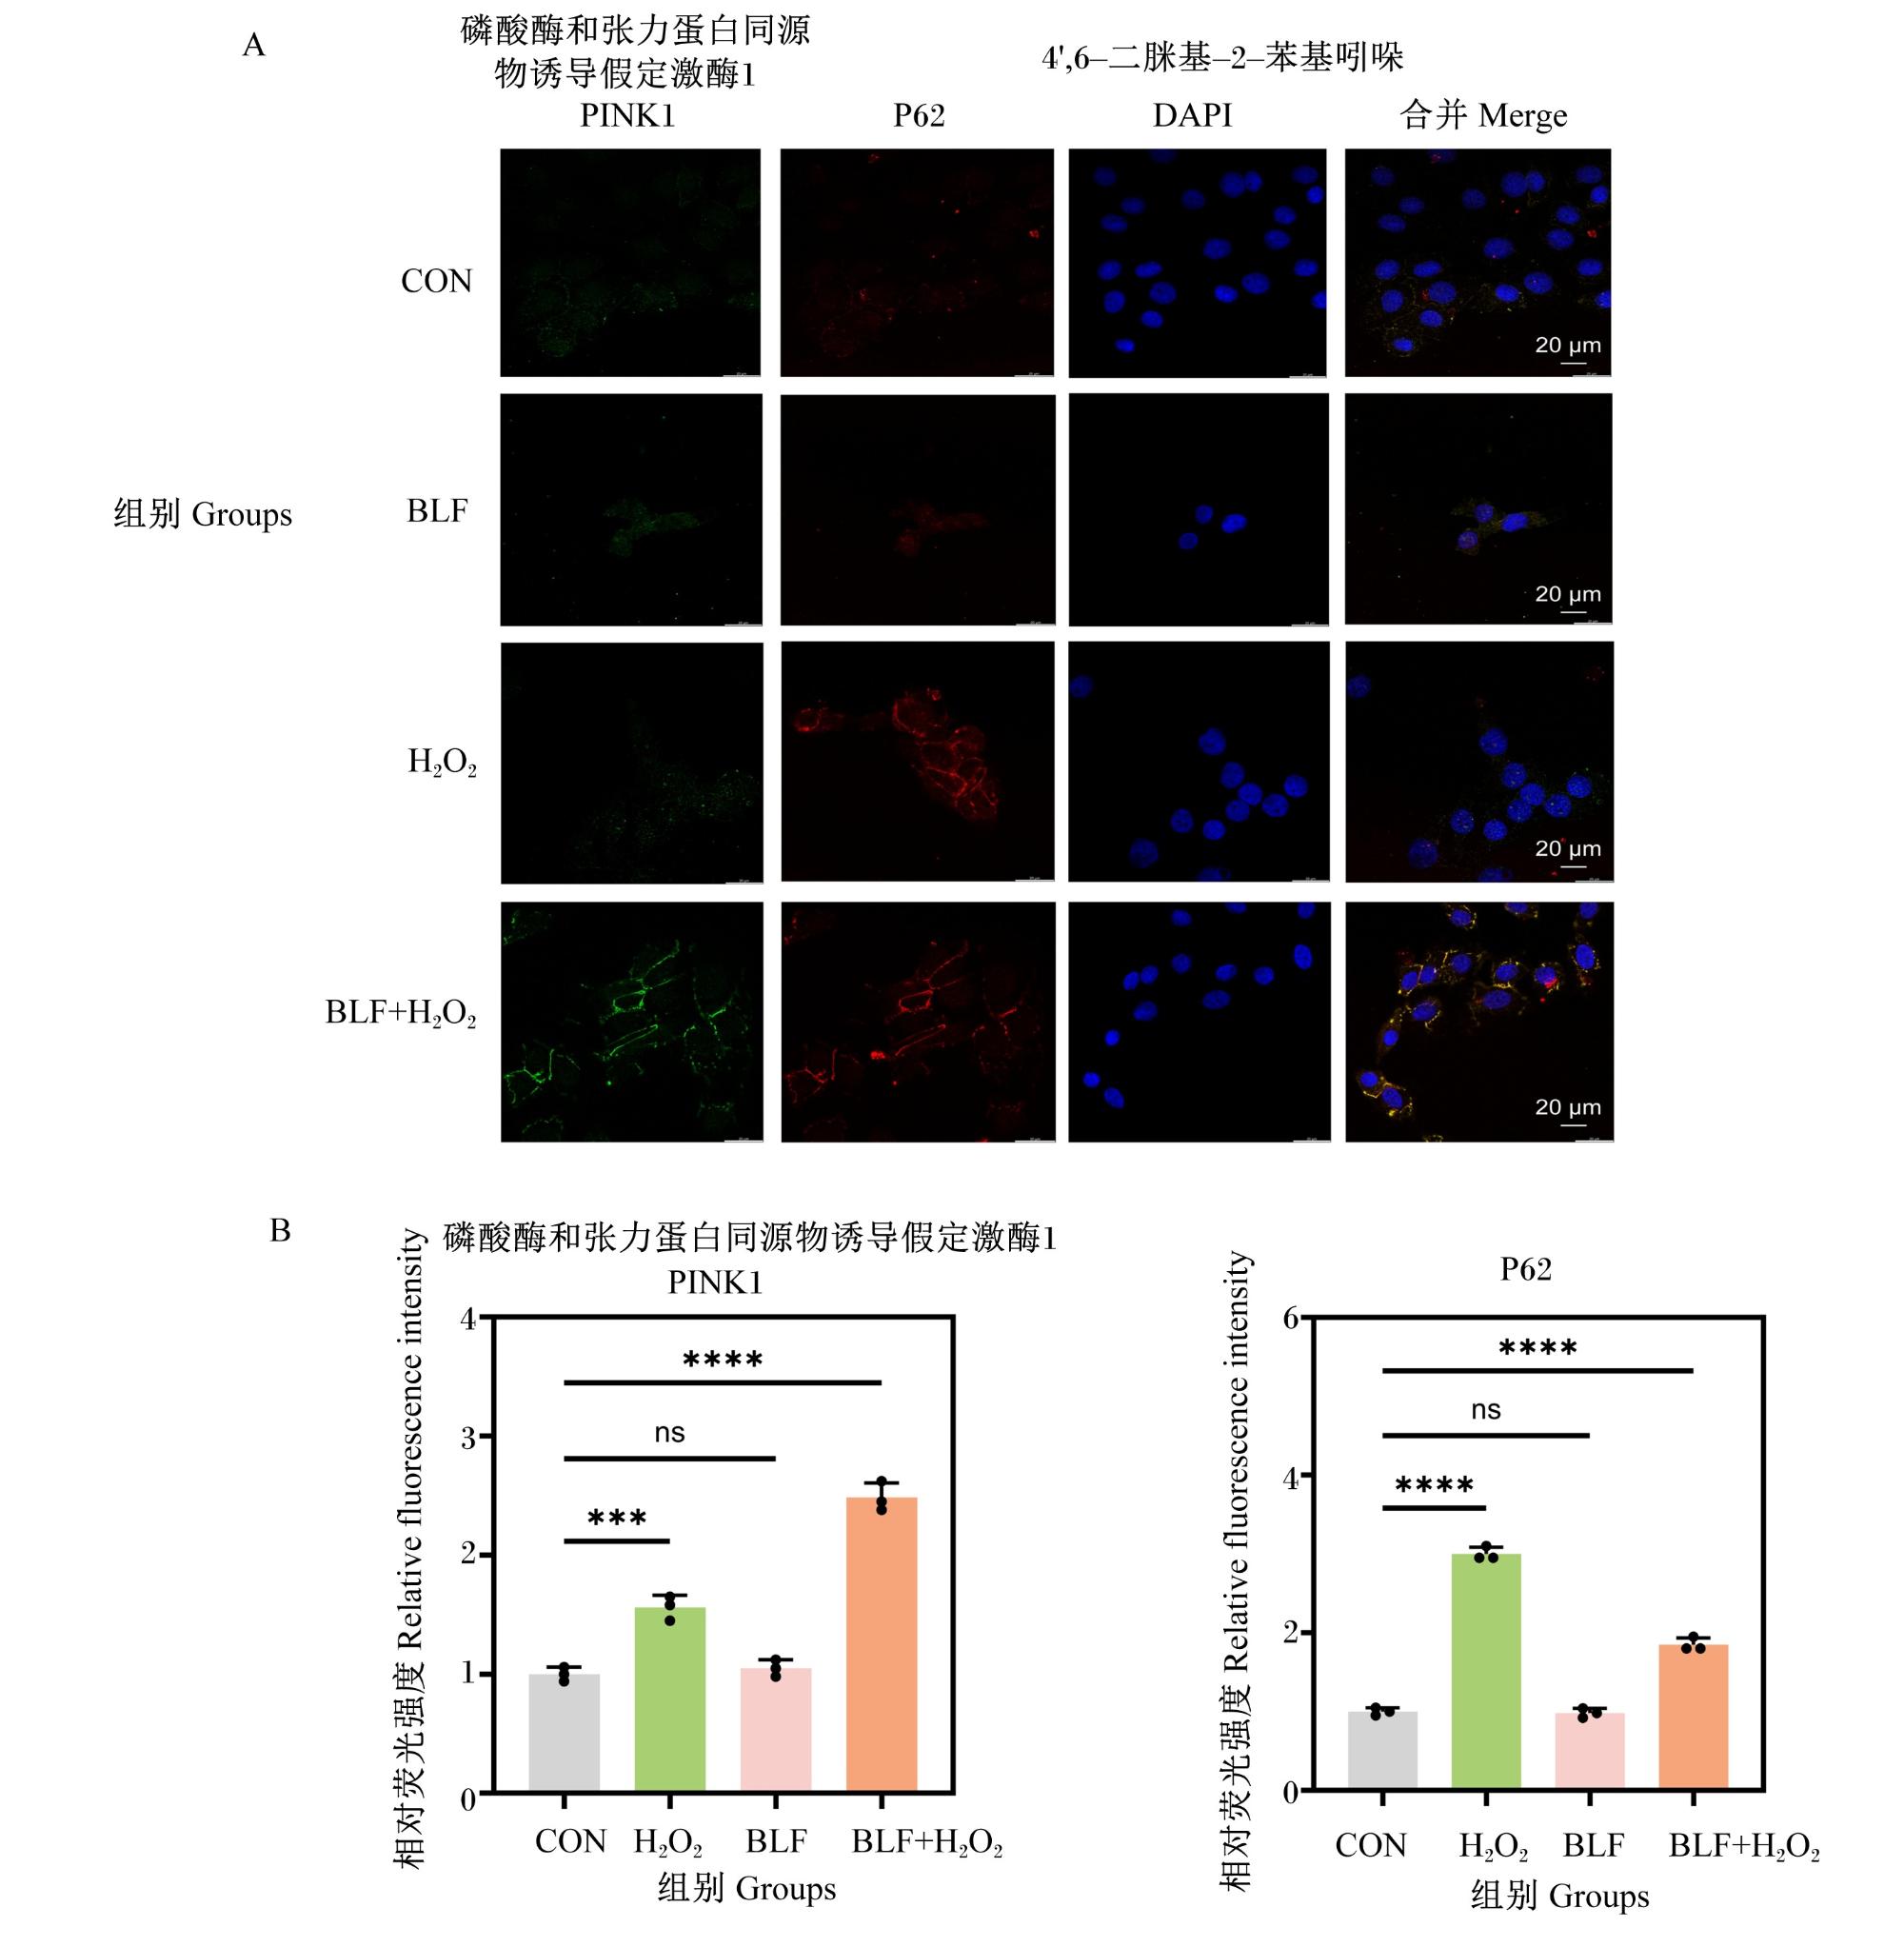
为探究BLF缓解奶牛乳腺上皮细胞氧化损伤的具体作用机制,首先利用免疫荧光技术检测细胞间连接关键蛋白E-cadherin和β-catenin的分布和表达,结果如图5-A所示。定量分析结果如图5-B所示,与CON组相比,H2O2处理导致奶牛乳腺上皮细胞E-cadherin和β-catenin相对荧光强度极显著降低(P<0.000 1),且膜定位出现断裂和模糊;不过,BLF处理逆转了这一损伤,E-cadherin和β-catenin相对荧光强度均有不同程度的回升,细胞间连接结构的完整性得到有效维持。为了进一步探究其机制,本研究检测了经BLF预处理后细胞内线粒体自噬启动关键蛋白PINK1的荧光强度变化及其与P62的分布情况,结果如图6所示。与CON组相比,H2O2组自噬底物P62的相对荧光强度极显著增强(P<0.000 1)并呈团块状积聚,提示氧化应激导致自噬流受阻,受损蛋白无法被有效降解。相比之下,BLF+H2O2组线粒体自噬启动蛋白PINK1的相对荧光强度较H2O2组明显上调,表明BLF有效激活了PINK1信号通路;同时,P62的相对荧光强度明显下降,恢复至接近正常水平。上述结果表明,BLF可能通过激活PINK1介导的线粒体自噬并疏通自噬流,促进受损蛋白清除,从而保护乳腺上皮细胞的屏障功能。
图5 BLF对H2O2诱导奶牛乳腺上皮细胞连接蛋白分布和表达的影响

A:激光扫描共聚焦显微镜观察到的细胞中E-钙黏蛋白和β-连环蛋白的荧光图像 fluorescence images of E-cadherin and β-catenin in cells visualized by laser scanning confocal microscopy;B:细胞中E-钙黏蛋白和β-连环蛋白的相对荧光强度 relative fluorescence intensity of E-cadherin and β-catenin in cells。
数据表示为平均值±标准差(n=3);****表示P<0.000 1,**表示P<0.01,*表示P<0.05,ns表示P>0.05。图6同。

Fig.5 Effects of BLF on distribution and expression of junction proteins in bovine mammary epithelial cells stimulated with H2O2

Data were presented as mean±SD (n=3); **** indicated P<0.000 1, ** indicated P<0.01, * indicated P<0.05, and ns indicated P>0.05. The same as Fig.6.

图6 BLF对H2O2诱导奶牛乳腺上皮细胞PINK1和P62分布和表达的影响

A:激光扫描共聚焦显微镜观察到的细胞中PINK1和P62的荧光图像 fluorescence images of PINK1 and P62 in cells visualized by laser scanning confocal microscopy;B:细胞中PINK1和P62的相对荧光强度 relative fluorescence intensity of PINK1 and P62 in cells。

Fig.6 Effects of BLF on distribution and expression of PINK1 and P62 in bovine mammary epithelial cells stimulated with H2O2

2.6 BLF对H2O2诱导奶牛乳腺上皮细胞线粒体自噬相关蛋白表达的影响

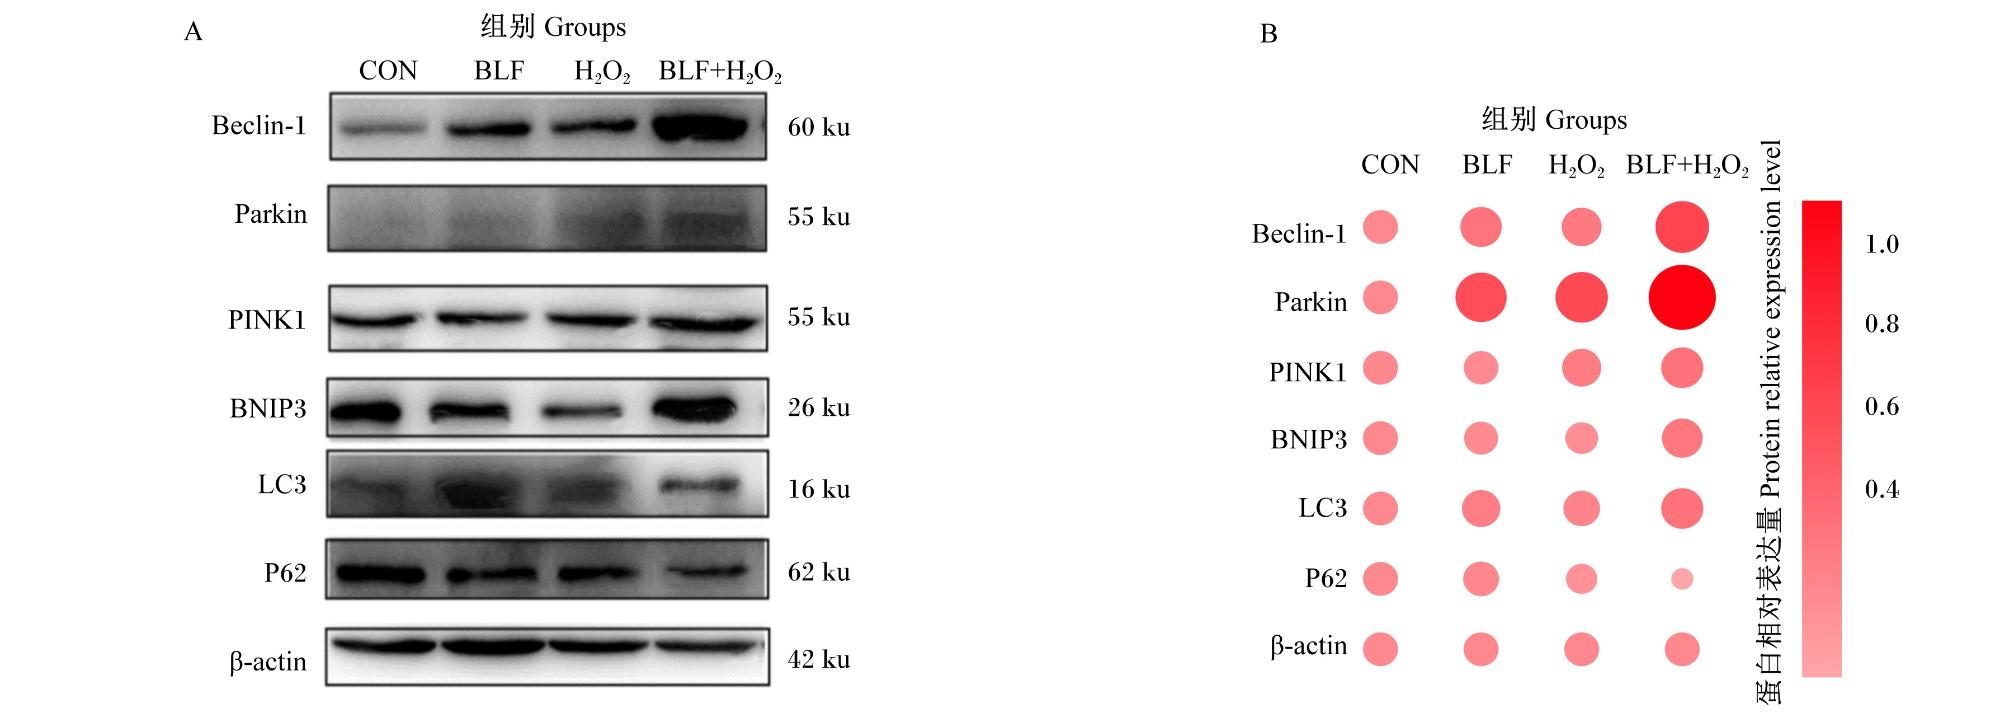
为揭示BLF保护奶牛乳腺上皮细胞屏障功能潜在的分子机制,本研究测定了线粒体自噬相关蛋白的表达情况,结果如图7所示。与CON组相比,H2O2组奶牛乳腺上皮细胞线粒体自噬相关蛋白的蛋白相对表达量无明显差异。而BLF+H2O2组Beclin-1和LC3蛋白相对表达量明显升高,提示自噬启动增强;同时,线粒体自噬关键调节因子PINK1、Parkin和BNIP3蛋白相对表达量呈上调趋势,其中Parkin上调最为剧烈;此外,自噬底物P62蛋白相对表达量明显降低,表明BLF有效促进了自噬流的通畅,加速了受损蛋白或细胞器的降解。上述结果表明,BLF通过激活PINK1/Parkin介导的线粒体自噬途径,清除受损线粒体,从而减轻氧化应激对乳腺上皮细胞屏障功能的破坏。
图7 BLF对H2O2诱导奶牛乳腺上皮细胞线粒体自噬相关蛋白表达的影响

A:线粒体自噬相关关键蛋白Western blot代表性条带图;B:线粒体自噬相关蛋白相对表达量的气泡图分析,气泡颜色越深代表蛋白相对表达量越高。
Beclin-1:苄氯素-1;Parkin:帕金蛋白;PINK1:磷酸酶和张力蛋白同源物诱导假定激酶1 phosphatase and tensin homolog induced putative kinase 1;BNIP3:B细胞淋巴瘤-2/腺病毒E1B 19 kDa相互作用蛋白3 B cell lymphoma-2/adenovirus E1B 19 kDa interacting protein 3;LC3:微管相关蛋白轻链3 microtubule-associated protein light chain 3;β-actin:β-肌动蛋白。

Fig.7 Effects of BLF on expression of mitophagy-related proteins in bovine mammary epithelial cells stimulated with H2O2

A: representative Western blot bands of key mitophagy-related proteins; B: bubble plot analysis of relative expression levels of mitophagy-related proteins, where darker bubble colors indicated higher protein relative expression levels.

3 讨论

奶牛氧化应激由多种因素诱发,涉及复杂的分子机制,严重损伤奶牛健康和生产性能,其会影响乳腺上皮细胞功能,降低乳蛋白和乳脂合成,增加乳腺炎、子宫炎等疾病风险[19]。BLF为竹叶的核心活性成分,兼具抗氧化和抵御应激等功能。此外,其作为植物黄酮类化合物,具备抗氧化、抗应激、抑菌和降血脂等功效,在替代抗生素研究方面具有极大的开发潜力[20]。本研究通过代谢组学、网络药理学、分子对接和分子动力学模拟方法系统阐明了BLF通过其异荭草苷、异牡荆苷等核心活性成分调控EGFR、ESR1等关键靶点及FoxO信号通路、IL-17信号通路及NF-κB信号通路等来缓解奶牛乳腺氧化应激。
BLF的核心有效活性成分包括异荭草苷、异牡荆苷、木犀草素、槲皮素、芹菜素、苜蓿素和山奈酚等,这些活性成分已被广泛证实具有显著的抗氧化和抗炎活性。研究表明,异荭草苷表现出较强的抗氧化性能,能够清除自由基,降低氧化应激,并且还具有一定的抗炎作用[21]。Sun等[22]从竹叶中提取异荭草苷,证实其具有镇痛和抗炎双重活性。异牡荆苷通过激活核因子E2相关因子2(Nrf2)/Kelch样环氧氯丙烷相关蛋白1(Keap1)/血红素氧合酶-1(HO-1)和SKN-1/Nrf2信号通路,上调沉默信息调节因子3(SIRT3)的表达来增强抗氧化能力并促进细胞对氧化应激的恢复[23]。木犀草素可清除ROS,减少脂质过氧化,从而保护细胞成分免受氧化损伤[24]。研究表明,木犀草素通过调节丝裂原活化蛋白激酶(MAPK)/NF-κB和p53信号通路来防止氧化损伤和细胞凋亡[25],这与本研究KEGG通路富集分析得到的NF-κB信号通路是BLF抑制氧化应激关键信号通路的结果一致。槲皮素已被证实可以保护牛乳腺上皮细胞免受氧化损伤,特别是在乳腺炎的情况下。它减少氧化应激标志物,保持细胞屏障功能,并减少促炎细胞因子的表达,机制上,槲皮素抑制NF-κB信号通路,这是氧化应激反应的核心[26]。此外,槲皮素通过减少ROS的产生对奶牛乳腺和瘤胃上皮细胞氧化应激具有缓解作用[27]。芹菜素属于黄酮类化合物,具有很强的抗氧化和抗炎特性,其因抵抗氧化应激的能力而被广泛研究[28],其通过激活沉默信息调节因子1(SIRT1)信号通路,减少细胞凋亡,改善组织功能,减轻氧化应激诱导的小鼠心肌损伤[29]。山奈酚通过激活Nrf2/HO-1信号通路,提高抗氧化酶表达和减少炎症来保护细胞免受氧化应激[30],这些机制已在小鼠肝脏和血管组织以及细胞培养中得到证实,表明其具有广泛的抗氧化潜力[31]
BLF作用于EGFR、ESR1和MMP9等多个关键靶点,并协同调控FoxO信号通路、NF-κB信号通路以及IL-17信号通路,通过其多靶点、多通路的协同调控作用机制来抑制奶牛的氧化应激。研究表明,AKT1通过PI3K/AKT信号通路磷酸化并抑制FoxO活性,降低抗氧化酶表达,促进细胞存活[32]。EGFR激活PI3K/AKT信号通路,间接抑制FoxO活性,同时促进线粒体生物合成和氧化代谢,增强细胞能量供应[33]。SIRT3通过激活AMPK信号通路,减轻热应激诱导的乳腺上皮细胞氧化损伤,抑制细胞凋亡,维持线粒体功能[34]。研究表明,MMP9对于奶牛在干奶期时乳腺的退化及免疫功能起着至关重要的作用,将基于MMP9的纳米颗粒注入乳腺能够抵御奶牛乳腺氧化应激[35]。在热应激导致的缺氧和免疫抑制状态下,PTGS2作为关键基因参与血管内皮生长因子(VEGF)、HIF-1和TNF等信号通路,调节氧化还原过程、抗氧化酶生成和免疫反应[36]。据报道,在反刍动物中,补充芦丁和槲皮素可以通过调节Toll样受体4(TLR4)和NF-κB信号通路来减少炎症和氧化应激[37]。值得注意的是,槲皮素为BLF的核心活性成分,NF-κB信号通路为BLF抑制奶牛氧化应激的关键信号通路,这与本研究结果一致。SRC可能通过上调并激活Nrf2相关信号通路,从而提高细胞对氧化应激的抵抗能力[38]。在奶牛乳腺上皮细胞中,IL-17A表达的上调会促进多种炎症因子TNF-α、IL-1β、IL-6和白细胞介素-8(IL-8)的产生,并激活MAPK和NF-κB等炎症信号通路[39]。EGFR和ESR1通过调控MAPK/PI3K-AKT信号通路,影响IL-17下游炎症和抗氧化反应,增强细胞存活和修复能力[40]。此外,本研究中GO功能富集分析表明BLF活性成分可在胰岛素受体复合物、细胞核和核膜等不同CC中,通过发挥脱氢酶活性、结构域结合等MF,在异生物质跨血脑屏障转运、乙酰胆碱分解代谢和脂氧素A4生物合成等多种BP中发挥作用,进而在抗氧化免疫稳态维持方面发挥重要作用。因此,EGFR、ESR1和MMP9为BLF抑制奶牛氧化应激的关键靶点,FoxO信号通路、IL-17信号通路及NF-κB信号通路为BLF抑制奶牛氧化应激的关键信号通路。
虽然,目前BLF已被证实能够激活Nrf2信号通路上调HO-1、还原型烟酰胺腺嘌呤二核苷酸(磷酸)[NAD(P)H]:醌氧化还原酶1(NQO1)等抗氧化相关基因,有效减轻热应激对奶牛乳腺上皮细胞造成的氧化损伤[41]。这些结果可靠而直观,但研究范围相对局限,往往难以揭示BLF多成分、多靶点的整体作用机制。本研究的分子对接结果表明,BLF的主要活性成分与关键靶点稳定结合,结合能均低于-5.0 kcal/mol,显示出良好的结合活性[42]。其中,异牡荆苷、木犀草素和槲皮素等与EGFR、ESR1和MMP9等关键靶点表现出较强的结合活性,提示这些活性成分可能通过调控上述关键蛋白发挥抗氧化作用。可视化结果表明,BLF活性成分与靶蛋白之间存在氢键、疏水作用等多种相互作用形式,从而进一步验证了网络药理学的分析结果。对结合能较优的异荭草苷与EGFR复合物和异牡荆苷与EGFR复合物进行100 ns的分子动力学模拟,模拟结果表明配体与受体形成了高度稳定的复合物结构,始终维持在最低能量构象,且未引起蛋白骨架的剧烈波动。这些结果从分子动力学的角度强有力地支持了分子对接的预测,证实了BLF的核心活性成分能与关键靶点形成稳固可靠的结合,为阐明其生物学功能的分子机制提供了坚实的理论依据。
乳腺上皮细胞间的紧密连接和黏附连接共同构成了抵御病原体入侵、维持泌乳微环境稳定的关键物理屏障[43]。氧化应激会导致细胞骨架重排和连接蛋白降解,从而破坏乳腺上皮细胞屏障功能[44]。本研究发现,H2O2诱导奶牛乳腺上皮细胞中关键连接蛋白E-cadherin和β-catenin的蛋白相对表达量显著下调且膜定位破坏。然而,BLF预处理逆转了这一现象,恢复了连接蛋白的荧光强度和连续性分布,这表明BLF能够通过维持上皮细胞间的结构完整性,有效抵御氧化应激引起的屏障损伤。线粒体是细胞内ROS产生的主要场所,线粒体自噬是细胞通过自噬机制选择性清除受损线粒体的这一过程,对维持细胞内稳态具有重要作用,线粒体自噬不足会导致受损线粒体积累、ROS进一步升高以及细胞凋亡[45]。Beclin-1是自噬小体形成的关键组成部分[46],LC3-Ⅱ是自噬研究中评估自噬小体和通量的核心指标[47],P62通过其泛素相关(UBA)结构域识别并结合泛素化的底物,并通过LC3相互作用区(LIR)结构域与自噬体膜上的LC3-Ⅱ相互作用,从而将底物募集至自噬体进行降解[48]。H2O2组自噬受体P62相对荧光强度显著增强并呈现异常的团块状积聚,提示氧化应激可能导致了自噬底物的过度堆积或溶酶体降解途径受阻,并且Western blot结果显示,BLF上调了Beclin-1和LC3的表达,同时下调了P62的表达,表明其促进了自噬流的通畅。值得注意的是,本试验观察到BLF+H2O2组PINK1、Parkin和BNIP3等线粒体自噬特异性标志物蛋白相对表达量明显上调,尤其是Parkin上调最为明显。PINK1/Parkin信号通路是线粒体自噬的经典调控途径。线粒体受损时PINK1在外膜积聚并引导Parkin定位,随后启动自噬清除受损线粒体[49]。以上发现表明,BLF可能特异性激活PINK1/Parkin介导的线粒体自噬过程,促进受损线粒体的快速清除,从源头上阻断ROS的过量产生,这一发现与网络药理学信号通路预测高度吻合,证实了线粒体自噬是BLF发挥抗氧化应激作用的关键通路。值得注意的是,本研究中网络药理学KEGG通路富集分析发现的FoxO信号通路与自噬调节密切相关。已有研究表明,FoxO转录因子可以转录激活BNIP3等自噬相关基因,从而促进线粒体自噬[50]。这提示BLF对线粒体自噬的激活作用,可能是通过调控网络药理学预测的FoxO等关键信号通路实现的。研究表明,PINK1通过抑制线粒体ROS累积从而阻断NF-κB激活[51],实现了计算预测与试验验证的相互印证。
此外,在当前畜牧行业“减抗、替抗”的背景下,BLF作为一种安全高效的植物源性添加剂,极具开发潜力。特别是在应对围产期能量负平衡及夏季热应激等高氧化负荷挑战时,其有助于从细胞层面阻断氧化损伤,降低乳腺疾病风险并提升泌乳性能。既往关于BLF在畜禽生产中的研究多集中于其作为疫苗佐剂或饲料添加剂对动物生长性能及宏观免疫指标的影响[52]。与之不同的是,本研究主要探究BLF的主要活性成分及具体发挥药效作用的信号通路和靶点。然而,反刍动物独特的消化生理结构决定了植物提取物的生物利用度受瘤胃微生物代谢的显著影响。BLF富含异荭草苷、异牡荆苷等黄酮碳苷及氧苷类成分,其口服进入瘤胃后会受到瘤胃微生物群落的修饰和重塑。瘤胃微生物分泌的糖苷酶等可能诱导其发生去糖基化反应生成苷元,或进一步发生C-环裂解及还原反应生成小分子酚酸类代谢产物[53-54]。这表明经消化吸收后真正到达乳腺靶组织发挥生物学效应的物质可能与原提取物成分谱存在差异。未来的研究仍需结合血清药物化学和代谢组学技术,进一步阐明BLF在奶牛体内的代谢转化途径及代谢产物的药效活性,以精准解析其在反刍动物体内的药效物质基础。

4 结论

综上所述,BLF通过多成分、多靶点、多通路的协同模式有效缓解奶牛乳腺上皮细胞的氧化应激损伤。BLF的异荭草苷、异牡荆苷等关键核心活性成分能与EGFR、ESR1等关键靶点稳定结合,并通过激活PINK1/Parkin信号通路并引发线粒体自噬,促进P62的降解和受损线粒体的清除,从而维持细胞屏障功能。这种基于生物信息学预测和分子生物学验证相结合的研究,不仅阐明了BLF抗氧化应激的精准分子靶点,也为其在奶牛乳腺管理中的开发应用提供了坚实的理论支撑。
[1]
AYEMELE A G, TILAHUN M, LINGLING S, et al. Oxidative stress in dairy cows:insights into the mechanistic mode of actions and mitigating strategies[J]. Antioxidants, 2021, 10(12):1918.

DOI

[2]
ZACHUT M, CONTRERAS G A. Symposium review:mechanistic insights into adipose tissue inflammation and oxidative stress in periparturient dairy cows[J]. Journal of Dairy Science, 2022, 105(4):3670-3686.

DOI

[3]
MA N, ABAKER J A, WEI G, et al. A high-concentrate diet induces an inflammatory response and oxidative stress and depresses milk fat synthesis in the mammary gland of dairy cows[J]. Journal of Dairy Science, 2022, 105(6):5493-5505.

DOI

[4]
GUO Z T, GAO S T, OUYANG J L, et al. Impacts of heat stress-induced oxidative stress on the milk protein biosynthesis of dairy cows[J]. Animals, 2021, 11(3):726.

DOI

[5]
CHENG Y Q, WAN S Q, YAO L N, et al. Bamboo leaf:a review of traditional medicinal property, phytochemistry, pharmacology,and purification technology[J]. Journal of Ethnopharmacology, 2023,306:116166.

[6]
ZHAN J W, SHEN Y Y, LI X, et al. Microbiome and metabolic changes of milk in response to dietary supplementation with bamboo leaf extract in dairy cows[J]. Frontiers in Nutrition, 2021,8:723446.

[7]
WU C, MA H, LU S W, et al. Effects of bamboo leaf flavonoids on growth performance,antioxidants,immune function,intestinal morphology,and cecal microbiota in broilers[J]. Journal of the Science of Food and Agriculture, 2024, 104(12):7656-7667.

DOI

[8]
SINDELAR M, PATTI G J. Chemical discovery in the era of metabolomics[J]. Journal of the American Chemical Society, 2020, 142(20):9097-9105.

DOI PMID

[9]
NOGALES C, MAMDOUH Z M, LIST M, et al. Network pharmacology:curing causal mechanisms instead of treating symptoms[J]. Trends in Pharmacological Sciences, 2022, 43(2):136-150.

DOI

[10]
赵梓轩, 杨嘉睿, 蒋林树, 等. 基于网络药理学和分子对接探讨苦参碱在奶牛生产中的抗炎作用机制[J]. 动物营养学报, 2022, 34(12):7872-7885.

DOI

ZHAO Z X, YANG J R, JIANG L S, et al. Integrating network pharmacology and molecular docking to explorer mechanism of anti-inflammation of matrine in dairy cow production[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7872-7885. (in Chinese)

DOI

[11]
杨嘉睿, 高家瑞, 赵梓轩, 等. 基于网络药理学和分子对接分析金银花在奶牛生产中的抗炎作用及机制[J]. 动物营养学报, 2023, 35(5):3104-3118.

DOI

YANG J R, GAO J R, ZHAO Z X, et al. Anti-inflammatory effect and mechanism of Lonicerae japonicae Flos in dairy cow production based on network pharmacology and molecular docking[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3104-3118. (in Chinese)

[12]
GAO S, TANG L Y, MA J Y, et al. Evaluation of the mechanism of Gong Ying San activity on dairy cows mastitis by network pharmacology and metabolomics analysis[J]. PLoS One, 2024, 19(4):e0299234.

DOI

[13]
CHANG K X, FAN K S, ZHANG H, et al. Fuzhengjiedu San inhibits porcine reproductive and respiratory syndrome virus by activating the PI3K/AKT pathway[J]. PLoS One, 2024, 19(5):e0283728.

DOI

[14]
HUANG Y, ZHANG B H, MAUCK J, et al. Plasma and milk metabolomics profiles in dairy cows with subclinical and clinical ketosis[J]. Journal of Dairy Science, 2024, 107(8):6340-6357.

DOI PMID

[15]
HU C, ZHANG Y, KITTS D D. Evaluation of antioxidant and prooxidant activities of bamboo Phyllostachys nigra var. henonis leaf extract in vitro[J]. Journal of Agricultural and Food Chemistry, 2000, 48(8):3170-3176.

DOI

[16]
XUAN C, XI Y M, ZHANG Y D, et al. Yiqi Jiedu Huayu decoction alleviates renal injury in rats with diabetic nephropathy by promoting autophagy[J]. Frontiers in Pharmacology, 2021,12:624404.

[17]
ZHENG M C, LIU Z H, MANA L L, et al. Shenzhiling oral liquid protects the myelin sheath against Alzheimer’s disease through the PI3K/Akt-mTOR pathway[J]. Journal of Ethnopharmacology, 2021,278:114264.

[18]
CAO Y, YAO W M, YANG T, et al. Elucidating the mechanisms of Buyang Huanwu decoction in treating chronic cerebral ischemia:a combined approach using network pharmacology,molecular docking,and in vivo validation[J]. Phytomedicine, 2024,132:155820.

[19]
YUE K M, PU X D, LOOR J J, et al. Impaired autophagy aggravates oxidative stress in mammary gland of dairy cows with clinical ketosis[J]. Journal of Dairy Science, 2022, 105(7):6030-6040.

DOI

[20]
张硕. 竹叶黄酮与丁酸钠对仙居鸡生产性能、蛋品质和脂质代谢的影响[D]. 硕士学位论文. 杭州: 浙江农林大学, 2021.

ZHANG S. Effects of bamboo leaf flavonoids and sodium butyrate on the performance,egg quality and lipid metabolism of Xianju chicken[D]. Master’s Thesis. Hangzhou: Zhejiang A&F University, 2021. (in Chinese)

[21]
TUNDIS R, AUGIMERI G, VIVACQUA A, et al. Anti-inflammatory and antioxidant effects of leaves and sheath from bamboo (Phyllostacys edulis J. Houz)[J]. Antioxidants, 2023, 12(6):1239.

DOI

[22]
SUN Y W, CHEN Z, YANG J Y, et al. Pathway-specific enzymes from bamboo and crop leaves biosynthesize anti-nociceptive C-glycosylated flavones[J]. Communications Biology, 2020, 3(1):110.

DOI PMID

[23]
FAN Y N, CHEN Z W, WANG H X, et al. Isovitexin targets SIRT3 to prevent steroid-induced osteonecrosis of the femoral head by modulating mitophagy-mediated ferroptosis[J]. Bone Research, 2025, 13(1):18.

DOI

[24]
RAJPUT S A, SHAUKAT A, WU K T, et al. Luteolin alleviates aflatoxin B1-induced apoptosis and oxidative stress in the liver of mice through activation of Nrf2 signaling pathway[J]. Antioxidants, 2021, 10(8):1268.

DOI

[25]
ZHAI P, OUYANG X H, YANG M L, et al. Luteolin protects against myocardial ischemia/reperfusion injury by reducing oxidative stress and apoptosis through the p53 pathway[J]. Journal of Integrative Medicine, 2024, 22(6):652-664.

DOI PMID

[26]
JIANG M C, LV Z Y, HUANG Y H, et al. Quercetin alleviates lipopolysaccharide-induced inflammatory response in bovine mammary epithelial cells by suppressing TLR4/NF-κB signaling pathway[J]. Frontiers in Veterinary Science, 2022,9:915726.

[27]
JIANG M C, WANG K X, HUANG Y H, et al. Quercetin alleviates lipopolysaccharide-induced cell oxidative stress and inflammatory responses via regulation of the TLR4-NF-κB signaling pathway in bovine rumen epithelial cells[J]. Toxins, 2023, 15(8):512.

DOI

[28]
XU K, YANG Y, LAN M, et al. Apigenin alleviates oxidative stress-induced myocardial injury by regulating SIRT1 signaling pathway[J]. European Journal of Pharmacology, 2023,944:175584.

[29]
ZHOU N, TIAN Y, LIU W C, et al. Protective effects of resveratrol and apigenin dietary supplementation on serum antioxidative parameters and mRNAs expression in the small intestines of diquat-challenged pullets[J]. Frontiers in Veterinary Science, 2022,9:850769.

[30]
RAJENDRAN P, AMMAR R B, AL-SAEEDI F J, et al. Kaempferol inhibits zearalenone-induced oxidative stress and apoptosis via the PI3K/Akt-mediated Nrf2 signaling pathway:in vitro and in vivo studies[J]. International Journal of Molecular Sciences, 2020, 22(1):217.

DOI

[31]
YAO H, SUN J Y, WEI J, et al. Kaempferol protects blood vessels from damage induced by oxidative stress and inflammation in association with the Nrf2/HO-1 signaling pathway[J]. Frontiers in Pharmacology, 2020,11:1118.

[32]
KIM M E, KIM D H, LEE J S. FoxO transcription factors:applicability as a novel immune cell regulators and therapeutic targets in oxidative stress-related diseases[J]. International Journal of Molecular Sciences, 2022, 23(19):11877.

DOI

[33]
ZHANG C G, JIN Y H, MARCHETTI M, et al. EGFR signaling activates intestinal stem cells by promoting mitochondrial biogenesis and β-oxidation[J]. Current Biology, 2022, 32(17):3704-3719.e7.

DOI

[34]
SUN X C, WANG Y, ZENG H F, et al. SIRT3 protects bovine mammary epithelial cells from heat stress damage by activating the AMPK signaling pathway[J]. Cell Death Discovery, 2021, 7(1):304.

DOI

[35]
GIFRE-RENOM L, CARRATALÁ J V, PARÉS S, et al. Potential of MMP-9 based nanoparticles at optimizing the cow dry period:pulling apart the effects of MMP-9 and nanoparticles[J]. Scientific Reports, 2020, 10(1):11299.

DOI

[36]
BECCARIA C, VELÁZQUEZ N S, CHERVAZ V, et al. Involvement of matrix metalloproteinases and their inhibitors in Staphylococcus aureus chronically infected bovine mammary glands during active involution[J]. Research in Veterinary Science, 2021,137:30-39.

[37]
ALDIAN D, HARISA L D, TOMITA H, et al. Insights into rutin and quercetin biotransformations in ruminants revealed by molecular networking[J]. Journal of Animal Science, 2025,103:skaf154.

[38]
MCCLENDON L K, LANZ R B, PANIGRAHI A, et al. Transcriptional coactivation of NRF2 signaling in cardiac fibroblasts promotes resistance to oxidative stress[J]. Journal of Molecular and Cellular Cardiology, 2024,194:70-84.

[39]
ZHANG K, ZHANG M, SU H, et al. Regulation of inflammatory responses of cow mammary epithelial cells through MAPK signaling pathways of IL-17A cytokines[J]. Animals, 2024, 14(11):1572.

DOI

[40]
LIU W J, UMAR T, FENG W, et al. Bta-let-7d modulation of oxidative stress induced by potassium permanganate in bovine endometrial cells via IGF1R/PI3K/AKT signaling pathway[J]. Antioxidants, 2025, 14(4):444.

DOI

[41]
李建凤, 赵佳桢, 沈义媛, 等. 竹叶黄酮对热应激诱导奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2022, 34(1):626-639.

DOI

LI J F, ZHAO J Z, SHEN Y Y, et al. Protective effects of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by heat stress[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):626-639. (in Chinese)

[42]
WU D, LIN Q, WANG Z, et al. Mechanism of Xue-Jie-San treating Crohn’s disease complicated by atherosclerosis:network pharmacology,molecular docking and experimental validation[J]. Phytomedicine, 2024,135:156169.

[43]
WELLNITZ O, BRUCKMAIER R M. Invited review:the role of the blood-milk barrier and its manipulation for the efficacy of the mammary immune response and milk production[J]. Journal of Dairy Science, 2021, 104(6):6376-6388.

DOI

[44]
KIM S, JUNG U J, KIM S R. Role of oxidative stress in blood-brain barrier disruption and neurodegenerative diseases[J]. Antioxidants, 2024, 13(12):1462.

DOI

[45]
WEN X B, TANG L X, ZHONG R Q, et al. Role of mitophagy in regulating intestinal oxidative damage[J]. Antioxidants, 2023, 12(2):480.

DOI

[46]
HILL S M, WROBEL L, ASHKENAZI A, et al. VCP/p97 regulates Beclin-1-dependent autophagy initiation[J]. Nature Chemical Biology, 2021, 17(4):448-455.

DOI PMID

[47]
LEBOUTET R, LARGEAU C, MÜLLER L, et al. LGG-1/GABARAP lipidation is not required for autophagy and development in Caenorhabditis elegans[J]. eLife, 2023,12:e85748.

[48]
JAKOBI A J, HUBER S T, MORTENSEN S A, et al. Structural basis of p62/SQSTM1 helical filaments and their role in cellular cargo uptake[J]. Nature Communications, 2020, 11(1):440.

DOI PMID

[49]
QUINN P M J, MOREIRA P I, AMBRÓSIO A F, et al. Pink1/Parkin signalling in neurodegeneration and neuroinflammation[J]. Acta Neuropathologica Communications, 2020, 8(1):189.

DOI PMID

[50]
YU Y S, SHIN H R, KIM D, et al. Pontin arginine methylation by CARM1 is crucial for epigenetic regulation of autophagy[J]. Nature Communications, 2020, 11(1):6297.

DOI PMID

[51]
DU F, YU Q, HU G, et al. PINK1-dependent NFKB signaling contributes to amyloid pathology in Alzheimer disease[J]. Autophagy, 2025, 21(12):2561-2577.

DOI

[52]
姜鑫瑞, 冯贺龙, 杨宏春, 等. 竹叶黄酮对鸡胚接种新城疫疫苗免疫效果的影响[J]. 中国畜牧兽医, 2024, 51(9):4174-4181.

DOI

JIANG X R, FENG H L, YANG H C, et al. Effect of bamboo leaf flavonoid on immune efficacy of chick embryo inoculation with Newcastle disease vaccine[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(9):4174-4181. (in Chinese)

[53]
GORIS T, BRAUNE A. Genomics and physiology of Catenibacillus,human gut bacteria capable of polyphenol C-deglycosylation and flavonoid degradation[J]. Microbial Genomics, 2024, 10(5):001245.

[54]
PITCHAYATANAKORN P, SUWAN E, KONGSAEREE P T. Characterization of BrGH3A,a bovine rumen-derived glycoside hydrolase family 3 β-glucosidase with a permuted domain arrangement[J]. PLoS One, 2024, 19(7):e0305817.

DOI

文章导航

/