研究论文

棉籽糖通过调节氧化应激缓解黄曲霉毒素B1诱导的小鼠肾脏组织铁死亡和凋亡

  • 魏翔建 ,
  • 陆俞含 ,
  • 王子滨 ,
  • 林姝含 ,
  • 何胜贤 ,
  • 孙宝华 ,
  • 郑雨微 , * ,
  • 吕红明 , *
展开
  • 黑龙江八一农垦大学动物科技学院, 动物医学基础国家级实验教学示范中心,黑龙江省牛病防治重点实验室, 大庆 163319
* 郑雨微,讲师,E-mail: ;
吕红明,教授,博士生导师,E-mail:

魏翔建(2000—),男,黑龙江青冈人,硕士研究生,基础兽医学专业。E-mail:

Office editor: 菅景颖

收稿日期: 2025-12-01

  网络出版日期: 2026-07-14

基金资助

国家自然科学基金青年项目(32202862)

大庆市“新雁”人才扶持计划项目(DQXY202405)

Raffinose Alleviates Aflatoxin B1-Induced Kidney Ferroptosis and Apoptosis in Mice by Regulating Oxidative Stress

  • WEI Xiangjian ,
  • LU Yuhan ,
  • WANG Zibin ,
  • LIN Shuhan ,
  • HE Shengxian ,
  • SUN Baohua ,
  • ZHENG Yuwei , * ,
  • LYU Hongming , *
Expand
  • Heilongjiang Provincial Key Laboratory of Prevention and Control of Bovine Disease, The National Experimental Teaching Demonstration Center of Veterinary Medicine, College of Animal Science Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
* ZHENG Yuwei, lecturer, E-mail: ;
LYU Hongming, professor, E-mail:

Received date: 2025-12-01

  Online published: 2026-07-14

摘要

本研究旨在探讨棉籽糖(Raf)对黄曲霉毒素B1(AFB1)诱导的小鼠肾脏损伤的保护作用及其潜在分子机制,为畜禽营养健康保障及功能性饲料添加剂研发提供新方案。选用30只6~8周龄雄性C57BL/6小鼠,采用随机分配法分为5组(每组6只),分别进行如下处理:Control组,不给予Raf和AFB1;Raf组,给予50 mg/kg BW Raf;AFB1组,给予1.5 mg/kg BW AFB1;低剂量Raf干预组,给予25 mg/kg BW Raf+1.5 mg/kg BW AFB1;高剂量Raf干预组,给予50 mg/kg BW Raf+1.5 mg/kg BW AFB1。小鼠每隔1 d灌胃1次,为期30 d,共灌胃15次。灌胃期结束后采集所有小鼠的血液样本,实施安乐死并立即获取肾脏组织,进行生化指标检测、组织切片观察、相关蛋白表达检测。结果显示:1)Raf干预后,AFB1诱导的小鼠血清中肌酐(Cre)、尿素氮(BUN)含量显著升高的趋势被抑制(P<0.001或P<0.000 1);且肾脏组织苏木精-伊红(HE)染色切片观察及Paller评分显示,AFB1组出现炎性细胞浸润、出血、肾小管结构异常及肾小球细胞增生,Paller评分显著升高(P<0.000 1),Raf干预后上述病理损伤得到改善,Paller评分显著降低(P<0.000 1)。2)Raf可显著逆转AFB1诱导的小鼠血清中谷胱甘肽(GSH)含量降低(P<0.05)、肾脏组织中丙二醛(MDA)含量升高(P<0.000 1)以及活性氧(ROS)荧光强度升高的现象。3)肾脏组织TUNEL染色及蛋白质印迹(Western Blot)结果表明,Raf能减少AFB1诱导的肾脏组织凋亡细胞数量,显著上调B细胞淋巴瘤-2(Bcl-2)蛋白表达(P<0.001)及显著下调Bcl-2相关X蛋白(Bax)蛋白表达(P<0.000 1)。4)与AFB1组相比,高剂量Raf可显著上调肾脏组织中胱氨酸/谷氨酸反向转运体(xCT)、谷胱甘肽过氧化物酶4(GPX4)、铁死亡抑制蛋白1(FSP1)、铁蛋白重链1(FTH1)蛋白表达(P<0.001),且显著抑制AFB1诱导的小鼠血清中亚铁离子(Fe2+)浓度的升高(P<0.01)。5)Raf可显著抑制AFB1诱导的肾脏组织中Kelch样ECH关联蛋白1(Keap1)、谷氨酸-半胱氨酸连接酶调节亚基(GCLM)蛋白表达的下调(P<0.001或P<0.000 1)、血红素氧合酶-1 (HO-1)蛋白表达的上调(P<0.000 1)。综上所述,AFB1可引发肾脏组织氧化应激失衡,激活细胞凋亡与铁死亡通路,最终导致小鼠肾脏功能损伤及肾脏组织病理改变;而Raf可改善AFB1诱导的肾脏组织氧化应激、抑制细胞凋亡与铁死亡,对AFB1诱导的小鼠肾脏损伤发挥保护作用。

本文引用格式

魏翔建 , 陆俞含 , 王子滨 , 林姝含 , 何胜贤 , 孙宝华 , 郑雨微 , 吕红明 . 棉籽糖通过调节氧化应激缓解黄曲霉毒素B1诱导的小鼠肾脏组织铁死亡和凋亡[J]. 动物营养学报, 2026 , 38(7) : 5457 -5469 . DOI: 10.12418/CJAN2026.436

Abstract

This study aimed to investigate the protective effect of raffinose (Raf) against aflatoxin B1(AFB1)-induced kidney injury in mice and its underlying molecular mechanism, providing a new strategy for livestock nutritional health and the development of functional feed additives. Thirty male C57BL/6 mice (6 to 8 weeks old) were randomly divided into five groups with six mice per group, and treated as follows: Control group, treated with neither Raf nor AFB1; Raf group, treated with 50 mg/kg BW Raf; AFB1 group, treated with 1.5 mg/kg BW AFB1; low-dose Raf intervention group, treated with 25 mg/kg BW Raf+1.5 mg/kg BW AFB1; high-dose Raf intervention group, treated with 50 mg/kg BW Raf+1.5 mg/kg BW AFB1. Mice were administered the respective treatments by gavage once every other day for 30 days (15 times in total). At the end of the administration period, blood samples were collected from all mice. Subsequently, the mice were euthanized, and kidney tissues were immediately harvested for biochemical assays, histopathological examination, and detection of relevant protein expression. The results showed as follows: Raf intervention significantly reversed the AFB1-induced elevation of serum creatinine (Cre) and blood urea nitrogen (BUN) contents in mice (P<0.001 or P<0.000 1). Histopathological examination of kidney tissue sections stained with hematoxylin and eosin (HE) and Paller score revealed that the AFB1 group exhibited inflammatory cell infiltration, hemorrhage, abnormal kidney tubule structure, and glomerular cell proliferation, with a significant increase in Paller score (P<0.000 1). Following Raf intervention, the aforementioned pathological damage was ameliorated, and the Paller score was significantly reduced (P<0.000 1). 2) Raf significantly reversed the AFB1-induced decrease in serum glutathione (GSH) content (P<0.05), as well as the increase in malondialdehyde (MDA) content (P<0.000 1) and reactive oxygen species (ROS) fluorescence intensity in mouse kidney tissue. 3) TUNEL staining and Western blot analysis of kidney tissue demonstrated that Raf reduced the number of apoptotic cells induced by AFB1. Raf significantly upregulated the protein expression of B-cell lymphoma-2 (Bcl-2) (P<0.001) and significantly downregulated the protein expression of Bcl-2-associated X protein (Bax) (P<0.000 1). 4) Compared with the AFB1 group, high-dose Raf significantly upregulated the protein expression of cystine/glutamate antiporter (xCT), glutathione peroxidase 4 (GPX4), ferroptosis suppressor protein 1 (FSP1) and ferritin heavy chain 1 (FTH1) in kidney tissue (P<0.001). Furthermore, Raf significantly inhibited the AFB1-induced elevation of serum ferrous ion (Fe2+) concentration (P<0.01). 5) Raf significantly reversed the AFB1-induced downregulation of Kelch-like ECH-associated protein 1 (Keap1) and glutamate-cysteine ligase modulatory subunit (GCLM) protein expression (P<0.001 or P<0.000 1), as well as the upregulation of heme oxygenase-1 (HO-1) protein expression (P<0.000 1) in kidney tissue. In summary, AFB1 induces oxidative stress imbalance in kidney tissue, activates apoptosis and ferroptosis pathways, and ultimately leads to renal dysfunction and histopathological damage in mice. Conversely, Raf ameliorates AFB1-induced oxidative stress, inhibits apoptosis and ferroptosis, thereby exerting a protective effect against AFB1-induced kidney injury in mice.

霉菌毒素是某些真菌自然产生的有毒化合物,这类真菌易污染全球广泛种植且供人类与动物食用的多种农作物,不仅在全球造成数百万美元的经济损失,还会危害人类与动物健康,并导致农产品污染[1]。其中,黄曲霉毒素B1(AFB1)是霉菌毒素中最常见的一种,它是由黄曲霉(Aspergillus flavus)与寄生曲霉(Aspergillus parasiticus)等真菌合成的高毒性次生代谢产物[2-3]。长期以来,AFB1的毒性研究多聚焦于肝脏,作为主要代谢器官,AFB1进入机体后经肝脏代谢产生AFB1-8,9-环氧化物(AFBO),导致细胞损伤、基因突变甚至细胞死亡,相关机制已形成较为完善的理论体系[1,4]。但肾脏作为AFB1排泄和次级代谢的关键器官,其所受毒性效应被长期忽视。在生理状态下,药物及代谢产物经肾小管浓缩易蓄积致损伤[5]。已有研究表明,AFB1和霉菌毒素M1(AFM1)可导致肾脏损伤[5]、肝脏损伤[6]和肠道损伤[7]。但目前关于AFB1肾毒性的分子机制仍缺乏系统解析,尤其是“代谢活化-应激调控-细胞死亡”的连锁反应逻辑尚未明确,成为制约AFB1所致肾脏损伤防治研究的关键瓶颈。
氧化应激是毒物诱导器官损伤的核心共性机制,AFB1可诱导活性氧(ROS)生成而引发氧化应激[8]。然而,单纯依靠氧化应激通路仍难以完全阐释AFB1诱导肾脏损伤的完整分子机制。铁死亡是铁依赖、非凋亡性细胞死亡,依赖铁与脂质过氧化物[9],且铁代谢调控其易感程度[10]。近年研究表明,铁死亡与细胞凋亡可能共同参与疾病的发展[11],但在AFB1肾毒性中,氧化应激如何精准调控铁死亡、二者是否形成协同损伤网络,目前仍缺乏直接试验验证。此外,Kelp样ECH关联蛋白1(Keap1)-核因子E2相关因子2(Nrf2)通路作为机体核心抗氧化防御系统[12],其在AFB1肾毒性中是否存在抗氧化代偿不足现象,以及该通路失衡如何影响后续细胞死亡进程,目前尚未形成明确结论。
近年来,天然化合物因其环境相容性佳、生产成本可控、低毒无残留等核心优势,成为绿色饲料添加剂研发方向。棉籽糖(Raf)是从棉籽、豆类等植物籽仁中提取的天然三糖(由半乳糖、果糖和葡萄糖组成),且无毒副作用[13]。研究表明,Raf可缓解AFB1致乳腺上皮细胞及肝脏损伤[14-15],还具备显著的抗菌[16]、抗氧化[17]及抗衰老[18]作用,但尚未有研究探讨其抗氧化活性能否通过调节氧化应激-铁死亡通路干预细胞死亡,缓解AFB1导致的肾脏损伤。鉴于AFB1对畜禽养殖业的严重危害及天然化合物的应用优势,本研究拟以小鼠为模型,明确Raf对AFB1诱导致肾脏损伤的保护效应及分子机制,旨在为霉变饲料污染下畜禽营养健康保障及功能性饲料添加剂研发提供新方案;同时,通过揭示AFB1的非肝毒性机制,填补相关理论空白,并为营养调控干预AFB1相关肾脏损伤、保障畜禽生长性能与营养代谢效率提供试验依据与理论支撑。

1 材料与方法

1.1 试剂与仪器

1.1.1 主要试剂

丙二醛(MDA)检测试剂盒购于苏州格锐思生物科技有限公司;肌酐(Cre)、尿素氮(BUN)与还原型谷胱甘肽(GSH)酶联免疫吸附测定(ELISA)试剂盒均购于南京建成生物工程研究所;苏木精-伊红(HE)染色试剂盒、活性氧(ROS)检测试剂盒、一步法TUNEL细胞凋亡检测试剂盒、BCA蛋白浓度测定试剂盒、苯甲基磺酰氟(PMSF)、NP-40裂解液、十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶配制试剂盒、SDS-PAGE蛋白上样缓冲液(5×)均购于上海碧云天生物技术股份有限公司;增强型化学发光液(ECL)、聚偏二氟乙烯(PVDF)膜购于美国默克密理公司;AFB1(1162-65-8,纯度≥98%)、Raf(512-69-6,纯度≥98%)购于成都普菲德生物技术有限公司;亚铁离子(Fe2+)比色法测试盒购自ElaBscience公司。
胱氨酸/谷氨酸反向转运体(xCT)抗体(A13685)、谷胱甘肽过氧化物酶4(GPX4)抗体(A11243)、铁死亡抑制蛋白1(FSP1)抗体(A19109)、铁蛋白重链1(FTH1)抗体(A19544)、Nrf2抗体(A3577)、Keap1抗体(A17062)、B细胞淋巴瘤-2(Bcl-2)抗体(A0208)、血红素氧合酶-1(HO-1)抗体(A11919)、谷氨酸-半胱氨酸连接酶调节亚基(GCLM)抗体(A11444)、NAD(P)H:醌氧化还原酶1(NQO1)抗体(A19586)、Bcl-2相关X蛋白(Bax)抗体(A7626)、β-肌动蛋白(β-actin)抗体(AC038)均购于武汉爱博泰克生物科技有限公司。

1.1.2 主要仪器

MR-96A酶标仪购于深圳迈瑞生物医疗电子股份有限公司;ChemiDoc XRS+化学发光成像系统、电泳槽及转膜仪均购于由美国Bio-Rad公司。

1.2 试验动物

本试验选用30只6~8周龄雄性C57BL/6小鼠,体重范围为17~21 g,购自哈尔滨医科大学实验动物学部。小鼠基础饲粮为北京科澳协力有限公司生产的大小鼠维持饲粮,其主要成分包括玉米、食盐、豆粕、面粉、鱼粉、酵母粉、植物油、多种维生素及矿物元素。

1.3 试验设计

将30只小鼠置于温度可控(23~25 ℃)及12 h明暗交替的环境中适应性饲养1周。随后参考相关文献[19-20],将这些小鼠随机分配至5个组(每组6只,n=6),分别为Control组[不给予Raf和AFB1,用磷酸盐缓冲液(PBS)代替]、Raf组(给予50 mg/kg BW Raf)、AFB1组(给予1.5 mg/kg BW AFB1)、低剂量Raf干预组(给予25 mg/kg BW Raf和1.5 mg/kg BW AFB1)、高剂量Raf干预组(给予50 mg/kg BW Raf和1.5 mg/kg BW AFB1)。依据小鼠的平均体重,精确称取AFB1、Raf或其混合物,先溶解于0.2 mL二甲基亚砜(DMSO),再用磷酸盐缓冲液(PBS)进行稀释,所得工作液保存于4 ℃环境备用。整个试验期内,通过灌胃方式(灌胃量为0.1 mL)对小鼠进行隔日给药,累计干预15次,总周期为30 d。试验结束后,采集所有小鼠的血液样本,实施安乐死并立即获取肾脏组织。部分肾脏组织用于ROS荧光强度观检测,部分肾脏组织用4%多聚甲醛溶液固定用于形态学分析,其余样本则迅速置于-80 ℃超低温冰箱中冷冻,以供后续生化指标测定。
本研究的所有动物操作均遵照黑龙江八一农垦大学实验动物福利与伦理委员会的相关规范执行(批准号:JXY2022037)。在AFB1小鼠灌胃试验中,实验人员穿戴一次性丁腈手套、防化服、防喷溅面罩、N95口罩及防护鞋套做好个人防护;溶液配制、稀释及灌胃等操作于通风的生物安全柜和动物饲养室开展,配备75%乙醇棉球与0.5%次氯酸钠消毒液,实验区张贴警示标识、限制无关人员进入且严禁存放个人物品;手套、防护服、污染器具、小鼠尸体等废弃物按学校流程处理后由专业机构回收,固体废弃物经高压灭菌后焚烧;实验人员均经专项培训考核合格,严格遵循《实验室生物安全通用要求》及剧毒化学品管理法规,保障实验安全有序进行。

1.4 指标测定

1.4.1 血清和肾脏组织生化指标测定

将血液样本置于4 ℃冰箱静置,24 h内以1 172×g的离心力离心分离血清,用于Cre、BUN、GSH含量与Fe2+浓度检测。精确称量10 mg肾脏组织样本后移入离心管,加入100 μL裂解液于离心管中,于冰浴环境下进行组织匀浆操作,随后将匀浆液放入4 ℃离心机,以12 000×g的离心力高速离心10 min,收集离心后的上清液,用于MDA含量的检测。所有指标的检测步骤及结果计算均严格按照对应试剂盒说明书操作。

1.4.2 肾脏组织结构观察

将经4%多聚甲醛充分固定的肾脏组织样本,依次经过PBS冲洗、梯度乙醇脱水处理后进行石蜡包埋,利用切片机将包埋好的组织块制备成厚度适宜的连续切片;切片经脱蜡、水化处理后,进行苏木精-伊红(HE)染色;染色结束后,切片再次经历梯度乙醇脱水、二甲苯透明,最后使用中性树胶进行封固。所有制备完成的切片均在光学显微镜下进行观察,以评估肾脏组织的形态学结构,并依据Paller评分标准对肾脏损伤程度进行量化评估。

1.4.3 肾脏组织中ROS荧光强度检测

取新鲜肾脏组织,用预冷PBS冲洗干净并吸干表面水分,随后进行包埋并置于液氮中冷冻,使用冰冻切片机将冷冻好的组织块制备成厚度适宜的连续冰冻切片;切片经室温复温、PBS多次洗涤后,滴加1×二氢乙锭(DHE)染色液,于37 ℃恒温避光孵育箱中孵育30 min;孵育结束后,用PBS再次充分洗涤,滴加4',6-二脒基-2-苯基吲哚(DAPI)细胞核染液,室温避光复染;复染完成后再次用PBS洗涤,最后用抗荧光淬灭封片剂封固。制备完成的切片于荧光显微镜下观察ROS荧光强度。

1.4.4 肾脏组织中细胞凋亡水平检测

将经4%多聚甲醛充分固定的肾脏组织样本,依次经过PBS冲洗、梯度乙醇脱水处理后进行石蜡包埋,利用石蜡切片机将包埋好的组织块进行切片;这些切片经二甲苯脱蜡、梯度乙醇水化处理后,滴加蛋白酶K工作液于37 ℃恒温箱中进行抗原修复,修复完成后用PBS充分洗涤;在洗涤后的切片上滴加TUNEL检测液,37 ℃避光孵育1 h,再次经PBS洗涤,随后滴加DAPI细胞核染液进行室温避光复染,复染完成后再次洗涤,最后使用抗荧光淬灭封片剂进行封固。将制备完成的切片在荧光显微镜下进行观察,通过TUNEL阳性细胞数量评估肾脏组织内凋亡细胞的分布情况。

1.4.5 肾脏组织蛋白提取及蛋白质印迹(Western blot)检测

取-80 ℃冻存的肾脏组织约20 mg,在液氮环境下充分研磨后,加入裂解液进行冰上裂解;裂解液经高速离心后,收集上清液用于后续分析。采用BCA法测定各样本的蛋白质浓度,并根据结果将所有样本调整至统一浓度;随后,将蛋白质样品与5×上样缓冲液混合,在100 ℃金属浴中加热10 min,使其充分变性;使用预制试剂盒配制SDS-PAGE凝胶,将变性后的蛋白质样品进行上样、电泳分离,随后将凝胶与经甲醇激活的PVDF膜移至转印夹,放入转印槽中进行冰浴转膜;转膜完成后,用5%的脱脂牛奶室温封闭2 h,以封闭膜上的非特异性结合位点;封闭结束后,使用1×TBST缓冲液在摇床上洗涤印迹膜3次,每次持续10 min。
参照抗体说明书要求,采用TBST缓冲液稀释一抗(稀释比例按说明书推荐),将PVDF膜浸入稀释后的一抗工作液中,于4 ℃冰箱中封闭孵育过夜;次日采用1×TBST缓冲液对膜进行摇床洗涤,共3次,每次洗涤时长为10 min;随后加入对应种属的二抗,于室温条件下孵育1 h,二抗孵育完成后,按上述相同洗涤条件再次对PVDF膜进行3次洗涤;按照说明书比例配制ECL发光液,利用ChemiDoc XRS+化学发光成像系统进行曝光显影,采用Image J 1.8.0软件对目的条带的灰度值进行分析,数据经过归一化处理。

1.5 数据统计与分析

运用GraphPad Prism 9.0统计软件对试验数据进行单因素方差分析(one-way ANOVA),试验结果以平均值±标准差(mean±SD)表示。统计学显著性判断标准:P<0.05视为差异具有统计学意义,其中P<0.05为差异显著,P<0.01为差异极显著,P<0.001为差异极其显著,P<0.000 1为差异极度显著。

2 结果与分析

2.1 Raf改善AFB1诱导的小鼠血清指标变化及肾脏组织病理损伤
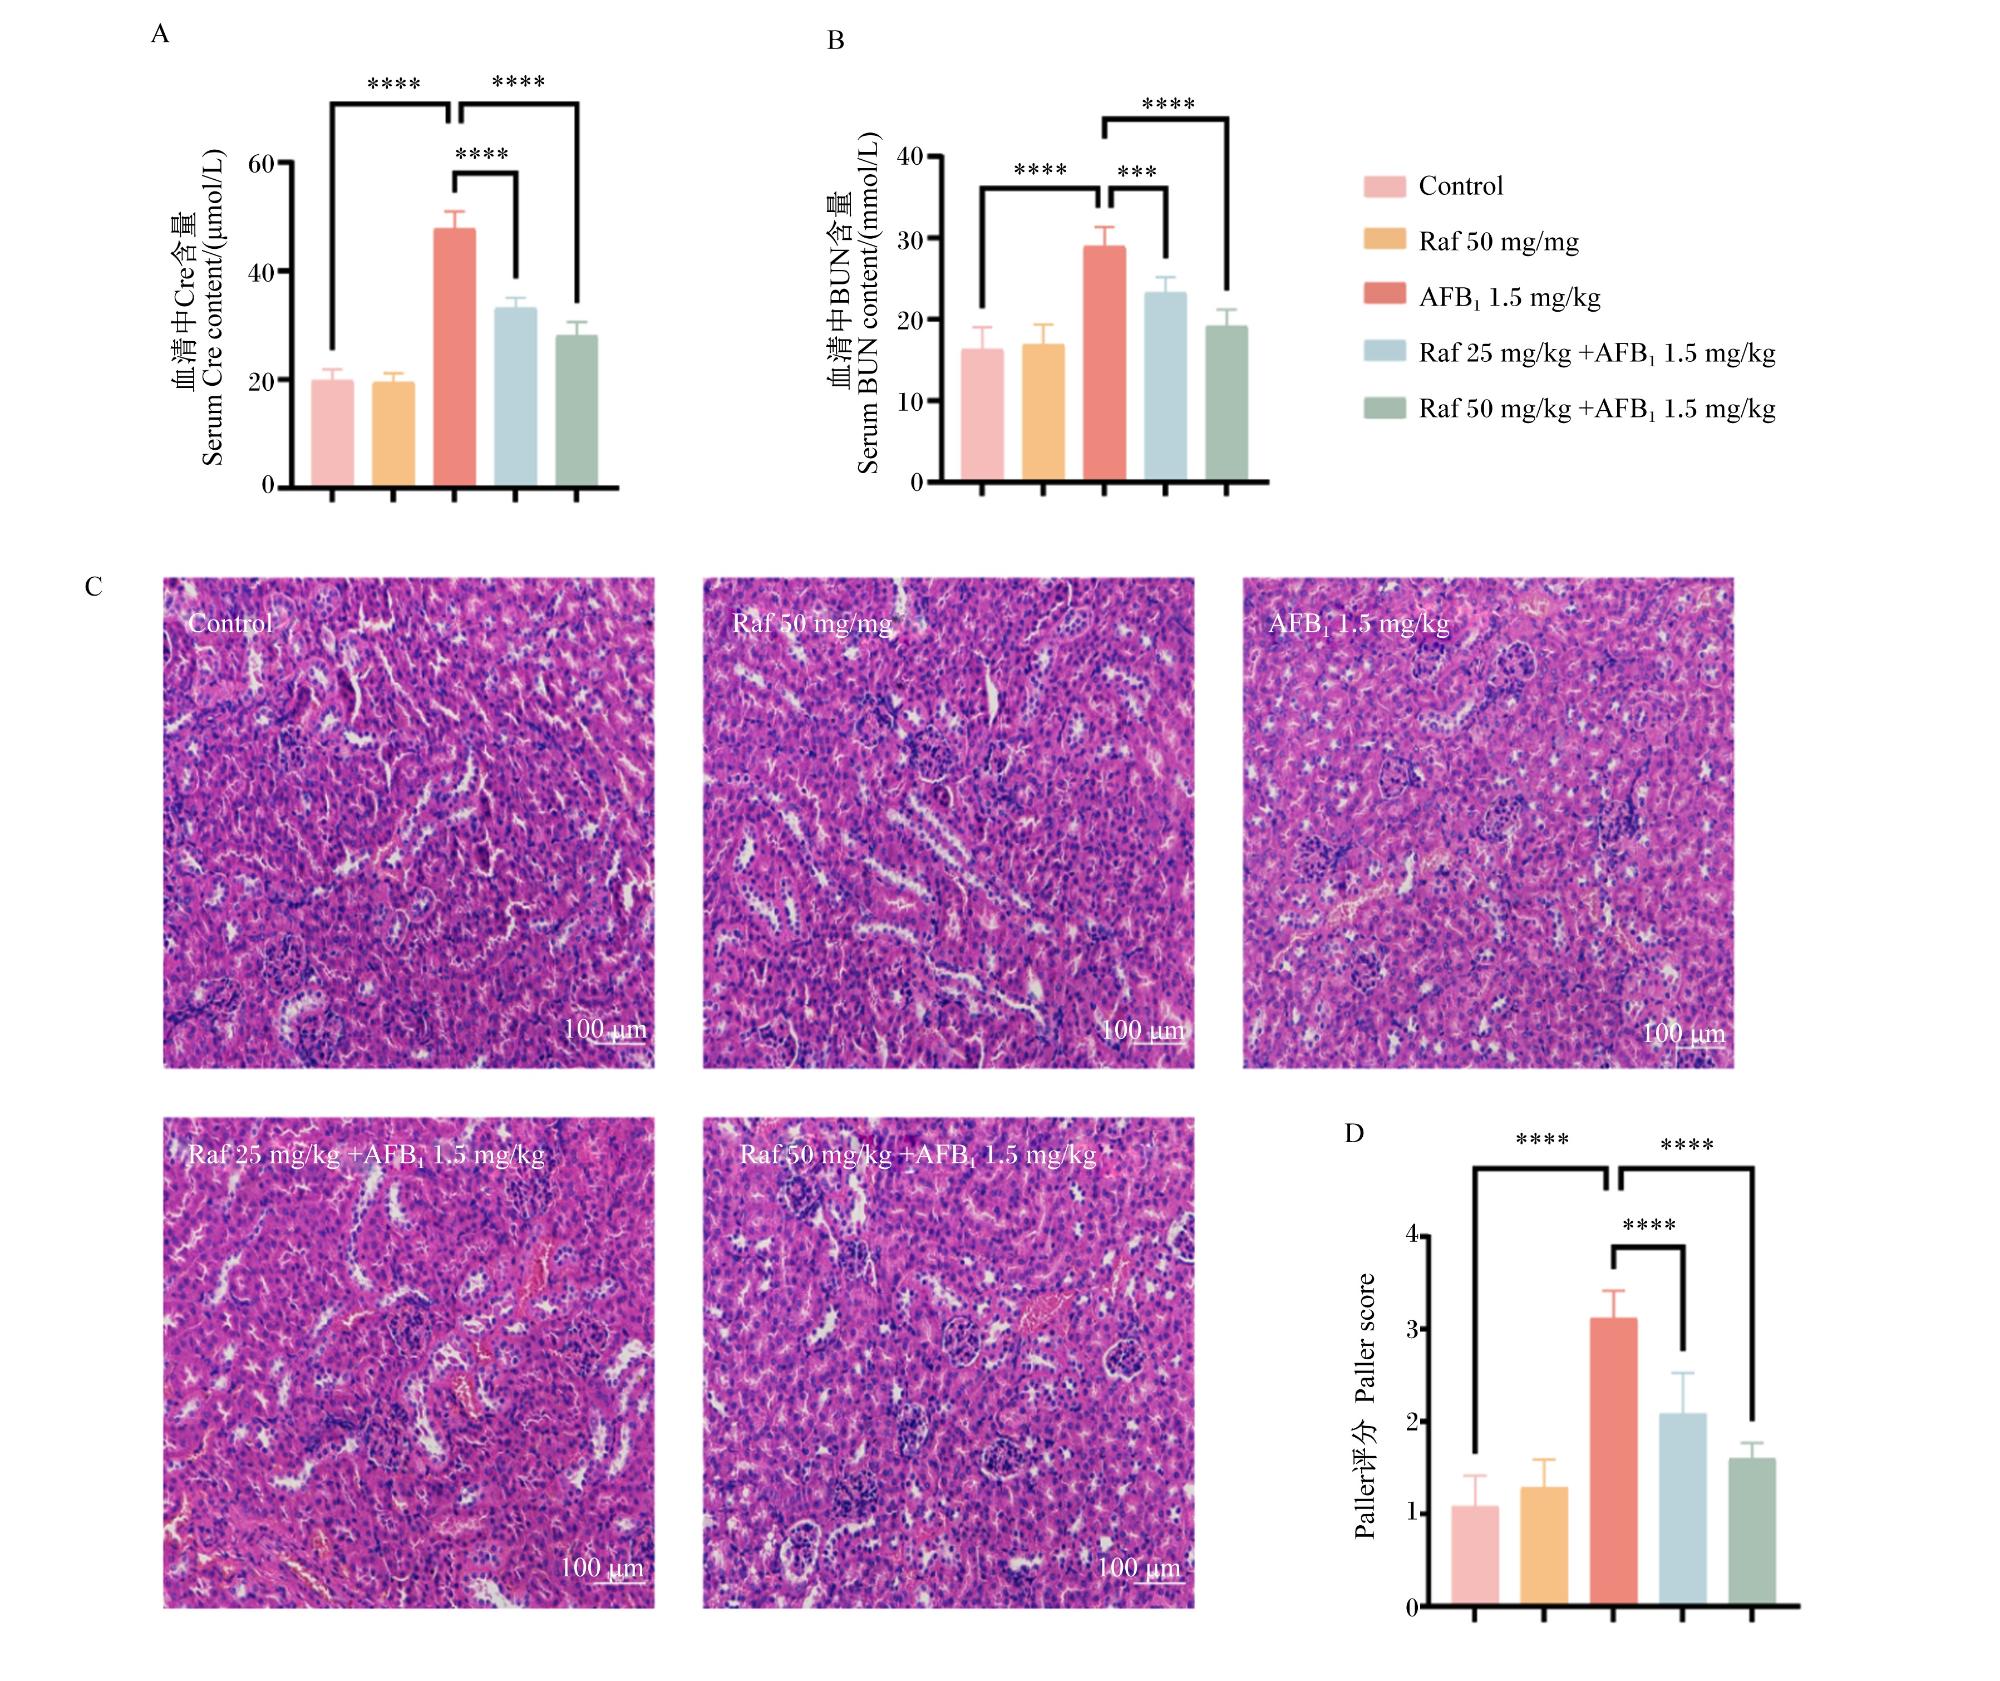
图1-A图1-B所示,与Control组对比,AFB1组小鼠血清中Cre、BUN含量显著升高(P<0.000 1);与AFB1组相比,Raf干预组血清Cre、BUN含量显著降低(P<0.001或P<0.000 1),且高剂量Raf干预组效果更优。肾脏组织HE染色及Paller评分如图1-C图1-D所示,Control组肾脏组织结构完整,无明显病理损伤;AFB1组出现明显的炎性细胞浸润、出血、肾小管结构异常及肾小球细胞增生,Paller评分显著升高(P<0.000 1);Raf干预后,上述病理损伤症状明显缓解,Paller评分显著降低(P<0.000 1),且高剂量Raf干预组效果优于低剂量Raf干预组。
图1 各组小鼠血清中Cre和BUN含量、肾脏组织HE染色切片观察及Paller评分

Control:Control组(给予PBS);Raf 50 mg/mg:Raf组(给予50 mg/kg BW Raf);AFB1 1.5 mg/kg:AFB1组(给予1.5 mg/kg BW AFB1);Raf 25 mg/kg +AFB1 1.5 mg/kg:低剂量Raf干预组(给予25 mg/kg BW Raf和1.5 mg/kg BW AFB1);Raf 50 mg/kg +AFB1 1.5 mg/kg:高剂量Raf干预组(给予50 mg/kg BW Raf和1.5 mg/kg BW AFB1)。“*”表示差异显著(P<0.05),“**”表示差异极显著(P<0.01),“***”表示差异极其显著(P<0.001),“****”表示差异极度显著(P<0.000 1)。下图同。
Control: control group (treated with PBS); Raf 50 mg/kg: Raf group (treated with 50 mg/kg BW Raf); AFB1 1.5 mg/kg: AFB1 group (treated with 1.5 mg/kg BW AFB1); Raf 25 mg/kg+AFB1 1.5 mg/kg: low-dose Raf intervention group (treated with 25 mg/kg BW Raf and 1.5 mg/kg BW AFB1); Raf 50 mg/kg+AFB1 1.5 mg/kg: high-dose Raf intervention group (treated with 50 mg/kg BW Raf and 1.5 mg/kg BW AFB1). “*”denotes a significant difference (P<0.05), “**” denotes a highly significant difference (P<0.01), “***” denotes an extremely significant difference (P<0.001), and “****” denotes an extremely highly significant difference (P<0.000 1). The same as below.

Fig.1 Serum Cre and BUN contents, kidney tissue HE-stained section observation and Paller score of mice in each group (n=6)

2.2 Raf改善AFB1诱导的小鼠血清和肾脏组织中氧化应激相关指标变化

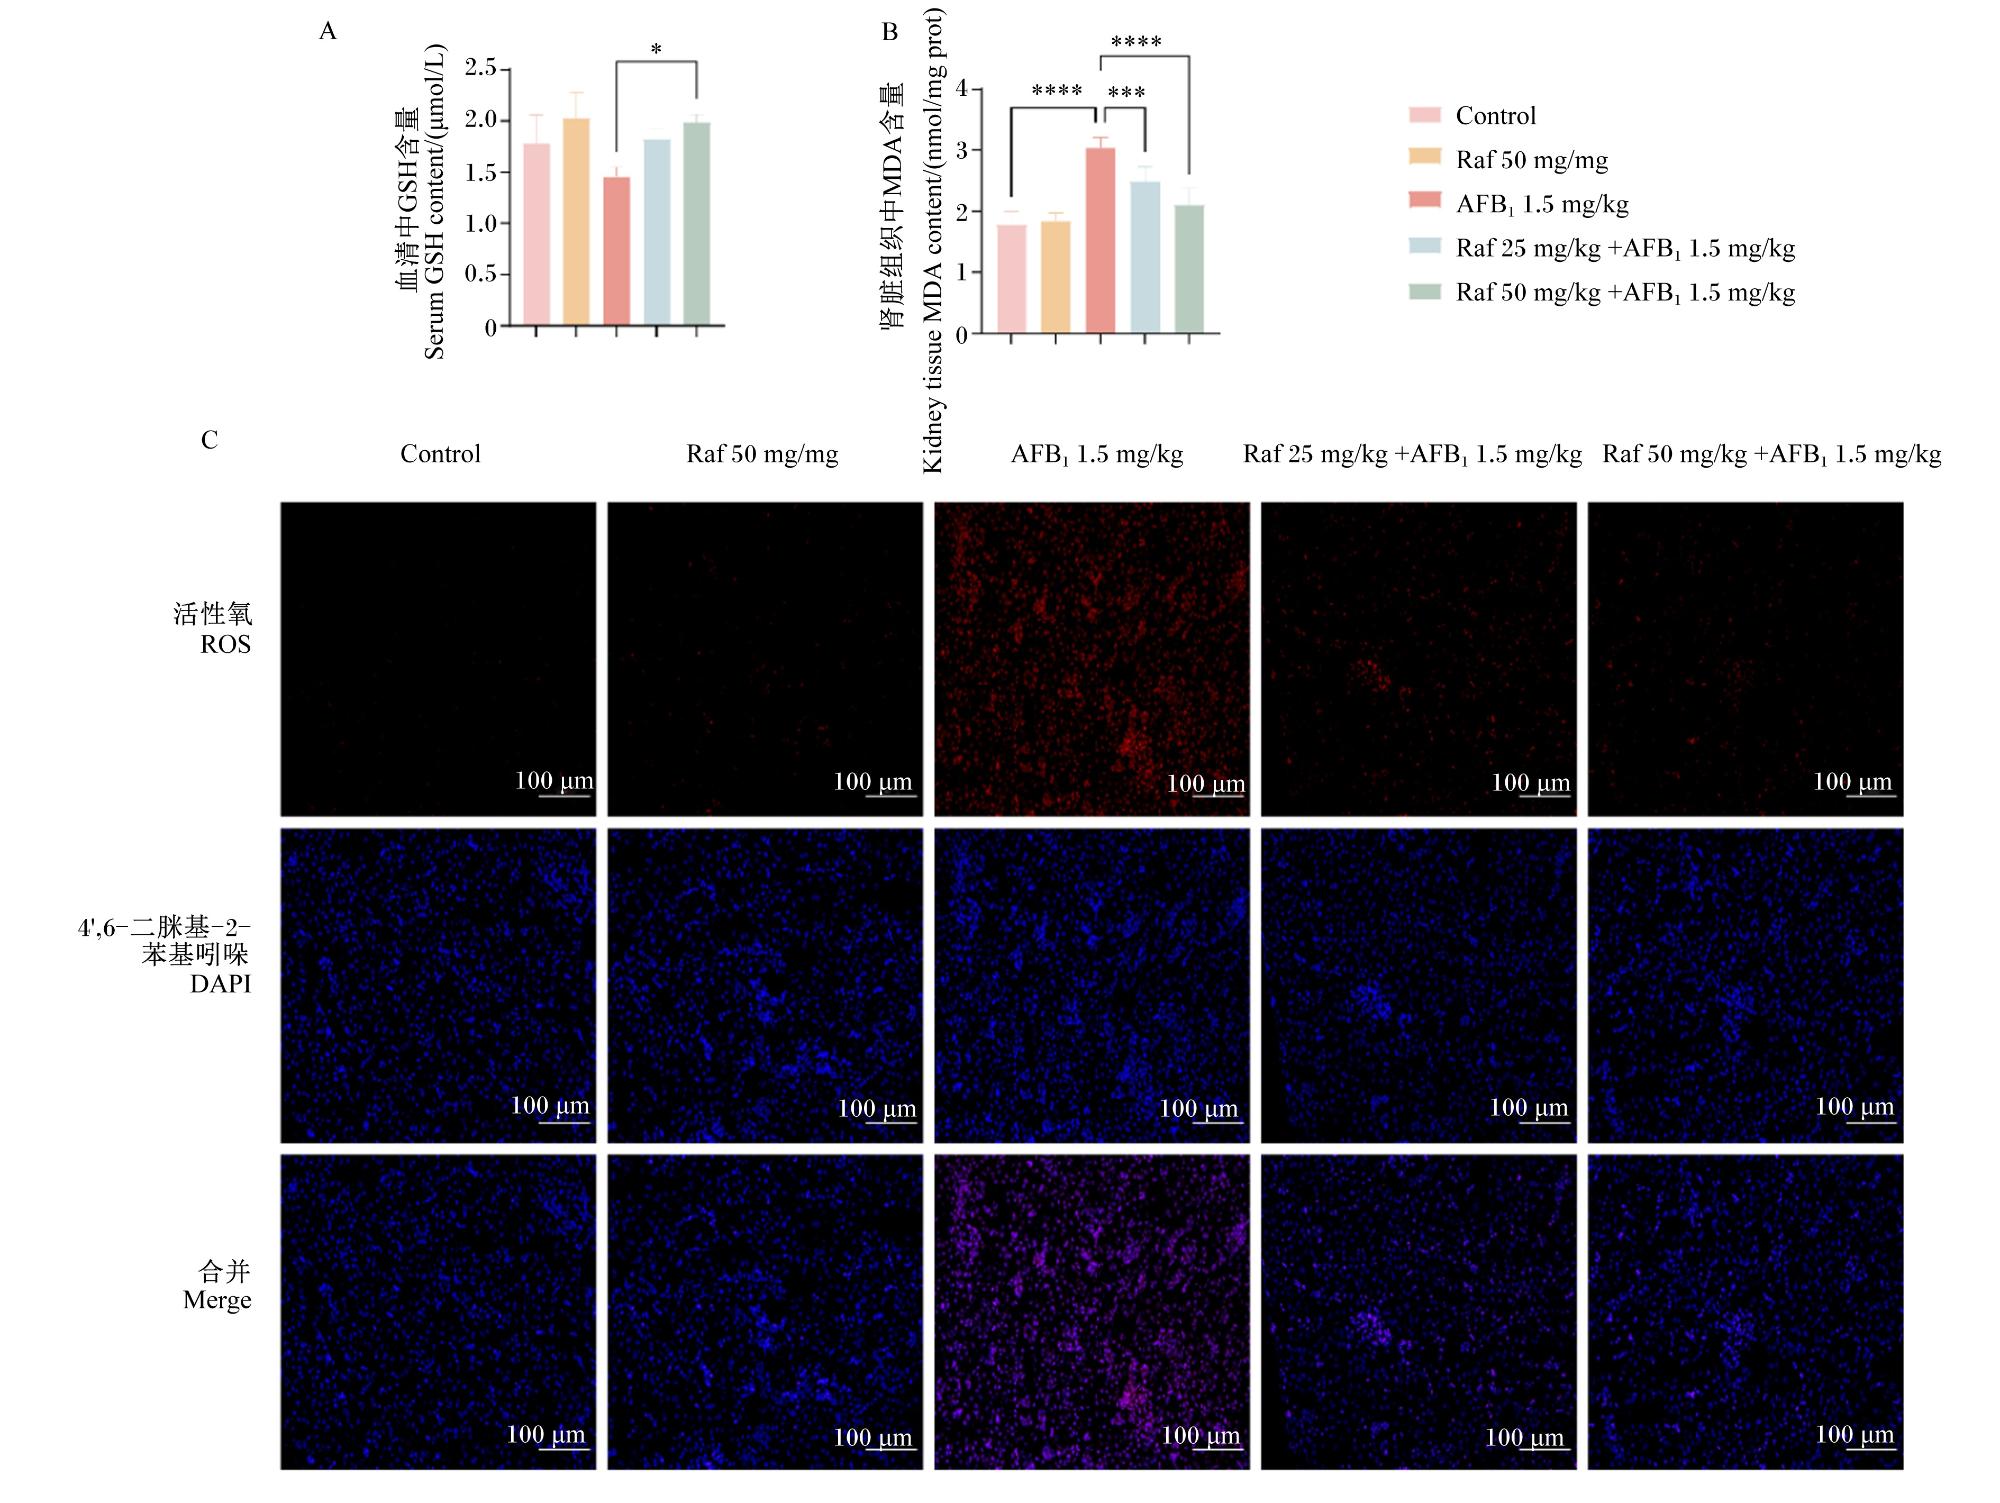
图2-A图2-B所示,与Control组相比,AFB1组小鼠血清中GSH含量略低但差异无统计学意义(P>0.05),肾脏组织中MDA含量显著升高(P<0.000 1);与AFB1组相比,低剂量Raf干预组小鼠血清中GSH含量略高但差异无统计学意义(P>0.05),高剂量Raf干预组血清中GSH含量则显著升高(P<0.05),低、高剂量Raf干预组肾脏组织中MDA含量显著降低(P<0.001或P<0.000 1),且以高剂量Raf干预组降低效果更佳。如图2-C所示,小鼠肾脏组织中ROS荧光强度与MDA含量有相同的变化趋势。
图2 各组小鼠血清中GSH含量及肾脏组织中MDA含量与ROS荧光强度

Fig.2 Serum GSH content, kidney tissue MDA content and ROS fluorescence intensity of mice in each group (n=6)

2.3 Raf改善AFB1诱导的小鼠肾脏组织中凋亡相关蛋白表达和细胞凋亡水平变化

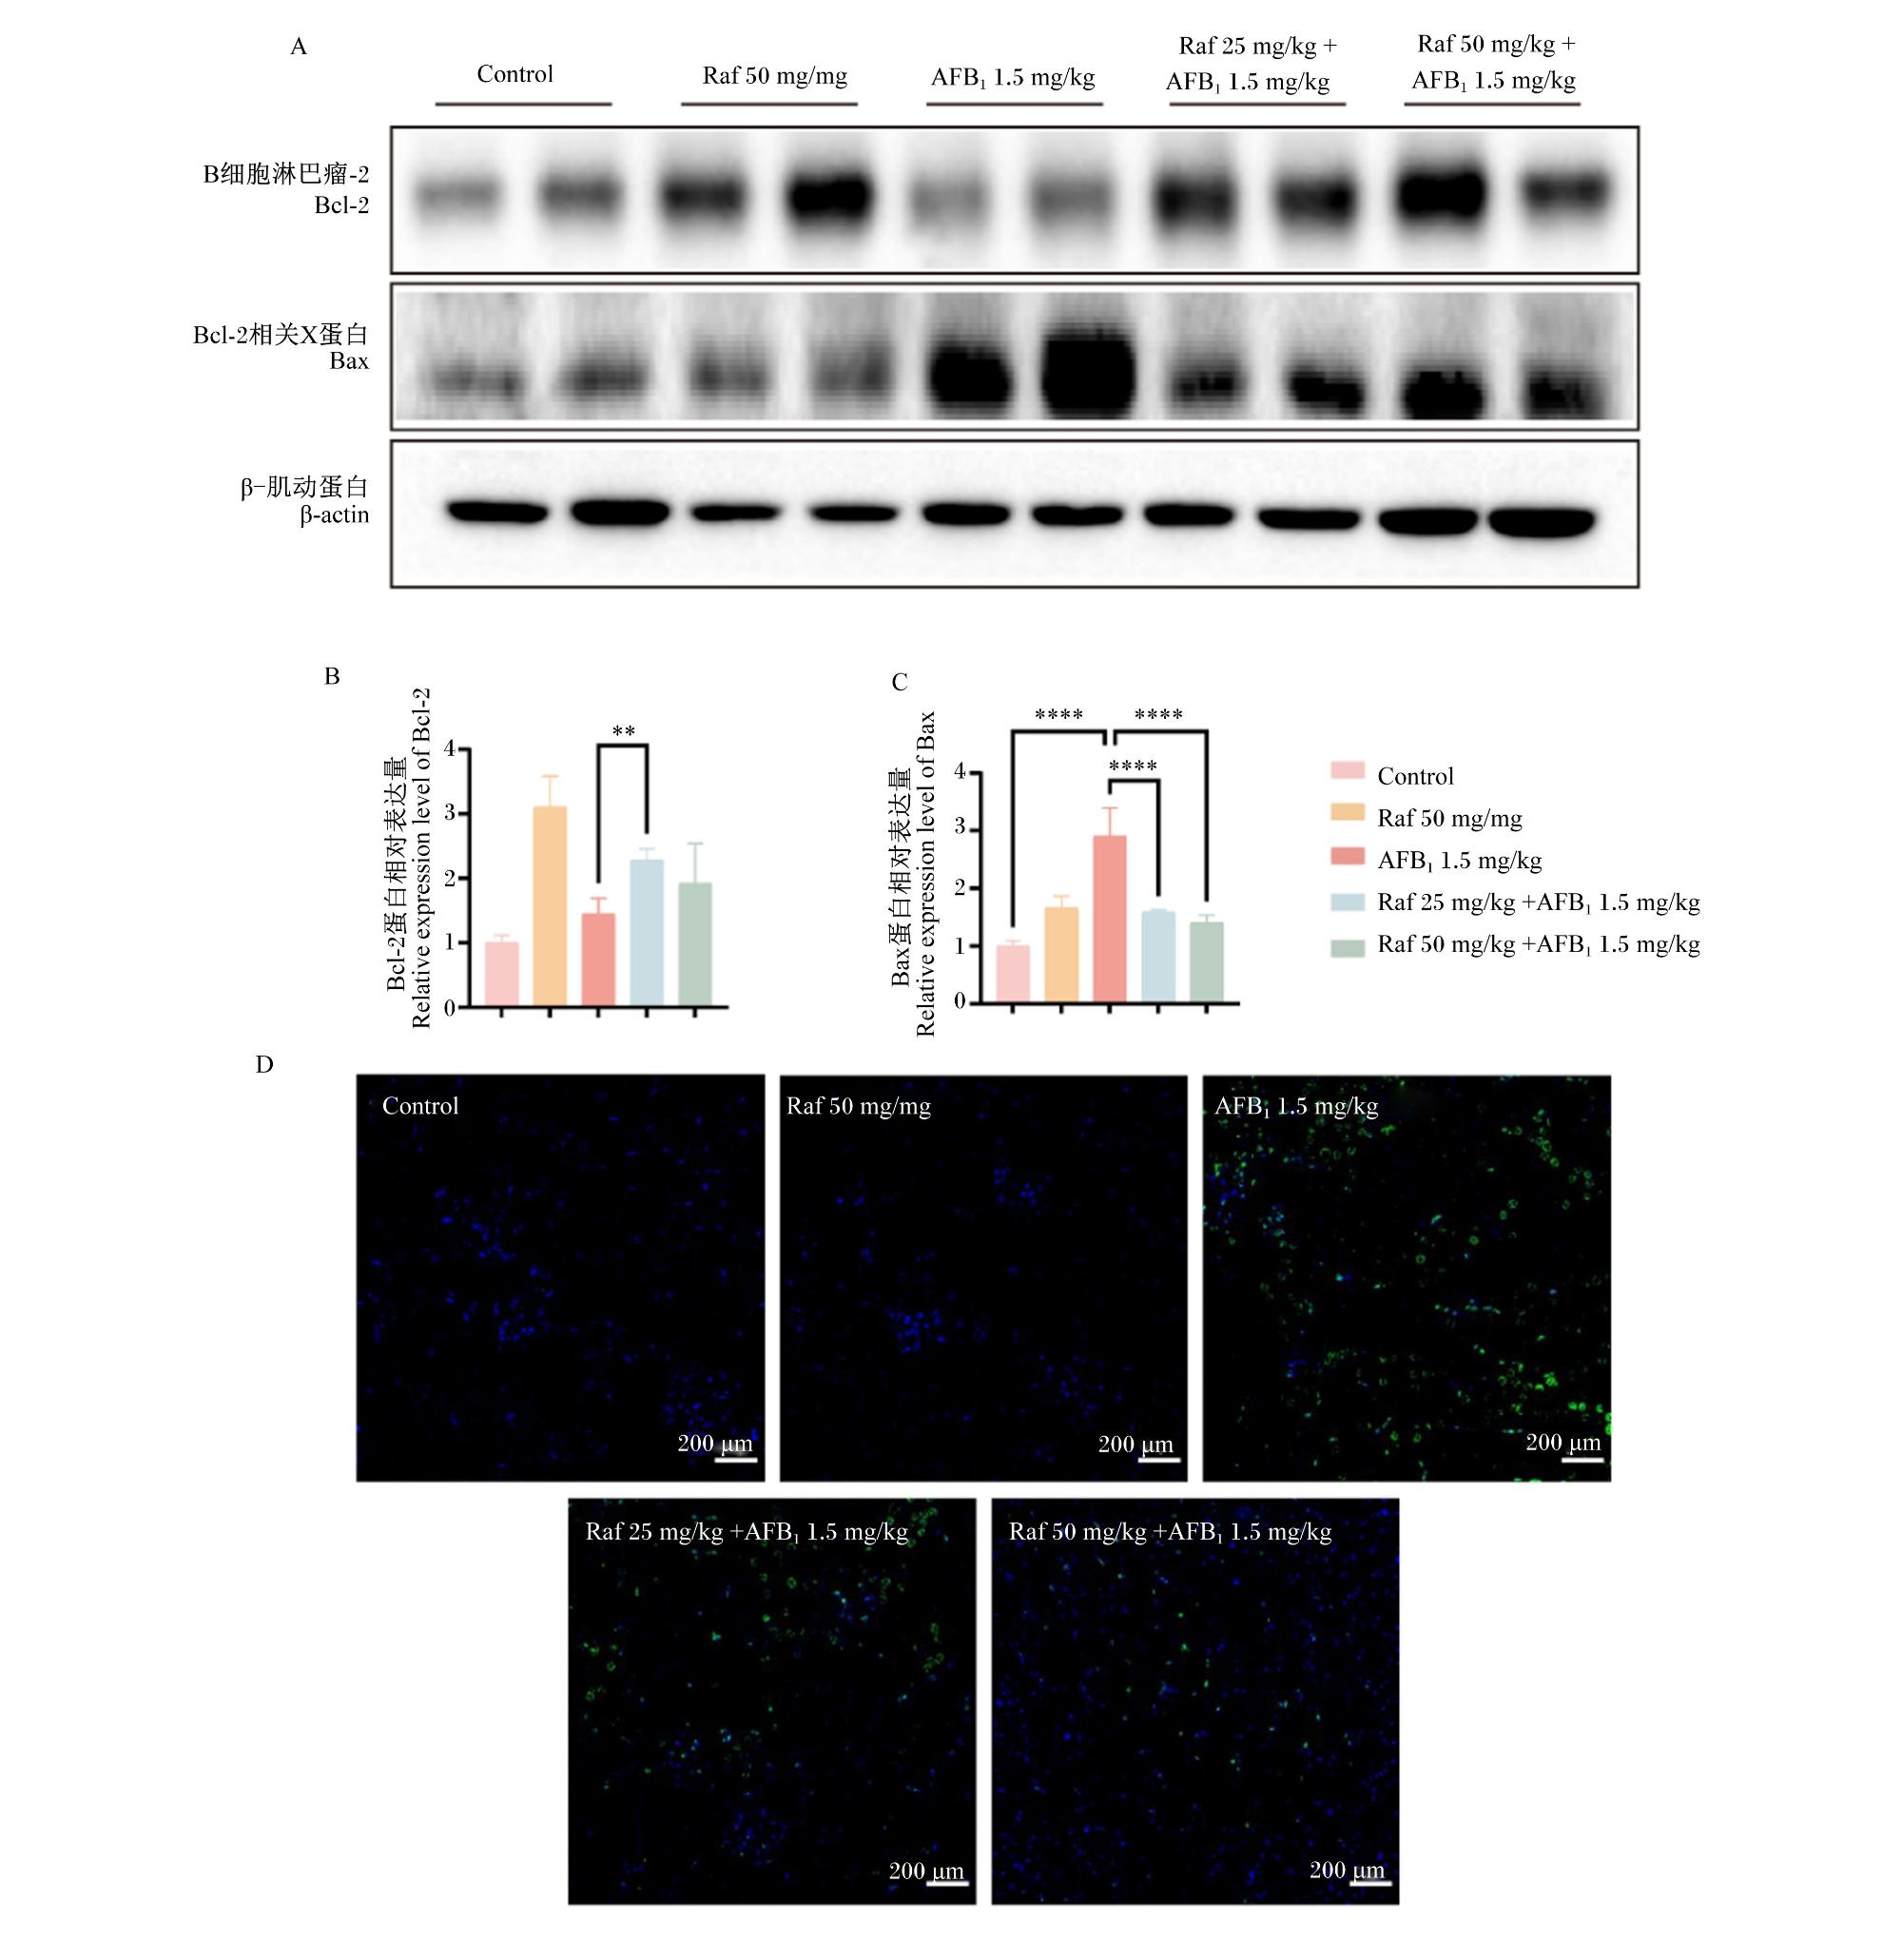
图3-A图3-C所示,与Control组相比,AFB1组小鼠肾脏组织中Bcl-2蛋白相对表达量有所升高但差异无统计学意义(P>0.05),Bax蛋白相对表达量则显著升高(P<0.000 1);与AFB1组相比,小鼠肾脏组织中Bcl-2蛋白相对表达量在低剂量Raf干预组显著升高(P<0.01),在高剂量Raf干预组略有升高但差异无统计学意义(P>0.05),Bax蛋白相对表达量在低、高剂量Raf干预组均显著降低(P<0.000 1),且以高剂量Raf干预组降低效果更明显。如图3-D所示,与Control组相比,AFB1组小鼠肾脏组织中TUNEL阳性细胞(即凋亡细胞,在荧光图显示绿色荧光)数量增加;经Raf干预后,TUNEL阳性细胞数量降低。
图3 各组小鼠肾脏组织中凋亡相关蛋白相对表达量及TUNEL阳性细胞数量

Fig.3 Relative expression levels of apoptosis-related proteins and TUNEL-positive cell count in kidney tissue of mice in each group (n=6)

2.4 Raf改善AFB1诱导的小鼠肾脏组织中铁死亡相关蛋白表达和血清中Fe2+浓度变化

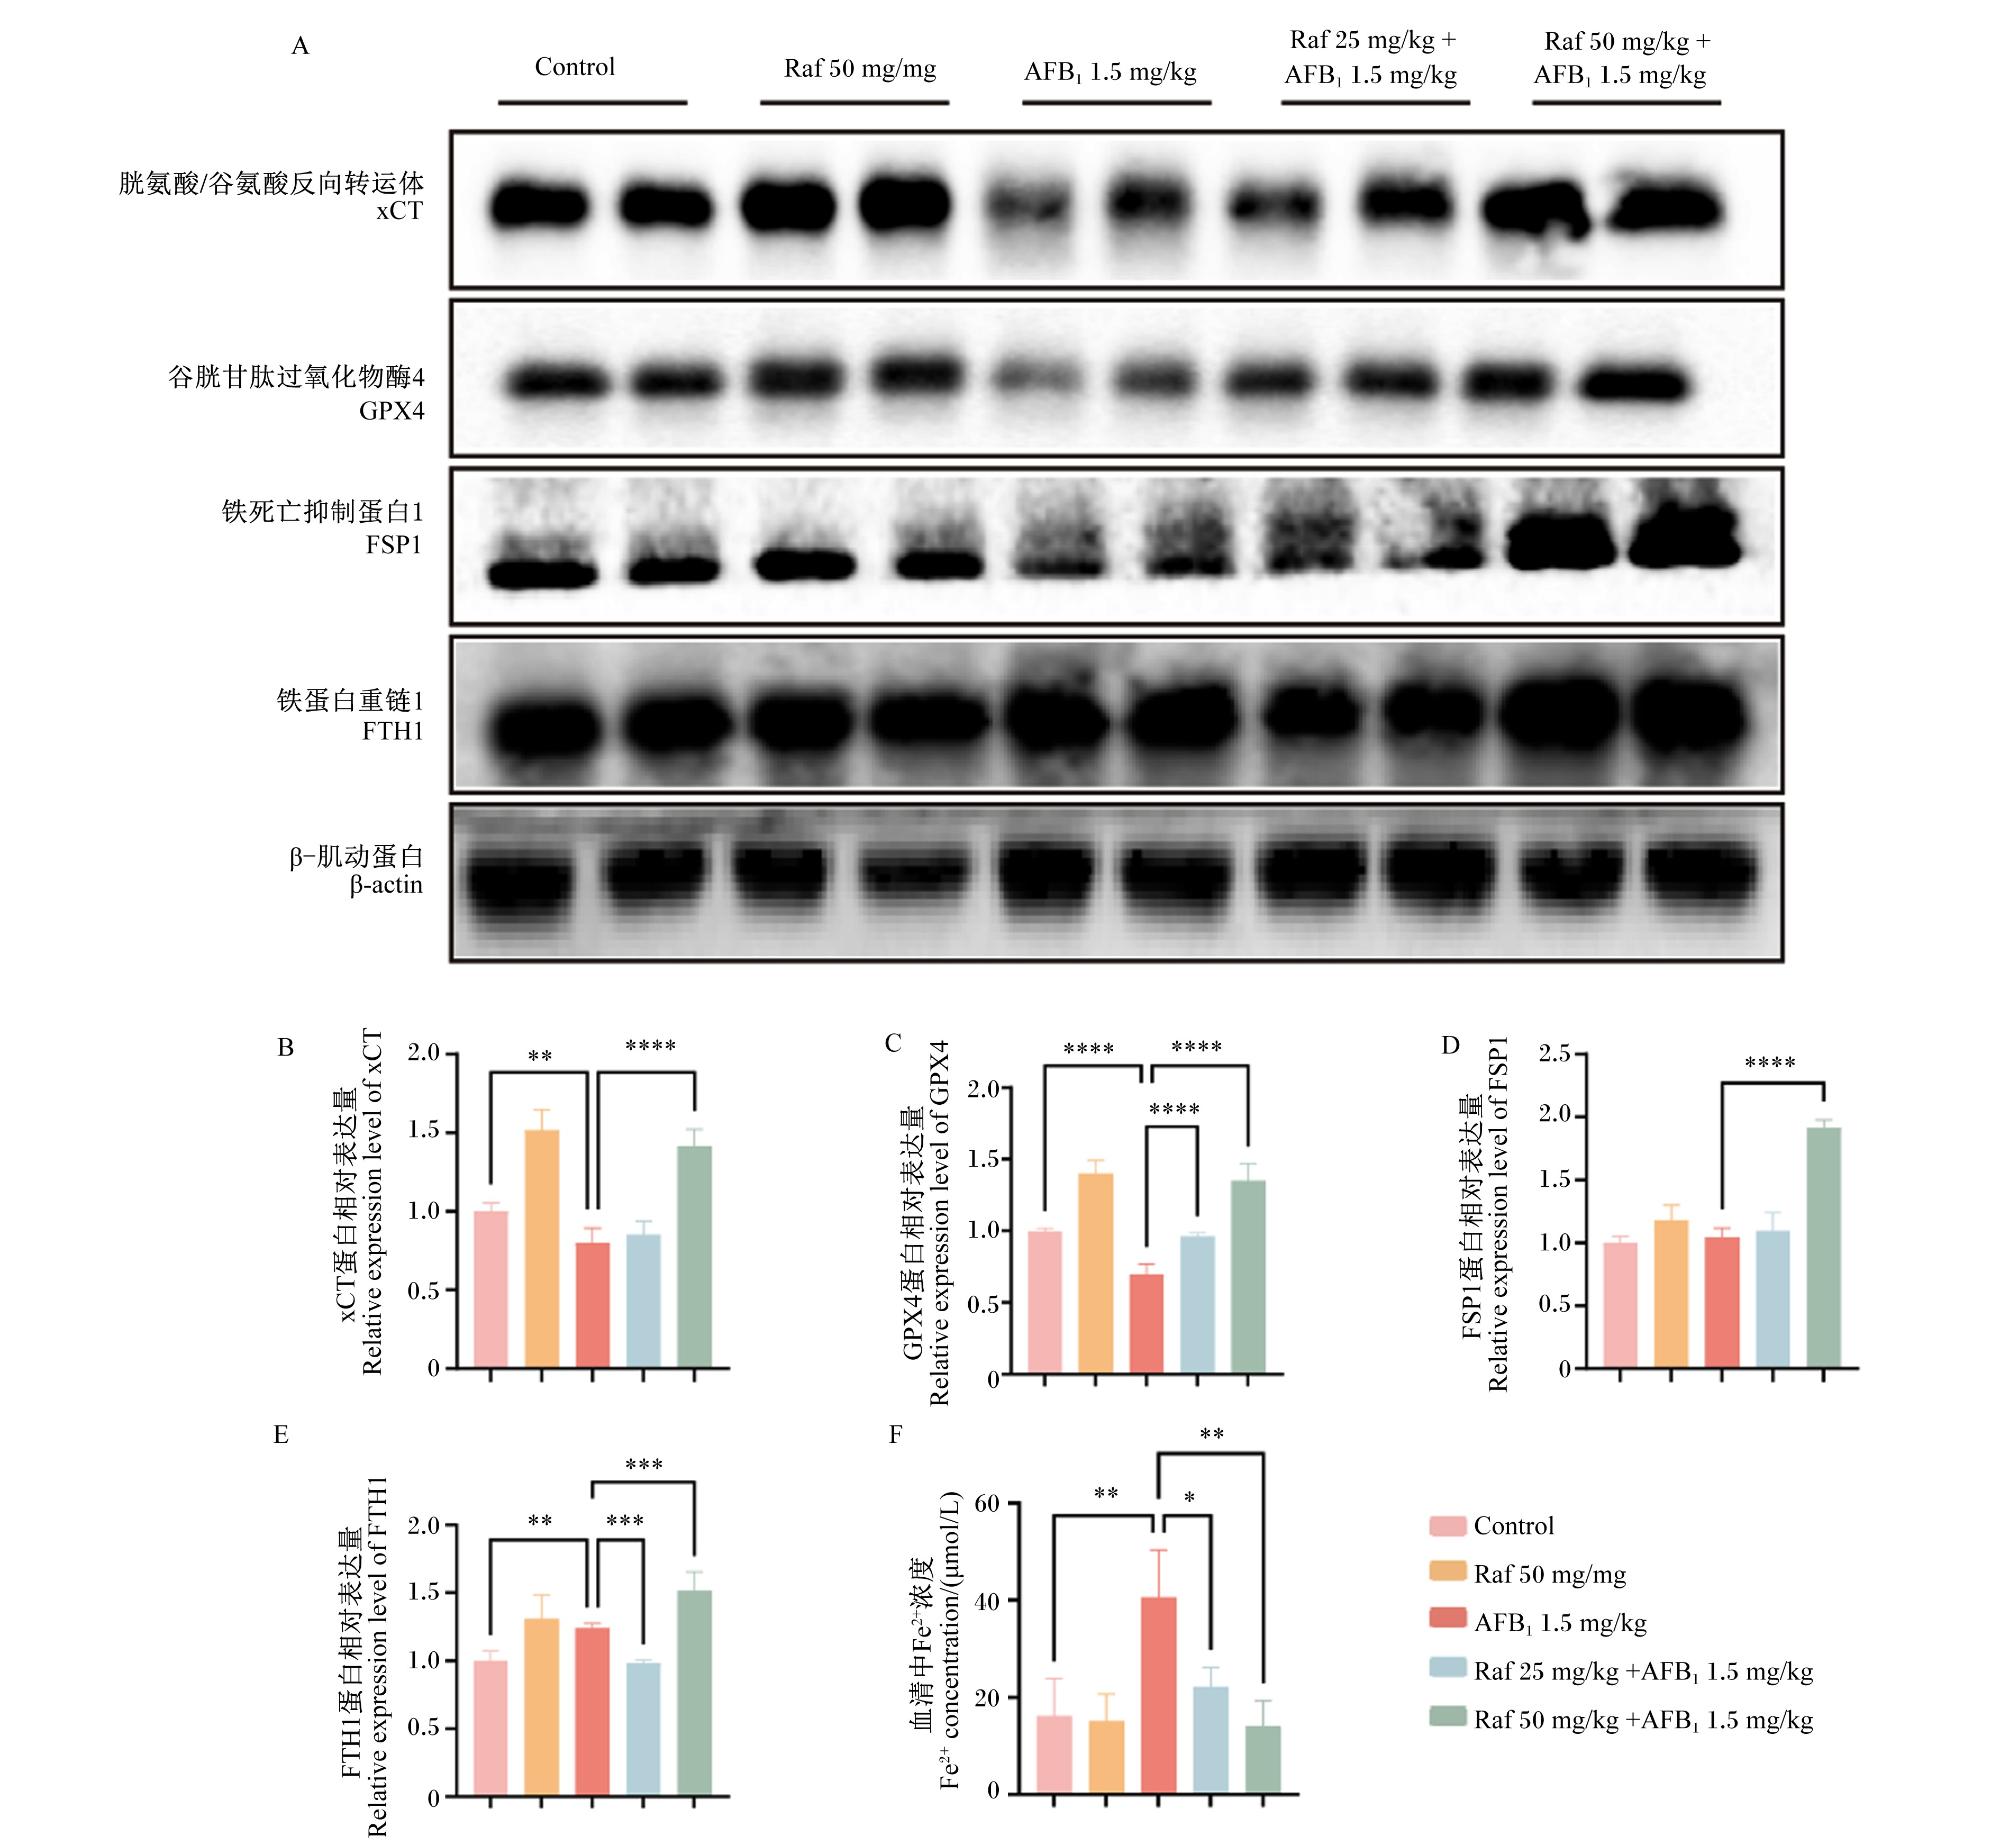
图4所示,与Control组相比,AFB1组小鼠肾脏组织中xCT、GPX4蛋白相对表达量显著降低(P<0.01或P<0.000 1),血清中Fe2+浓度显著升高(P<0.01);与AFB1组相比,低、高剂量Raf干预组小鼠血清中Fe2+浓度显著降低(P<0.05或P<0.01),并以高剂量Raf干预组降低更多,且高剂量Raf组肾脏组织中xCT、GPX4、FSP1、FTH1蛋白相对表达量均显著升高(P<0.001或P<0.000 1)。
图4 各组小鼠肾脏组织中铁死亡相关蛋白相对表达量及血清中Fe2+浓度

Fig.4 Relative expression levels of ferroptosis-related proteins in kidney tissue and serum Fe2+ concentration of mice in each group (n=6)

2.5 Raf改善AFB1诱导的小鼠肾脏组织中氧化应激相关蛋白表达变化

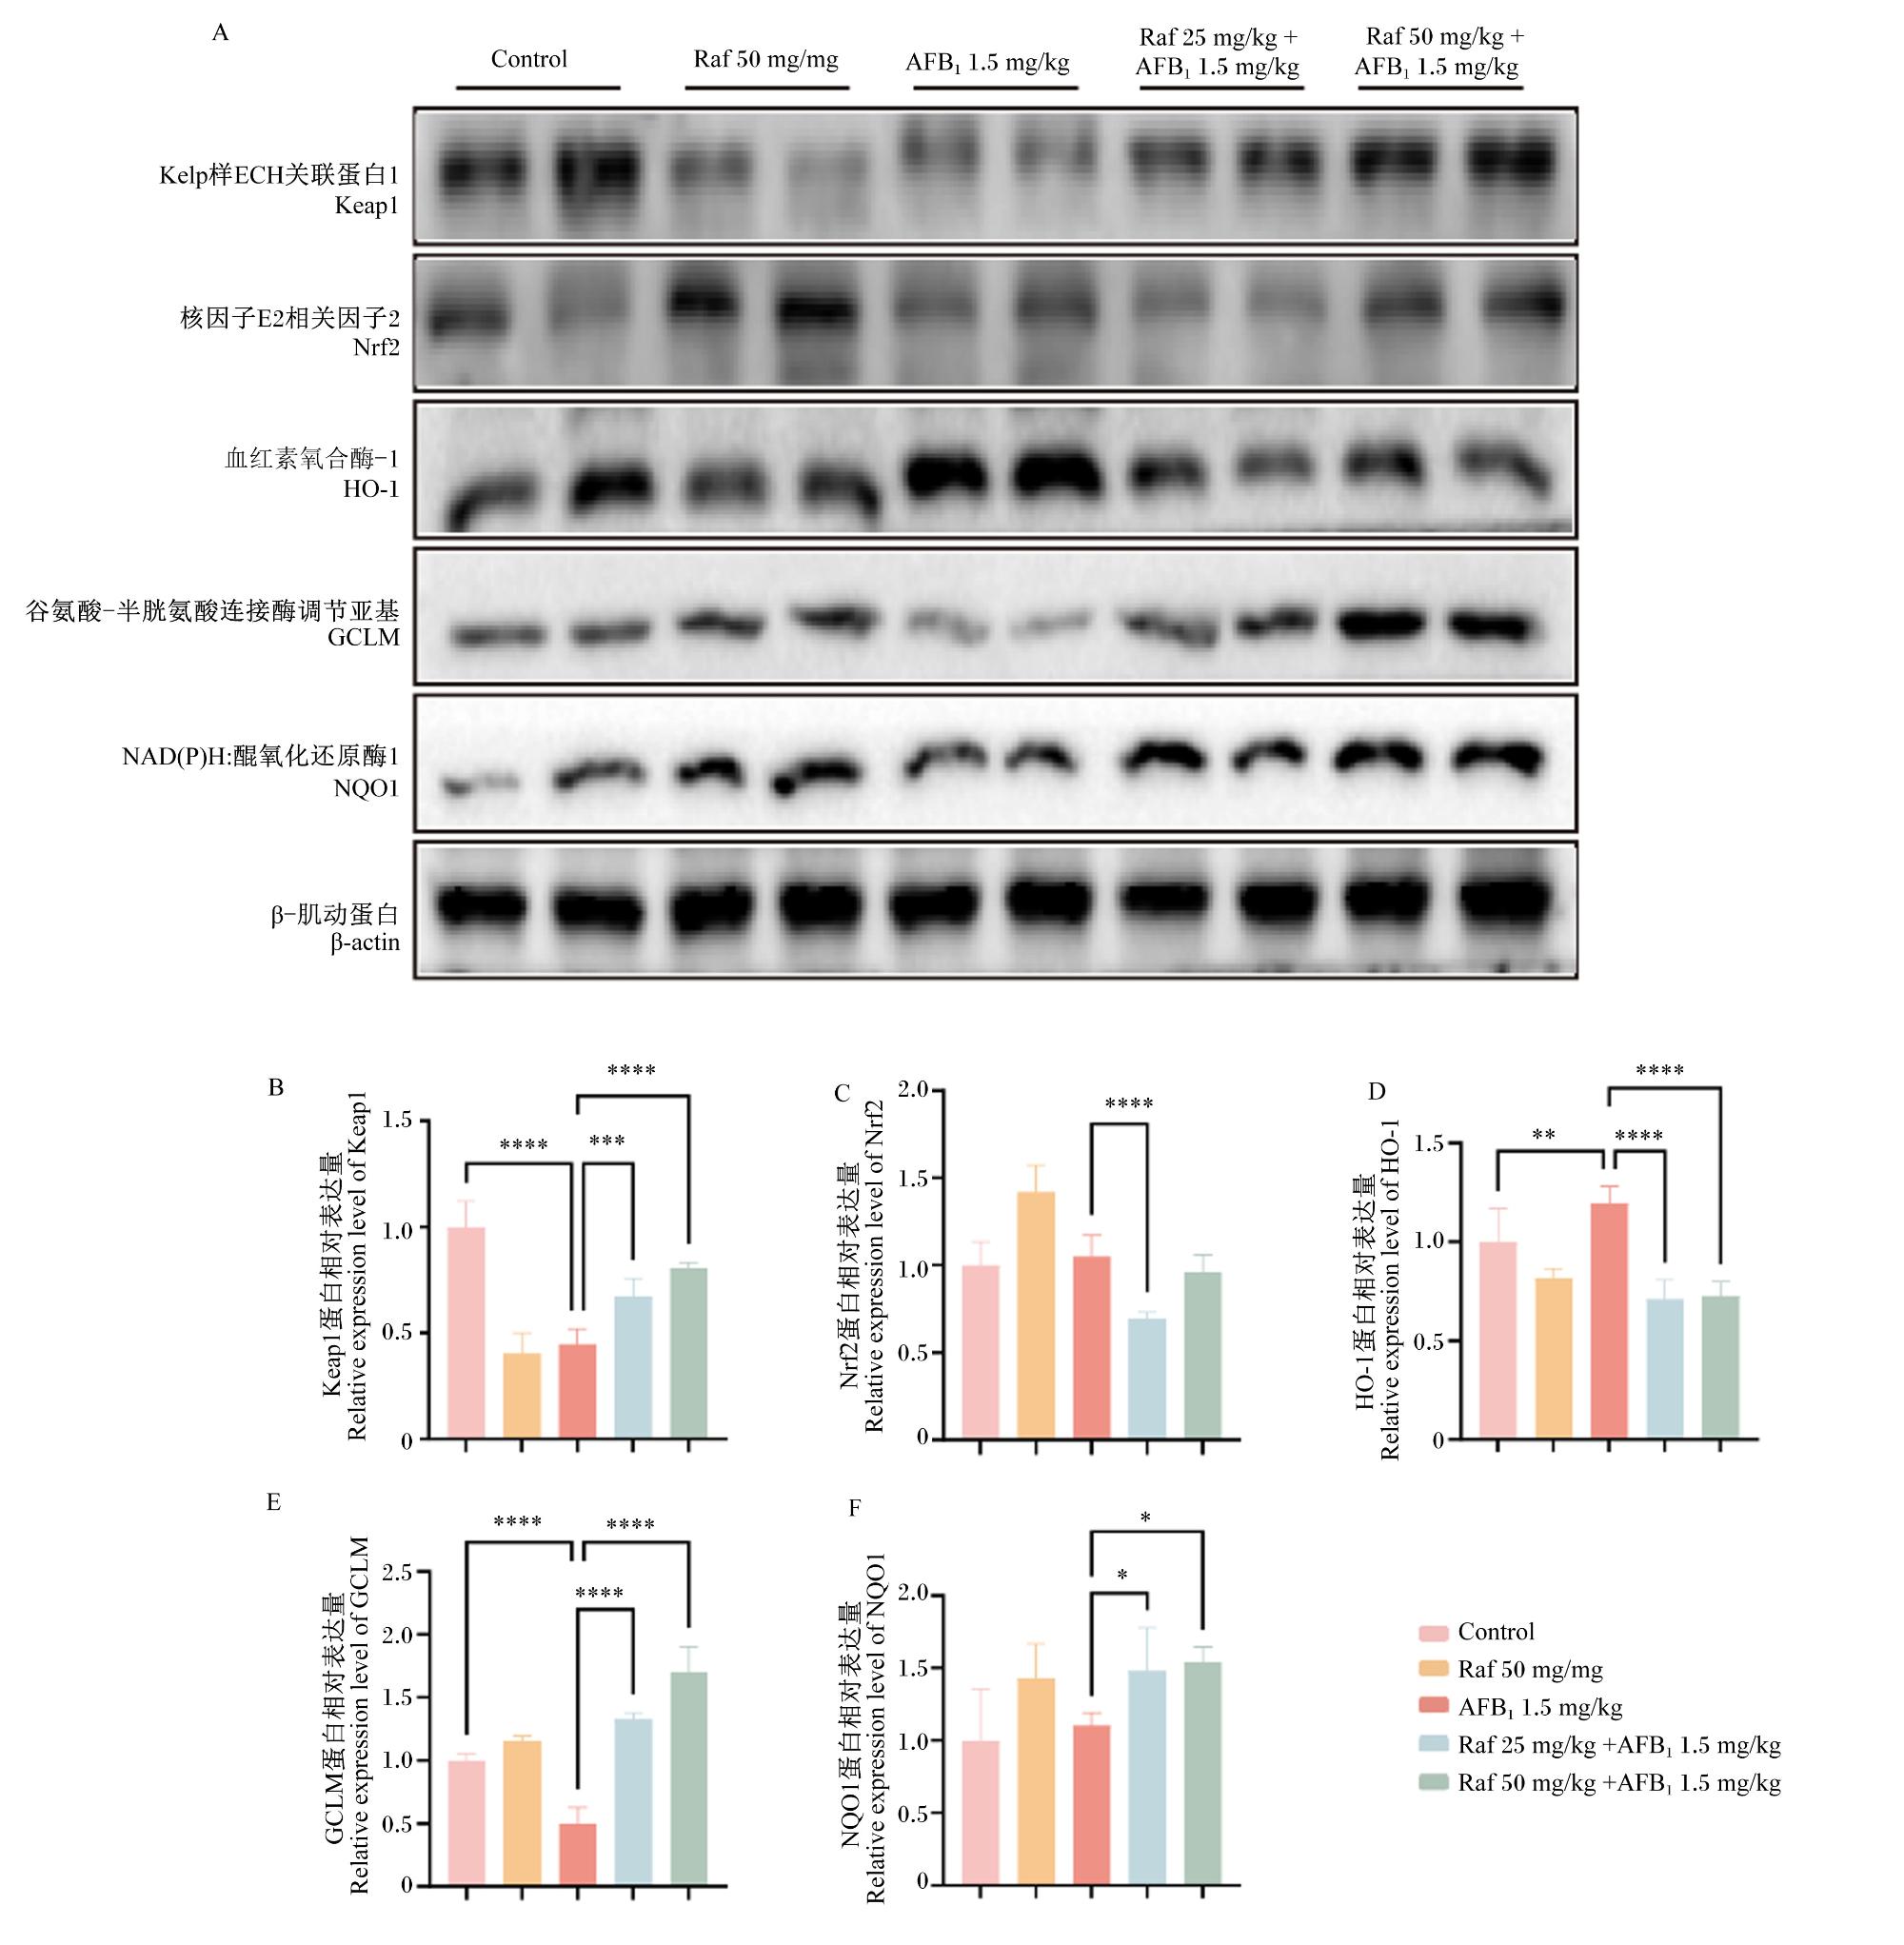
图5所示,与Control组相比,AFB1组小鼠肾脏组织中Keap1、GCLM蛋白相对表达量显著降低(P<0.000 1),HO-1蛋白相对表达量则显著上升(P<0.01),Nrf2、NQO1蛋白相对表达量略有升高但差异无统计学意义(P>0.05);与AFB1组相比,低、高剂量Raf干预组Keap1、GCLM蛋白相对表达均显著升高(P<0.001或P<0.000 1),且均以高剂量Raf干预组升高的更多;此外,在低剂量Raf干预后Nrf2蛋白相对表达量显著降低(P<0.000 1),低、高剂量Raf干预后HO-1蛋白相对表达量均显著降低(P<0.000 1)。
图5 各组小鼠肾脏组织中氧化应激相关蛋白相对表达量

Fig.5 Relative expression levels of oxidative stress-related proteins in kidney tissues of mice in each group (n=6)

3 讨论

AFB1是一类广泛存在的环境污染物,常对水稻、玉米、花生等多种农作物造成污染[21]。这类污染物易在农作物生长、收获、加工等关键环节侵入并蓄积,随后通过食物链逐级传递,进一步污染肉、蛋、奶等动物性食品,最终对食品安全构成严重威胁[22]。为保障畜牧养殖过程中动物健康安全,减少AFB1对畜牧产业造成的经济损失,深入进行AFB1相关机制研究已迫在眉睫。既往研究多聚焦于AFB1的肝毒性,而肾脏作为AFB1排泄和次级代谢的关键器官,其损伤机制尚未完全阐明。本研究证实,AFB1暴露可导致小鼠血清Cre、BUN含量显著升高,肾脏组织出现炎性细胞浸润、出血、肾小管结构异常及肾小球细胞增生,提示肾脏是AFB1毒性作用的重要靶器官,这与前人的研究结果[23]一致;而Raf干预可剂量依赖性降低小鼠血清Cre、BUN含量,修复肾脏组织结构损伤,该结果明确了Raf对AFB1诱导的肾脏损伤的保护作用。
氧化应激失衡是导致肾脏损伤的关键机制之一[24],GSH作为细胞内主要的抗氧化剂,可清除ROS、减轻脂质过氧化损伤[25];而MDA是衡量脂质过氧化的指标,其含量可直接反映氧化应激损伤程度[26]。本研究结果显示,AFB1处理后小鼠血清中GSH含量下降,肾脏组织中MDA含量显著升高,ROS荧光强度明显增强,表明AFB1可打破肾脏组织氧化平衡,引发氧化应激;而Raf干预可逆转上述指标变化,提示Raf通过增强抗氧化能力、抑制脂质过氧化,改善AFB1诱导的肾脏氧化应激损伤。
细胞凋亡作为程序性细胞死亡的核心表现形式,在维持细胞稳态中具有关键作用。Bcl-2蛋白家族是调控细胞凋亡过程的核心调控分子,该家族可进一步划分为抗凋亡亚家族与促凋亡亚家族。抗凋亡蛋白(如Bcl-2)主要通过抑制线粒体凋亡通路的激活,从而阻断细胞凋亡程序的启动;而促凋亡蛋白Bax则能够增强线粒体外膜的通透性,进而推动凋亡级联反应的有序启动,最终诱导细胞凋亡的发生[27-28]。小鼠肾脏组织TUNEL染色结果显示,AFB1暴露后肾脏组织中TUNEL阳性细胞数量明显增加;Western blot结果证实,肾脏组织Bcl-2蛋白表达降低,Bax蛋白表达升高,提示AFB1可通过调控Bcl-2和Bax蛋白表达,诱导肾细胞凋亡;而Raf干预可逆转上述凋亡相关指标变化,表明Raf对AFB1诱导的肾细胞凋亡具有抑制作用。结合氧化应激结果推测,过量ROS可能损伤线粒体膜结构,进而调控Bcl-2、Bax蛋白表达,破坏线粒体稳定性,最终引发凋亡,而Raf通过改善氧化应激,稳定线粒体功能,抑制凋亡通路激活。
铁死亡是铁依赖的非凋亡性细胞死亡模式,以脂质过氧化为核心特征,在肾脏损伤中扮演重要角色[29]。xCT作为GSH合成的关键分子,其表达下调会加剧GSH缺乏;GPX4是铁死亡的核心抑制因子,其表达下调会导致脂质过氧化产物蓄积;FSP1和FTH1分别通过抑制脂质过氧化、调控铁代谢发挥抗铁死亡作用[30-32]。本研究中,AFB1处理后小鼠血清中Fe2+浓度升高,肾脏组织中xCT、GPX4蛋白相对表达量显著下调,提示AFB1可诱导肾细胞铁死亡;而Raf干预可降低小鼠血清中Fe2+浓度,上调肾脏组织中上述抗铁死亡蛋白的表达,抑制铁死亡发生。结合氧化应激结果推测,AFB1诱导的氧化应激与铁死亡形成恶性循环:ROS蓄积促进Fe2+通过芬顿(Fenton)反应生成更多ROS,同时抑制xCT/GPX4通路,加剧脂质过氧化,诱发铁死亡;而铁死亡释放的Fe2+和氧化产物进一步放大氧化应激,加重组织损伤,Raf通过打破该恶性循环,发挥保护作用[33]
转录因子Nrf2调控数百个基因的表达,这些基因参与细胞对抗氧化应激的防御。Nrf2的活性主要受其与Keap1的相互作用所调控。在正常条件下,Keap1与Nrf2结合并将其靶向至蛋白酶体降解,而Keap1则被再生;但在氧化应激下,Nrf2与Keap1的相互作用被中断,Nrf2激活保护性基因的转录并启动下游基因如HO-1、GCLMNQO1表达,增加细胞抗氧化能力[34-36]。本研究中,AFB1组小鼠肾脏组织中Keap1、GCLM蛋白的表达下调,HO-1蛋白的表达上调,提示AFB1诱导的氧化应激激活Nrf2通路;而Raf干预可剂量依赖性逆转上述蛋白表达异常,表明Raf可增强机体抗氧化防御能力,进而抑制凋亡与铁死亡,减轻AFB1诱导的肾脏损伤。
综合本研究结果推测,在AFB1诱导的小鼠肾脏损伤中,氧化应激是串联细胞凋亡与铁死亡的核心枢纽,三者形成“上游启动-交叉放大-级联损伤”的紧密调控网络,共同介导毒性效应。AFB1暴露首先引发肾脏组织氧化应激失衡(血清中GSH含量下降,肾脏组织中MDA含量升高、ROS蓄积),这一变化成为启动后续细胞死亡程序的关键前提;ROS一方面通过损伤线粒体膜完整性,调控Bcl-2、Bax蛋白表达,启动线粒体介导的凋亡通路;另一方面与细胞内Fe2+发生Fenton反应生成羟基自由基,同时抑制xCT/GPX4抗铁死亡通路,减少GSH合成、削弱脂质过氧化物清除能力,双重驱动铁死亡激活。而凋亡与铁死亡并非孤立存在,铁死亡释放的游离Fe2+与脂质过氧化产物会进一步加重线粒体损伤,增强Bax的促凋亡活性,凋亡激活后线粒体功能障碍导致线粒体内Fe2+外排受到抑制发生蓄积,形成“凋亡→Fe2+蓄积→铁死亡增强”的恶性循环,共同加重肾脏组织病理损伤,但从指标异常特征来看,AFB1暴露后肾脏组织铁死亡关键指标(抗铁死亡蛋白xCT、GPX4的表达显著下调)呈现全面且稳定的异常,而凋亡蛋白Bax的表达显著上调、TUNEL阳性细胞数量增加,抗凋亡蛋白Bcl-2的表达则无显著变化,高剂量Raf干预后Bcl-2蛋白的表达也未达到统计学上的显著差异,提示凋亡通路激活相对不完全,因此在其中铁死亡通路可能起主要作用。Raf的保护作用核心则是靶向氧化应激,通过激活Keap1-Nrf2通路促进GSH合成、清除过量ROS,从源头切断“ROS→线粒体损伤→凋亡”与“ROS→Fe2+蓄积→铁死亡”的启动信号,同时上调xCT、GPX4等抗铁死亡蛋白表达、降低Fe2+浓度,阻断铁死亡与凋亡的交叉互作,最终通过“抗氧化→抑制铁死亡→抑制凋亡”的递进式调控,打破三者的级联损伤循环,实现对肾脏组织的全面保护;但根据本试验中的干预效应来看,高剂量Raf可显著逆转所有铁死亡相关指标的异常,呈现清晰的剂量依赖性,而对凋亡指标的调控仅体现为下调Bax蛋白的表达,对Bcl-2蛋白表达的改善效应有限,说明Raf的保护作用更集中于铁死亡通路,但需说明的是,该结论基于现有相关性数据推导,未来需通过铁死亡、凋亡特异性抑制剂干预试验进一步验证因果关系,且二者可能存在交叉调控,协同参与损伤进程。

4 结论

① Raf可改善AFB1诱导的小鼠肾脏组织损伤。
② Raf可抑制AFB1诱导的小鼠肾脏组织氧化应激失衡。
③ Raf可调节AFB1诱导的小鼠肾脏组织铁死亡与凋亡。
[1]
HUSSEIN H S, BRASEL J M. Toxicity,metabolism,and impact of mycotoxins on humans and animals[J]. Toxicology, 2001, 167(2):101-134.

DOI

[2]
BENNETT J W, KLICH M. Mycotoxins[J]. Clinical Microbiology Reviews, 2003, 16(3):497-516.

DOI PMID

[3]
MAMO F T, ABATE B A, ZHENG Y Q, et al. Distribution of Aspergillus fungi and recent aflatoxin reports,health risks,and advances in developments of biological mitigation strategies in China[J]. Toxins, 2021, 13(10):678.

DOI

[4]
YUNUS A W, RAZZAZI-FAZELI E, BOHM J. Aflatoxin B1 in affecting broiler’s performance,immunity,and gastrointestinal tract:a review of history and contemporary issues[J]. Toxins, 2011, 3(6):566-590.

DOI

[5]
DLAMINI N Z, SOMBORO A M, AMOAKO D G, et al. Toxicogenicity and mechanistic pathways of aflatoxin B1 induced renal injury[J]. Environmental Toxicology, 2021, 36(9):1857-1872.

DOI

[6]
GE B J, YAN K X, SANG R, et al. Integrated network toxicology,molecular docking,and in vivo experiments to elucidate molecular mechanism of aflatoxin B1 hepatotoxicity[J]. Ecotoxicology and Environmental Safety, 2024,275:116278.

[7]
JIN X, LI Q H, SUN J, et al. Porcine β-defensin-2 alleviates AFB1-induced intestinal mucosal injury by inhibiting oxidative stress and apoptosis[J]. Ecotoxicology and Environmental Safety, 2023,262:115161.

[8]
LIU Y M, WANG J N, CHANG Z Y, et al. SeMet alleviates AFB1-induced oxidative stress and apoptosis in rabbit kidney by regulating Nrf2/Keap1/NQO1 and PI3K/AKT signaling pathways[J]. Ecotoxicology and Environmental Safety, 2024,269:115742.

[9]
GAO M H, JIANG X J. To eat or not to eat-the metabolic flavor of ferroptosis[J]. Current Opinion in Cell Biology, 2018,51:58-64.

[10]
LI Y, DU Y H, ZHOU Y J, et al. Iron and copper:critical executioners of ferroptosis,cuproptosis and other forms of cell death[J]. Cell Communication and Signaling, 2023, 21(1):327.

DOI

[11]
TAN W, DAI F F, YANG D Y, et al. MiR-93-5p promotes granulosa cell apoptosis and ferroptosis by the NF-κB signaling pathway in polycystic ovary syndrome[J]. Frontiers in Immunology, 2022,13:967151.

[12]
WANG Y, WANG S S, MA C C, et al. Nrf2 depletion enhanced curcumin therapy effect in gastric cancer by inducing the excessive accumulation of ROS[J]. Scientific Reports, 2024, 14(1):30165.

DOI

[13]
兰宏兵, 余述燕, 朱庆莉. 棉籽中棉子糖和棉酚综合利用研究进展[J]. 安徽化工, 2021, 47(3):1-3.

LAN H B, YU S Y, ZHU Q L. Study progress on comprehensive utilization of raffinose and gossypol in cottonseed[J]. Anhui Chemical Industry, 2021, 47(3):1-3. (in Chinese)

[14]
夏士杰, 何雨曦, 刘家和, 等. 棉子糖缓解黄曲霉毒素B1导致的乳腺上皮细胞损伤的作用机制[C]// 中国畜牧兽医学会兽医药理毒理学分会第十三次全国会员代表大会暨第十七次学术研讨会论文集. 南宁: 中国畜牧兽医学会兽医药理毒理学分会,2023:158.

XIA S J, HE Y X, LIU J H, et al. Mechanism of raffinose alleviating aflatoxin B1-induced mammary epithelial cell injury[C]// Proceedings of the 13th National Congress of Members and the 17th Academic Seminar of the Veterinary Pharmacology and Toxicology Branch of the Chinese Association of Animal Science and Veterinary Medicine. Nanning: Veterinary Pharmacology and Toxicology Branch of the Chinese Association of Animal Science and Veterinary Medicine,2023:158. (in Chinese)

[15]
张丽涵, 张杰兴, 魏翔建, 等. 棉籽糖对黄曲霉毒素B1诱导的小鼠肝脏氧化损伤的保护作用[J]. 动物营养学报, 2024, 36(12):8100-8109.

DOI

ZHANG L H, ZHANG J X, WEI X J, et al. Protective effect of raffinose on liver oxidative injury induced by aflatoxins B1 in mice[J]. Chinese Journal of Animal Nutrition, 2024, 36(12):8100-8109. (in Chinese)

DOI

[16]
KIM H S, CHA E, KIM Y, et al. Raffinose,a plant galactoside,inhibits Pseudomonas aeruginosa biofilm formation via binding to LecA and decreasing cellular cyclic diguanylate levels[J]. Scientific Reports, 2016,6:25318.

[17]
刘旭珍, 卢凯凯, 赵婉英, 等. 磷酸化棉子糖制备及其体外抗氧化性能[J/OL]. 食品工业科技, 2025:1-14(2025-11-12)[2025-12-01].https://doi.org/10.13386/j.issn1002-0306.2025070259.html.

LIU X Z, LU K K, ZHAO W Y, et al. Preparation of phosphorylated raffinose and its in vitro antioxidant properties[J/OL]. Science and Technology of Food Industry, 2025:1-14(2025-11-12)[2025-12-01].https://doi.org/10.13386/j.issn1002-0306.2025070259.html. (in Chinese)

[18]
高雅婷, 陈旭, 范潇晓, 等. 基于秀丽隐杆线虫模型的棉子糖抗衰老作用研究[J]. 药物评价研究, 2024, 47(2):339-344.

GAO Y T, CHEN X, FAN X X, et al. Study on anti-aging effect of raffinose based on model of Caenorhabditis elegans[J]. Drug Evaluation Research, 2024, 47(2):339-344. (in Chinese)

[19]
HUANG W Y, CAO Z, YAO Q C, et al. Mitochondrial damage are involved in aflatoxin B1-induced testicular damage and spermatogenesis disorder in mice[J]. Science of the Total Environment, 2020,701:135077.

[20]
LV H M, LIU J H, HE Y X, et al. The ameliorative role of Lico A on aflatoxin B1-triggered hepatotoxicity partially by activating Nrf2 signal pathway[J]. Journal of Agricultural and Food Chemistry, 2024, 72(5):2741-2755.

DOI

[21]
RUSHING B R, SELIM M I. Aflatoxin B1:a review on metabolism,toxicity,occurrence in food,occupational exposure,and detoxification methods[J]. Food and Chemical Toxicology, 2019,124:81-100.

[22]
吴丹. 黄曲霉毒素在粮食和食品中的危害及防治[J]. 粮食加工, 2007, 32(3):91-94.

WU D. Hazard of aflatoxin in oil and grain product and its prevention[J]. Grain Processing, 2007, 32(3):91-94. (in Chinese)

[23]
葛冰洁. 蒲公英甾醇对黄曲霉毒素B1致肝肾损伤的保护作用及机制研究[D]. 博士学位论文. 延吉: 延边大学, 2024.

GE B J. Study on protective effect and mechanism of taraxasterol against aflatoxin B1-induced liver and kidney damage[D]. Ph.D.Thesis. Yanji: Yanbian University, 2024. (in Chinese)

[24]
MA Y G, SU Q C, YUE C G, et al. The effect of oxidative stress-induced autophagy by cadmium exposure in kidney,liver,and bone damage,and neurotoxicity[J]. International Journal of Molecular Sciences, 2022, 23(21):13491.

DOI

[25]
JOMOVA K, ALOMAR S Y, ALWASEL S H, et al. Several lines of antioxidant defense against oxidative stress:antioxidant enzymes,nanomaterials with multiple enzyme-mimicking activities,and low-molecular-weight antioxidants[J]. Archives of Toxicology, 2024, 98(5):1323-1367.

DOI

[26]
TSIKAS D. Assessment of lipid peroxidation by measuring malondialdehyde (MDA) and relatives in biological samples:analytical and biological challenges[J]. Analytical Biochemistry, 2017,524:13-30.

[27]
ZHENG J H, VIACAVA FOLLIS A, KRIWACKI R W, et al. Discoveries and controversies in BCL-2 protein-mediated apoptosis[J]. The FEBS Journal, 2016, 283(14):2690-2700.

DOI

[28]
PALABIYIK A A. The role of Bcl-2 in controlling the transition between autophagy and apoptosis (review)[J]. Molecular Medicine Reports, 2025, 32(1):172.

[29]
DIXON S J, OLZMANN J A. The cell biology of ferroptosis[J]. Nature Reviews Molecular Cell Biology, 2024, 25(6):424-442.

DOI PMID

[30]
MARTIN-SANCHEZ D, FONTECHA-BARRIUSO M, MARTINEZ-MORENO J M, et al. Ferroptosis and kidney disease[J]. Nefrologia, 2020, 40(4):384-394.

[31]
NAKAMURA T, HIPP C, et al.SANTOS DIAS MOURÃO A, Phase separation of FSP1 promotes ferroptosis[J]. Nature, 2023, 619(7969):371-377.

DOI

[32]
FANG X X, CAI Z X, WANG H, et al. Loss of cardiac ferritin H facilitates cardiomyopathy via Slc7a11-mediated ferroptosis[J]. Circulation Research, 2020, 127(4):486-501.

DOI PMID

[33]
XING G W, MENG L H, CAO S Y, et al. PPARα alleviates iron overload-induced ferroptosis in mouse liver[J]. EMBO Reports, 2022, 23(8):e52280.

[34]
ULASOV A V, ROSENKRANZ A A, GEORGIEV G P, et al. Nrf2/Keap1/ARE signaling:towards specific regulation[J]. Life Sciences, 2022,291:120111.

[35]
LU S C. Glutathione synthesis[J]. Biochimica et Biophysica Acta, 2013, 1830(5):3143-3153.

DOI PMID

[36]
ROSS D, SIEGEL D. The diverse functionality of NQO1 and its roles in redox control[J]. Redox Biology, 2021,41:101950.

文章导航

/