

大豆皮是大豆加工制油过程中的副产品,大豆在全球的年产量约为3.59亿t,每吨大豆即可产生50~80 kg的大豆皮[1]。大豆皮因含有丰富的膳食纤维、约10%蛋白质及少量的木质素,具有潜在的饲料应用价值,但大豆皮中也含有脲酶、抗原蛋白等抗营养因子,阻碍了其在畜牧饲料业中的应用[2]。
已有的研究中,采用微生物发酵和酶水解协同作用于大豆皮,能有效降低大豆皮中抗营养因子含量,改善大豆皮的营养价值。韩丽等[3]用蛋白酶和菌制剂组合在不同的工艺条件下对大豆皮进行厌氧发酵,改善了大豆皮的品质、适口性,降低了抗营养因子含量,减少了霉变的概率。本实验室前期对大豆皮发酵的菌株、水解的酶进行了筛选,发现植物乳杆菌LY19(Lactobacillus plantarum LY19)、纳豆芽孢杆菌ND1(Bacillus natto ND1)和酿酒酵母NJ(Saccharomyces cerevisiae NJ)与2种酶(纤维酶和木聚糖酶)复合处理能较大程度地改善大豆皮的营养价值[4]。但是,在此过程中,我们没有对影响发酵酶解的条件如发酵酶解的温度、原料与水的比例(料水比)、发酵时间以及2种酶的复合比例进行探究[5]。因此,本试验拟采用正交试验设计,以植物乳杆菌LY19、纳豆芽孢杆菌ND1和酿酒酵母NJ混合作为发酵剂,纤维素酶和木聚糖酶作为复合酶制剂,对发酵温度、料水比、发酵时间以及酶的添加比例在3个水平上进行条件优化,检测其主要营养成分含量,评价发酵酶解的效果;然后体外模拟猪胃、小肠和结肠对发酵酶解大豆皮进行消化、发酵,为大豆皮的实际应用提供理论支撑。
1 材料与方法
1.1 试验材料
将大豆皮和麸皮(均购自重庆市某饲料公司)均粉碎至40目用于试验,尿素购自上海某生物科技有限公司。
纳豆芽孢杆菌ND1[600 nm波长处的吸光度值(OD600值)为0.41]和酿酒酵母NJ(OD600值为1.11)由南京某生物科技有限公司提供,植物乳杆菌LY19(OD600值为0.91)为本实验室保存,保存于-20 ℃冰箱中,活化后3株菌的活菌数均为108 CFU/mL。
纤维素酶(生物技术级,酶活性为400 U/mg)和木聚糖酶(生物技术级,酶活性为6 000 U/mg)均购于上海某生物科技有限公司。
1.2 试验方法
1.2.1 胃和小肠缓冲液、结肠食糜接种液以及厌氧发酵培养液的制备
参考Jha等[6]的方法配制胃和小肠缓冲液。胃缓冲液的制备:分别称取氯化钠(NaCl)2.59 g、氯化钾(KCl)0.25 g、磷酸二氢钠(NaH2PO4)6 g、山梨酸钾1 g,加入1 800 mL去离子水,再用提前配制好的2 mol/L的盐酸(HCl)溶液将pH调至2.0(环境温度保持在41 ℃),最后定容至2 L。小肠缓冲液的制备:分别称取磷酸氢二钠(Na2HPO4)7.99 g、NaH2PO4 5.84 g、山梨酸钾1.265 g,加入1 800 mL去离子水,再用提前配制好的1 mol/L的氢氧化钠(NaOH)溶液将pH调至7.15(环境温度保持在39 ℃),最后定容至2 L。
结肠食糜接种液的制备:取3头健康“杜×长×大”育肥猪的新鲜结肠食糜,严格厌氧条件下取50 g用50 mL 0.1 mol/L的磷酸盐缓冲液(pH=7.2)稀释10倍,用3层纱布过滤,放入发酵瓶中封口,放在39 ℃水浴锅中保温备用。
厌氧发酵培养液的制备:根据Menke等[7]的方法制备,配好的培养液分装至85 mL发酵瓶中,每个发酵瓶中加入1 mL还原剂、1 mL维他命磷酸盐溶液,将发酵瓶封口备用。
1.2.2 大豆皮的发酵酶解
本试验以大豆皮为原料,使用3株单菌株(植物乳杆菌LY19、纳豆芽孢杆菌ND1和酿酒酵母NJ)组成的复合菌和2种酶(纤维素酶和木聚糖酶)作为发酵酶解剂,分别以麸皮和尿素为碳源和氮源,发酵酶解大豆皮。
1.2.3 正交试验
对影响发酵酶解大豆皮的4个因素发酵温度、料水比、发酵时间和酶的添加比例在3个水平上进行筛选,共设计9个组(表1 )。试验流程如下:每组称取200 g大豆皮,然后加入20 g麸皮(碳源)和2 g尿素(氮源),根据分组添加不同水量混匀,置于发酵袋中于121 ℃灭菌15 min后备用;将3株菌按大豆皮原料重量的1%(体积质量比)比例分别接种至大豆皮中,再按照不同分组添加纤维素酶和木聚糖酶,2种酶依据大豆皮原料重量分别按100和150 U/g、100和200 U/g以及100和250 U/g混匀添加,并分别于33、35和37 ℃条件下发酵5、6和7 d;每组设置3个重复,发酵结束后检测菌株的生长发酵特性,并分析大豆皮的营养成分和抗营养因子含量。
表1 正交试验设计Table 1 Orthogonal test design |
| 项目 Items | 水平Levels | ||
|---|---|---|---|
| 1 | 2 | 3 | |
| 发酵温度Fermentation temperature (A)/℃ | 33 | 35 | 37 |
| 料水比Material to water ratio (B) | 1.0∶1.9 | 1.0∶2.0 | 1.0∶2.1 |
| 发酵时间Fermentation time (C)/d | 5 | 6 | 7 |
| 纤维素酶与木聚糖酶比例Ratio of cellulase to xylanase (D) | 1.0∶1.5 | 1.0∶2.0 | 1.0∶2.5 |
1.2.4 体外模拟消化
体外模拟消化试验设2组,分别为未处理的大豆皮组(对照组)和菌酶处理的大豆皮组(发酵酶解组),每组4个重复。分别称取4 g左右未处理和发酵酶解处理的大豆皮样品于500 mL三角瓶中,加入配制好的胃缓冲液280 mL、氯霉素2 mL和胃蛋白酶8 mL,置于39 ℃摇床中以50 r/min振荡培养,4 h后取出每个样品的2个重复进行过滤,之后将样品放入65 ℃烘箱中烘干72 h,回潮>48 h,再进行第2次烘干24 h,回潮>24 h,待冷却后称重并记录,再将样品粉碎,装袋备用。
将4 h胃酶解后的样品继续进行模拟小肠消化,在样品中加入配制好的小肠缓冲液100 mL、胰液素8 mL,调整pH至6.5~7.0,16 h后取出过滤,然后用乙醇和丙酮冲洗,再烘至绝干,随后将样品粉碎,装袋备用。
1.2.5 结肠食糜的体外发酵
称取200 mg胃蛋白酶-胰液素处理过的大豆皮残渣于发酵瓶(125 mL)中,注入20 mL培养基,通入二氧化碳(CO2)约15 s,立即密封发酵瓶;高压灭菌锅121 ℃灭菌15 min后,取出发酵瓶放入39 ℃恒温水浴锅中,再将准备好的食糜接种液10 mL注入到发酵瓶里,轻轻摇晃均匀,将所有发酵瓶置于39 ℃、50 r/min的恒温振荡器中,连续发酵48 h,在发酵的0、2、5、8、12、18、24、36和48 h对产气量进行测量;在发酵结束时,测量发酵液pH,用冻存管将发酵液置于-20 ℃冰箱中保存,以备后续试验测定。
1.3 测定指标及方法
1.3.1 大豆皮化学成分测定
将大豆皮于(105±2) ℃烘干至恒重,使用纤维分析仪对其粗纤维、中性洗涤纤维和酸性洗涤纤维含量进行测定;使用凯氏定氮法对其粗蛋白质含量进行测定;采用脲酶活性检测试剂盒(A2020-2-1)及可见光光度法对其脲酶活性进行测定;采用蛋白酶联免疫吸附试验(ELISA)试剂盒对其大豆球蛋白(ANG-E55247P)和β-伴大豆球蛋白(ANG-E55248P)含量进行测定。试剂盒均购自南京宏哲生物科技有限公司。
1.3.2 还原糖和短链脂肪酸含量测定
采用二硝基水杨酸(DNS)法测定发酵液中还原糖的含量,采用岛津气相色谱仪测定发酵液中短链脂肪酸的含量。
1.3.3 干物质和粗蛋白质体外消化率计算
干物质体外消化率=100×(饲料干物质含量-残渣干物质含量)/饲料干物质含量;
粗蛋白质体外消化率=100×(饲料粗蛋白质含量-残渣粗蛋白质含量)/饲料粗蛋白质含量。
1.3.4 体外模拟猪结肠微生物群落测定
微生物测序及其群落分析:发酵液中微生物总DNA采用苯酚-氯仿抽提法提取,DNA样本浓度使用NanoDrop 2000微量核酸蛋白测定仪(美国)检测。采用高通量测序对发酵液中微生物群落结构及多样性进行分析,采用引物341F(5'-AGAGTTTGATCCTGGCTCAG-3')和806R(5'-TTACCGCGGCTGCTGGCAC-3')对16S rRNA基因V3~V4可变区进行扩增,并于Illumina HiSeq 2500(上海凌恩生物科技有限公司)平台完成测序。
1.4 数据统计分析
数据先采用Excel 2019处理,再用SPSS 28.0统计软件进行单因素方差分析和t检验,并采用Tukey’s-b法进行显著性检验,P<0.05表示差异显著,结果以“平均值±标准差”表示;采用GraphPad Prism 9.0制图,微生物群落数据采用联川生物云平台进行作图处理。
2 结果与分析
2.1 正交试验优化大豆皮发酵酶解条件
由表2 可知,当发酵酶解条件为A1B3C2D3时,大豆皮粗纤维降解效果最好(粗纤维含量最低);当发酵酶解条件为A2B3C2D2时,大豆皮大豆球蛋白降解效果最好(大豆球蛋白降解率最高);综合考虑,当发酵酶解条件为A1B3C2D3时,即发酵温度为33 ℃、料水比为1.0∶2.1、发酵时间为6 d以及纤维素酶与木聚糖酶比例为1.0∶2.5为最优的发酵酶解条件。
表2 正交试验结果Table 2 Orthogonal test results |
| 序号 Number | 发酵温度 Fermentation temperature (A) | 料水比 Material to water ratio (B) | 发酵时间 Fermentation time (C) | 纤维素酶与 木聚糖酶比例 Ratio of cellulase to xylanase (D) | 粗纤维 CF/% | 大豆球蛋白 降解率 Soy globulin degradation rate/% | |
|---|---|---|---|---|---|---|---|
| 1 | 1(33 ℃) | 2(1.0∶2.0) | 3(7 d) | 3(1.0∶2.5) | 20.32 | 7.75 | |
| 2 | 1 | 1(1.0∶1.9) | 1(5 d) | 1(1.0∶1.5) | 20.33 | 11.88 | |
| 3 | 1 | 3(1.0∶2.1) | 2(6 d) | 2(1.0∶2.0) | 18.16 | 28.97 | |
| 4 | 2(35 ℃) | 3 | 1 | 3 | 21.10 | 20.37 | |
| 5 | 2 | 1 | 3 | 2 | 24.12 | 24.37 | |
| 6 | 2 | 2 | 2 | 1 | 20.18 | 23.67 | |
| 7 | 3(37 ℃) | 1 | 2 | 3 | 23.20 | 20.35 | |
| 8 | 3 | 3 | 3 | 1 | 24.78 | 17.89 | |
| 9 | 3 | 2 | 1 | 2 | 24.92 | 22.86 | |
| 粗纤维 CF/% | K1 | 19.60 | 22.55 | 22.12 | 21.76 | ||
| K2 | 21.80 | 21.81 | 20.51 | 22.40 | |||
| K3 | 24.30 | 21.35 | 23.07 | 21.54 | |||
| 极差R | 4.70 | 1.20 | 2.56 | 0.86 | |||
| 大豆球蛋白降解率 Soy globulin degradation rate/% | K1 | 16.20 | 18.87 | 18.37 | 17.81 | ||
| K2 | 22.80 | 18.09 | 24.33 | 25.40 | |||
| K3 | 20.37 | 22.41 | 16.67 | 16.16 | |||
| 极差R | 6.60 | 4.32 | 7.66 | 9.24 | |||
2.2 发酵酶解对大豆皮主要营养成分和抗营养因子含量的影响
由表3 可知,与对照组相比,发酵酶解组粗蛋白质和还原糖含量显著提高(P<0.05),而粗纤维、中性洗涤纤维和酸性洗涤纤维含量显著降低(P<0.05);发酵酶解组pH显著降低(P<0.05),且乳酸含量显著提高(P<0.05);发酵酶解组脲酶活性显著降低(P<0.05),大豆球蛋白和β-伴大豆球蛋白含量也显著降低(P<0.05)。
表3 发酵酶解对大豆皮主要营养成分和抗营养因子含量的影响Table 3 Effects of fermentation and enzymatic hydrolysis on contents of main nutrients and anti-nutrition factors in soybean hull |
| 项目 Items | 对照组 Control group | 发酵酶解组 Fermentation and enzymatic hydrolysis group | P值 P-value |
|---|---|---|---|
| 粗蛋白质CP/% | 10.37±0.36 | 12.07±0.66 | 0.031 |
| 粗纤维CF/% | 40.53±2.75 | 31.18±3.81 | 0.008 |
| 酸性洗涤纤维素ADF/% | 42.30±0.35 | 38.87±0.15 | 0.027 |
| 中性洗涤纤维素NDF/% | 60.71±1.02 | 52.08±0.27 | 0.026 |
| pH | 5.36±0.23 | 4.71±0.33 | 0.046 |
| 乳酸Lactic acid/(mmol/kg) | 0.27±0.53 | 76.94±4.60 | <0.001 |
| 还原糖Reducing sugar/(mg/g) | 2.03±0.26 | 12.66±0.77 | 0.001 |
| 脲酶活性Urease activity/(U/g) | 0.81±0.12 | 0.02±0.02 | 0.003 |
| 大豆球蛋白Glycinin/(mg/g) | 24.20±2.18 | 20.23±1.46 | 0.048 |
| β-伴大豆球蛋白β-conglycinin/(mg/g) | 50.03±5.04 | 44.01±1.72 | 0.045 |
2.3 发酵酶解对大豆皮干物质和粗蛋白质体外消化率的影响
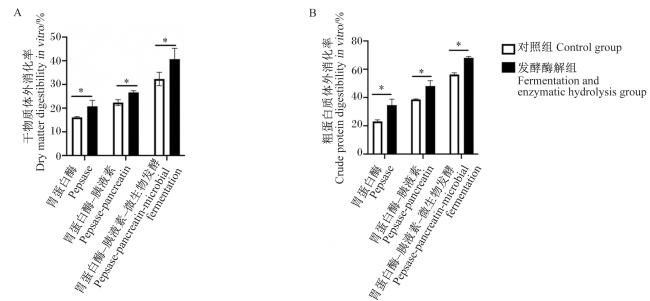
由图1 可知,在胃蛋白酶、胃蛋白酶-胰液素和胃蛋白酶-胰液素-微生物发酵的作用下,发酵酶解组大豆皮干物质和粗蛋白质体外消化率均显著高于对照组(P<0.05)。
2.4 发酵酶解对大豆皮体外发酵产生短链脂肪酸含量的影响
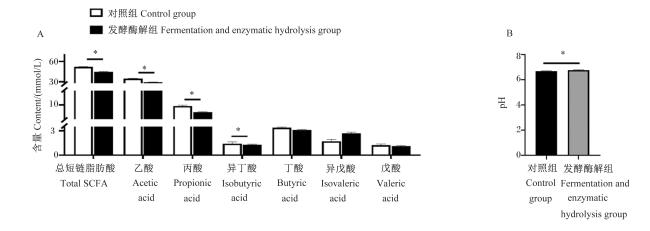
由图2 -A可知,发酵酶解组发酵液中乙酸、丙酸、异丁酸和总短链脂肪酸含量显著低于对照组(P<0.05),其中乙酸、丙酸和异丁酸含量分别达到29.34、7.38和1.27 mmol/L;由图2 -B可知,发酵酶解组发酵液pH显著高于对照组(P<0.05),由6.70提高到了6.77(P<0.05)。
2.5 发酵酶解对大豆皮体外发酵体系中微生物群落的影响
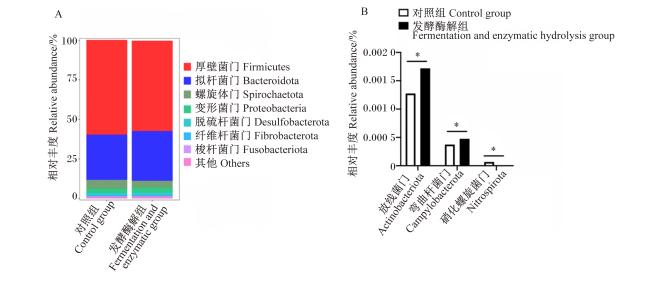
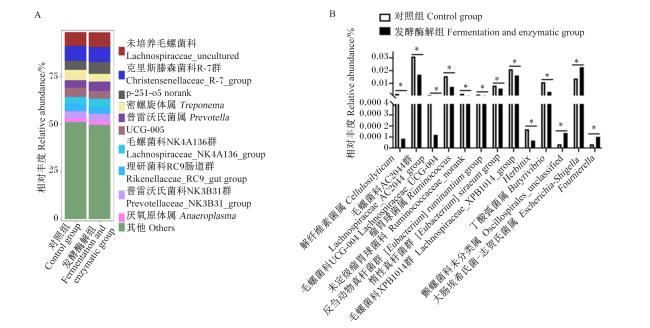
由表4 可知,发酵酶解对大豆皮体外发酵体系中微生物群落覆盖度、Shannon指数和Simpson指数均无显著影响(P>0.05),而显著提高了Chao1指数(P<0.05),并有提高ACE指数的趋势(P>0.05)。主坐标分析(PCoA)显示,2组间操作分类单元(OTU)有分开的趋势(图3 )。由图4 可知,在门水平上,厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、螺旋体门(Spirochaetota)和变形菌门(Proteobacteria)是结肠食糜微生物发酵液中主要的4种菌门,在对照组中分别占59.64%、28.02%、6.02%和2.79%,而在发酵酶解组中分别占56.49%、32.09%、4.26%和3.24%;此外,与对照组相比,发酵酶解组放线菌门(Actinobacteriota)和弯曲杆菌门(Campylobacterota)相对丰度显著降低(P<0.05),硝化螺旋菌门(Nitrospirota)相对丰度显著降低(P<0.05)。由图5 可知,在属水平上,主要检测到10种相对丰度较大的属,其中未培养毛螺菌科(Lachnospiraceae_uncultured)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)和p-251-o5 norank是3种优势菌属,且与对照组相比,发酵酶解组颤螺菌科未分类属(Oscillospirales_unclassified)、大肠埃希氏菌-志贺氏菌属(Escherichia-Shigella)和Fournierella相对丰度显著提高(P<0.05),解纤维素菌属(Cellulosilyticum)、毛螺菌科AC2044群(Lachnospiraceae_AC2044_group)、毛螺菌科UCG-004(Lachnospiraceae_UCG-004)、瘤胃球菌属(Ruminococcus)、未定级瘤胃球菌科(Ruminococcaceae_norank)、反刍动物真杆菌群([Eubacterium] ruminantium group)、惰性真杆菌群([Eubacterium] siraeum group)、毛螺菌科XPB1014群(Lachnospiraceae_XPB1014_group)、Herbinix和丁酸弧菌属(Butyrivibrio)相对丰度显著降低(P<0.05)。
表4 发酵酶解对大豆皮体外发酵体系中微生物群落α多样性的影响Table 4 Effects of fermentation and enzymatic hydrolysis on α diversity of microbial community in soybean hull in in vitro fermentation system |
| 项目 Items | 对照组 Control group | 发酵酶解组 Fermentation and enzymatic hydrolysis group | P值 P-value |
|---|---|---|---|
| 覆盖度Coverage/% | 99.34±0.05 | 99.21±0.10 | 0.296 |
| 多样性指数Diversity indices | |||
| Simpson指数Simpson index | 0.01±0.00 | 0.01±0.00 | 0.110 |
| Shannon指数Shannon index | 8.19±0.35 | 8.09±0.67 | 0.201 |
| 丰富度指数Richness indices | |||
| Chao1指数Chao1 index | 1 579.74±60.33 | 1 735.31±24.53 | 0.035 |
| ACE指数ACE index | 1 653.67±41.30 | 1 740.96±24.84 | 0.098 |
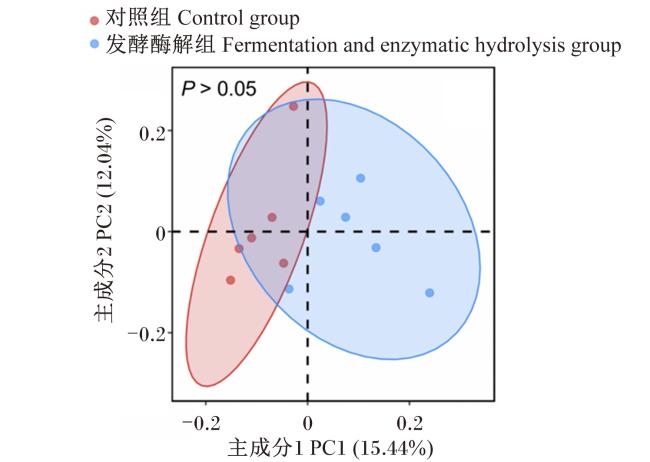
图3 大豆皮体外发酵体系中微生物群落主坐标分析Fig.3 Principal coordinate analysis of microbial community in soybean hull in in vitro fermentation system |
3 讨论
3.1 正交试验优化大豆皮发酵酶解条件
温度对于微生物的生长至关重要,温度过低,微生物不能很好地生长,温度过高又会导致其失去活性。温度过高会导致酶蛋白质变性,进而降低酶的活性和酶促反应效率[8]。本试验结果表明,正交试验筛选出在发酵酶解的环境温度为33 ℃时,大豆皮中粗纤维解效果最好。固态发酵也受到料水比的影响,水是发酵酶解的重要媒介。料水比过低,会使发酵底物大豆皮的黏度降低,使微生物和酶在大豆皮上的附着性降低,同时也会增加被杂菌污染的风险。本研究表明,在料水比为1.0∶2.1时能有效提高粗纤维和大豆球蛋白的降解率。酶解发酵时间的长短也影响微生物的生长和酶解效果。有研究报道,秸秆发酵时间长短受温度影响,一般温度在30 ℃以上,3~5 d就可以完成发酵。本研究结果显示,在发酵酶解时间为6 d时对大豆皮中粗纤维和大豆球蛋白的降解率最高。2种酶的比例影响纤维素酶和木聚糖酶降解大豆皮中粗纤维的效率。纤维素酶能以大豆皮中的纤维素为底物产生葡萄糖,木聚糖酶则能够降解大豆皮细胞壁中的木聚糖,从而可以释放出大豆皮细胞壁中蛋白质等营养物质。本试验结果表明,添加纤维素酶与木聚糖酶比例为1.0∶2.5时,降解粗纤维的效果最好。因此,选择发酵温度为33 ℃、料水比为1.0∶2.1、发酵时间为6 d以及纤维素酶与木聚糖酶比例为1.0∶2.5为最优的发酵酶解条件。
3.2 发酵酶解对大豆皮主要营养成分和抗营养因子含量的影响
本试验中,菌酶结合发酵酶解显著提高了大豆皮中粗蛋白质的含量,可能是因为在发酵过程中菌的增殖产生了更多的菌体蛋白,也有可能是因为添加的纤维素酶和木聚糖酶降解了大豆皮细胞壁中的纤维,从而释放出蛋白质。研究表明,乳酸菌具有分泌蛋白质水解酶的能力[9]。发酵酶解过后,大豆皮中的粗纤维、中性洗涤纤维和酸性洗涤纤维含量显著降低,还原糖含量显著提高,主要原因是添加的纤维素酶和木聚糖酶可以有效降解大豆皮中的纤维素和半纤维素,产生还原糖。而朱晓峰等[10]研究表明,只采用乳酸菌来发酵菜籽粕,对菜籽粕中的粗纤维、中性洗涤纤维和酸性洗涤纤维含量无显著影响。此外,发酵酶解使得大豆皮中的乳酸含量显著提高,pH显著降低,可能是因为发酵酶解体系中添加的纤维素酶和木聚糖酶将大豆皮中的纤维素降解为还原糖,为乳酸菌的生长提供了能量,从而使乳酸菌分泌更多的乳酸致使pH降低。脲酶会加速动物饲料中尿素等非蛋白氮的分解,加快氨的释放,从而影响对营养物质的吸收,并对环境造成污染。抗原蛋白进入小肠以后导致致敏肥大细胞释放组胺,导致猪的下痢,对猪的生长与健康带来不利的影响[11]。本研究中,发酵酶解使大豆皮中的脲酶活性降低了97.53%,大豆球蛋白和β-伴大豆球蛋白含量也显著降低。
3.3 发酵酶解对大豆皮干物质和粗蛋白质体外消化率的影响
本试验发现,与对照组相比,发酵酶解组大豆皮干物质体外消化率提升了超过9%,粗蛋白质体外消化率提高了约15%。Thanarajoo等[12]研究发现,利用复合酶酶解椰子粕,对椰子粕的干物质体外消化率有显著的改善作用。Zahir等[13]研究发现,细胞壁的存在限制了大豆组织中蛋白质的消化。纤维降解酶和木聚糖酶能够提高纤维素和半纤维素的降解,而纤维素分解成小分子的碳水化合物,更容易被机体吸收。由此说明,干物质体外消化率的提高可能与大豆皮中的纤维素被添加的纤维素酶降解有关。本试验中,粗蛋白质体外消化率提高的原因可能是由于纤维降解酶降解了大豆皮中一些复杂的纤维结构,释放了被这些复杂结构包裹的粗蛋白质,导致粗蛋白质体外消化率提高[14-15]。与此同时,添加的芽孢杆菌等微生物释放出蛋白酶,可以将大豆皮中的大分子蛋白质降解为小分子蛋白质或多肽,纤维素酶降解纤维素生成小分子碳水化合物可以被芽孢杆菌等利用来提供能量,释放出更多的蛋白酶,菌酶协同共同提高了粗蛋白质体外消化率[16]。
3.4 发酵酶解对大豆皮体外发酵体系中微生物群落及其代谢物的影响
发酵酶解对发酵液中微生物群落的多样性无显著影响,但显著提高了某些微生物的相对丰度。由高通量测序分析得的PCoA图可以看出,发酵酶解组和对照组的OTU有分开的趋势,暗示发酵酶解影响了微生物的菌群结构。在门水平上,发酵酶解显著提高了放线菌门和弯曲杆菌门的相对丰度,显著降低了硝化螺旋菌门的相对丰度;其中放线菌门可以促进抗菌素的产生,弯曲杆菌门是节能菌,而硝化螺旋菌门可以将亚硝酸盐转化为硝酸盐,并与硫代谢相关,可以分解无机硫化物[19]。这些结果表明,发酵酶解可以减少后肠发酵液中亚硝酸盐和二氧化硫的产生,增加发酵液中抗菌素的含量,抑制其他微生物的生长。在属水平上,发酵酶解显著降低了解纤维素菌属、毛螺菌科AC2044群、瘤胃球菌属和丁酸弧菌属等的相对丰度,它们与纤维素、半纤维素和果胶的分解有关,这可能是因为发酵体系中添加了纤维素酶和木聚糖酶已将纤维素和半纤维素充分降解,无需微生物再产生这些酶[20];还有一些与产丁酸、丙酸和异丁酸相关的菌属相对丰度也显著降低,包括毛螺菌科UCG-004、毛螺菌科XPB1014群和Herbinix等,而抑制丁酸产生的大肠埃希氏菌-志贺氏菌属相对丰度显著提高。这种变化趋势与发酵液中短链脂肪酸的变化相一致。此外,发酵酶解组中相对丰度降低的未定级瘤胃球菌科、反刍动物真杆菌群和惰性真杆菌群这些菌属与致病菌或结肠炎有关[21];而发酵酶解组中相对丰度提高的菌属有颤螺菌科未分类属、大肠埃希氏菌-志贺氏菌属和Fournierella,它们与氢的代谢相关。总体来看,发酵酶解显著降低了与纤维分解和产丁酸、丙酸、异丁酸及结肠炎相关菌的相对丰度,提高了与氢代谢相关菌的相对丰度。
4 结论
① 经正交试验,发酵酶解大豆皮的最优条件为发酵温度33 ℃、料水比1.0∶2.1、发酵时间6 d以及纤维素酶与木聚糖酶比例1.0∶2.5。
② 在此条件下,大豆皮中粗蛋白质含量显著提高,粗纤维、中性洗涤纤维和酸性洗涤纤维含量显著降低,脲酶活性和抗原蛋白含量显著降低。
③ 体外仿生试验发现,发酵酶解提高了大豆皮干物质和粗蛋白质体外消化率,降低了结肠食糜发酵液中各短链脂肪酸的含量,提高了发酵液pH,改变了发酵体系中微生物群落的组成。
 京公网安备 11010802041926号


