综述

反刍动物胃肠道微生物与肉品质之间关联的研究进展及其可能机制

  • 赵相超 ,
  • 万发春 ,
  • 沈维军 ,
  • 王祚 , *
展开
  • 湖南农业大学动物科学技术学院,岳麓山实验室,长沙 410128
* 王祚,讲师,硕士生导师,E-mail:

赵相超(1998—),男,内蒙古乌海人,硕士研究生,动物营养与饲料科学专业。E-mail:

Copy editor: 陈鑫

收稿日期: 2023-03-14

  网络出版日期: 2023-09-13

基金资助

国家自然科学基金面上项目(32172758)

湖南省科技厅创新团队项目(2021RC4060)

新疆自治区科技计划项目(2022A02001-1)

湖南省自然科学基金面上项目(2021JJ30011)

湖南省草食动物产业技术体系

Research Progress on Association between Gastrointestinal Microbes and Meat Quality in Ruminants and Its Possible Mechanisms

  • ZHAO Xiangchao ,
  • WAN Fachun ,
  • SHEN Weijun ,
  • WANG Zuo , *
Expand
  • Yulushan Laboratory, College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
* lecturer, E-mail:

Received date: 2023-03-14

  Online published: 2023-09-13

摘要

肉品质是反刍动物肉用性能的关键指标,其形成机理与相关调控也是反刍动物研究的一大热点。已有研究表明,单胃动物的肉品质与肠道微生物存在一定的关联,而在反刍动物中开展的相关研究则主要发现了瘤胃微生物与脂肪相关肉品质之间的关联。本文综述了反刍动物胃肠道微生物与肉品质之间关联的研究进展,探讨了反刍动物胃肠道微生物与肉品质之间可能的关联机制,旨在为深入研究反刍动物胃肠道微生物对肉品质的影响机制以及相关调控提供参考。

本文引用格式

赵相超 , 万发春 , 沈维军 , 王祚 . 反刍动物胃肠道微生物与肉品质之间关联的研究进展及其可能机制[J]. 动物营养学报, 2023 , 35(9) : 5523 -5535 . DOI: 10.12418/CJAN2023.509

Abstract

Meat quality is a fundamental indicator of the ruminant meat production performance, and its formation mechanisms and relevant regulation shave constantly been the hot topics in ruminant research. Studies in monogastric animals have shown certain associations between meat quality and intestinal microorganisms, while related researches in ruminants have found correlations between ruminal microbes and host meat quality indexes related to fat contents, as well. In this paper, the research progresses on the correlations between ruminant gastrointestinal microbes and meat quality are reviewed, and the related potential mechanisms are also discussed based on relevant reports in other livestock and poultry. The aim of this paper is to provide a reference for the indepth study on the mechanisms for the influences of gastrointestinal microbes on meat quality and relevant manipulations.

肉品质是反刍动物肉用性能的关键指标,随着近几十年国内肉类生产效率稳步提高,消费者也愈加关注肉类产品的质量。肉品质的形成是一个复杂的过程,它涉及到多种化合反应以及脂肪细胞和肌细胞的增殖分化,并受多种激素、酶和转录因子的调控。有研究证明,单胃动物肉品质与肠道微生物存在一定的关联,肠道微生物群落会影响三元杂猪脂肪沉积、腰重等胴体品质的遗传性状,利用微生物也可以对猪的脂肪沉积、大理石花纹和腹重等性状进行较为准确的预测[1-3]。针对反刍动物进行的相关研究主要集中在瘤胃,脂肪相关性状不同的反刍动物瘤胃微生物具有显著差异[4-6]。反刍动物胃肠道微生物是影响动物生产与健康的重要因素,它们参与宿主物质代谢、消化吸收以及免疫等生理活动。深入研究反刍动物胃肠道微生物与肉品质关联机制,对于了解反刍动物肉品质形成机理以及探索提升肉质的新措施具有积极意义。本文综述了反刍动物胃肠道微生物与肉品质之间关联的研究进展,并探讨了可能的相关机制。

1 反刍动物肉品质及其形成因素

肉品质很大程度上是通过感官来定义的,肉品质指标主要分为感官指标、加工指标和营养指标。感官指标包括大理石花纹、肉色、pH和嫩度等,加工指标包括剪切力和系水力等,营养指标则是指在动物肉中包含的蛋白质、维生素、氨基酸和脂肪酸等[7-12]。大理石花纹是肌肉内脂肪沉积的直观表现,与脂肪含量成正比。肉色主要由肌细胞中肌红蛋白氧化程度决定,不同的肌细胞数量和不同的肌红蛋白含量都会影响肉色。动物屠宰前肌肉的pH偏中性,屠宰后因动物肌肉中产生大量乳酸而使得pH下降。决定嫩度的主要因素是结缔组织含量、肌纤维类型和肌纤维蛋白质氧化水解情况等,也包括脂肪含量对肉制品口感的影响。剪切力和系水力与嫩度高度相关,影响因素同样是结缔组织含量、肌纤维结构和肌肉中蛋白质的情况。脂肪和肌纤维是影响肉色、嫩度、剪切力以及系水力等多个肉品质指标的2个主要的关键因素,同时脂肪含量也是大部分国家和地区对肉品质的主要判断指标[13-15],以往对反刍动物脂肪和肌纤维的研究通常以品种、年龄、饲喂营养、饲养环境和饲养管理等因素为重点,而近年陆续有研究发现,胃肠道微生物与反刍动物肉品质存在一定关联,并且胃肠道微生物与反刍动物肉品质关联的大部分研究均集中在脂肪沉积方面。

2 反刍动物胃肠道微生物组成与功能

反刍动物胃肠道微生物大部分为细菌,其中厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)、变形菌门(Proteobacteria)和纤维杆菌门(Fibrobacteres)占反刍动物胃肠道中全部细菌的60%左右,其他的细菌门类包括少量柔膜菌门(Tenericutes)和放线菌门(Actinobacteria)等[16]。瘤胃是反刍动物特有的消化器官,其中定植着大量的微生物。瘤胃微生物可以帮助宿主利用纤维类物质、发酵产生挥发性脂肪酸(volatile fatty acids,VFAs)和氢化脂肪酸等[17]。VFAs是宿主主要的能量来源,对宿主的代谢有直接的影响,而瘤胃是反刍动物消化道微生物发酵产生VFAs的主要场所[15]。反刍动物肠道微生物数量少于瘤胃微生物,它们同样具有产生VFAs和氢化脂肪酸等功能,但它们更多参与的是多糖和氨基酸代谢[18-20]。此外,肠道微生物可以帮助宿主建立肠道免疫系统,维持肠道健康[21]

3 反刍动物胃肠道微生物与肉品质的关联研究

在医学领域已经有许多研究证明了人类肥胖和骨骼肌发育与肠道微生物有关[22-29],而单胃动物肠道微生物与脂肪沉积的关联也是近几年的研究热点[1,3,30]。相比之下,反刍动物胃肠道微生物与肉品质关联的相关研究较少且主要集中于瘤胃微生物与脂肪相关肉品质指标之间的关联。
Krause等[4]对24头饲喂相同饲粮的安格斯牛进行了瘤胃微生物和肉品质差异性比较以及相关性分析,结果表明:反映瘤胃微生物丰富度的Chao1指数和操作分类单元(OTU)数量以及反映瘤胃微生物多样性的Pdive指数与大理石花纹评分和背最长肌脂肪含量均呈正相关;经过分析,共有1个门、2个纲、3个科和9个属的瘤胃微生物与背最长肌脂肪含量和大理石花纹评分具有显著正相关性(表1),同时还发现放线菌门、双歧杆菌科(Bifidobacteriaceae)、丹毒丝菌科(Erysipelotrichaceae)、消化链球菌属(Peptostreptococcus)、双歧杆菌属(Bifidobacterium)、丁酸弧菌属(Butyrivibrio)以及消化球菌属(Peptococcus)等多类瘤胃微生物与背最长肌第12肋脂厚呈正相关。Kim等[5]对饲喂相同饲粮的韩国本土的肉牛品种进行了瘤胃微生物与大理石花纹评分的差异性比较和相关性分析,并对具有显著相关性的微生物属进行了汇总(表1),结果表明:高评分大理石花纹组的扩增子测序变异体和Chao1指数均高于低评分大理石花纹组,在高评分大理石花纹组中疣微菌门(Verrucomicrobia)、紫单胞菌科(Porphyromonadaceae)和颤螺旋菌属(Oscillospira)丰富度高于低评分大理石花纹组。Zhang等[6]对饲喂相同饲粮的湖羊进行了瘤胃微生物群落与脂肪沉积差异性比较和相关性分析,结果表明:低脂肪沉积组湖羊瘤胃微生物和高脂肪沉积组湖羊的瘤胃微生物的Shannon指数和Simpson指数具有显著差异,2个指数均代表微生物多样性。低脂肪沉积组湖羊的瘤胃内普雷沃氏菌科(Prevotellaceae)和毛螺菌科(Lachnospiraceae)的丰富度高于高脂肪沉积组,而高脂肪沉积组湖羊瘤胃内瘤胃球菌科(Ruminococcaceae)丰富度更高。
表1 不同研究中与肉品质指标具有相关性的瘤胃微生物

Table 1 Rumen microbes correlated with meat quality indexes in different studies (P<0.05)

项目
Items
分类水平 Taxonomic level 相关系数
Correlation
coefficient
参考文献
Reference
门 Phylum 纲 Class 目 Order 科 Family 属 Genus
疣微菌门
Verrucomicrobia
0.433 [4]
放线菌门
Actinobacteria
放线菌纲
Actinobacteridae
0.430 [4]
脂肪
含量
Lipid
content
放线菌门
Actinobacteria
放线菌纲
Actinobacteridae
双歧杆菌目
Bifidobacteriales
Coriobacteriaceae 0.405 [4]
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
梭菌科
Clostridiaceae
Dorea 0.438 [4]
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
毛螺旋菌科
Lachnospiraceae
Moryella 0.489 [4]
疣微菌门
Verrucomicrobia
0.428 [4]
疣微菌门
Verrucomicrobia
疣微菌纲
Verrucomicrobiae
[4]
疣微菌门
Verrucomicrobia
疣微菌纲
Verrucomicrobiae
疣微菌目
Verrucomicrobiales
疣微菌科
Verrucomicrobiaceae
Akkermansia 0.409 [4]
拟杆菌门
Bacteroidetes
拟杆菌纲
Bacteroidetes
拟杆菌目
Bacteroidales
理研菌科
Rikenellaceae
0.441 [4]
拟杆菌门
Bacteroidetes
拟杆菌纲
Bacteroidetes
拟杆菌目
Bacteroidales
S24-7 0.610 [4]
拟杆菌门
Bacteroidetes
拟杆菌纲
Bacteroidetes
拟杆菌目
Bacteroidales
紫单胞菌科
Porphyromonadaceae
Paludibacter 0.600 [5]
大理
石花纹
Marbling
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
毛螺旋菌科
Lachnospiraceae
经黏液真杆菌属
Blautia
0.409 [4]
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
毛螺旋菌科
Lachnospiraceae
Moryella 0.456 [4]
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
消化链球菌科
Peptostreptococcaceae
消化链球菌属
Peptostrepto-
coccus
0.426 [4]
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
韦荣氏菌科
Veillonellaceae
新月形单胞菌属
Selenomonas
0.434 [4]
变形菌门
Proteobacteria
γ-变形菌纲
Gammaproteo-
bacteria
肠杆菌目
Enterobacteriales
肠杆菌科
Enterobacteriaceae
克雷伯氏菌属
Klebsiella
0.426 [4]
厚壁菌门
Firmicutes
梭菌纲
Clostridia
梭菌目
Clostridiales
韦荣氏菌科
Veillonellaceae
Succiniclasticum -0.560 [5]
柔膜菌门
Tenericutes
柔膜菌纲
Mollicutes
支原体目
Mycoplasmatales
丹毒丝菌科
Erysipelothrichaceae
Bulleidia -0.580 [5]
变形菌门
Proteobacteria
β-变形菌纲
Betaproteobacteria
伯克氏菌目
Burkholderiales
产碱菌科
Alcaligenaceae
萨特氏菌属
Sutterella
-0.550 [5]


背脂厚
Backfat
thickness
厚壁菌门
Firmicutes
芽孢杆菌纲
Bacillibacteria
乳杆菌目
Lactobacillales
链球菌科
Streptococcaceae
链球菌属
Streptococcus
-0.570 [5]
变形菌门
Proteobacteria
γ-变形菌纲
Gammaproteo-
bacteria
气单胞菌目
Aeromonadales
琥珀酸弧菌科
Succinivibrionaceae
反刍杆菌属
Ruminobacter
-0.570 [5]

每一行相关系数为该行中最小分类单位的瘤胃细菌与对应肉品质指标的相关系数。

The correlation coefficient of each row is the correlation coefficient between the smallest taxonomic unit of rumen bacteria in the row and the corresponding meat quality index.

综上所述,反刍动物瘤胃微生物与肉品质关联的研究较少且起步较晚,研究内容集中在脂肪沉积不同的反刍动物瘤胃微生物之间的差异性以及相关性分析。为了加深反刍动物胃肠道微生物与肉品质之间关联的认识并为反刍动物肉品质调控提供新策略,许多相关问题需要在未来得到进一步研究揭示:例如反刍动物肠道微生物是否也与肉品质存在关联?反刍动物胃肠道微生物与脂肪沉积相关之外的肌纤维指标、感官指标、加工指标和其他营养指标等是否存在关联?反刍动物胃肠道微生物与肉品质之间具体的关联机制是怎样的?

4 反刍动物胃肠道微生物通过调控宿主脂肪代谢影响肉品质的可能机制

4.1 反刍动物胃肠道微生物代谢产物作为底物参与甘油三酯(TG)合成

脂肪是由甘油和长链脂肪酸形成的TG,其在反刍动物肝脏和脂肪组织中合成之后储存在脂肪组织,进而对肉制品的大理石花纹、嫩度和剪切力等指标产生影响。动物自身合成的脂肪酸和通过饲料摄入体内的脂肪酸均可用于TG的合成,而反刍动物胃肠道微生物,尤其是瘤胃微生物的主要代谢产物VFAs正是合成TG的重要原料之一。

4.1.1 乙酸参与TG合成

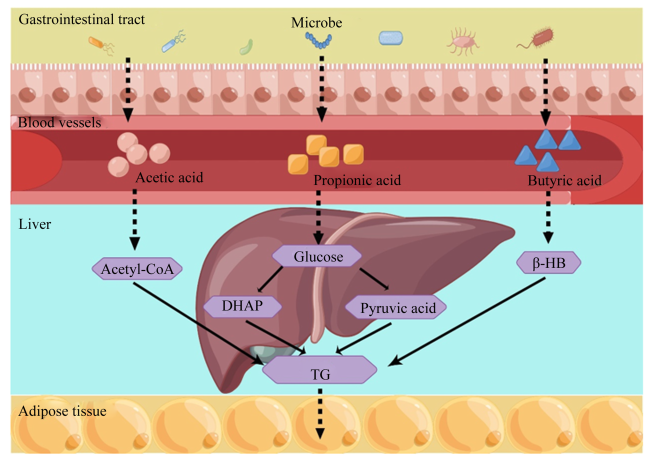
反刍动物胃肠道微生物发酵产生的乙酸是反刍动物合成TG的重要前体,在脂肪合成中起着极其关键的作用。乙酰辅酶A(CoA)是脂肪酸合成的原料,因为缺少ATP柠檬酸裂解酶,反刍动物无法将葡萄糖作为乙酰CoA的主要来源,所以乙酸成为了反刍动物合成乙酰CoA的重要物质。微生物发酵产生的乙酸被瘤胃直接吸收利用,在乙酰CoA合成酶的作用下,乙酸在胞浆中转变为乙酰CoA,然后被用于脂肪酸的合成,从而影响到肉品质(图1)。能够发酵产生乙酸的微生物有很多,醋酸杆菌属(Acetobacter)、热厌氧单胞菌属(Thermoanaerobacter)以及消化链球菌属是主要的产乙酸菌属,紫单胞菌科、拟杆菌科(Bacteroidaceae)以及理研菌科(Rikenellaceae)的部分菌属也具有发酵产生乙酸的能力[31-33],其中紫单胞菌科、拟杆菌科、理研菌科和消化链球菌属等瘤胃细菌与安格斯牛和韩牛的大理石花纹呈正相关[4-5],这说明它们在瘤胃中能够通过发酵产生乙酸影响TG的合成。

4.1.2 丙酸参与TG的合成

丙酸在反刍动物代谢中的主要作用是通过糖异生途径生成葡萄糖以及参与三羧酸循环[34],而肝脏糖异生是反刍动物主要的葡萄糖来源[35]。葡萄糖与脂代谢关系密切,磷酸二羟丙酮(dihydroxyacetone phosphate,DHAP)和丙酮酸等是葡萄糖氧化分解的产物。DHAP是合成三酰甘油酯的重要合成前体,在甘油-3-磷酸脱氢酶的催化下DHAP还原生成L-甘油-3-磷酸,再参与生成TG,丙酮酸则是乙酰CoA的生成前体物之一(图1)。虽然反刍动物缺少ATP柠檬酸裂解酶,但是仍然可以利用丙酮酸合成少量的乙酰CoA。此外,葡萄糖在戊糖磷酸途径生成磷酸核糖的过程中产生的还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)+H+为脂肪酸合成过程中的还原反应提供了还原当量。主要产生丙酸的微生物是丙酸杆菌属(Propionibacterium)和韦荣氏菌科(Veillonellaceae)[36-37]。其中仅有属于韦荣氏菌科的新月单胞菌属(Selenomonas)与安格斯肉牛大理石花纹呈正相关[4],这可能说明丙酸并非反刍动物合成TG的主要VFAs。

4.1.3 丁酸参与TG的合成

除了乙酸与丙酸,丁酸同样能够以底物的身份参与反刍动物TG合成[38]。丁酸是反刍动物酮体生成的前体物,瘤胃上皮细胞吸收的丁酸大部分都转化为酮体,且转化的酮体大部分为β-羟丁酸(β-hydroxybutyric acid,β-HB),少部分为乙酰乙酸和丙酮[39](图1)。乙酰乙酸在琥珀酰CoA转移酶和硫解酶先后的催化下生成乙酰CoA参与脂肪酸的合成或者三羧酸循环,而β-HB是乙酰乙酸生成的前体物。产生丁酸的微生物有假丁酸弧菌属(Butyrivibrio)、丁酸弧菌属、梭菌属(Clostridium)、优杆菌属(Eubacterium)、梭杆菌属(Fusobacterium)、氨基酸球菌属(Megasphaera)以及八叠球菌属(Sarcina)等[40]。假丁酸弧菌属和丁酸弧菌属属于毛螺旋菌科(Lachnospiraceae),梭菌属、优杆菌属和八叠球菌属属于梭菌科(Clostridiaceae),氨基酸球菌属属于韦荣氏菌科(Veillonellaceae)。虽然上述研究中并未出现发酵产生丁酸的主要瘤胃菌属,但是多次出现它们所属的菌科(表1),这可能说明丁酸在反刍动物合成TG途径中同样扮演重要角色。
图1 微生物代谢产物直接参与脂肪合成(用Figdraw平台绘制)

β-HB:β-羟丁酸 β-hydroxybutyric acid;DHAP:磷酸二羟丙酮 dihydroxyacetone phosphate;TG:甘油三酯 triglyceride;Gastrointestinal tract:消化道;Microbe:微生物;Blood vessels:血管;Acetic acid:乙酸;Propionic acid:丙酸;Butyric acid:丁酸;Liver:肝脏;Acetyl-CoA:乙酰辅酶A;Glucose:葡萄糖;Pyruvic acidt:丙酮酸;Adipose tissue:脂肪组织。

Fig.1 Microbial metabolites directly involved in fat synthesis (by Figdraw platform rendering)

综上所述,反刍动物胃肠道微生物,特别是瘤胃微生物发酵所产生的VFAs可以作为长链脂肪酸合成原料来参与脂肪的调控,其中以VFAs合成乙酰CoA为主要的参与方式。动物体内TG合成的相关研究已经比较完善,接下来应深入探究参与合成TG的VFAs主要由哪些微生物发酵产生,能否通过人为调控这些微生物来影响TG合成。

4.2 反刍动物胃肠道微生物代谢产物通过信号通路影响脂肪沉积的可能机制

反刍动物脂肪细胞的大小和数量是影响脂肪含量的重要因素,脂肪细胞通过改变自身体积和数量来改变能量储存效率,从而使得机体脂肪组织发生变化。以腺苷酸活化蛋白激酶(AMP-activated protein kinase,AMPK)、过氧化物酶体增殖物激活受体(peroxisome proliferator-activated receptor,PPAR)和哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)等为代表的多种信号通路可以对脂肪沉积和脂肪细胞分化进行调控,而VFAs为主的胃肠道微生物代谢产物是调控信号通路的重要因素。虽然针对反刍动物胃肠道微生物经由各类信号通路调控宿主脂肪机制的研究较少,但在其他动物或者细胞体外试验的研究中所发现的消化道微生物参与调控宿主脂肪代谢的某些机制可以作为有效参考。

4.2.1 G蛋白偶联受体(G protein-coupled receptor,GPR)

GPR41和GPR43是在多个水平上均有表达的短链脂肪酸受体[41-42],在胃肠道微生物调控信号通路的过程中起着关键作用。研究表明,丁酸能够结合GPR41和GPR43来降低脂蛋白脂肪酶(lipoprteinlipase,LPL)表达水平,进而抑制肝脏的脂肪合成和脂肪细胞分化[43]。Asano等[44]研究发现,鼠肠道中的细菌科RF32有助于降低小鼠肥胖,这可能是RF32产生的丁酸结合GPR41后激活交感神经,增加其他代谢途径的能量消耗,减少机体对脂肪合成途径的能量供应,从而达到抑制效果[45]。此外,乙酸有促进肠道L细胞分泌胰高血糖素样肽(glucagon-like peptide,GLP)-1、降低动物食欲以减少脂肪沉积的功能,这可能也是通过结合GPR43或GPR41完成的[46]

4.2.2 AMPK信号通路

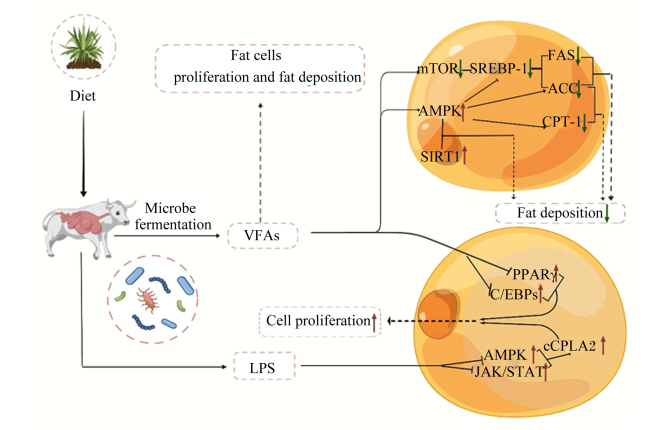
AMPK是调控脂肪沉积与脂肪细胞增殖分化的重要因素。研究表明,激活大鼠肝癌细胞中的AMPK会抑制固醇调节元件结合蛋白(sterol-regulatory element binding protein,SREBP)-1c的表达,SREBP-1c是肝脏成脂基因表达的重要因子,它的表达被抑制会较少肝脏脂肪酸的合成[47](图2)。Wang等[48]研究表明,植物乳杆菌(Lactobacillus plantarum)69-2和半乳寡糖结合会降低衰老小鼠肝脏的脂肪合成,这可能是因为二者的结合增加了肠道中丁酸的产生,进而增加肝脏AMPK和沉寂信息调节因子(silent information regulator,SIRT)1的活性,AMPK和SIRT1同时激活可以提高肝脏氧化活性,从而减少脂肪合成[49]。Heimann等[50]研究证明,丁酸可以通过影响老鼠的乙酰CoA羧化酶(acetyl CoA carboxylase,ACC)1磷酸化来抑制脂肪合成,这可能是丁酸通过增加AMPK活性,下调了ACC和长链脂肪酸从头合成的限速酶肉毒碱棕榈酰转移酶(carnitine palmitoyl transterase,CPT)-1活性,从而抑制了脂肪的合成[51]。脂多糖(lipopolysaccharide,LPS)是革兰氏阴性菌外壁的独特成分,在革兰氏阴性菌生长、发育和凋亡的过程中部分LPS会被释放到胃肠道中并穿过胃肠道屏障通过血液到达细胞。研究表明,LPS处理后的前脂肪细胞出现增殖和成脂作用加强的表现,这可能是LPS上调细胞中非受体型蛋白酪氨酸激酶(tyrosine kinase,JAK)/信号传导及转录激活蛋白(signal transducer and activator of transcription,STAT)和AMPK依赖的前脂肪细胞质中磷脂酶A2(cytosolic phospholipase A2,cPLA2)的表达,从而促进了前脂肪细胞增殖和成脂[52]
图2 微生物通过信号通路影响脂肪细胞的机制

LPS:脂多糖 lipopolysaccharide;JAK:酪氨酸激酶 tyrosine kinase;STAT:信号传导及转录激活蛋白 signal transducer and activator of transcription;cPLA2:细胞质中磷脂酶A2 cytosolic phospholipase A2;AMPK:腺苷酸活化蛋白激酶AMP-activated protein kinase;ACC:乙酰CoA羧化酶 acetyl CoA carboxylase;CPT-1:肉毒碱棕榈酰转移酶-1 carnitine palmitoyl transterase-1;PPAR:过氧化物酶体增殖物激活受体 peroxisome proliferator-activated receptor;mTOR:哺乳动物雷帕霉素靶蛋白mammalian target of rapamycin;SREBP-1:胆固醇调节元件结合蛋白-1 sterol-regulatory element binding protein-1;FAS:脂肪酸合成酶fatty acid synthetase;EBPs:增强子结合蛋白 enhancer binding proteins;Diet:饲粮;VFAs:挥发性脂肪酸volatile fatty acids;SIRT1;沉默信息调节因子1 silent information regulator 1;Microbe fermentation:微生物发酵;Cell proliferation:细胞增殖;Fat deposition:脂肪沉积。

Fig.2 Mechanisms by which microbes influence fat cells through signaling pathways

4.2.3 PPAR信号通路

PPAR可以在转录水平上通过调节多种不同信号通路进而调控目标基因表达,是调节脂肪细胞分化以及棕色脂肪细胞转化的关键转录因子,它有PPARα、PPARβ/δ和PPARγ 3种亚型[53]。Yang等[54]研究发现,肠膜明串珠菌(Leuconostocmesenteroide)EH-1产生的丁酸降低了肾衰小鼠的腹部脂肪沉积,这可能是丁酸通过激活游离脂肪酸受体(free fat acid receptor,FFAR)2来抑制PPARγ在脂肪细胞中的表达,从而抑制小鼠腹部脂肪沉积[55](图2)。还有研究表明,乙酸和丁酸可以显著提高前体脂肪细胞PPARγ和CCAAT增强子结合蛋白(CCAAT enhancer binding proteins,C/EBPs)mRNA表达量,促进脂肪细胞的分化[56-57]。C/EBPs的活化是乙酸激活前脂肪细胞上的GPR43后,GPR43的不同亚基分别从不同途径活化环磷腺苷效应元件结合蛋白(cAMP-response element binding protein,CREB)完成的,而PPARγ和C/EBPs协同作用则可以促进棕色脂肪组织细胞分化,以及促进棕色脂肪细胞中线粒体内膜解偶联蛋白(uncoupling protein,UCP)-1的mRNA表达,影响棕色脂肪细胞的形态变化[58]

4.2.4 mTOR信号通路

mTOR是参与转录、翻译、核糖体合成等多个生物过程的关键蛋白[59]。研究表明,乙酸可以通过减少SREBP-1的表达来减少机体的脂肪沉积[60-61]。这可能是乙酸抑制mTOR磷酸化之后,SREBP-1表达量的降低,使得参与脂肪酸从头合成的脂肪酸合成酶(fatty acid synthetase,FAS)和ACC基因的转录活性降低,同时抑制FAS和ACC激活PPARγ的作用,从而降低细胞对TG的储存作用和动物体内脂肪的转化效率[62-63](图2)。此外,Zhao等[64]研究发现,乙酸可能通过mTOR/真核起始因子(eukaryotic initiation factor,eIF)4E信号通路来调节脂肪酸从头合成和去饱和。
综上所述,胃肠道微生物可以通过以VFAs为主的代谢产物调控AMPK、PPAR和mTOR等多种信号通路来调节动物机体的脂肪合成和脂肪细胞的增殖分化。由于VFAs是反刍动物胃肠道微生物,特别是瘤胃微生物的重要代谢产物,因此可以推测反刍动物胃肠道微生物很有可能通过发酵产生VFAs调控以上多种信号通路进而对脂肪代谢与肉品质发挥作用。

4.3 反刍动物胃肠道微生物对脂肪酸的氢化作用

食用反刍动物肉制品是人类补充共轭亚油酸(conjugated linoleic acid,CLA)的主要途径,而氢化生成CLA是反刍动物瘤胃微生物对肉品质的重要调控之一。反刍动物胃肠道微生物可以利用生物氢化作用将亚麻酸、亚油酸和油酸等不饱和脂肪酸氢化,从而形成相对饱和的脂肪酸储存在肉中。丁酸弧菌属在生物氢化中起重要作用[65],溶纤维丁酸弧菌(Butyrivibrio fibrisolvens)是最早分离出的具有氢化作用的胃肠道微生物,它们可以利用异构酶将亚油酸异构为c-9,t-11-CLA[66]。CLA有助于预防癌症、减少动脉粥样硬化、改善免疫反应,是反刍动物肉制品营养指标的重要成分。因此,氢化作用可能是反刍动物胃肠道微生物通过营养指标影响肉品质的一个关键途径[67]

5 反刍动物胃肠道微生物通过调控肌纤维影响肉品质的可能机制

肌纤维影响反刍动物肉制品的嫩度、系水力和剪切力等多个肉品质指标,是调控反刍动物肉品质的重要因素之一。我们基于反刍动物胃肠道微生物的已有研究与认识,结合其他动物的体内或体外试验的研究结果,探讨反刍动物胃肠道微生物通过调控肌纤维进而影响肉品质形成的可能机制。

5.1 通过抑制炎症来促进骨骼肌发育

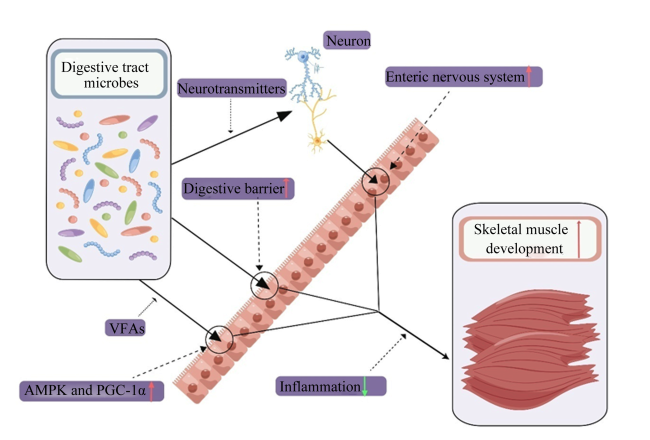
骨骼肌由肌纤维构成,除了影响肉品质外,骨骼肌还可以调节动物血糖、氨基酸代谢和能量代谢,是动物机体最大的代谢器官之一[68-69]。研究发现,炎症会造成骨骼肌质量下降和功能丧失,而保持反刍动物胃肠道微生物区系稳定可以保障消化道屏障的完整性,防止LPS等有害物进入血液引发炎症反应,从而保障骨骼肌的正常发育[70](图3)。研究证明,AMPK和过氧化物酶体增殖物激活受体γ共激活因子(peroxisome proliferator activated receptor γ coactivator,PGC)-1α信号通路活性上升时会促进细胞自噬,降低活性氧的产生和氧化应激反应,从而减少炎症的出现[71-73]。上文提到反刍动物胃肠道微生物发酵产生的VFAs会影响AMPK的活性,由此可以推测,反刍动物胃肠道微生物可以通过VFAs调节AMPK信号通路来影响细胞炎症反应,进而调控骨骼肌发育,从而影响肉品质。此外,微生物还可以通过产生多巴胺、5-羟色胺和γ-氨基丁酸等神经中枢系统的神经递质调节肠神经系统的活动来缓解氧化应激,抑制炎症反应[74-75]
图3 胃肠道微生物通过抑制炎症来促进骨骼肌发育

PGC-1α:过氧化物酶体增殖物激活受体γ共激活因子-1α peroxisome proliferator activated receptor γ coac-tivator-1α;Digestive tract microbes:消化道微生物;Neurotransmitter:神经递质;Neuron:神经元;Digestive barrier:消化道屏障;VFAs:挥发性脂肪酸 volatile fatty acids;AMPK:腺苷酸活化蛋白激酶AMP-activated protein kinase;PGC-1α:过氧化物酶体增殖物激活受体γ共激活因子-1α peroxisome proliferator activated receptor γ coactivator-1α;Enteric nervous system:肠神经系统;Inflammation:炎症;Skeletal muscle development:骨骼肌发育。

Fig.3 Gastrointestinal microbes promote skeletal muscle development by inhibiting inflammation

5.2 对肌细胞形态和类型的影响

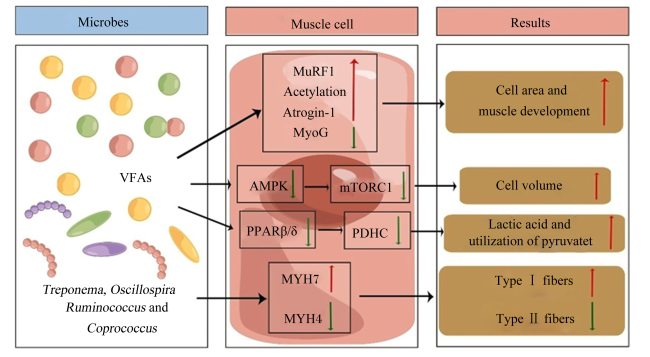
与脂肪细胞相似,肌细胞也受到多种信号通路调控。Walsh等[76]研究发现,饲喂丁酸钠可以治疗衰老小鼠的后肢肌肉萎缩、提高小鼠肌纤维横截面积以及抑制肌内脂肪沉积,这可能是丁酸提高骨骼肌细胞乙酰化水平、肌肉特异性环指蛋白(muscle specific ring finger protein,MuRF)1和肌肉萎缩盒F基因(muscle atrophy F-box,MAFbx,Atrogin-1)的表达,并降低肌细胞生成素(myogenin,MyoG)活性造成的(图4)。还有研究发现,缺乏AMPK的肌细胞出现细胞增大和蛋白质合成速率增加的现象,且哺乳动物雷帕霉素靶蛋白复合体1(mammalian target of rapamycin complex 1,mTORC1)活性增加,这可能表明VFAs可以通过激活AMPKα1来调控mTORC1活性,改变肌细胞大小和细胞内蛋白质的含量[77]。此外,Regueira等[78]研究发现,通过激活小鼠肌细胞的PPARβ/δ可以抑制丙酮酸脱氢酶复合体(pyruvate dehydrogenase complex,PDHC)的产生,从而增加骨骼肌对丙酮酸的利用率并产生更多的乳酸,增强丙酮酸的利用可以产生更多脂肪,而乳酸的增加改变了肌肉的pH。VFAs作为反刍动物胃肠道微生物的主要发酵产物,可以调控mTOR、PPAR等信号通路的活性,这可能是反刍动物胃肠道微生物影响肌纤维形态的一个途径。肌纤维分为收缩较慢、氧化较慢的Ⅰ型纤维和收缩较快、氧化较快的Ⅱ型纤维。研究表明,植物乳杆菌(Lactobacillus plantarum)能够增加小鼠腓肠肌中Ⅰ型纤维的比例[79]。Yan等[80]研究发现,将密螺旋体属(Treponema)、颤螺旋菌属(Oscillospira)、瘤胃球菌属和粪球菌属(Coprococcus)占比较高的肠道菌群移植到小鼠体内后,小鼠骨骼肌Ⅰ型纤维的比例增加,Ⅱ型纤维的比例减少,这可能因为这些肠道微生物的变化通过升高了肌球蛋白重链(myosinheavychain,MYH)7基因表达水平和降低MYH4基因表达水平,改变了肌细胞的能量代谢,从而造成纤维类型的改变。研究表明,上述4个微生物均存在于反刍动物胃肠道中,并且颤螺旋菌属和瘤胃球菌属与肉牛脂肪代谢相关[5,81-83],这可能说明这4个微生物具有影响反刍动物肌纤维类型的能力,并以此来改变肉品质指标。
图4 胃肠道微生物对肌细胞形态和类型的影响

MYH7:肌球蛋白重链7 myosinheavychain 7;MYH4:肌球蛋白重链4 myosin heavy chain 4;PDHC:丙酮酸脱氢酶复合体 pyruvate dehydrogenase complex;MuRF1:肌肉特异性环指蛋白1 muscle specific ring finger protein 1;MyoG:肌细胞生成素myogenin;PPAR:过氧化物酶体增殖物激活受体peroxisome prolif-erator-activated receptor;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase;mTORC1:哺乳动物雷帕霉素靶蛋白复合体1 mammalian target of rapamycin complex 1;Atrogin-1:萎缩素第一型基因;Acetylation:乙酰化;Cell area:细胞面积;Muscle development:肌肉发育;Cell volume:细胞体积;Lactic acid:乳酸;utilization of pyruvate:丙酮酸利用;Type Ⅰ fibers:Ⅰ型纤维;Type Ⅱ fibers:Ⅱ型纤维;Treponema: 密螺旋体属;Oscillospira:颤螺旋菌属; Ruminococcus: 瘤胃球菌属;Coprococcus:粪球菌属;VFAs:挥发性脂肪酸 volatile fatty acids;Microbes:微生物; Muscle cell:肌细胞;Results:结果。

Fig.4 Effects of gastrointestinal microbes on muscle fiber morphology and type

基于以上研究报道我们可以推测:反刍动物胃肠道微生物可能通过VFAs等代谢产物调控AMPK、mTORC1和PPAR等信号通路,从而调节肌细胞发育以及肌细胞形态和肌纤维类型。迄今为止,对于反刍动物肉中脂肪含量的关注度远高于肌纤维含量。然而,肌纤维含量和脂肪含量均是影响反刍动物肉品质的关键因素,并且两者之间是相互影响的。因此,在今后的反刍动物相关研究中,将二者的互作作为研究对象对深入认识反刍动物肉品质形成机制以及相关调控具有重要意义。

6 小结

已有研究发现了反刍动物瘤胃微生物与肉品质之间的关联,参考各类相关研究可以推测,反刍动物胃肠道微生物可能通过以VFAs为主的多种代谢产物来参与TG合成以及调控脂肪细胞与肌细胞内的信号通路,进而影响肉品质。随着研究的深入,以下几个方面需要在未来探究:1)明确反刍动物胃肠道微生物调控肉品质的具体途径及相关机制;2)明确在不同品种、不同年龄和不同饲养环境等条件下的反刍动物胃肠道微生物对肉品质的作用途径的差异性;3)反刍动物胃肠道微生物对肉品质指标的不同调控方式可能会相互矛盾,其最终影响和决定机制是怎样的;4)如何利用反刍动物胃肠道微生物影响肉品质的机制进行肉品质的有效调控。
[1]
KHANAL P, MALTECCA C, SCHWAB C, et al. Microbiability of meat quality and carcass composition traits in swine[J]. Journal of Animal Breeding and Genet-ics, 2021, 138(2):223-236.

[2]
KHANAL P, MALTECCA C, SCHWAB C, et al. Modeling host-microbiome interactions for the prediction of meat quality and carcass composition traits in swine[J]. Genetics Selection Evolution, 2020, 52(1):41.

DOI PMID

[3]
MALTECCA C, LU D, SCHILLEBEECKX C, et al. Predicting growth and carcass traits in swine using microbiome data and machine learning algorithms[J]. Scientific Reports, 2019, 9(1):6574.

DOI PMID

[4]
KRAUSE T R, LOURENCO J M, WELCH C B, et al. The relationship between the rumen microbiome and carcass merit in Angus steers[J]. Journal of Animal Science, 2020, 98(9):skaa287.

DOI

[5]
KIM M, PARK T, JEONG J Y, et al. Association between rumen microbiota and marbling score in Korean native beef cattle[J]. Animals, 2020, 10(4):712.

DOI

[6]
ZHANG Y K, ZHANG X X, LI F D, et al. Exploring the ruminal microbial community associated with fat deposition in lambs[J]. Animals, 2021, 11(12):3584.

DOI

[7]
WALMSLEY B J, CAFE L M, WILKINS J F, et al. Selection for increased visual muscling increases carcass leanness without compromising predicted meat standards Australia eating-quality index[J]. Animal Production Science, 2020, 61(3):294-299.

DOI

[8]
FARMER L J, FARRELL D T. Review:beef-eating quality:a European journey[J]. Animal, 2018, 12(11):2424-2433.

DOI

[9]
万发春, 张幸开, 张丽萍, 等. 牛肉品质评定的主要指标[J]. 中国畜牧兽医, 2004, 31(12):17-19.

WAN F C, ZHANG X K, ZHANG L P, et al. The main indexes of beef quality evaluation and measurement[J]. China Animal Husbandry & Veterinary Medicine, 2004, 31(12):17-19. (in Chinese)

[10]
王鑫, 李光鹏. 牛肉质性状及其影响因素[J]. 动物营养学报, 2019, 31(11):4949-4958.

DOI

WANG X, LI G P. Meat quality traits of cattle and it influence factors[J]. Chinese Journal of Animal Nutrition, 2019, 31(11):4949-4958. (in Chinese)

[11]
陈浩, 王纯洁, 斯木吉德, 等. 牛肉品质及其影响因素研究进展[J]. 动物营养学报, 2021, 33(2):669-678.

DOI

CHEN H, WANG C J, SIMU J D, et al. Research progress of beef quality and its influencing factors[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):669-678. (in Chinese)

[12]
MILLER R. Drivers of consumer liking for beef,pork,and lamb:a review[J]. Foods, 2020, 9(4):428.

DOI

[13]
侯普馨, 侯艳茹, 白艳苹, 等. 日粮添加亚麻籽对苏尼特羊肌纤维特性及肉品质的影响[J]. 食品科学, 2020, 41(11):36-42.

DOI

HOU P X, HOU Y R, BAI Y P, et al. Effect of dietary linseed supplementation on muscle fiber characteristics and meat quality of sunit sheep[J]. Food Science, 2020, 41(11):36-42.(in Chinese)

DOI

[14]
PICARD B, GAGAOUA M. Muscle fiber properties in cattle and their relationships with meat qualities:an overview[J]. Journal of Agricultural and Food Chemis-try, 2020, 68(22):6021-6039.

[15]
CAMPOS C F, DUARTE M S, GUIMARÃES S E F, et al. Review:animal model and the current understanding of molecule dynamics of adipogenesis[J]. Animal, 2016, 10(6):927-932.

DOI

[16]
CHOLEWIÑSKA P, CZYZ K, NOWAKOWSKI P, et al. The microbiome of the digestive system of ruminants-a review[J]. Animal Health Research Reviews, 2020, 21(1):3-14.

DOI

[17]
KIM M, PARK T, YU Z T. Metagenomic investigation of gastrointestinal microbiome in cattle[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(11):1515-1528.

DOI PMID

[18]
O’HARA E, NEVES A L A, SONG Y, et al. The role of the gut microbiome in cattle production and health:driver or passenger?[J]. Annual Review of Animal Biosciences, 2020, 8:199-220.

DOI

[19]
JOHNSON K A, JOHNSON D E. Methane emissions from cattle[J]. Journal of Animal Science, 1995, 73(8):2483-2492.

DOI PMID

[20]
马晨, 张和平, 刘彩虹, 等. 牛瘤胃与肠道微生物多样性的研究进展[J]. 动物营养学报, 2014, 26(4):852-862.

DOI

MA C, ZHANG H P, LIU C H, et al. Research advance in ruminal and intestinal microbes diversity in cattle[J]. Chinese Journal of Animal Nutrition, 2014, 26(4):852-862. (in Chinese)

[21]
MALMUTHUGE N, GUAN L L. Understanding host-microbial interactions in rumen:searching the best opportunity for microbiota manipulation[J]. Journal of Animal Science and Biotechnology, 2017, 8(1):8.

DOI

[22]
DUNCAN S H, BELENGUER A, HOLTROP G, et al. Reduced dietary intake of carbohydrates by obese subjects results in decreased concentrations of butyrate and butyrate-producing bacteria in feces[J]. Applied and Environmental Microbiology, 2007, 73(4):1073-1078.

DOI PMID

[23]
KOVATCHEVA-DATCHARY P, NILSSON A, AKRAMI R, et al. Dietary fiber-induced improvement in glucose metabolism is associated with increased abundance of prevotella[J]. Cell Metabolism, 2015, 22(6):971-982.

DOI

[24]
LI S T, GU Y Y, CHEN L, et al. Lean rats gained more body weight from a high-fructooligosaccharide diet[J]. Food & Function, 2015, 6(7):2315-2321.

[25]
DE FILIPPO C, CAVALIERI D, DI PAOLA M, et al. Impact of diet in shaping gut microbiota revealed by a comparative study in children from Europe and rural Africa[J]. Proceedings of the National Academy of Sciences of the United States of America, 2010, 107(33):14691-14696.

DOI PMID

[26]
DAI Z L, WU G Y, ZHU W Y. Amino acid metabolism in intestinal bacteria:links between gut ecology and host health[J]. Frontiers in Bioscience (Landmark Edition), 2011, 16(5):1768-1786.

[27]
SHERIDAN P O, MARTIN J C, LAWLEY T D, et al. Polysaccharide utilization loci and nutritional specialization in a dominant group of butyrate-producing human colonic Firmicutes[J]. Microbial Genomics, 2016, 2(2):e000043.

[28]
TAKAHASHI K, NISHIDA A, FUJIMOTO T, et al. Reduced abundance of butyrate-producing bacteria species in the fecal microbial community in Crohn’s disease[J]. Digestion, 2016, 93(1):59-65.

DOI

[29]
GIZARD F, FERNANDEZ A, DE VADDER F. Interactions between gut microbiota and skeletal muscle[J]. Nutrition and Metabolic Insights, 2020, 13:1178638820980490.

[30]
谭碧娥, 伍树松, 贺建华, 等. 地方猪耐粗饲和肉质性状形成的微生物代谢机制[J]. 动物营养学报, 2020, 32(7):2941-2946.

DOI

TAN B E, WU S S, HE J H, et al. Metabolic mechanism of coarse feeding tolerance and meat quality traits formation based on microbial metabolism in local pigs[J]. Chinese Journal of Animal Nutrition, 2020, 32(7):2941-2946. (in Chinese)

[31]
NAYAK J, PAL P. Transforming waste cheese-whey into acetic acid through a continuous membrane-integrated hybrid process[J]. Industrial & Engineering Chemistry Research, 2013, 52(8):2977-2984.

DOI

[32]
PAL P, NAYAK J. Acetic acid production and purification:critical review towards process intensification[J]. Separation & Purification Reviews, 2017, 46(1):44-61.

[33]
REY F E, FAITH J J, BAIN J, et al. Dissecting the in vivo metabolic potential of two human gut acetogens[J]. Journal of Biological Chemistry, 2010, 285(29):22082-22090.

DOI

[34]
朱雯, 任春环, 张彦, 等. 反刍动物肝脏糖异生及营养调控[J]. 动物营养学报, 2019, 31(10):4434-4441.

DOI

ZHU W, REN C H, ZHANG Y, et al. Mechanisms of hepatic gluconeogenesis and nutritional regulation in ruminants[J]. Chinese Journal of Animal Nutrition, 2019, 31(10):4434-4441. (in Chinese)

[35]
ASCHENBACH J R, KRISTENSEN N B, DONKIN S S, et al. Gluconeogenesis in dairy cows:the secret of making sweet milk from sour dough[J]. IUBMB Life, 2010, 62(12):869-877.

DOI

[36]
SCHOLZ C F P, KILIAN M. The natural history of cutaneous propionibacteria,and reclassification of selected species within the genus Propionibacterium to the proposed novel genera Acidipropionibacterium gen. nov.,Cutibacterium gen. nov. and Pseudopropionibacterium gen. nov[J]. International Journal of Systematic and Evolutionary Microbiology, 2016, 66(11):4422-4432.

DOI

[37]
CORAL J, KARP S G, PORTO DE SOUZA VANDENBERGHE L, et al. Batch fermentation model of propionic acid production by Propionibacterium acidipropionici in different carbon sources[J]. Applied Biochemistry and Biotechnology, 2008, 151(2/3):333-341.

DOI

[38]
徐进, 王劼, 舒鼎铭, 等. 丁酸对脂肪代谢的调节及其作用机制[J]. 动物营养学报, 2022, 34(6):3495-3502.

DOI

XU J, WANG J, SHU D M, et al. Regulation and mechanism of butyric acid on fat metabolism[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3495-3502. (in Chinese)

DOI

[39]
BAASKE L, GÄBEL G, DENGLER F. Ruminal epithelium:a checkpoint for cattle health[J]. Journal of Dairy Research, 2020, 87(3):322-329.

DOI

[40]
BHATIA S K, YANG Y H. Microbial production of volatile fatty acids:current status and future perspectives[J]. Reviews in Environmental Science and Bio/Technology, 2017, 16(2):327-345.

DOI

[41]
ANG Z W, DING J L. GPR41 and GPR43 in obesity and inflammation-protective or causative?[J]. Frontiers in Immunology, 2016, 7:28.

[42]
JOCKEN J W E, GONZÁLEZ HERNÁNDEZ M A, HOEBERS N T H, et al. Short-chain fatty acids differentially affect intracellular lipolysis in a human white adipocyte model[J]. Frontiers in Endocrinology, 2018, 8:372.

DOI

[43]
赵利芹. 丁酸钠对肉鸡脂肪沉积的作用及机制研究[D].硕士学位论文. 泰安: 山东农业大学, 2019.

ZHAO L Q. Effect and mechanism of sodium butyrate on fat deposition in broilers[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2019. (in Chinese)

[44]
ASANO M, NAKANO F, NAKATSUKASA E, et al. The 1975 type Japanese diet improves the gut microbial flora and inhibits visceral fat accumulation in mice[J]. Bioscience,Biotechnology,and Biochemistry, 2020, 84(7):1475-1485.

DOI

[45]
ZHONG Y D, NYMAN M, FÅK F. Modulation of gut microbiota in rats fed high-fat diets by processing whole-grain barley to barley malt[J]. Molecular Nutrition & Food Research, 2015, 59(10):2066-2076.

[46]
SANDHU K V, SHERWIN E, SCHELLEKENS H, et al. Feeding the microbiota-gut-brain axis:diet,microbiome,and neuropsychiatry[J]. Translational Research, 2017, 179:223-244.

DOI

[47]
YAP F, CRADDOCK L, YANG J. Mechanism of AMPK suppression of LXR-dependent Srebp-1c transcription[J]. International Journal of Biological Sciences, 2011, 7(5):645-650.

DOI PMID

[48]
WANG W, LIU F, XU C, et al. Lactobacillus plantarum 69-2 combined with galacto-oligosaccharides alleviates D-galactose-induced aging by regulating the AMPK/SIRT1 signaling pathway and gut microbiota in mice[J]. Journal of Agricultural and Food Chemis-try, 2021, 69(9):2745-2757.

[49]
ANGGREINI P, KUNCORO H, SUMIWI S A, et al. Role of the AMPK/SIRT1 pathway in non-alcoholic fatty liver disease (review)[J]. Molecular Medicine Reports, 2023, 27(2):35.

DOI

[50]
HEIMANN E, NYMAN M, DEGERMAN E. Propionic acid and butyric acid inhibit lipolysis and de novo lipogenesis and increase insulin-stimulated glucose uptake in primary rat adipocytes[J]. Adipocyte, 2015, 4(2):81-88.

DOI

[51]
YAO C G, PANG D X, LU C, et al. Data mining and validation of AMPK pathway as a novel candidate role affecting intramuscular fat content in pigs[J]. Animals, 2019, 9(4):137.

DOI

[52]
CHANG C C, SIA K C, CHANG J F, et al. Lipopolysaccharide promoted proliferation and adipogenesis of preadipocytes through JAK/STAT and AMPK-regulated cPLA2 expression[J]. International Journal of Medical Sciences, 2019, 16(1):167-179.

DOI

[53]
宋淑珍, 吴建平, 高良霜, 等. 过氧化物酶体增殖物激活受体γ信号通路调控脂质代谢的研究进展[J]. 动物营养学报, 2020, 32(4):1473-1483.

DOI

SONG S Z, WU J P, GAO L S, et al. Research advance on lipid metabolism regulated by preoxisome proliferator-activated receptor gamma signal pathway[J]. Chinese Journal of Animal Nutrition, 2020, 32(4):1473-1483. (in Chinese)

[54]
YANG J J, PHAM M T, RAHIM A R, et al. Mouse abdominal fat depots reduced by butyric acid-producing leuconostoc mesenteroides[J]. Microorganisms, 2020, 8(8):1180.

DOI

[55]
KROON T, HARMS M, MAURER S, et al. PPARγ and PPARα synergize to induce robust browning of white fat in vivo[J]. Molecular Metabolism, 2020, 36:100964.

DOI

[56]
LI G L, YAO W, JIANG H L. Short-chain fatty acids enhance adipocyte differentiation in the stromal vascular fraction of porcine adipose tissue[J]. Journal of Nutrition, 2014, 144(12):1887-1895.

DOI PMID

[57]
孙超, 王力, 田亮, 等. 脂肪酸对小鼠前体脂肪细胞分化中脂代谢基因mRNA表达的影响[J]. 西北农业学报, 2009, 18(4):1-4.

SUN C, WANG L, TIAN L, et al. Regulation of expression of gene related to lipid metabolism in adipocyte differentiation of mouse by fatty acid[J]. Acta Agriculturae Boreali-Occidentalis Sinica, 2009, 18(4):1-4. (in Chinese)

[58]
HU J M, KYROU I, TAN B K, et al. Short-chain fatty acid acetate stimulates adipogenesis and mitochondrial biogenesis via GPR43 in brown adipocytes[J]. Endocrinology, 2016, 157(5):1881-1894.

DOI PMID

[59]
HAGIWARA A, CORNU M, CYBULSKI N, et al. Hepatic mTORC2 activates glycolysis and lipogenesis through Akt,glucokinase,and SREBP1c[J]. Cell Metabolism, 2012, 15(5):725-738.

DOI

[60]
常莹. 乙酸盐对家兔生产性能和组织脂质代谢的影响[D].硕士学位论文. 泰安: 山东农业大学, 2018.

CHANG Y. Effects of acetate on production performance and tissue lipid metabolism in rabbits[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2018. (in Chinese)

[61]
伏春燕. 乙酸盐对家兔脂肪细胞代谢的调控机制研究[D].博士学位论文. 泰安: 山东农业大学, 2017.

FU C Y. Research on the mechanism of acetate regulating adipocytes metabolism in rabbits[D].Ph.D.Thesis Tai’an: Shandong Agricultural University, 2017. (in Chinese)

[62]
CHAKRABARTI P, KANDROR K V. The role of mTOR in lipid homeostasis and diabetes progression[J]. Current Opinion in Endocrinology & Diabetes and Obesity, 2015, 22(5):340-346.

[63]
JIDEONWO V, HOU Y Y, AHN M, et al. Impact of silencing hepatic SREBP-1 on insulin signaling[J]. PLoS One, 2018, 13(5):e0196704.

DOI

[64]
ZHAO Y L, GUO X Y, YAN S M, et al. Acetate regulates milk fat synthesis through the mammalian target of rapamycin/eukaryotic initiation factor 4E signaling pathway in bovine mammary epithelial cells[J]. Journal of Dairy Science, 2021, 104(1):337-345.

DOI PMID

[65]
MAIA M R G, CHAUDHARY L C, FIGUERES L, et al. Metabolism of polyunsaturated fatty acids and their toxicity to the microflora of the rumen[J]. Antonie Van Leeuwenhoek, 2007, 91(4):303-314.

DOI

[66]
LI D, WANG J Q, BU D P. Ruminal microbe of biohydrogenation of trans-vaccenic acid to stearic acid in vitro[J]. BMC Research Notes, 2012, 5:97.

DOI

[67]
LOURENÇO M, RAMOS-MORALES E, WALLACE R J. The role of microbes in rumen lipolysis and biohydrogenation and their manipulation[J]. Animal, 2010, 4(7):1008-1023.

DOI PMID

[68]
GROSICKI G J, FIELDING R A, LUSTGARTEN M S. Gut microbiota contribute to age-related changes in skeletal muscle size,composition,and function:biological basis for a gut-muscle axis[J]. Calcified Tissue International, 2018, 102(4):433-442.

DOI

[69]
LAHIRI S, KIM H, GARCIA-PEREZ I, et al. The gut microbiota influences skeletal muscle mass and function in mice[J]. Science Translational Medicine, 2019, 11(502):eaan5662.

DOI

[70]
LONDHE P, GUTTRIDGE D C. Inflammation induced loss of skeletal muscle[J]. Bone, 2015, 80:131-142.

DOI PMID

[71]
REN J, ZHANG Y M. Targeting autophagy in aging and aging-related cardiovascular diseases[J]. Trends in Pharmacological Sciences, 2018, 39(12):1064-1076.

DOI PMID

[72]
SHO T, XU J X. Role and mechanism of ROS scavengers in alleviating NLRP3-mediated inflammation[J]. Biotechnology and Applied Biochemistry, 2019, 66(1):4-13.

DOI PMID

[73]
RYU J Y, CHOI H M, YANG H I, et al. Dysregulated autophagy mediates sarcopenic obesity and its complications via AMPK and PGC1α signaling pathways:potential involvement of gut dysbiosis as a pathological link[J]. International Journal of Molecular Scienc-es, 2020, 21(18):6887.

[74]
DUMITRESCU L, POPESCU-OLARU I, COZMA L, et al. Oxidative stress and the microbiota-gut-brain axis[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:2406594.

[75]
COBLEY J N, FIORELLO M L, BAILEY D M. 13 reasons why the brain is susceptible to oxidative stress[J]. Redox Biology, 2018, 15:490-503.

DOI PMID

[76]
WALSH M E, BHATTACHARYA A, SATARANATARAJAN K, et al. The histone deacetylase inhibitor butyrate improves metabolism and reduces muscle atrophy during aging[J]. Aging Cell, 2015, 14(6):957-970.

DOI PMID

[77]
MOUNIER R, LANTIER L, LECLERC J, et al. Antagonistic control of muscle cell size by AMPK and mTORC1[J]. Cell Cycle, 2011, 10(16):2640-2646.

PMID

[78]
REGUEIRA M, RIERA M F, GALARDO M N, et al. Activation of PPAR α and PPAR β/δ regulates Sertoli cell metabolism[J]. Molecular and Cellular Endocrinolo-gy, 2014, 382(1):271-281.

[79]
LIU R X, HONG J, XU X Q, et al. Gut microbiome and serum metabolome alterations in obesity and after weight-loss intervention[J]. Nature Medicine, 2017, 23(7):859-868.

DOI PMID

[80]
YAN H L, DIAO H, XIAO Y, et al. Gut microbiota can transfer fiber characteristics and lipid metabolic profiles of skeletal muscle from pigs to germfree mice[J]. Scientific Reports, 2016, 6:31786.

DOI

[81]
EVANS N J, BROWN J M, MURRAY R D, et al. Characterization of novel bovine gastrointestinal tract treponema isolates and comparison with bovine digital dermatitis treponemes[J]. Applied and Environmental Microbiology, 2011, 77(1):138-147.

DOI PMID

[82]
CONTE G, DIMAURO C, DAGHIO M, et al. Exploring the relationship between bacterial genera and lipid metabolism in bovine rumen[J]. Animal, 2022, 16(5):100520.

DOI

[83]
SUN W T, LIU J J, XU H, et al. L-lactic acid fermentation by Enterococcus faecium:a new isolate from bovine rumen[J]. Biotechnology Letters, 2015, 37(7):1379-1383.

DOI

文章导航

/