研究论文

体外产气法评价饲粮添加复合菌酶制剂对肉牛瘤胃发酵特性、纤维素降解酶和菌群的影响

  • 祝欣悦 ,
  • 马建飞 ,
  • 包俊杰 ,
  • 徐均钊 ,
  • 牛化欣 , *
展开
  • 内蒙古民族大学动物科技学院,通辽 028000
* 牛化欣,教授,博士生导师,E-mail:

祝欣悦(1999—),女,内蒙古赤峰人,硕士研究生,从事反刍动物营养与饲料研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-06-26

  网络出版日期: 2025-01-10

基金资助

内蒙古自治区高等学校青年科技英才支持计划资助(NJYT22054)

内蒙古自治区科技计划项目(2021GG0035)

内蒙古自治区科技计划项目(2023YFDZ0079)

内蒙古自治区科技计划项目(2023YFDZ0068)

内蒙古自治区自然科学基金(2022MS03074)

Evaluation of Effects of Dietary Complex Bacterial Enzyme Preparation on Rumen Fermentation Characteristics, Cellulose Degrading Enzymes and Microflora of Beef Cattle by in Vitro Gas Production Method

  • ZHU Xinyue ,
  • MA Jianfei ,
  • BAO Junjie ,
  • XU Junzhao ,
  • NIU Huaxin , *
Expand
  • College of Animal Science and Technology, Inner Mongolia Minzu University, Tongliao 028000, China
* professor, E-mail:

Received date: 2024-06-26

  Online published: 2025-01-10

摘要

本试验旨在研究添加不同水平复合菌酶制剂对肉牛体外瘤胃发酵特性、纤维素降解酶活性和菌群的影响。试验在基础全混合日粮(TMR)中分别添加0[对照组(CON组)]、0.3(D1组)、0.6(D2组)、1.2(D3组)和2.4 g/kg(D4组)复合菌酶制剂作为发酵底物,选取3头健康西门塔尔牛作为瘤胃液供体动物,体外发酵48 h。 结果表明: 1)D3组6、12、24和48 h产气量、产气速率以及干物质(6 h除外)、中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)降解率显著高于CON组(P<0.05)。D3组和D4组12和48 h甲烷(CH4)产量显著低于CON组(P<0.05)。2)与CON组相比,体外发酵48 h时,D3组丁酸比例显著提高(P<0.05),各复合菌酶制剂添加组氨态氮(NH3-N)浓度和乙酸比例显著提高(P<0.05)。D3组总挥发性脂肪酸(TVFA)浓度显著高于其他各组(P<0.05)。3)D3组纤维素酶、β-葡聚糖酶、木聚糖酶和果胶酶活性显著高于CON组(P<0.05)。4)2bRAD-M瘤胃菌群测定结果表明,D3组Simpson指数显著高于CON组(P<0.05)。通过线性判别分析效应大小(LEfSe)对组间差异物种进行分析,筛选出2组在不同分类水平上的显著差异物种共11种,其中普通拟杆菌属(Cryptobacteroides)、解琥珀酸菌属(Succiniclasticum)等在CON组中富集,琥珀酸弧菌属(Succinivibrio)、毛螺菌科(Lachnospiraceae)等在D3组中富集。体外瘤胃发酵参数与优势菌属相对丰度相关性分析结果表明,琥珀酸弧菌属相对丰度与丁酸比例以及TVFA和NH3-N浓度显著正相关(P<0.05),而解琥珀酸菌属相对丰度与乙酸比例以及TVFA和NH3-N浓度呈显著负相关(P<0.05)。综上所述,在体外发酵条件下,添加1.2 g/kg TMR的复合菌酶制剂可以提高产气量和营养物质降解率,降低CH4产量,提高纤维素降解酶活性,提高琥珀酸弧菌属相对丰度,降低解琥珀酸菌属相对丰度。

本文引用格式

祝欣悦 , 马建飞 , 包俊杰 , 徐均钊 , 牛化欣 . 体外产气法评价饲粮添加复合菌酶制剂对肉牛瘤胃发酵特性、纤维素降解酶和菌群的影响[J]. 动物营养学报, 2025 , 37(1) : 412 -425 . DOI: 10.12418/CJAN2025.036

Abstract

The aim of this experiment was to study the effects of different supplemental levels of complex bacterial enzyme preparations on rumen fermentation characteristics, cellulose degrading enzyme activity and microflora of beef cattle in vitro. In the experiment, the basal total mixed ration (TMR) was supplemented with 0 [control group (CON group)], 0.3 (D1 group), 0.6 (D2 group), 1.2 (D3 group) and 2.4 g/kg (D4 group) complex bacterial enzyme preparations as fermentation substrate, and 3 healthy Simmental cattle were selected as rumen fluid donors for 48 h in vitro fermentation. The results showed as follows: 1) the gas production, gas production rate and degradation rates of dry matter (except 6 h), neutral detergent fiber (NDF) and acid detergent fiber (ADF) in D3 group were significantly higher than those in CON group at 6, 12, 24 and 48 h (P<0.05). The methane (CH4) production at 12 and 48 h in D3 and D4 groups was significantly lower than that in CON group (P<0.05). 2) Compared with CON group, after 48 h in vitro fermentation, the butyric acid ratio in D3 group was significantly increased (P<0.05), and the ammonia-nitrogen (NH3-N) concentration and acetic acid ratio in each complex bacterial enzyme preparation group were significantly increased (P<0.05). The total volatile fatty acid (TVFA) concentration in D3 group was significantly higher than that in the other groups (P<0.05). 3) The activities of cellulase, β-glucanase, xylanase and pectinase in D3 group were significantly higher than those in CON group (P<0.05). 4) The results of 2bRAD-M rumen microflora assay showed that the Simpson index in D3 group was significantly higher than that in CON group (P<0.05). By linear discriminant analysis effect size (LEfSe) of the difference species between the two groups, a total of 11 species were screened for significant differences between the two groups at different taxonomic levels, among which Cryptobacteroides and Succiniclasticum were enriched in CON group, and Succinivibrio and Lachnospiraceae were enriched in D3 group. Correlation analysis between rumen fermentation parameters in vitro and the relative abundance of dominant bacteria genera showed that the Succinivibrio relative abundance was significantly positively correlated with the butyric acid ratio and concentrations of TVFA and NH3-N (P<0.05), while the Succiniclasticum relative abundance was significantly negatively correlated with the acetic acid ratio and concentrations of TVFA and NH3-N (P<0.05). To sum up, under the condition of in vitro fermentation, the addition of 1.2 g/kg TMR complex bacterial enzyme preparation can increase the gas production and nutrient degradation rate, reduce CH4 production, enhance the cellulose degrading enzyme activity, increase the Succinivibrio relative abundance, and reduce the Succiniclasticum relative abundance.

饲用复合菌酶制剂是高纤维饲料高值化利用、提高反刍动物饲料纤维素降解率的有效方法,不仅可以促进反刍动物对营养物质的消化利用,也可补充瘤胃益生菌,调节瘤胃生态环境及瘤胃发酵,从而提高饲料效率[1-3],因此益生菌和酶制剂作为优质绿色饲料添加剂被广泛用于反刍动物。益生菌通常通过刺激乳酸代谢、补充内源纤维降解酶等方式来达到维持瘤胃稳态,降解原料中纤维素的目的。例如,添加酿酒酵母可刺激瘤胃内细菌生长,为乳酸利用菌和纤维降解菌提供生长条件[4],并通过与乳酸菌竞争可溶性糖,减少乳酸积累,防止瘤胃酸中毒。饲粮添加芽孢杆菌属可产生纤维素酶、淀粉酶、脂肪分解酶和蛋白酶等,提高营养物质消化率和动物生长性能[5-6]。除此之外,反刍动物常用菌种还包括屎肠球菌[7]、植物乳杆菌[8]等。饲用外源性酶如纤维素酶、木聚糖酶和β-葡聚糖酶等可以改善瘤胃发酵及饲粮消化,调节瘤胃微生物活性及微生态平衡,促进对粗饲料消化和提高反刍动物的生产性能[3,9-11]。鉴于反刍动物消化道和所摄入饲料原料的双重复杂性,致使单独添加某种菌或酶对反刍动物作用效果不一,因此,国内外关于菌酶制剂联合使用的研究日趋增多。Lu等[12]在饲粮中添加一定剂量的复合益生菌制剂和含有纤维素酶的多酶复合物,可以调节断奶山羊的生长性能、免疫力、饲料消化率和瘤胃微生物区系。Bennett等[13]和Arce-Cordero等[14]通过体外发酵评价细菌、酶和酵母组合添加对奶牛瘤胃发酵参数和微生物的影响,结果表明添加复合菌酶可改变瘤胃内丁酸浓度和普雷沃氏菌科相对丰度。
目前,我国肉牛饲粮主要以秸秆型全混合日粮(TMR)为主,其中秸秆纤维含量较高,消化率较低,因此,构建菌酶协同高效体系来提高饲料高值化利用,是反刍动物营养与饲料方面关注的重要课题。酿酒酵母、枯草芽孢杆菌、纤维素酶和木聚糖酶等纤维素降解相关菌和酶是常见的饲料添加剂,但是多者复合对反刍动物的研究较少,尤其是在肉牛方面。因此,本试验利用体外产气法评价不同水平复合菌酶制剂对肉牛体外瘤胃发酵特性、纤维素降解酶活性及菌群的影响,并筛选出适宜添加水平,以期为复合菌酶制剂在反刍动物生产中的应用提供理论依据。

1 材料与方法

1.1 试验材料

试验所用TMR精粗比为40:60,其中粗饲料为揉丝玉米秸秆(60.0%),精饲料为玉米破碎料(15.0%)、麸皮(5.0%)、豆粕(6.0%)、向日葵饼(9.0%)、石粉(2.0%)、食盐(1.0%)及多矿预混料(2.0%);其营养水平(干物质基础)为粗蛋白质12.8%,中性洗涤纤维(NDF)43.6%,酸性洗涤纤维(ADF)35.3%。
试验所用复合菌酶制剂包含酿酒酵母(2.13×10¹³ CFU/g)、枯草芽孢杆菌(6.68×1012 CFU/g)以及纤维素酶(92.46 U/L)、β-葡聚糖酶(166.46 U/L)、木聚糖酶(671.11 U/L)和果胶酶(192.87 U/L)。

1.2 试验设计

本试验采用单因素试验设计,根据底物中复合菌酶制剂不同添加水平,将试验分为5组。复合菌酶制剂采用去离子水配制成0.3、0.6、1.2和2.4 mg/mL菌酶混合液,取1 mL分别均匀喷洒在1 g发酵底物(TMR)上,即在TMR中添加0.3(D1组)、0.6(D2组)、1.2(D3组)和2.4 g/kg(D4组)复合菌酶制剂;对照组(CON组)喷洒1 mL去离子水,每组4重复,于39 ℃下进行厌氧体外发酵培养。

1.3 体外发酵

选用3头体重[(440.26±6.96) kg]相近且健康的西门塔尔公牛,按照内蒙古民族大学动物科技学院实验动物福利与伦理委员会批准(编号:20231214)进行饲养试验。试验牛饲喂上述TMR,每天固定时间饲喂,每天饲喂2次,自由采食和饮水。试验当天晨饲前2 h,采用真空瘤胃管(武汉科立博牧业科技有限公司)经口采集3头供体牛的瘤胃液,分别先抽取400 mL舍弃,再分别抽取800 mL,并混合快速转入提前预热、充满二氧化碳(CO2)的保温瓶并盖上瓶盖厌氧保存,迅速带回实验室。
采用4层纱布过滤瘤胃液,将瘤胃液与人工瘤胃缓冲液(参照Menke等[15]方法配制)以1:2比例混合配制成混合人工瘤胃发酵液,期间持续通入CO2。准确称取1 g发酵底物封存在尼龙袋(5 cm×5 cm,300目)中,并置于100 mL发酵瓶中,向每个通入CO2发酵瓶中加入混合人工瘤胃发酵液80 mL,立即拧紧瓶盖,在发酵瓶盖上连接铝箔气体收集袋,然后将发酵瓶转移到39 ℃恒温振荡培养箱(DQHZ-2001A,上海恒一科学仪器有限公司)中,振荡频率设置为140 r/min,进行体外发酵培养。体外发酵装置、底物重量和人工瘤胃缓冲液体积参考包文君等[16]。分别设置6、12、24和48 h共4个取样点。在相同条件下,体外试验共进行3个批次。

1.4 样品采集与指标测定

到取样时间点时,关闭气体收集袋阀门,在恒温摇床中取出发酵瓶,利用注射器抽出各组气体收集袋中所有气体,根据刻度读数测定发酵产气量。另采集10 mL气体于气体收集袋中,用于测定发酵气体中甲烷(CH4)含量,CH4含量采用高效气相色谱仪(TP-2060,北京北分天普仪器技术有限公司)测定,操作参考包文君等[16]的方法。利用便携式pH计测定48 h发酵液pH,将发酵瓶中尼龙袋取出,并轻轻按压出多余发酵液,转移到105 ℃烘箱内烘干至恒重,用于计算干物质降解率。发酵48 h瘤胃液混匀取2份15 mL,于-20 ℃冰箱内保存,一份用于后续瘤胃菌群测序;另一份离心(4 ℃、12 000×g,10 min)后取上清液,用于测定挥发性脂肪酸(VFA)及氨态氮(NH3-N)浓度。
体外干物质降解率根据Liu等[17]的尼龙袋法计算;NDF和ADF含量参考Van Soest等[18]的方法测定;VFA浓度测定采用Wang等[19]的气相色谱法,将样品解冻,离心(4 ℃、12 000×g,10 min)后取上清液,进样气相色谱仪(G2790A,安捷伦,美国)分析;NH3-N浓度参照冯宗慈等[20]报道的方法测定;纤维素酶、β-葡聚糖酶、木聚糖酶和果胶酶活性采用酶联免疫吸附测定(ELISA)试剂盒(江苏酶免实业有限公司)测定。

1.5 瘤胃菌群测序

瘤胃菌群测序采用2bRAD-M技术[21],由上海欧易生物医学科技有限公司完成。

1.5.1 2bRAD-M文库制备

获取美国国家生物技术信息中心(NCBI)参考序列(RefSeq)数据库中的173 165个微生物基因组(包括细菌、真菌和古细菌),并对所有基因组进行电子酶切(16种2b型限制性内切酶),获取特定分类单元下的唯一标签(与该分类单元下其他物种没有重叠)作为物种特异性2bRAD标记,生成2bRAD微生物基因组数据库。

1.5.2 DNA提取与制备

DNA按照制造商的说明由TIANamp Micro DNA试剂盒提取后,采用带有平台特异性条码的引物进行PCR扩增。采用QIAquick PCR纯化试剂盒(Qiagen,德国)纯化PCR产物,然后采用Illumina Nova PE150平台进行测序。

1.5.3 相对丰度计算

将质控后的所有测序2bRAD标签映射到构建好的2bRAD标记数据库,计算每一个物种的Gscore值,筛选Gscore高于阈值5的物种作为候选物种,以此控制假阳性[22]。计算公式如下:
Gscore= S i × t i
式中:Si为样本中映射到物种i的所有2bRAD标记的reads数;ti为样本中映射到物种i的所有2bRAD标记的种类数。
然后,采用以下公式计算样本中每一个物种的相对丰度。
相对丰度= S i / T i i = 1 n S i / T i )
式中:Si为样本中映射到物种i的所有2bRAD标记的reads数;ti为样本中映射到物种i的所有2bRAD标记的种类数。

1.6 数据统计分析

试验数据采用Excel 2021进行整理,然后采用SPSS 22.0软件的混合线性模型进行线性分析。每批次每组中4个重复样品取平均值后用于统计,将分组(n=5)作为固定因子,试验批次(n=3)作为随机因子;2组瘤胃菌群多样性采用独立样本t检验分析。所得结果数据采用“平均值±标准差”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 复合菌酶制剂对体外瘤胃发酵产气参数的影响

表1可知,随着复合菌酶制剂添加水平的提高,各时间点产气量和产气速率均呈上升趋势,CH4产量呈下降趋势。D4组6、12和24 h产气量显著高于CON组、D1组和D2组(P<0.05),与D3组相比无显著差异(P>0.05);D4组48 h产气量与D3组相比差异不显著(P>0.05),但显著高于D1组和CON组(P<0.05)。D3组和D4组6和24 h产气速率显著高于CON组、D1组和D2组(P<0.05),48 h产气速率显著高于CON组和D1组(P<0.05);D4组12 h产气速率显著高于CON组、D1组和D2组(P<0.05),与D3组相比无显著差异(P>0.05)。与CON组相比,各复合菌酶制剂添加组6 h CH4产量均无显著差异(P>0.05),D2组、D3组和D4组12和48 h CH4产量显著降低(P<0.05),D4组24 h CH4产量显著降低(P<0.05)。
表1 复合菌酶制剂对体外瘤胃发酵产气参数的影响

Table 1 Effects of complex bacterial enzyme preparation on gas production parameters of rumen fermentation in vitro

项目
Items
时间
Time/h
组别Groups P
P-value
CON D1 D2 D3 D4
产气量
Gas production/
(mL/g)
6 102.50±2.50c 108.33±2.89b 107.33±1.53b 113.50±1.50a 115.50±1.50a <0.001
12 122.00±1.00d 133.78±2.55c 144.50±8.50b 153.67±7.77ab 162.67±3.06a <0.001
24 179.00±3.61c 183.00±2.65c 194.50±0.50b 203.33±1.53a 204.67±2.31a <0.001
48 202.00±4.00b 204.50±1.50b 209.67±6.43ab 214.00±8.00a 214.50±0.50a 0.040
产气速率
Gas production
rate/(mL/h)
6 17.08±0.42c 18.06±0.48b 17.89±0.26b 18.92±0.25a 19.25±0.25a <0.001
12 10.17±0.08d 11.15±0.21c 12.04±0.71b 12.81±0.65ab 13.56±0.26a <0.001
24 7.46±0.15c 7.63±0.11c 8.10±0.02b 8.47±0.06a 8.53±0.10a <0.001
48 4.21±0.08b 4.26±0.03b 4.37±0.13ab 4.46±0.17a 4.47±0.01a 0.040
CH4产量
CH4 production/
(mL/g)
6 7.59±0.29 7.47±0.68 7.17±1.70 6.26±0.65 6.49±1.05 0.423
12 15.98±0.96a 13.09±1.27b 11.69±1.49bc 10.04±1.78c 9.15±1.03c 0.001
24 18.50±0.92a 18.16±1.04a 16.86±0.49ab 16.65±1.66ab 15.54±0.87b 0.039
48 23.83±1.55a 22.11±1.82ab 21.12±0.54b 20.21±0.96b 21.01±1.13b 0.012

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 复合菌酶制剂对体外瘤胃发酵营养物质降解率的影响

表2可知,各组间6 h干物质降解率均无显著差异(P<0.05);D3组12 h干物质降解率显著高于CON组和D1组(P<0.05),与D2组和D4组相比无显著差异(P>0.05);D3组24和48 h干物质降解率显著高于CON组、D1组和D2组(P<0.05),与D4组相比无显著差异(P>0.05)。D3组和D4组6、12和24 h NDF降解率显著高于CON组、D1组和D2组(P<0.05),且D3组与D4组之间无显著差异(P>0.05);D3组48 h NDF降解率显著高于其他各组(P<0.05),且其他4组间无显著差异(P>0.05)。D3组和D4组各时间点ADF降解率均显著高于CON组、D1组和D2组(P<0.05),且D3组与D4组之间均无显著差异(P>0.05)。
表2 复合菌酶制剂对体外瘤胃发酵营养物质降解率的影响

Table 2 Effects of compound bacterial enzyme preparation on nutrient degradation rate of rumen fermentation in vitro %

项目
Items
时间
Time/h
组别Groups P
P-value
CON D1 D2 D3 D4
干物质降解率
DM degradation rate
6 26.19±4.07 27.34±5.01 31.32±0.96 34.03±1.97 34.61±0.88 0.063
12 35.12±2.40c 37.56±4.80bc 39.77±1.26ab 42.84±3.20a 40.81±0.51ab 0.016
24 47.60±5.29b 47.96±2.56b 48.37±0.19b 54.76±1.05a 50.42±2.71ab 0.033
48 56.25±3.75b 56.55±1.94b 56.73±2.04b 64.97±0.47a 60.64±0.67ab 0.027
NDF降解率
NDF degradation rate
6 8.06±1.75c 10.86±1.69b 12.62±1.18b 17.22±0.43a 16.37±1.68a <0.001
12 15.57±1.12b 17.77±1.06b 17.18±0.40b 20.98±2.22a 20.80±0.80a <0.001
24 25.28±3.45b 28.03±1.29b 31.74±2.58b 37.19±2.31a 38.05±1.94a 0.003
48 41.69±1.61b 45.03±2.55b 42.32±2.44b 51.51±1.31a 45.62±2.18b 0.014
ADF降解率
ADF degradation rate
6 5.34±0.14d 7.13±0.52c 8.52±0.33b 10.37±0.93a 10.26±0.68a 0.044
12 10.10±0.34c 10.71±0.53c 12.87±0.89b 16.06±0.43a 15.56±0.41a <0.001
24 18.08±1.51d 22.14±0.96c 24.67±1.51b 29.64±0.31a 28.31±1.22a <0.001
48 31.17±1.53c 33.84±0.85b 34.68±1.25b 44.74±2.03a 43.69±1.70a 0.014

2.3 复合菌酶制剂对体外瘤胃发酵48 h发酵参数的影响

表3可知,模拟瘤胃发酵48 h时,CON组pH显著高于D2组、D3组和D4组(P<0.05),与D1组相比无显著差异(P>0.05)。D4组NH3-N浓度显著高于CON组、D1组和D2组(P<0.05),与D3组相比无显著差异(P>0.05);D1组和D2组NH3-N浓度显著高于CON组(P<0.05)。各复合菌酶制剂添加组总挥发性脂肪酸(TVFA)浓度显著高于CON组(P<0.05),且D3组TVFA浓度显著高于D1组、D2组和D4组(P<0.05)。随着复合菌酶制剂添加水平的提高,乙丙比呈先升高后降低的变化趋势,D2组乙丙比显著高于其他各组(P<0.05)。D2组丙酸比例显著低于其他各组(P>0.05),其他4组间丙酸比例无显著差异(P>0.05);D2组、D3组和D4组丁酸比例显著高于CON组(P<0.05);D3组异丁酸比例显著低于其他各组(P<0.05);D3组戊酸比例显著低于CON组、D2组和D4组(P<0.05)。
表3 复合菌酶制剂对体外瘤胃发酵48 h发酵参数的影响

Table 3 Effects of complex bacterial enzyme preparation on rumen fermentation parameters at 48 h in vitro

项目
Items
组别Groups P
P-value
CON D1 D2 D3 D4
pH 6.37±0.02a 6.31±0.07ab 6.26±0.03bc 6.24±0.00c 6.22±0.05c 0.002
氨态氮NH3-N/(mg/dL) 10.03±0.08c 10.19±0.01b 10.22±0.02b 10.26±0.01ab 10.29±0.02a <0.001
总挥发性脂肪酸TVFA/(mmol/L) 110.59±0.69d 119.17±1.37bc 121.37±2.59b 129.12±0.13a 118.91±1.25c <0.001
乙丙比Acetate to propionate ratio 2.18±0.05b 2.28±0.03b 2.43±0.13a 2.29±0.04b 2.29±0.03b 0.011
挥发性脂肪酸比例VFA proportion/%
乙酸Acetic acid 55.53±1.09b 57.31±0.26a 57.61±0.61a 57.01±0.36a 56.75±0.24a 0.005
丙酸Propionic acid 25.44±0.19a 25.18±0.46a 23.72±0.99b 24.87±1.01a 24.79±0.18a 0.030
丁酸Butyric acid 12.95±1.03c 13.42±0.74bc 14.22±0.07ab 14.62±0.12a 14.11±0.17ab 0.021
异丁酸Isobutyric acid 1.74±0.21a 1.66±0.10a 1.77±0.14a 1.33±0.21b 1.82±0.03a 0.009
戊酸Valeric acid 4.43±0.19a 2.43±0.13bc 2.68±0.16a 2.17±0.32c 2.53±0.13b <0.001

2.4 复合菌酶制剂对体外瘤胃发酵48 h纤维素降解酶活性的影响

表4可知,D3组和D4组纤维素酶和木聚糖酶活性显著高于CON组、D1组和D2组(P<0.05);各复合菌酶制剂添加组β-葡聚糖酶活性均显著高于CON组(P<0.05),且随着复合菌酶制剂添加水平的提高,β-葡聚糖酶活性也随之提高;D3组果胶酶活显著高于CON组和D1组(P<0.05),与D2组和D4组相比无显著差异(P>0.05)。
表4 复合菌酶制剂对体外瘤胃发酵48 h纤维素降解酶活性的影响

Table 4 Effects of compound bacterial enzyme preparation on cellulose degrading enzyme activity of rumen fermentation at 48 h in vitro U/L

项目
Items
组别Groups P
P-value
CON D1 D2 D3 D4
纤维素酶Cellulase 51.13±3.40d 56.16±2.88c 62.14±0.54b 71.26±3.31a 75.35±1.44a <0.001
β-葡聚糖酶β-glucanase 108.74±1.86c 127.03±8.12b 132.32±5.32ab 137.20±4.40ab 141.46±2.59a <0.001
木聚糖酶Xylanase 332.22±19.64b 351.67±0.00b 365.56±3.93b 454.44±35.36a 460.00±19.64a <0.001
果胶酶Pectinase 121.57±3.21b 122.96±11.81b 135.69±0.98ab 142.87±4.88a 138.24±8.02ab 0.021

2.5 复合菌酶制剂对体外瘤胃发酵菌群的影响

2.5.1 复合菌酶制剂对体外瘤胃发酵菌群alpha多样性的影响

表5可知,D3组Simpson指数显著高于CON组(P<0.05);D3组Shannon指数和Chao1指数高于CON组,但均无显著差异(P>0.05)。
表5 复合菌酶制剂对体外瘤胃发酵菌群alpha多样性的影响

Table 5 Effects of complex bacterial enzyme preparation on microbial alpha diversity of rumen fermentation in vitro

项目Items CON组CON group D3组D3 group PP-value
Shannon指数Shannon index 7.99±0.16 8.17±0.05 0.105
Simpson指数Simpson index 0.98±0.00b 0.99±0.00a 0.022
Chao1指数Chao1 index 3 401.65±107.51 3 438.37±96.95 0.630

2.5.2 复合菌酶制剂对体外瘤胃发酵菌群在门水平上相对丰度的影响

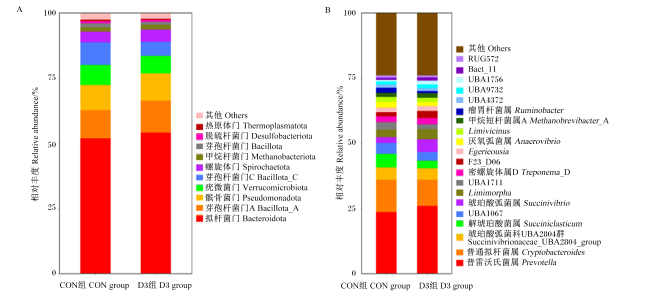
图1-A所示,体外瘤胃发酵菌群在门水平中的优势菌门是拟杆菌门(Bacteroidota)、芽孢杆菌门A(Bacillota_A)、髌骨菌门(Pseudomonadota)和疣微菌门(Verrucomicrobiota)等。与CON组相比,D3组芽孢杆菌门C(Bacillota_C)相对丰度有所降低,但拟杆菌门和芽孢杆菌门_A相对丰度有所提高。
图1 复合菌酶制剂对体外瘤胃发酵菌群组成的影响

Fig.1 Effects of complex bacterial enzyme preparation on microbial community composition of rumen fermentation in vitro

2.5.3 复合菌酶制剂对体外瘤胃发酵菌群在属水平上相对丰度的影响

图1-B所示,体外瘤胃发酵菌群在属水平中的优势菌属为普雷沃氏菌属(Prevotella)、普通拟杆菌属(Cryptobacteroides)、琥珀酸弧菌科UBA2804群(Succinivibrionaceae_UBA2804_group)、解琥珀酸菌属(Succiniclasticum)、UBA1067和琥珀酸弧菌属(Succinivibrio)等。与CON组相比,D3组普雷沃氏菌属和琥珀酸弧菌属相对丰度有所提高,普通拟杆菌属和解琥珀酸菌属相对丰度有所降低。

2.5.4 体外瘤胃发酵菌群差异物种分析

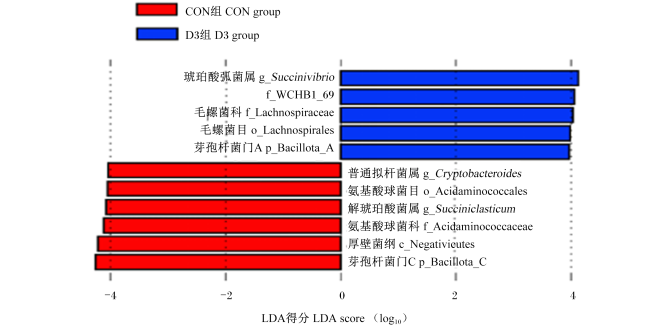
图2所示,采用线性判别分析(LDA)效应大小(LEfSe)分析,以LDA得分≥3.8为判定标准,筛选出2组在不同分类水平上的显著差异物种共11种。其中,D3组有5种,分别为琥珀酸弧菌属、WCHB1_69、毛螺菌科(Lachnospiraceae)、毛螺菌目(Lachnospirales)和芽孢杆菌门A;CON组有6种,分别为普通拟杆菌属、氨基酸球菌目(Acidaminococcales)、解琥珀酸菌属、氨基酸球菌科(Acidaminococcaceae)、厚壁菌纲(Negativicutes)和芽孢杆菌门C。
图2 体外瘤胃发酵菌群LEfSe分析

Fig.2 LEfSe analysis of rumen fermentation bacteria in vitro

2.5.5 体外瘤胃发酵参数与优势菌属相对丰度相关性分析

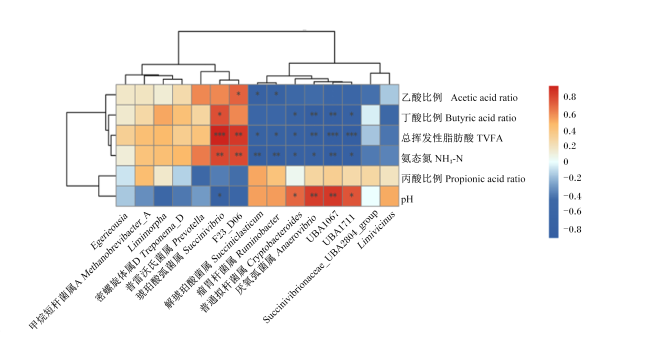
图3所示,体外瘤胃发酵优势菌属相对丰度与发酵参数呈相关性。其中,琥珀酸弧菌属相对丰度与丁酸比例以及TVFA和NH3-N浓度呈显著正相关(P<0.05),与pH呈显著负相关(P<0.05);F23_D06相对丰度与乙酸比例以及TVFA和NH3-N浓度呈显著正相关(P<0.05);解琥珀酸菌属和瘤胃杆菌属(Ruminobacter)相对丰度与乙酸比例以及TVFA和NH3-N浓度呈显著负相关(P<0.05);厌氧弧菌属(Anaerovibrio)、UBA1067、UBA1711和普通拟杆菌属相对丰度与pH呈显著正相关(P<0.05),与丁酸比例以及TVFA和NH3-N浓度呈显著负相关(P<0.05)。
图3 体外瘤胃发酵参数与优势菌属相对丰度相关性分析

*表示显著相关(P<0.05),**表示极显著相关(P<0.01),***表示极显著相关(P<0.001)。

Fig.3 Correlation analysis between rumen fermentation parameters and relative abundances of dominant bacterial genera in vitro

* indicated significant correlation (P<0.05), ** indicated extremely significant correlation (P<0.01), and *** indicated extremely significant correlation (P<0.001).

3 讨论

3.1 复合菌酶制剂对体外瘤胃发酵产气参数和营养物质降解率的影响

体外发酵产气量能在一定程度上反映瘤胃内微生物的发酵状况,与体外干物质降解程度呈正相关[23]。本试验结果表明,在6、12、24和48 h,体外发酵产气量随复合菌酶制剂添加水平的提高呈上升趋势,其中D3组产气量均显著高于CON组,这与Cagle等[24]在饲粮中添加活性干酵母(酿酒酵母)以及Bontà等[25]在饲粮中添加2种不同枯草芽孢杆菌的体外瘤胃发酵产气结果一致。这是因为复合菌酶制剂中的枯草芽孢杆菌可以分泌纤维素酶、木聚糖酶和淀粉酶等,与复合菌酶制剂中的纤维素酶、木聚糖酶等共同作用,可以补充内源性纤维降解酶,有效降解瘤胃饲粮底物,并经过瘤胃微生物发酵分解为乙酸、丁酸和乳酸等,酿酒酵母还促进乳酸代谢[26],为纤维素降解酶提供有利的生存条件。因此,体外发酵产气量随复合菌酶制剂添加水平的提高呈上升趋势,这与体外干物质降解率升高的结果一致。
瘤胃排放CH4可损失反刍动物2%~12%的能量[27],因此,减少CH4产量是提高饲料效率的有效方法。研究表明,饲粮中添加含有纤维素酶等的多酶复合物、枯草芽孢杆菌和酿酒酵母均可以降低瘤胃内CH4的产生[28-30]。本试验中,D3组12、24和48 h CH4产量低于CON组,与上述结果一致,究其原因可能是乙酸生成与产甲烷菌竞争利用氢[31],使得CH4产量下降,这与乙酸比例显著提高的结果一致。
体外法和体内法存在高度相关性,体外干物质降解率与发酵体系中底物被瘤胃微生物降解程度和饲粮被动物消化降解程度呈正相关[32]。饲粮中添加枯草芽孢杆菌和酵母菌可改变饲粮中纤维素结构,提高纤维素酶活性,刺激瘤胃中有益菌的生长,从而提高反刍动物营养物质消化率[33-34]。本试验中,D3组体外瘤胃发酵干物质、NDF和ADF降解率显著高于CON组。有研究报道,饲粮中添加活性干酵母可显著提高干物质、NDF和ADF降解率[35-36]。Pan等[37]利用体外法发酵研究发现,含有枯草芽孢杆菌的直饲微生物提高了10种不同纤维来源饲料的干物质和NDF降解率。孟芳等[38]研究表明,在断奶羔羊饲粮中添加外源性纤维素酶可提高体外干物质降解率,促进瘤胃发酵。此外,木聚糖酶也被证实能降解木质纤维素,提高纤维降解率[39]。这与本试验结果一致,这是因为复合菌酶制剂中的酿酒酵母能为纤维素降解菌提供有利条件,而外源性酶能破坏植物细胞壁的表面结构,增加其孔隙率和比表面积,以便瘤胃微生物的附着和降解,菌酶协同作用可促进饲料降解,从而提高体外干物质、NDF和ADF降解率。

3.2 复合菌酶制剂对体外瘤胃发酵参数的影响

瘤胃pH过高或过低都会影响反刍动物的健康及对饲粮的消化吸收,因此pH是瘤胃稳态的重要指标。本试验中,CON组pH显著高于D3组,这是因为D3组瘤胃内TVFA浓度上升。pH为6.2~6.8是瘤胃微生物作用的适宜范围[40],本试验中pH在6.22~6.37,属于适宜范围,说明复合菌酶制剂中的酿酒酵母能够维持瘤胃pH保持在适宜范围内。NH3-N是蛋白质代谢的中间产物,是瘤胃微生物生长的重要氮源。本试验中,D3组NH3-N浓度显著高于CON组,这与Zhang等[41]的试验结果相似,说明添加适量酵母可能会刺激瘤胃内的微生物分解饲粮中的蛋白质,提高瘤胃中NH3-N浓度。此外,枯草芽孢杆菌除分泌纤维素降解酶外,还可以分泌蛋白酶[6],这可能也是NH3-N浓度升高的原因。
VFA是由瘤胃内碳水化合物发酵产生的可利用终产物,为反刍动物提供大约70%的基础代谢能量需求[42]。乙酸、丙酸和丁酸是瘤胃VFA的主要形式,约占TVFA的95%。本试验中,各复合菌酶制剂添加组乙酸比例显著高于CON组。乙酸是纤维降解的主要产物,添加复合菌酶制剂能够促进瘤胃内纤维素的降解,因此乙酸比例显著升高,这与Li等[43]在饲粮中添加活酵母的研究结果一致。丙酸比例随复合菌酶制剂添加水平的提高先降低后升高,乙丙比则先升高后降低,究其原因,丙酸比例下降可能是低水平复合菌酶制剂抑制了瘤胃内产丙酸菌的相对丰度,导致D2组丙酸比例显著降低;但D3组和D4组丙酸比例又出现上升,这可能是酿酒酵母促进了乳酸利用菌的生长,将乳酸分解为丁酸和丙酸,因此丙酸比例上升[26],同时乙酸比例显著高于CON组,使得乙丙比无显著差异。本试验中,丁酸比例随复合菌酶制剂添加水平的提高而升高,这与Xiao等[44]和Zhu等[45]的研究结果一致。有研究报道,饲粮中添加枯草芽孢杆菌和酿酒酵母能显著提高瘤胃液TVFA浓度[46-47]。本试验中,各复合菌酶制剂添加组TVFA浓度显著高于CON组,与上述结果一致。但也有研究发现,饲粮中添加活酵母和枯草芽孢杆菌能降低瘤胃中TVFA浓度[48-49],由此推测,可能是酵母、枯草芽孢杆菌种类和添加水平及试验动物品种不同,抑制了瘤胃内相关菌群的相对丰度。此外,本试验在酿酒酵母和枯草芽孢杆菌的基础上添加了纤维素降解酶,这也是本试验中TVFA浓度上升的原因。

3.3 复合菌酶制剂对体外瘤胃发酵纤维素降解酶活性的影响

我国肉牛饲粮主要以秸秆为主,因此提高秸秆中纤维素降解率和利用效率尤为重要,提高瘤胃内纤维素降解酶活性是一种有效方法。本试验中,D3组和D4组纤维素酶和木聚糖酶活性显著高于CON组。孟芳等[38]在精料中添加300 000 U/kg外源性纤维素酶发现,该添加水平纤维素酶可提高纤维素酶活性。梁稼烨[50]和Su等[51]研究发现,添加活性干酵母和酵母产品可以提高反刍动物瘤胃内与纤维降解相关酶的活性,包括β-葡萄糖苷酶、木聚糖酶等。枯草芽孢杆菌可以分泌内源性纤维素降解酶,酵母菌可以分泌木聚糖酶[52],提高内源性酶活性,这与本试验结果一致,说明瘤胃内纤维素降解酶活性与复合菌酶制剂的添加水平相关,且外源性酶对内源性酶无抑制作用,能加强酶与底物的结合,延迟瘤胃发酵时间,提高酶结构的稳定性,从而促进纤维物质降解[53-54]

3.4 复合菌酶制剂对体外瘤胃发酵菌群的影响

反刍动物饲粮消化依赖于瘤胃内复杂的微生物群落,瘤胃菌群结构稳定对反刍动物健康和生长具有重要意义。本试验中,D3组体外瘤胃发酵菌群Simpson指数显著高于CON组,这与Gao等[55]的研究结果一致;不过,D3组Chao1指数与CON组相比无显著差异,这说明在饲粮中添加复合菌酶制剂改变了D3组微生物多样性,但未改变其丰富度。同时,CON组和D3组的优势菌门均为拟杆菌门、芽孢杆菌门A等,这与Klevenhusen等[56]的研究结果一致;优势菌属为普雷沃氏菌属、普通拟杆菌属、琥珀酸弧菌科UBA2804群等,表明饲粮中添加复合菌酶制剂不会改变瘤胃优势菌群组成,并能维持瘤胃稳态。
本试验发现,复合菌酶制剂可以显著影响解琥珀酸菌属和琥珀酸弧菌属相对丰度。解琥珀酸菌属可将琥珀酸转化成丙酸,这也可能是解琥珀酸菌属相对丰度与TVFA浓度呈负相关的原因。琥珀酸弧菌属是主要产琥珀酸菌,有研究报道,琥珀酸弧菌属与反刍动物剩余采食量(RFI)呈负相关,即饲料利用率越高的反刍动物瘤胃琥珀酸弧菌属相对丰度越高[57-58],说明琥珀酸弧菌属与饲料效率相关。本试验中,D3组体外干物质、NDF和ADF降解率以及琥珀酸弧菌属相对丰度高于CON组,且琥珀酸弧菌属相对丰度与TVFA和NH3-N浓度呈显著正相关。由此推测,D3组琥珀酸弧菌属相对丰度升高,解琥珀酸菌属相对丰度下降,可能使瘤胃中琥珀酸含量上升,而琥珀酸是三羧酸循环的重要中间体,参与ATP生成,琥珀酸含量增加使得ATP含量上升,从而为反刍动物消化营养物质提供能量支持,显著提高TVFA和NH3-N浓度。不过,本试验并未检测琥珀酸含量,因此需要进一步试验验证。此外,解琥珀酸菌属相对丰度降低可能与酿酒酵母添加水平有关,解琥珀酸菌属主要以淀粉为发酵底物[59],酿酒酵母与解琥珀酸菌属竞争多糖,从而抑制解琥珀酸菌属的增长。
体外发酵试验可以初步了解复合菌酶制剂对反刍动物瘤胃调控的影响,快速筛选出复合菌酶制剂适宜添加水平,但发酵瓶内产气气压能抑制发酵速率和发酵程度[60],不能真实反映体内复合菌酶制剂的调控作用。此外,反刍动物瘤胃复杂的生理结构和瘤胃内容物的理化特性可能使复合菌酶制剂对反刍动物的作用效果不一,因此复合菌酶制剂对反刍动物瘤胃调控机制仍需进一步通过体内试验深入分析。

4 结论

秸秆型TMR在体外发酵条件下,适宜的复合菌酶制剂添加水平能显著提高体外瘤胃发酵干物质、NDF和ADF降解率,提高NH3-N浓度,降低CH4产量,维持瘤胃pH在适宜范围内。复合菌酶制剂能显著提高体外瘤胃发酵纤维素酶、β-葡聚糖酶等酶活性,提高琥珀酸弧菌属相对丰度,降低解琥珀酸菌属相对丰度。综上所述,在体外条件下,复合菌酶制剂适宜添加水平为1.2 g/kg TMR。
[1]
易兰兰, 朱俊红, 程文杰, 等. 植物纤维的降解机制及菌酶协同发酵应用[J]. 动物营养学报, 2024, 36(3):1361-1374.

DOI

YI L L, ZHU J H, CHENG W J, et al. Degradation mechanism of plant fiber and application of synergistic fermentation of bacteria and enzymes[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1361-1374. (in Chinese)

DOI

[2]
BAN Y J, GUAN L L. Implication and challenges of direct-fed microbial supplementation to improve ruminant production and health[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):109.

DOI PMID

[3]
MEALE S J, BEAUCHEMIN K A, HRISTOV A N, et al. Board-invited review:opportunities and challenges in using exogenous enzymes to improve ruminant production[J]. Journal of Animal Science, 2014, 92(2):427-442.

[4]
NEWBOLD C J, WALLACE R J, MCINTOSH F M. Mode of action of the yeast Saccharomyces cerevisiae as a feed additive for ruminants[J]. British Journal of Nutrition, 1996, 76(2):249-261.

[5]
SU Y, LIU C, FANG H, et al. Bacillus subtilis:a universal cell factory for industry,agriculture,biomaterials and medicine[J]. Microbial Cell Factories, 2020, 19(1):173.

[6]
ELSHAGHABEE F M F, ROKANA N, GULHANE R D, et al. Bacillus as potential probiotics:status,concerns,and future perspectives[J]. Frontiers in Microbiology, 2017,8:1490.

[7]
朱振宇, 杨成, 王明根, 等. 屎肠球菌F11.1G菌剂对断奶羔羊生长性能、营养物质表观消化率、屠宰性能、瘤胃发酵和瘤胃微生物区系的影响[J]. 动物营养学报, 2024, 36(5):3143-3155.

DOI

ZHU Z Y, YANG C, WANG M G, et al. Effects of Enterococcus faecium F11.1G on growth performance,nutrient apparent digestibility,slaughter performance,rumen fermentation and rumen microflora of weaned lambs[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):3143-3155. (in Chinese)

[8]
MONTEIRO H F, LELIS A L J, BRANDAO V L N, et al. In vitro evaluation of Lactobacillus plantarum as direct-fed microbials in high-producing dairy cows diets[J]. Translational Animal Science, 2020, 4(1):214-228.

[9]
ARRIOLA K G, OLIVEIRA A S, MA Z X, et al. A Meta-analysis on the effect of dietary application of exogenous fibrolytic enzymes on the performance of dairy cows[J]. Journal of Dairy Science, 2017, 100(6):4513-4527.

DOI PMID

[10]
薛玉洋, 孙浩彬, 王银玲, 等. 外源非淀粉多糖酶复合配比优化及其对体外发酵特性的影响[J]. 动物营养学报, 2022, 34(11):7431-7442.

DOI

XUE Y Y, SUN H B, WANG Y L, et al. Optimization of exogenous complex non-starch polysaccharidases ratio and their effect on in vitro fermentation characteristics[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):7431-7442. (in Chinese)

[11]
冯定远, 左建军. 反刍动物酶制剂改善瘤胃酶菌协同生态体系的理论探索与实践研究[J]. 动物营养学报, 2022, 34(10):6306-6313.

DOI

FENG D Y, ZUO J J. Theoretical exploration and practical study of ruminant enzyme preparation to improve synergistic ecosystem of rumen enzyme and bacteria[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6306-6313. (in Chinese)

DOI

[12]
LU J W, CHEN Z L, CHEN P Y, et al. Dietary potential probiotics and enzymes complex modulates the performance and rumen microbiota in weaned goats[J]. Journal of Applied Microbiology, 2023, 134(2):lxac079.

[13]
BENNETT S L, ARCE-CORDERO J A, BRANDAO V L N, et al. Effects of bacterial cultures,enzymes,and yeast-based feed additive combinations on ruminal fermentation in a dual-flow continuous culture system[J]. Translational Animal Science, 2021, 5(2):txab026.

[14]
ARCE-CORDERO J A, BENNETT S L, LIU T, et al. Combinations of bacterial cultures,exogenous enzymes,and yeast-based feed additives and their impact on ruminal microbiome[J]. Translational Animal Science, 2022, 6(4):txac157.

[15]
MENKE K, RAAB L, SALEWSKI A, et al. The estimation of the digestibility and metabolizable energy content of ruminant feeding stuffs from the gas production when they are incubated with rumen liquor in vitro[J]. The Journal of Agricultural Science, 1979, 93(1):217-222.

[16]
包文君, 郑廷钫, 李倜宇, 等. 不同添加量3-NOP对体外瘤胃发酵甲烷产量及甲烷菌区系的影响[J]. 饲料研究, 2023, 46(16):1-7.

BAO W J, ZHENG T F, LI T Y, et al. Effect of different levels of 3-NOP on methane production and methanogens community by in vitro fermentation[J]. Feed Research, 2023, 46(16):1-7. (in Chinese)

[17]
LIU Y, REN X X, WU H, et al. Steam explosion treatment of byproduct feedstuffs for potential use as ruminant feed[J]. Animals, 2019, 9(9):688.

[18]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[19]
WANG M, WANG R, YANG S, et al. Effects of three methane mitigation agents on parameters of kinetics of total and hydrogen gas production,ruminal fermentation and hydrogen balance using in vitro technique[J]. Animal Science Journal, 2016, 87(2):224-232.

[20]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6):37.

FENG Z G, GAO M. Improvement of the method for determination of ammonia-nitrogen content in rumen fluid by colourimetry[J]. Animal Husbandry And Feed Science, 2010, 31(6):37. (in Chinese)

[21]
WANG S, MEYER E, MCKAY J K, et al. 2b-RAD:a simple and flexible method for genome-wide genotyping[J]. Nature Methods, 2012, 9(8):808-810.

[22]
SUN Z, HUANG S, ZHU P F, et al. Species-resolved sequencing of low-biomass or degraded microbiomes using 2bRAD-M[J]. Genome Biology, 2022, 23(1):36.

DOI PMID

[23]
孙国强, 吕永艳, 张杰杰. 利用体外瘤胃发酵法研究全株玉米青贮与花生蔓和羊草间的组合效应[J]. 草业学报, 2014, 23(3):224-231.

DOI

SUN G Q, LV Y Y, ZHANG J J. A study on the associative effect of whole corn silage-peanut vine and Leymus chinensis by rumen fermentation in vitro[J]. Acta Prataculturae Sinica, 2014, 23(3):224-231. (in Chinese)

[24]
CAGLE C M, BATISTA L F D, ANDERSON R C, et al. Evaluation of different inclusion levels of dry live yeast impacts on various rumen parameters and in situ digestibilities of dry matter and neutral detergent fiber in growing and finishing beef cattle[J]. Journal of Animal Science, 2019, 97(12):4987-4998.

DOI PMID

[25]
BONTÀ V, BATTELLI M, RAMA E, et al. An in vitro study on the role of cellulases and xylanases of Bacillus subtilis in dairy cattle nutrition[J]. Microorganisms, 2024, 12(2):300.

[26]
AMIN A B, MAO S Y. Influence of yeast on rumen fermentation,growth performance and quality of products in ruminants:a review[J]. ANIMAL NUTRITION, 2021, 7(1):31-41.

[27]
ZHANG Z W, CAO Z J, WANG Y L, et al. Nitrocompounds as potential methanogenic inhibitors in ruminant animals:a review[J]. Animal Feed Science and Technology, 2018,236:107-114.

[28]
DONG L F, ZHAO L, LI B W, et al. Dietary supplementation with xylooligosaccharides and exogenous enzyme improves milk production,energy utilization efficiency and reduces enteric methane emissions of Jersey cows[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):71.

[29]
SARMIKASOGLOU E, SUMADONG P, DAGAEW G, et al. Effects of Bacillus subtilis on in vitro ruminal fermentation and methane production[J]. Translational Animal Science, 2024,8:txae054.

[30]
许斌斌. 不同添加剂量酿酒酵母对肉牛肠道甲烷排放及生产性能的影响[D]. 硕士学位论文. 郑州: 河南农业大学,2016:11-23.

XU B B. Effects of different additive amounts of brewer’s yeast on intestinal methane emission and production performance of beef cattle[D]. Master’s Thesis. Zhengzhou: Henan Agricultural University,2016:11-23. (in Chinese)

[31]
TSETEN T, SANJORJO R A, KWON M, et al. Strategies to mitigate enteric methane emissions from ruminant animals[J]. Journal of Microbiology and Biotechnology, 2022, 32(3):269-277.

DOI PMID

[32]
HOLDEN L A. Comparison of methods of in vitro dry matter digestibility for ten feeds[J]. Journal of Dairy Science, 1999, 82(8):1791-1794.

[33]
刘俊斌, 张利平, 宋淑珍. 枯草芽孢杆菌对湖羊胃肠道发育、瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2022, 34(9):5984-5994.

DOI

LIU J B, ZHANG L P, SONG S Z. Effects of Bacillus subtilis on gastrointestinal development,rumen fermentation parameters and microflora of Hu sheep[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5984-5994. (in Chinese)

[34]
MAAMOURI O, BEN SALEM M., The effect of live yeast Saccharomyces cerevisiae as probiotic supply on growth performance,feed intake,ruminal pH and fermentation in fattening calves[J]. Veterinary Medicine and Science, 2022, 8(1):398-404.

[35]
MA J, WANG C, WANG Z S, et al. Active dry yeast supplementation improves the growth performance,rumen fermentation,and immune response of weaned beef calves[J]. Animal Nutrition, 2021, 7(4):1352-1359.

[36]
ASCHALEW N D, ZHANG L Y, WANG Z Y, et al. Effects of yeast culture and oxalic acid supplementation on in vitro nutrient disappearance,rumen fermentation,and bacterial community composition[J]. Frontiers in Veterinary Science, 2023,10:1330841.

[37]
PAN L, HARPER K, QUEIROZ O, et al. Effects of a bacillus-based direct-fed microbial on in vitro nutrient digestibility of forage and high-starch concentrate substrates[J]. Translational Animal Science, 2022, 6(2):txac067.

[38]
孟芳, 刘立山, 郎侠, 等. 外源纤维素酶对断奶羔羊瘤胃体外发酵特性的影响[J]. 动物营养学报, 2020, 32(6):2911-2920.

DOI

MENG F, LIU L S, LANG X, et al. Effects of exogenous cellulose on in vitro rumen fermentation characteristics of weaner lambs[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2911-2920. (in Chinese)

[39]
BAKER J T, DUARTE M E, HOLANDA D M, et al. Friend or foe? Impacts of dietary xylans,xylooligosaccharides,and xylanases on intestinal health and growth performance of monogastric animals[J]. Animals, 2021, 11(3):609.

[40]
杨梓曼, 尚相龙, 陈豪, 等. 热应激对肉牛血清生化指标、瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2022, 34(7):4487-4497.

DOI

YANG Z M, SHANG X L, CHEN H, et al. Effects of heat stress on serum biochemical indexes,rumen fermentation parameters and microflora of beef cattle[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4487-4497. (in Chinese)

[41]
ZHANG X F, DONG X W, WANAPAT M, et al. Ruminal pH pattern,fermentation characteristics and related bacteria in response to dietary live yeast (Saccharomyces cerevisiae) supplementation in beef cattle[J]. Animal Bioscience, 2022, 35(2):184-195.

[42]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[43]
LI Z H, FAN Y, BAI H, et al. Live yeast supplementation altered the bacterial community’s composition and function in rumen and hindgut and alleviated the detrimental effects of heat stress on dairy cows[J]. Journal of Animal Science, 2023,101:skac410.

[44]
XIAO J X, ALUGONGO G M, CHUNG R, et al. Effects of Saccharomyces cerevisiae fermentation products on dairy calves:ruminal fermentation,gastrointestinal morphology,and microbial community[J]. Journal of Dairy Science, 2016, 99(7):5401-5412.

[45]
ZHU W, WEI Z H, XU N N, et al. Effects of Saccharomyces cerevisiae fermentation products on performance and rumen fermentation and microbiota in dairy cows fed a diet containing low quality forage[J]. Journal of Animal Science and Biotechnology, 2017,8:36.

[46]
郭永清, 赵宇飞, 张小宇. 酵母培养物对断奶犊牛生长性能及瘤胃发酵的影响[J]. 饲料研究, 2019, 42(11):10-13.

GUO Y Q, ZHAO Y F, ZHANG X Y. Effect of yeast culture on growth performance and rumen fermentation of weaned calves[J]. Feed Research, 2019, 42(11):10-13. (in Chinese)

[47]
QIAO G H, SHAN A S, MA N, et al. Effect of supplemental Bacillus cultures on rumen fermentation and milk yield in Chinese Holstein cows[J]. Journal of Animal Physiology and Animal Nutrition, 2010, 94(4):429-436.

[48]
THRUNE M, BACH A, RUIZ-MORENO M, et al. Effects of Saccharomyces cerevisiae on ruminal pH and microbial fermentation in dairy cows:yeast supplementation on rumen fermentation[J]. Livestock Science, 2009, 124(1/2/3):261-265.

[49]
WANG Z, HE Z X, BEAUCHEMIN K A, et al. Comparison of two live Bacilus species as feed additives for improving in vitro fermentation of Coreal straws[J]. Animal Scionce Joumnal, 2016, 87(1):27-36.

[50]
梁稼烨. 日粮添加活性干酵母对秦川肉牛瘤胃发酵性能及饲料降解的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2018.

LIANG J Y. Effect of dietary addition of active dry yeast on rumen fermentation performance and feed degradation in Qinchuan beef cattle[D]. Master’s Thesis. Yangling: Northwest A&F University, 2018. (in Chinese)

[51]
SU M C, WANG H H, SHI H B, et al. Yeast products mediated ruminal subenvironmental microbiota,and abnormal metabolites and digestive enzymes regulated rumen fermentation function in sheep[J]. Animals, 2022, 12(22):3221.

[52]
SOHAIL M, BARZKAR N, MICHAUD P, et al. Cellulolytic and xylanolytic enzymes from yeasts:properties and industrial applications[J]. Molecules, 2022, 27(12):3783.

[53]
BEAUCHEMIN K A, COLOMBATTO D, MORGAVI D P, et al. Use of exogenous fibrolytic enzymes to improve feed utilization by ruminants[J]. Journal of Animal Science, 2003, 81(14_suppl_2):E37-E47.

[54]
宋桂经. 微生物酶饲料添加剂与加酶饲料和酶化饲料[J]. 中国饲料, 1996(9):17-19.

SONG G J. Microbial enzyme feed additives with enzyme-enriched and enzyme-enriched feeds[J]. China Feed, 1996(9):17-19. (in Chinese)

[55]
GAO K, GENG C Y. Alterations in the rumen bacterial communities and metabolites of finishing bulls fed high-concentrate diets supplemented with active dry yeast and yeast culture[J]. Frontiers in Microbiology, 2022,13:908244.

[56]
KLEVENHUSEN F, PETRI R M, KLEEFISCH M T, et al. Changes in fiber-adherent and fluid-associated microbial communities and fermentation profiles in the rumen of cattle fed diets differing in hay quality and concentrate amount[J]. FEMS Microbiology Ecology, 2017, 93(9):fix100.

[57]
ZHANG Y K, ZHANG X X, LI F D, et al. Characterization of the rumen microbiota and its relationship with residual feed intake in sheep[J]. Animal, 2021, 15(3):100161.

[58]
HERNANDEZ-SANABRIA E, GOONEWARDENE L A, WANG Z Q, et al. Impact of feed efficiency and diet on adaptive variations in the bacterial community in the rumen fluid of cattle[J]. Applied and Environmental Microbiology, 2012, 78(4):1203-1214.

[59]
AN D D, DONG X Z, DONG Z Y. Prokaryote diversity in the rumen of yak (Bos grunniens) and Jinnan cattle (Bos taurus) estimated by 16S rDNA homology analyses[J]. Anaerobe, 2005, 11(4):207-215.

[60]
VINYARD J R, FACIOLA A P. Unraveling the pros and cons of various in vitro methodologies for ruminant nutrition:a review[J]. Translational Animal Science, 2022, 6(4):txac130.

文章导航

/