综述

多酚类化合物调控畜禽肉品质的研究进展

  • 王雅宁 ,
  • 牛晓雨 ,
  • 邢媛媛 ,
  • 李大彪 , *
展开
  • 内蒙古农业大学动物科学学院,内蒙古自治区高校动物营养与饲料科学重点实验室,呼和浩特 010018
* 李大彪,教授,博士生导师,E-mail:

王雅宁(2000—),女,内蒙古呼和浩特人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-11-07

  网络出版日期: 2025-05-14

基金资助

内蒙古自治区自然科学基金项目(2023MS03023)

内蒙古自治区教育厅一流学科科研专项(YLXKZX-NND-007)

内蒙古自治区直属高校基本科研业务费(BR22-13-13)

Research Progress on Regulation of Livestock and Poultry Meat Quality by Polyphenolic Compounds

  • WANG Yaning ,
  • NIU Xiaoyu ,
  • XING Yuanyuan ,
  • LI Dabiao , *
Expand
  • Key Laboratory of Animal Nutrition and Feed Science at University of Inner Mongolia Autonomous Region, College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
* professor, E-mail:

Received date: 2024-11-07

  Online published: 2025-05-14

摘要

多酚类化合物作为一种绿色饲料添加剂,可以调节肌肉理化性质,改善脂肪酸和氨基酸组成,抑制肉类脂质和蛋白质氧化,同时能够促进肌纤维类型的转化。多酚类化合物的抗氧化性以及对脂质代谢、肌纤维类型转化相关基因的调控在一定程度上解释了多酚类化合物调控畜禽肉品质的机理。本文综述了多酚类化合物调控畜禽肉品质的作用及可能机制,以期为多酚类化合物在畜禽生产上的应用提供理论参考。

本文引用格式

王雅宁 , 牛晓雨 , 邢媛媛 , 李大彪 . 多酚类化合物调控畜禽肉品质的研究进展[J]. 动物营养学报, 2025 , 37(5) : 2887 -2899 . DOI: 10.12418/CJAN2025.241

Abstract

As a green feed additive, polyphenolic compounds have the capabilities to modulate the physicochemical attributes of muscle tissue, optimize the fatty acid and amino acid profiles, suppress lipid and protein oxidation within meat, and facilitate the transition of muscle fiber types. The antioxidant properties of polyphenolic compounds, along with their capacity to regulate genes pertinent to lipid metabolism and muscle fiber transformation, may partially elucidate the underlying mechanisms by which polyphenolic compounds enhance the quality of meat from livestock and poultry. This paper reviews the role and possible mechanism of polyphenolic compounds in regulating the meat quality of livestock and poultry, in order to provide theoretical reference for the application of polyphenolic compounds in livestock and poultry production.

肉类营养物质丰富,可以提供人体所需的优质蛋白质、脂肪等营养素。但是,肉类在保存和销售过程中极易发生脂质、蛋白质氧化等现象,影响肉的风味、口感及营养价值。因此,寻找天然、安全的抗氧化剂来改善肉品质相关指标,才能满足消费者对健康、安全肉类产品的需求。多酚类化合物为植物次生代谢产物,具有多个酚羟基,化学性质活泼,易被氧化。根据其结构主要分为以下几类:1)黄酮类,存在于多种果蔬谷物中,包括黄酮、黄酮醇、二氢黄酮、二氢黄酮醇、异黄酮等;2)酚酸类,分布于植物各部位,如羟基苯甲酸中的没食子酸、羟基肉桂酸中的阿魏酸和绿原酸;3)花色苷类,常见于颜色鲜艳的蔬果,如花青素;4)其他类,如茶叶、葡萄皮中的单宁,油籽、谷物中的木脂素。多酚类化合物具有抗氧化、抗菌、抗癌和抗炎等多种生物活性[1-2],已有研究发现,将多酚类化合物添加到畜禽饲粮中可有效改善肉类产品的理化性质[3],提高肉的氧化稳定性[4],调控肉的脂肪酸和氨基酸组成[5];同时,多酚类化合物对脂质代谢及肌纤维类型转化也具有潜在的调节作用[6-7]。本文就多酚类化合物对畜禽肉品质的影响及其在抗氧化、脂质代谢、肌纤维类型转化等方面的调控进行了综述。

1 多酚类化合物对畜禽肉品质的影响

1.1 多酚类化合物对肌肉理化性质的影响

1.1.1 保持肉色

色泽是衡量肉类新鲜程度和营养价值的一个重要指标,主要取决于肌红蛋白(myoglobin,Mb)含量及其氧化还原状态,Mb本身呈暗红色,与氧结合生成氧合肌红蛋白,呈消费者喜爱的鲜红色,随着贮藏时间延长,Mb过度氧化生成高铁肌红蛋白(methemoglobin,MMb),呈现出消费者排斥的棕褐色[8]。肌肉中红度(a*)值和黄度(b*)值的变化可以描述肉色从红色变为棕色的过程。Luciano等[9]研究发现,在羔羊饲粮中添加8.9%的白坚木单宁可提高高氧环境下冷藏14 d内羊肉的a*值,降低b*值,减少MMb的形成。Natalello等[10]研究发现,利用200 g/kg石榴副产物(富含多酚类化合物)替代羔羊饲粮中部分大麦和玉米时,生肉储存7 d或熟肉储存4 d后,可抑制羊肉贮藏期MMb的形成,这提示在动物饲粮中加入多酚类化合物可以维持肉类在冷藏期间的肉色稳定性。由此可见,多酚类化合物在稳定肉色方面能发挥一定的作用,可以作为一种有效的护色剂添加到动物饲粮中。

1.1.2 提高pH

pH也是影响肉品质的重要指标之一,与屠宰后肌糖原酵解速率有关。动物屠宰后短时间内肌肉pH在6~7,随着时间推移,肌肉中的糖原发酵产生乳酸,乳酸和ATP水解释放出的氢离子(H+)不断积累,使肌肉pH下降到5.7左右。张悦等[11]研究发现,在生长育肥猪饲粮中添加250 mg/kg葡萄籽原花青素,可显著提高背最长肌pH24 h,表明葡萄籽原花青素能降低肌肉糖酵解速率,维持肌肉pH稳定。Zhang等[12]研究发现,在育肥猪饲粮中添加300或600 mg/kg白藜芦醇可以提高育肥猪机体的抗氧化能力,降低糖酵解潜能及乳酸脱氢酶活性,并显著提高肌肉pH和肉色a*值。这提示,在动物饲粮中添加多酚类化合物可以调节糖酵解过程中关键酶的活性,进而缓解因肌糖原酵解所造成的肌肉pH快速下降。

1.1.3 改善系水力(water holding capacity,WHC)

WHC是指肌肉在受到外力作用时的保水能力。WHC通常通过失水率、滴水损失和熟肉率来衡量。肌肉失水率和滴水损失与WHC成反比,WHC越强代表肌肉中可溶性营养成分越不易流失,肌肉营养价值越高。Wang等[13]在湖羊饲粮中添加板栗单宁后发现,其背最长肌的WHC和pH24 h随着板栗单宁添加水平的增加呈线性增加趋势。事实上,肌肉pH与WHC密切相关,肌肉pH升高,可增加肌肉蛋白质对水分的束缚能力,维持肌肉细胞膜的稳定,提高肌肉的WHC。

1.1.4 增加嫩度

嫩度是评定肉品质优劣的常用指标,可以反映肌肉内部结构。剪切力是评定肉品嫩度的指标。剪切力越低,肌纤维直径越小,肉品越嫩。齐明江等[14]研究发现,在滩羊饲粮中添加2和4 g/kg栗木单宁均可降低羊肉的剪切力,增加其嫩度。Xu等[15]研究发现,在育肥猪饲粮中添加200 mg/kg原花青素可降低其背最长肌的剪切力,改善猪肉肉质。然而,唐青松等[16]在肉鸡饲粮中添加100和200 mg/kg坚木缩合单宁后发现,其对鸡肉的剪切力无显著影响。上述研究结果的差异可能是由于试验条件、动物品种和年龄等因素的不同而引起的。
综合上述,多酚类化合物在改善畜禽肌肉理化性质方面具有一定的潜力。

1.2 多酚类化合物对肌肉营养价值的影响

1.2.1 改善脂肪酸组成

肌肉中脂肪酸组成不仅会影响肉的风味和色泽,而且会影响肉的嫩度及氧化稳定性,进而影响肉品质。研究发现,饱和脂肪酸(saturated fatty acid,SFA)和n-6多不饱和脂肪酸(poly-unsaturated fatty acid,PUFA)含量过高会影响机体的胆固醇代谢,增加患心血管疾病的风险,而n-3PUFA与人类健康相关,有助于预防心脑血管疾病,降低血脂水平[17]。Xu等[5]研究发现,饲粮中添加400 mg/kg苹果多酚可显著增加猪肉中n-3PUFA含量,提高猪肉的营养价值。在单胃动物中,饲粮中脂肪酸分布的差异会直接导致肉中脂肪酸组成的差异,而反刍动物对于脂肪酸组成的调控主要来自于瘤胃微生物的氢化反应。曾有研究报道,多酚类化合物能够通过调节相关瘤胃微生物,影响生物氢化过程[18]。Girard等[19]研究发现,用富含缩合单宁的青贮豆科植物饲喂羔羊,能够显著提高羊肉中n-3PUFA含量,上调PUFA/SFA的比例,但会使肌内脂肪含量显著降低。齐明江等[14]在研究中发现,羊肉PUFA含量随着栗木单宁(2~4 g/kg)添加水平的增加而增加,其中与羊肉风味相关的C18∶1n9c含量有升高趋势,推测栗木单宁具有调控羊肉风味的潜力。Wang等[13]研究发现,饲粮中补充3和6 g/kg的板栗单宁对湖羊肉脂肪酸组成无显著影响,可能是因为板栗单宁添加水平较低,对大多数瘤胃微生物群没有显著影响。上述研究结果提示,饲粮中添加多酚类化合物可以优化肉中脂肪酸组成,这可能源于其对抗氧化及脂质代谢相关基因表达的影响。胆固醇是动物细胞膜的重要组成部分,同时与心脑血管疾病的发生密切相关。控制饮食中的胆固醇摄入对于预防心脑血管疾病非常重要。已有研究表明,在育肥猪饲粮中添加400和800 mg/kg苹果多酚可以降低猪肉胆固醇含量,为人类提供低胆固醇猪肉[5]。Menci等[20]研究发现,在饲粮中添加10 g/kg塔拉水解单宁,可降低猪肉中胆固醇含量,但降低幅度较小,对肉的营养价值无显著影响。
综上可知,多酚类化合物对肉中脂肪酸组成和胆固醇含量的影响具有不确定性,这可能与畜禽的种类、饲粮营养成分、饲喂天数和剂量等因素有关。值得注意的是,在生产过程中利用多酚类化合物调控脂肪酸组成时,可能会对动物肌内脂肪含量以及生长性能等产生负面影响,需进一步研究。

1.2.2 改善氨基酸组成

氨基酸是构成蛋白质的基本单元,其种类、含量和比例对肌肉的营养价值和风味起着决定性作用。甘氨酸、天冬氨酸、谷氨酸等风味氨基酸对整体肉类风味具有重要贡献。云艳虹[21]研究表明,在海南黑山羊饲粮中添加20 mg/kg葡萄籽原花青素可以极显著提高其背最长肌中组氨酸含量,不同程度上调必需氨基酸(essential amino acid,EAA)、总氨基酸以及甜味氨基酸含量,下调苦味氨基酸含量。Xu等[5]研究发现,在育肥猪饲粮中添加800 mg/kg的苹果多酚可显著提高猪肉中组氨酸和异亮氨酸含量,且EAA和风味氨基酸占比也显著增加。组氨酸在维持机体正常的生长发育和新陈代谢方面至关重要,且对动物的抗氧化能力可能有积极作用。氨基酸转运载体溶质载体家族(solute carrier family,SLC)是一类介导氨基酸跨膜转运的功能性蛋白,能够促进蛋白质的合成并维持其正常的生理功能。氨基酸经肠道吸收入血后沉积进入肌肉的这一过程需在SLC的协助下完成。有研究发现,多酚类化合物可能通过影响不同部位SLC的表达来影响肌肉中氨基酸组成。Liu等[22]在仔猪饲粮中添加400 mg/kg木兰醇后发现,其肠道中SLC1A5、SLC7A1等特定转运载体的mRNA表达量显著增加。徐小蛟[23]在研究中也得到相似的结果,在育肥猪饲粮中添加0.8 g/kg的苹果多酚可显著增加其背最长肌中SLC7A1、SLC1A2、SLC7A2和SLC7A7的mRNA表达量,特异性促进各类氨基酸的转运和在肌肉中的沉积。
综上可知,多酚类化合物可通过增加肌肉中EAA和风味氨基酸比例、促进SLC的表达,进而改善氨基酸组成,提高畜禽肉类的营养价值。

1.3 多酚类化合物对肌肉氧化稳定性的影响

1.3.1 延缓脂质氧化

氧化现象被认为是影响肉品质的主要因素之一,因为它决定了肉的保质期和感官属性,其中脂质氧化会影响肉的气味、风味、色泽以及营养价值。一般通过样品中硫代巴比妥酸反应产物(thiobarbituric acid reactivesubstances,TBARS)浓度表示其脂质氧化程度。TBARS值代表肉品中脂质氧化产物的含量,其中丙二醛(malondialdenyde,MDA)为主要物质,与肉类中酸败异味有关。Menci等[20]在育肥猪饲粮中添加10 g/kg塔拉水解单宁后,发现肉中MDA含量与对照组相比有下降趋势,且当肉样经过烹饪或催化后,2组肉样的TBARS值均随着贮藏时间的延长呈线性增加,但添加塔拉水解单宁的试验组中TBARS值显著低于对照组。刘洪波等[4]的研究也发现,在山羊饲粮中添加12.5%富含单宁的沙参和刺槐,可以增强羊肉在冷藏条件下的氧化稳定性,降低屠宰后羊肉的氧化状态。这说明多酚类化合物可有效缓解畜禽肌肉的脂质氧化。富含PUFA的肉类具有调节血脂、降低血液黏稠度、增强机体免疫力等作用,对人体健康有利。生产实践中通常利用营养调控手段干扰肉中脂肪酸分布,以期提高肉产品中PUFA含量,但是随着肉中PUFA含量的增加,可能会加剧脂质氧化。Natalello等[10]研究发现,用200 g/kg石榴副产物替代羔羊饲粮中部分大麦和玉米时,羔羊肌肉中PUFA的含量显著升高,对脂质氧化的敏感性也随之升高,但肉类的货架期并未减少,相反在生肉中检测到TBARS值减少,后续检测发现石榴副产物组肉中维生素E含量高于对照组,其原因可能是石榴副产物中的维生素E(α-生育酚含量:对照组6.42 mg/d、石榴副产物组14.8 mg/d)与多酚类化合物在肠道中发挥抗氧化作用,保护了更多的维生素E等抗氧化物质被吸收,从而延缓了脂质氧化。此外,有报道称,不仅可以通过在畜禽饲粮中添加多酚类化合物来抑制肉中脂质氧化,还可以直接将其添加到肉类产品中,同样可以提高肉类产品的脂质氧化稳定性,抑制有害微生物生长,延长货架期[24]

1.3.2 延缓蛋白质氧化

蛋白质氧化是影响肉品质的另一重要因素。研究发现,肌肉中蛋白质氧化会引发肉品质发生劣变,降低肉的保水性[25]、营养价值[26]及嫩度[27]等肉品质相关指标。肌肉中的蛋白质在受到氧化损伤时,氨基酸肽链会断裂生成羰基衍生物,因此蛋白质羰基化可作为蛋白质氧化的一个重要指标,羰基含量越高表示蛋白质氧化程度越高[28]。肌肉中的PUFA、亚铁血红素、金属离子和过氧化氢(H2O2)等会通过促进自由基的形成,导致蛋白质氧化[29]。多酚类化合物可通过增强机体的抗氧化状态,降低PUFA和Mb的氧化程度,间接调控肉中蛋白质的氧化。Luciano等[30]研究发现,饲粮中添加8.96 g/kg的白坚木单宁可提高有氧条件下储存7 d的羊肉的抗氧化状态,保护Mb免受氧化。Gravador等[31]研究发现,利用24%和35%柑橘干果肉(富含多酚类活性物质)部分替代饲粮中大麦饲喂羔羊时,羊肉中蛋白质自由基的积累和羰基化合物的形成显著减少,抑制了肉类蛋白质的氧化。此外,脂质氧化与蛋白质氧化相互影响,且脂质氧化要优先于蛋白质氧化。在脂质和蛋白质介导的氧化反应中,更多的是脂质氧化产物及中间产物与蛋白质的氨基酸发生反应,使得羰基积累量增加,引起蛋白质氧化,且蛋白质发生氧化的程度也会随着脂质发生氧化程度的增加而增加[32]。Tayengwa等[33]研究发现,在安格斯公牛饲粮中添加150 g/kg的葡萄渣后,其肉中脂质氧化产物含量显著降低,且羰基含量也显著降低。这提示,多酚类化合物可以通过减少肉中脂质氧化产物的形成,从而减少蛋白质氧化的发生[34]

1.4 多酚类化合物对肌纤维类型转化的影响

骨骼肌由不同类型的肌纤维组成,肌纤维的类型与肉品质密切相关。肌纤维可以根据肌球蛋白(myosin heavy chain,MyHC)类型的不同分为慢肌纤维(Ⅰ型)和快肌纤维(Ⅱa型、Ⅱx型、Ⅱb型)。其中MyHCⅡb以糖酵解供能为主,而MyHCⅠ和MyHCⅡa以有氧氧化供能为主。骨骼肌中慢肌纤维占比越高,代表肉品质越好。肌纤维类型在营养、环境、运动等因素的影响下,可以相互转化。多酚类化合物能够增加肌纤维密度、减小肌纤维直径和横截面积、改变肌纤维类型,从而改善肉品质。Zhou等[7]在研究饲粮中添加0.8 g/kg杜仲叶多酚对育肥猪肉品质的影响时发现,杜仲叶多酚可通过上调MyHCⅠ mRNA的表达,下调MyHCb mRNA的表达,以及增加肌纤维密度、缩小肌纤维直径来改善肉品质。Xu等[15]研究发现,饲粮中添加200 mg/kg原花青素可促进猪肉中MyHCⅠ mRNA和蛋白的表达,增加慢肌纤维百分比,同时降低猪肉剪切力。然而,也有研究提出,育肥猪饲粮中添加1或5 g/kg鹧鸪茶超微粉(富含多酚类化合物)可通过抑制MyHCxMyHCb mRNA的表达降低其背最长肌肌纤维直径,但同时MyHCa mRNA的表达也受到抑制,后续检测发现鹧鸪茶超微粉对线粒体生物发生和功能具有负面作用,推测可能与肌肉线粒体发生和功能有关[35]。有研究报道,改善线粒体生物发生和功能可诱导糖酵解型肌纤维向氧化型肌纤维转化[36]
综上可知,多酚类化合物可以促进肌纤维类型由糖酵解型转化为氧化型,但可能因来源、添加量及物种之间的差异,影响其对肌纤维类型转化的作用。

2 多酚类化合物对肉品质的调控机理

2.1 多酚类化合物对肌肉抗氧化能力的影响

2.1.1 清除自由基

自由基是一种能够独立存在,具有未配对电子的活性化学物质,它可以是原子、分子或基团。生物体系所存在的自由基主要是氧自由基,是活性氧(reactive oxygen species,ROS)的重要组成部分。ROS包括超氧阴离子自由基、羟自由基(·OH)、H2O2等。细胞内自由基的水平是一个动态平衡的过程,适量的自由基对细胞的正常代谢和功能发挥着重要作用,但当细胞中自由基浓度过高,会直接损害细胞,引起DNA羟基化、蛋白质变性、脂质过氧化,最终导致细胞凋亡[37]。多酚类化合物的酚羟基中的邻位酚羟基极易被氧化,且有较强捕捉ROS等自由基的能力,因此能够清除自由基和淬灭ROS[38]。相关研究发现,多酚类化合物的抗氧化活性与其浓度以及分子质量密切相关,通常高浓度和高分子质量的多酚类化合物因携带更多羟基而具备更强的自由基清除能力,但过高的浓度和分子质量也可能会对氧化稳定性造成负面影响[39]。此外,多酚类化合物与其他物质之间可能存在协同抗氧化作用。研究表明,植物多糖与多酚类化合物复配后对体内自由基的清除效果与单一成分相比更加有效[40]。维生素C与多酚类化合物之间也存在协同作用,维生素C与茶多酚组合可以终止自由基链式反应,从而抑制油脂过度氧化[41]

2.1.2 螯合金属离子

铁、铜等金属离子可以催化H2O2等生成强氧化性的·OH,从而引发脂质和蛋白质氧化。多酚类化合物作为氢供体可以与金属离子发生螯合作用,减少·OH的生成,抑制脂质氧化[42]。此外,多酚类化合物也可通过螯合金属离子来抑制蛋白质羰基化,减少蛋白质氧化的发生。例如,Xu等[43]研究发现,表没食子儿茶素没食子酸酯可以通过螯合铁离子来抑制蛋白质羰基化。因此,多酚类化合物是一种良好的氧化抑制剂,可以抑制氧化反应的发生。

2.1.3 提高抗氧化酶活性

过氧化氢酶(catalase,CAT)、超氧化物歧化酶(superoxide dismutase,SOD)和谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)均是机体内的抗氧化酶,能够清除氧自由基,减少脂质氧化损伤。总抗氧化能力(total antioxidant capacity,T-AOC)是评估动物机体抗氧化防御系统整体功能的一项综合指标。伏志奇等[44]研究表明,在狮头鹅饲粮中添加500或1 000 mg/kg茶多酚能够显著提高胸肌和腿肌中总超氧化物歧化酶(total superoxide dismutase,T-SOD)活性。Zhang等[45]研究发现,在育肥猪饲粮中添加200 mg/kg姜黄素可显著提高肌肉中CAT、SOD活性,改善肌肉的氧化还原能力,提高猪肉品质。丁鑫[46]研究表明,在湖羊饲粮中添加0.3%的栗木单宁可以显著提高肌肉中GSH-Px、SOD、CAT活性及T-AOC,缓解脂质过氧化。多酚类化合物不仅能增加肉中的抗氧化酶活性,还可增加血液、脏器中抗氧化酶的活性及T-AOC[14]。综上可知,在动物饲粮中添加多酚类化合物可通过提高肌肉、血液以及脏器中抗氧化酶活性,从而提高肉在加工及贮藏过程中的氧化稳定性。

2.1.4 抑制氧化应激相关信号通路

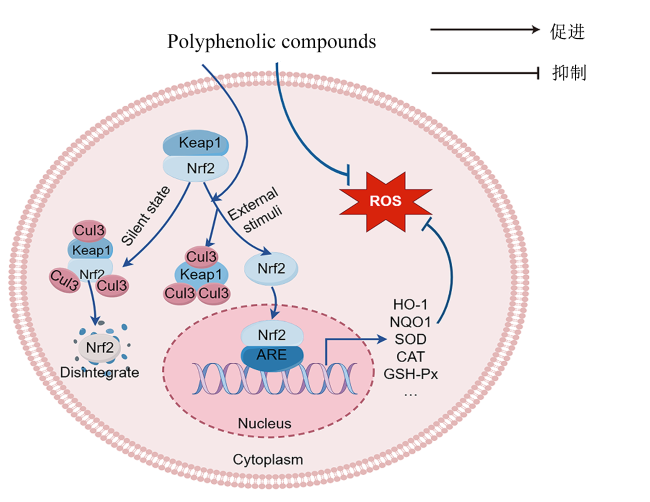
Kelch样ECH关联蛋白1(Kelch-like ECH-associated protein 1,Keap1)/核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)/抗氧化反应元件(antioxidant response element,ARE)信号通路是细胞抵御内/外源性氧化应激的重要途径。在静默状态下,Keap1与Nrf2在细胞质中结合,Nrf2在泛素连接酶cullin3(Cul3)的作用下不断地泛素化并随着蛋白酶体降解,进入被抑制状态[47]。当机体发生氧化损伤时,Keap1构象会发生变性并与Nrf2解离,随后Nrf2易位到核内二聚化,与ARE区域结合,激活下游血红素加氧酶-1(heme oxygenase-1,HO-1)、γ-谷氨半胱氨酸合成酶(γ-glutamyl cysteine synthetase,γ-GCS)、SODCAT等多种抗氧化酶和Ⅱ相解毒酶基因的转录,进而调节抗氧化酶活性,以维持体内氧化还原平衡,保护细胞免受氧化损伤[48]。多酚类化合物可作为Nrf2的激活剂,阻断Keap1对Nrf2的抑制作用,上调Nrf2表达,触发Nrf2易位到核内与ARE结合,发挥抗氧化活性。李绮丽[49]研究发现,莲子皮缩合单宁可有效激活Nrf2/ARE信号通路,提高抗氧化相关基因的表达。潘鹏等[50]研究发现,生长猪饲粮中添加400和600 mg/kg的白藜芦醇能够激活Keap1/Nrf2信号通路,提高肌肉组织的抗氧化能力。由此推测,多酚类化合物可能通过作用于Keap1/Nrf2/ARE信号通路,诱导抗氧化酶的基因和蛋白表达,提高动物机体的抗氧化能力,这对于改善肉品质具有重要意义。
综上可知,多酚类化合物作为天然抗氧化剂,可以有效清除体内氧自由基,螯合金属离子,激活Keap1/Nrf2/ARE信号通路,诱导抗氧化酶基因的表达,提高机体抗氧化能力,延缓肌肉脂质和蛋白质氧化(图1),改善肉品质。
图1 多酚类化合物对抗氧化途径的调节作用(Figdraw绘制)

Polyphenolic compounds :多酚类化合物;Silent state:静默状态;External stimuli:外部刺激;Disintegrate:分解;Nucleus:细胞核;Cytoplasm:细胞质;ROS:活性氧 reactive oxygen species;HO-1:血红素加氧酶-1 heme oxygenase-1;NQO1:NAD(P)H:醌氧化还原酶1 NAD(P)H:quinone oxidoreductase 1;SOD:超氧化物歧化酶 superoxide dismutase;CAT:过氧化氢酶 catalase;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;Keap1:Kelch样ECH关联蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;ARE:抗氧化反应元件 antioxidant response element。

Fig.1 Regulatory effect of polyphenolic compounds on antioxidant pathways (drawn by Figdraw)

2.2 多酚类化合物对肌肉脂肪酸代谢的影响

2.2.1 调节过氧化物酶体增殖物激活受体(peroxisome proliferators-activated receptors,PPARs)

PPARs是脂类代谢关键调控因子之一,已知的PPARs有3种亚型,分别为PPARα、PPARβ和PPARγ,在不同的组织中发挥作用[51]。PPARα在肝脏组织中高度表达,能够上调脂肪酸转运蛋白,加速长链脂肪酸(long-chain fatty acids,LCFA)进入肝脏;同时,其能够活化肉碱棕榈酰转移酶-1(carnitine palmitoyl transferase-1,CPT-1)的启动子,促进脂肪酸β氧化。PPARβ和PPARγ分别在肠道和脂肪组织中有较高含量,PPARγ是许多脂肪合成基因的关键转录调节因子,在脂肪细胞增殖和分化过程中发挥重要作用,脂质累积的过程往往伴随着PPARγ基因过度表达[52]。相关研究表明,多酚类化合物可以在分子水平上调脂肪酸氧化基因,抑制脂肪酸生成基因,降低脂质合成。例如,Song等[53]在研究中发现,给小鼠灌服100 mg/kg BW猕猴桃多酚后,可下调参与脂肪合成关键基因的表达,上调PPARα等脂肪酸氧化相关基因的表达,促进脂肪酸β氧化;侯海瑞[54]研究发现,在饲粮中分别添加10%、15%和20%的青贮桑叶(富含多酚类化合物)可显著降低山羊皮下脂肪和肝脏中PPARγ的mRNA表达量。此外,多酚类化合物的抗氧化特性能够抑制PUFA氧化,而长链n-3PUFA对于PPARs具有重要的调节作用[55],推测多酚类化合物可能通过保护PUFA,从而调控PPARs来影响脂类代谢相关基因的表达。同时,PPARα的激活可降低细胞内自由基水平,抑制炎症相关信号通路[56],多酚类化合物通过调节PPARα,可以减轻由脂质过度积累引起的脂质代谢紊乱和炎症反应。
结合上述研究结果,推测多酚类化合物可以通过直接或者间接的方式影响PPARs的功能,进而调控肌肉脂肪酸代谢。

2.2.2 调节脂肪酸代谢酶相关基因

动物机体可通过调节脂肪酸代谢酶的活性和基因的表达来控制肌内脂肪含量,进而影响肉的感官指标。脂肪酸合成酶(fatty acid synthase,FASN)是脂肪酸从头合成的关键酶,直接调控脂肪合成过程,控制能量供应和脂肪生成之间的平衡。FASN能够催化乙酰-辅酶A(acetyl-coenzyme A)、丙二酰-辅酶A(malonyl-coenzyme A)向脂肪酸转化,但过度表达会使动物体内产生大量多余脂肪酸并酯化转为脂肪,造成脂肪沉积。Song等[53]研究发现,给小鼠灌服100 mg/kg BW的猕猴桃多酚后可抑制FASN及脂肪生成相关基因的表达,减少脂质积累。
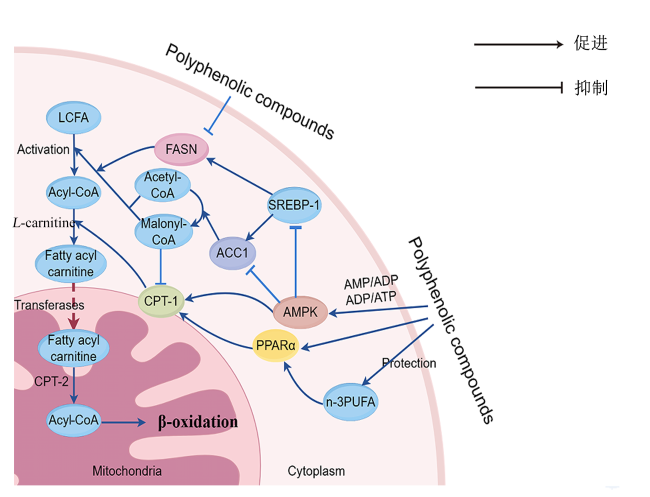
乙酰-辅酶A羧化酶(acetyl-coenzyme A carboxylase,ACC)是参与脂肪酸合成及氧化的限速酶。ACC有2种亚型,ACC1存在于细胞质中,能够催化乙酰-辅酶A发生羧化反应转化为丙二酰-辅酶A,生成的丙二酰-辅酶A用于LCFA从头合成。ACC2存在于线粒体外膜,可以利用生成的丙二酰-辅酶A抑制CPT-1的活性,从而降低脂肪酸β氧化的速率[57]。Zou等[58]研究表明,高脂饲粮中添加0.5%的柿子单宁可降低高脂饮食大鼠肝脏中ACC的mRNA表达,同时增加CPT-1的活性。
CPT-1位于线粒体外膜,是参与脂肪酸β氧化的限速酶。游离脂肪酸在进入线粒体发生氧化前需在线粒体外膜进行活化,即生成脂酰-辅酶A(acyl-coenzyme A)。随后,在CPT-1的催化下,脂酰-辅酶A与左旋肉碱结合生成脂酰肉碱,转位酶辅助其穿过线粒体内膜进入基质,重新合成脂酰-辅酶A,参与脂肪酸β氧化。脂酰肉碱进入线粒体的速率取决于CPT-1的活性,因此活化CPT-1可以增加脂肪酸的氧化代谢,进而促进脂肪消耗。曾丽荣[6]在给高脂饮食小鼠灌胃50和100 mg/(kg BW·d)的单宁酸后发现,2种剂量均可使其肝脏组织中CPT-1的mRNA表达量增加,增强机体内CPT-1的活性,从而在一定程度上促进脂肪酸的β氧化过程。
腺苷酸活化蛋白激酶(AMP-activated protein kinase,AMPK)作为糖和脂代谢关键基因的枢纽,能调节机体的代谢和能量需求,其活性随着AMP/ATP或ADP/ATP的比值上升而增加[59]。活化的AMPK通过磷酸化ACC,可以抑制其活性,从而减少脂肪酸的合成,并降低丙二酰-辅酶A对CPT-1的抑制效果,促进脂肪酸β氧化[60]。已有研究表明,固醇调控元件结合蛋白-1(sterol regulatory element-binding protein-1,SREBP-1)是脂肪酸和甘油三酯合成相关基因的转录调控因子,它催化FASNACC等脂肪酸合成相关基因的转录,而AMPK可抑制SREBP-1表达,进而抑制脂肪酸合成。张悦[61]的研究表明,育肥猪饲粮中添加150、200或250 mg/kg葡萄籽原花青素可通过调控AMP/ATP或ADP/ATP的比值来激活AMPK信号通路,上调CPT-1等相关基因的表达,进而增强脂肪酸β氧化。
综上可知,多酚类化合物可通过促进脂肪酸β氧化、抑制脂肪酸合成来减少脂肪酸在体内过度沉积(图2),从而改善畜禽肉品质。
图2 多酚类化合物对脂肪酸代谢的调节作用(Figdraw绘制)

Polyphenolic compounds:多酚类化合物;Activation:激活;L-carnitine:左旋肉碱;Fatty acyl carnitine:脂酰肉碱;Translocases:转位酶;β-oxidation:β-氧化;Protection:保护;Mitochondria:线粒体;Cytoplasm:细胞质;Acyl-CoA:脂酰-辅酶A acyl-coenzyme A;Acetyl-CoA:乙酰-辅酶A acetyl-coenzyme A;Malonyl-CoA:丙二酰-辅酶A malonyl-coenzyme A;LCFA:长链脂肪酸long-chain fatty acids;CPT-1:肉碱棕榈酰转移酶-1 carnitine palmitoyl transferase-1;CPT-2:肉碱棕榈酰转移酶-2 carnitine palmitoyl transferase-2;FASN:脂肪酸合成酶 fatty acid synthase;ACC1:乙酰辅酶A羧化酶1 acetyl-coenzyme A carboxylase 1;SREBP-1:固醇调控元件结合蛋白-1 sterol regulatory element-binding protein-1;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferators-activated receptor α;n-3PUFA:n-3多不饱和脂肪酸 n-3 poly-unsaturated fatty acid。

Fig.2 Regulatory role of polyphenolic compounds on fatty acid metabolism (drawn by Figdraw)

2.3 多酚类化合物对肌纤维类型转化相关信号通路的影响

2.3.1 AMPK/沉默信息调节因子1(silent information regulator 1,SIRT1)/过氧化物酶体增殖物激活受体γ

辅助激活因子-1α(peroxisome proliferators-activated receptor γ coactivator-1α,PGC-1α)信号通路与肌纤维类型转化AMPK、SIRT1、PGC-1α均为能量感受器,在驱动肌纤维类型转化中发挥重要作用。AMPK在激活状态下可促使其下游基因PGC-1α去乙酰化,进而促进骨骼肌纤维类型转化。PGC-1α被认为是调节骨骼肌线粒体生物发生的中心分子。PGC-1α在Ⅰ型肌纤维中含量较多,在Ⅱ型肌纤维中含量较少。Xue等[62]研究发现,柚皮苷(多酚类化合物)上调了小鼠C2C12肌管中AMPKPGC-1α的基因和蛋白表达,推测柚皮苷可以激活AMPK/PGC-1α信号通路,从而诱导骨骼肌纤维类型转化。SIRT1是一类氧化型辅酶Ⅰ(oxidized nicotinamide adenine dinucleotide,NAD+)依赖性去乙酰化酶,在肌纤维类型转化代谢网络中发挥重要作用。AMPK通过增加细胞NAD+水平来增强SIRT1的活性,进而介导下游靶点PGC-1α去乙酰化而被激活[63]。同时,SIRT1也可通过激活磷酸化肝激酶B1(liver kinase B1,LKB1),引起AMPK的磷酸化。Chen等[64]研究发现,阿魏酸可以增加小鼠C2C12肌管中SIRT1的基因和蛋白表达,通过磷酸化及乙酰化作用激活AMPK和PGC-1α等相关因子,调节肌纤维类型转化。此外,SIRT1和AMPK被激活后可以协同激活PGC-1α的表达,促进慢肌纤维的形成。由此可见,多酚类化合物可通过调控AMPK、SIRT1、PGC-1α等因子的相互作用来完成对肌纤维类型转化的影响。

2.3.2 脂联素(adiponectin,AdipoQ)信号通路与肌纤维类型转化

AdipoQ被认为是脂肪组织分泌的生物活性物质,可通过控制葡萄糖摄入和脂肪酸氧化帮助调节骨骼肌代谢活动,从而影响骨骼肌生长,改变肌纤维组成,进而调节肉品质。AdipoQ有2个主要受体,分别为脂联素受体1(adiponectin receptor 1,AdipoR1)和脂联素受体2(adiponectin receptor 2,AdipoR2),分别在不同部位表达。已有研究证明,上调AdipoR1可以增加Ⅰ型肌纤维的表达[65]。Chen等[66]研究发现,在小鼠饲粮中添加0.005%的槲皮素可显著增加血清AdipoQ浓度以及AdipoQAdipoR1和氧化型肌纤维相关基因的表达。此外,AdipoQ和AdipoR1可以通过诱导钙离子(Ca2+)内流,导致AMPK/SIRT1信号通路被激活,从而减少PGC-1α乙酰化并增加肌细胞线粒体,进而上调骨骼肌中Ⅰ型肌纤维的比例[65]。因此,多酚类化合物可通过AdipoQ信号通路直接或间接地对肌纤维类型进行调控。

2.3.3 Ca2+/钙调磷酸酶(calcineurin,CaN)/T细胞核因子(nuclear factor of activated T cells,NFAT)信号通路与肌纤维类型转化
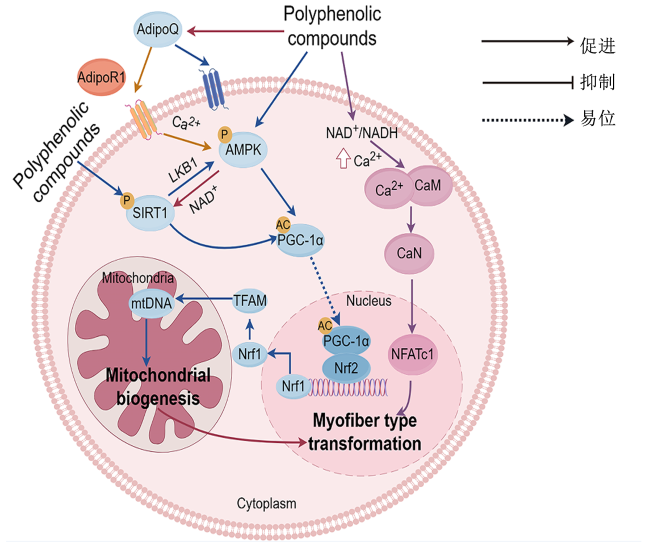
Ca2+/CaN/NFAT信号通路是促进Ⅰ型肌纤维表达的重要途径。CaN由2个亚基(催化亚基CNA和调节亚基CNB)组成,可以被Ca2+/钙调素(calmodulin,CaM)激活。NAD+和还原型辅酶Ⅰ(reduced nicotinamide adenine dinucleotide,NADH)可调节钙稳态使Ca2+内流,当肌细胞内Ca2+浓度不断升高时,Ca2+会与CaM结合激活CaN,使得其下游转录因子NFATc1去磷酸化,从而促进氧化型肌纤维相关基因的表达。Luo等[67]研究发现,百里香酚可增加小鼠C2C12肌管中Ca2+浓度,激活Ca2+/CaN/NFAT信号通路,促进氧化型肌纤维相关基因的表达,说明百里香酚可通过Ca2+/CaN/NFAT信号通路来调控骨骼肌纤维类型转化。
综上可知,多酚类化合物对肌纤维类型的调控可通过AMPK/SIRT1/PGC-1α、AdipoQ及Ca2+/CaN/NFAT等信号通路来实现(图3),这对改善畜禽肉品质具有重要意义。
图3 多酚类化合物对肌纤维类型转化的调节作用(Figdraw绘制)

Polyphenolic compounds:多酚类化合物;Mitochondria;线粒体;Mitochondrial biogenesis:线粒体生物发生;Nucleus:细胞核;Myofiber type transformation:肌纤维类型转化;Cytoplasm:细胞质;AdipoQ:脂联素 adiponectin;AdipoR1:脂联素受体1 adiponectin receptor 1;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase;LKB1:肝激酶B1 liver kinase B1;NAD+:氧化型辅酶Ⅰ oxidized nicotinamide adenine dinucleotide;NADH:还原型辅酶Ⅰ reduced nicotinamide adenine dinucleotide;SIRT1:沉默信息调节因子1 silent information regulator 1;PGC-1α:过氧化物酶体增殖物激活受体γ辅助激活因子-1α peroxisome proliferators-activated receptor γ coactivator-1α;TFAM:线粒体转录因子A recombinant transcription factor A;mtDNA:线粒体DNA mitochondrial DNA;Nrf1:核因子E2相关因子1 nuclear factor erythroid 2-related factor 1;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;CaM:钙调素 calmodulin;CaN:钙调磷酸酶 calcineurin;NFATc1:T细胞核因子c1 nuclear factor c1 of activated T cells;P:磷酸化 phosphorylation;AC:乙酰化 acetylation。

Fig.3 Regulatory effect of polyphenolic compounds on myofiber type transformation (drawn by Figdraw)

3 小结与展望

综上可知,多酚类化合物能够通过抑制肉类脂质氧化和蛋白质氧化从而调控畜禽肉品质,维持良好的理化性质,提高营养价值,在一定程度上改善肉的风味。此外,多酚类化合物还可以调节肌肉抗氧化能力、脂肪酸代谢及肌纤维类型转化,具有良好的应用前景。但是,对于不同多酚类化合物间的协同作用研究较少,且如何经济科学地在生产实践中添加最佳剂量的多酚类化合物也尚未明确。在此基础上,还需加大研究工作,进一步深入研究多酚类化合物在不同动物、不同生理状况下对肉品质的调控机制和信号转导通路,同时有针对性地提高各类多酚化合物的分离纯化技术,进行更多的标准化试验对其功效加以验证,确定其在不同动物、不同生长阶段的适宜添加剂量等,以期为多酚类化合物作为畜禽饲料添加剂的开发应用和调控畜禽肉品质提供科学依据。
[1]
KUMAR S, PANDEY A K. Chemistry and biological activities of flavonoids:an overview[J]. The Scientific World Journal, 2013,2013:162750.

[2]
HUANG Q Q, LIU X L, ZHAO G Q, et al. Potential and challenges of tannins as an alternative to in-feed antibiotics for farm animal production[J]. Animal Nutrition, 2018, 4(2):137-150.

DOI PMID

[3]
瞿子惠, 李立佳, 李柏浩, 等. 缩合单宁对肉羊生长性能、屠宰性能、肉品质及抗氧化能力的影响[J]. 饲料研究, 2023, 46(22):8-12.

QU Z H, LI L J, LI B H, et al. Effect of condensed tannins on growth performance,slaughter performance,meat quality,and antioxidant capacity of mutton sheep[J]. Feed Research, 2023, 46(22):8-12. (in Chinese)

[4]
刘洪波, 施兆红. 富含单宁的木本植物对山羊肌肉氧化稳定性的影响[J]. 中国饲料, 2020(4):83-86.

LIU H B, SHI Z H. Effects of tannin-rich woody plants on oxidative stability of goat muscles[J]. China Feed, 2020(4):83-86. (in Chinese)

[5]
XU X A, CHEN X L, CHEN D W, et al. Effects of dietary apple polyphenol supplementation on carcass traits,meat quality,muscle amino acid and fatty acid composition in finishing pigs[J]. Food & Function, 2019, 10(11):7426-7434.

[6]
曾丽荣. 膳食单宁酸抑制高脂饮食诱导的小鼠肥胖的调控机制[D]. 硕士学位论文. 武汉: 武汉科技大学, 2020.

ZENG L R. The mechanism of dietary tannic acid prevents high-fat-diet induced obesity in mice[D]. Master's Thesis. Wuhan: Wuhan University of Science and Technology, 2020. (in Chinese)

[7]
ZHOU Y, RUAN Z, LI X L, et al. Eucommia ulmoides oliver leaf polyphenol supplementation improves meat quality and regulates myofiber type in finishing pigs[J]. Journal of Animal Science, 2016,94 (Suppl.3):164-168.

[8]
赵亚亚, 常江, 剧柠, 等. 日粮中添加植物多酚调控肉色稳定性的作用机制[J]. 畜牧兽医学报, 2023, 54(1):36-47.

DOI

ZHAO Y Y, CHANG J, JU N, et al. Mechanism of plant polyphenols addition in diet regulating meat color stability[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(1):36-47. (in Chinese)

DOI

[9]
LUCIANO G, MONAHAN F J, VASTA V, et al. Dietary tannins improve lamb meat colour stability[J]. Meat Science, 2009, 81(1):120-125.

DOI PMID

[10]
NATALELLO A, PRIOLO A, VALENTI B, et al. Dietary pomegranate by-product improves oxidative stability of lamb meat[J]. Meat Science, 2020,162:108037.

[11]
张悦, 任勇, 邓超, 等. 葡萄籽原花青素对生长育肥猪肉品质、抗氧化性能和脂肪酸组成的影响[J]. 中国畜牧杂志, 2022, 58(5):221-228.

ZHANG Y, REN Y, DENG C, et al. Effects of grape seed procyanidins on meat quality,antioxidant properties and fatty acid composition of growing-finishing pigs[J]. Chinese Journal of Animal Science, 2022, 58(5):221-228. (in Chinese)

[12]
ZHANG C, LUO J Q, YU B, et al. Dietary resveratrol supplementation improves meat quality of finishing pigs through changing muscle fiber characteristics and antioxidative status[J]. Meat Science, 2015,102:15-21.

[13]
WANG Z Y, GUO L, DING X, et al. Supplementation of chestnut tannins in diets can improve meat quality and antioxidative capability in Hu lambs[J]. Meat Science, 2023,206:109342.

[14]
齐明江, 温红瑞, 周玉香, 等. 栗木单宁对滩羊生长性能、肉品质和肌肉脂肪酸组成的影响[J]. 动物营养学报, 2022, 34(6):3857-3866.

DOI

QI M J, WEN H R, ZHOU Y X, et al. Effects of chestnut tannin on growth performance,meat quality and muscle fatty acid composition of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3857-3866. (in Chinese)

[15]
XU M, CHEN X L, HUANG Z Q, et al. Effects of dietary grape seed proanthocyanidin extract supplementation on meat quality,muscle fiber characteristics and antioxidant capacity of finishing pigs[J]. Food Chemistry, 2022,367:130781.

[16]
唐青松, 肖明飞, 易宏波, 等. 饲粮添加缩合单宁对肉鸡生长性能、肉品质、免疫功能、抗氧化功能及肠道形态的影响[J]. 动物营养学报, 2021, 33(6):3228-3236.

DOI

TANG Q S, XIAO M F, YI H B, et al. Effects of dietary condensed tannins on growth performance,meat quality,immune function,antioxidant function and intestinal morphology of broilers[J]. Chinese Journal of Animal Nutrition, 2021, 33(6):3228-3236. (in Chinese)

[17]
KOPECKY J, ROSSMEISL M, FLACHS P, et al. n-3 PUFA:bioavailability and modulation of adipose tissue function[J]. The Proceedings of the Nutrition Society, 2009, 68(4):361-369.

[18]
VASTA V, MELE M, SERRA A, et al. Metabolic fate of fatty acids involved in ruminal biohydrogenation in sheep fed concentrate or herbage with or without tannins[J]. Journal of Animal Science, 2009, 87(8):2674-2684.

DOI PMID

[19]
GIRARD M, DOHME-MEIER F, SILACCI P, et al. Forage legumes rich in condensed tannins may increase n-3 fatty acid levels and sensory quality of lamb meat[J]. Journal of the Science of Food and Agriculture, 2016, 96(6):1923-1933.

DOI PMID

[20]
MENCI R, LUCIANO G, NATALELLO A, et al. Performance and meat quality in pigs fed hydrolysable tannins from Tara spinosa[J]. Meat Science, 2024,207:109364.

[21]
云艳虹. 葡萄籽原花青素对海南黑山羊生长性能、抗氧化性能和肉品质的影响[D]. 硕士学位论文. 海口: 海南大学, 2023.

YUN Y H. Effects of grape seed proanthocyanidins on growth performance,antioxidant properties and meat quality of Hainan black goats[D]. Master's Thesis. Haikou: Hainan University, 2023. (in Chinese)

[22]
LIU Y C, LI Y F, YU M, et al. Magnolol supplementation alters serum parameters,immune homeostasis,amino acid profiles,and gene expression of amino acid transporters in growing pigs[J]. International Journal of Molecular Sciences, 2023, 24(18):13952.

[23]
徐小蛟. 饲粮添加苹果多酚对猪抗氧化能力、脂质代谢及肉品质的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2019.

XU X J. Effects of dietary apple polyphenols supplementation on antioxidant capacity,lipid metabolism and meat quality in pigs[D]. Master's Thesis. Ya'an: Sichuan Agricultural University, 2019. (in Chinese)

[24]
CHO H S, PARK W, HONG G E, et al. Antioxidant activity of allium hookeri root extract and its effect on lipid stability of sulfur-fed pork patties[J]. Korean Journal for Food Science of Animal Resources, 2015, 35(1):41-49.

[25]
DELLES R M, XIONG Y L. The effect of protein oxidation on hydration and water-binding in pork packaged in an oxygen-enriched atmosphere[J]. Meat Science, 2014, 97(2):181-188.

DOI PMID

[26]
DE LA POMÉLIE D, SANTÉ-LHOUTELLIER V, SAYD T, et al. Oxidation and nitrosation of meat proteins under gastro-intestinal conditions:consequences in terms of nutritional and health values of meat[J]. Food Chemistry, 2018,243:295-304.

[27]
MOCZKOWSKA M, PÓŁTORAK A, MONTOWSKA M, et al. The effect of the packaging system and storage time on myofibrillar protein degradation and oxidation process in relation to beef tenderness[J]. Meat Science, 2017,130:7-15.

[28]
STADTMAN E R. Protein oxidation in aging and age-related diseases[J]. Annals of the New York Academy of Sciences, 2001,928:22-38.

[29]
袁凯, 张龙, 谷东陈, 等. 肉品中的蛋白质氧化机制及其影响因素[J]. 食品科学, 2018, 39(5):329-335.

DOI

YUAN K, ZHANG L, GU D C, et al. A review of mechanisms and factors affecting protein oxidation in meat[J]. Food Science, 2018, 39(5):329-335. (in Chinese)

DOI

[30]
LUCIANO G, VASTA V, MONAHAN F J, et al. Antioxidant status,colour stability and myoglobin resistance to oxidation of longissimus dorsi muscle from lambs fed a tannin-containing diet[J]. Food Chemistry, 2011, 124(3):1036-1042.

[31]
GRAVADOR R S, JONGBERG S, ANDERSEN M L, et al. Dietary citrus pulp improves protein stability in lamb meat stored under aerobic conditions[J]. Meat Science, 2014, 97(2):231-236.

DOI PMID

[32]
姜晴晴, 李珊, 刘文娟, 等. 冻融循环对秘鲁鱿鱼蛋白及肌肉品质的影响[J]. 现代食品科技, 2014, 30(7):171-178.

JIANG Q Q, LI S, LIU W J, et al. Effect of freeze-thaw cycles on proteins and muscle quality of Dosidicus gigas[J]. Modern Food Science & Technology, 2014, 30(7):171-178. (in Chinese)

[33]
TAYENGWA T, CHIKWANHA O C, GOUWS P, et al. Dietary citrus pulp and grape pomace as potential natural preservatives for extending beef shelf life[J]. Meat Science, 2020,162:108029.

[34]
FALOWO A B, FAYEMI P O, MUCHENJE V. Natural antioxidants against lipid-protein oxidative deterioration in meat and meat products:a review[J]. Food Research International, 2014,64:171-181.

[35]
解娅立. 饲粮中添加鹧鸪茶超微粉对海南黑猪育肥后期生长性能、肉品质及肠道菌群的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2023.

XIE Y L. Effects of dietary mallotus oblongifolius ultrafine powder on growth performance,meat quality and intestinal flora of Hainan black pig in late fattening period[D]. Master's Thesis. Urumqi: Xinjiang Agricultural University, 2023. (in Chinese)

[36]
PRICE N L, GOMES A P, LING A J Y, et al. SIRT1 is required for AMPK activation and the beneficial effects of resveratrol on mitochondrial function[J]. Cell Metabolism, 2012, 15(5):675-690.

DOI PMID

[37]
VALKO M, RHODES C J, MONCOL J, et al. Free radicals,metals and antioxidants in oxidative stress-induced cancer[J]. Chemico-Biological Interactions, 2006, 160(1):1-40.

[38]
FRAGA C G. Plant polyphenols:how to translate their in vitro antioxidant actions to in vivo conditions[J]. IUBMB Life, 2007, 59(4/5):308-315.

[39]
李鹤林, 周小玲, 吴晓娟, 等. 多酚调控蛋白、多糖及蛋白-多糖复合物乳液中脂质-蛋白质共氧化研究进展[J]. 食品科学, 2024, 45(12):358-367.

LI H L, ZHOU X L, WU X J, et al. Research progress on polyphenol regulation of lipid-protein co-oxidation in emulsions stabilized by proteins,polysaccharides or their complexes[J]. Food Science, 2024, 45(12):358-367. (in Chinese)

[40]
盛雪飞, 彭燕, 陈健初. 天然抗氧化剂之间的协同作用研究进展[J]. 食品工业科技, 2010, 31(7):414-417,421.

SHENG X F, PENG Y, CHEN J C, Research progress in synergistic effect between natural antioxidants[J]. Science and Technology of Food Industry, 2010, 31(7):414-417,421. (in Chinese)

[41]
樊梓鸾, 林秀芳, 王振宇. 黑木耳多糖与浆果多酚的协同抗氧化研究[J]. 现代食品科技, 2015, 31(12):166-171,55.

FAN Z L, LIN X F, WANG Z Y. Synergistic antioxidative effect of berry polyphenols with Auricularia auricular polysaccharides[J]. Modern Food Science and Technology, 2015, 31(12):166-171,55. (in Chinese)

[42]
YUN S J, HE X S, ZHANG W F, et al. Alleviation effect of grape seed proanthocyanidins on neuronal apoptosis in rats with iron overload[J]. Biological Trace Element Research, 2020, 194(1):210-220.

DOI PMID

[43]
XU Q, LANGLEY M, KANTHASAMY A G, et al. Epigallocatechin gallate has a neurorescue effect in a mouse model of parkinson disease[J]. The Journal of Nutrition, 2017, 147(10):1926-1931.

[44]
伏志奇, 曾涛, 林山宏, 等. 茶多酚对0-18周龄狮头鹅生长性能、屠宰性能及肌肉品质的影响[J]. 动物营养学报, 2024, 36(4):2383-2394.

DOI

FU Z Q, ZENG T, LIN S H, et al. Effects of tea polyphenols on growth performance,slaughtering performance and muscle quality of lion-head goose at 0 to 18 weeks of age[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2383-2394. (in Chinese)

[45]
ZHANG L G, ZHANG J Q, YAN E F, et al. Dietary supplemented curcumin improves meat quality and antioxidant status of intrauterine growth retardation growing pigs via Nrf2 signal pathway[J]. Animals, 2020, 10(3):539.

[46]
丁鑫. 不同栗木单宁水平日粮对湖羊公羔生产性能和肉品质的影响[D]. 硕士学位论文. 兰州: 兰州大学, 2019.

DING X. Effects of different chestnut tannin levels on the production performance and meat quality of Hu lambs[D]. Master's Thesis. Lanzhou: Lanzhou University, 2019. (in Chinese)

[47]
MITSUISHI Y, MOTOHASHI H, YAMAMOTO M. The Keap1-Nrf2 system in cancers:stress response and anabolic metabolism[J]. Frontiers in Oncology, 2012,2:200.

[48]
LUO L A, HUANG F F, ZHONG S Y, et al. Astaxanthin attenuates ferroptosis via Keap1-Nrf2/HO-1 signaling pathways in LPS-induced acute lung injury[J]. Life Sciences, 2022, 311(Pt A):121091.

[49]
李绮丽. 莲子皮低聚原花青素分级分离、组分鉴定与抗氧化机理研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2013.

LI Q L. Studies on isolation,identification and antioxidant activity of oligomeric proanthocy anidians from Lotus seed peel[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2013. (in Chinese)

[50]
潘鹏, 谢红月, 罗云彦, 等. 饲粮中添加白藜芦醇对生长猪骨骼肌的抗氧化酶活及Nrf2-Keap1抗氧化通路的影响[J]. 饲料研究, 2021, 44(12):18-21.

PAN P, XIE H Y, LUO Y Y, et al. Effect of dietary supplementation of resveratrol on antioxidant enzyme activity and antioxidant pathway of Nrf2-Keap1 in skeletal muscle of growing pigs[J]. Feed Research, 2021, 44(12):18-21. (in Chinese)

[51]
MONTAIGNE D, BUTRUILLE L, STAELS B. PPAR control of metabolism and cardiovascular functions[J]. Nature Reviews Cardiology, 2021, 18(12):809-823.

DOI PMID

[52]
GUO Y, HUO J, WU D, et al. Simvastatin inhibits the adipogenesis of bone marrowderived mesenchymal stem cells through the downregulation of chemerin/CMKLR1 signaling[J]. International Journal of Molecular Medicine, 2020, 46(2):751-761.

[53]
SONG H Z, LI H, LU J, et al. Chaenomeles sinensis (Thouin) Koehne fruit polyphenols alleviate high-fat diet-induced obesity and liver steatosis by improving lipid metabolism in mice[J]. Nutrition Research, 2024,123:111-119.

[54]
侯海瑞. 日粮中添加青贮桑叶对陕北白绒山羊脂肪代谢相关基因表达的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2017.

HOU H R. Effect of diets supplemented with mulberry leaves on gene expression of related genes of fat metabolism on Shaanbei white cashmere goats[D]. Master's Thesis. Yangling: Northwest A&F University, 2017. (in Chinese)

[55]
DECKELBAUM R J, WORGALL T S, SEO T. n-3 fatty acids and gene expression[J]. The American Journal of Clinical Nutrition, 2006, 83(Suppl.6):1520S-1525S.

[56]
HUANG L, ZENG Y R, LI F, et al. Polyphenolic compounds from Idesia polycarpa Maxim.fruits ameliorate non-alcoholic fatty liver disease by modulating lipid metabolism in oleic acid-induced HepG2 cells and high-fat diet-induced mice[J]. Journal of Functional Foods, 2023,108:105715.

[57]
SUJOBERT P, POULAIN L, PAUBELLE E, et al. Co-activation of AMPK and mTORC1 induces cytotoxicity in acute myeloid leukemia[J]. Cell Reports, 2015, 11(9):1446-1457.

DOI PMID

[58]
ZOU B, GE Z Z, ZHANG Y, et al. Persimmon tannin accounts for hypolipidemic effects of persimmon through activating of AMPK and suppressing NF-κB activation and inflammatory responses in high-fat diet rats[J]. Food & Function, 2014, 5(7):1536-1546.

[59]
KIM J H, PARK J M, YEA K, et al. Phospholipase D1 mediates AMP-activated protein kinase signaling for glucose uptake[J]. PLoS One, 2010, 5(3):e9600.

[60]
ZHANG D, XIE T, LEUNG P S. Irisin ameliorates glucolipotoxicity-associated β-cell dysfunction and apoptosis via AMPK signaling and anti-inflammatory actions[J]. Cellular Physiology and Biochemistry, 2018, 51(2):924-937.

DOI PMID

[61]
张悦. 基于转录组学与代谢组学研究葡萄籽原花青素对生长育肥猪脂质代谢的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2022.

ZHANG Y. Effect of grape seed procyanidins on lipid metabolism of growing-finishing pigs based on transcriptome and metabolome[D]. Master's Thesis. Jinzhong: Shanxi Agricultural University, 2022. (in Chinese)

[62]
XUE Y H, HUANG Z Q, CHEN X L, et al. Naringin induces skeletal muscle fiber type transformation via AMPK/PGC-1α signaling pathway in mice and C2C12 myotubes[J]. Nutrition Research, 2021,92:99-108.

[63]
CANTÓ C, GERHART-HINES Z, FEIGE J N, et al. AMPK regulates energy expenditure by modulating NAD+ metabolism and SIRT1 activity[J]. Nature, 2009, 458(7241):1056-1060.

[64]
CHEN X L, GUO Y F, JIA G, et al. Ferulic acid regulates muscle fiber type formation through the SIRT1/AMPK signaling pathway[J]. Food & Function, 2019, 10(1):259-265.

[65]
IWABU M, YAMAUCHI T, OKADA-IWABU M, et al. Adiponectin and AdipoR1 regulate PGC-1alpha and mitochondria by Ca2+ and AMPK/SIRT1[J]. Nature, 2010, 464(7293):1313-1319.

[66]
CHEN X L, LIANG D H, HUANG Z Q, et al. Quercetin regulates skeletal muscle fiber type switching via adiponectin signaling[J]. Food & Function, 2021, 12(6):2693-2702.

[67]
LUO P, WANG L N, LUO L, et al. Ca2+-calcineurin-NFAT pathway mediates the effect of thymol on oxidative metabolism and fiber-type switch in skeletal muscle[J]. Food & Function, 2019, 10(8):5166-5173.

文章导航

/