研究论文

基于代谢组学分析河田鸡和快大型肉鸡肌肉肉质风味差异

  • 张立 , 1, 2 ,
  • 曾雅婷 1 ,
  • 王雅婷 1, 2 ,
  • 李得举 1 ,
  • 王彦凝 1 ,
  • 吴琼 , 1, *
展开
  • 1 龙岩学院生命科学学院,龙岩 364000
  • 2 福建农林大学动物科学学院,福州 350002
*吴 琼,副教授,硕士生导师,E-mail:

张 立(2001—),男,重庆人,硕士研究生,从事动物遗传育种与繁殖研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-12-24

  网络出版日期: 2025-08-14

基金资助

福建省科技厅引导性项目(2020N0034)

Metabolomics Analysis of Differences in Muscle Quality and Flavor between Hetian Chickens and Fast-Growing Broilers

  • ZHANG Li , 1, 2 ,
  • ZENG Yating 1 ,
  • WANG Yating 1, 2 ,
  • LI Deju 1 ,
  • WANG Yanning 1 ,
  • WU Qiong , 1, *
Expand
  • 1 College of Life Sciences, Longyan University, Longyan 364000, China
  • 2 College of Animal Science, Fujian Agriculture and Forestry University, Fuzhou 350002, China
*associate professor, E-mail:

Received date: 2024-12-24

  Online published: 2025-08-14

摘要

本试验旨在探究地方品种河田鸡与快大型科宝肉鸡胸肌的肉质性状以及代谢差异,为地方品种鸡肉产品开发利用提供依据。试验选取河田鸡和科宝肉鸡各30只,在相同的饲养管理和营养水平下进行试验,科宝肉鸡饲喂至42日龄、河田鸡饲喂至120日龄屠宰,测定屠宰性能和肉品质;采集胸肌组织,基于代谢组学分析代谢物组成,采用正交偏最小二乘判别分析(OPLS-DA)筛选差异代谢物,并通过京都基因与基因组百科全书(KEGG)通路富集分析确定影响不同品种鸡肉品质的代谢差异。结果表明:1)与科宝肉鸡相比,河田鸡腿肌率显著降低(P<0.05),胸肌亮度(L*)和红度(a*)值显著提高(P<0.05),胸肌剪切力极显著提高(P<0.01)。2)采用非靶向代谢组学方法在河田鸡和科宝肉鸡胸肌中共鉴定出2 765个代谢物,并筛选出615种差异代谢物[变量投影重要性(VIP)>1,P<0.05],其中河田鸡胸肌中210种代谢物上调,405种代谢物下调,且这些代谢物中氨基酸及其代谢物含量以及占比最高,其次分别是苯及其取代衍生物、甘油磷脂类、有机酸及其衍生物以及醛类、酮类、酯类等。河田鸡胸肌组氨酸含量高于科宝肉鸡,而科宝肉鸡胸肌谷氨酸及其衍生物含量高于河田鸡;河田鸡胸肌磷脂酰胆碱和磷酸胆碱含量高于科宝肉鸡,而科宝肉鸡胸肌溶血磷脂酰胆碱含量高于河田鸡。KEGG通路富集分析显示,甘油磷脂代谢、花生四烯酸代谢、亚油酸代谢、α-亚麻酸代谢、组氨酸代谢和卟啉代谢是区别河田鸡和科宝肉鸡的主要途径。综上所述,河田鸡和科宝肉鸡的肉品质和肌肉代谢物以及其代谢途径上存在差异。河田鸡肌肉在氨基酸以及磷脂等代谢途径上表现出更高水平,肉色更亮、更红且风味更丰富;科宝肉鸡肌肉谷氨酸含量更高,嫩度优于河田鸡。

本文引用格式

张立 , 曾雅婷 , 王雅婷 , 李得举 , 王彦凝 , 吴琼 . 基于代谢组学分析河田鸡和快大型肉鸡肌肉肉质风味差异[J]. 动物营养学报, 2025 , 37(8) : 5486 -5500 . DOI: 10.12418/CJAN2025.445

Abstract

This experiment was conducted to explore the meat quality characteristics and metabolic differences in breast muscle between the local breed Hetian chickens and the fast-growing Cobb broilers, providing a basis for the development and utilization of local breed chicken products. Each thirty Hetian chickens and Cobb broilers were selected for the experiment under the same feeding management and nutritional level. The Cobb broilers were fed until 42 days of age and the Hetian chickens were fed until 120 days of age for slaughter. The slaughter performance and meat quality were determined. Breast muscle tissues were collected, and the composition of metabolites was analyzed based on metabolomics. Orthogonal partial least squares-discriminant analysis (OPLS-DA) was used to screen for differential metabolites, and the metabolic differences affecting the meat quality of different chicken varieties were determined through Kyoto Encyclopedia of Genes and Genomes (KEGG) pathway enrichment analysis. The results showed as follows: 1) compared with Cobb broilers, the leg muscle rate of Hetian chickens was significantly decreased (P<0.05), the values of brightness (L*) and redness (a*) in breast muscle were significantly increased (P<0.05), and the shear force in breast muscle was extremely significantly increased (P<0.01). A total of 2 765 metabolites were identified in breast muscle of Hetian chickens and Cobb broilers using non-targeted metabolomics method, and 615 differential metabolites were screened out [variable projection importance (VIP)>1, P<0.05]. Among them, 210 metabolites were up-regulated and 405 metabolites were down-regulated in breast muscle of Hetian chickens. Moreover, among these metabolites, amino acid and its metabolites have the highest content and proportion, followed by benzene and substituted derivatives, glycerophospholipids, organic acid and its derivatives, as well as aldehydes, ketones, esters, etc. The histidine content in breast muscle of Hetian chickens was higher than that of Cobb broilers, while the contents of glutamic acid and its derivatives in breast muscle of Cobb broilers were higher than those of Hetian chickens. The contents of phosphatidylcholine and phosphocholine in breast muscle of Hetian chickens were higher than those of Cobb broilers, and the lysophosphatidylcholine content in breast muscle of Cobb broilers was higher than that of Hetian chickens. KEGG pathway enrichment analysis showed that glycerophospholipid metabolism, arachidonic acid metabolism, linoleic acid metabolism, alpha-linolenic acid metabolism, histidine metabolism and porphyrin metabolism were the main pathways to distinguish Hetian chickens from Cobb broilers. To sum up, there are differences in meat quality, muscle metabolites and metabolic pathways between Hetian chickens and Cobb broilers. The muscle of Hetian chickens shows higher levels in metabolic pathways such as amino acids and phospholipids, with brighter, redder meat color and richer flavor. The muscle of Cobb broilers has a higher glutamic acid content and is more tender than that of Hetian chickens.

鸡肉因其高营养价值和实惠价格而深受消费者欢迎。随着生活水平的不断提升,消费者对鸡肉的风味、口感及其健康价值的要求越来越高,这推动了肉鸡产业向更高品质和差异化方向发展。许多地方品种鸡以细腻鲜美的肉质和更佳的风味,逐渐赢得了消费者的青睐。鸡肉品质受嫩度、pH、肉色、滴水损失、蒸煮损失和肌内脂肪含量等多种因素的综合影响[1]。河田鸡为我国传统地方黄鸡品种,科宝肉鸡是目前饲养量较大的现代快大型肉鸡品种之一,这2种鸡的研究不仅可以揭示传统与现代肉鸡在肉质和风味上的差异,还可以为了解其代谢调控机制提供一定的基础数据支持,进一步推动对地方品种鸡资源的开发和利用。随着消费者对肉类品质要求的提高,地方品种鸡的风味和肉质特点逐渐得到重视,但目前针对地方品种鸡的研究仍相对薄弱。通过与快大型肉鸡的对比,探索如何通过代谢组学技术揭示影响肉质和风味的关键因素,可以为地方品种鸡的品质提升和市场化发展提供新的理论依据。
Lu等[2]研究发现,地方品种鸡(如北京油鸡)相比商品肉鸡其肌肉在剪切力和蛋白质含量上均表现出显著优势,展现了地方品种鸡在肉质方面的潜力。姜琳琳[3]研究表明,北京油鸡鸡肉在感官评价和整体风味方面明显优于商品肉鸡,如快大黄鸡和爱维因白羽肉鸡,凸显了地方品种鸡在风味上的独特性。鸡肉的风味和品质之间存在密切关系,多种代谢物的组成和含量直接影响肉质的风味特性。肉类的风味和品质与多种代谢物密切相关,包括氨基酸、核苷酸、磷脂和肽等[4]。张茹等[5]研究发现,地方品种鸡肌肉的氨基酸含量和组成均优于科宝肉鸡,进一步支持了地方品种鸡在肉质和风味上的优势。杨兰[6]基于云南地方鸡种与商品鸡的代谢组学研究,筛选出影响肉质和风味形成的关键上游基因,揭示了地方品种鸡在肉质和风味形成中的潜在分子机制。这些研究结果表明,地方品种鸡在肉质、氨基酸组成及风味特性上具有明显优势,且这种优势可能与其独特的代谢调控机制相关。福建地方品种河田鸡以独特的“三叉冠”、丰富的氨基酸和牛磺酸含量,以及细嫩的肉质、薄而柔脆的皮和清甜的肉汤等特点,广受当地消费者喜爱,但其肉质的代谢机制和风味形成尚未得到系统研究。
尽管现有研究为鸡肉风味和肉质性状提供了基础数据,但依然缺乏从代谢学角度对地方品种鸡与快大型肉鸡肉质和风味差异进行系统深入分析的研究。大部分研究依赖于剪切力、pH和滴水损失等常规的肉质评价指标,这些指标虽然能反映鸡肉的嫩度、肉色和水分保持等特性,但并未深入探讨肉类风味形成的分子机制。风味是由多种代谢物和化学反应共同作用的复杂过程,而现有研究很少关注代谢产物的变化,尤其是与风味相关的氨基酸、脂肪酸以及核苷酸等小分子代谢物的变化及其调控机制。部分学者对地方品种鸡的肉质进行了一定研究,尤其是对其氨基酸组成和肉质性状的探讨,但这些研究多数局限于局部指标,缺乏系统的代谢组学分析。代谢组学作为一种能够全面捕捉生物体内小分子代谢物变化的技术,尚未广泛应用于肉鸡肉质及风味的研究中。代谢组学能够揭示不同鸡种在代谢路径上的差异,进而为理解肉质和风味差异的分子机制提供全新的视角。代谢组学的应用不仅能够帮助揭示影响鸡肉风味的关键代谢物,还可以通过全局的代谢调控视角,阐明地方品种与快大型肉鸡在肉质和风味上的本质差异[7-9]。代谢物在肉品风味、口感和质量形成中起关键作用,其中氨基酸、核苷酸和磷脂等代谢物的变化直接影响肉类的风味和质构特性。随着测序技术的发展,代谢组学专注于特定时间点生物体内小分子代谢物的分析,并广泛应用于食品、动物、植物和微生物等领域[10-13]
基于此,本研究以河田鸡和科宝肉鸡为研究对象,进行常规肉品质性状指标分析,并结合代谢组学技术进行联合分析,探讨地方品种与快大型肉鸡在肉质性状以及风味上的差异,旨在为地方品种鸡肉品质评价及代谢调控对肉质和风味的影响提供理论支持,并推动地方品种鸡资源开发。

1 材料与方法

1.1 试验材料和试验设计

本试验方案经龙岩学院动物实验伦理委员会批准(批准号:LY2024008L,批准时间:2024年7月4日)。
试验选用的试验鸡均在龙岩学院生命科学学院动物饲养实验室孵化和饲养,孵化后选取同品种内体重相近的河田鸡和科宝肉鸡各30只进行单层笼养,河田鸡在育雏期间与科宝肉鸡的饲养管理和营养水平相同。依据肉鸡饲粮配方配制基础饲粮,其组成与营养水平见表1。科宝肉鸡饲喂至42日龄,河田鸡采用相同饲养条件饲喂至120日龄,测定屠宰性能和肉品质。随机选取品种内体重相近的2种鸡各6只,将左侧胸肌完整地剥离并称重,于液氮中速冻后保存于-80 ℃超低温冰箱,用于后续代谢组学测定。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
含量Content
1~22日龄
1 to 22
days of age
22日龄以后
After 22
days of age
原料Ingredients
玉米Corn 53.25 57.32
豆粕Soybean meal 30.71 27.24
次粉Wheat middling 8.00 7.00
大豆油Soybean oil 3.00 3.50
磷酸氢钙CaHPO4 1.20 1.20
石粉Limestone 1.60 1.50
食盐NaCl 0.24 0.24
预混料Premix1) 2.00 2.00
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 12.25 12.85
粗蛋白质CP 21.14 20.23
钙Ca 1.06 0.97
总磷TP 0.70 0.67
有效磷AP 0.38 0.30

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 8 000 IU,VD3 2 000 IU,VE 20.00 mg,VK3 4.0 mg,VB1 2.0 mg,VB2 6.0 mg,VB6 4.0 mg,VB12 0.02 mg,烟酰胺 nicotinamide 40 mg,D-泛酸 D-pantothenate 12 mg,D-生物素 D-biotin 0.1 mg,叶酸 folic acid 1.0 mg,胆碱 choline 800 mg,DL-蛋氨酸 DL-methionine 1 000 mg,Fe 80 mg,Cu 8 mg,Mn 60 mg,Zn 80 mg,I 0.60 mg,Se 0.30 mg。
2)代谢能和有效磷为计算值,粗蛋白质、钙和总磷为实测值。ME and AP were calculated values, while CP, Ca and TP were measured values.

1.2 测定指标及方法

1.2.1 饲粮营养水平测定

饲粮代谢能和有效磷含量根据《中国饲料成分及营养价值表(2021年第32版)》中各原料代谢能和有效磷参考值与各原料在配方中的比例相乘,然后求和。粗蛋白质、钙和总磷含量分别参照《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)、《饲料中钙的测定》(GB/T 6436—2018)和《饲料中总磷的测定 分光光度法》(GB/T 6437—2018)中的方法进行测定。

1.2.2 屠宰性能和肉品质测定

屠宰性能具体测定和计算方法参照《家禽生产性能名词术语和度量计算方法》(NY/T 823—2020),包括屠宰率、半净膛率、全净膛率、胸肌率和腿肌率。采用肉质颜色测定仪测定胸肌亮度(L*)、红度(a*)和黄度(b*)值,采用直插式pH计测定pH,采用肌肉嫩度仪测定肌肉剪切力,具体方法参照《畜禽肉质的测定》(NY/T 1333—2007)。

1.2.3 肌肉代谢组分析

肌肉代谢组采用液相色谱-串联质谱(LC-MS/MS)法进行分析。从-80 ℃冰箱中取出样本放在冰上解冻至可切动的状态(后续所有操作均在冰上进行);将样本切碎混匀,多点取样称量20 mg(±1 mg)到对应编号离心管中;用镊子加入1粒钢珠,用球磨仪(30 Hz)匀浆20 s,在4 ℃条件下、805.3×g离心30 s将样本离心到管底(可根据实际匀浆情况适当增加时间);离心后加入70%甲醇水内标提取液400 μL,1 500 r/min振荡5 min,冰上静置15 min;在4 ℃条件下、12 880.2×g离心10 min,移取上清液300 μL到另一对应编号离心管中,-20 ℃冰箱中静置30 min;在4 ℃条件下、12 880.2×g再次离心3 min,移取上清液200 μL到对应进样瓶内衬管中,用于上机分析。
色谱柱为Waters ACQUITY Premier HSS T3 Column(1.8 μm,2.1 mm×100 mm);流动相A为0.1%甲酸/水,流动相B为0.1%甲酸/乙腈;仪器柱温为40 ℃,流速为0.4 mL/min,进样量为4 μL。
质谱下机原始数据经过ProteoWizard转换为mzXML格式,采用XCMS程序进行峰提取、对齐和保留时间校正;对各组样本中缺失率>50%的峰进行过滤,并对空白值进行K最邻近(KNN)填充,采用支持向量回归(SVR)方法对峰面积进行校正;校正筛选后的峰通过检索实验室自建数据库、整合公共库、预测库以及MetDNA方法进行代谢物鉴定;最后,提取鉴定综合打分0.5分以上且质控(QC)样本变异系数(CV)值小于0.3的物质,再进行正、负离子模式合并(保留定性等级最高且CV值最小的物质),得到ALL_sample_data文件。

1.3 数据统计与分析

采用SPSS 27.0软件进行t检验,比较品种间指标差异显著性,P<0.05表示差异显著,P<0.01表示差异极显著,P>0.05表示差异不显著。

2 结果与分析

2.1 河田鸡和科宝肉鸡屠宰性能和肉品质比较

表2可知,河田鸡和科宝肉鸡之间腿肌率差异显著(P<0.05),其余屠宰性能指标均差异不显著(P>0.05)。河田鸡和科宝肉鸡之间胸肌45 min pH和b*值差异不显著(P>0.05),河田鸡胸肌L*和a*值显著高于科宝肉鸡(P<0.05),河田鸡胸肌剪切力极显著高于科宝肉鸡(P<0.01)。
表2 河田鸡和科宝肉鸡屠宰性能和肉品质比较

Table 2 Comparison of slaughtering performance and meat quality between Hetian chickens and Cobb broilers

项目Items 河田鸡Hetian chickens 科宝肉鸡Cobb broilers
pH45 min 5.77±0.16 5.80±0.30

肉色
Meat color
亮度L* 48.71±4.55a 46.56±3.23b
红度a* 6.32±3.56a 3.52±1.11b
黄度b* 10.49±1.95 10.60±2.09
剪切力Shear force/kgf 4.92±0.90A 2.93±0.68B
滴水损失Drip loss/% 3.21±0.56 4.09±0.74
活体重Live body weight/g 1 938.90±123.70 1 883.50±164.00
屠宰率Dressing percentage/% 89.87±5.62 90.54±6.43
半净膛率Half-eviscerated percentage/% 81.34±2.54 83.28±1.98
全净膛率Eviscerated percentage/% 72.01±1.67 67.46±5.63
胸肌率Breast muscle percentage/% 21.05±0.51 17.72±1.05
腿肌率Leg muscle percentage/% 18.11±1.06b 25.39±2.31a

同行数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。

In the same row, values with no letter superscripts mean no significant difference (P>0.05), while with different small letters superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01).

2.2 河田鸡和科宝肉鸡胸肌代谢物组成比较

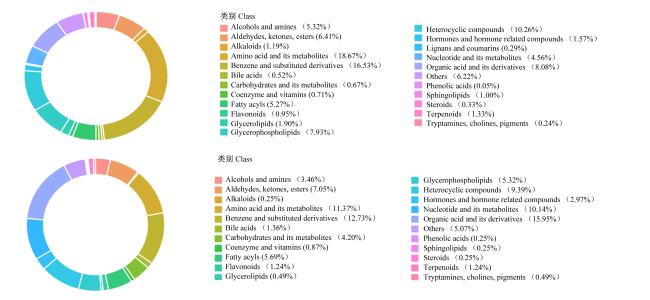
图1所示,采用非靶向代谢组学方法在河田鸡和科宝肉鸡胸肌中共鉴定出2 765个代谢物,其中在正离子模式下共鉴定出2 012个代谢物,主要包括氨基酸及其代谢物(18.67%)、苯及其取代衍生物(16.53%)、杂环化合物(10.26%)、有机酸及其衍生物(8.08%)、甘油磷脂类(7.93%)以及醛类、酮类、酯类(6.41%)等;在负离子模式下鉴定出753个代谢物,包括有机酸及其衍生物(15.95%)、苯及其取代衍生物(12.73%)、氨基酸及其代谢物(11.37%)、核苷酸及其代谢物(10.14%)、杂环化合物(9.39%)以及醛类、酮类、酯类(7.05%)等。
图1 胸肌代谢物分类饼图

上为正离子模式检测出代谢物种类分布,下为负离子模式检测出代谢物种类分布。Upside showed distribution of metabolite types detected by positive ion mode, and downside showed distribution of metabolite types detected by negative ion mode.

Alcohols and amines:醇类和胺类;Aldehydes, ketones, esters:醛类、酮类、酯类;Alkaloids:生物碱类;Amino acid and its metabolites:氨基酸及其代谢物;Benzene and substituted derivatives:苯及其取代衍生物;Bile acids:胆汁酸类;Carbohydrates and its metabolites:碳水化合物及其代谢物;Coenzyme and vitamins:辅酶和维生素类;Fatty acyls:脂肪酰类;Flavonoids:黄酮类;Glycerolipids:甘油脂类;Glycerophospholipids:甘油磷脂类;Heterocyclic compounds:杂环化合物;Hormones and hormone related compounds:激素及激素相关化合物;Lignans and coumarins:木脂素类和香豆素类;Nucleotide and its metabolites:核苷酸及其代谢物;Organic acid and its derivatives:有机酸及其衍生物;Others:其他;Phenolic acids:酚酸类;Sphingolipids:鞘脂类;Steroids:类固醇类;Terpenoids:萜类;Tryptamines, cholines, pigments:色胺类、胆碱类、色素类。图3同 the same as Fig.3

Fig.1 Pie chart for classification of metabolites in breast muscle

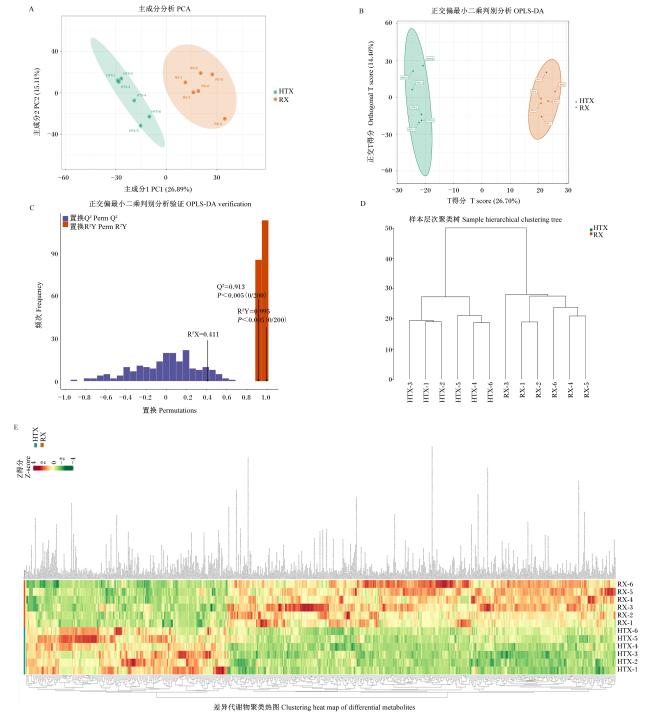
为了更加详细地探讨品种对鸡胸肌中代谢物的影响,使用主成分分析(PCA)法对河田鸡和科宝肉鸡的胸肌代谢物进行分析(图2-A),河田鸡与科宝肉鸡胸肌代谢物根据品种进行聚集,且相互分离,说明河田鸡与科宝肉鸡之间胸肌代谢物有明显差异。同时,采用正交偏最小二乘判别分析(OPLS-DA)法对样本进行归类分析(图2-B),结果显示河田鸡与科宝肉鸡的主成分模式分离显著,且无重叠,进一步说明品种会鸡胸肌代谢物组成产生影响。
图2 河田鸡和科宝肉鸡胸肌代谢物差异分析

HTX表示河田鸡胸肌,RX表示科宝肉鸡胸肌。

Fig.2 Analysis of differences in metabolites in breast muscle between Hetian chickens and Cobb broilers

HTX represented breast muscle of Hetian chickens, and RX represented breast muscle of Cobb broilers.

通过200次随机排列组合试验验证模型的稳定性和可靠性,结果显示,Q2=0.913,R2Y=0.995,R2X=0.411,表明该模型在预测能力和拟合度上表现优异,具有良好的稳定性和可靠性(图2-C)。为了揭示不同品种鸡胸肌代谢物组成变化,本研究采用层次聚类分析,结果显示,河田鸡胸肌氨基酸及其衍生物、甘油磷脂和激素含量整体高于科宝肉鸡,胸肌碳水化合物及其代谢物含量高于科宝肉鸡(图2-D图2-E)。

2.3 2种鸡胸肌差异代谢物筛选

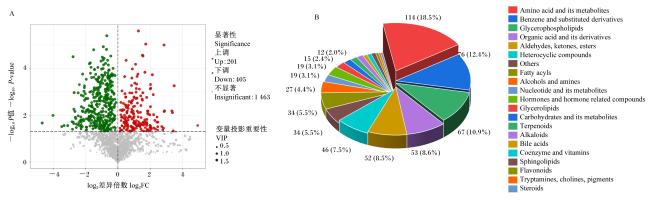
为了筛选出河田鸡和科宝肉鸡胸肌的差异代谢物,采用PCA、OPLS-DA以及OPLS-DA模型生成的变量投影重要性(VIP),选取VIP>1的代谢物,初步筛选出不同品种间的差异代谢物;结合单变量分析,通过P<0.05(t检验)筛选出差异代谢物。根据上述标准,2个品种鸡胸肌共筛选出615种差异代谢物,其中210种上调,405种下调(图3-A);其中,氨基酸及其代谢物含量以及占比最高(114种,18.5%),其次分别是苯及其取代衍生物(76种,12.4%)、甘油磷脂类(67种,10.9%)、有机酸及其衍生物(53种,8.6%)以及醛类、酮类、酯类(52种,8.5%)和杂环化合物(46种,7.5%)(图3-B)。
图3 河田鸡和科宝肉鸡胸肌差异代谢物

A:差异代谢物火山图 volcano plot of differential metabolites;B:差异代谢物分类图 classification diagram of differential metabolites。

Fig.3 Differential metabolites in breast muscle between Hetian chickens and Cobb broilers

表3可知,在与科宝肉鸡对比分析中,河田鸡胸肌L-组氨酸、1-甲基组胺、3-甲基-L-组氨酸、肌肽、4-甲基-2-氧代戊酸、大部分磷脂酰胆碱和磷酸胆碱以及L-苏氨酸等差异代谢物显著上调(P<0.05),磷酸核糖基-单磷酸腺苷、二乙醇胺、α-酮戊二酸、溶血磷脂酰胆碱、L-谷氨酸、7-羟甲基叶绿素a、5-氨基咪唑核糖核苷酸以及(7R,8Z)-细菌叶绿素b等差异代谢物显著下调(P<0.05)。河田鸡在氨基酸相关的代谢通路中表现出显著富集,河田鸡胸肌中组氨酸含量远高于科宝肉鸡,组氨酸代谢途径的多个步骤和中间产物也显著升高;河田鸡在磷脂相关的代谢通路中表现出显著富集,河田鸡胸肌磷脂酰胆碱和磷酸胆碱含量升高,科宝肉鸡胸肌溶血磷脂酰胆碱含量升高;在卟啉代谢中,科宝肉鸡胸肌7-羟甲基叶绿素a、(7R,8Z)-细菌叶绿素b等代谢物含量提高。基于上述结果,不同品种对肌肉氨基酸代谢与合成、磷脂代谢以及卟啉代谢等途径有显著影响。
表3 河田鸡和科宝肉鸡胸肌差异代谢物筛选结果

Table 3 Screening results of differential metabolites in breast muscle between Hetian chickens and Cobb broilers

代谢物
Metabolites
变量投影重要性
VIP
P
P-value
类型
Type
L-组氨酸β-萘酰胺L-histidine beta-naphthylamide 1.774 837 0.001 038 下调
L-丙氨酰-L-色氨酸L-alanyl-L-tryptophan 1.742 213 0.001 104 上调
溶血磷脂酰胆碱(0∶0/20∶3) LPC (0∶0/20∶3) 1.760 942 0.001 201 下调
1-油酰基-2-棕榈酰基-sn-甘油-3-磷酸胆碱
1-oleoyl-2-palmitoyl-sn-glycero-3-phosphocholine
1.702 277 0.001 202 上调
组氨酸-精氨酸-天门冬酰氨His-Arg-Asn 1.749 634 0.001 519 下调
7(1)-羟基脱植基叶绿素a 7(1)-hydroxychlorophyllide a 1.622 357 0.001 667 上调
酪氨酸-谷氨酸-天冬氨酸-酪氨酸-缬氨酸Tyr-Glu-Asp-Tyr-Val 1.382 545 0.001 814 下调
酪氨酸-谷氨酰胺-谷氨酰胺Tyr-Gln-Gln 1.818 613 0.001 901 下调
组氨酸-亮氨酸-谷氨酸His-Leu-Glu 1.582 898 0.001 940 下调
7-羟甲基叶绿素a 7-hydroxymethyl chlorophyll a 1.544 001 0.002 016 下调
组氨酸-苯丙氨酸-苯丙氨酸His-Phe-Phe 1.635 337 0.002 292 上调
苯丙氨酰-色氨酸-谷氨酸Phe-Trp-Glu 1.665 932 0.002 607 上调
4-甲基-2-氧代戊酸4-methyl-2-oxopentanoic acid 1.579 375 0.003 862 上调
磷脂酰胆碱(18∶0/18∶2) PC (18∶0/18∶2) 1.490 836 0.003 920 上调
磷脂酰胆碱[20∶2(11Z,14Z)/22∶6(4Z,7Z,10Z,13Z,16Z,19Z)]
PC [20∶2(11Z,14Z)/22∶6(4Z,7Z,10Z,13Z,16Z,19Z)]
1.517 673 0.004 688 上调
L-组氨酸L-histidine 1.425 975 0.005 151 上调
磷脂酰胆碱[16∶0/22∶5(4Z,7Z,10Z,13Z,16Z)]
PC [16∶0/22∶5(4Z,7Z,10Z,13Z,16Z)]
1.707 053 0.006 613 上调
1-甲基组胺1-methylhistamine 1.430 347 0.006 677 上调
磷脂酰胆碱[20∶5(5Z,8Z,11Z,14Z,17Z)/22∶4(7Z,10Z,13Z,16Z)]
PC [20∶5(5Z,8Z,11Z,14Z,17Z)/22:4(7Z,10Z,13Z,16Z)]
1.297 417 0.007 128 上调
磷脂酰胆碱(18∶0/18∶0) PC(18∶0/18∶0) 1.439 377 0.007 465 上调
溶血磷脂酰胆碱(0∶0/22∶5) LPC (0∶0/22∶5) 1.662 878 0.007 486 下调
磷脂酰胆碱(16∶0/P-18∶0) PC (16∶0/P-18∶0) 1.647 169 0.007 491 上调
1,2-二亚油酰基-sn-甘油-3-磷酸胆碱
1,2-dilinoleoyl-sn-glycero-3-phosphocholine
1.718 651 0.007 771 上调
1-棕榈酰基-2-十二碳六烯酰基-sn-甘油-3-磷酸胆碱
1-palmitoy-2-docosahexaenoyl-sn-glycero-3-phosphocholine
1.569 355 0.008 394 上调
2-(α-D-甘露糖基)-3-磷酸甘油酸
2-(alpha-D-mannosyl)-3-phosphoglyceric acid
1.388 148 0.008 864 下调
细菌脱镁叶绿素a Bacteriopheophytin a 1.491 538 0.008 913 上调
苯丙氨酰-苏氨酸Phe-Thr 1.387 603 0.010 127 下调
溶血磷脂酰胆碱(18∶0/0∶0) LPC (18∶0/0∶0) 1.441 912 0.011 061 下调
苏氨酸-精氨酸-亮氨酸Thr-Arg-Leu 1.327 049 0.011 277 下调
磷脂酰胆碱(22∶0/16∶0) PC (22∶0/16∶0) 1.565 847 0.011 403 下调
溶血磷脂酰胆碱(16∶1/0∶0) LPC (16∶1/0∶0) 1.249 894 0.011 519 下调
磷脂酰胆碱(16∶0/2∶0) PC (16∶0/2∶0) 1.552 024 0.011 520 下调
磷脂酰胆碱[(20∶5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)]
PC[(20∶5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)]
1.438 639 0.011 888 上调
L-组胺醇L-histidinol 1.403 236 0.011 966 上调
(7R,8Z)-细菌叶绿素b (7R,8Z)-bacteriochlorophyll b 1.610 611 0.013 035 下调
肌肽Carnosine 1.324 043 0.013 038 上调
组氨酸-谷氨酸-谷氨酰胺-赖氨酸His-Glu-Gln-Lys 1.278 147 0.013 279 下调
磷脂酰胆碱[18∶1(9Z)/22∶5(4Z,7Z,10Z,13Z,16Z)]
PC [18∶1(9Z)/22∶5(4Z,7Z,10Z,13Z,16Z)] 1.377 156 0.013 641 下调
磷脂酰胆碱[20∶4(8Z,11Z,14Z,17Z)/15∶0] PC [20∶4(8Z,11Z,14Z,17Z)/15∶0] 1.252 760 0.014 221 上调
磷脂酰胆碱[14∶0/P-18∶1(11Z)] PC [14∶0/P-18∶1(11Z)] 1.262 189 0.014 520 下调
丁酰血小板活化因子Butenoyl-PAF 1.379 510 0.015 172 下调
4-羟基-2-酮戊二酸4-hydroxy-2-ketoglutaric acid 1.114 586 0.016 149 上调
3-甲基-L-组氨酸3-methyl-L-histidine 1.293 734 0.017 407 上调
溶血磷脂酰胆碱(16∶0/0∶0) LPC (16∶0/0∶0) 1.318 642 0.018 518 下调
磷脂酰胆碱[20∶5(5Z,8Z,11Z,14Z,17Z)/20∶0]
PC [20∶5(5Z,8Z,11Z,14Z,17Z)/20∶0]
1.340 882 0.019 028 上调
磷酸核糖基-单磷酸腺苷Phosphoribosyl-AMP 1.503 692 0.019 525 下调
DL-甘油醛3-磷酸DL-glyceraldehyde 3-phosphate 1.492 794 0.019 548 上调
组氨酸-精氨酸-赖氨酸-谷氨酸His-Arg-Lys-Glu 1.644 695 0.019 584 上调
磷脂酰胆碱(O-16∶0/0∶0) PC (O-16∶0/0∶0) 1.631 336 0.019 936 上调
二乙醇胺Diethanolamine 1.226 321 0.020 439 下调
溶血磷脂酰胆碱(18∶1/0∶0) LPC (18∶1/0∶0) 1.339 452 0.021 506 下调
组氨酸-谷氨酰胺-丙氨酸-精氨酸His-Gln-Ala-Arg 1.195 754 0.022 070 上调
组氨酸-谷氨酰胺-缬氨酸-赖氨酸His-Gln-Val-Lys 1.347 431 0.024 293 下调
鹅肌肽Anserine 1.262 286 0.025 018 上调
[2-羟基-3-[(9Z,12Z)-十八碳-9,12-二烯酰]氧基丙基]
2-(三甲基铵基)乙基磷酸酯
[2-hydroxy-3-[(9Z,12Z)-octadeca-9,12-dienoyl]oxypropyl]
2-(trimethylazaniumyl) ethyl phosphate
1.345 400 0.025 023 下调
1-肉豆蔻酰基-2-硬脂酰基-sn-甘油-3-磷酸胆碱
1-myristoyl-2-stearoyl-sn-glycero-3-phosphocholine
1.241 213 0.025 187 下调
磷脂酰胆碱(22∶0/15∶0) PC (22∶0/15∶0) 1.605 952 0.027 394 上调
2-花生四烯酰基-1-硬脂酰基-sn-甘油-3-磷酸乙醇胺
2-arachidenyl-1-stearoyl-sn-glycero-3-phosphorylethanolamine
1.289 888 0.027 964 上调
谷氨酸-苯丙氨酸-亮氨酸-赖氨酸Glu-Phe-Leu-Lys 1.345 262 0.028 412 上调
代谢物
Metabolites
变量投影重要性
VIP
P值
P-value
类型
Type
溶血磷脂酰胆碱(O-18∶1) LPC (O-18∶1) 1.315 660 0.028 853 下调
2-油酰基-1-硬脂酰基-sn-甘油-3-磷酸丝氨酸
2-oleoyl-1-stearoyl-sn-glycero-3-phosphoserine
1.245 893 0.029 248 下调
磷脂酰胆碱[20∶4(5Z,8Z,11Z,14Z)/15∶0] PC [20∶4(5Z,8Z,11Z,14Z)/15∶0] 1.180 007 0.029 578 上调
L-苏氨酸L-threonine 1.353 944 0.029 993 上调
Pov-pc 1.500 523 0.031 161 上调
谷氨酸-赖氨酸-亮氨酸-苏氨酸-组氨酸Glu-Lys-Leu-Thr-His 1.142 025 0.031 264 上调
溶血磷脂酰胆碱(20∶2/0∶0) LPC (20∶2/0∶0) 1.318 992 0.032 038 下调
脯氨酰-苏氨酰-组氨酸Pro-Thr-His 1.387 250 0.037 692 下调
L-谷氨酸L-glutamic acid 1.145 046 0.040 829 下调
α-酮戊二酸α-ketoglutaric acid 1.338 172 0.040 880 下调
1-(1Z-十八碳烯基)-sn-甘油-3-磷酸胆碱
1-(1Z-octadecenyl)-sn-glycero-3-phosphocholine
1.181 907 0.043 265 下调
5-氨基咪唑核糖核苷酸5-aminoimidazole ribonucleotide 1.051 364 0.044 552 下调
N-乙酰-L-组氨酸N-acetyl-L-histidine 1.248 697 0.045 312 上调
1-十六烷基-2-(9Z-十八烯酰基)-sn-甘油-3-磷酸乙醇胺
1-hexadecyl-2-(9Z-octadecenoyl)-sn-glycero-3-phosphoethanolamine
1.372 266 0.047 426 上调

2.4 2种鸡胸肌差异代谢物功能分析

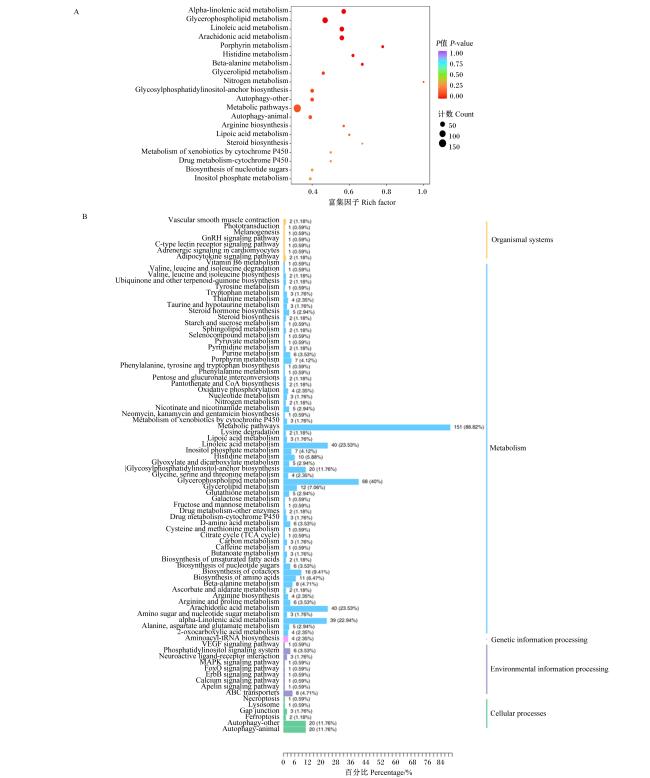
京都基因与基因组百科全书(KEGG)通路富集分析结果表明,与科宝肉鸡相比,河田鸡胸肌差异代谢物功能显著富集到α-亚麻酸代谢、甘油磷脂代谢、亚油酸代谢、花生四烯酸代谢、卟啉代谢以及组氨酸代谢等途径(P<0.05,图4-A);进一步分析这些富集通路在2组的差异发现,代谢通路(88.82%)、甘油磷脂代谢(40.00%)、花生四烯酸代谢(23.53%)、亚油酸代谢(23.53%)、α-亚麻酸代谢(22.94%)以及组氨酸代谢(5.88%)等在河田鸡胸肌代谢通路中均表现出上调(图4-B)。
图4 河田鸡和科宝肉鸡胸肌差异代谢物功能分析

A:差异代谢物KEGG通路富集图 KEGG pathway enrichment plot of differential metabolites;B:差异代谢物KEGG通路分类图 KEGG pathway classification plot of differential metabolites。

Alpha-linolenic acid metabolism:α-亚麻酸代谢;Glycerophospholipid metabolism:甘油磷脂代谢;Linoleic acid metabolism:亚油酸代谢;Arachidonic acid metabolism:花生四烯酸代谢;Porphyrin metabolism:卟啉代谢;Histidine metabolism:组氨酸代谢;Beta-alanine metabolism:β-丙氨酸代谢;Glycerolipid metabolism:甘油酯代谢;Nitrogen metabolism:氮代谢;Glycosylphosphatidylinositol-anchor biosynthesis:糖基磷脂酰肌醇锚定生物合成;Autophagy-other:自噬-其他;Metabolic pathways:代谢通路;Autophagy-animal:自噬-动物;Arginine biosynthesis:精氨酸生物合成;Lipoic acid metabolism:硫辛酸代谢;Steroid biosynthesis:类固醇生物合成;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源物质的代谢;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;Biosynthesis of nucleotide sugars:核苷酸糖生物合成;Inositol phosphate metabolism:肌醇磷酸代谢;Vascular smooth muscle contraction:血管平滑肌收缩;Phototransduction:光转导;Melanogenesis:黑色素生成;GnRH signaling pathway:促性腺激素释放激素信号通路;C-type lectin receptor signaling pathway:C型凝集素受体信号通路;Adrenergic signaling in cardiomyocytes:心肌细胞中的肾上腺素能信号传导;Adipocytokine signaling pathway:脂肪细胞因子信号通路;Vitamin B6 metabolism:维生素B6代谢;Valine, leucine and isoleucine degradation:缬氨酸、亮氨酸和异亮氨酸降解;Valine, leucine and isoleucine biosynthesis:缬氨酸、亮氨酸和异亮氨酸生物合成;Ubiquinone and other terpenoid-quinone biosynthesis:泛醌及其他萜类醌生物合成;Tyrosine metabolism:酪氨酸代谢;Tryptophan metabolism:色氨酸代谢;Thiamine metabolism:硫胺素代谢;Taurine and hypotaurine metabolism:牛磺酸和亚牛磺酸代谢;Steroid hormone biosynthesis:类固醇激素生物合成;Starch and sucrose metabolism:淀粉和蔗糖代谢;Sphingolipid metabolism:鞘脂代谢;Selenocompound metabolism:硒化合物代谢;Pyruvate metabolism:丙酮酸代谢;Pyrimidine metabolism:嘧啶代谢;Purine metabolism:嘌呤代谢;Phenylalanine, tyrosine and tryptophan biosynthesis:苯丙氨酸、酪氨酸和色氨酸生物合成;Phenylalanine metabolism:苯丙氨酸代谢;Pentose and glucuronate interconversions:戊糖与葡萄糖醛酸互变;Pantothenate and CoA biosynthesis:泛酸和辅酶A生物合成;Oxidative phosphorylation:氧化磷酸化;Nucleotide metabolism:核苷酸代谢;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;Neomycin, kanamycin and gentamicin biosynthesis:新霉素、卡那霉素和庆大霉素生物合成;Lysine degradation:赖氨酸降解;Glyoxylate and dicarboxylate metabolism:乙醛酸和二羧酸代谢;Glycine, serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Glutathione metabolism:谷胱甘肽代谢;Galactose metabolism:半乳糖代谢;Fructose and mannose metabolism:果糖和甘露糖代谢;Drug metabolism-other enzymes:药物代谢-其他酶;D-amino acid metabolism:D-氨基酸代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Citrate cycle (TCA cycle):柠檬酸循环(三羧酸循环);Carbon metabolism:碳代谢;Caffeine metabolism:咖啡因代谢;Butanoate metabolism:丁酸代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸生物合成;Biosynthesis of cofactors:辅因子生物合成;Biosynthesis of amino acids:氨基酸生物合成;Ascorbate and aldarate metabolism:抗坏血酸和醛糖酸代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢;Alanine, aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;2-oxocarboxylic acid metabolism:2-氧代羧酸代谢;Aminoacyl-tRNA biosynthesis:氨酰-tRNA生物合成;VEGF signaling pathway:血管内皮生长因子信号通路;Phosphatidylinositol signaling system:磷脂酰肌醇信号系统;Neuroactive ligand-receptor interaction:神经活性配体-受体相互作用;MAPK signaling pathway:丝裂原活化蛋白激酶信号通路;FoxO signaling pathway:FoxO信号通路;ErbB signaling pathway:ErbB信号通路;Calcium signaling pathway:钙信号通路;Apelin signaling pathway:Apelin信号通路;ABC transporters:ABC转运蛋白;Necroptosis:坏死性凋亡;Lysosome:溶酶体;Gap junction:间隙连接;Ferroptosis:铁死亡;Organismal systems:有机系统;Metabolism:代谢;Genetic information processing:遗传信息处理;Environmental information processing:环境信息处理;Cellular processes:细胞过程。

Fig.4 Functional analysis of differential metabolites in breast muscle between Hetian chickens and Cobb broilers

2.5 蛋白质相互作用(PPI)网络分析

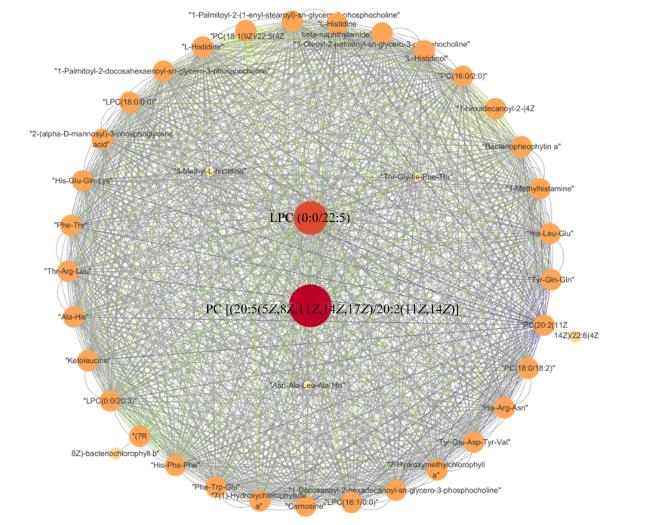
为了阐明重点代谢物之间的相关性,对筛选出的615种差异显著代谢物采用皮尔逊(Pearson)相关分析方法进行相关性分析;将差异代谢物及相关系数导入Cytoscape 3.7.1软件,进行交集靶点的拓扑分析并生成PPI网络可视化图,结果如图5所示。结果表明,39种重点代谢物之间存在显著相关性,其中磷脂酰胆碱[(20∶5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)]和溶血磷脂酰胆碱(0∶0/22∶5)位于中心靶点,且多种磷脂与氨基酸之间存在关联。
图5 PPI网络

PC [(20∶5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)]:磷脂酰胆碱[(20:5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)] phosphatidylcholine [(20∶5(5Z,8Z,11Z,14Z,17Z)/20∶2(11Z,14Z)];LPC (0∶0/22∶5):溶血磷脂酰胆碱(0∶0/22∶5) lysophosphatidylcholine (0∶0/22∶5)。

Fig.5 PPI network

3 讨论

鸡肉作为优质的蛋白质来源,是人类饮食中不可或缺的一部分,其风味、嫩度和营养成分显著影响消费者的选择。当前鸡肉市场上,快大型商品肉鸡占据较大份额,但与地方品种鸡相比,快大型肉鸡在肉质风味、营养成分和口感等指标上较差。随着人们对肉类品质需求的提高,地方品种肉鸡其独特的肉质风味和较高的营养价值,逐渐受到广泛关注。本研究采用代谢组学方法对河田鸡和科宝肉鸡肉质特性及其分子机制进行研究,结果发现,河田鸡与科宝肉鸡胸肌之间存在615种差异代谢物,其中210种上调,405种下调,主要包括氨基酸及其衍生物、苯及其取代衍生物、甘油磷脂类、有机酸及其衍生物以及醛类、酮类、酯类和杂环化合物等。在河田鸡胸肌中,磷酸胆碱、磷脂酰胆碱、组氨酸及其衍生物以及其相关代谢通路均表现出上调。研究表明,磷脂可能是影响肌肉发育和鸡肉品质的重要因素,磷脂的水解会生成脂肪酸,随后通过进一步氧化产生醛和酮,从而对风味产生影响[14]
本研究对河田鸡和科宝肉鸡常规肉品质检测表明,品种会影响鸡肉颜色,河田鸡的肉色更亮、更红。在卟啉代谢中,筛选出多种差异代谢物。胆绿素是一种由血红素代谢生成的色素[15],本试验发现其在河田鸡胸肌中上调,表明河田鸡的血红素代谢更活跃。叶绿素是典型的绿色色素,其在科宝肉鸡胸肌中的高含量会导致呈现明显的绿色色调[16-17],而消费者更倾向于购买红色光泽的鸡肉[18]
多种磷脂和氨基酸在2种鸡胸肌之间富集表现出显著的差异性,这可能是其肉质和风味差异的主要原因。磷脂通过影响肉的风味、嫩度和水分保持,氨基酸则通过调节鲜味、香气和口感共同决定肉的感官质量。同时,检测出的磷脂和氨基酸间也存在着关联性。已有相关研究表明,溶血磷脂酰胆碱和氨基酸代谢轮廓与非酒精性脂肪性肝病密切相关[19]。本研究结果表明,品种会显著影响胸肌的代谢物,从而影响肉品质,这与很多研究结果[6,18,20-23]一致。从差异代谢物分析结果表明,河田鸡胸肌组氨酸含量显著上调,而谷氨酸含量低于科宝肉鸡。河田鸡胸肌组氨酸和4-甲基-2-氧代戊酸含量升高,会对其参与的缬氨酸、亮氨酸和异亮氨酸生物合成产生影响。科宝肉鸡胸肌谷氨酸和α-酮戊二酸含量升高,在代谢通路中2种物质共同参与精氨酸生物合成、丙氨酸、天冬氨酸和谷氨酸代谢、牛磺酸和亚牛磺酸代谢、D-氨基酸代谢、乙醛酸和二羧酸代谢以及丁酸代谢等多个过程,促进科宝肉鸡的部分氨基酸代谢、碳代谢等生物过程。
科宝肉鸡检测出胸肌磷酸核糖基-单磷酸腺苷和谷氨酸含量高于河田鸡,也说明其参与的嘌呤代谢强于河田鸡。河田鸡的组氨酸代谢通路更加活跃,组氨酸含量也更高。研究表明,烹煮过程中,游离氨基酸易与组氨酸发生美拉德反应,生成特定风味化合物,从而赋予河田鸡独特的烹饪风味[24-25]。组氨酸还能通过提升肌肉中肌肽含量,改善鸡肉品质[26]。在多条代谢通路中,科宝肉鸡胸肌显示出较高的谷氨酸含量,而L-谷氨酸是鲜味的关键贡献者[18]。谷氨酸还是氨基酸代谢的重要中间产物,与α-酮戊二酸共同参与多条氨基酸代谢和合成途径。高水平的谷氨酸能够促进肌肉脂肪积累和脂肪酸含量提升,从而改善肉的嫩度、多汁性及整体食用品质[27],这与本研究得出的科宝肉鸡嫩度优于河田鸡的结论一致。科宝肉鸡作为商业化肉用鸡,其快速生长可能导致代谢中间产物谷氨酸水平的持续上调。沈啸等[8]研究表明,与快大型肉鸡相比,慢长型鸡种肌肉中的氨基酸总量显著更高。本研究表明,河田鸡胸肌氨基酸总量高于科宝肉鸡,而科宝肉鸡胸肌谷氨酸(鲜味氨基酸)含量更高。
磷脂在肉类加工中会分解生成多种脂肪酸,在肉风味的形成中起关键作用[28]。含磷脂较高的肉可能具备更丰富的脂肪风味和香气[29-32]。本研究发现,河田鸡胸肌在磷脂代谢水平上高于科宝肉鸡,河田鸡胸肌的磷脂酰胆碱和磷酸胆碱含量显著高于科宝肉鸡。因此可以推测河田鸡肌肉的高磷脂含量使其烹饪后风味更加浓郁。磷脂酰胆碱等成分可与其他风味物质相互作用,提升鲜味并增加整体风味的复杂性。磷脂作为细胞膜的重要成分,影响细胞结构的稳定性。较高的磷脂含量可提高细胞膜的流动性和弹性,减少烹饪过程中的水分流失[30]。河田鸡较高的肌肉磷脂含量可能使其嫩度低于科宝肉鸡,这与河田鸡胸肌剪切力极显著高于科宝肉鸡的结果一致。溶血磷脂酰胆碱在科宝肉鸡胸肌中上调,高水平的溶血磷脂酰能显著提高肉类的系水能力,进而改善肉质和口感[33],本研究中科宝肉鸡滴水损失低于河田鸡,但差异不显著。此外,河田鸡和科宝肉鸡的肉质差异不仅由代谢物的不同分布决定,还受到生长周期、肌肉类型、脂肪沉积及肉质结构等生理特征的影响。河田鸡较长的生长周期和紧密的肌肉纤维使其肉质风味更加浓郁,而科宝肉鸡的短周期生长和较高脂肪沉积则使其肉质更加嫩滑。

4 结论

本研究测定了河田鸡和科宝肉鸡的肉品质及肌肉代谢物,结果显示两者在肉质、代谢物和代谢通路上存在显著差异。河田鸡肌肉在氨基酸和磷脂含量上高于科宝肉鸡,尤其在甘油磷脂、花生四烯酸、亚油酸、α-亚麻酸和组氨酸代谢上显示出更高水平。河田鸡肌肉组氨酸含量高于科宝肉鸡,科宝肉鸡肌肉谷氨酸及其衍生物含量更高。由于卟啉代谢中多种色素的作用,河田鸡肉色更亮、更红。河田鸡肌肉磷脂酰胆碱和磷酸胆碱含量高于科宝肉鸡,溶血磷脂酰胆碱含量低于科宝肉鸡,这可能是其嫩度低于科宝肉鸡的主要原因。
[1]
HOU X H, ZHANG R, YANG M, et al. Metabolomics and lipidomics profiles related to intramuscular fat content and flavor precursors between Laiwu and Yorkshire pigs[J]. Food Chemistry, 2023, 404(Pt A):134699.

[2]
LU Q, WEN J, ZHANG H. Effect of chronic heat exposure on fat deposition and meat quality in two genetic types of chicken[J]. Poultry Science, 2007, 86(6):1059-1064.

PMID

[3]
姜琳琳. 不同品种鸡的肌肉化学成分及其与风味关系的比较研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2006.

JIANG L L. Comparation of the chemical composition in different kinds of broilers meat and the relationship with the flavour[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2006. (in Chinese)

[4]
邢通, 王成赞, 张林, 等. 鸡肉风味物质的影响因素及其营养调控研究进展[J]. 动物营养学报, 2021, 33(6):3028-3035.

DOI

XING T, WANG C Z, ZHANG L, et al. Research advance of factors affecting chicken meat flavor and its nutritional regulation[J]. Chinese Journal of Animal Nutrition, 2021, 33(6):3028-3035. (in Chinese)

[5]
张茹, 李旭真, 孙大卫, 等. 茶花鸡和科宝肉鸡肌肉氨基酸含量与GARTIL4I1基因表达差异及相关性分析[J]. 中国家禽, 2020, 42(12):14-18.

ZHANG R, LI X Z, SUN D W, et al. Analysis of the difference and correlation between amino acid content and GART,IL4I1 gene expression in Chahua chicken and Cobb broiler[J]. China Poultry, 2020, 42(12):14-18. (in Chinese)

[6]
杨兰. 基于代谢组学研究云南部分地方鸡与商品肉鸡风味物质形成及其相关基因表达差异[D]. 硕士学位论文. 昆明: 云南农业大学, 2022.

YANG L. Study on flavor substance formation and related gene expression differences between Yunnan local chicken and commercial broiler based on metabolomics[D]. Master’s Thesis. Kunming: Yunnan Agricultural University, 2022. (in Chinese)

[7]
李忠荣, 邱其华, 邱华玲, 等. 不同日龄阉割对河田鸡屠宰性能、胸肌肉品质及脂肪酸组成的影响[J]. 动物营养学报, 2023, 35(9):5663-5673.

DOI

LI Z R, QIU Q H, QIU H L, et al. Effects of caponization at different ages on slaughter performance,meat quality and fatty acid composition of breast muscle of Hetian chickens[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):5663-5673. (in Chinese)

[8]
沈啸, 樊艳凤, 唐修君, 等. 不同生长速度肉鸡肌肉品质比较[J]. 中国家禽, 2021, 43(5):8-13.

SHEN X, FAN Y F, TANG X J, et al. Comparison of meat quality of broilers with different growth rate[J]. China Poultry, 2021, 43(5):8-13. (in Chinese)

[9]
YUAN C Y, JIANG Y, WANG Z X, et al. Indigenous,yellow-feathered chickens body measurements,carcass traits,and meat quality depending on marketable age[J]. Animals, 2022, 12(18):2422.

[10]
RAAMSDONK L M, TEUSINK B, BROADHURST D, et al. A functional genomics strategy that uses metabolome data to reveal the phenotype of silent mutations[J]. Nature Biotechnology, 2001, 19(1):45-50.

DOI PMID

[11]
LI S B, TIAN Y F, JIANG P Y Z, et al. Recent advances in the application of metabolomics for food safety control and food quality analyses[J]. Critical Reviews in Food Science and Nutrition, 2021, 61(9):1448-1469.

[12]
HWANG Y H, LEE E Y, LIM H T, et al. Multi-omics approaches to improve meat quality and taste characteristics[J]. Food Science of Animal Resources, 2023, 43(6):1067-1086.

[13]
孙远方, 马勇, 王建文, 等. 速度型伊犁马短途比赛前后血浆代谢组学研究[J]. 动物营养学报, 2024, 36(4):2561-2571.

DOI

SUN Y F, MA Y, WANG J W, et al. Study on plasma metabolomics before and after short distance race of speed Yili horses[J]. Chinese Journal of Animal Nutrition, 2024, 36(4):2561-2571. (in Chinese)

[14]
王雅婷, 曾雅婷, 张幸哲, 等. 基于脂质组学和风味组学分析日龄、品种对鸭胸肌风味的影响[J]. 畜牧兽医学报, 2024, 55(10):4403-4416.

DOI

WANG Y T, ZENG Y T, ZHANG X Z, et al. Analysis of the effects of age and variety on the flavor of duck breast muscle based on lipidomics and flavoromics[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(10):4403-4416. (in Chinese)

DOI

[15]
WIDEMAN N. O’BRYAN C A, CRANDALL P G. Factors affecting poultry meat colour and consumer preferences—a review[J]. World’s Poultry Science Journal, 2016, 72(2):353-366.

[16]
涂美艳. 猕猴桃果肉颜色差异机理及相关EST-SSR分子标记开发[D]. 博士学位论文. 雅安: 四川农业大学, 2019.

TU M Y. Studies on the mechanism of flesh color various and development of EST-SSR molecular markers of kiwifruit[D]. Ph.D. Thesis. Ya’an: Sichuan Agricultural University, 2019. (in Chinese)

[17]
怀欲晓, 董鹏程, 张一敏, 等. 人造肉颜色模拟研究现状分析及展望[J]. 食品工业, 2024, 45(9):270-275.

HUAI Y X, DONG P C, ZHANG Y M, et al. Analysis of the current state and future prospects of artificial meat color simulation[J]. The Food Industry, 2024, 45(9):270-275. (in Chinese).

[18]
BARBUT S. Acceptance of fresh chicken meat presented under three light sources[J]. Poultry Science, 2001, 80(1):101-104.

PMID

[19]
赵梅玉, 史欣悦, 周姝伶, 等. 非酒精性脂肪性肝病大鼠的血清溶血磷脂酰胆碱和氨基酸代谢轮廓研究[J]. 中国实验动物学报, 2024, 32(4):477-484.

ZHAO M Y, SHI X Y, ZHOU S L, et al. Metabolic profiles of serum lysophosphatidylcholine and amino acids in rats with nonalcoholic fatty liver disease[J]. Acta Laboratorium Animalis Scientia Sinica, 2024, 32(4):477-484. (in Chinese)

[20]
WANG Y K, LIU X J, WANG Y L, et al. Metabolomics-based analysis of the major taste contributors of meat by comparing differences in muscle tissue between chickens and common livestock species[J]. Foods, 2022, 11(22):3586.

[21]
CHEN G H, QI L, ZHANG S, et al.Metabolomic,lipidomic,and proteomic profiles provide insights on meat quality differences between Shitou and Wuzong geese[J]. Food Chemistry, 2024,438:137967.

[22]
ZHANG L L, LI L, XIN Q W, et al. Metabolomic characterization of Liancheng white and cherry valley duck breast meat and their relation to meat quality[J]. Poultry Science, 2023, 102(11):103020.

[23]
陈昌毅. 基于代谢组学和统计分析方法探究巴马香猪和德保黑猪肉质相关代谢物及其通路[D]. 硕士学位论文. 南宁: 广西大学, 2023.

CHEN C Y. Metabolomics and statistical analysis to investigate the meat quality-related metabolites and their pathways in Bama Xiang pig and Debao black pig[D]. Master’s Thesis. Nanning: Guangxi University, 2023. (in Chinese)

[24]
ZHANG T, CHEN C, XIE K Z, et al. Current state of metabolomics research in meat quality analysis and authentication[J]. Foods, 2021, 10(10):2388.

[25]
ZHU C Z, ZHAO J L, TIAN W, et al. Contribution of histidine and lysine to the generation of volatile compounds in Jinhua ham exposed to ripening conditions via Maillard reaction[J]. Journal of Food Science, 2018, 83(1):46-52.

[26]
KIM M, MUNYANEZA J P, CHO E, et al. Genome-wide association studies of anserine and carnosine contents in the breast meat of Korean native chickens[J]. Poultry Science, 2024, 103(5):103590.

[27]
LACKNER J, ALBRECHT A, MITTLER M, et al. Effect of feeding histidine and β-alanine on carnosine concentration,growth performance,and meat quality of broiler chickens[J]. Poultry Science, 2021, 100(11):101393.

[28]
GUO Q, KONG X F, HU C J, et al. Fatty acid content,flavor compounds,and sensory quality of pork loin as affected by dietary supplementation with L-arginine and glutamic acid[J]. Journal of Food Science, 2019, 84(12):3445-3453.

[29]
WANG D Y, ZHU Y Z, XU W M. Composition of intramuscular phospholipids and free fatty acids in three kinds of traditional Chinese duck meat products[J]. Poultry Science, 2009, 88(1):221-226.

DOI PMID

[30]
CHEN D W, BALAGIANNIS D P, PARKER J K. Use of egg yolk phospholipids to generate chicken meat odorants[J]. Food Chemistry, 2019,286:71-77.

[31]
CHEN Q Q, ZHANG W, XIAO L X, et al. Multi-omics reveals the effect of crossbreeding on some precursors of flavor and nutritional quality of pork[J]. Foods, 2023, 12(17):3237.

[32]
LIU H, ZHANG Y P, JI H B, et al. A lipidomic and volatilomic approach to map the lipid profile and related volatile compounds in roasted quail meat using circulating non-fried roast technology[J]. Food Chemistry, 2024,461:140948.

[33]
LIU N, DENG X J, WANG J P, et al. Effect of lysophospholipids on the growth performance,nutrient digestibility,lipid metabolism and meat quality of fattening rabbits[J]. Archives of Animal Nutrition, 2023, 77(6):487-496.

文章导航

/