研究论文

平菇多糖通过靶向线粒体功能障碍缓解黄曲霉毒素B1诱导的猪小肠上皮细胞氧化损伤

  • 张华 , 1 ,
  • 鹿萱萱 1, 2 ,
  • 高佳悦 1, 2 ,
  • 顾昊杨 1 ,
  • 杨志宏 1 ,
  • 丁习文 1 ,
  • 许志芹 1, 2 ,
  • 万运豪 1 ,
  • 周闯 , 1, 3, *
展开
  • 1 江苏农林职业技术学院畜牧兽医学院, 句容 212400
  • 2 金陵科技学院动物科学与食品工程学院, 南京 210038
  • 3 甘肃农业大学动物医学院, 兰州 730070
*周 闯,讲师,E-mail:

张 华(1988—),女,山东聊城人,讲师,博士,研究方向为真菌毒素与食品安全。E-mail:

收稿日期: 2025-10-17

  网络出版日期: 2026-03-16

基金资助

江苏农林职业技术学院青年扶持项目(2021kj24)

2025年甘肃省高校研究生“创新之星”项目(2025CXZX-770)

江苏农林职业技术学院科技研究项目(2020kj042)

Pleurotus ostreatus Polysaccharides Alleviate Aflatoxin B1-Induced Oxidative Damage in Porcine Intestinal Epithelial Cells by Targeting Mitochondrial Dysfunction

  • ZHANG Hua , 1 ,
  • LU Xuanxuan 1, 2 ,
  • GAO Jiayue 1, 2 ,
  • GU Haoyang 1 ,
  • YANG Zhihong 1 ,
  • DING Xiwen 1 ,
  • XU Zhiqin 1, 2 ,
  • WAN Yunhao 1 ,
  • ZHOU Chuang , 1, 3, *
Expand
  • 1 College of Animal Husbandry and Veterinary Medicine, Jiangsu Vocational College of Agriculture and Forestry, Jurong 212400, China
  • 2 College of Animal Engineering and Food Engineering, Jinling Institute of Technology, Nanjing 210038, China
  • 3 College of Veterinary Medicine, Gansu Agricultural University, Lanzhou 730070, China
*lecturer, E-mail:

Received date: 2025-10-17

  Online published: 2026-03-16

摘要

本研究旨在探讨平菇多糖(POP)对黄曲霉毒素B1(AFB1)诱导的猪小肠上皮细胞(IPEC-J2细胞)氧化损伤的缓解作用。首先,采用CCK-8试剂盒确定POP和AFB1的作用浓度以及POP的预处理时间;随后,将IPEC-J2细胞分为4组(每组3个重复):1)Control组,不作任何处理;2)AFB1组,16 μmol/L AFB1处理24 h;3)POP+AFB1组,0.25 mg/mL POP先预处理24 h后,再与16 μmol/L AFB1共处理24 h;4)POP组,0.25 mg/mL POP处理24 h。处理结束后,收集细胞,检测活性氧(ROS)相对含量、线粒体膜电位、ATP相对水平、抗氧化酶活性以及凋亡相关蛋白和线粒体动力学相关蛋白的相对表达量。结果显示:1)以16 μmol/L AFB1处理IPEC-J2细胞24 h可成功建立氧化损伤模型;0.25 mg/mL POP预处理24 h可极显著升高细胞活力(P<0.01)。2)与Control组相比,AFB1组ROS相对含量极显著升高(P<0.01),线粒体膜电位和ATP相对水平极显著下降(P<0.01),线粒体融合蛋白1(MFN1)的相对表达量极显著减少(P<0.01),线粒体融合蛋白2(MFN2)的相对表达量显著减少(P<0.05),抗凋亡蛋白B淋巴细胞瘤-2(Bcl-2)的相对表达量极显著降低(P<0.01),Bcl-2/Bcl-2相关X蛋白(Bax)比值显著降低(P<0.05),抗氧化酶谷胱甘肽过氧化物酶(GPX)、超氧化物歧化酶(SOD)和过氧化氢酶(CAT)活性极显著下降(P<0.01),而0.25 mg/mL POP预处理24 h则可逆转以上变化。上述结果提示,POP可通过恢复线粒体功能、维持线粒体动力学平衡,有效缓解AFB1所致的猪小肠上皮细胞氧化损伤。

本文引用格式

张华 , 鹿萱萱 , 高佳悦 , 顾昊杨 , 杨志宏 , 丁习文 , 许志芹 , 万运豪 , 周闯 . 平菇多糖通过靶向线粒体功能障碍缓解黄曲霉毒素B1诱导的猪小肠上皮细胞氧化损伤[J]. 动物营养学报, 2026 , 38(3) : 2154 -2163 . DOI: 10.12418/CJAN2026.172

Abstract

This study aimed to investigate the alleviating effect of Pleurotus ostreatus polysaccharides (POP) on aflatoxin B1 (AFB1)-induced oxidative damage in porcine intestinal epithelial cells (IPEC-J2 cells). First, the working concentrations of POP and AFB1, as well as the pretreatment time of POP, were determined using the CCK-8 kit. Subsequently, IPEC-J2 cells were divided into four groups (with three replicates per group): 1) Control group, no treatment; 2) AFB1 group, treated with 16 μmol/L AFB1 for 24 h; 3) POP+AFB1 group, pretreated with 0.25 mg/mL POP for 24 h, followed by co-treatment with 16 μmol/L AFB1 for another 24 h; 4) POP group, treated with 0.25 mg/mL POP for 24 h. After treatment, cells were collected to measure reactive oxygen species (ROS) relative content, mitochondrial membrane potential, ATP relative level, antioxidant enzyme activities, and the relative expression levels of apoptosis-related proteins and mitochondrial dynamics-related proteins. The results showed that: 1) treatment of IPEC-J2 cells with 16 μmol/L AFB1 for 24 h successfully established an oxidative damage model; pretreatment with 0.25 mg/mL POP for 24 h extremely significantly increased cell viability (P<0.01). 2) Compared with the Control group, the AFB1 group showed an extremely significant increase in ROS relative content (P<0.01), an extremely significant decrease in mitochondrial membrane potential and ATP relative level (P<0.01), an extremely significant reduction in the relative expression level of mitofusin 1 (MFN1) (P<0.01), a significant reduction in the relative expression level of mitofusin 2 (MFN2) (P<0.05), an extremely significant decrease in the relative expression level of the anti-apoptotic protein B-cell lymphoma-2 (Bcl-2) (P<0.01), a significant decrease in the Bcl-2/Bcl-2-associated X protein (Bax) ratio (P<0.05), and an extremely significant reduction in the activities of the antioxidant enzymes glutathione peroxidase (GPX), superoxide dismutase (SOD) and catalase (CAT) (P<0.01). In contrast, pretreatment with 0.25 mg/mL POP for 24 h reversed all the above changes. In conclusion, POP alleviates AFB1-induced oxidative damage in porcine intestinal epithelial cells by restoring mitochondrial function and maintaining mitochondrial dynamics homeostasis.

黄曲霉毒素是一类由曲霉菌等真菌产生的次级代谢产物,其中黄曲霉毒素B1(aflatoxin B1,AFB1)毒性和致癌性最强。根据国际癌症研究机构的分类,AFB1属于1类致癌物[1],其广泛存在于多种饲料原料和配合饲料中[2-4],且结构稳定,难以消除和降解[5]。不同畜禽对AFB1的敏感性存在差异,猪对其尤为敏感[6]。肠道作为毒素侵入机体的首要屏障,其上皮细胞首先接触霉菌毒素。研究显示,长期接触AFB1会引发氧化损伤和肠道屏障障碍,进而抑制猪生长[7]
氧化应激是AFB1的毒性机制核心环节[8-10]。线粒体作为活性氧(reactive oxygen species,ROS)的主要来源与调控中心,在此过程中扮演着关键角色[11]。一方面,ROS爆发会反馈性损伤线粒体,导致能量代谢失调,形成恶性循环[12];另一方面,线粒体通过其动力学(融合与分裂)重塑网络结构,以整合应激信号并调控细胞命运,其动态平衡的破坏是导致功能障碍与ROS过量产生的重要原因[13-15]。已有研究报道,AFB1可通过干扰线粒体动力学途径发挥毒性作用[16-17],这提示靶向线粒体通路是缓解其损伤的潜在策略。
食用菌是天然抗氧化剂的重要来源[18]。平菇是传统的药食两用菌,在世界范围内广泛栽培[19]。据报道,平菇多糖(Pleurotus ostreatus polysaccharides,POP)具有良好的抗氧化活性,主要是通过增强自由基清除能力或提高抗氧化酶活性来实现[19-20]。富硒化POP在抗氧化与抗肿瘤方面表现出巨大的潜能[21]。此外,POP及其与表没食子儿茶素没食子酸酯的复合物也表现出优异的抗氧化和抗菌性能,能对猪肉进行保鲜[22]。然而,目前还没有关于POP是否能缓解AFB1在猪小肠中引起的氧化损伤的报道。因此,本研究选择猪小肠上皮细胞模型IPEC-J2细胞作为研究对象,基于线粒体动力学,探究POP对AFB1诱导的IPEC-J2细胞氧化损伤的缓解作用,为猪生产中AFB1中毒的防控提供新思路。

1 材料与方法

1.1 试验材料

IPEC-J2细胞系购自广州吉妮欧生物科技有限公司;POP为南京农业大学中兽医实验室赠送;AFB1购自青岛普瑞邦有限公司;Western Blot预制胶购自艾普拜生物技术有限公司;胎牛血清(fetal bovine serum,FBS)、杜氏改良Eagle培养基(Dulbecco’s modified Eagle medium,DMEM)、胰酶、Hank’s平衡盐溶液(Hank’s balanced salt solution,HBSS)和线粒体绿色荧光探针(mito-tracker green,MitoGreen)购于赛默飞世尔科技公司;四甲基罗丹明甲酯(tetramethylrhodamine methyl ester,TMRM)购于MCE公司;蛋白Marker购于上海百赛生物技术股份有限公司;线粒体红色荧光探针(mito-tracker red,MitoRed)、蛋白酶抑制剂、ROS检测试剂盒、Western及IP细胞裂解液、谷胱甘肽过氧化物酶(glutathione peroxidase,GPX)检测试剂盒、超氧化物歧化酶(superoxide dismutase,SOD)检测试剂盒、二辛可宁酸(bicinchoninic acid,BCA)蛋白浓度测定试剂盒和ATP检测试剂盒均购自上海碧云天生物技术股份有限公司;过氧化氢酶(catalase,CAT)检测试剂盒购自北京盒子生工科技有限公司;ECL化学发光超敏显色试剂盒购自翌圣生物科技(上海)股份有限公司;CCK-8试剂盒购于APExBIO公司;辣根过氧化物酶标记的山羊抗兔免疫球蛋白G(H+L)[goat anti-rabbit IgG(H+L)HRP]、辣根过氧化物酶标记的山羊抗小鼠IgG(H+L)[goat anti-mouse IgG(H+L)HRP]、甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)、B淋巴细胞瘤-2(B-cell lymphoma-2,Bcl-2)、Bcl-2相关X蛋白(Bcl-2 associated X protein,Bax)、电压依赖性阴离子通道(voltage-dependent anion channel,VDAC)、线粒体融合蛋白1(mitofusin 1,MFN1)、线粒体融合蛋白2(mitofusin 2,MFN2)、线粒体分裂蛋白1(mitochondrial fission 1 protein,Fis1)、视神经萎缩蛋白1(optic atrophy 1,OPA1)和动力蛋白相关蛋白1(dynamin-related protein 1,Drp1)抗体均购自武汉三鹰生物技术有限公司。

1.2 试验方法

1.2.1 溶液配制

1.2.1.1 AFB1工作液的配制

取5 mg AFB1溶于1 mL二甲基亚砜中,配成浓度为16 mmol/L的溶液,-20 ℃分装保存,使用时用含10% FBS的DMEM(完全培养基)稀释成不同浓度。

1.2.1.2 POP工作液配制

取10 mg的POP粉末溶于1 mL无血清DMEM中,配成浓度为10 mg/mL的溶液,0.22 μm过滤器除菌,4 ℃保存,1周内有效,使用时用完全培养基稀释成不同浓度。

1.2.2 细胞培养

IPEC-J2细胞复苏后,用完全培养基将细胞培养于37 ℃、5% CO2的恒温培养箱内,当细胞融合达到80%时,胰酶常规消化传代。

1.2.3 细胞分组与处理

1.2.3.1 POP作用浓度、预处理时间和AFB1作用浓度的筛选

将IPEC-J2细胞接种于96孔板中,根据试验目的不同进行如下处理。
POP安全浓度筛选:分别用0、0.062 5、0.125、0.25、0.5和1 mg/mL POP的DMEM处理24 h,随后使用CCK-8试剂盒检测细胞活力,。
AFB1作用浓度筛选:分别用含0、1、2、4、8、16、32和64 μmol/L AFB1的DMEM处理24 h,随后使用CCK-8试剂盒检测细胞活力。
POP作用浓度筛选:1)仅用培养基培养,不做任何处理(Control组);2)用筛选的最适AFB1作用浓度处理24 h(AFB1组);3)先用0.062 5、0.125、0.25、0.5或1 mg/mL POP预处理24 h,再用最适作用浓度的AFB1与不同浓度的POP共处理24 h(POP+AFB1组)。处理结束后使用CCK-8试剂盒检测细胞活力。
POP预处理时间筛选:1)仅用培养基培养,不做任何处理(Control组);2)用筛选的最适AFB1作用浓度处理24 h(AFB1组);3)先用筛选的最适POP作用浓度分别预处理0、2、6、12、24和36 h,再用最适作用浓度的AFB1与POP共处理24 h(POP+AFB1组)。处理结束后使用CCK-8试剂盒检测细胞活力。

1.2.3.2 POP对AFB1诱导的细胞凋亡和氧化应激的影响

将IPEC-J2细胞接种于6孔板中,并分为4组(每组3个重复):1)Control组,不做任何处理;2)AFB1组,16 μmol/L AFB1处理24 h;3)POP+AFB1组,0.25 mg/mL POP先预处理24 h,再与16 μmol/L AFB1共处理24 h;4)POP组,0.25 mg/mL POP处理24 h。处理结束后,检测细胞内ROS含量、线粒体膜电位、抗氧化酶(CAT、SOD、GPX)活性、ATP相对水平以及凋亡相关蛋白和线粒体动力学相关蛋白的相对表达量。

1.2.4 细胞活力检测

按照1.2.3.1中方法处理后收集细胞,使用磷酸盐缓冲液(PBS)清洗细胞2次;加入10% CCK-8溶液,培养箱孵育2 h后,使用酶标仪(Varioskan LUX,Thermo,美国)在450 nm波长下测定并记录光密度(optical density,OD)值,按照CCK-8试剂盒说明书中的公式计算细胞活力。

1.2.5 细胞内线粒体膜电位检测

按照1.2.3.2中方法处理后收集细胞,使用无血清DMEM清洗细胞1次;加入TMRM(250 nmol/L)和MitoGreen染色液(200 nmol/L),37 ℃、5% CO2培养箱染色30 min;弃染色液,HBSS清洗4次后,使用荧光倒置显微镜观察并拍照,通过荧光强度计算线粒体膜电位。

1.2.6 细胞内ROS相对含量测定

按照1.2.3.2中方法处理后收集细胞,使用无血清DMEM清洗细胞1次;加入2',7'-二氯荧光素二乙酸酯(DCFH-DA)染色液(10 μmol/L)和MitoRed染色液(150 nmol/L),37 ℃、5% CO2培养箱染色20 min;弃染色液,HBSS清洗4次后,使用荧光倒置显微镜观察并拍照,通过荧光强度计算ROS相对含量。

1.2.7 细胞内抗氧化酶活性测定

按照1.2.3.2中方法处理细胞后,参照GPX、SOD、CAT检测试剂盒说明书处理样品,通过酶标仪分别测定340、450和405 nm波长下的OD值后计算相应酶的活性。

1.2.8 细胞内ATP相对水平检测

按照1.2.3.2中方法处理细胞后,参照ATP检测试剂盒说明书处理样品,通过化学发光仪测定相对光单位(RLU)值后计算ATP的相对水平。

1.2.9 细胞内凋亡相关蛋白和线粒体动力学相关蛋白相对表达量检测

按照1.2.3.2中方法处理细胞后,在6孔板中加入Western及IP细胞裂解液,100 μL/孔,冰浴20 min,离心收集上清液;通过BCA法测定蛋白浓度并统一调整为1 μg/mL,95 ℃加热5 min,分装后置于-20 ℃备用。将保存的蛋白样品取出,70 ℃加热3 min,随后将蛋白样品加入电泳孔中,电泳条件为160 V,待溴酚蓝指示移动至分离胶底端时,停止电泳;恒压100 V转膜70 min,TBST(含吐温的Tris缓冲盐溶液)洗3次,5%脱脂牛奶室温封闭1 h;裁剪目的膜片,加入Bax、Bcl-2、GAPDH、VDAC、MFN1、MFN2、Fis1、OPA1和Drp1抗体4 ℃孵育12~14 h;TBST洗3次,加入二抗室温孵育1 h;TBST洗3次。加入ECL显试剂,化学发光成像系统曝光拍照,ImageJ软件分析图像。

1.3 数据分析

数据采用GraphPad Prism 9.5.1软件进行单因素方差分析(one-way ANOVA),若差异具有统计学意义(P<0.05),则进一步采用Holm-Sidak法进行事后多重比较。结果以平均值±标准差的形式表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 POP作用浓度、预处理时间和AFB1作用浓度的确定

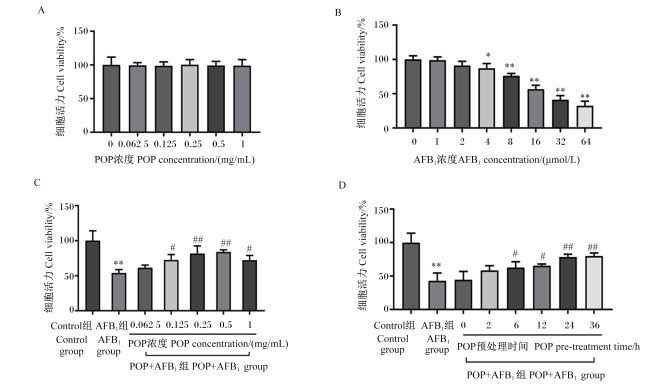
图1-A可知,0 mg/mL POP相比,0.062 5~1 mg/mL POP对IPEC-J2细胞活力均无显著影响(P>0.05),说明在此浓度范围内POP对细胞无毒性作用。由图1-B可知,与0 μmol/L AFB1相比,随着AFB1浓度的增加,细胞活力呈下降趋势,8、16、32和64 μmol/L AFB1极显著抑制细胞活力(P<0.01);当AFB1浓度为16 μmol/L时,细胞活力约为50%,故选用16 μmol/L AFB1作为后续试验中AFB1的作用浓度。由图1-C可知,与AFB1组相比,0.25和0.5 mg/mL POP+AFB1组的细胞活力极显著升高(P<0.01),因两者之间无显著差异(P>0.05),故选用0.25 mg/mL POP作为后续试验中POP的作用浓度。由图1-D可知,与AFB1组相比,POP预处理6和12 h的POP+AFB1组的细胞活力显著升高(P<0.05);POP预处理24和36 h的POP+AFB1组的细胞活力极显著升高(P<0.01),且两者之间无显著差异(P>0.05),因此确定POP预处理时间为24 h。
图1 POP和AFB1对IPEC-J2细胞活力的影响

POP:平菇多糖;AFB1:黄曲霉毒素B1。*和**分别表示与0 μmol/L AFB1(图B)或Control组(图C和D)相比有显著(P<0.05)或极显著(P<0.01)差异;#和##分别表示与AFB1组(图C和D)相比有显著(P<0.05)或极显著(P<0.01)差异。下图同。

Fig.1 Effects of POP and AFB1 on viability of IPEC-J2 cells

POP: Pleurotus ostreatus polysaccharides; AFB1: aflatoxin B1. * and ** indicate significant (P<0.05) or extremely significant (P<0.01) differences compared with the 0 μmol/L AFB1(figure B) or the Control group (figures C and D), respectively; # and ## indicate significant (P<0.05) or extremely significant (P<0.01) differences compared with the AFB1 group (figures C and D), respectively. The same applies to the figures below.

2.2 POP和AFB1对IPEC-J2细胞内凋亡相关蛋白表达的影响

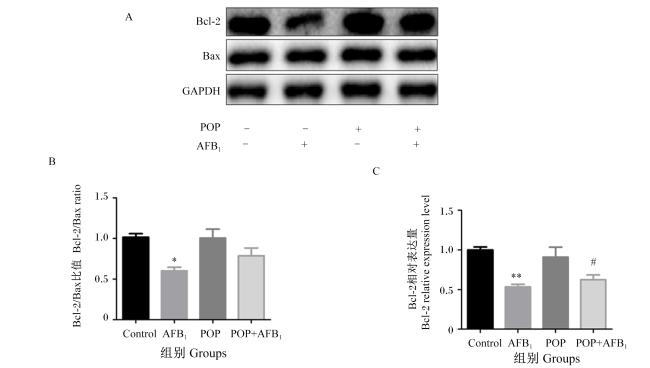
图2所示,与Control组相比,AFB1组抗凋亡蛋白Bcl-2的相对表达量极显著降低(P<0.01),Bcl-2/Bax比值显著降低(P<0.05),这些变化说明AFB1诱导细胞发生了凋亡;与AFB1组相比,POP+AFB1组Bcl-2的相对表达量显著升高(P<0.05),Bcl-2/Bax比值呈一定上调趋势但差异不显著(P>0.05),表明POP部分缓解了AFB1诱导的细胞凋亡。
图2 POP和AFB1对IPEC-J2细胞内凋亡相关蛋白表达的影响

GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase;Bcl-2:B淋巴细胞瘤-2 B-cell lymphoma-2;Bax:B淋巴细胞瘤-2相关X蛋白 Bcl-2 associated X protein。

Fig.2 Effects of POP and AFB1 on expression of apoptosis-related proteins in IPEC-J2 cells

2.3 POP和AFB1对IPEC-J2细胞内ROS含量、ATP相对水平和线粒体膜电位的影响
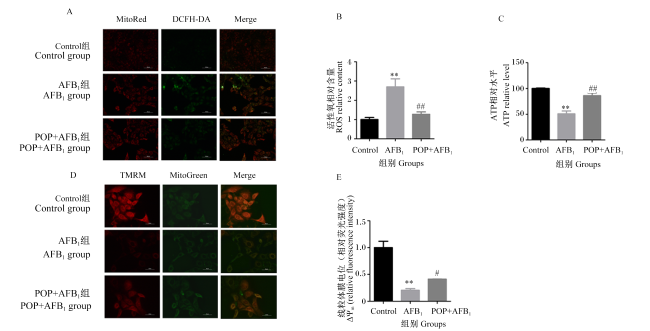
图3所示,与Control组相比,AFB1组ROS相对含量极显著增加(P<0.01),且主要来源于线粒体,因其ATP相对水平和线粒体膜电位也极显著降低(P<0.01);与AFB1组相比,POP预处理后ROS相对含量极显著降低(P<0.01),ATP相对水平极显著上升(P<0.01),线粒体膜电位显著回升(P<0.05)。这些结果表明,POP能够缓解AFB1诱导的IPEC-J2细胞线粒体损伤。
图3 POP和AFB1对IPEC-J2细胞内ROS相对含量、ATP相对水平和线粒体膜电位的影响

MitoRed:线粒体红色荧光探针 mito-tracker red;TMRM:四甲基罗丹明甲酯 tetramethylrhodamine methyl ester;MitoGreen:线粒体绿色荧光探针 mito-tracker green;DCFH-DA:2',7'-二氯荧光素二乙酸酯 2',7'-dichlorodihydrofluorescein diacetate;Merge:合并。

Fig.3 Effects of POP and AFB1 on ROS relative content, ATP relative level and ΔΨm in IPEC-J2 cells

2.4 POP和AFB1对IPEC-J2细胞内抗氧化酶活性的影响

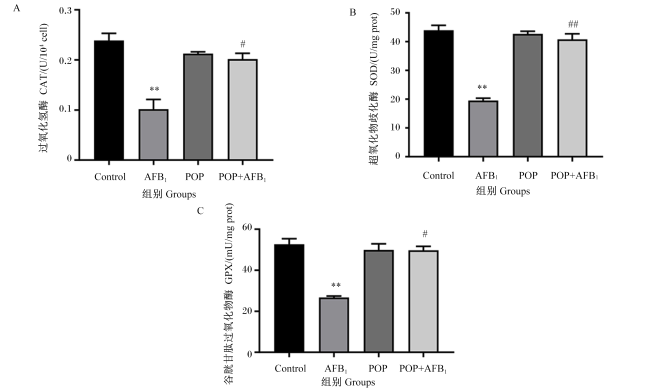
图4所示,与Control组相比,AFB1组GPX、SOD和CAT活性极显著降低(P<0.01);与AFB1组相比,POP+AFB1组GPX、SOD和CAT活性显著或极显著提高(P<0.05或P<0.01)。上述结果表明,POP预处理可以缓解AFB1诱导的IPEC-J2细胞内抗氧化酶活性的降低,提高细胞抗氧化能力。
图4 POP和AFB1对IPEC-J2细胞内抗氧化酶活性的影响

Fig.4 Effects of POP and AFB1 on antioxidant enzyme activities in IPEC-J2 cells

2.5 POP和AFB1诱导的IPEC-J2细胞内线粒体动力学相关蛋白表达的影响
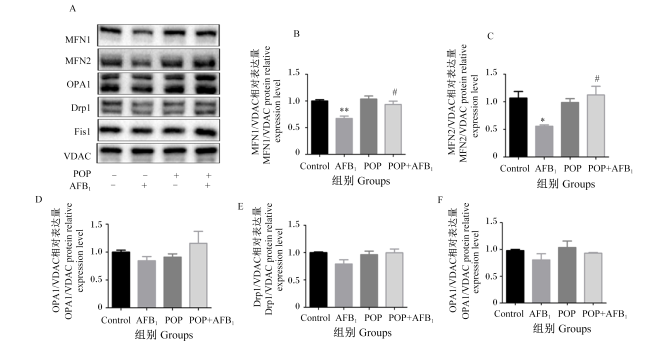
使用Western Blot法测定MFN1、MFN2、Drp1、OPA1、Fis1的相对表达量,以评估线粒体动力学的潜在变化。如图5所示,与Control组相比,经AFB1处理后,MFN1的相对表达量极显著降低(P<0.01),MFN2的相对表达量显著降低(P<0.05),Drp1、OPA1、Fis1的相对表达量无显著变化(P>0.05);与AFB1组相比,POP预处理24 h后,MFN1、MFN2的相对表达量显著升高(P<0.05)。上述结果证实,AFB1通过降低线粒体融合蛋白的表达破坏线粒体动力学的平衡,POP可通过修复线粒体融合蛋白的表达来稳定线粒体动力学平衡。
图5 POP和AFB1对IPEC-J2细胞内线粒体动力学相关蛋白表达的影响

VDAC:电压依赖性阴离子通道 voltage-dependent anion channel;MFN1:线粒体融合蛋白1 mitofusin 1;MFN2:线粒体融合蛋白2 mitofusin 2;Fis1:线粒体分裂蛋白1 mitochondrial fission 1 protein;OPA1:视神经萎缩蛋白1 optic atrophy 1;Drp1:动力蛋白相关蛋白1 dynamin-related protein 1。

Fig.5 POP and AFB1 on expression of mitochondrial dynamics-related proteins in IPEC-J2 cells

3 讨论

AFB1广泛污染食品和饲料,严重危害人畜健康。研究表明,AFB1可损害动物健康并降低生产性能,猪摄入污染饲料后易受其毒害[23]。AFB1的首要作用靶点是肠道,它通过损害肠细胞活力和扰乱紧密连接蛋白的表达,从而削弱肠道屏障,其毒性作用与氧化损伤相关[24]。田乐[25]报道过AFB1诱导IPEC-J2细胞发生氧化应激和凋亡,贾克江等[24]也报道过AFB1诱导细胞产生大量ROS,进而导致细胞发生氧化应激,与本研究结果一致。研究表明,诸多抗氧化物质可有效对抗AFB1诱导的肠毒性[26]。POP有很好的抗氧化潜能[19,27]。本试验也证明,POP可有效缓解AFB1导致的IPEC-J2细胞活力下降。通过对作用浓度和时间进行优化,最终选择0.25 mg/mL POP预处理IPEC-J2细胞24 h作为试验条件,探讨其对AFB1诱导的肠道损伤的缓解作用。
前期研究发现,AFB1可通过诱导细胞凋亡破坏肠道黏膜结构[28]。尽管细胞凋亡是维持肠道上皮更新的生理过程,但其过度激活可由外源性毒物触发,导致屏障功能受损[29]。Bax和Bcl-2是线粒体介导凋亡通路的核心调控因子[30],为探究POP在调控肠道屏障功能中的作用机制,本试验检测了细胞内Bax和Bcl-2的表达情况,结果表明,POP能有效逆转AFB1诱导的Bcl-2表达下调及Bcl-2/Bax比值降低。上述结果提示,POP可能通过上调Bcl-2的表达拮抗AFB1引发的过度细胞凋亡,从而对肠道屏障发挥保护作用。Shu等[20]报道,POP可上调微囊藻毒素诱导的蝌蚪皮肤损伤中Bcl-2的表达,与本研究结果类似。由此可见,POP具有缓解肠道黏膜细胞凋亡的作用。
氧化应激是AFB1诱发细胞毒性的关键机制之一,其主要表现为机体氧化-抗氧化系统失衡[8-10]。研究发现,AFB1可促进ROS生成并抑制抗氧化酶活性[31]。生物体内存在多种内源性抗氧化酶(如SOD、CAT和GPX),可协同清除ROS,维持氧化还原平衡,保护细胞免受氧化损伤[32]。本研究中,与Control组相比,AFB1组细胞内ROS含量极显著增加,而经POP的预处理可极显著降低ROS含量,且显著或极显著提高GPX、SOD和CAT活性,表明提高抗氧化能力是POP拮抗AFB1细胞毒性的机制之一。既往研究表明,POP干预有助于增强抗氧化酶活性并改善细胞氧化损伤。例如,Duan等[33]研究发现,在四氯化碳诱导的大鼠急性肝脏损伤模型中,POP通过提高肝脏中SOD、GPX和CAT的活性发挥对肝脏的保护作用。因此,POP对AFB1诱导的细胞损伤的缓解作用可能与其直接清除自由基及增强抗氧化系统功能有关。
线粒体作为细胞的能量中枢和信号枢纽,其功能障碍是细胞损伤的核心环节,常被视为评估细胞损伤的敏感指标[34]。已有多种机制被提出以解释AFB1的毒性作用,包括线粒体功能障碍以及诱导ROS的产生[7]。本研究结果与此观点一致,表现为ROS含量升高,线粒体膜电位崩溃以及ATP生成减少。值得注意的是,这些指标之间存在着密切的相互关联:线粒体功能障碍是ROS过量产生的主要源头[11];而过量ROS又会进一步攻击线粒体,加剧其功能障碍,形成一种自我放大的“恶性循环”[12]。POP预处理能有效打破这一循环,它通过稳定线粒体功能,从源头上减少ROS的生成,进而阻止后续的级联放大损伤,最终缓解AFB1诱导的细胞氧化应激与凋亡。
为深入探究POP调控线粒体功能的具体机制,本试验检测了线粒体动力学关键蛋白的表达。线粒体网络的稳定依赖于融合与分裂的动态平衡,其中线粒体融合过程由外膜融合蛋白(MFN1和MFN2)与内膜融合蛋白(OPA1)协同完成;而分裂过程则主要由胞质Drp1被招募至线粒体外膜,并与受体蛋白如Fis1等相互作用所驱动[35]。本研究揭示了AFB1破坏线粒体动力学的一种选择性机制,即特异性靶向融合蛋白MFN1和MFN2,使其表达显著下调,而分裂机制相关蛋白(Drp1、Fis1)及内膜融合蛋白OPA1的表达未受显著影响。这意味着,AFB1诱导的线粒体动力学失衡直接源于融合能力的受损,而非分裂活动的增强,致使线粒体网络趋于分裂状态。应激诱导的线粒体融合是细胞实现内容物互补、维持能量代谢并抵抗凋亡的关键途径[36],AFB1对此过程的抑制无疑加剧了细胞的代谢危机并最终导向凋亡,而POP能够有效拮抗AFB1的这一效应,其通过恢复融合蛋白的表达水平来重建线粒体动力学平衡,从而发挥对细胞的缓解作用。
综上所述,本研究在细胞层面证实了POP可通过调控线粒体动力学缓解AFB1诱导的IPEC-J2细胞氧化损伤。
尽管体外模型无法完全模拟体内复杂的生理环境,但本研究结果为阐明AFB1的肠道毒性机制及POP的解毒效应提供了新的视角和证据。后续研究将在动物模型中进行,以评估其在更接近实际生产条件下的应用前景,为开发新型AFB1解毒剂奠定基础。

4 结论

本研究发现,POP在0.062 5~1 mg/mL浓度范围内对IPEC-J2细胞无毒性作用,且在0.125~1 mg/mL浓度下可缓解16 μmol/L AFB1引起的细胞活力降低;16 μmol/L AFB1可诱导IPEC-J2细胞发生氧化应激,表现为ROS含量升高,SOD和GPX等抗氧化酶活性降低,且细胞活力和抗凋亡蛋白Bcl-2相对表达量及Bcl-2/Bax比值降低;此外,AFB1还诱导线粒体功能障碍,下调线粒体膜电位、ATP相对水平和线粒体动力学蛋白MFN1和MFN2的表达。然而,0.25 mg/mL POP能够缓解AFB1诱导的IPEC-J2细胞氧化应激和凋亡,该作用与稳定线粒体功能、维持线粒体动力学平衡、减少ROS堆积、提高抗氧化水平及阻断氧化应激诱导的凋亡有关。
[1]
HIGGINSON J, DEVITA VT Jr. IARC monographs on the evaluation of carcinogenic risk of chemicals to humans[J]. American Industrial Hygiene Association Journal, 1980, 41(5):A26,A28,A30 passim.

[2]
王京, 梁海军, 李复煌, 等. 2010—2021年我国饲料产品与饲料原料黄曲霉毒素B1调查分析[J]. 动物营养学报, 2025, 37(1):682-700.

DOI

WANG J, LIANG H J, LI F H, et al. Investigation and analysis of aflatoxin B1 in feed products and feed raw materials in China from 2010 to 2021[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):682-700. (in Chinese)

DOI

[3]
吴鹏江, 刘双烨, 马畅初. 2024年中国饲料及原料霉菌毒素污染情况调查报告(畜禽篇)[J]. 广东饲料, 2025, 34(7):7-9.

WU P J, LIU S Y, MA C C. Survey report on mycotoxin contamination in feed and raw materials in China (livestock and poultry sector),2024[J]. Guangdong Feed, 2025, 34(7):7-9. (in Chinese)

[4]
雷元培, 周建川, 郑文革, 等. 2023年中国饲料和原料中霉菌毒素污染调查报告[J/OL]. 饲料工业,1-10[2025-09-27]. https://link.cnki.net/urlid/21.1169.S.20250414.1200.013.

LEI Y P, ZHOU J C, ZHENG W G, et al. A Survey report on mycotoxin contamination of Chinese raw materials and feed in 2023[J/OL]. Feed Industry,1-10[2025-09-27]. https://link.cnki.net/urlid/21.1169.S.20250414.1200.013. (in Chinese)

[5]
PARIHAR A, CHOUDHARY NK, SHARMA P, et al. MXene-based aptasensor for the detection of aflatoxin in food and agricultural products[J]. Environment Pollution, 2023, 316(Pt 1):120695.

DOI

[6]
LI C C, LIU X D, WU J, et al. Research progress in toxicological effects and mechanism of aflatoxin B1 toxin[J]. PeerJ, 2022, 10:e13850.

DOI

[7]
CHOI H, GARAVITO-DUARTE Y, GORMLEY AR, et al. Aflatoxin B1:challenges and strategies for the intestinal microbiota and intestinal health of monogastric animals[J]. Toxins(Basel), 2025, 17(1):43.

[8]
万晓莉, 杨海明, 王志跃. 黄曲霉毒素B1诱导的动物氧化应激及不同生物活性物质的抗氧化防御机制[J]. 动物营养学报, 2022, 34(2):710-719.

DOI

WAN X L, YANG H M, WANG Z Y. Dxidative damage induced by aflatoxin B1,and antioxidant defense mechanism of different bioactive substances in animals[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):710-719. (in Chinese)

[9]
MOLOI TP, ZIQUBU K, MAZIBUKO-MBEJE SE, et al. Aflatoxin B1-induced hepatotoxicity through mitochondrial dysfunction,oxidative Stress,and inflammation as central pathological mechanisms:a review of experimental evidence[J]. Toxicology, 2024, 509:153983.

DOI

[10]
WANG Y H, WANG X H, LI Q Z. Aflatoxin B1 in poultry liver:toxic mechanism[J]. Toxicon, 2023, 233:107262.

DOI

[11]
DRÖSE S, BRANDT U. Molecular mechanisms of superoxide production by the mitochondrial respiratory chain[J]. Advances in Experimental Medicine and Biology, 2012, 748:145-169.

DOI PMID

[12]
YOULE R J, VAN DER BLIEK A M. Mitochondrial fission,fusion,and stress[J]. Science, 2012, 337(6098):1062-1065.

DOI

[13]
GIACOMELLO M, PYAKUREL A, GLYTSOU C, et al. The cell biology of mitochondrial membrane dynamics[J]. Nature Reviews Molecular Cell Biology, 2020, 21(4):204-224.

DOI PMID

[14]
XU X Y, PANG Y, FAN X Q. Mitochondria in oxidative stress,inflammation and aging:from mechanisms to therapeutic advances[J]. Signal Transduction and Targeted Therapy, 2025, 10(1):190.

DOI

[15]
CHEN W, ZHAO H K, LI Y S. Mitochondrial dynamics in health and disease:mechanisms and potential targets[J]. Signal Transduction and Targeted Therapy, 2023, 8(1):333.

DOI

[16]
DING J Y, CHENG X Y, ZENG C, et al. Aflatoxin B1 promotes pyroptosis in IPEC-J2 cells by disrupting mitochondrial dynamics through the AMPK/NLRP3 pathway[J]. Journal of Agricultural Food Chemistry, 2024, 72(50):28093-28108.

DOI

[17]
HUANG W Y, CAO Z, YAO Q C, et al. Mitochondrial damage are involved in aflatoxin B1-induced testicular damage and spermatogenesis disorder in mice[J]. Science of the Total Environment, 2020, 701:135077.

DOI

[18]
姜明, 么越, 范蓓, 等. 食用菌活性成分抗氧化机制的研究进展[J]. 食品安全质量检测学报, 2023, 14(9):257-265.

JIANG M, ME Y, FAN B, et al. Research progress on antioxidant mechanism of active components of edible mushrooms[J]. Journal of Food Safety and Quality, 2023, 14(9):257-265. (in Chinese)

[19]
ZHAO Q C, LIU X P, CUI L L, et al. Extraction and bioactivities of the chemical composition from Pleurotus ostreatus:a review[J]. Journal of Future Foods, 2024, 4(2):111-118.

DOI

[20]
SHU Y L, WANG H, JIANG H L, et al. Pleurotus ostreatus polysaccharide-mediated modulation of skin damage caused by microcystin-LR in tadpoles[J]. Environmental Pollution, 2024, 345:123440.

DOI

[21]
ZHANG Z M, ZHANG Y S, LIU H, et al. A water-soluble selenium-enriched polysaccharide produced by Pleurotus ostreatus:purification,characterization,antioxidant and antitumor activities in vitro[J]. International Journal of Biological Macromolecules, 2021, 168:356-370.

DOI

[22]
NIU X K, XU M Y, HAN X Y, et al. Chitosan/collagen films loaded with Pleurotus ostreatus polysaccharide-epigallocatechin gallate conjugates with excellent antioxidant and antibacterial activities for pork preservation[J]. International Journal of Biological Macromolecules, 2025, 310(Pt 4):143617.

DOI

[23]
SHABEER S, ASAD S, JAMAL A, et al. Aflatoxin contamination,its impact and management strategies:an updated review[J]. Toxins (Basel), 2022, 14(5):307.

DOI

[24]
贾克江, 吴国芳, 张剑搏, 等. 黄曲霉毒素B1的毒性机理、检测及脱毒方法研究进展[J]. 中国畜牧兽医, 2025, 52(8):3954-3964.

JIA K J, WU G F, ZHANG J B, et al. Research progress on toxicity mechanism,detection and detoxification methods of aflatoxin B1[J]. China Animal Husbandry and Veterinary Medicine, 2025, 52(8):3954-3964. (in Chinese)

[25]
田乐. 虾青素缓解黄曲霉毒素B1诱导IPEC-J2细胞损伤作用的研究[D].硕士学位论文. 长春: 吉林大学, 2023.

TIAN L. Astaxanthin alleviates aflatoxin B1-induced damage in IPEC-J2 cells[D].Master’s Thesis. Changchun: Jilin University, 2023. (in Chinese)

[26]
LI M, TANG S S, PENG X Y, et al. Lycopene as a therapeutic agent against aflatoxin B1-related toxicity:mechanistic insights and future directions[J]. Antioxidants (Basel), 2024, 13(4):452.

[27]
周威, 申红佳, 甘泉, 等. 平菇液态发酵多糖与其子实体多糖抗氧化活性对比[J/OL]. 食品工业科技,1-13[2025-09-12].https://doi.org/10.13386/j.issn1002-0306.2025050071.

ZHOU W, SHEN H J, GAN Q, et al. Comparative study on antioxidant activities of liquid fermented and fruiting body polysaccharides from Pleurotus ostreatus[J/OL]. Science and Technology of Food Industry,1-13[2025-09-12].https://doi.org/10.13386/j.issn1002-0306.2025050071. (in Chinese)

[28]
ZHANG M, LI Q H, WANG J, et al. Aflatoxin B1 disrupts the intestinal barrier integrity by reducing junction protein and promoting apoptosis in pigs and mice[J]. Ecotoxicology and Environmental Safety, 2022,247:114250.

[29]
TURNER J R. Intestinal mucosal barrier function in health and disease[J]. Nature Reviews Immunology, 2009, 9(11):799-809.

DOI PMID

[30]
BERTHELOOT D, LATZ E, FRANKLIN B S. Necroptosis,pyroptosis and apoptosis:an intricate game of cell death[J]. Cellular and Molecular Immunology, 2021, 18:1106-1121.

DOI

[31]
JIN X, LI Q H, SUN J, et al. Porcine-defensin-2 alleviates AFB1-induced intestinal mucosal injury by inhibiting oxidative stress and apoptosis[J]. Ecotoxicology and Environmental Safety, 2023, 262:115161.

DOI

[32]
HALLIWELL B. Free radicals and antioxidants:updating a personal view[J]. Nutrition Reviews, 2012, 70(5):257-265.

DOI

[33]
DUAN Z, ZHANG Y, ZHU C P, et al. Structural characterization of phosphorylated Pleurotus ostreatus polysaccharide and its hepatoprotective effect on carbon tetrachloride-induced liver injury in mice[J]. International Journal of Biological Macromolecules, 2020, 162:533-547.

DOI

[34]
CHAN D C. Mitochondrial dynamics and its involvement in disease[J]. Annual Review of Pathology, 2020, 15:235-259.

DOI PMID

[35]
LIU B H, XU C Z, LIU Y, et al. Mitochondrial quality control in human health and disease[J]. Military Medical Research, 2024, 11(1):32.

DOI

[36]
DING M G, SHI R, CHENG S L, et al. MFN2-mediated mitochondrial fusion alleviates doxorubicin-induced cardiotoxicity with enhancing its anticancer activity through metabolic switch[J]. Redox Biology, 2022, 52:102311.

DOI

文章导航

/