研究论文

耐低糖乳酸菌的筛选、诱变及其对苜蓿汁液的发酵效果

  • 贾海阔 , 1 ,
  • 刘震灵 1 ,
  • 何莹 1 ,
  • 吴春会 1 ,
  • 李秋凤 1 ,
  • 高艳霞 1, 2 ,
  • 王明亚 , 1, 2, * ,
  • 刘振宇 , 3, *
展开
  • 1 河北农业大学动物科技学院, 保定 071000
  • 2 农业农村部奶牛健康养殖重点实验室(省部共建), 保定 071000
  • 3 河北省农林科学院农业资源环境研究所, 石家庄 050051
*王明亚,副教授,硕士生导师,E-mail: ;
刘振宇,副研究员,E-mail:

贾海阔(2000—),男,河北承德人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-10-04

  网络出版日期: 2026-05-14

基金资助

河北省现代农业产业技术体系建设专项(HBCT2023160205)

国家奶牛产业技术体系(CARS-36-20)

盐碱地特色农业科技创新专项(242N7501Z)

Screening and Mutagenesis of Low-Sugar-Tolerant Lactic Acid Bacteria and Their Fermentation Effect on Alfalfa Juice

  • JIA Haikuo , 1 ,
  • LIU Zhenling 1 ,
  • HE Ying 1 ,
  • WU Chunhui 1 ,
  • LI Qiufeng 1 ,
  • GAO Yanxia 1, 2 ,
  • WANG Mingya , 1, 2, * ,
  • LIU Zhenyu , 3, *
Expand
  • 1 College of Animal Science and Technology, Hebei Agricultural University, Baoding 071000, China
  • 2 Key Laboratory of Healthy Breeding in Dairy Cattle, Ministry of Agriculture and Rural Affairs (Co-Construction by Ministry and Province), Baoding 071000, China
  • 3 Institute of Agriculture Resources and Environment, Hebei Academy of Agriculture and Forestry Sciences, Shijiazhuang 050051, China
*WANG Mingya, associate professor, E-mail: ;
LIU Zhenyu, associate professor, E-mail:

Received date: 2025-10-04

  Online published: 2026-05-14

摘要

本研究旨在筛选耐低糖乳酸菌,以提高豆科等可溶性糖含量低的牧草的青贮品质。从苜蓿鲜草、秸秆青贮和玉米青贮中筛选出耐低糖乳酸菌,初筛后利用常压室温等离子体(ARTP)诱变技术对菌株进行诱变,筛选出耐低糖能力强的突变菌株,经连续传代评估其遗传稳定性后,采用分子生物学方法进行种属鉴定,并通过苜蓿鲜汁发酵评价其效果。结果表明:1)从苜蓿鲜草、秸秆青贮和玉米青贮中初筛得到10株耐低糖乳酸菌菌株。在含0.002 g/L葡萄糖的培养基中菌株A2、A7和C1的pH显著低于其他菌株(P<0.05);在含0.02 g/L葡萄糖的培养基中菌株C1的pH显著低于其他菌株(P<0.05)。在含0.2 g/L葡萄糖的培养基中菌株B2的乳酸产量最高,乳酸产率达到0.97;在含2 g/L葡萄糖的培养基中菌株C1的乳酸产量最高,乳酸产率为0.99。在含0.002 g/L可溶性糖的发酵苜蓿汁液中菌株A2和C1的pH显著低于其他菌株(P<0.05);在含0.02 g/L可溶性糖的发酵苜蓿汁液中菌株A2、B2和C1的pH显著低于其他菌株(P<0.05);在含2 g/L可溶性糖的发酵苜蓿汁液中菌株A5和C1的pH显著低于其他菌株(P<0.05)。2)以菌株A2、A5、A7、B2和C1为初始菌株,经ARTP诱变后,筛选得到耐低糖能力强的突变菌株YA56。与初始菌株A5相比,在含0.002 g/L可溶性糖的发酵苜蓿汁液中,突变菌株YA56的pH降低了5.95%(P<0.05)。3)突变菌株YA56经16S rRNA测序鉴定为植物乳杆菌,经连续传代培养6代后,表现出良好的遗传稳定性。在含0.002 g/L可溶性糖的发酵苜蓿汁液中,突变菌株YA56的pH显著低于初始菌株A5、A7、B2及突变菌株YA54、YC11、YA24和YA73(P<0.05)。综上所述,突变菌株YA56对低糖具有良好的适应性,可作为发酵可溶性糖含量低的牧草的备选菌株。

本文引用格式

贾海阔 , 刘震灵 , 何莹 , 吴春会 , 李秋凤 , 高艳霞 , 王明亚 , 刘振宇 . 耐低糖乳酸菌的筛选、诱变及其对苜蓿汁液的发酵效果[J]. 动物营养学报, 2026 , 38(5) : 3923 -3936 . DOI: 10.12418/CJAN2026.312

Abstract

This study aimed to screen low-sugar-tolerant lactic acid bacteria (LAB) to improve the silage quality of forages, such as legumes, with low soluble sugar content. LAB were initially isolated from fresh alfalfa, straw silage and corn silage. After preliminary screening, the strains were mutagenized using atmospheric room temperature plasma (ARTP) technology to obtain mutant strains with enhanced low-sugar tolerance. The genetic stability of the selected mutant strain was evaluated through successive subculturing. The selected mutant strain was identified at the species level using molecular biological methods, and its efficacy was evaluated via fermentation in alfalfa juice. The results showed as follows: 1) ten low-sugar-tolerant LAB strains were obtained from fresh alfalfa, straw silage and corn silage. In a medium containing 0.002 g/L glucose, the pH of strains A2, A7 and C1 was significantly lower than that of the other strains (P<0.05); in a medium containing 0.02 g/L glucose, the pH of strain C1 was significantly lower than that of the other strains (P<0.05). In a medium containing 0.2 g/L glucose, strain B2 exhibited the highest lactic acid yield, with a lactic acid productivity of 0.97; in a medium containing 2 g/L glucose, strain C1 showed the highest lactic acid yield, with a lactic acid productivity of 0.99. In fermented alfalfa juice containing 0.002 g/L soluble sugar, the pH of strains A2 and C1 were significantly lower than that of the other strains (P<0.05); in fermented alfalfa juice containing 0.02 g/L soluble sugar, the pH of strains A2, B2 and C1 were significantly lower than that of the other strains (P<0.05); in fermented alfalfa juice containing 2 g/L soluble sugar, the pH of strains A5 and C1 were significantly lower than that of the other strains (P<0.05). 2) Using strains A2, A5, A7, B2 and C1 as the initial strains, ARTP mutagenesis was performed, and a mutant strain, YA56, with strong low-sugar tolerance was obtained. Compared with the initial strain A5, the pH of the mutant strain YA56 in fermented alfalfa juice containing 0.002 g/L soluble sugar decreased by 5.95% (P<0.05). 3) The mutant strain YA56 was identified as Lactiplantibacillus plantarum through 16S rRNA sequencing and exhibited good genetic stability after six successive subcultures. In fermented alfalfa juice containing 0.002 g/L soluble sugar, the pH of mutant strain YA56 was significantly lower than that of the initial strains A5, A7 and B2, as well as the mutant strains YA54, YC11, YA24 and YA73 (P<0.05). In conclusion, the mutant strain YA56 demonstrates good adaptability to low-sugar conditions and can serve as a candidate strain for fermenting forages with low soluble sugar content.

乳酸菌是一类能发酵糖类产生大量乳酸的革兰氏阳性、无芽孢细菌[1],在青贮饲料中发挥关键作用。青贮饲料是以青绿饲料为原料,在厌氧条件下经乳酸菌发酵制成的一种营养丰富、适口性好、消化率高且能长期贮存的优质饲料,是反刍动物主要的粗饲料来源。青贮品质受诸多因素影响,其中原料的可溶性糖含量和乳酸菌数量是决定性因素[2]。通常,只有当原料中乳酸菌数量超过105 CFU/g鲜重时[3],乳酸菌才能在发酵初期快速成为优势菌群,产生足量乳酸,保障青贮顺利进行。若原料中乳酸菌数量不足,可通过外源添加乳酸菌解决;若可溶性糖含量偏低,则常需添加糖类、纤维素酶或富含糖的副产物[4],但这会增加生产成本或降低青贮营养品质。因此,筛选耐低糖乳酸菌,既可同步解决原料可溶性糖含量低和乳酸菌数量不足的问题,又能降低生产成本,且能丰富乳酸菌种质资源,对优质青贮饲料的生产具有重要意义。目前乳酸菌的筛选多集中于产酸能力、生长活性、耐胁迫及抑菌能力等方面。例如,魏晓强等[5]从菊芋青贮中筛选出短乳杆菌XN25,该菌株生长活性和产酸能力较强,适用于高寒地区菊芋青贮发酵。You等[6]从内蒙古高原天然牧草青贮中分离出乳酸菌XM2,通过研究其对高粱-苏丹草青贮营养和发酵特性的影响,发现该菌株显著增加了乳酸含量和乳酸/乙酸比值,同时降低了pH和氨态氮含量。田静等[7]通过耐酸试验从牧草中筛选出2株耐低营养的耐酸菌株。Kuppusamy等[8]从瘤胃液中分离获得2株低碳水化合物耐受性乳酸菌,能有效改善高水分豆科青贮饲料的品质。相比之下,关于耐低糖乳酸菌的研究较少。因此,耐低糖乳酸菌的相关研究需要进一步深入开展。
常压室温等离子体(atmospheric room temperature plasma,ARTP)是一种新型诱变技术,具有操作灵活、设备简单、条件温和、安全性高、突变谱广、诱变速度快等优点,能有效克服传统诱变技术的局限性。其诱变条件可控,可显著提高突变强度和突变库容量,该技术在突变效率和生物适用性方面均优于传统诱变技术,在微生物育种中发挥重要作用[9]。吴晓英等[10]以虾青素合成抑制剂为筛选剂,利用ARTP诱变筛选获得1株高产虾青素的突变菌株,该突变菌株的虾青素产量较初始菌株提高52.96%。Cheng等[11]利用ARTP诱变技术获得高产L-苏氨酸的抗噬菌体大肠杆菌突变体。Huang等[12]利用ARTP诱变技术筛选得到使红色素产量提高24.4%的南极真菌突变株,且培养周期缩短了33.3%。陈欢等[13]将筛选得到的纤维素降解菌C8通过ARTP诱变获得突变菌株AC83,其所产纤维降解酶活性和对秸秆干物质的降解率均显著提高。
目前,采用ARTP诱变技术改良耐低糖乳酸菌的研究尚鲜见报道,且未经诱变的菌株耐低糖能力普遍较低,亟需通过遗传改造提升其性能。因此,本试验拟从苜蓿鲜草、秸秆青贮及玉米青贮中分离筛选耐低糖乳酸菌,经ARTP诱变后筛选耐低糖能力增强的突变菌株,以期获得遗传稳定的优良耐低糖乳酸菌,为青贮添加剂的开发提供候选菌种。

1 材料与方法

1.1 试验材料

试验所用苜蓿鲜草来源于河北农业大学畜牧教学基地,品种分别为苜丰、WL343、可汗、WL168、菲力、WL354、WL298、赛沃5、WL358、赛尔苏和Gemstone,于现蕾前期采集全株苜蓿于-20 ℃冰箱内保存。试验所用秸秆青贮和玉米青贮为河北农业大学草业实验室保存样品。

1.2 试验方法

1.2.1 乳酸菌的分离与纯化

称取苜蓿鲜草、秸秆青贮或玉米青贮样品20 g置于无菌锥形瓶中,加入180 mL灭菌的生理盐水,在4 ℃摇床上充分振荡1.5 h;取上清液稀释至10-8梯度,取合适梯度稀释液50 μL涂布于MRS固体培养基,将培养基倒置于厌氧产气包中,于37℃恒温培养箱中培养24 h[5,14],观察菌落生长情况;依据菌落形态挑选出不同的乳酸菌菌落,划线接种于MRS-碳酸钙(CaCO3)固体培养基中,筛选产生溶钙圈的菌落,连续纯化3次;对纯化菌株进行革兰氏染色及镜检,将出现溶钙圈、革兰氏染色阳性的菌株初步判定为乳酸菌;将初步判定为乳酸菌的菌株接种至MRS肉汤培养基,37 ℃培养24 h后,吸取少量的菌液加入甘油中,于-80 ℃保藏备用[15]

1.2.2 耐低糖乳酸菌的筛选

将筛选出的乳酸菌菌株接种至MRS液体培养基中活化培养(37 ℃,24 h)[16],进行2次传代后将菌株分别接种到含0.002、0.02、0.2、2和20 g/L葡萄糖的MRS液体培养基中,接种量为105 CFU/mL,培养48 h后测定pH进行初筛[7]。在粗饲料中,紫花苜蓿以可溶性糖含量低不易青贮而闻名,成为可溶性糖含量低的代表。紫花苜蓿的可溶性糖含量在6%(干物质基础)左右,而紫花苜蓿青贮需要的最低可溶性糖含量为9.50%(干物质基础),因此认定可溶性糖含量在6%以下均为低糖。筛选试验的培养基中葡萄糖浓度分别为20、2、0.2、0.02、0.002 g/L,转换为干物质基础分别为39.02%、6.01%、0.64%、0.06%、0.006%,因此葡萄糖浓度低于2 g/L以下的培养基筛选出来的菌株可判定为耐低糖菌株。

1.2.3 耐低糖乳酸菌乳酸产量和乳酸产率的测定

对1.2.2中筛选得到的10株耐低糖乳酸菌(A1、A2、A5、A6、A7、A9、B1、B2、B4、C1)进行乳酸产量及乳酸产率的测定,以评估各菌株的耐低糖能力。
将乳酸菌菌株分别接种到含0.002、0.02、0.2、2和20 g/L葡萄糖的MRS液体培养基中,接种量为105 CFU/mL,培养48 h后测定乳酸产量和乳酸产率。乳酸产量的测定是通过将乳酸菌液体培养基按一定比例稀释至适宜梯度,稀释液2.5 μL加入至乳酸试剂盒(购于南京建成生物工程研究所)中,经过与试剂反应得出乳酸产量(g/L)。乳酸产率是乳酸产量与消耗糖浓度的比值。消耗糖浓度为初始糖浓度和剩余糖浓度的差值,糖浓度采用蒽酮硫酸法[17]测定,初始和培养48 h后的乳酸菌液体培养基在经过去蛋白、去色素和确定稀释倍数等前处理后,取1 mL与蒽酮试剂反应,分别得出初始糖和剩余糖浓度(g/L)。

1.2.4 耐低糖乳酸菌对苜蓿汁液的发酵效果

将1 kg切碎的紫花苜蓿和1 000 mL去离子水置于破壁机内打碎成浆,用6层纱布过滤,制成苜蓿汁液,用去离子水将苜蓿汁液中的可溶性糖分别稀释至浓度为0.002、0.02、0.2 和2 g/L,依次移取10 mL分装到玻璃试管,121 ℃灭菌20 min待用。将活化后的耐低糖乳酸菌用无菌水调至为菌体浓度1×10⁶ CFU/mL,取100 μL菌液接入不同可溶性糖浓度梯度的10 mL苜蓿汁液中,于37 ℃发酵24 h后测定pH,每个处理设置3个重复[18]

1.2.5 ARTP诱变

综合pH、乳酸产量、乳酸产率及苜蓿汁液发酵pH等指标,筛选出5株耐低糖乳酸菌(A2、A5、A7、B2和C1)用于ARTP诱变。
菌悬液制备:挑取初始菌株至100 mL MRS液体培养基中,37 ℃条件下培养24 h,取1 mL菌液离心5 min,离心力为2 450×g,再用无菌水洗涤2次,制成浓度为107 CFU/mL的菌悬液,以备诱变使用。
ARTP诱变:打开配备等离子体发生器、氦气源和调节系统的ARTP诱变仪(北京思清源生物科技有限公司),紫外照射30 min杀菌,取10 μL菌悬液涂于无菌载片上,分别处理0、60、80和100 s。ARTP诱变条件:电源功率为120 W,空气流量10 L/min,处理间距2 mm,循环冷却水温度20 ℃。诱变完成后,将菌株振荡洗脱下来,进行梯度稀释,涂布于MRS固体培养基上,37 ℃培养24 h,统计菌落数,计算致死率,并绘制致死率曲线,确定最佳诱变时间。致死率计算公式如下:
致死率(%)=[(A-B)/A]×100。
式中:A为未经诱变处理的平板上生长的菌落数;B为经过诱变处理的平板上生长的菌落数。

1.2.6 突变菌株的初筛

将诱变80 s得到的突变菌株培养24 h后,挑取单菌落点接到CaCO3-MRS固体培养基上,原始菌株作为对照,在37 ℃条件下静置培养48 h,测定其透明圈及菌落直径,计算透明圈直径与菌落直径的比值(HC值)。

1.2.7 突变菌株的复筛

按照1.2.2和1.2.3所述方法复筛,进一步筛选得到耐低糖能力强的突变菌株。

1.2.8 突变菌株的分子生物学鉴定

将活化的突变菌株富集培养24 h后离心,收集菌体并提取DNA,用细菌通用引物27F和1492R进行PCR扩增。扩增产物委托上海凌恩生物科技有限公司进行16S rRNA测序,并将测序结果在NCBI数据库(https://www.ncbi.nlm.nih.gov)中进行同源比对。

1.2.9 突变菌株的遗传稳定性检验

将筛选得到的突变菌株在筛选培养基中连续6次传代培养,测定各代次的产酸能力(以pH表示),以检验突变菌株的产酸性状的遗传稳定性。

1.2.10 突变菌株对苜蓿汁液的发酵效果

使用初始菌株和突变菌株按照1.2.4所述方法对苜蓿汁液进行发酵,最终筛选出耐低糖能力强的突变菌株。

1.3 数据统计与分析

试验数据经Excel 2021整理后,采用SPSS 20.0统计软件中的ANOVA程序进行单因素方差分析(one-way ANOVA),并用Duncan氏法进行多重比较,试验结果数据用“平均值±标准差”表示。

2 结果与分析

2.1 乳酸菌的初筛

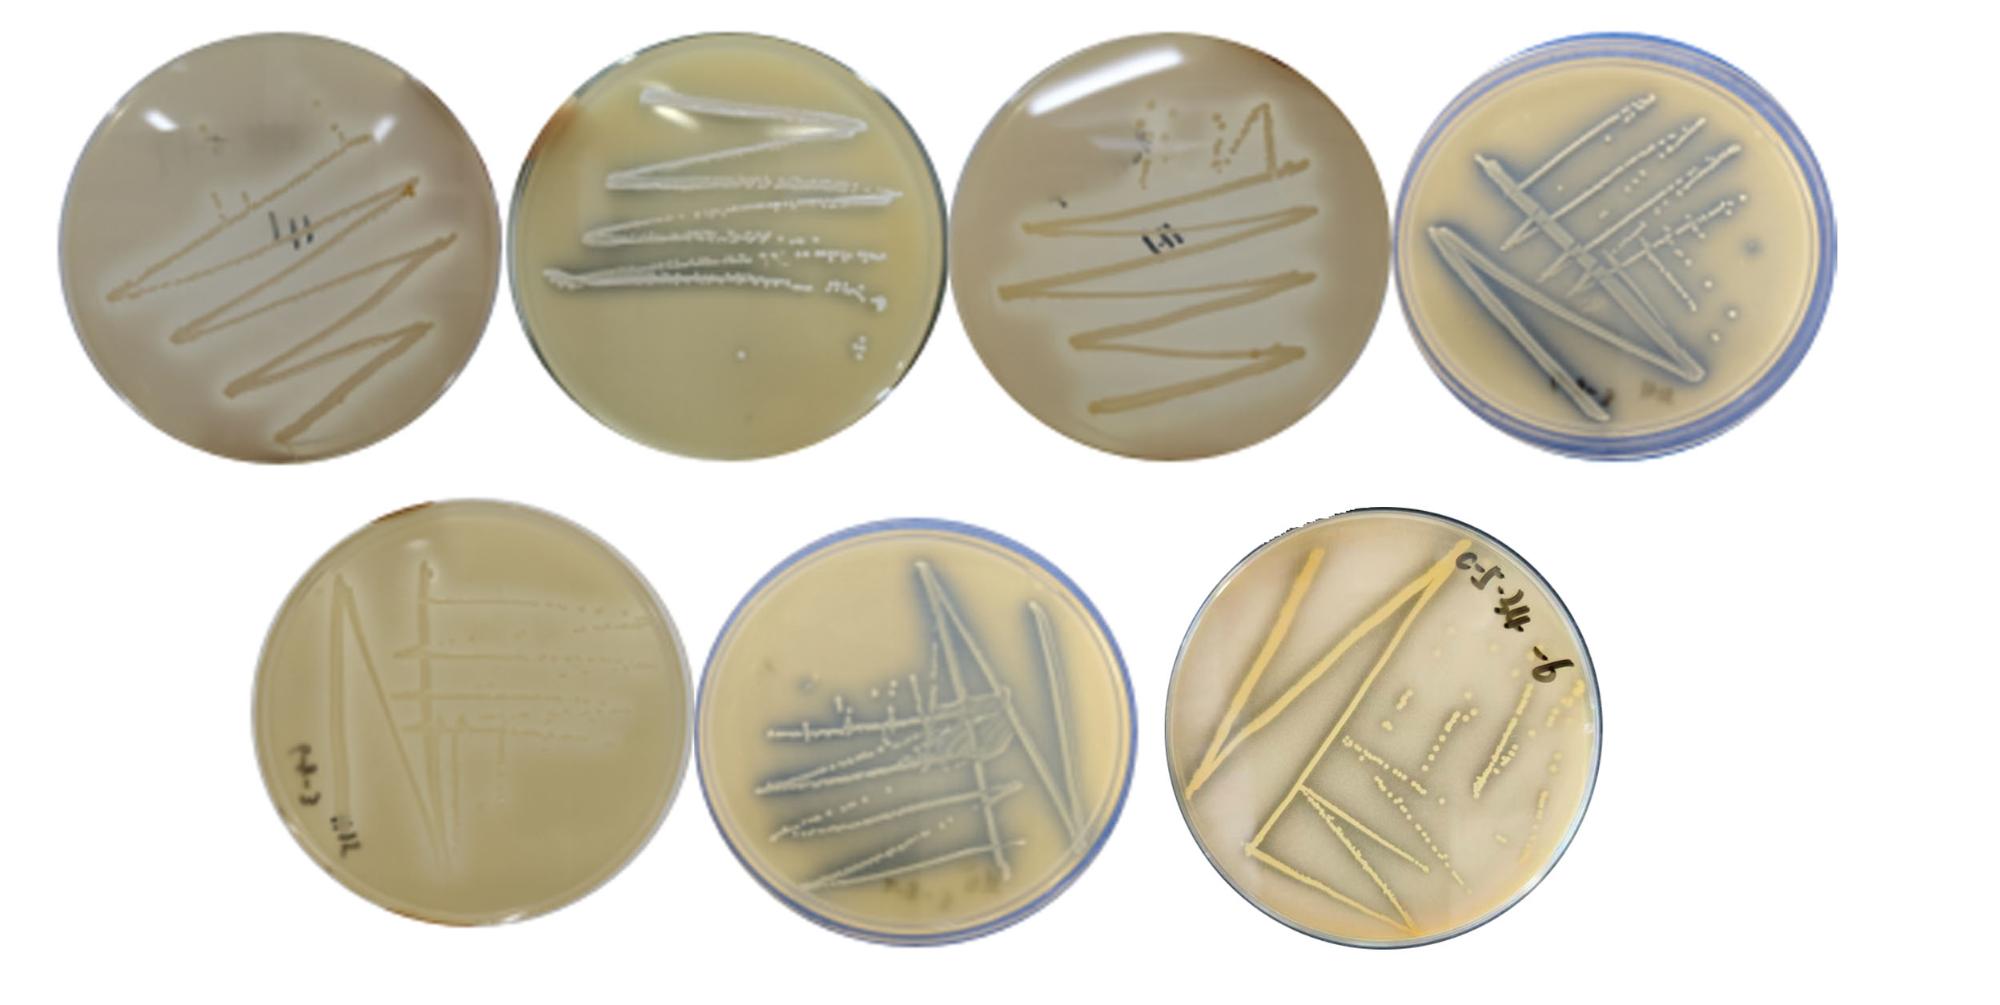
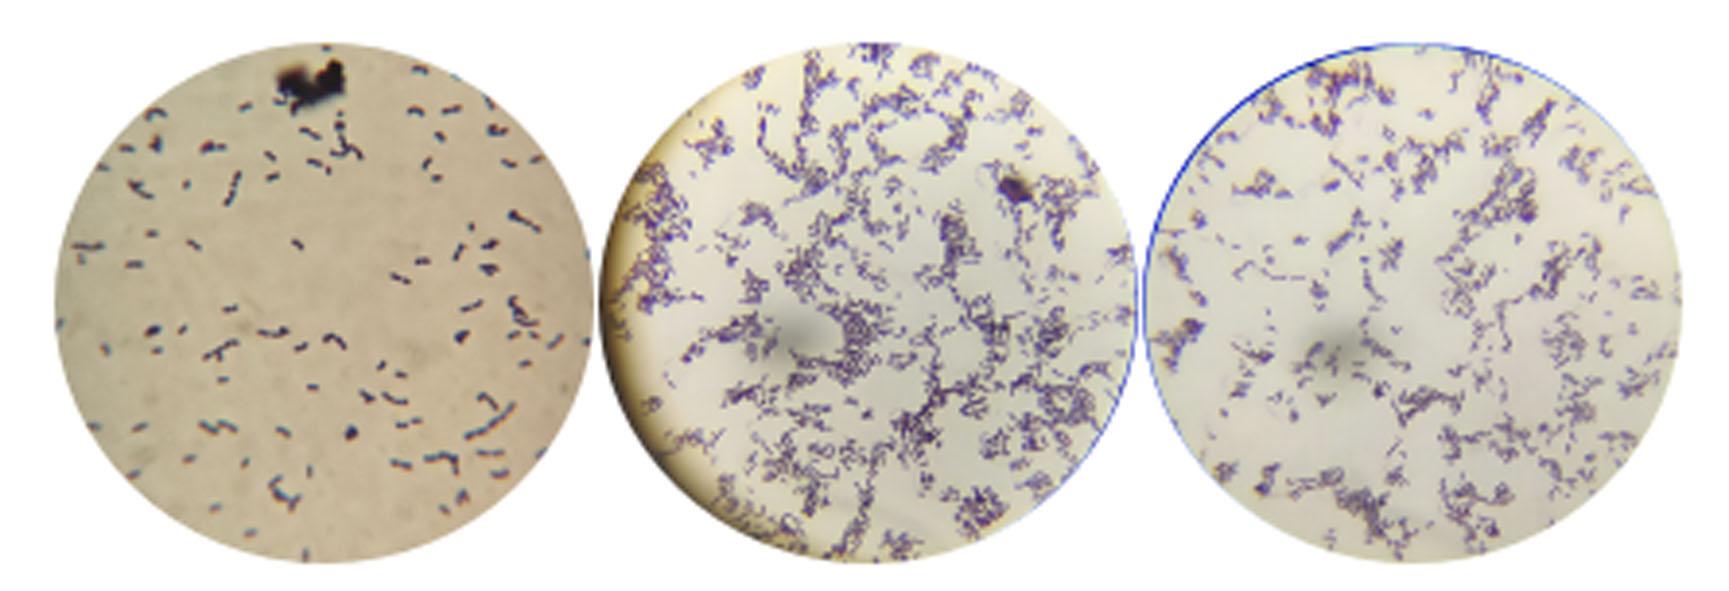
从苜蓿鲜草、苜蓿青贮及玉米青贮中共分离筛选得到43株乳酸菌,其菌落呈乳白色或米白色,圆形微凸,表面光滑湿润,在MRS-CaCO3固体培养基上培养后均出现明显溶钙圈(图1);菌株经革兰氏染色呈紫色,确定为革兰氏阳性菌,菌株形态为球状或杆状(图2)。
图1 部分菌株菌落形态

Fig.1 Colony morphology of some strains

图2 部分菌株革兰氏染色结果

Fig.2 Gram staining results of some strains

2.2 耐低糖乳酸菌的筛选

将筛选到的43株乳酸菌接种至MRS液体培养基中,根据其在含不同浓度葡萄糖培养基中的生长情况,筛选得出10株耐低糖乳酸菌(表1)。其中,菌株C1在含0.002和0.02 g/L葡萄糖的培养基中的pH显著低于其他菌株(P<0.05);菌株A2、A7和C1在含0.2和20 g/L葡萄糖的培养基中的pH显著低于其他菌株(P<0.05);菌株A2、A5、A7和C1在含2 g/L葡萄糖的培养基中的pH显著低于其他菌株(P<0.05)。
表1 耐低糖乳酸菌在不同葡萄糖浓度培养基中培养48 h的pH

Table 1 pH of low-sugar-tolerant lactic acid bacteria cultured in media with different glucose concentrations for 48 h

菌株
Strains
葡萄糖浓度 Glucose concentrations/(g/L) 菌株来源
Sources of strains
20 2 0.2 0.02 0.002
A1 3.86±0.01c 5.61±0.02a 6.37±0.05ab 6.46±0.13b 6.56±0.03b 秸秆青贮
A2 3.68±0.02e 5.11±0.02d 5.83±0.04c 6.05±0.01c 6.01±0.04d 秸秆青贮
A5 3.84±0.04cd 5.34±0.07c 6.38±0.03ab 6.48±0.11b 6.53±0.03b 秸秆青贮
A6 3.87±0.01bc 5.43±0.01b 6.32±0.04ab 6.50±0.09b 6.56±0.06b 秸秆青贮
A7 3.64±0.01e 5.12±0.01d 5.86±0.05c 6.08±0.04c 6.19±0.01c 秸秆青贮
A9 3.78±0.03d 5.61±0.02a 6.59±0.03a 6.75±0.06a 6.69±0.05a 秸秆青贮
B1 4.21±0.02a 5.60±0.02a 6.22±0.57b 6.64±0.03a 6.67±0.02a 苜蓿鲜样
B2 3.94±0.10b 5.56±0.01a 6.52±0.01ab 6.65±0.02a 6.66±0.01a 苜蓿鲜样
B4 4.16±0.02a 5.56±0.01a 6.52±0.02ab 6.66±0.05a 6.70±0.03a 苜蓿鲜样
C1 3.70±0.03e 5.34±0.14c 5.80±0.10c 5.88±0.04d 5.91±0.03e 玉米青贮

同列数据肩标不同小写字母表示不同菌株间差异显著(P<0.05)。下表同。

Values with different lowercase letter superscripts in the same column indicated significant difference among different strains (P<0.05). The same as below.

2.3 耐低糖乳酸菌的乳酸产量和乳酸产率

对筛选得到的10株耐低糖乳酸菌进行乳酸产量及乳酸产率的测定,结果如表2表3所示。在含0.2 g/L葡萄糖的培养基中,菌株B2的乳酸产量显著高于其他菌株(P<0.05),乳酸产率为0.97;在含2 g/L葡萄糖的培养基中,菌株C1的乳酸产量显著高于菌株A1、A6、A7、A9、B1和B4(P<0.05),与菌株A2、A5和B2无显著差异(P>0.05),乳酸产率为0.99;在含20 g/L葡萄糖的培养基中,菌株A2、A5、A7、B2和C1的乳酸产量分别达到10.68、12.14、10.43、11.82和10.27 g/L,乳酸产率分别高达0.82、0.97、0.98、0.88和0.95。
表2 耐低糖乳酸菌在不同葡萄糖浓度培养基中培养48 h的乳酸产量

Table 2 Lactic acid yield of low-sugar-tolerant lactic acid bacteria cultured in media with different glucose concentrations for 48 hg/L

菌株
Strains
葡萄糖浓度 Glucose concentrations/(g/L)
20 2 0.2 0.02 0.002
A1 6.16±0.20d 1.84±0.03b 0.14±0.01b 0.014±0.003 0.001 6±0.000 0
A2 10.68±0.87b 1.90±0.02ab 0.14±0.01b 0.018±0.001 0.001 8±0.000 0
A5 12.14±0.65a 1.93±0.01ab 0.15±0.01b 0.016±0.004 0.001 4±0.000 2
A6 6.21±0.24d 1.65±0.07c 0.15±0.01b 0.019±0.004 0.001 7±0.000 1
A7 10.43±0.43b 1.11±0.08d 0.15±0.01b 0.017±0.001 0.001 2±0.000 1
A9 4.17±0.67e 1.67±0.03c 0.11±0.02c 0.015±0.001 0.001 9±0.000 0
B1 9.88±0.68b 1.62±0.04c 0.11±0.01c 0.016±0.008 0.001 5±0.001 1
B2 11.82±1.07a 1.90±0.00ab 0.18±0.02a 0.017±0.001 0.001 5±0.000 3
B4 8.65±0.31c 1.71±0.07c 0.11±0.01c 0.016±0.002 0.001 6±0.000 2
C1 10.27±0.75b 1.96±0.03a 0.15±0.02b 0.014±0.001 0.001 3±0.000 3
表3 耐低糖乳酸菌在不同葡萄浓度培养基中培养48 h的乳酸产率

Table 3 Lactic acid productivity of low-sugar-tolerant lactic acid bacteria cultured in media with different glucose concentrations for 48 h

菌株
Strains
葡萄糖浓度 Glucose concentrations/(g/L)
20 2 0.2 0.02 0.002
A1 0.77±0.02de 0.96±0.03ab 0.81±0.03cd 0.80±0.09abc 0.85±0.07ab
A2 0.82±0.05cde 0.97±0.01ab 0.85±0.07c 0.89±0.07ab 0.94±0.02a
A5 0.97±0.01a 0.97±0.02ab 0.86±0.04bc 0.66±0.13c 0.93±0.07a
A6 0.65±0.04f 0.96±0.03ab 0.87±0.05bc 0.74±0.15bc 0.89±0.05ab
A7 0.98±0.01a 0.88±0.07c 0.96±0.03ab 0.94±0.05a 0.96±0.04a
A9 0.66±0.11f 0.95±0.16ab 0.73±0.10de 0.92±0.09a 0.95±0.04a
B1 0.84±0.01cd 0.92±0.02bc 0.70±0.05ef 0.74±0.04bc 0.72±0.28b
B2 0.88±0.06bc 0.96±0.00a 0.97±0.02a 0.89±0.03ab 0.90±0.07ab
B4 0.76±0.01e 0.95±0.03ab 0.63±0.06f 0.90±0.05ab 0.93±0.01a
C1 0.95±0.02ab 0.99±0.02a 0.81±0.08cd 0.86±0.03ab 0.95±0.02a

2.4 耐低糖乳酸菌对苜蓿汁液的发酵效果

10 株耐低糖乳酸菌分别接种至不同可溶性糖浓度梯度的苜蓿汁液中,37 ℃发酵24 h后的pH如表4所示。在含0.002 g/L可溶性糖的发酵苜蓿汁液中,菌株A2和C1的pH显著低于其他菌株(P<0.05);在含0.02 g/L可溶性糖的发酵苜蓿汁液中,菌株A2、B2和C1的pH显著低于其他菌株(P<0.05);在含0.2 g/L可溶性糖的发酵苜蓿汁液中,菌株C1的pH显著低于其他菌株(P<0.05);在含2 g/L可溶性糖的发酵苜蓿汁液中,菌株A7的pH显著低于其他菌株(P<0.05)。
表4 耐低糖乳酸菌发酵24 h的苜蓿汁液pH

Table 4 pH of alfalfa juice fermented by low-sugar-tolerant lactic acid bacteria for 24 h

菌株
Strains
可溶性糖浓度 Soluble sugar concentrations/(g/L)
2 0.2 0.02 0.002
A1 4.52±0.04bc 6.09±0.05a 6.11±0.05b 6.41±0.05c
A2 4.40±0.06de 5.65±0.03d 5.84±0.10c 6.05±0.08f
A5 4.36±0.05e 5.73±0.04cd 6.21±0.04b 6.39±0.03c
A6 4.50±0.02bc 5.84±0.17bc 6.68±0.05a 6.76±0.06a
A7 4.22±0.04f 5.86±0.04bc 6.12±0.07b 6.19±0.08e
A9 4.46±0.05cd 5.79±0.02bcd 6.16±0.06b 6.45±0.06bc
B1 4.61±0.04a 5.91±0.17b 6.68±0.06a 6.71±0.07a
B2 4.46±0.09cd 5.67±0.06d 5.88±0.06c 6.28±0.03d
B4 4.57±0.05ab 5.77±0.01bcd 6.06±0.18b 6.53±0.01b
C1 4.31±0.04e 5.49±0.04e 5.83±0.09c 6.08±0.03f

2.5 ARTP诱变致死率

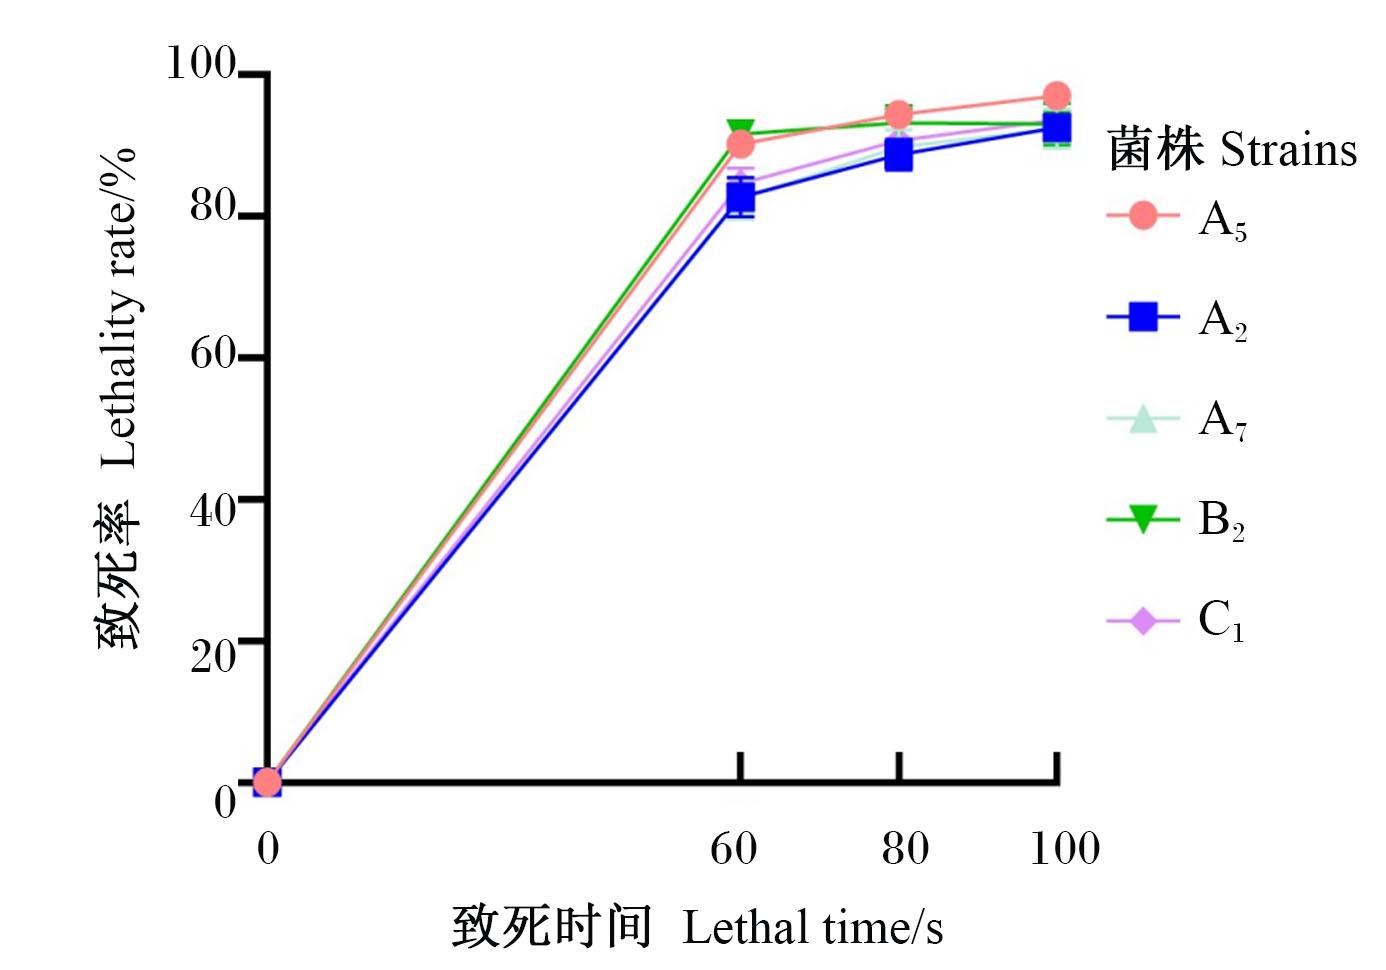
综合评估10株耐低糖乳酸菌的pH、乳酸产量、乳酸产率及发酵苜蓿汁液pH的测定结果,筛选出效果较优的5株(菌株A2、A5、A7、B2和C1)进行ARTP诱变,诱变结果如图3所示。随着诱变时间的延长,菌株的致死率不断增加,在诱变60 s时,A2、A7和C1的致死率分别为82.71%、82.42%和84.59%,A5和B2的致死率分别为90.25%和91.62%;在诱变80 s时,5株菌株的致死率均达到90%以上。因此,选用80 s作为菌株的诱变时间。
图3 耐低糖乳酸菌ARTP诱变致死率曲线

Fig.3 Lethality rate curve caused of low-sugar-tolerant lactic acid bacteria after ARTP mutagenesis

2.6 突变菌株的初筛

表5可知,以初始菌株的HC值作为对照,突变菌株YA56的HC值显著高于初始菌株以及其他突变菌株(P<0.05);此外,突变菌株YA24、YA51、YA73和YC11的HC值也显著高于对应的初始菌株(P<0.05)。
表5 突变菌株HC值

Table 5 HC value of mutant strains

菌株 Strains HC值 HC value 菌株 Strains HC值 HC value
A2 1.21±0.09fg YB21 1.34±0.11cdefg
A5 1.24±0.03defg YB22 1.33±0.10defg
A7 1.21±0.14fg YB23 1.32±0.15defg
B2 1.18±0.06g YB24 1.32±0.25defg
C1 1.22±0.09efg YB25 1.34±0.11cdefg
YA21 1.30±0.14defg YB26 1.25±0.13defg
YA22 1.41±0.22cdefg YB27 1.44±0.08cdefg
YA23 1.28±0.08defg YB28 1.50±0.31cdefg
YA24 1.66±0.31bc YB29 1.51±0.28cdefg
YA51 1.92±0.20b YC11 1.83±0.26b
YA52 1.43±0.04cdefg YC12 1.36±0.08cdefg
YA53 1.41±0.12cdefg YC13 1.34±0.16cdefg
YA54 1.54±0.08cde YC14 1.21±0.07fg
YA55 1.34±0.10cdefg YC15 1.36±0.07cdefg
YA56 2.28±0.24a YC16 1.42±0.12cdefg
YA57 1.26±0.09defg YC17 1.52±0.12cdef
YA71 1.47±0.17cdefg
YA72 1.40±0.16cdefg
YA73 1.55±0.19cd

2.7 突变菌株的复筛

2.7.1 突变菌株的产酸能力

将诱变后筛选得到的10株耐低糖乳酸菌接种至MRS液体培养基中,培养48 h测定后其pH,结果如表6所示。在含0.002 g/L葡萄糖的培养基中,菌株YA56的pH显著低于初始菌株A2、A5、A7、B2及突变菌株YA51、YA54、YA71、YA73、YB28、YB29、YC11和YC17(P<0.05);在含0.02 g/L葡萄糖的培养基中,突变菌株YA56的pH显著低于其他菌株(P<0.05);在含0.2 g/L葡萄糖的培养基中,突变菌株YA24和YA56的pH显著低于其他菌株(P<0.05);在含2和20 g/L葡萄糖的培养基中,突变菌株YA56的pH显著低于初始菌株A5、B2、C1及突变菌株YA54、YA71、YA73、YB28、YB29、YC11和YC17(P<0.05)。
表6 突变菌株在不同葡萄糖浓度培养基中培养48 h的pH

Table 6 pH of mutant strains cultured in media with different glucose concentrations for 48 h

菌株
Strains
葡萄糖浓度 Glucose concentrations/(g/L)
20 2 0.2 0.02 0.002
A2 3.68±0.02cde 5.11±0.02ef 5.83±0.04ef 6.05±0.01e 6.01±0.04f
A5 3.84±0.04b 5.34±0.07d 6.38±0.03b 6.48±0.11b 6.53±0.03b
A7 3.64±0.01def 5.12±0.01ef 5.86±0.05e 6.08±0.04e 6.19±0.01d
B2 3.94±0.10a 5.56±0.01a 6.52±0.01a 6.65±0.02a 6.66±0.01a
C1 3.70±0.03cde 5.34±0.14d 5.80±0.10efg 5.88±0.04fgh 5.91±0.03ghi
YA24 3.61±0.03ef 5.09±0.06f 5.49±0.02i 5.81±0.07gh 5.87±0.02hi
YA51 3.63±0.04def 5.06±0.06f 5.68±0.03h 5.85±0.03gh 5.99±0.09fg
YA54 3.68±0.08cde 5.52±0.02ab 6.21±0.03c 6.34±0.06c 6.31±0.04c
YA56 3.56±0.04f 5.08±0.03f 5.49±0.04i 5.68±0.03i 5.83±0.07i
YA71 3.71±0.04cd 5.50±0.03ab 6.08±0.04d 6.21±0.07d 6.36±0.07c
YA73 3.72±0.05cd 5.36±0.04cd 5.76±0.10fgh 5.79±0.03h 5.97±0.06fg
YB28 3.73±0.05c 5.57±0.05a 5.78±0.03eg 5.96±0.10f 6.03±0.04ef
YB29 3.82±0.06b 5.45±0.05b 6.14±0.05cd 6.38±0.04c 6.52±0.05b
YC11 3.68±0.02cde 5.44±0.07bc 5.72±0.08gh 5.89±0.03fg 5.92±0.05gh
YC17 3.70±0.02cde 5.19±0.04e 5.71±0.05gh 6.09±0.05e 6.11±0.04e

2.7.2 突变菌株的乳酸产量及乳酸产率

将诱变后筛选得到的10株耐低糖乳酸菌进行乳酸产量及乳酸产率的测定,结果如表7表8所示。在含0.002 g/L葡萄糖的培养基中,突变菌株YB28的乳酸产量显著高于初始菌株A5、A7、B2、C1及突变菌株YA51、YA71和YB29(P<0.05),乳酸产率为0.93;在含0.2 g/L葡萄糖的培养基中,初始菌株B2及突变菌株YA51、YA56和YB28的乳酸产量显著高于初始菌株A2、A5、A7、C1(P<0.05),乳酸产率分别为0.97、0.96、0.95和0.96;在含20 g/L葡萄糖的培养基中,突变菌株YA56的乳酸产量显著高于初始菌株A2、A5、A7、B2、C1及突变菌株YA24、YA54、YA71和YA73(P<0.05),乳酸产率为0.96。
表7 突变菌株在不同葡萄糖浓度培养基中培养48 h的乳酸产量

Table 7 Lactic acid yield of mutant strains cultured in media with different glucose concentrations for 48 hg/L

菌株
Strains
葡萄糖浓度 Glucose concentrations/(g/L)
20 2 0.2 0.02 0.002
A2 10.68±0.87def 1.90±0.02ab 0.14±0.01e 0.018±0.001ab 0.001 8±0.000 0abcd
A5 12.14±0.65bcd 1.93±0.01a 0.15±0.01bcde 0.016±0.004abcd 0.001 4±0.000 2cde
A7 10.43±0.43ef 1.11±0.08f 0.15±0.01de 0.017±0.001abc 0.001 2±0.000 1e
B2 11.82±1.07bcdef 1.90±0.00ab 0.18±0.02a 0.017±0.001abc 0.001 5±0.000 3bcde
C1 10.27±0.75f 1.96±0.03a 0.15±0.02cde 0.014±0.001d 0.001 3±0.000 3de
YA24 12.29±1.24bc 1.62±0.05de 0.16±0.01abcd 0.018±0.001a 0.002 0±0.000 2ab
YA51 12.75±0.72abc 1.78±0.06bc 0.17±0.00a 0.018±0.000a 0.001 5±0.000 2bcde
YA54 12.32±0.15bc 1.69±0.06cd 0.17±0.00ab 0.017±0.000abc 0.001 9±0.000 2abc
YA56 14.16±1.35a 1.89±0.02ab 0.18±0.01a 0.018±0.001a 0.001 9±0.000 1abc
YA71 11.39±0.87cef 1.73±0.08cd 0.17±0.01ab 0.015±0.000bcd 0.001 2±0.000 2e
YA73 11.93±0.52bce 1.79±0.18bc 0.17±0.01abcd 0.018±0.000a 0.001 9±0.000 2abc
YB28 12.76±0.58abc 1.61±0.09de 0.17±0.01a 0.017±0.000abc 0.002 0±0.000 2a
YB29 13.00±0.21abc 1.53±0.06e 0.17±0.01abc 0.015±0.001cd 0.001 4±0.000 1cde
YC11 13.16±0.98ab 1.70±0.06cd 0.16±0.00abcd 0.016±0.001abc 0.001 7±0.000 2abcd
YC17 12.69±1.15abc 1.73±0.05cd 0.17±0.01ab 0.017±0.001abc 0.001 8±0.000 3abc
表8 突变菌株在不同葡萄糖浓度培养基中培养48 h的乳酸产率

Table 8 Lactic acid productivity of mutant strains cultured in media with different glucose concentrations for 48 h

菌株
Strains
葡萄糖浓度 Glucose concentrations/(g/L)
20 2 0.2 0.02 0.002
A2 0.82±0.05d 0.97±0.01ab 0.85±0.07cd 0.89±0.07ab 0.94±0.02
A5 0.97±0.01ab 0.97±0.02ab 0.86±0.04cd 0.66±0.13c 0.93±0.07
A7 0.98±0.01ab 0.88±0.07ef 0.96±0.03ab 0.94±0.05ab 0.96±0.04
B2 0.88±0.06cd 0.96±0.00abc 0.97±0.02a 0.89±0.03ab 0.90±0.07
C1 0.95±0.02abc 0.99±0.02a 0.81±0.08d 0.86±0.03b 0.95±0.02
YA24 0.91±0.09abc 0.89±0.05cdef 0.88±0.05bcd 0.91±0.07ab 0.91±0.05
YA51 0.94±0.01abc 0.94±0.00abcde 0.96±0.03a 0.97±0.04a 0.96±0.03
YA54 0.93±0.01abc 0.91±0.04bcde 0.95±0.02ab 0.95±0.03ab 0.92±0.12
YA56 0.96±0.04abc 0.98±0.01ab 0.95±0.02ab 0.97±0.01a 0.93±0.02
YA71 0.93±0.05abc 0.95±0.01abcd 0.93±0.03abc 0.91±0.05ab 0.89±0.06
YA73 0.91±0.00abc 0.94±0.07abcde 0.95±0.04ab 0.93±0.05ab 0.93±0.03
YB28 0.93±0.06abc 0.89±0.05def 0.96±0.04ab 0.91±0.04ab 0.93±0.03
YB29 0.99±0.01a 0.84±0.04f 0.92±0.06abc 0.89±0.03ab 0.94±0.03
YC11 0.94±0.05abc 0.95±0.01abcde 0.92±0.02abc 0.93±0.02ab 0.96±0.02
YC17 0.90±0.03bc 0.93±0.05abcde 0.90±0.02abc 0.93±0.03ab 0.93±0.02

2.8 突变菌株的分子生物学鉴定

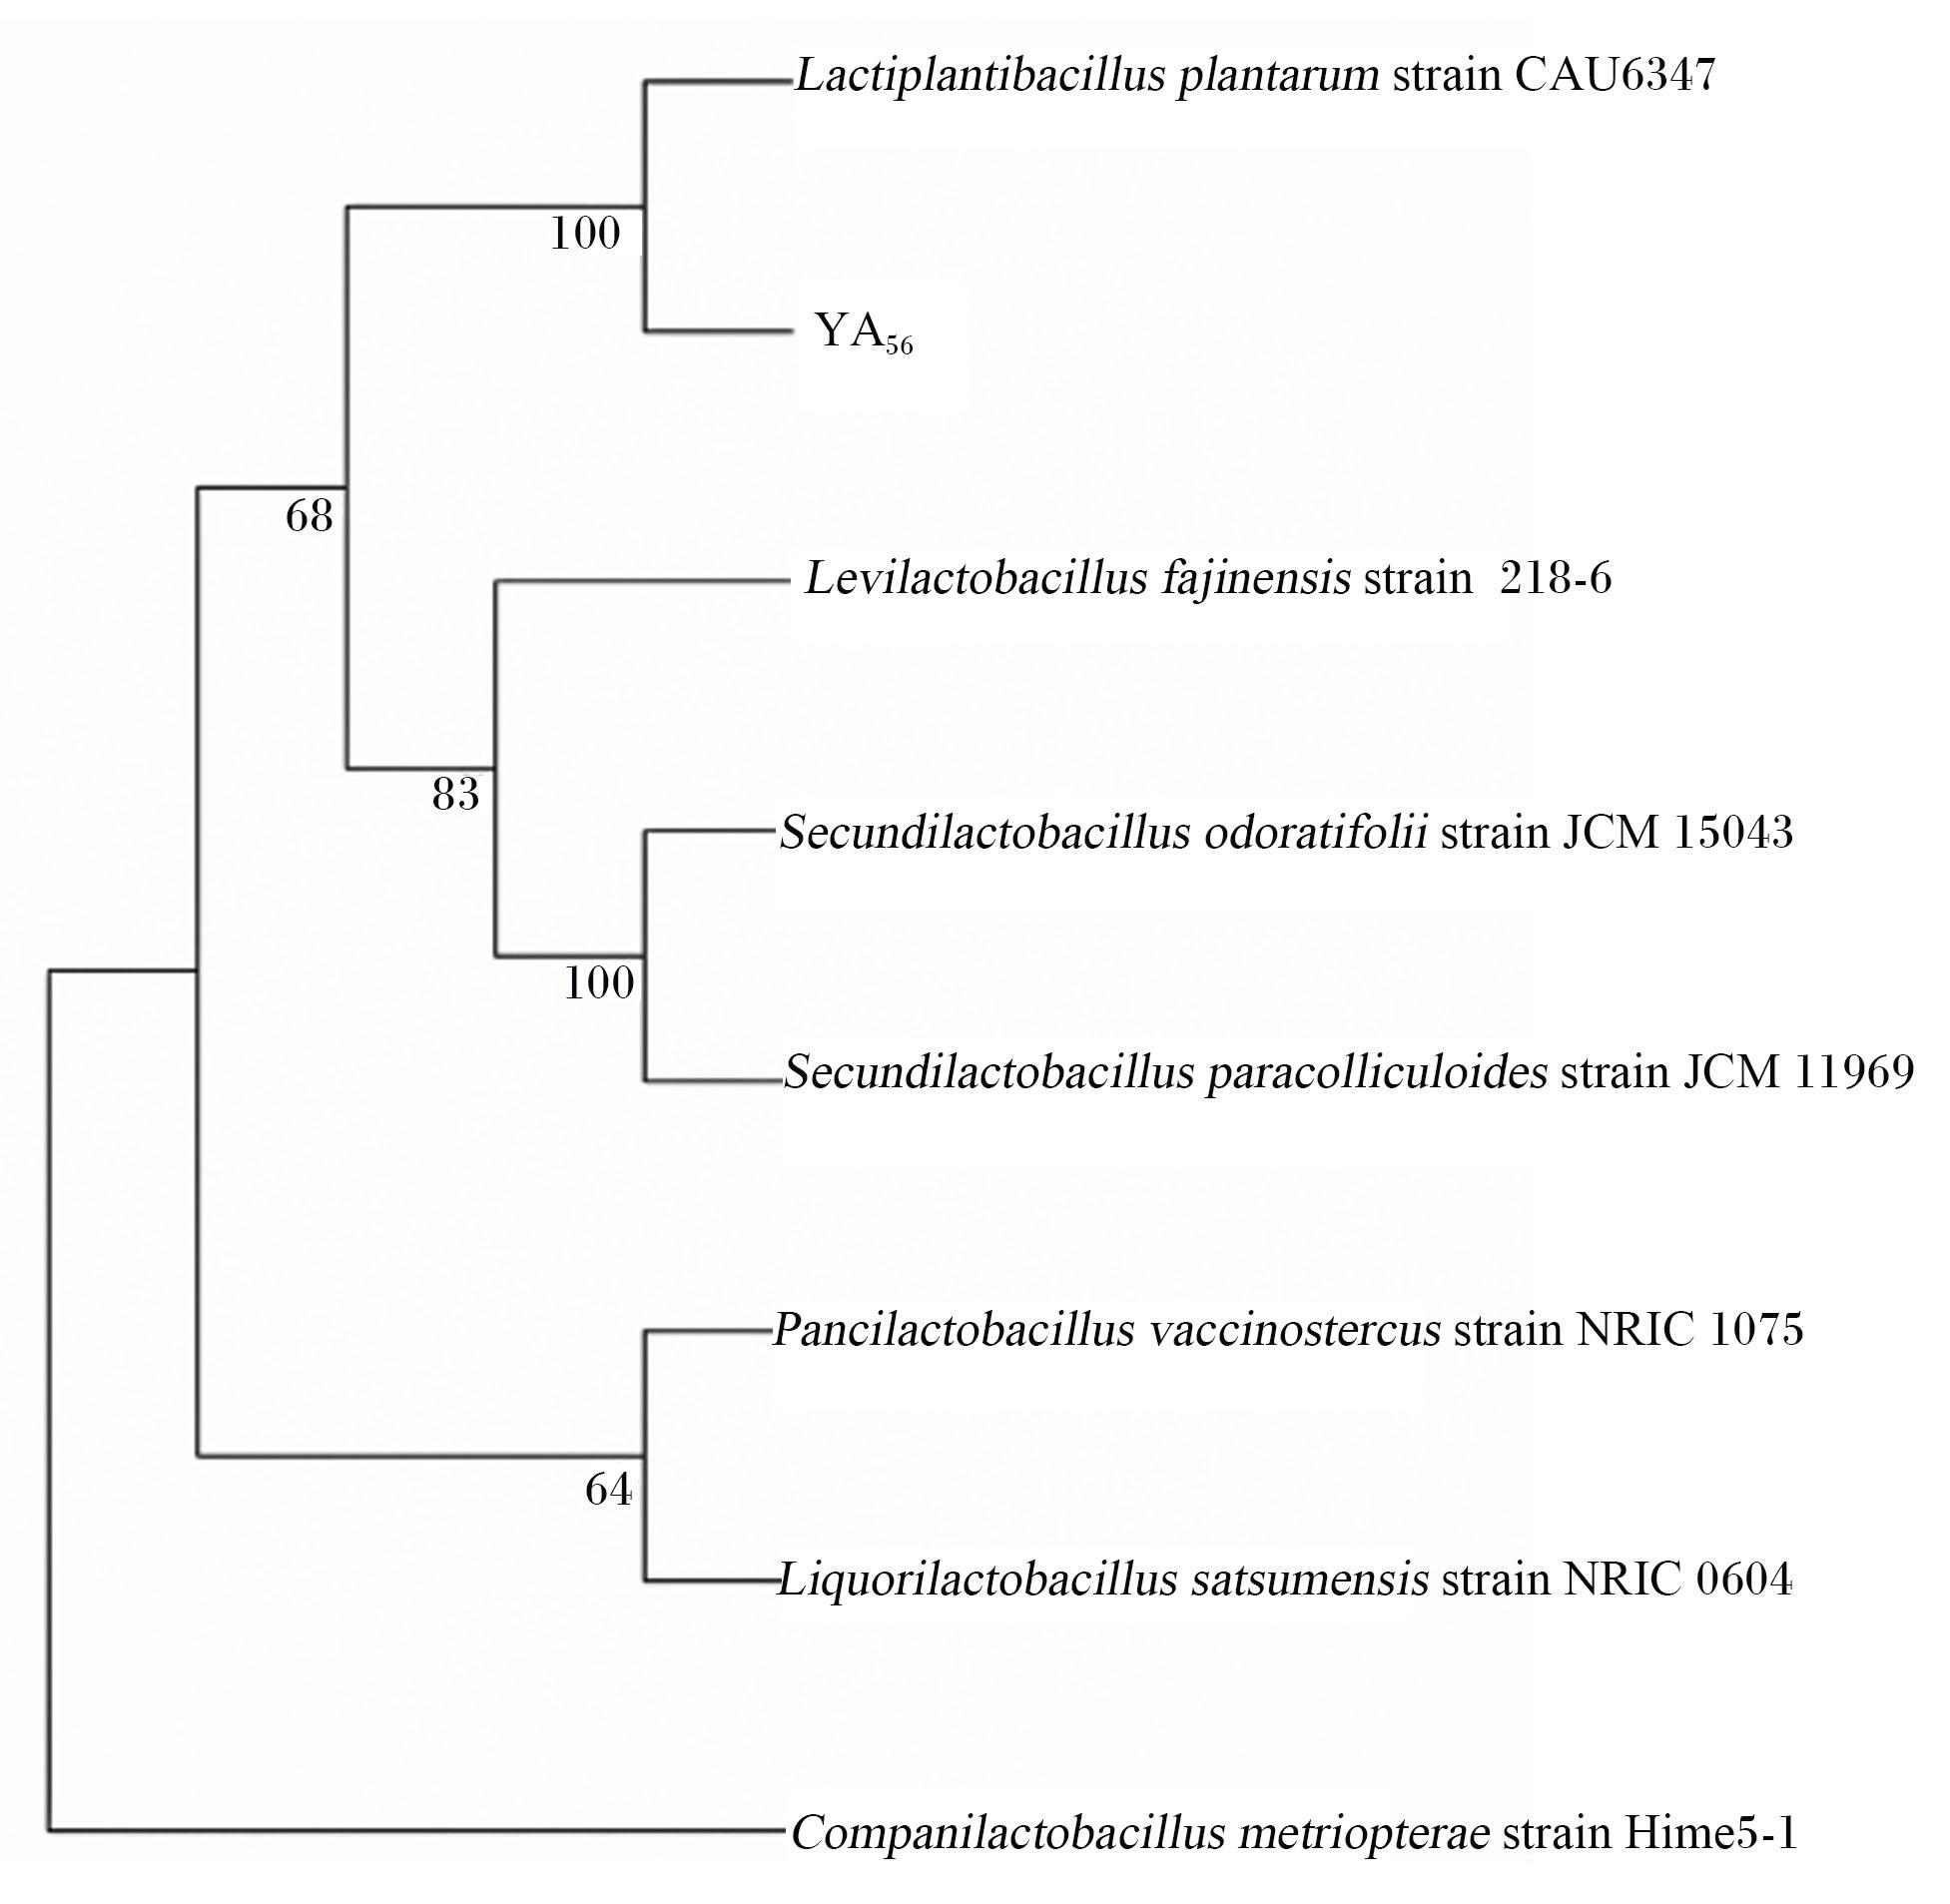
对诱变得到的突变菌株YA56进行16S rRNA测序鉴定,将PCR产物测序结果在BLAST程序中进行比对并构建系统发育树(图4),确定突变菌株YA56为植物乳杆菌(Lactiplantibacillus plantarum)。
图4 突变菌株YA56的系统发育树

Lactiplantibacillus plantarum strain CAU6347:植物乳杆菌CAU6347菌株;Levilactobacillus fajinensis strain 218-6:法金发酵乳杆菌218-6菌株;Secundilactobacillus odoratifolii strain JCM 15043:香叶次生乳杆菌JCM15043菌株;Secundilactobacillus paracolliculoides strain JCM 11969:副拟盘状次生乳杆菌JCM 11969 菌株;Pancilactobacillus vaccinostercus strain NRIC 1075:牛粪乳杆菌NRIC 1075菌株;Liquorilactobacillus satsumensis strain NRIC 0604:萨摩液体乳杆菌NRIC 0604菌株;Companilactobacillus metriopterae strain Hime5-1:伴生乳杆菌Hime5-1菌株。

Fig.4 Phylogenetic tree of mutant strain YA56

2.9 突变菌株的遗传稳定性

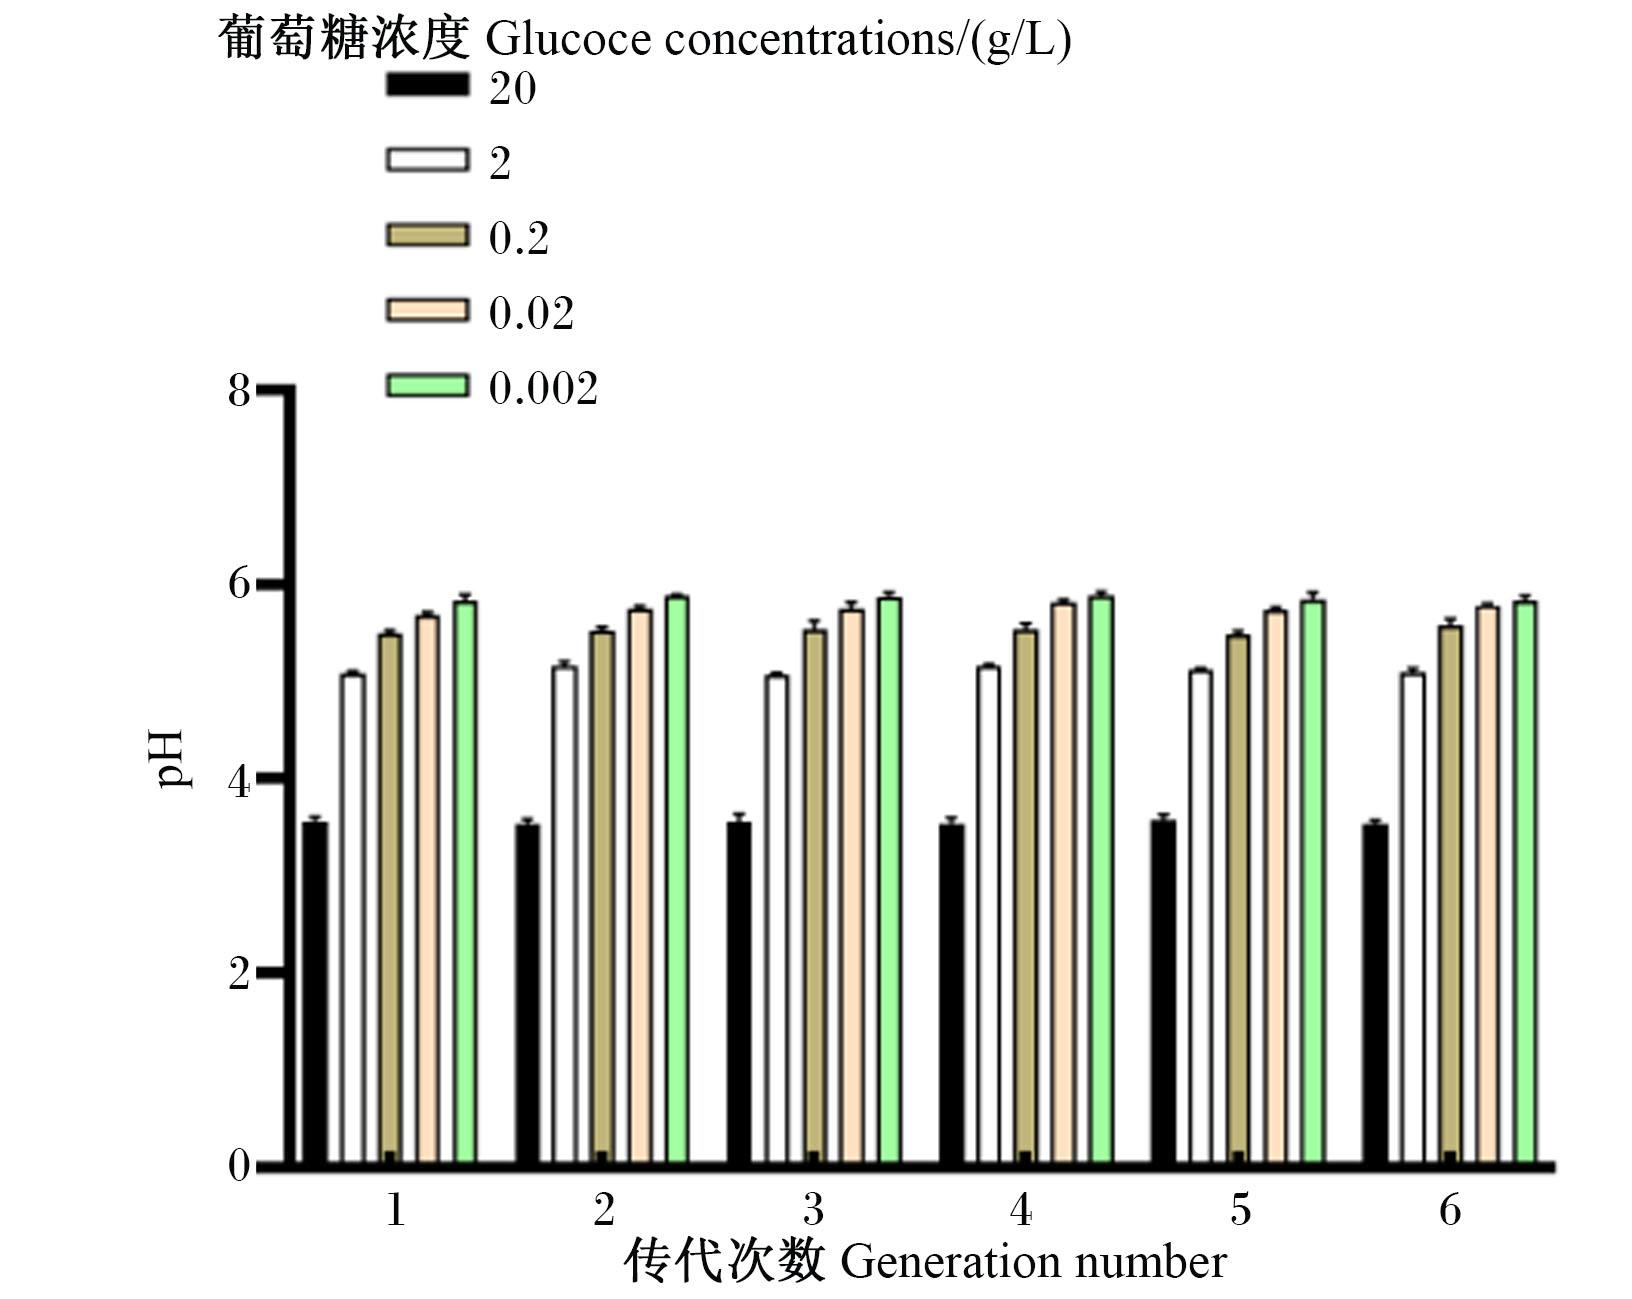
为了检测突变菌株YA56的遗传稳定性,对其进行连续6代划线培养,并测定各代次菌株的pH,结果如图5所示。突变菌株YA56不同传代次数之间的产酸能力(以pH表示)无显著差异(P>0.05),表明突变菌株YA56具有良好的产酸稳定性。
图5 突变YA56的遗传稳定性

同一葡萄糖浓度培养基中,数据柱在不同传代次数之间无字母标注表示差异不显著(P>0.05)。

Fig.5 Genetic stability of mutant strain YA56

In the same glucose concentration medium, no letters marked on the data bars among different generations indicated no significant difference (P>0.05).

2.10 突变菌株对苜蓿汁液的发酵效果

将初始菌株(A2、A5、A7、B2、C1)和10株突变菌株(YA24、YA51、YA54、YA56、YA71、YA73、YB28、YB29、YC11、YC17)分别接种至不同可溶性糖浓度梯度的苜蓿汁液中,37 ℃发酵24 h后的pH如表9所示。在含0.002 g/L可溶性糖的发酵苜蓿汁液中,突变菌株YA51和YA56的pH显著低于初始菌株A5、A7、B2及突变菌株YA54、YC11、YA24和YA73(P<0.05),与初始菌株A5相比,突变菌株YA56的pH降低了5.95%;在含0.02 g/L可溶性糖的发酵苜蓿汁液中,突变菌株YA56的pH显著低于各初始菌株及突变菌株YA24、YA51、YA54、YA73、YB28、YC11和YC17(P<0.05),与突变菌株YA71和YB29无显著差异(P>0.05);在含2 g/L可溶性糖的发酵苜蓿汁液中,突变菌株YA56和YB28的pH显著低于各初始菌株及突变菌株YA71、YC11、YA73和YC17(P<0.05)。
表9 初始菌株和突变菌株发酵24 h的苜蓿汁液pH

Table 9 pH of alfalfa juice fermented by original strain and mutant strains for 24 h

菌株
Strains
可溶性糖浓度 Soluble sugar concentrations/(g/L)
2 0.2 0.02 0.002
A2 4.40±0.06ab 5.65±0.03bc 5.84±0.10cde 6.05±0.08ef
A5 4.36±0.05bc 5.73±0.04b 6.21±0.04a 6.39±0.03a
A7 4.22±0.04d 5.86±0.04a 6.12±0.07b 6.19±0.08c
B2 4.46±0.09a 5.67±0.06bc 5.88±0.06c 6.28±0.03b
C1 4.31±0.04c 5.49±0.04e 5.83±0.09cde 6.08±0.03def
YA24 4.10±0.02fg 5.65±0.03bc 5.86±0.04cd 6.16±0.05cd
YA51 4.10±0.02fg 5.54±0.05de 5.88±0.04c 6.02±0.04f
YA54 4.13±0.01efg 5.52±0.05de 5.81±0.03cde 6.13±0.05cde
YA56 4.06±0.03g 5.49±0.03e 5.68±0.03g 6.01±0.04f
YA71 4.16±0.05def 5.47±0.07e 5.74±0.05efg 6.05±0.05ef
YA73 4.19±0.02de 5.67±0.10bc 5.90±0.04c 6.20±0.04c
YB28 4.06±0.01g 5.64±0.05bc 5.78±0.03def 6.07±0.02def
YB29 4.13±0.05efg 5.37±0.03f 5.70±0.03fg 6.08±0.04def
YC11 4.18±0.03def 5.68±0.04bc 5.90±0.03c 6.19±0.08c
YC17 4.19±0.05de 5.59±0.05cd 5.83±0.05cde 6.08±0.04def

3 讨论

牧草表面附着的微生物活性决定了青贮发酵过程的微观结构[19],其中乳酸菌是影响青贮发酵效果的重要菌群[20]。乳酸菌利用底物中的可溶性糖迅速繁殖,使pH快速下降,从而抑制大部分不利于青贮发酵的微生物生长和繁殖[21]。然而,苜蓿中可溶性糖含量较低,仅为3.72% DM,而苜蓿青贮所需的最低含糖量应为9.50% DM[22],其可溶性糖含量远低于理论需求。因此,筛选耐低糖乳酸菌对于提高可溶性糖含量低的青贮原料的发酵品质具有重要意义。本试验中,通过筛选和诱变获得的突变菌株YA56在0.002 g/L葡萄糖浓度下培养48 h后,其pH显著低于初始菌株及其他突变菌株,表明该菌株适用于可溶性糖含量低的青贮原料发酵。
菌株的来源在微生物研究中扮演着关键角色,不仅决定了菌株的功能特性和适应性,还影响其应用的潜力和安全性。通过从不同环境中分离菌株,可以发掘新的微生物资源。黄丽娟等[23]从全株水稻中筛选出1株粪肠球菌YMA3,培养14 h后pH可降低至4.2以下。刘红玉等[16]从川西北地区的青贮材料及鲜样中筛选得到副干酪乳杆菌YZ3,培养48 h后的pH为4.0。乳酸作为乳酸菌的主要代谢产物之一,可对某些微生物产生抑制作用[24],能够迅速降低发酵饲料的pH,形成适于乳酸菌生长的环境,从而缩短发酵周期。杜仁鹏等[25]从酸菜发酵液中分离筛选出1株高产乳酸的乳酸菌,在初始葡萄糖浓度为20 g/L的条件下,发酵72 h后乳酸产量高达25.23 g/L。吴锦兰等[26]从柳州酸笋发酵液中筛选得到1株高产乳酸的植物乳杆菌,发酵48 h后乳酸产量为12.18 g/L。本试验对分离自不同原料中的耐低糖乳酸菌先进行了形态学初步鉴定,随后进行了分子生物学鉴定,最终确定筛选得到的突变菌株YA56为植物乳杆菌。该菌株培养48 h后pH可快速降至4.0以下,乳酸产量达14.16 g/L,具备作为优良发酵接种菌的潜力。与前人研究相比,该菌株不仅能最大限度地适应青贮环境,还能为可溶性糖含量低的牧草青贮中的附生微生物提供竞争优势。
随着科学技术的不断进步,诱变育种技术也逐渐成熟起来,诱变育种的原理是通过物理或化学的诱导使微生物中某些基因进行重组或缺失来优化基因性状[27-28]。ARTP诱变技术利用常压室温等离子体诱导细胞基因组随机突变,诱变过程中能有效保持细胞活力,同时产生较高的突变频率和广泛的突变谱,该技术因操作简单、无毒无害、突变效率高等优点而被广泛应用[29-30]。高若珊等[31]从云南建水豆腐酸浆中分离并通过紫外诱变和温度梯度筛选手段最终获得1株耐高温且产酸好的突变菌株。闵勇等[32]通过ARTP对多黏芽孢杆菌NBF188进行诱变,获得1株高产突变菌株,其多黏菌素产率可提高106.2%,且其抑菌作用明显强于初始菌株。张善飞等[33]基于1株莫能菌素工业生产菌2110,对其进行ARTP诱变,成功获得1株高产突变株,莫能菌素产量为7.56 g/L,提升10%。张剑林等[34]以传统发酵酸乳为样品,分离得到1株海氏肠球菌,通过紫外诱变获得1株自聚集能力稳定且高产酸的菌株SN8-11,产酸量达14.9×10-3 mol/L。本试验筛选出5株耐低糖乳酸菌作为初始菌株,经ARTP诱变后,最终获得1株突变菌株YA56。与初始菌株及其他突变菌株相比,该菌株的产酸能力显著提升。尽管利用ARTP诱变选育耐低糖乳酸菌可为饲料添加剂的开发提供新途径,但诱变导致的菌株基因变化仍有待进一步探究。
本研究中筛选获得的耐低糖乳酸菌YA56,虽然理论上可作为发酵豆科等可溶性糖含量较低牧草的接种菌株,但其对这类牧草发酵品质和营养品质的影响尚未得到验证,后续本研究团队将通过青贮试验进一步探究其对低可溶性糖含量牧草的发酵品质和营养品质的影响,以期为耐低糖乳酸菌的研究提供科学依据。

4 结论

本试验从苜蓿鲜草、秸秆青贮及玉米青贮中筛选获得5株耐低糖乳酸菌,经ARTP诱变后获得突变菌株YA56。经鉴定,突变菌株YA56为植物乳杆菌,其产酸能力较初始菌株显著提升,且具有良好的遗传稳定性。
[1]
ÖZOGUL F, HAMED I. The importance of lactic acid bacteria for the prevention of bacterial growth and their biogenic amines formation:a review[J]. Critical Reviews in Food Science and Nutrition, 2018, 58(10):1660-1670.

DOI

[2]
MUCK R E, NADEAU E M G, MCALLISTER T A, et al. Silage review:recent advances and future uses of silage additives[J]. Journal of Dairy Science, 2018, 101(5):3980-4000.

DOI

[3]
LIU Q H, YANG F Y, ZHANG J G, et al. Characteristics of Lactobacillus parafarraginis ZH1 and its role in improving the aerobic stability of silages[J]. Journal of Applied Microbiology, 2014, 117(2):405-416.

DOI

[4]
ZHANG J G, KAWAMOTO H, CAI Y M. Relationships between the addition rates of cellulase or glucose and silage fermentation at different temperatures[J]. Animal Science Journal, 2010, 81(3):325-330.

DOI

[5]
魏晓强, 孙雪梅, 张海旺, 等. 高寒地区菊芋青贮物料耐低温乳酸菌的筛选与鉴定[J]. 草业科学, 2024, 41(2):480-490.

WEI X Q, SUN X M, ZHANG H W, et al. Identification of low-temperature-tolerant lactic acid bacteria in Helianthus tuberosus silage in alpine regions[J]. Pratacultural Science, 2024, 41(2):480-490. (in Chinese)

[6]
YOU S H, DU S, GE G T, et al. Selection of lactic acid bacteria from native grass silage and its effects as inoculant on silage fermentation[J]. Agronomy Journal, 2021, 113(4):3169-3177.

DOI

[7]
田静, 曹彩霞, 黄莉莹, 等. 耐低营养乳酸菌筛选及对难青贮牧草发酵品质的影响[J]. 草业学报, 2023, 32(9):222-230.

DOI

TIAN J, CAO C X, HUANG L Y, et al. Screening low-nutrient-tolerant lactic acid bacteria and their effects on the fermentation quality of silages from poor materials[J]. Acta Prataculturae Sinica, 2023, 32(9):222-230. (in Chinese)

DOI

[8]
KUPPUSAMY P, KIM D, SOUNDHARRAJAN I, et al. Low-carbohydrate tolerant LAB strains identified from rumen fluid:investigation of probiotic activity and legume silage fermentation[J]. Microorganisms, 2020, 8(7):1044.

DOI

[9]
陆欢, 沈玲, 尚晓冬, 等. 常压室温等离子体技术在微生物诱变育种中的研究进展[J]. 生物学杂志, 2023, 40(4):92-97.

LU H, SHEN L, SHANG X D, et al. Application of atmospheric and room temperature plasma mutagenesis in microbial and edible fungi mutation breeding[J]. Journal of Biology, 2023, 40(4):92-97. (in Chinese)

[10]
吴晓英, 柳泽深, 姜悦. 雨生红球藻等离子诱变及高产藻株的筛选[J]. 食品安全质量检测学报, 2016, 7(9):3781-3787.

WU X Y, LIU Z S, JIANG Y. Mutation breeding of Haematococcus pluvialis by atmospheric and room temperature plasma and isolation of high-producing mutants[J]. Journal of Food Safety and Quality, 2016, 7(9):3781-3787. (in Chinese)

[11]
CHENG L K, WANG J, ZHAO X B, et al. An antiphage Escherichia coli mutant for higher production of L-threonine obtained by atmospheric and room temperature plasma mutagenesis[J]. Biotechnology Progress, 2020, 36(6):e3058.

DOI

[12]
HUANG H Z, DING L L, LU J, et al. Combinatorial strategies for production improvement of red pigments from Antarctic fungus Geomyces sp.[J]. Journal of Food Science, 2020, 85(10):3061-3071.

DOI

[13]
陈欢, 史子浩, 吴春会, 等. 高产纤维素降解菌筛选、诱变选育及其秸秆降解效果研究[J]. 动物营养学报, 2024, 36(12):8126-8136.

DOI

CHEN H, SHI Z H, WU C H, et al. Screening,mutation breeding and straw degradation effects of high-yield cellulase strains[J]. Chinese Journal of Animal Nutrition, 2024, 36(12):8126-8136. (in Chinese)

DOI

[14]
卢博雨, 王永奔, 张朋, 等. 藏香猪粪便中益生性乳酸菌的筛选和鉴定[J]. 动物营养学报, 2025, 37(7):4849-4862.

DOI

LU B Y, WANG Y B, ZHANG P, et al. Screening and identification of probiotic lactic acid bacteria in feces of Tibetan fragrant pigs[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4849-4862. (in Chinese)

DOI

[15]
李小铃, 关皓, 闫艳红, 等. 狼尾草属牧草青贮优良乳酸菌的筛选及生理生化特性研究[J]. 草学, 2018(4):27-35.

LI X L, GUAN H, YAN Y H, et al. Screening and physiological-biochemical characteristics of good lactic acid bacteria from Pennisetum silage[J]. Journal of Grassland and Forage Science, 2018(4):27-35. (in Chinese)

[16]
刘红玉, 曾泰儒, 张云飞, 等. 耐低温乳酸菌的筛选鉴定及其对燕麦青贮发酵品质的影响[J]. 草业科学, 2025, 42(3):669-678.

LIU H Y, ZENG T R, ZHANG Y F, et al. Screening and identification of low-temperature resistant lactic acid bacteria and its effect on fermentation quality of oat silage[J]. Pratacultural Science, 2025, 42(3):669-678. (in Chinese)

[17]
OWENS V N, ALBRECHT K A, MUCK R E, et al. Protein degradation and fermentation characteristics of red clover and alfalfa silage harvested with varying levels of total nonstructural carbohydrates[J]. Crop Science, 1999, 39(6):1873-1880.

DOI

[18]
LI D X, WANG Y P, ZHANG Y C, et al. Evaluation of lactic acid bacteria isolated from alfalfa for silage fermentation[J]. Grassland Science, 2018, 64(3):190-198.

DOI

[19]
ZI X J, LI M, CHEN Y Y, et al. Effects of citric acid and Lactobacillus plantarum on silage quality and bacterial diversity of king grass silage[J]. Frontiers in Microbiology, 2021, 12:631096.

DOI

[20]
陈国旺, 南景东, 张建胜, 等. 枯草芽孢杆菌和乳酸菌对青贮饲料发酵效果的研究进展[J]. 中国饲料, 2025(1):157-161.

CHEN G W, NAN J D, ZHANG J S, et al. Research progress on the fermentation effect of Bacillus subtilis and lactic acid bacteria on silage[J]. China Feed, 2025(1):157-161. (in Chinese)

[21]
ÁVILA C L S, CARVALHO B F. Silage fermentation—updates focusing on the performance of micro-organisms[J]. Journal of Applied Microbiology, 2020, 128(4):966-984.

DOI

[22]
刘志伟, 刘振宇, 高丽华, 等. 苜蓿青贮的影响因素及青贮技术要点[J]. 饲料博览, 2020(8):47-49,54.

LIU Z W, LIU Z Y, GAO L H, et al. Affecting factors of alfalfa silage and key point of silage technology[J]. Feed Review, 2020(8):47-49,54. (in Chinese)

[23]
黄丽娟, 孙镕基, 高文婧, 等. 全株水稻表面优势乳酸菌的筛选与鉴定[J]. 草业学报, 2024, 33(1):117-125.

DOI

HUANG L J, SUN R J, GAO W J, et al. Screening and identification of whole rice surface dominant lactic acid bacteria[J]. Acta Prataculturae Sinica, 2024, 33(1):117-125. (in Chinese)

[24]
IBRAHIM S A, YANG H, SEO C W. Antimicrobial activity of lactic acid and copper on growth of Salmonella and Escherichia coli O157∶H7 in laboratory medium and carrot juice[J]. Food Chemistry, 2008, 109(1):137-143.

DOI

[25]
杜仁鹏, 赵丹, 王晓宇, 等. 1株乳酸高产菌的分离鉴定与系统发育分析[J]. 中国食品学报, 2017, 17(9):243-250.

DU R P, ZHAO D, WANG X Y, et al. Isolation,identification and phylogenetic analysis of a high lactate-producing bacterium[J]. Journal of Chinese Institute of Food Science and Technology, 2017, 17(9):243-250. (in Chinese)

[26]
吴锦兰, 付玉麟, 周小玲, 等. 酸笋中高产乳酸乳酸菌的筛选、鉴定及发酵条件优化[J]. 中国酿造, 2021, 40(1):65-69.

DOI

WU J L, FU Y L, ZHOU X L, et al. Screening,identification and fermentation conditions optimization of lactic acid bacteria with high yield lactic acid from sour bamboo shoot[J]. China Brewing, 2021, 40(1):65-69. (in Chinese)

[27]
乔桦, 陈波, 朱天骄, 等. 产黄青霉S-3-25的硫酸二乙酯诱变突变株3d10-01的次级代谢产物研究[J]. 国际药学研究杂志, 2017, 44(9):871-877.

QIAO H, CHEN B, ZHU T J, et al. The secondary metabolites from a mutant 3d10-01 derived from Penicillium chrysogenum S-3-25 by diethyl sulfate mutagenesis[J]. Journal of International Pharmaceutical Research, 2017, 44(9):871-877. (in Chinese)

[28]
左芳, 许超, 陈铭德. 应用果皮提取液探究紫外线诱变原理的实验活动[J]. 生物学通报, 2009, 44(12):50-52.

ZUO F, XU C, CHEN M D. An experimental activity to examine the principle of UV inducing mutagenesis by using the extracts of fruit peels[J]. Bulletin of Biology, 2009, 44(12):50-52. (in Chinese)

DOI

[29]
BAN S D, LIN W T, LUO Z W, et al. Improving hydrogen production of Chlamydomonas reinhardtii by reducing chlorophyll content via atmospheric and room temperature plasma[J]. Bioresource Technology, 2019, 275:425-429.

DOI

[30]
OTTENHEIM C, NAWRATH M, WU J C. Microbial mutagenesis by atmospheric and room-temperature plasma (ARTP):the latest development[J]. Bioresources and Bioprocessing, 2018, 5(1):12.

DOI

[31]
高若珊, 王冰, 范洪臣, 等. 酸浆豆腐中产酸菌的耐高温紫外诱变[J]. 食品科学技术学报, 2021, 39(1):137-143.

GAO R S, WANG B, FAN H C, et al. High temperature resistant mutation of acid-producing strains in acid tofu whey by ultraviolet radiation[J]. Journal of Food Science and Technology, 2021, 39(1):137-143. (in Chinese)

[32]
闵勇, 王颖, 刘晓艳, 等. 多黏类芽孢杆菌ARTP诱变及高产菌株的选育[J]. 种子科技, 2019, 37(13):40-41.

MIN Y, WANG Y, LIU X Y, et al. ARTP mutagenesis of Bacillus polymyxa and breeding of high-yield strains[J]. Seed Science & Technology, 2019, 37(13):40-41. (in Chinese)

[33]
张善飞, 李欣颖, 田丹丹, 等. 高产莫能菌素菌株常温室压等离子体诱变选育及发酵培养基优化[J]. 食品与发酵工业, 2025, 51(11):37-46.

DOI

ZHANG S F, LI X Y, TIAN D D, et al. Atmospheric room temperature plasma mutagenesis and medium optimization of monensin production strain for efficient production[J]. Food and Fermentation Industries, 2025, 51(11):37-46. (in Chinese)

DOI

[34]
张剑林, 石骏, 张玉卿, 等. 传统发酵酸乳中乳酸菌筛选及高产酸菌株的紫外诱变选育[J]. 食品科技, 2025, 50(4):60-66.

ZHANG J L, SHI J, ZHANG Y Q, et al. Screening of lactic acid bacteria from traditional fermented yoghurt and UV mutagenesis breeding of high acid-producing strains[J]. Food Science and Technology, 2025, 50(4):60-66. (in Chinese)

文章导航

/