RESEARCH PAPER

Differential Proteomics Analysis between Holstein Cow Milk and Yak Milk

  • QIU Shantong ,
  • WANG Meng ,
  • GAO Na ,
  • YU Zhen ,
  • XU Gengquan ,
  • YU Sijiu ,
  • WANG Libin ,
  • PAN Yangyang , *
Expand
  • Gansu Province Livestock Embryo Engineering Research Center, College of Veterinary Medicine, Gansu Agricultural University, Lanzhou 730070, China
* associate professor, E-mail:

Received date: 2022-05-31

  Online published: 2023-01-11

Abstract

This experiment using the method of proteomics to analyze the differential proteins in whey and milk fat globule membrane, compare the functions of differential proteins to help develop different kinds of milk products. Holstein cow milk and yak milk were centrifugated and used to separating whey and milk fat, and the protein components of whey and milk fat globule membrane were identified and quantified using tandem mass tags (TMT) method, analysis to get the differential proteins; GO function annotation, KEGG metabolic pathway, protein-protein interaction (PPI) and other bioinformatics analysis were performed on the differential proteins. The results were shown that yak milk was significantly higher than Holstein cow milk in the contents of milk fat, milk protein, lactose, total solids and non-fat milk solids (P<0.05). A total of 641 credible proteins in whey and 543 credible proteins in milk fat globulin membrane proteins in Holstein cow milk and yak milk were identified. There were 268 kinds of differential proteins in whey, in which 198 kinds of differential proteins up-regulated and 70 kinds of differential proteins down-regulated in Holstein cow milk compared with yak milk. There were 267 kinds of differential proteins in milk fat globule membrane. Compared with yak milk, Holstein cow milk up-regulated 199 kinds of differential proteins and down-regulated 68 kinds of differential proteins. GO function annotations and enrichment analysis illustrated that differential proteins in whey and milk fat globule membrane of each kind of milk mainly enriched in extracellular space, small molecule binding, immune response, etc. KEGG annotations and enrichment analysis supported that differential proteins in whey and milk fat globule membrane of each kind of milk mainly gathered in the pathways of and Staphylococcus aureus infection and complement and coagulation cascades, etc. Interaction network analysis of differential proteins showed that, the degree values of glyceraldehyde-3-phosphate dehydrogenase (GAPDH), alpha-2-HS-glycoprotein (AHSG), clusterin (CLU), haptoglobin (HP), component 3 (C3), alpha-1-antiproteinase (SERPINA1), heat shock protein A8 (HSPA8) and beta-2-microglobulin (B2M) were higher in whey differential proteins of each kind of milk, which were supposed to be crucial proteins in whey; the degree values of serum albumin (ALB), HP, C3, CLU, alpha-2-macroglobulin (A2M), AHSG, HSPA8 and B2M were higher in milk fat globular membrane differential proteins of each kind of milk, which were supposed to be crucial proteins in milk fat. From the above, yak milk is better than Holstein milk in nutrition value. The protein with high abundance in yak milk shows its excellent performance in gastrointestinal immune function and promoting calcium and phosphorus absorption. Some high abundance proteins in yak milk are easy to cause the deterioration of dairy products.

Cite this article

QIU Shantong , WANG Meng , GAO Na , YU Zhen , XU Gengquan , YU Sijiu , WANG Libin , PAN Yangyang . Differential Proteomics Analysis between Holstein Cow Milk and Yak Milk[J]. Chinese Journal of Animal Nutrition, 2023 , 35(1) : 335 -349 . DOI: 10.3969/j.issn.1006-267x.2023.01.034

在物质基础飞速发展的现代社会,牛奶及其产品具有人体所需的蛋白质、氨基酸、维生素、矿物质等多种营养物质[1-4]。由于牛奶具有易于获得、产量较大等优点,人们对牛奶及其产品的消费市场不断扩大[5]。牛奶中富含多种具有营养和免疫益处的蛋白质。这些蛋白质也是反映奶牛机体病理生理状况的潜在标志物的丰富来源[2,4]。蛋白质组学(proteomics)是近年来研究蛋白质的一种常见方法[6],其意义是研究在细胞或整个生物体内特定基因组所表达的全部蛋白质[7]。研究内容包括蛋白质的表达、翻译后的修饰以及蛋白质之间的相互作用等,从而对蛋白质表达规律进行研究[6-8]。通过对鉴定得到的蛋白质组进行生物信息学分析,可以帮助我们对蛋白质产生功能的网络和蛋白质的动态性进行研究[8-9],以此来全面地对不同牛奶的质量进行多方面客观地评价。目前针对乳品的蛋白质组学研究取得了一定进展,在人乳、牛乳、羊乳、水牛乳、骆驼乳、马乳等中展开了研究[10]。邓微等[11]利用同位素标记相对和绝对定量(iTRAQ)方法分析了牛初乳和成熟乳的乳清蛋白质组学,为了解牛初乳与成熟乳的泌乳生理以及开发保健食品提供了思路。Reinhardt等[12]利用iTRAQ方法对健康的和患有乳房炎的牛乳脂肪球膜蛋白、乳清蛋白和外泌体蛋白进行了蛋白质组分析,在金黄色葡萄球菌感染的牛乳中发现了94种差异蛋白,为寻找疾病的靶向标志物提供了帮助。目前国内荷斯坦奶牛(Holstein cows)数量占比较大[13];牦牛(Bos grunniens)作为高海拔地区的常见牛种,对于高寒环境拥有较强的耐受性[14]。甘肃省甘南地区牦牛资源相对丰富,牦牛乳产量较大,且绿色无污染[13],具有开发高品质乳产品的潜力。魏黎阳等[15]对牛、牦牛、水牛、羊、马、驴、骆驼等常见哺乳动物乳营养成分的不同进行了总结描述,但并未进行蛋白质组学的比较。本研究利用蛋白质组学方法对比牦牛乳与荷斯坦奶牛乳中的蛋白,帮助企业与用户更加全面地了解不同牛种所产乳的价值,为合理利用和开发不同品种牛乳及其制品提供参考。

1 材料与方法

1.1 试验材料

1.1.1 样品采集

30份荷斯坦奶牛乳样于2020年10月连续5 d每日08:00由人工挤奶法采自甘肃平凉牧场,30份牦牛乳样于2020年8月连续5 d每日07:00由人工挤奶法采自甘肃甘南牙利吉乡。平凉荷斯坦奶牛为圈养,甘南牦牛为草原散养。所采乳样每份均来自不同牛只,每日采集50 mL,混合后每份样本250 mL,荷斯坦奶牛乳与牦牛乳均分为3组,每10份乳样分为一组混匀(后期蛋白质组检测分组),3组间互为重复。乳样在低温条件下运送至实验室,-80 ℃条件下保存备用。乳样采集牛基本情况如表1所示。
表1 乳样采集牛基本情况

Table 1 Basic information of cattle breeds from which milk samples were collected

分组
Groups
样本数
n
年龄
Age/岁
胎次
Parity/胎
产后天数
Postnatal day/d
荷斯坦奶牛Ⅰ Holstein cow Ⅰ 10 7.10±1.12 2.40±0.52 184.00±16.24
荷斯坦奶牛Ⅱ Holstein cow Ⅱ 10 7.10±1.19 2.30±0.48 159.20±24.76
荷斯坦奶牛Ⅲ Holstein cow Ⅲ 10 7.20±1.40 2.40±0.70 182.00±40.29
牦牛Ⅰ Yak Ⅰ 10 6.30±1.59 2.52±0.63 168.00±35.29
牦牛Ⅱ Yak Ⅱ 10 7.10±1.68 2.50±0.46 189.00±86.63
牦牛Ⅲ Yak Ⅲ 10 7.40±1.56 2.68±0.55 203.00±63.59

1.1.2 试验药品

TMT pro 16标记试剂盒购自Thermo Fisher公司;羟胺、四乙基溴化铵(TEAB)购自Sigma公司;十二烷基磺酸钠(SDS)裂解液购自碧云天生物技术研究所;BCA试剂盒、质谱(MS)级水、乙腈(ACN)、甲酸、未染色蛋白分子量Marker购自Thermo Scientific公司;十二水合磷酸氢二钠、一水合磷酸二氢钠、氯化钠(NaCl)、碘乙酰胺、二硫苏糖醇(DTT)、甘油、溴酚蓝、吲哚乙酸(IAA)购自上海生工生物工程技术服务有限公司;无水乙醇、异丙醇(General-Reagent)购自上海泰坦科技股份有限公司;丙酮购自上海沃凯生物技术有限公司。

1.1.3 试验仪器

MCCWV-1乳成分分析仪,杭州麦力斯科技有限公司;Q Exactive HF质谱仪、EASY-nLC 1000液相色谱仪,Thermo Fisher公司;台式冷冻离心机,上海卢湘仪离心机仪器有限公司;SDS-聚丙烯酰胺凝胶电泳(PAGE)电泳仪,北京市六一仪器厂;酶标仪,上海科华实验系统有限公司;恒温混匀仪,上海净信实业有限公司;全自动数码凝胶图像分析系统,上海天能科技有限公司;eStain LG蛋白染色仪,南京金斯瑞生物科技有限公司;电子天平,上海越平科学仪器有限公司;高pH分离液相色谱仪,Agilent公司。

1.2 试验方法

1.2.1 主要营养成分含量的测定

利用MCCWV-1乳成分分析仪分析荷斯坦奶牛乳和牦牛乳的乳蛋白、乳脂、乳糖、总固形物和非乳脂固形物含量。

1.2.2 乳清、乳脂的分离

将采集的牛乳加入离心管,在离心机中离心15 min(9 000 r/min、4 ℃)。离心完毕后牛乳分为3层,上层得到乳脂,中间层为乳清,下层为细胞碎片,将乳清与乳脂分开,在-80 ℃保存。

1.2.3 蛋白提取

将冷冻的乳清和乳脂取出,分别加入1.5 mL离心管中。在样品中加入6倍体积的丙酮,-20 ℃环境下放置过夜;放入离心机中4 ℃、12 000×g离心10 min,收集沉淀;沉淀在常温下进行干燥,溶解于SDS裂解液中,室温放置3 h;将溶液在室温下12 000×g离心10 min,取上清,并再次离心取上清,即为样品的总蛋白溶液。

1.2.4 胰蛋白酶酶解与肽段标记

根据测定的蛋白浓度,每个样品取50 μg的蛋白,并用SDS裂解液将不同组样品稀释调整到相同的浓度和体积。在以上蛋白溶液中加入DTT,使得DTT的终浓度为5 mmol/L,混匀,在55 ℃孵育30 min;瞬时离心降温至室温;加入相应体积的碘乙酰胺,使得碘乙酰胺终浓度为10 mmol/L,充分混匀,室温避光放置15 min。在以上溶液中加入6倍体积的丙酮沉淀蛋白,-20 ℃放置过夜;4 ℃、8 000×g离心10 min收集沉淀,室温静置2~3 min,待丙酮挥发完全加入100 μL TEAB(200 mmol/L)复溶沉淀,加入1/50样品质量的1 mg/mL胰蛋白酶,并于37 ℃消化过夜;将消化完成的样品进行冻干。向冻干样品中加入50 μL 100 mmol/L TEAB,斡旋混匀,于离心管中进行标记反应。从冰箱中取出TMT pro试剂,平衡到室温,加入20 μL无水ACN,斡旋5 min,离心;取10 μL TMT pro试剂加入到样品中,振荡混匀,室温放置1 h;加入5 μL 5%羟胺终止反应15 min,冻干后放入-80 ℃冰箱保存。

1.2.5 MS分析

反向色谱分离在Agilent-1100高效液相色谱仪中进行。色谱柱选择Agilent Zorbax Extend-C18窄径柱,2.1 mm×150 mm,5 μm。检测波长设置为210和280 nm。流动相A相:ACN-H2O(2∶98,v/v),用氨水将pH调至10。流动相B相:ACN-H2O(90∶10,v/v),用氨水将pH调至10。流速设置为300 μL/min;梯度洗脱条件为0~8 min,98% A相;8~8.01 min,98%~95% A相;8.01~48 min,95%~75% A相;48~60 min,75%~60% A相;60~60.01 min,60%~10% A相;60.01~70 min,10% A相;70~70.01 min,10%~98% A相;70.01~75 min,98% A相。标记分离共68 min,前7 min除盐不接样,8~53 min,每分钟收集1个样,共45个组分,按梯度均值合并为15个组分,进行挥发晾干。
色谱条件设置样品以350 nL/min的流速上样到预柱(C18填料,孔径12A,粒径1.9 μm),再经分析柱75 μm×15 cm(RP-C18,New Objective,美国)分离。流动相A相:H2O-甲酸(FA)(99.9∶0.1,v/v);流动相B相:ACN-FA(99.9∶0.1,v/v);梯度洗脱条件:0~1 min,2%~6% B相;1~52 min,6%~35% B相;52~54 min,35%~90% B相;54~60 min,90% B相。
质谱条件设置为一级MS质量分辨率120 000,自动增益控制值3e6,最大注射时间30 ms;质谱扫描设定为全扫描荷质比(m/z)范围350~1 650,并对其中15个最高峰进行MS/MS扫描;所有MS/MS图谱采集使用数据依赖型的正离子模式下的高能碰撞裂解完成,碰撞能量设为32;MS/MS的分辨率设为60 000,自动增益控制设为1e5,离子最大注射时间为54 ms;动态排除时间设为40 s。

1.2.6 数据库检索

数据采用Proteome Discover 2.4(Thermo Fisher公司)分析。静态改性设置为TMT(N-term,K);Carbamidomethyl(C),酶切模式选择Trypsin,最大漏切位点2个,一级质量冗余10 ppm,二级质量冗余0.02 Da,具体搜库参数设置如表2所示。
表2 质谱检索参数

Table 2 MS retrieval parameters

项目Items 参数Parameters
静态改性Static modification TMT (N-term, K); Carbamidomethyl (C)
动态改性Dynamic modification Oxidation (M), Acetyl (N-term)
酶切模式Digestion Trypsin
仪器Instrument Q Exactive HF
一级质量冗余MS1 tolerance 10 ppm
二级质量冗余MS2 tolerance 0.02 Da
最大漏切位点Missed cleavages 2
数据库Database uniprot-taxonomy_9913.fasta

1.3 数据处理

1.3.1 筛选差异蛋白

利用数据库检索得到原始数据后,在Excel 2019中按照Score Sequest HT>0且unique peptide≥1,并去除空白值的标准筛选得到可信蛋白,并选取差异倍数(fold change,FC)与P值2个标准计算样品间的差异。其中FC用来评估某一蛋白在样品间的表达水平变化倍数;而经t-检验(t-test)计算的P值展现样品间差异的显著程度。利用FC=1.2倍且P<0.05标准筛选得到差异蛋白。对差异蛋白进行GO/KEGG富集分析,对其功能进行描述。

1.3.2 差异蛋白互作网络分析

在STRING(https://string-db.org/)网站上,输入蛋白名称,选择Bos taurus物种,获取蛋白互作关系,选择筛选分数为low confidence (0.150)后导出数据,选取连接度排名前25的蛋白并利用Cytoscape 3.7绘制蛋白质互作网络图。

2 结果与分析

2.1 不同牛乳主要营养成分含量测定结果

测定荷斯坦奶牛乳和牦牛乳的乳蛋白、乳脂、乳糖、总固形物和非乳脂固形物含量,利用SPSS 13.0软件进行独立样本t-检验,比较荷斯坦奶牛乳与牦牛乳各营养成分含量差异的显著性,结果如表3所示。从表中可以看出,荷斯坦奶牛乳和牦牛乳的乳蛋白、乳脂、乳糖、总固形物和非乳脂固形物含量均存在显著差异(P<0.05)。
表3 荷斯坦奶牛乳与牦牛乳的主要营养成分含量比较结果

Table 3 Comparative results of main nutritional component contents in milk of Holstein cows and yak

项目
Items
样本数
n
乳脂
Milk fat/%
乳蛋白
Milk protein/%
乳糖
Lactose/%
总固形物
TS/%
非乳脂固形物
SNF/%
荷斯坦奶牛乳Holstein cow milk 30 3.58±0.09a 3.04±0.10a 4.39±0.15a 11.71±0.11a 8.28±0.08a
牦牛乳Yak milk 30 4.68±0.18b 3.67±0.08b 5.47±0.16b 14.52±0.18b 9.80±0.16b

同列数据肩标不同字母表示差异显著(P<0.05)。

In the same column, values with different letters superscripts mean significant difference (P<0.05).

2.2 蛋白鉴定结果

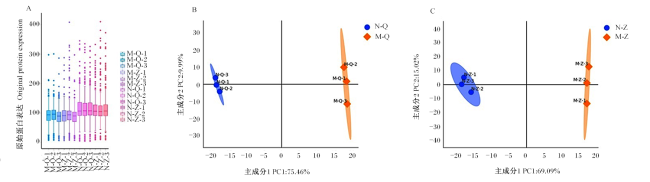
样品经液相色谱(LC)-MS/MS检测、搜库后,荷斯坦奶牛乳和牦牛乳乳清蛋白共检测到651种,乳脂肪球膜蛋白共检测到990种。利用数据库检索得到原始数据后,在Excel 2019中按照Score Sequest HT>0且unique peptide≥1,并去除空白值的标准筛选可信蛋白,对可信蛋白结果进行统计后发现乳清蛋白中的可信蛋白有641种,乳脂肪球膜蛋白中的可信蛋白有543种。对可信蛋白进行可视化,根据可信蛋白的丰度绘制箱线图,如图1-A所示;同时对可信蛋白进行主成分分析(PCA),从不同维度展现样品间的关系,如图1-B、图1-C所示。通过图中信息可知,2种牛乳中,牦牛乳较荷斯坦奶牛乳可信蛋白丰度波动较小,分布更加集中。通过PCA可知,乳清中主成分1(PC1)对于区分样品的贡献率为75.46%,主成分2(PC2)对于区分样品的贡献率为9.99%;乳脂中PC1对于区分样品的贡献率为69.09%,PC2对于区分样品的贡献率为15.02%。2种牛乳同组内的分离度较低,重复性较好;2种牛乳样间分离度较高,说明2种牛乳具有一定差异性。
图1 可信蛋白分析

A:荷斯坦奶牛乳与牦牛乳样本乳清蛋白与乳脂肪球膜蛋白丰度箱线图;B:荷斯坦奶奶牛乳与牦牛乳样本乳清可信蛋白PCA图;C:荷斯坦奶牛乳与牦牛乳样本乳脂肪球膜可信蛋白PCA图。N:荷斯坦奶牛乳;M:牦牛乳;Q:乳清;Z:乳脂。

Fig.1 Credible protein analysis

A: box diagram of whey protein and milk fat globule membrane protein abundance in Holstein cow milk and yak milk samples; B: PCA diagram of whey credible proteins of Holstein cow milk and yak milk samples; C: PCA diagram of milk fat globule membrane credible proteins of Holstein milk and yak milk samples. N: Holstein cow milk; M: yak milk; Q: whey; Z: milk fat.

2.3 差异蛋白筛选结果

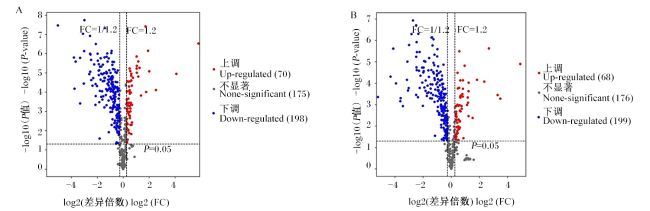
在可信蛋白基础上,利用Excel 2019按照FC=1.2倍且P<0.05的筛选条件发现,2种牛乳的乳清蛋白中差异蛋白数为268种,其中牦牛乳较荷斯坦奶牛乳上调70种,下调198种,图2-A为绘制的乳清蛋白火山图,部分差异蛋白信息如表4所示;2种牛乳的乳脂肪球膜蛋白中差异蛋白数为267种,牦牛乳较荷斯坦奶牛乳上调68种,下调199种,图2-B为绘制的乳脂肪球膜蛋白火山图,部分差异蛋白信息如表5所示。
图2 乳清蛋白与乳脂肪球膜蛋白火山图

A:荷斯坦奶牛乳与牦牛乳样本中乳清蛋白火山图;B:荷斯坦奶牛乳与牦牛乳样本中乳脂肪球膜蛋白火山图。图中红色为牦牛乳上调蛋白,蓝色为荷斯坦奶牛乳上调蛋白,灰色为差异不显著蛋白。

Fig.2 Volcano maps of whey proteins and milk fat globule membrane proteins

A: volcano map of whey proteins in Holstein cow milk and yak milk samples; B: volcano map of milk fat globule membrane credible proteins in Holstein cow milk and yak milk samples. Red is the up-regulated protein of yak milk, blue is the up-regulated protein of Holstein cow milk, and gray is the protein with no significant difference.

表4 荷斯坦奶牛乳与牦牛乳部分乳清差异蛋白信息

Table 4 Partial whey differential protein information between Holstein cow milk and yak milk

识别号
Accession
蛋白名称
Protein name
蛋白简称
Protein
abbreviation
牦牛乳中
平均丰度
Average
abundance in
yak milk
荷斯坦牛乳中
平均丰度
Average
abundance in
Holstein cow milk
P
P-value
差异倍数
FC
F1MZE7 Tudor domain containing 1 TDRD1 295.2 5.2 0.000 1 56.06
Q9TSF1 嗜乳脂蛋白 BTN 217.8 17.6 0.000 1 17.24
F1MR22 多聚免疫球蛋白受体 PIGR 105.5 26.2 0.000 1 4.03
A0A3Q1MJE5 Alpha-S1-casein CSN1S1 159.3 48.2 0.000 1 3.31
P80457 黄嘌呤脱氢酶 XDH 154.2 59.6 0.000 2 2.59
Q32PA1 CD59 glycoprotein CD59 160.8 67.4 0.000 1 2.38
P02663 Alpha-S2-casein CSN1S2 130.3 62.7 0.004 3 2.08
A6H6X2 血管生成素2 ANG2 127.2 61.8 0.000 5 2.06
P11151 脂蛋白脂肪酶 LPL 112.3 66.8 0.000 1 1.68
G1K122 视黄醇结合蛋白 RBP4 122.1 77.0 0.002 1 1.59
Q2UVX4 补体蛋白3 C3 64.5 151.3 0.000 1 0.43
F1MZ96 Uncharacterized protein 50.5 186.5 0.005 8 0.27
Q8MII0 Lactotransferrin (Fragment) 37.3 185.4 0.006 8 0.20
P17697 簇集蛋白 CLU 27.5 162.4 0.002 4 0.17
A0A3Q1LPF0 载脂蛋白E APOE 32.5 191.8 0.000 1 0.17
Q8SQ28 血清淀粉样蛋白A Saa3 34.4 211.9 0.000 1 0.16
P22226 Cathelicidin-1 CATHL1 34.0 272.3 0.008 1 0.12
Q2TBU0 血红素结合蛋白 HP 32.0 328.0 0.000 1 0.12
P28782 Protein S100-A8 S100A8 25.2 320.9 0.012 1 0.08
P54229 Cathelicidin-5 CATHL5 23.1 313.8 0.000 1 0.07
表5 荷斯坦奶牛乳与牦牛乳部分乳脂肪球膜差异蛋白信息

Table 5 Partial milk fat globule membrane differential protein information between Holstein cow milk and yak milk

识别号
Accession
蛋白名称
Protein
name
蛋白简称
Protein
abbreviation
牦牛乳中
平均丰度
Average
abundance in
yak milk
荷斯坦牛乳中
平均丰度
Average
abundance in
Holstein cow milk
P
P-value
差异倍数
FC
F1MZE7 Tudor domain containing 1 TDRD1 283.5 9.5 0.000 1 29.85
Q9TSF1 嗜乳脂蛋白 BTN 247.9 22.2 0.000 5 11.15
F1MR22 多聚免疫球蛋白受体 PIGR 142.7 14.6 0.000 4 9.80
Q2KJ32 甲硫醇氧化酶 SELENBP1 223.2 44.1 0.000 1 5.06
识别号
Accession
蛋白名称
Protein
name
蛋白简称
Protein
abbreviation
牦牛乳中
平均丰度
Average
abundance in
yak milk
荷斯坦牛乳中
平均丰度
Average
abundance in
Holstein cow milk
P
P-value
差异倍数
FC
A0A3Q1MJE5 Alpha-S1-casein CSN1S1 140.9 60.1 0.000 2 2.35
P80457 黄嘌呤脱氢酶 XDH 142.2 62.6 0.000 8 2.27
Q32PA1 CD59 glycoprotein CD59 182.9 63.9 0.004 2 2.86
P02663 Alpha-S2-casein CSN1S2 119.5 72.1 0.001 2 1.65
A6H6X2 血管生成素2 ANG2 117.8 70.4 0.001 5 1.67
P01888 β-2-微球蛋白 B2M 110.8 69.9 0.000 4 1.59
A0A452DHW7 β酪蛋白 CSN2 115.7 75.1 0.002 0 1.54
Q2UVX4 补体蛋白C3 C3 64.0 146.4 0.000 1 0.44
F1MZ96 Uncharacterized protein 53.9 173.5 0.000 1 0.31
Q8MII0 Lactotransferrin (Fragment) 47.8 181.8 0.000 1 0.26
P17697 簇集蛋白 CLU 33.7 141.7 0.000 1 0.24
A0A3Q1LPF0 载脂蛋白E APOE 38.3 150.1 0.000 1 0.26
Q8SQ28 血清淀粉样蛋白A Saa3 31.5 178.0 0.000 1 0.18
P22226 Cathelicidin-1 CATHL1 20.6 253.4 0.000 7 0.08
Q2TBU0 血红素结合蛋白 HP 29.1 251.6 0.000 1 0.12
P28782 Protein S100-A8 S100A8 7.2 331.8 0.000 4 0.03
P54229 Cathelicidin-5 CATHL5 13.4 308.7 0.000 1 0.05

2.4 对差异蛋白进行生物信息学分析

2.4.1 差异蛋白GO功能注释

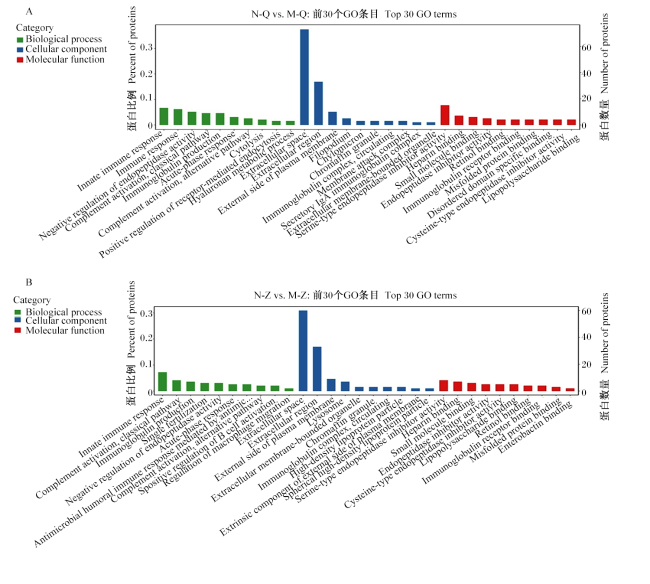
运用KOBAS 3.0生物信息学在线资源网站对差异蛋白进行GO功能注释及富集分析,并对其功能进行描述。GO功能注释包括分子功能、生物过程以及细胞成分。通过数据分析可知2种牛乳的乳清差异蛋白参与的生物过程有758个,其中有133个差异蛋白富集极显著(P<0.01),有233个差异蛋白富集显著(0.01<P≤0.05)。上调蛋白与下调蛋白参与最多的生物过程主要集中在机体的免疫反应。2种牛乳的乳脂肪球膜差异蛋白参与的生物过程有758个,其中有126个差异蛋白富集极显著(P<0.01),有252个差异蛋白富集显著(0.01<P≤0.05)。GO富集分析筛选3种分类中对应差异蛋白数目大于1的GO条目,按照每个条目对应的-log10(P值)由大到小排序的各10条以条形图展示,见图3-A、图3-B。由图可知,2种牛乳的乳清差异蛋白富集到的主要生物过程为先天性免疫应答(innate immune response)、免疫反应(immune response)、免疫球蛋白产生(immunoglobulin production)、细胞溶解(cytolysis)等;细胞组成主要富集于细胞外空间(extracellular space)、细胞外区域(extracellular region)等;分子功能主要富集于肽链内切酶抑制剂(endopeptidase inhibitor activity)、小分子结合(small molecule binding)等方面。2种牛乳的乳脂肪球膜差异蛋白GO功能富集与乳清差异蛋白相近。这些途径表明2种牛乳中的差异蛋白在细胞外通过与小分子结合或抑制肽链内切酶活性来影响机体免疫反应。
图3 荷斯坦奶牛乳与牦牛乳乳清、乳脂肪球膜差异蛋白GO注释(前30)

A:荷斯坦奶牛乳与牦牛乳样本乳清差异蛋白GO富集图;B:荷斯坦奶牛乳与牦牛乳样本乳脂肪球膜差异蛋白GO富集图。

Categary:种类;Biological process:生物过程;Cellular component:细胞成分;Molecular function:分子功能;Innate immune response:先天免疫应答;Immune response:免疫应答;Negative regulation of endopeptidase activity:内肽酶活性负调控;Complement activation, classical pathway:补体激活经典途径;Immunoglobulin production:免疫球蛋白生成;Acute-phase response:急性期反应;Complement activation, alternative pathway:补体激活替代途径;Cytolysis:细胞溶解;Positive regulation of receptor-mediated endocytosis:受体介导的内吞作用的上调作用;Hyaluronan metabolic process:透明质酸代谢过程;Extracellular space:细胞外空间;Extracellular region:细胞外区域;External side of plasma membrane:质膜外侧;Filopodium:丝状体;Chylomicron:乳糜微粒;Chromaffin granule:铬蛋白颗粒;Immunoglobulin complex, circulating:免疫球蛋白循环;Membrane attack complex:攻膜复合物;Secretory IgA immunoglobulin complex:IgA免疫球蛋白复合蛋白分泌途径;Extracellular membrane-bounded organelle:细胞外膜结合的细胞器;Serine-type endopeptidase inhibitor activity:丝氨酸型内肽酶抑制剂活性;Heparin binding:肝素约束;Small molecule binding:小分子结合;Endopeptidase inhibitor activity:内肽酶抑制剂活性;Retinol binding:视黄醇结合;Immunoglobulin receptor binding:免疫球蛋白受体结合;Misfolded protein binding:错误折叠蛋白结合;Disordered domain specific binding:特异性区域结合;Cysteine-type endopeptidase inhibitor activity:半胱氨酸型内肽酶抑制剂活性;Lipopolysaccharide binding:脂多糖结合;Single fertilization:单精受精;Antimicrobial humoral immune response mediated by antimicrobial peptide:抗菌肽介导的体液免疫;Positive regulation of B cell activation:B细胞激活的阳性诱导;Regulation of macrophage migration:巨噬细胞迁移的调节;Lysosome:溶酶体;High-density lipoprotein particle:高密度脂蛋白颗粒;Extrinsic component of external side of plasma membrane:质膜外物质;Spherical high-density lipoprotein particle:球形高密度脂蛋白颗粒;Immunoglobulin receptor binding:免疫球蛋白受体结合;Enterobactin binding:肠杆菌素结合。

Fig.3 GO annotation (top 30) of whey and milk fat globule membrane differential proteins between Holstein cow milk and yak milk

A: GO enrichment map of whey differential proteins between Holstein cow milk and yak milk samples; B: GO enrichment map of milk fat globule membrane differential proteins between Holstein milk and yak milk samples.

2.4.2 差异蛋白KEGG代谢通路分析

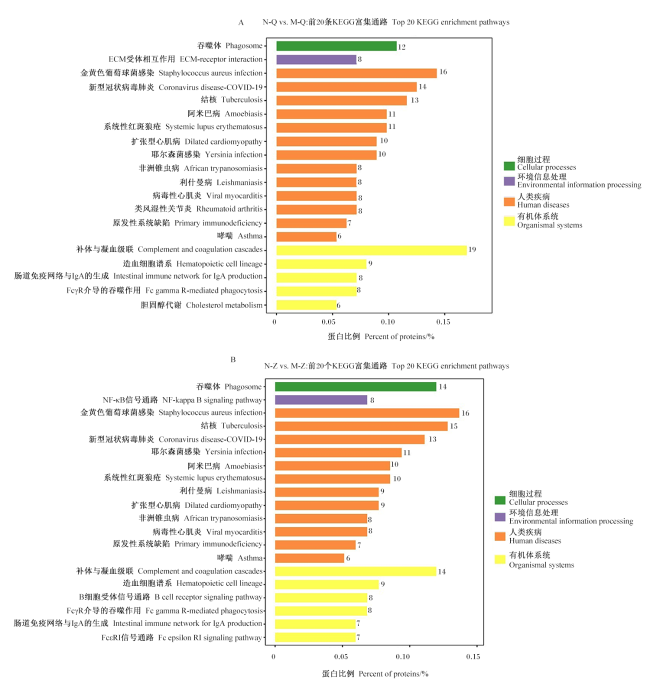
KEGG是系统分析蛋白质在细胞中的代谢途径的主要公共数据库。利用KEGG数据库对差异蛋白进行通路分析(结合KEGG注释结果),用超几何分布检验的方法计算每个通路条目中差异蛋白富集的显著性并用P值表示。按照每个条目对应的-log10(P值)由大到小排序,取前20条通路绘图可得图4-A、图4-B。经过分析,2种牛乳的乳清差异蛋白富集到209条通路,与人类疾病相关通路66条,有机体系统相关通路60条,新陈代谢相关通路37条,环境信息处理相关通路24条,细胞过程相关通路17条,遗传信息处理相关通路5条,差异显著的通路包括补体与凝血级联(complement and coagulation cascades)、金黄色葡萄球菌感染(Staphylococcus aureus infection)、原发性免疫缺陷(primary immunodeficiency)、噬菌体(phagosome)、产生免疫球蛋白A的肠道免疫网络(intestinal immune network for IgA production)等。2种牛乳的乳脂肪球膜差异蛋白富集到196条通路,与人类疾病相关通路66条,有机体系统相关通路53条,新陈代谢相关通路31条,环境信息处理相关通路23条,细胞过程相关通路16条,遗传信息处理相关通路7条,差异显著的通路包括金黄色葡萄球菌感染、补体与凝血级联、噬菌体、原发性免疫缺陷、产生免疫球蛋白A的肠道免疫网络等。通过比较可知,乳清与乳脂肪球膜差异蛋白富集的通路较为相似。富集排名靠前的通路中重要的差异蛋白包括补体3(component 3,C3)、补体7(component 7,C7)、多聚免疫球蛋白受体(polymeric immunoglobulin receptor,PIGR)等免疫相关蛋白以及载脂蛋白E(apolipoprotein E,APOE)、簇集蛋白(clusterin,CLU)等脂质生成与转运关键蛋白。值得一提的是,乳清与乳脂肪球膜差异蛋白富集的通路中新型冠状病毒肺炎(coronavirus disease-COVID-19)均排名靠前。
图4 荷斯坦奶牛乳与牦牛乳乳清、乳脂肪球膜差异蛋白KEGG富集(前20)

A:荷斯坦奶牛乳与牦牛乳样本乳清差异蛋白KEGG富集图B:荷斯坦奶牛乳与牦牛乳样本乳脂肪球膜差异蛋白KEGG富集图。

Fig.4 KEGG enrichment (top 20) of whey and milk fat globule membrane differential proteins between Holstein cow milk and yak milk

A: KEGG enrichment map of whey differential proteins between Holstein cow milk and yak milk samples; B: KEGG enrichment map of milk fat globule membrane differential proteins between Holstein cow milk and yak milk samples.

2.5 差异蛋白互作网络分析

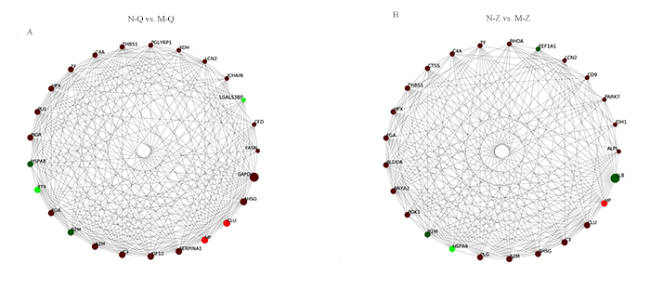
在STRING(https://string-db.org)数据库中对差异蛋白进行分析,获得差异蛋白的互作关系,选取连接度排名前25的蛋白并绘制互作网络图,如图5-A、图5-B。2种牛乳的乳清差异蛋白互作网络图共包含128个点和1 062条边,点的平均度值为7.925 373 134。其中,度值最高的10个靶点为甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)、α2-HS糖蛋白(alpha2-heremans-schmid glycoprotein,AHSG)、CLU、血红素结合蛋白(haptoglobin precursor,HP)、C3、SERPINA1、热休克蛋白A8(heat shock protein A8,HSPA8)、β-2-微球蛋白(beta-2-microglobulin,B2M)、α-2-巨球蛋白(alpha-2-macroglobulin,A2M)、甲状腺素激活蛋白(transthyretin,TTR),它们可能是乳清中的核心蛋白。2种牛乳的乳脂肪球膜差异蛋白互作网络图共包含122个点和1 095条边,点的平均度值为8.202 247 191。其中,度值最高的10个靶点为血清白蛋白(serum albumin,ALB)、HP、C3、CLU、A2M、AHSG、HSPA8、B2M、纤溶酶原(plasminogen,PLG)与磷酸甘油酸激酶1(phosphoglycerate kinase 1,PGK1),它们可能是乳脂中的核心蛋白。此外,HSPA8、B2M、C3与A2M在乳清与乳脂中均为关键蛋白。

3 讨论

本研究利用蛋白质组学分析荷斯坦奶牛乳与牦牛乳的差异蛋白,比较2种牛乳的不同。从营养成分含量对比可知,牦牛乳的几种主要营养成分含量均高于荷斯坦奶牛乳,这与黄世群等[16]对红原牦牛乳与常规牛乳的比较结果以及何淑玲等[17]对甘南牦牛乳成分的研究鉴定结果相同。
乳清蛋白含有丰富的必需氨基酸,易被生物体消化吸收[18],因此被作为功能性食品、营养制品等的重要原料和成分,广泛应用于食品生产中。乳脂肪球膜蛋白成分复杂,其作用组分及其作用机制尚未完全清晰[19]。微量的乳脂肪球膜蛋白对维持正常生理功能起到重要的调控作用[20],是乳脂中最具开发价值的蛋白。通过对乳清蛋白与乳脂肪球膜蛋白鉴定可知,2种牛乳之中的蛋白差异较大。通过GO功能注释与KEGG代谢通路分析可以发现,2种牛乳的差异蛋白主要富集在机体免疫功能与营养代谢方面,这与Yang等[21]利用iTRAQ技术对荷斯坦奶牛、泽西牛、牦牛、水牛、山羊、骆驼、马和人乳脂肪球膜蛋白进行分析得到的结果相似,他们主要分析了不同乳间的特有蛋白,而本次研究也发现了一些之前没有发现的差异蛋白,例如,在牦牛乳中上调程度较大的嗜乳脂蛋白(butyrophilin,BTN)、多聚免疫球蛋白受体(polymeric immunoglobulin receptor,PIGR)、黄嘌呤脱氢酶(xanthine dehydrogenase,XDH)、CD59、αs1/2-酪蛋白(alpha-S1/2-casein,CSN1S1/2)、脂蛋白脂肪酶(lipoprotein lipase,LPL)、TDRD1与荷斯坦奶牛乳中上调程度较大的CATHL1/5、血清淀粉样蛋白(serum amyloid A protein 3/4,SAA3/4)等。BTN已被证实含量升高时可以促进奶牛乳腺脂滴的合成[22],而牦牛的乳清与乳脂中BTN的含量均大幅高于荷斯坦奶牛,这与乳成分分析的结果相关联,故BTN丰度较高可能是牦牛乳脂丰富的原因之一。PIGR作为一种免疫球蛋白,其可通过与免疫球蛋白A结合参与机体的黏膜免疫,尤其是肠道的免疫系统,抵抗致病性微生物[23];CD59可参与免疫反应的调节过程,诱导T淋巴细胞的激活,并且促进T淋巴细胞增殖[24];XDH能够抑制金黄色葡萄球菌、大肠杆菌和沙门氏菌的生长[25],在胃肠道内发挥抗菌作用,具有免疫保护功能。CSN1S1/2在蛋白酶的水解作用下,形成免疫活性物质和矿物元素结合肽等生物活性肽结构,帮助机体进行钙、磷吸收[26]。由于在乳清与乳脂肪球膜中均有差异蛋白富集到了与新型冠状病毒肺炎有关的通路,且排名均靠前,通过了解通路图可知,富集到该通路的原因是许多参与新型冠状病毒肺炎感染的补体蛋白与免疫蛋白拥有差异,其中一些荷斯坦奶牛乳中的上调蛋白会引起细胞裂解,还有一些荷斯坦奶牛乳中的上调蛋白在该通路中会引起微血管血栓。婴幼儿因免疫系统发育不完全,可以通过喂食牦牛乳制品吸收相应免疫蛋白以增强免疫力[27]。综上所述,牦牛奶中丰度较高的蛋白在提高机体免疫功能和促进钙、磷吸收方面表现优异,具有开发婴幼儿乳制品的优势。而LPL作为一种乳脂肪酶,有研究表明其在低温运输过程中可溶解乳脂[28],使牛乳特殊风味受到破坏,而LPL在牦牛乳中的含量较高,这就为乳企开发牦牛乳制品时提出了一定挑战。对牦牛乳与荷斯坦奶牛乳中丰度差距最大的蛋白TDRD1的研究目前较少,主要集中于精原干细胞生成[29]和促进动物性成熟[30]方面,其与泌乳的关系暂时未有研究,可为接下来的研究提供方向。在荷斯坦奶牛乳中丰度上升的CATHL1/5作为抗菌肽,可以起到抑菌与杀菌的作用,尤其是针对常见的造成乳制品污染与腐败的金黄色葡萄球菌与大肠杆菌有特效[31],这也进一步说明荷斯坦奶牛乳在相同条件下可以比牦牛乳保存更长时间。
图5 荷斯坦奶牛乳与牦牛乳乳清、乳脂肪球膜差异蛋白互作网络图

A:荷斯坦奶牛乳与牦牛乳样本乳清差异蛋白互作网络图;B:荷斯坦奶牛乳与牦牛乳样本乳脂肪球膜差异蛋白互作网络图。红色代表荷斯坦奶牛乳中上调蛋白,绿色代表牦牛乳中上调蛋白。圆的大小代表连接度高低,圆圈越大表示连接度越高。

GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase;AHSG:α-2-HS-糖蛋白 alpha-2-HS-glycoprotein;CLU:簇集蛋白 clusterin;HP:血红素结合蛋白 haptoglobin;SERPINA1:alpha-1-antiproteinase;KIF12:α-1-微球蛋白 alpha-1-microglobulin;C3:补体3 component 3;A2M:α-2-巨球蛋白 alpha-2-macroglobulin;B2M:β-2-微球蛋白 beta-2-microglobulin;FGA:纤维蛋白原α链 fibrinogen alpha chain;TTR:甲状腺素激活蛋白 transthyretin;HSPA8:热休克蛋白A8 heat shock protein A8;PIGR:多聚免疫球蛋白受体 polymeric immunoglobulin receptor;PLG:纤溶酶原 plasminogen;HPX:血红素 hemopexin;TF:β-1金属结合球蛋白 beta-1 metal-binding globulin;C4A:C4a过敏毒素 C4a anaphylatoxin;THBS1:血小板反应蛋白1 thrombospondin-1;PGLYRP1:肽聚糖识别蛋白1 peptidoglycan recognition protein 1;XDH:黄嘌呤脱氢酶 xanthine dehydrogenase;LCN2:载脂运载蛋白2 lipocalin 2;JCHAIN:免疫球蛋白J链 immunoglobulin J chain;LGALS3BP:半乳糖凝集素-3-结合蛋白 galectin-3-binding protein;CFD:补充因子D complement factor D;FASN:脂肪酸合成酶 fatty acid synthase;ALB:血清白蛋白 serum albumin;PGK1:磷酸甘油酸激酶1 phosphoglycerate kinase 1;ANXA2:膜连蛋白A2 annexin A2;ALDOA:果糖二磷酸醛缩酶A fructose-bisphosphate aldolase A;CTSS:组织蛋白酶S cathepsin S;RHOA:RhoA转化蛋白 transforming protein RhoA:EEF1A1:真核翻译延长因子1A1 elongation factor 1-alpha 1;CD9:CD9 antigen;PARK7:帕金森病蛋白7 parkinson disease protein 7;IDH1:异柠檬酸脱氢酶1 isocitrate dehydrogenase 1;ALPL:碱性磷酸酶 alkaline phosphatase。

Fig.5 Interaction network diagram of differential proteins in whey and milk fat globule membrane between Holstein cow milk and yak milk

A: interaction network diagram of whey differential proteins between Holstein cow milk and yak milk samples; B: interaction network diagram of milk fat globule membrane differential proteins between Holstein cow milk and yak milk samples. Red represents up-regulated proteins in Holstein cow milk, and green represents up-regulated proteins in yak milk. The size of the circle represents the degree of connectivity. The larger the circle, the higher the degree of connectivity.

通过差异蛋白互作网络分析我们注意到了几种重要的差异蛋白,与Yang等[32]通过iTRAQ技术比较奶牛、牦牛、水牛、山羊和骆驼的乳清蛋白所得结果相似,也发现了C3等关键蛋白。本次研究中发现的2种牦牛乳中上调的差异蛋白HSPA8与B2M在乳清与乳脂肪球膜差异蛋白网络互作分析中均位于中心位置。其中HSPA8作为热休克蛋白(heat shock protein,HSP)家族成员,当动物处于高温条件时,就会由热激发合成此种蛋白,保护机体免受应激因素损伤,维持体内稳态[33]。同时,HSPA8丰度的升高可能与磷脂酰肌醇3-激酶(PI3K)/蛋白酶B(Akt)通路的激活相关,这对哺乳期间乳成分尤其是乳脂和乳糖的含量有较大的影响[34]。B2M属于免疫球蛋白[35],通过查阅文献发现B2M可以在内质网中和主要组织相容性抗原(MHC)Ⅰ类分子重链以及抗原多肽形成复合物,随后移动至细胞表面,通过与T细胞受体(T cell receptor,TCR)识别并结合CD8+细胞毒性T细胞(CD8+ cytotoxic T cell,CTL),进而诱导机体的免疫反应[36]。如果B2M蛋白表达较少,MHCⅠ类分子将无法稳定存在于细胞表面[37],机体的免疫系统受到抑制,导致免疫力下降。在荷斯坦奶牛乳中丰度较高的SAA3是奶牛在哺乳期和急性反应期由乳腺上皮细胞表达和分泌的炎性标志蛋白,同时也是乳腺炎检测的靶向标志物[38]。由于SAA3由乳腺生成,故检测乳汁中SAA3的含量较血液中更迅速且更准确。乳汁作为比血液更容易获得的体液,不仅在采集时不会对奶牛造成伤害,而且在一些针对奶牛乳腺疾病的特殊蛋白检测方面更具优势。综上所述,乳汁作为体液的一种,在反映病理生理状况方面的潜力极大,通过对牛乳进行蛋白质组学研究可以帮助我们认识到不同牛种之间的差异,筛选出一些疾病的潜在标志物,为以后奶牛疾病的快速诊断以及牛乳制品的开发提供一定帮助。

4 结论

通过本次研究发现,牦牛乳营养价值优于荷斯坦奶牛乳;牦牛乳中丰度较高的蛋白在胃肠道免疫功能、促进钙与磷吸收等方面表现优异,具有开发婴幼儿乳产品的巨大潜力;与荷斯坦奶牛乳中的高丰度蛋白进行比较,提示牦牛乳在进行产品运输时容易腐败变质。
[1]
VISIOLI F, STRATA A. Milk,dairy products,and their functional effects in humans:a narrative review of recent evidence[J]. Advances in Nutrition, 2014, 5(2):131-143.

DOI

[2]
MAITY S, AMBATIPUDI K. Quantitative proteomics of milk whey reveals breed and season specific variation in protein abundance in Holstein Friesian cow and Murrah buffalo[J]. Research in Veterinary Science, 2019, 125:244-252.

DOI PMID

[3]
DANIELSEN M, CODREA M C, INGVARTSEN K L, et al. Quantitative milk proteomics-host responses to lipopolysaccharide-mediated inflammation of bovine mammary gland[J]. Proteomics, 2010, 10(12):2240-2249.

DOI

[4]
HAN R, KIM H R, NARUSE K, et al. Identification of bovine pregnancy-specific milk proteins using proteomics[J]. Biology of Reproduction, 2008,78 (Suppl.1):143.

[5]
肖湘怡. 城市居民牛奶认知对消费行为的影响研究[D]. 硕士学位论文. 北京: 中国农业科学院, 2021.

XIAO X Y. Research on the influence of urban residents’ milk cognition on consumer behavior[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2021. (in Chinese)

[6]
UHLÉN M, FAGERBERG L, HALLSTRÖM B M, et al. Proteomics. Tissue-based map of the human proteome[J]. Science, 2015, 347(6220):1260419.

DOI

[7]
DUAN J, LI W J, LI W Y, et al. Quantitative proteomics analysis of susceptibility and resilience to stress in a rat model of PTSD[J]. Behavioural Brain Research, 2021, 415:113509.

DOI PMID

[8]
QU J Y, ZHANG L N, YIN L A, et al. Changes in bioactive proteins and serum proteome of human milk under different frozen storage[J]. Food Chemistry, 2021, 352:129436.

DOI

[9]
LU J, LIU L, PANG X Y, et al. Comparative proteomics of milk fat globule membrane in goat colostrum and mature milk[J]. Food Chemistry, 2016, 209:10-16.

DOI PMID

[10]
剧柠, 苟萌, 张彤彤. 蛋白质组学技术及其在乳及乳制品中的应用研究进展[J]. 食品与发酵工业, 2021, 47(3):245-251.

JU N, GOU M, ZHANG T T. Advances in proteomics and its application in milk and dairy products[J]. Food and Fermentation Industries, 2021, 47(3):245-251. (in Chinese)

[11]
邓微, 李韫同, 李墨翰, 等. 基于iTRAQ技术分析牛初乳与常乳乳清差异蛋白质组[J]. 食品科学, 2021, 42(2):241-246.

DENG W, LI Y T, LI M H, et al. Analysis of differential whey proteome between bovine colostrum and mature milk using isobaric tags for relative and absolute quantitation technology[J]. Food Science, 2021, 42(2):241-246. (in Chinese)

DOI

[12]
REINHARDT T A, SACCO R E, NONNECKE B J, et al. Bovine milk proteome:quantitative changes in normal milk exosomes,milk fat globule membranes and whey proteomes resulting from Staphylococcus aureus mastitis[J]. Journal of Proteomics, 2013, 82:141-154.

DOI

[13]
邹紫雯, 罗林, 刘娟, 等. 中国荷斯坦奶牛GPR120基因SNP位点鉴定及其与产奶性能的关联分析[J]. 中国兽医学报, 2021, 41(12):2475-2483.

ZOU Z W, LUO L, LIU J, et al. Association analysis between SNP locus of GPR120 gene and milk production traits in Chinese Holstein cows[J]. Chinese Journal of Veterinary Science, 2021, 41(12):2475-2483. (in Chinese)

[14]
林宝山, 兰道亮, 黄偲, 等. 牦牛TLR6基因的克隆、序列分析及其表达分布研究[J]. 东北农业大学学报, 2014, 45(7):91-97,103.

LIN B S, LAN D L, HUANG C, et al. Cloning,sequence analysis of TLR6 gene of yak and expression and distribution in tissues[J]. Journal of Northeast Agricultural University, 2014, 45(7):91-97,103. (in Chinese)

[15]
魏黎阳, 张九凯, 陈颖. 不同哺乳动物乳的营养成分及生物活性研究进展[J/OL]. 食品科学:1-15[2022-05-27]. http://kns.cnki.net/kcms/detail/11.2206.TS.20220425.1400.002.html.

WEI L Y, ZHANG J K, CHEN Y. Research progress on nutritional components and biological functions of different milk[J/OL]. Food Science:1-15[2022-05-27]. http://kns.cnki.net/kcms/detail/11.2206.TS.20220425.1400.002.html. (in Chinese)

[16]
黄世群, 罗玲, 毛建霏, 等. 红原牦牛奶与常乳营养价值比较[J]. 山西农业科学, 2017, 45(10):1617-1619,1633.

HUANG S Q, LUO L, MAO J F, et al. Comparation of nutritional value between yak milk from Hongyuan county and cow milk[J]. Journal of Shanxi Agricultural Sciences, 2017, 45(10):1617-1619,1633. (in Chinese)

[17]
何淑玲, 马令法, 常毓巍, 等. 藏药唐古特红景天不同添加水平对甘南高原全奶牦牛生产性能的影响[J]. 中国兽医学报, 2013, 33(9):1463-1466.

HE S L, MA L F, CHANG Y W, et al. Effects of the different addition level of Tibetan medicine Rhodiola algida var. tangutica on production performance of whole milk female yaks in Gannan Plateau[J]. Chinese Journal of Veterinary Science, 2013, 33(9):1463-1466. (in Chinese)

[18]
LI R F, ROVERS T A M, JÆGER T C, et al. Interaction between added whey protein ingredients and native milk components in non-fat acidified model systems[J]. International Dairy Journal, 2021, 115:104946.

DOI

[19]
ZHAO L L, DU M, GAO J, et al. Label-free quantitative proteomic analysis of milk fat globule membrane proteins of yak and cow and identification of proteins associated with glucose and lipid metabolism[J]. Food Chemistry, 2019, 275:59-68.

DOI PMID

[20]
YANG M, CONG M, PENG X M, et al. Quantitative proteomic analysis of milk fat globule membrane (MFGM) proteins in human and bovine colostrum and mature milk samples through iTRAQ labeling[J]. Food & Function, 2016, 7(5):2438-2450.

[21]
YANG Y X, ZHENG N, ZHAO X W, et al. Data from proteomic characterization and comparison of mammalian milk fat globule proteomes by iTRAQ analysis[J]. Data in Brief, 2015, 3:12-15.

DOI PMID

[22]
樊晓娜. Btn基因的超表达促进奶牛乳腺脂滴合成[D]. 硕士学位论文. 郑州: 河南农业大学, 2018.

FAN X N. Overexpression of Btn gene promotes lipid droplet synthesis in dairy cows[D]. Master’s Thesis. Zhengzhou: Henan Agricultural University, 2018. (in Chinese)

[23]
单东凤, 王浩澄, 董娅, 等. pIgR的功能、调节以及与疾病的联系[J]. 中国免疫学杂志, 2021, 37(22):2738-2744.

SHAN D F, WANG H C, DONG Y, et al. Function,regulation,and association with disease of pIgR[J]. Chinese Journal of Immunology, 2021, 37(22):2738-2744. (in Chinese)

[24]
DAS N, ANAND D, BISWAS B, et al. The membrane complement regulatory protein CD59 and its association with rheumatoid arthritis and systemic lupus erythematosus[J]. Current Medicine Research and Practice, 2019, 9(5):182-188.

DOI

[25]
HARRISON R. Milk xanthine oxidase:properties and physiological roles[J]. International Dairy Journal, 2006, 16(6):546-554.

DOI

[26]
JUNG T H, YUN S S, LEE W J, et al. Hydrolysis by alcalase improves hypoallergenic properties of goat milk protein[J]. Korean Journal for Food Science of Animal Resources, 2016, 36(4):516-522.

DOI

[27]
蔡美琴. 乳蛋白部分水解婴儿配方粉细分年龄段的益处[J]. 临床儿科杂志, 2019, 37(10):798-800.

CAI M Q. Benefits of staging of infant formula for special medical purpose[J]. Journal of Clinical Pediatrics, 2019, 37(10):798-800. (in Chinese)

[28]
张金亮, 李义恒, 杨晓丽, 等. 内源性LPL及其对牦牛乳风味劣变的影响机制研究进展[J/OL]. 食品与发酵工业:1-8[2022-07-30]. https://kns.cnki.net/kcms/detail/detail.aspx?FileName=SPFX20220510003&DbName=CAPJ2022. DOI:10.13995/j.cnki.11-1802/ts.031334.

DOI

ZHANG J L, LI Y H, YANG X L, et al. Research progress of endogenous lipoprtein lipase and its effect yak milk mechanism on flavor deterioration[J/OL]. Food and Fermentation Industries:1-8[2022-07-30]. https://kns.cnki.net/kcms/detail/detail.aspx?FileName=SPFX20220510003&DbName=CAPJ2022. DOI:10.13995/j.cnki.11-1802/ts.031334. (in Chinese)

DOI

[29]
GAO X M, SHI X, ZHOU S J, et al. DNA hypomethylation activation Wnt/TCF7L2/TDRD1 pathway promotes spermatogonial stem cell formation[J/OL]. Journal of Cellular Physiology:1-11[2022-07-30]. https://pubmed.ncbi.nlm.nih.gov/35790000/. DOI:10.1002/jcp.30822.

DOI

[30]
YAN Y J, WANG Y D, WANG J T, et al. Upregulation of TDRD1 promotes the sexual maturation in allotetraploids hybridized from red crucian carp (Carassius auratus Red var) (♀) and common carp (Cyprinus carpio L) (♂)[J]. Journal of Proteome Research, 2020, 19(6):2337-2345.

DOI

[31]
齐诗哲. 乳源抗菌肽的制备及蛋白质组学分析[D]. 硕士学位论文. 大连: 大连海洋大学, 2022.

QI S Z. Preparation and proteomic analysis of antibacterial peptides from milk[D]. Master’s Thesis. Dalian: Dalian Ocean University, 2022. (in Chinese)

[32]
YANG Y X, BU D P, ZHAO X W, et al. Proteomic analysis of cow,yak,buffalo,goat and camel milk whey proteins:quantitative differential expression patterns[J]. Journal of Proteome Research, 2013, 12(4):1660-1667.

DOI

[33]
GENG Y J, ZHAO Y F, SCHUSTER L C, et al. A chemical biology study of human pluripotent stem cells unveils HSPA8 as a key regulator of pluripotency[J]. Stem Cell Reports, 2015, 5(6):1143-1154.

DOI PMID

[34]
王立文. 奶牛脐带间充质干细胞通过激活PI3K/Akt/mTOR信号通路调控奶牛乳腺上皮细胞生理功能的研究[D]. 博士学位论文. 乌鲁木齐: 新疆农业大学, 2016.

WANG L W. Regulatory effect of umbilical cord mesenchymal stem cells on bovine mammary epithelial cells physiological function mediated by PI3K/AKT/mTOR signaling pathway[D]. Ph.D.Thesis. Urumqi: Xinjiang Agricultural University, 2016. (in Chinese)

[35]
葛婉仪, 雷丽娜, 蒋昕彧, 等. 花鲈b2m基因cDNA的克隆及表达分析[J]. 南方水产科学, 2020, 16(6):47-56.

GE W Y, LEI L N, JIANG X Y, et al. cDNA cloning and expression pattern analysis of b2m from spotted sea bass (Lateolabrax maculatus)[J]. South China Fisheries Science, 2020, 16(6):47-56. (in Chinese)

[36]
WANG H B, LIU B R, WEI J. Beta2-microglobulin (B2M) in cancer immunotherapies:biological function,resistance and remedy[J]. Cancer Letters, 2021, 517:96-104.

DOI

[37]
OKUTANI Y, ABE K, YAMASHITA A, et al. Generation of monkey induced pluripotent stem cell-derived cartilage lacking major histocompatibility complex class I molecules on the cell surface[J]. Tissue Engineering:Part A, 2022, 28(1/2):94-106.

DOI

[38]
樊一明, 刘鑫楠, 魏治静, 等. 牛乳腺炎标志物血清淀粉样蛋白A3的原核表达及其单克隆抗体的制备[J]. 中国兽医科学, 2021, 51(3):395-402.

FAN Y M, LIU X N, WEI Z J, et al. Preparation of monoclonal antibody against bovine mastitis biomarker serum amyloid A3 expressed by E.coli[J]. Chinese Veterinary Science, 2021, 51(3):395-402. (in Chinese)

Outlines

/