REVIEW

Application and Regulatory Mechanisms of Cereal Diets Treated with Lactic Acid in Ruminants

  • LUO Xingyan ,
  • DING Yu ,
  • YANG You , *
Expand
  • College of Animal Science and Technology, Southwest University, Beibei 400716, China
* associate professor, E-mail:

Received date: 2022-06-07

  Online published: 2023-01-11

Abstract

In order to pursuit fast and high yields, ruminants have been fed high-concentrate diets in recent years, which had also brought a series of hazards at the time. Cereal diets treated with lactic acid can modify starch, regulate ruminant fermentation of ruminants and increase the contents of resistant starch. More starch can enter the small intestine for digestion. This treatment can increase the feed efficiency and has a positive significance in relieving rumen acidosis. This paper review the effects of cereal diets treated with lactic acid on ruminant pH, gastrointestinal microbes, performance, digestibility of phosphorus in diets, body metabolome and inflammatory reaction of ruminants, and its potential action mechanisms, which provides a theoretical basis for the treatment of cereal diets treated with lactic acid, and to promote healthy growth of ruminants.

Cite this article

LUO Xingyan , DING Yu , YANG You . Application and Regulatory Mechanisms of Cereal Diets Treated with Lactic Acid in Ruminants[J]. Chinese Journal of Animal Nutrition, 2023 , 35(1) : 54 -63 . DOI: 10.3969/j.issn.1006-267x.2023.01.006

在现代集约化生产中,饲喂高能量饲粮以追求快速高产的生产模式成为一种趋势。淀粉是能量饲粮的主要来源,饲粮精料比例高时,淀粉含量高。淀粉在瘤胃中快速降解会促进瘤胃液中挥发性脂肪酸(volatile fatty acids,VFA)大量产生,降低瘤胃pH,同时,纤维分解菌的活性因pH的下降受到抑制,瘤胃消化功能紊乱,易诱导亚急性瘤胃酸中毒(subacute rumen acidosis,SARA)、蹄叶炎等代谢性疾病。高精料饲喂反刍动物时,淀粉发酵产生的部分VFA经前胃时可形成酮体,超过一定限度会使反刍动物发生酮血症。此外,动物摄入大量高精料会促进脂多糖(lipopolysaccharide,LPS)在瘤胃的释放,其增加了反刍动物的炎症反应,干扰了瘤胃细菌的稳定性,改变了瘤胃微生物种群,甲烷的产量也随之增加[1]。研究报道,长时间饲喂高能量饲粮的泌乳山羊,其瘤胃液和结肠食糜中VFA存积,引起细胞凋亡和结肠黏膜屏障严重破坏[2]。因此,通过降低反刍动物瘤胃中可发酵淀粉的含量,可降低高精料饲粮引起动物发生SARA的可能性[3]。总之,保持饲粮中高能量和高谷物水平的同时,饲喂含有较低瘤胃降解性淀粉的谷物是减轻瘤胃消化紊乱风险的一种方法[4]

1 谷物淀粉的消化特性

影响谷物淀粉消化特性的因素有两大类:内在因素和外在因素(图1)。内在因素有淀粉颗粒大小、淀粉颗粒结晶结构、直链淀粉与支链淀粉的比例、直链淀粉-脂质复合物以及酶抑制剂等[5]。外在因素主要通过对谷物淀粉的改性,获得抗性淀粉(resistant starch,RS)。改性淀粉的方法主要有酶解法、酸解法、高压湿热处理、电离放射线处理及超声波处理等,其中酸解法对淀粉分子作用效果的研究已有多年,并且与无机酸改性淀粉相比,有机酸改性淀粉更为安全环保。乳酸作为有机酸中的一种,在近些年来逐渐应用于畜禽养殖中。乳酸等有机酸处理谷物饲粮已被证明可以改变谷物的化学组成和营养价值[6],可见乳酸处理谷物饲粮改性淀粉结构在动物生产中有很大的应用前景。
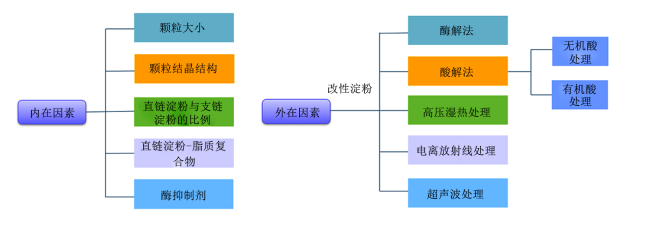
图1 影响淀粉消化性的因素

Fig.1 Influencing factors of starch digestibility

2 乳酸处理谷物饲粮对淀粉的调控机制

2.1 提高谷物淀粉得率

研究发现,在浸泡液中添加乳酸可促进玉米软化和膨胀,并在玉米胚乳的细胞壁上形成小孔,便于浸泡水进入玉米的胚乳[7]。姜秀娟等[8]研究表明,乳酸可加速水分进入玉米籽粒,增强对玉米的浸泡效果,缩短浸泡时间,有利于玉米中淀粉和蛋白质之间的分离,进而提高玉米淀粉的得率和质量。Singh等[9]研究表明,在浸泡液中添加乳酸和二氧化硫(SO2)不仅对淀粉中残留蛋白质的含量没有影响,还能提高玉米淀粉的产量,并对淀粉糊化特性影响较小。Haros等[10]研究也证明了在浸泡水中添加乳酸可显著提高玉米淀粉得率。此外,Reyes等[11]通过对天然淀粉和改性淀粉性质的主要成分分析表明,乳酸可作为附加的改性剂拓宽热处理的灵活性,添加乳酸比单独用热水处理效果更好。因此,在浸泡液中添加乳酸可以减少谷物浸泡时间,提高淀粉得率。

2.2 提高谷物直链淀粉和支链淀粉的比例

淀粉是一种多糖,按照葡萄糖聚合方式和淀粉形态的不同将其分为直链淀粉和支链淀粉。直链淀粉是由α-(1,4)糖苷键连接而成的一种线性聚合物,通常占淀粉的15%~20%;支链淀粉是高度分支的,由α-(1,4)糖苷键和α-(1,6)糖苷键连接成较大的支链分子,是淀粉的主要组成部分[12]。淀粉可溶于乳酸、氯化钙溶液、甲酸、三氯甲酸及稀碱溶液[13]。Haros等[14]研究发现,乳酸可使淀粉水解,降低淀粉悬浮液的黏度,使支链淀粉退化,淀粉脂质复合物的熔化焓略有降低。研究表明,乳酸和热处理结合可以改变淀粉颗粒的内部结构和物理化学性质,导致短链的出现并改变表观直链淀粉含量[15]。熊柳等[16]研究发现,大米淀粉中直链淀粉含量为17.86%,大米淀粉经乳酸处理之后支链淀粉发生了断链或脱支产生了部分直链淀粉,且在乳酸处理第2天直链淀粉含量最高,达23.22%。综上所述,谷物经过乳酸处理后,谷物中大量支链淀粉脱支和线性化后产生更多直链淀粉[17],直链淀粉与支链淀粉的比例增大。

2.3 增加抗性淀粉含量

淀粉按其在机体的消化速率可将其分为快速消化淀粉(rapid digestible starch,RDS)、缓慢消化淀粉(slowly digestible starch,SDS)和抗性淀粉[12],RDS和SDS易被消化利用,但抗性淀粉难以被反刍动物瘤胃所消化。抗性淀粉是指淀粉和淀粉制品在通过胃肠道时抵抗消化的部分,难以在瘤胃中被降解,其中抗性淀粉的形成与直链淀粉含量密切相关[18],抗性淀粉含量随着直链淀粉含量的增加而增加[19]。Haros等[14]研究表明,乳酸在浸泡过程中的水解作用导致淀粉改性,增加了大麦中SDS及纤维含量,可用于生产具有功能特性的高抗性淀粉。Shaikh等[20]研究发现,柠檬酸和乳酸处理后降低了玉米淀粉的峰值黏度,糊化温度升高,且由于柠檬酸和乳酸在淀粉链的羟基上发生酯化,从而降低了淀粉的再结合倾向,淀粉的回生速率降低。Iqbal等[21]研究发现,大麦粒中添加0.5%乳酸可增加大麦中抗性淀粉含量。Deckardt等[22]在室温条件下使用5%的乳酸浸泡大麦48 h后,其抗性淀粉含量显著增加。同样,Harder等[23]用柠檬酸和乳酸单独或联合处理大麦,测定各处理抗性淀粉含量,发现两者联合处理没有表现出明显的互作或者拮抗效果,5%乳酸处理大麦增加抗性淀粉含量的效果最好,其次是5%柠檬酸。
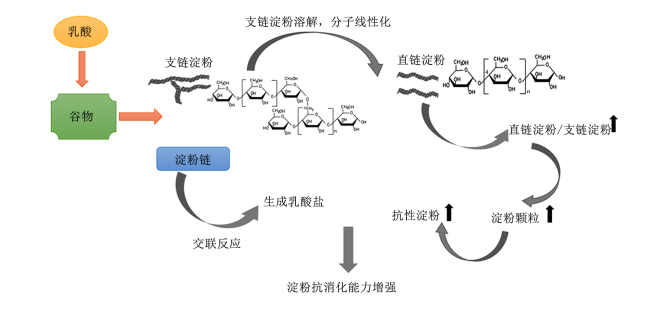
抗性淀粉含量的增加与直链淀粉和支链淀粉的比例改变以及支链淀粉的退化有关[24]。乳酸处理谷物增加其抗性淀粉含量可能存在以下2种机制(图2):1)淀粉的抗性与直链淀粉的结晶度有关,直链淀粉因其线性结构在氢键作用下快速重排,形成结晶结构,而支链淀粉的分支性质在一定程度上抑制了它的重结晶[25]。谷物经过乳酸处理后,首先快速水解支链淀粉,对直链淀粉水解速度缓慢。支链淀粉溶于乳酸,支链淀粉分子线性化,导致乳酸水解过程中产生了大量的直链淀粉片段[26]。大量的直链淀粉片段易老化成抗性淀粉,且直链淀粉与支链淀粉比例越大,淀粉的抗性也越强[24]。此外,当支链淀粉脱支产生的直链淀粉与短链分子靠近、相互交联为一体,进而形成更大的淀粉颗粒结构,而淀粉颗粒越大其抗性越强。2)乳酸可以与淀粉链发生交联反应,形成淀粉乳酸盐[11],此外乳酸可与谷物的谷蛋白相互作用,产生抵御淀粉酶消化的屏障[22],导致淀粉颗粒结构改变,淀粉利用率降低[18,27],进而增加谷物中抗性淀粉含量,增强淀粉的抗消化能力[28]
图2 乳酸处理谷物淀粉的调控机制

Fig.2 Regulatory mechanism of cereal starch treated with lactic acid

3 乳酸处理谷物饲粮对反刍动物机体的作用

3.1 对瘤胃pH的影响

乳酸处理谷物饲粮能够减缓瘤胃VFA和乳酸的积累,升高瘤胃pH。如图3所示,与高精料饲粮相比,一定剂量的乳酸处理谷物饲粮后可使谷物中淀粉改性,瘤胃抗性淀粉(ruminal resistance starch,RRS)含量增加,使得更多的淀粉到小肠中消化,改善反刍动物的瘤胃发酵情况,并减少瘤胃短链脂肪酸(short-chain fatty acid,SCFA)和乳酸含量[29],进而瘤胃pH升高,从而达到预防或者减缓SARA的效果[21]。Iqbal等[29]研究表明,经0.5%乳酸浸泡的大麦饲喂奶牛,可增加过瘤胃淀粉含量,降低瘤胃内SCFA与乳酸的聚积,降低奶牛患SARA的风险。此外,Yang等[30]研究发现,用1%乳酸浸泡处理玉米显著提高了肉牛瘤胃的pH,其主要原因是乳酸浸泡玉米增加了玉米RRS含量,降低了瘤胃VFA含量。Humer等[31]同样用1%乳酸浸泡处理大麦,在牛产后21~90 d饲喂,结果表明饲喂初产牛乳酸浸泡处理后的大麦可降低其瘤胃pH<5.8的时长。Deckardt等[32]运用瘤胃模拟技术研究表明,1%和5%乳酸处理大麦降低模拟瘤胃中SCFA和己酸的形成,但促进丙酸的形成。乙酸含量减少而丙酸含量增加可能是刺激了丙烯酸-丙酸途径,其以乙酸作为必要辅助因子,利用瘤胃微生物将乳酸转化为丙酸[33],而具体的作用机制需进一步明确。总之,以上研究表明乳酸处理谷物会改变瘤胃pH,其原因可能是乳酸处理过的谷物中直链淀粉比例增加进而使抗性淀粉含量增多,降低瘤胃中淀粉的消化率,改善瘤胃发酵。Wang等[34]研究发现,与饲喂正常直链淀粉比例(直链淀粉/支链淀粉=135.4/728.6)的饲粮相比,饲喂高直链淀粉比例(直链淀粉/支链淀粉=750.8/42.8)的饲粮显著提高了瘤胃pH,显著降低了瘤胃中乳酸和总挥发性脂肪酸(total volatile fatty acids,TVFA)含量。然而Khol-Parisini等[35]研究发现,5%乳酸处理谷物会降低瘤胃pH,增加pH<6.0的持续时间,增加奶牛患SARA的风险。这些不一致的发现可能表明乳酸刺激瘤胃发酵或改变发酵代谢产物的吸收与乳酸含量有关,高含量的乳酸可能会在瘤胃中提供额外的质子负荷[36]。综上所述,饲喂反刍动物经乳酸处理后的谷物饲粮可调控瘤胃发酵,使瘤胃pH升高,但是效果可能会受乳酸含量的影响,因此处理谷物的适宜乳酸含量有待进一步研究。
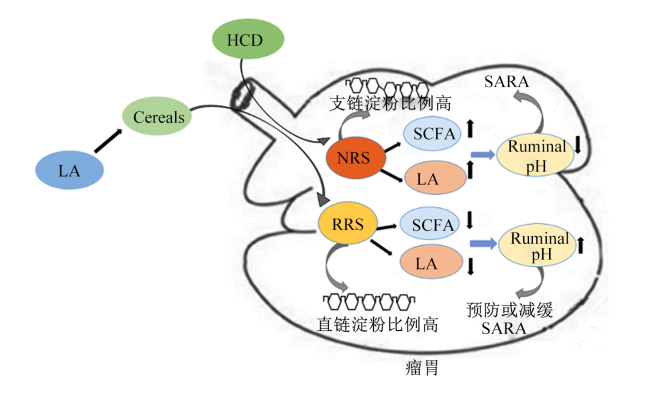
图3 乳酸处理谷物对反刍动物瘤胃的影响

HCD:高精料饲粮 high concentrate diets;NRS:瘤胃非抗性淀粉 non-rumen resistant starch;SCFA:短链脂肪酸 short-chain fatty acid;LA:乳酸 lactic acid;Cereals:谷物;RRS:瘤胃抗性淀粉 rumen resistant starch;SARA:亚急性瘤胃酸中毒 subacute rumen acidosis;Ruminal pH:瘤胃pH。

Fig.3 Effects of cereals treated with lactic acid on ruminant rumen[37]

3.2 对胃肠道微生物的影响

乳酸处理谷物能在一定程度上调控反刍动物的瘤胃微生物区系。经乳酸处理的谷物饲粮抗性淀粉含量增加,抗性淀粉可以显著增加乳酸杆菌(Lactobacillus)、双歧杆菌(Bacillus bifida)的数量,减少大肠杆菌(Escherichia coli)的数量[19]。反刍动物采食高精料饲粮后通过影响瘤胃微生物区系进而介导瘤胃酸中毒,其中乳酸利用菌及乳酸产生菌扮演着重要的角色[38]。在瘤胃中的乳酸利用菌有反刍兽新月单胞菌(Selenomonas ruminantium)和埃氏巨型球菌(Megasphaera elsdenii);主要的乳酸产生菌为牛链球菌(Streptococcus bovis)、乳酸杆菌及溶纤维丁酸弧菌(Butyrivibrio fibrisovens)等[38-39];主要的纤维降解菌为白色瘤胃球菌(Ruminococcus albus)和黄色瘤胃球菌(Ruminococcus flavefaciens)[37]。增加瘤胃中乳酸利用菌与纤维降解菌的数量有利于提升瘤胃pH、减缓SARA[37]。有研究发现,用1%乳酸处理大麦饲喂奶牛后,瘤胃中白色瘤胃球菌、黄色瘤胃球菌、埃氏巨型球菌和嗜淀粉瘤胃杆菌(Ruminobacter amylophilus)的相对丰度增加,但瘤胃中产琥珀酸丝状杆菌(Fibrobacter succinogenes)的相对丰度减少。此外,乳酸处理谷物对瘤胃微生物区系的影响受温度的影响。与不加热对比,乳酸55 ℃加热处理更有利于促进嗜淀粉瘤胃杆菌的增殖,但是,不加热处理更有利于埃氏巨型球菌和乳酸杆菌的增殖[40]
梭菌属(Clostridium)比例升高对瘤胃降解纤维有正向积极作用,普雷沃氏菌属(Prevotella)在反刍动物瘤胃中是一种能够降解和利用淀粉的优势菌属。在高产奶牛身上检测普雷沃氏菌属菌株,以评估该菌株预防亚急性酸中毒的潜力,有学者也认为普雷沃氏菌属对预防瘤胃酸中毒没有效果,但可以改善瘤胃环境[41]。而有研究表明,奶牛患SARA时,瘤胃中普雷沃氏菌属的相对丰度增加了1.5倍。Deckardt等[32]研究发现,运用瘤胃模拟技术,用1%乳酸并55 ℃加热处理大麦,瘤胃原虫总基因拷贝数增加,梭菌属Ⅳ(Clostridium Ⅳ)及梭菌属ⅩⅣ(Clostridium ⅩⅣ)的相对丰度增加,普雷沃氏菌属的相对丰度显著降低。尹梦洁等[42]研究发现,在谷物饲粮直链淀粉与支链淀粉比例为1.833时会显著降低断奶黑山羊瘤胃的固相内容物中栖瘤胃普雷沃氏菌数量。根据该研究结果可见,乳酸处理谷物饲粮增加了淀粉中直链淀粉与支链淀粉比例,其结果可能降低普雷沃氏菌属的相对丰度,调控了反刍动物的瘤胃微生物区系。然而,Mickdam等[36]用5%乳酸处理的大麦饲喂非泌乳奶牛却得到不同的试验结果,其瘤胃液以及瘤胃食糜中的普雷沃氏菌属生长旺盛,而梭菌属Ⅳ与瘤胃食糜中反刍兽新月形单胞菌在瘤胃液中的比例下降。综上所述,在处理谷物饲粮时不同乳酸含量及加热条件可能对瘤胃微生物有着不同的影响,因此,乳酸处理谷物饲粮的处理工艺需进一步研究,此外,乳酸处理提高饲粮直链淀粉与支链淀粉比例与增加抗性淀粉含量的同时,产生的其他作用和影响还仍待进一步探索。

3.3 对生产性能的影响

反刍动物对淀粉的消化利用与单胃动物有很大差异,大量淀粉在反刍动物的瘤胃被分解发酵生成VFA、二氧化碳(CO2)和甲烷(CH4),仅少量淀粉进入小肠消化分解生成葡萄糖[43]。Owens等[44]研究表明,在反刍动物小肠中消化的淀粉比在瘤胃中消化的淀粉的营养价值高42%左右,有更多葡萄糖进入磷酸戊糖途径,能量效率更高。乳酸处理谷物饲粮后,提高了谷物中直链淀粉与支链淀粉比例,导致过瘤胃淀粉含量增多,最终改善了反刍动物的葡萄糖供应,从而减少氨基酸的糖异生,有利于蛋白质沉积,提高反刍动物生产的能量效率[43]。根据Iqbal等[21]研究发现,饲喂0.5%乳酸处理饲粮的奶牛瘤胃液中乳酸含量减少,改善了其瘤胃发酵模式,提高了瘤胃pH,降低了SARA发生率;奶牛瘤胃液中乙酸含量降低,丙酸含量有增加趋势,进而增加了乳脂含量。Deckardt等[32]采用奶牛体外瘤胃模拟技术研究也表明,乳酸处理饲粮在降低奶牛瘤胃总SCFA含量的同时提高了丙酸含量。现有研究表明,1%乳酸处理玉米饲喂肉牛,有增加肉牛平均日增重、降低料重比的趋势[45]。总之,乳酸处理可影响谷物淀粉在机体的降解位置和速率[6],改善肉牛和奶牛的生产性能。

3.4 对饲粮中磷消化率的影响

谷物中的磷是动物营养中重要的矿物质,同时也是畜牧业生产的主要环境污染物之一[36]。谷物饲粮中磷主要以植酸盐的形式存在,由于植酸盐在中性pH时能与二价矿物质形成不溶性络合物,具有抗营养特性。当反刍动物的瘤胃发酵状态不佳时会影响磷的过瘤胃率,植酸不能被完全消化吸收,这样不仅影响反刍动物对所需磷源的利用,且未被反刍动物消化的磷会污染土壤和水源,引发土壤酸化和板结等,并带来一系列生态环境问题。天然植物的植酸酶在微酸性pH下活性最高,因此乳酸处理谷物后pH下降,使得谷物中的植酸酶活性增强,这有助于提高反刍动物对饲粮中磷的消化率,并且乳酸不会对环境造成污染。Haraldsson等[46]通过在48 ℃下用0.8%的乳酸浸泡大麦,发现超过90%的植酸被降解,并且在乳酸浸泡后得到了富含β-葡聚糖和低植酸的大麦。此外Khol-Parisini等[35]在不影响泌乳前期奶牛代谢状态的前提下添加5%乳酸浸泡的精料饲粮,结果乳酸处理后的饲粮具有节约无机磷添加量的潜力。现有研究已证实1%乳酸预处理玉米饲粮有增加肉牛对总磷表观消化率的趋势,且与对照组相比提升了19.17%[45]。总之,乳酸处理谷物饲粮能够促进谷物饲粮中植酸降解,提高奶牛和肉牛对磷的利用率,保证瘤胃微生物对磷需求的同时节约了无机磷源,减少奶牛和肉牛的磷排泄量和对环境的污染。然而有关乳酸处理谷物饲粮后使植酸降解的确切机制需要进一步的研究来阐明。

3.5 对机体代谢组和炎性反应的影响

高精料饲粮会增加瘤胃与血浆中碳水化合物和蛋白质代谢物,使肉牛的瘤胃和血浆代谢组发生变化[45]。Yang等[30]研究发现,饲喂肉牛1%乳酸浸泡过的玉米后,瘤胃碳水化合物代谢产物、氨基酸代谢产物、黄嘌呤、尿嘧啶、DL-乳酸、乙酸、酪胺、异丁酸和异戊酸的相对丰度降低,血浆中尿素含量增加,并且乳酸处理玉米可以调节淀粉的降解特性,有助于改善瘤胃和血浆代谢状况。
饲喂高精料时RDS在瘤胃中快速发酵,导致LPS含量升高,消化道中产生的LPS可以被转运到血液中,血液急性期蛋白如血清淀粉样蛋白A(SAA)、脂多糖结合蛋白(LBP)、C反应蛋白(CRP)、触珠蛋白(HP)含量增加[47],并且会刺激单核吞噬细胞释放白细胞介素(IL)-1β、IL-6、IL-8和肿瘤坏死因子-α(TNF-α)等促炎症细胞因子[48]。抗性淀粉难以在瘤胃中被消化,减少淀粉在瘤胃的降解可使更多的淀粉在肠道中消化,大肠中的微生物可将其消化发酵成丁酸等短链脂肪酸。丁酸是结肠细胞的重要能量来源,能增加结肠黏膜中的抗氧化剂谷胱甘肽含量[19],提高结肠对粮食中有毒物质的抵抗力,并可降低结肠pH,保护肠黏膜免受应激刺激,增强结肠防御屏障和抗炎特性。Iqbal等[49]在饲喂乳酸处理大麦奶牛的血浆中检测到急性期蛋白(如SAA和HP)含量降低,从而改善免疫状态。Yang等[30]研究也表明,饲喂肉牛1%乳酸浸泡过的玉米后,机体LPS含量降低,血浆中SAA、HP、LBP和CRP含量显著降低,并且血浆中IL-1β、IL-8和TNF-α含量降低,降低了饲喂高精料饲粮肉牛的炎症反应。此外汪志[50]的研究也证实了稀乳酸处理玉米饲喂肉牛可显著降低血浆中SAA和IL-1β含量,这些研究结果表明用乳酸处理谷物有利于降低反刍动物的炎症反应。

4 小结

谷物饲粮经乳酸处理,通过提高直链淀粉与支链淀粉比例,增加抗性淀粉含量,从而有助于提高瘤胃pH,预防或缓解瘤胃酸中毒,改善反刍动物健康状况和提高生产性能。目前对乳酸处理高精料的研究报道主要集中于玉米、大麦等谷物饲粮,此外乳酸处理对淀粉确切的作用机制还仍待进一步深入研究。乳酸处理后改变了淀粉在反刍动物中各消化位点的消化量,进一步研究乳酸处理谷物饲粮对不同生理阶段和生产性能的反刍动物在瘤胃、小肠和大肠3个淀粉消化位点的调控机制,对提高淀粉利用效率和充分发挥反刍动物的生产潜力具有重要的意义。最后,乳酸的用量、处理温度、饲粮的种类和组成、动物品种、健康状况及其环境会影响其作用效果,乳酸处理谷物饲粮在反刍动物的长期应用的调控效果等仍需进一步的探索。
[1]
LIU J H, TIAN K, SUN Y W, et al. Effects of the acid-base treatment of corn on rumen fermentation and microbiota,inflammatory response and growth performance in beef cattle fed high-concentrate diet[J]. Animal, 2020, 14(9):1876-1884.

DOI

[2]
TAO S Y, DUANMU Y Q, DONG H B, et al. A high-concentrate diet induced colonic epithelial barrier disruption is associated with the activating of cell apoptosis in lactating goats[J]. BMC Veterinary Research, 2014, 10:235.

DOI PMID

[3]
ZEBELI Q, DIJKSTRA J, TAFAJ M, et al. Modeling the adequacy of dietary fiber in dairy cows based on the responses of ruminal pH and milk fat production to composition of the diet[J]. Journal of Dairy Science, 2008, 91(5):2046-2066.

DOI PMID

[4]
SILVEIRA C, OBA M, YANG W Z, et al. Selection of barley grain affects ruminal fermentation,starch digestibility,and productivity of lactating dairy cows[J]. Journal of Dairy Science, 2007, 90(6):2860-2869.

DOI

[5]
马先红, 李环通, 陈莘化. 玉米淀粉消化性的研究进展[J]. 食品工业, 2018, 39(2):273-278.

MA X H, LI H T, CHEN X H. Research progress in digestibility of maize starch[J]. The Food Industry, 2018, 39(2):273-278. (in Chinese)

[6]
GRUBER L, KHOL-PARISINI A, HUMER E, et al. Long-term influence of feeding barley treated with lactic acid and heat on performance and energy balance in dairy cows[J]. Archives of Animal Nutrition, 2017, 71(1):54-66.

PMID

[7]
刘庆艾, 马恒, 马耀宏, 等. 乳酸与酸性蛋白酶协同浸泡在玉米浸泡工艺中的应用[J]. 食品科技, 2018, 43(1):258-261.

LIU Q A, MA H, MA Y H, et al. The application of collaborative soaking of lactic acid and acid protease on corn steeping technology[J]. Food Science and Technology, 2018, 43(1):258-261. (in Chinese)

[8]
姜秀娟, 吴威. 乳酸对玉米淀粉生产中浸泡效果的影响[J]. 产业与科技论坛, 2012, 11(24):78.

JIANG X J, WU W. Effect of lactic acid on the soaking effect in corn starch production[J]. Industrial & Science Tribune, 2012, 11(24):78. (in Chinese)

[9]
SINGH V, HAKEN A E, DOWD M K, et al. Batch steeping of corn:effects of adding lactic acid and sulfur dioxide at different times on starch yields,protein contents,and starch pasting properties[J]. Cereal Chemistry, 1999, 76(5):600-605.

DOI

[10]
HAROS M, SUÁREZ C. Effect of chemical pretreatments and lactic acid on the rate of water absorption and starch yield in corn wet-milling[J]. Cereal Chemistry, 1999, 76(5):783-787.

DOI

[11]
REYES I, HERNANDEZ-JAIMES C, MERAZ M, et al. Effect of combined heat-moisture/lactic acid treatment on the physicochemical and in vitro digestibility properties of corn starch[J]. Starch-Stärke, 2021, 73(1/2):2000147.

DOI

[12]
VAN HUNG P, MY N T H, PHI N T L. Impact of acid and heat-moisture treatment combination on physicochemical characteristics and resistant starch contents of sweet potato and yam starches[J]. Starch-St rke, 2014, 66(11/12):1013-1021.

[13]
陈代文. 动物营养与饲料学[M]. 2版. 北京: 中国农业出版社, 2015:35.

CHEN D W. Animal nutrition and feed science[M]. 2nd ed. Beijing: China Agriculture Press, 2015:35. (in Chinese)

[14]
HAROS M, PEREZ O E, ROSELL C M. Effect of steeping corn with lactic acid on starch properties[J]. Cereal Chemistry, 2004, 81(1):10-14.

DOI

[15]
DE OLIVEIRA MAIOR L, DE ALMEIDA V S, BARRETTI B R V, et al. Combination of organic acid and heat-moisture treatment:impact on the thermal,structural,pasting properties and digestibility of maize starch[J]. Journal of Thermal Analysis and Calorimetry, 2021, 143(1):265-273.

DOI

[16]
熊柳, 张兆丽, 孙庆杰. 乳酸处理对大米淀粉性质的影响[J]. 粮油食品科技, 2010, 18(1):13-16.

XIONG L, ZHANG Z L, SUN Q J. Effects of lactic acid treatment on the characteristics of rice starch[J]. Science and Technology of Cereals,Oils and Foods, 2010, 18(1):13-16. (in Chinese)

[17]
BERRY C S. Resistant starch:formation and measurement of starch that survives exhaustive digestion with amylolytic enzymes during the determination of dietary fibre[J]. Journal of Cereal Science, 1986, 4(4):301-314.

DOI

[18]
LILJEBERG H, ÅKERBERG A, BJÖRCK I. Resistant starch formation in bread as influenced by choice of ingredients or baking conditions[J]. Food Chemistry, 1996, 56(4):389-394.

DOI

[19]
PERERA A, MEDA V, TYLER R T. Resistant starch:a review of analytical protocols for determining resistant starch and of factors affecting the resistant starch content of foods[J]. Food Research International, 2010, 43(8):1959-1974.

DOI

[20]
SHAIKH F, ALI T M, MUSTAFA G, et al. Comparative study on effects of citric and lactic acid treatment on morphological,functional,resistant starch fraction and glycemic index of corn and sorghum starches[J]. International Journal of Biological Macromolecules, 2019, 135:314-327.

DOI

[21]
IQBAL S, ZEBELI Q, MAZZOLARI A, et al. Feeding barley grain steeped in lactic acid modulates rumen fermentation patterns and increases milk fat content in dairy cows[J]. Journal of Dairy Science, 2009, 92(12):6023-6032.

DOI PMID

[22]
DECKARDT K, KHIAOSA-ARD R, GRAUSGRUBER H, et al. Evaluation of various chemical and thermal feed processing methods for their potential to enhance resistant starch content in barley grain[J]. Starch-Stärke, 2014, 66(5/6):558-565.

DOI

[23]
HARDER H, KHOL-PARISINI A, ZEBELI Q. Treatments with organic acids and pullulanase differently affect resistant starch and fiber composition in flour of various barley genotypes (Hordeum vulgare L.)[J]. Starch-Stärke, 2015, 67(5/6):512-520.

DOI

[24]
ZAMAN S A, SARBINI S R. The potential of resistant starch as a prebiotic[J]. Critical Reviews in Biotechnology, 2016, 36(3):578-584.

DOI PMID

[25]
SAJILATA M G, SINGHAL R S, KULKARNI P R. Resistant starch-a review[J]. Comprehensive Reviews in Food Science and Food Safety, 2006, 5(1):1-17.

DOI PMID

[26]
HUMER E, ZEBELI Q. Grains in ruminant feeding and potentials to enhance their nutritive and health value by chemical processing[J]. Animal Feed Science and Technology, 2017, 226:133-151.

DOI

[27]
HALLSTRÖM E, SESTILI F, LAFIANDRA D, et al. A novel wheat variety with elevated content of amylose increases resistant starch formation and may beneficially influence glycaemia in healthy subjects[J]. Food & Nutrition Research, 2011, 55:7074.

[28]
柳君辉. 酸碱处理高精料日粮中玉米对肉牛瘤胃发酵和菌群、炎症反应和生长性能的影响[D]. 硕士学位论文. 重庆: 西南大学, 2020.

LIU J H. Effects of the acid-base treatment of corn on rumen fermentation and flora,inflammatory response and growth performance in beef cattle fed high-concentrate diet[D]. Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[29]
IQBAL S, ZEBELI Q, MAZZOLARI A, et al. Barley grain-based diet treated with lactic acid and heat modulated plasma metabolites and acute phase response in dairy cows[J]. Journal of Animal Science, 2012, 90(9):3143-3152.

DOI PMID

[30]
YANG Y, DONG G Z, WANG Z, et al. Treatment of corn with lactic acid or hydrochloric acid modulates the rumen and plasma metabolic profiles as well as inflammatory responses in beef steers[J]. BMC Veterinary Research, 2018, 14(1):408.

DOI PMID

[31]
HUMER E, KHOL-PARISINI A, GRUBER L, et al. Long-term reticuloruminal pH dynamics and markers of liver health in early-lactating cows of various parities fed diets differing in grain processing[J]. Journal of Dairy Science, 2015, 98(9):6433-6448.

DOI PMID

[32]
DECKARDT K, METZLER-ZEBELI B U, ZEBELI Q. Processing barley grain with lactic acid and tannic acid ameliorates rumen microbial fermentation and degradation of dietary fibre in vitro[J]. Journal of the Science of Food and Agriculture, 2016, 96(1):223-231.

DOI

[33]
SATTER L D, ESDALE W J. In vitro lactate metabolism by ruminal ingesta[J]. Applied Microbiology, 1968, 16(5):680-688.

DOI

[34]
WANG S P, WANG W J, TAN Z L. Effects of dietary starch types on rumen fermentation and blood profile in goats[J]. Czech Journal of Animal Science, 2016, 61(1):32-41.

DOI

[35]
KHOL-PARISINI A, HUMER E, HARDER H, et al. Metabolic responses,performance,and reticuloruminal pH of early-lactating cows fed concentrates treated with lactic acid,with or without inorganic phosphorus supplementation[J]. Journal of Dairy Science, 2016, 99(8):6237-6250.

DOI

[36]
MICKDAM E, KHIAOSA-ARD R, METZLER-ZEBELI B U, et al. Modulation of ruminal fermentation profile and microbial abundance in cows fed diets treated with lactic acid,without or with inorganic phosphorus supplementation[J]. Animal Feed Science and Technology, 2017, 230:1-12.

DOI

[37]
孙华, 赵芳芳, 范曜天, 等. 有机酸处理谷物在反刍动物饲粮配制中的应用[J]. 动物营养学报, 2020, 32(4):1551-1556.

SUN H, ZHAO F F, FAN Y T, et al. Application of organic acid treatment of cereals in diet preparation for ruminants[J]. Chinese Journal of Animal Nutrition, 2020, 32(4):1551-1556. (in Chinese)

[38]
陈连民, 王洪荣. 瘤胃中乳酸的代谢及其调控机制[J]. 草业科学, 2016, 33(5):972-980.

CHEN L M, WANG H R. Advances in the metabolism and regulation of lactic acids in the rumen[J]. Pratacultural Science, 2016, 33(5):972-980. (in Chinese)

[39]
余诗强, 童津津, 熊本海, 等. 乳酸在奶牛体内的代谢途径及其对奶牛健康影响的研究进展[J]. 中国畜牧兽医, 2021, 48(7):2439-2447.

YU S Q, TONG J J, XIONG B H, et al. Research progress on metabolic pathway of lactic acid and its effect on the health of dairy cows[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(7):2439-2447. (in Chinese)

[40]
METZLER-ZEBELI B U, KHOL-PARISINI A, GRUBER L, et al. Microbial populations and fermentation profiles in rumen liquid and solids of Holstein cows respond differently to dietary barley processing[J]. Journal of Applied Microbiology, 2015, 119(6):1502-1514.

DOI

[41]
FRAGA M, FERNÁNDEZ S, PERELMUTER K, et al. The use of Prevotella bryantii 3C5 for modulation of the ruminal environment in an ovine model[J]. Brazilian Journal of Microbiology, 2018, 49(Suppl 1):101-106.

DOI

[42]
尹梦洁, 汪水平, 冉涛, 等. 饲粮直链/支链淀粉比例对断奶羔羊瘤胃发酵及细菌菌群的影响[J]. 动物营养学报, 2021, 33(9):5142-5151.

YIN M J, WANG S P, RAN T, et al. Effects of dietary amylose/amylopectin ratio on rumen fermentation and bacterial community in weaned lambs[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):5142-5151. (in Chinese)

[43]
余群莲. 不同来源淀粉对肉牛瘤胃发酵及营养物质消化代谢的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2011.

YU Q L. Effect of different sources of starch on rumen fermentation,digestion and metabolism of nutrients in beef cattle[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2011. (in Chinese)

[44]
OWENS F N, ZINN R A, KIM Y K. Limits to starch digestion in the ruminant small intestine[J]. Journal of Animal Science, 1986, 63(5):1634-1648.

PMID

[45]
杨游. 高精料饲粮引起肉牛机体代谢组的变化及其营养调控效果研究[D]. 博士学位论文. 重庆: 西南大学, 2018.

YANG Y. A study on the metabolomics profiling alterations associated with the high-concentrate diet in beef cattle and the effects of nutritional modulations[D]. Ph.D.Thesis. Chongqing: Southwest University, 2018. (in Chinese)

[46]
HARALDSSON A K, RIMSTEN L, ALMINGER M L, et al. Phytate content is reduced and β-glucanase activity suppressed in malted barley steeped with lactic acid at high temperature[J]. Journal of the Science of Food and Agriculture, 2004, 84(7):653-662.

DOI

[47]
田可. 日粮添加菊粉对育肥肉牛生长性能、瘤胃发酵和菌群、炎症反应的影响[D]. 硕士学位论文. 重庆: 西南大学, 2020.

TIAN K. Effects of dietary supplementation of inulin on growth performance,rumen fermentation and bacterial microbiota,inflammatory response in finishing beef steers[D]. Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[48]
DONG G Z, LIU S M, WU Y X, et al. Diet-induced bacterial immunogens in the gastrointestinal tract of dairy cows:impacts on immunity and metabolism[J]. Acta Veterinaria Scandinavica, 2011, 53(1):48.

DOI

[49]
IQBAL S, ZEBELI Q, MAZZOLARI A, et al. Feeding rolled barley grain steeped in lactic acid modulated energy status and innate immunity in dairy cows[J]. Journal of Dairy Science, 2010, 93(11):5147-5156.

DOI PMID

[50]
汪志. 稀酸处理日粮中玉米对肉牛体内炎性反应和生产性能的影响[D]. 硕士学位论文. 重庆: 西南大学, 2018.

WANG Z. Effects of treatment of corn of the diet with diluted acids on inflammatory responses and production performance in beef cattle[D]. Master’s Thesis. Chongqing: Southwest University, 2018. (in Chinese)

Outlines

/