RESEARCH PAPER

Ethyl Acetate Fraction from Polygonum hydropiper L. Regulates Inflammatory Response Induced by Porcine Circovirus Type 2 by Reducing Production of Inflammatory Factors and Inhibiting Phosphorylation of p38 Mitogen-Activated Protein Kinase and Extracellular Regulatory Protein Kinase 1/2 Proteins

  • CHEN Qi ,
  • WEI Yuheng ,
  • XIE Xiaodong ,
  • ZHAO Yi ,
  • WANG Qiuhua ,
  • YU Meiling ,
  • WEI Yingyi ,
  • HU Tingjun , *
Expand
  • College of Animal Science and Technology, Guangxi University, Nanning 530005, China
* professor, E-mail:

Received date: 2022-06-30

  Online published: 2023-02-13

Abstract

The objective of this study was to explore the molecular mechanism of ethyl acetate fraction from Polygonum hydropiper L. (FEA) resistance to the inflammatory response induced by porcine circovirus type 2 (PCV2) infection in porcine alveolar macrophages (3D4/2 cells). The experiment was divided into seven groups, which were blank control group, PCV2 infection group, lipopolysaccharide positive control group, rutin positive control group and FEA drug groups (25, 50 and 100 μg/mL), each group contained 4 replicates. The cell viability of 3D4/2 cells after treated with different concentrations of FEA were detected; after inoculation of PCV2, the contents of interleukin-6 (IL-6), interferon-γ (IFN-γ), interleukin-10 (IL-10) and activities of cyclooxygenase-1 (COX-1) and cyclooxygenase-2 (COX-2) were detected; the mRNA relative expression levels of COX-2, IL-6, IL-10, proto-oncogene (c-myc and c-fos), amino acid end kinase (c-jun), p38 mitogen-activated protein kinase (p38 MAPK) and extracellular regulatory protein kinase 1/2 (ERK1/2) were detected by quantitative PCR; the protein relative expression levels of p38 MAPK and ERK1/2 were detected by Western-Blotting. The results showed that 25, 50 and 100 μg/mL FEA had no effect on activity of 3D4/2 cells. Compared with PCV2 infection group, the contents of IL-6, IL-10 and IFN-γ of 25, 50 and 100 μg/mL FEA drug groups were significantly decreased (P<0.05 or P<0.01), the activities of COX-1 and COX-2 of 25 and 100 μg/mL FEA drug groups were significantly decreased (P<0.05), the mRNA relative expression levels of IL-6, IL-10, COX-2 and c-fos of 25, 50 and 100 μg/mL FEA drug groups were significantly decreased (P<0.05 or P<0.01), the mRNA relative expression levels of c-junc-mycMAPK and ERK of 25 and 100 μg/mL FEA drug groups were significantly decreased (P<0.05 or P<0.01), and the protein relative expression levels of p38 MAPK and ERK1/2 of 25, 50 and 100 μg/mL FEA drug groups were significantly decreased (P<0.01). It is shown that FEA regulates the inflammatory response of 3D4/2 cells induced by PCV2 by reducing the production of inflammatory factors and inhibiting phosphorylation of p38 MAPK and ERK1/2 proteins.

Cite this article

CHEN Qi , WEI Yuheng , XIE Xiaodong , ZHAO Yi , WANG Qiuhua , YU Meiling , WEI Yingyi , HU Tingjun . Ethyl Acetate Fraction from Polygonum hydropiper L. Regulates Inflammatory Response Induced by Porcine Circovirus Type 2 by Reducing Production of Inflammatory Factors and Inhibiting Phosphorylation of p38 Mitogen-Activated Protein Kinase and Extracellular Regulatory Protein Kinase 1/2 Proteins[J]. Chinese Journal of Animal Nutrition, 2023 , 35(2) : 1250 -1260 . DOI: 10.12418/CJAN2023.117

猪圆环病毒(porcine circovirus,PCV)是单链环状DNA病毒,目前已发现4个型(PCV1~PCV4)[1],感染宿主会减少其树突状细胞的数量,并抑制病毒抗原向T淋巴细胞传递,进而导致免疫活性T/B淋巴细胞数量减少,抑制宿主的免疫系统,导致宿主抵抗力下降[2]。此时,易造成其他病毒或细菌的感染而继发其他疾病,如猪皮炎和肾病综合征(PDNS)、仔猪心肌炎、母猪繁殖障碍、断奶猪和育肥猪的呼吸道疾病以及仔猪先天性震颤(CT)等[3]。PCV感染在全世界的养猪地区普遍存在,给全球养猪业造成了重大的经济损失。
近年来,中草药及其活性成分在预防和治疗动物疾病方面取得了一定的成果。辣蓼(Polygonum hydropiper L.)为蓼科(Polygonaceae)植物的干燥全草,含有黄酮类化合物、挥发油、鞣质类等物质[4]。辣蓼具有抗氧化、抗菌、抗高血压、抗炎和镇静等多种药理活性作用[5-6]。另外,根据体内外抗炎试验表明,辣蓼主要成分中的黄酮类化合物可以通过抑制环氧合酶-2(COX-2)、脂氧化酶(LOXs)、诱导性一氧化氮合成酶(iNOS)、核因子-κB(NF-κB)和激活蛋白-1(AP-1)的活性,再通过激活Ⅱ期抗氧化解毒酶依赖还原型辅酶Ⅰ/Ⅱ醌氧化还原酶(NQO1)、丝裂原活化蛋白激酶(MAPK)、蛋白激酶C(PKC)和核因子红细胞2-相关因子2(Nrf2)的活性来发挥抗炎作用[7]。从意大利黑麦草(Lolium multiflorum)中分离出的黄酮类化合物同样也能抑制MAPK和NF-κB的活性[8]。任守忠等[9]在研究辣蓼提取物对大鼠急性胃黏膜损伤的保护作用时,发现辣蓼提取物能增强胃黏膜损伤大鼠的抗氧化能力,表明辣蓼提取物具有清除氧自由基的生物活性。Peng等[10]对辣蓼黄酮进行了抗氧化能力测定,结果表明其具抗氧化活性。谷俐媛等[11]在研究辣蓼黄酮对脂多糖(LPS)诱导的RAW264.7细胞的炎症反应的调控作用试验中,发现辣蓼黄酮乙酸乙酯部分(FEA)和辣蓼黄酮正丁醇部位(FNB)均能减少LPS刺激所诱导的活性氧(ROS)、一氧化氮(NO)、肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)和白细胞介素-8(IL-8)的释放,从而发挥抗炎特性。谷俐媛等[12]还发现,FNB能够减少LPS刺激所诱导的内毒素血症小鼠模型中炎性细胞因子TNF-α、IL-1β、IL-6和IL-8等的释放,同时,FEA则能够减少炎性细胞因子TNF-α、干扰素-α(IFN-α)、干扰素-γ(IFN-γ)和白细胞介素-2(IL-2)的mRNA表达,表明辣蓼黄酮可以减轻LPS诱导的内毒素血症对小鼠的损伤。以上研究表明,PCV2的感染可诱导细胞氧化应激与炎症的发生,且辣蓼黄酮具有良好的抗炎作用。
蛋白质的磷酸化与去磷酸化,参与和调控生命体信号转导、基因表达和细胞周期等诸多生命过程,在生命体内至少有30%的蛋白质被磷酸化后,参与生命活动[13-14]。通过蛋白质的磷酸化和去磷酸化,可以调节MAPK信号通路等多种Toll样受体(TLR)依赖性信号分子的激活和失活,从而调节炎症反应[15]。大量证据表明LPS通过激活NF-κB、MAPK和磷脂酰肌醇-3激酶(PI3K)/蛋白激酶B(Akt)通路导致促炎介质和细胞因子的过量产生[16-17]。PCV2感染通过激活NF-κB信号通路进而诱导机体炎症反应的发生,而NF-κB通路与MAPK通路密切相关[18-21]。FEA具有抗病毒活性,由此推测,FEA可能通过减少炎症因子的产生并抑制p38 MAPK和细胞外调节蛋白激酶(ERK)1/2蛋白磷酸化而调节PCV2诱导的猪肺泡巨噬细胞(3D4/2细胞)的炎症反应。
本研究用PCV2体外感染3D4/2细胞,建立病毒感染的炎症模型,观察FEA对细胞内炎性因子的影响,并观察在FEA作用后MAPK通路和ERK1/2通路上的关键蛋白磷酸化表达是否得到抑制,进而阐明FEA的抗炎作用及其调节炎症反应的分子机制。

1 材料与方法

1.1 FEA的制备和试剂

FEA纯度为56.53%,经XDA-8大孔吸附树脂分离纯化后,得到淡黄色粉末物质,由广西大学动物科学技术学院兽医药理实验室制备。胎牛血清(FBS)和DMEM培养基购自美国Gibco公司;CCK-8检测试剂盒购自上海碧云天生物技术公司;猪IL-6、白细胞介素-10(IL-10)、IFN-γ、环氧合酶-1(COX-1)、COX-2的酶联免疫吸附测定(ELISA)试剂盒购自江苏晶美公司;LPS购自美国Sigma公司;芦丁对照品购自北京索莱宝公司;Trizol总RNA提取试剂、蛋白酶抑制剂、磷酸酶抑制剂和预冷RIPA裂解缓冲液购自北京康维世纪公司生物公司;ChamQ Universal SYBR qPCR Master Mix购自南京诺唯赞生物公司;Chemiluminescent HRT Substrate超敏发光显色液购自美国millipor公司;BCA购自上海Biotech公司;一抗β-肌动蛋白(β-actin)、p38 MAPK、磷酸化p38丝裂原活化蛋白激酶(p-p38 MAPK)、ERK1/2、磷酸化细胞外调节蛋白激酶1/2(pERK1/2)和二抗均购自美国CST公司。

1.2 病毒和细胞

PCV2:SH株,为南京农业大学动物疫病诊断与免疫实验室分离保存(GenBank登录号:AY686763),经猪肾细胞(PK-15细胞)增殖后测得病毒滴度为10-2半数组织细胞感染量(TCID50)/mL。3D4/2细胞由广西大学预防兽医实验室惠赠,经广西大学动物科学技术学院基础兽医学药理实验室培养冻存。

1.3 试验设计

试验共设置7个组,分别为空白对照组、PCV2感染组、LPS阳性对照组、芦丁阳性对照组和FEA药物组(25、50和100 μg/mL),每组4个重复。LPS溶于10% FBS-DMEM培养液(终浓度为0.1%)。芦丁溶于二甲基亚砜(DMSO)后加入10% FBS-DMEM完全培养液(DMSO终浓度小于0.1%)。FEA溶于DMSO后加入10% FBS-DMEM完全培养液(DMSO终浓度小于0.1%)。调整3D4/2细胞浓度至1×106个/mL,均匀接种在6孔细胞培养板上,2 mL/孔,空白对照组加入2 mL无血清DMEM,LPS阳性对照组加入2 mL浓度为1 μg/mL的LPS,PCV2感染组加入2 mL PCV2病毒液(10-2 TCID50/mL);PCV2接种2 h后,芦丁阳性对照组加入2 mL的40 μg/mL芦丁,各FEA组分别加入2 mL的25、50和100 μg/mL FEA。37 ℃,5% CO2条件下培养8 h。

1.4 PCV2的增殖和鉴定

复苏并传代PK-15细胞,并使用10% FBS的DMEM培养液进行培养,待其长成单层细胞后,调整PK-15细胞浓度至1×10⁵个/mL,100 μL/孔均匀接种至96孔细胞培养板。接种PCV2毒液,吸附2 h后,吸弃病毒液,磷酸盐缓冲液(PBS)洗涤细胞3次。而后加入5% FBS的DMEM培养液于37 ℃、5% CO2培养箱中培养48 h。而后,收获细胞毒液,并反复冻融3次后,5 000 r/min离心5 min,收集上清液,分装至1.5 mL的EP管中备用。
采用PCR检测病毒核酸,首先根据GenBank设计PCV2引物,由上海生工生物工程股份有限公司合成(F:5'-CACTTCTTTCGTTTTCAG-3';R:5'-TTTATCACTTCGTAATGGT-3')(GenBank登录号:MT376724.1),然后按照北京康维世纪生物公司的DNA提取试剂盒说明书(CW0548)操作。抽提病毒DNA后进行PCR扩增,扩增体系为:无菌水8.5 μL;2×Mix酶12.5 μL;引物1(P1)1 μL;引物2(P2)1 μL;DNA 2 μL;总体系为25 μL。PCR扩增程序为:94 ℃预变性3 min;94 ℃ 40 s;55.5 ℃ 40 s;72 ℃ 40 s,进行30个循环,94 ℃延伸7 min。最终PCR产物用1%琼脂糖凝胶进行电泳,观察扩增片段的大小。

1.5 CCK8法检测3D4/2细胞活力

将3D4/2细胞浓度调整至1×105个/mL,每孔100 μL接种至96孔板中培养过夜。次日,吸弃细胞培养上清液,PBS洗涤细胞3次后,各FEA组分别加入200 μL的25、50、100、200、400和800 μg/mL的FEA,空白对照组加入200 μL的10% FBS的DMEM。培养48 h后,每孔加入20 μL的CCK8溶液,并将96孔细胞培养板在37 ℃、5% CO2的培养箱中孵育2 h,避光取出96孔板,并在450 nm处检测其吸光度(OD)值,细胞活力计算公式如下:
细胞活力=(试验组OD-空白对照组OD)/(对照组OD-空白对照组OD)。

1.6 ELISA检测炎性因子及相关酶活性

按照1.3进行分组与处理,而后使用ELISA试剂盒,按照操作说明书测定IFN-γ、IL-6、IL-10等炎性细胞因子含量及COX-1和COX-2活性。

1.7 定量PCR(q-PCR)检测mRNA的表达

按照1.3进行分组与处理,调整3D4/2细胞浓度至1×106个/mL,将细胞接种于6孔板中,2 mL/孔,37 ℃、5% CO2培养过夜。提取总RNA并反转录为cDNA,用于q-PCR检测相关基因的表达。COX-2、IL-6、IL-10、c-fosc-junc-mycp38 MAPKERK和甘油醛-3-磷酸脱氢酶(GAPDH)等基因的引物序列见表1。以GAPDH为内参,用2-ΔΔCt方法计算mRNA相对表达水平。
表1 基因序列

Table 1 Gene sequences

基因
Genes
序列
Sequence (5'—3')
登录号
Accession No.
产物大小
Product size/bp
白细胞介素-6
IL-6
F:GGCTGCTTCTGGTGATGG
R:AGAGATTTTGCCGAGGATGTA
NM_214399.1 146
白细胞介素-10
IL-10
F:TGAAGAGTGCCTTTACCAAGCTC
R:CTCATCTTCATCGTCATGTAGGC
NM_214041.1 106
环氧合酶-2
COX-2
F:CTGAACACCTCCGCTTTGC
R:AAGCACATCGCACACTCTATTATGT
NM_214321.1 110
c-fos F:AGAATCCGAAGGGAAAGGAA
R:AGATCAAGGGAAGCCACAGA
NM_001123113.1 248
c-jun F:CCCCTGTCCCCCATCGACATG
R:TTGCAACTGCTGCGTTAGCAT
NM_213880.1 267
c-myc F:CTCTGACTCGCTGTAGTAATTCCAG
R:TGTTGTAAGTTCCAGTGGAAAGTAC
NM_001005154.1 273
p38丝裂原活化蛋白激酶
p38 MAPK
F:TCTGTAGGAAATCACACTAGC
R:GTATGCACTTCAGATCTTCAC
XM_003356615.4 89
细胞外调节蛋白激酶
ERK
F:GACGCAGCACCTCAGCAA
R:CACGGGCCAACCCAAAGT
XM_021071922.1 167
甘油醛-3-磷酸脱氢酶
GAPDH
F:ACATGGCCTCCAAGGAGTAAGA
R:GATCGAGTTGGGGCTGTGACT
XM_021091114.1 106

1.8 Western Blotting检测蛋白表达水平

按照1.3进行分组与处理,调整3D4/2细胞浓度至1×106个/mL,将细胞接种于6孔板中,2 mL/孔,37 ℃、5% CO2培养过夜。提取总蛋白后,根据BCA蛋白浓度测定说明书测定蛋白浓度,并用Western Blotting检测蛋白表达水平。操作方法同其他研究[18,22-24],简述如下:蛋白质经过聚丙烯酰胺凝胶电泳(SDS-PAGE)分离后,转移到聚偏二氟乙烯膜(PVDF)膜上,在4 ℃下用5% BSA封闭缓冲液封闭1.5 h,用5%脱脂奶粉以1∶1 000倍稀释p38 MAPK、p-p38 MAPK、ERK1/2、pERK1/2和β-actin抗体,并在4 ℃下孵育过夜,1×TBST洗涤3次后,将聚偏二氟乙烯(PVDF)膜与二抗在37 ℃下共孵育1.5 h,1×TBST洗涤3次后,使用ChemiluminescentHRTSubstrate超敏发光显色液对PVDF膜进行避光显色。使用蛋白成像仪观察蛋白条带。各蛋白表达用β-actin进行标准化,以评估蛋白条带的相对表达水平。

1.9 统计分析

使用SPSS 21.0进行统计分析。数据采用单因素方差分析(one-way ANOVA),Duncan氏法进行多重比较。数据以平均值±标准差表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果

2.1 PCV2的增殖和鉴定

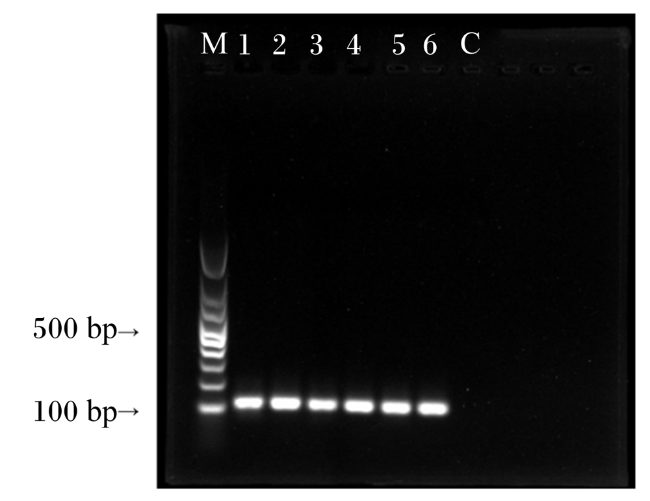
将PCV2接种于PK-15细胞中,培养48 h,收集病毒,提取病毒DNA,采用q-PCR检测病毒核酸,产物进行1%琼脂糖凝胶电泳。图1显示目标片段的扩增量约为107 bp。
图1 PCV2的增殖及鉴定

C为未感染PCV2的PK-15细胞;1~5分别为PK-15细胞感染后4、8、12、24、48 h;6为阳性对照;M为DNA Marker。

Fig.1 Proliferation and identification of PCV2

C mean PK-15 cells without PCV2 infection; 1 to 5 mean infection with PCV2 at 4, 8, 12, 24 and 48 h, respectively; 6 mean positive control, and M mean DNA marker.

2.2 FEA对3D4/2细胞的细胞活力的影响

表2所示,与空白对照组相比,200、400和800 μg/mL的FEA作用于3D4/2细胞后,细胞活力极显著降低(P<0.01);而25、50和100 μg/mL的FEA作用于3D4/2细胞后,细胞活力无显著差异(P>0.05)。因此,选择25、50和100 μg/mL的FEA作为后续试验的用药浓度。
表2 FEA对3D4/2细胞的细胞活力的影响

Table 2 Effects of FEA on cell viability of 3D4/2 cells

项目
Item
空白对照组
Blank control
group
FEA浓度 FEA concentration/(μg/mL)
800 400 200 100 50 25
细胞活力
Cell viability
100.0±15.6 71.7±2.9** 61.4±4.9** 73.8±7.8** 104.9±12.6 99.1±0.1 106.3±0.7

**表示与空白对照组相比差异极显著(P<0.01)。

** mean significant difference compared with the blank control group (P<0.01).

2.3 FEA对PCV2感染3D4/2细胞的炎症细胞因子水平和相关酶的活性的影响
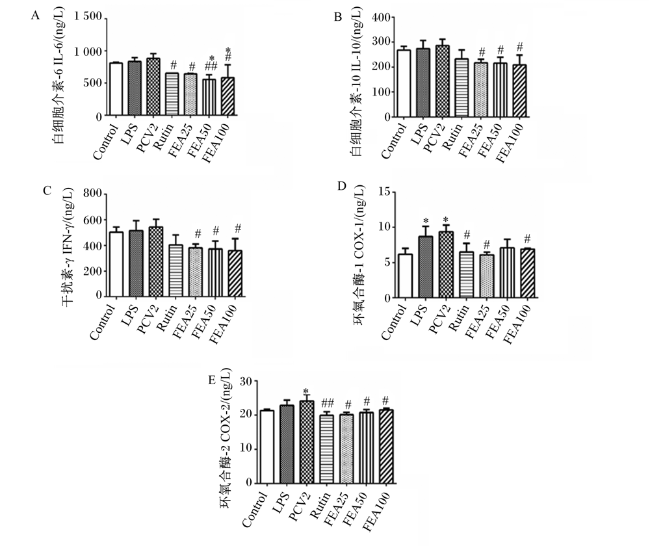
图2-A图2-B图2-C所示,与空白对照组相比,PCV2感染后,PCV2感染组的IL-6、IL-10和IFN-γ含量升高(P>0.05);与PCV2感染组相比,FEA处理后,25、50和100 μg/mL FEA药物组的IL-6、IL-10和IFN-γ含量显著或极显著降低(P<0.05或P<0.01)。如图2-D图2-E所示,与空白对照组相比,PCV2感染后,PCV2感染组的COX-1和COX-2活性显著升高(P<0.05);与PCV2感染组相比,FEA处理后,25和100 μg/mL FEA药物组的COX-1和COX-2活性显著降低(P<0.05)。
图2 FEA对PCV2感染3D4/2细胞的炎症细胞因子含量和相关酶活性的影响

Control:空白对照组;PCV2:PCV2感染组;LPS:LPS阳性对照组;Rutin:芦丁阳性对照组;FEA25:25 μg/mL FEA药物组;FEA50:50 μg/mL FEA药物组;FEA100:100 μg/mL FEA药物组。*表示与空白对照组相比差异显著(P<0.05),**表示与空白对照组相比差异极显著(P<0.01);#表示与PCV2感染组相比差异显著(P<0.0 5),##表示与PCV2感染组相比差异极显著(P<0.01)。下图同。

Fig.2 Effects of FEA on inflammatory cytokine contents and related enzyme activities in PCV2-infected 3D4/2 cells

Control: blank control group; PCV2: PCV2 infection group; LPS: LPS positive control group; Rutin: rutin positive control group; FEA25: 25 μg/mL FEA drug group; FEA50: 50 μg/mL FEA drug group; FEA100: 100 μg/mL FEA drug group. * mean significant difference compared with the blank control group (P<0.05), and ** mean significant difference compared with the blank control group (P<0.01); # mean significant difference compared with the PCV2 infection group (P<0.05), and ## mean significant difference compared with the PCV2 infection group (P<0.01). The same as below.

2.4 FEA对PCV2感染3D4/2细胞IL-6、IL-10、COX-2、c-fosc-junc-mycp38 MAPKERK的mRNA相对表达水平的影响

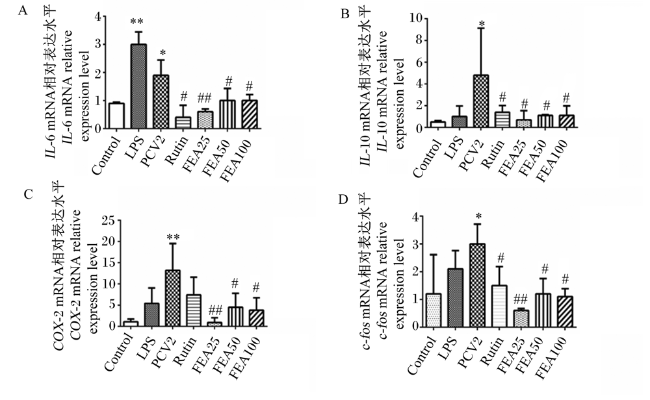
图3所示,与空白对照组相比,PCV2感染后,PCV2感染组的IL-6、IL-10、COX-2和c-fos的mRNA相对表达水平显著或极显著升高(P<0.05或P<0.01)。与PCV2感染组相比,FEA处理后,25、50和100 μg/mL FEA药物组的IL-6、IL-10、COX-2和c-fos的mRNA相对表达水平显著或极显著降低(P<0.05或P<0.01)。其中,25 μg/mL的FEA作用效果最佳。
图3 FEA对PCV2感染3D4/2细胞IL-6、IL-10、COX-2和c-fos mRNA相对表达水平的影响

Fig.3 Effects of FEA on mRNA relative expression levels of IL-6, IL-10, COX-2 and c-fos in PCV2 infected 3D4/2 cells

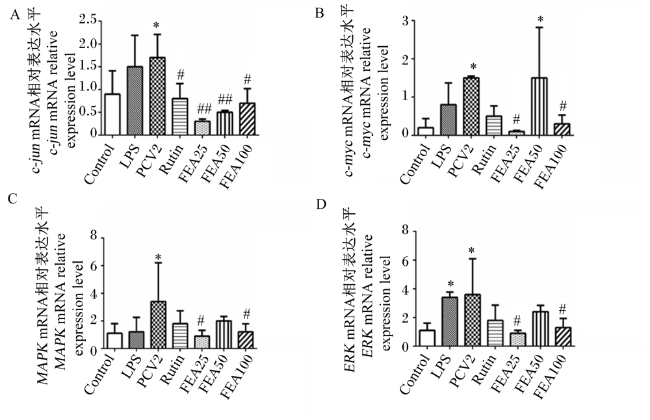
图4所示,与对照组相比,PCV2感染后,PCV2感染组的c-junc-mycMAPKERK的mRNA相对表达水平均显著升高(P<0.05)。与PCV2感染组相比,FEA处理后,25和100 μg/mL FEA药物组的c-junc-mycMAPKERK的mRNA相对表达水平显著或极显著降低(P<0.05或P<0.01)。其中,25 μg/mL的FEA作用效果最佳。
图4 FEA对PCV2感染3D4/2细胞c-junc-mycMAPKERK mRNA相对表达水平的影响

Fig.4 Effects of FEA on mRNA relative expression levels of c-junc-mycMAPK and ERK in 3D4/2 cells infected with PCV2

2.5 FEA对PCV2感染3D4/2细胞中p38 MAPK和ERK1/2通路关键蛋白的调节作用

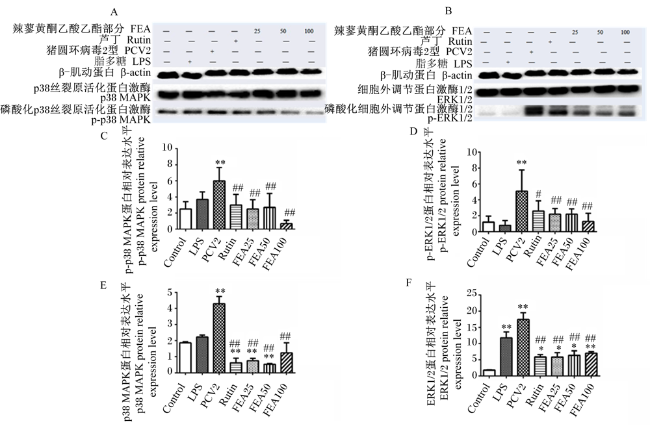
图5所示,与对照组相比,PCV2感染后,p38 MAPK、p-p38 MAPK、ERK1/2和p-ERK1/2的蛋白相对表达水平均极显著升高(P<0.01)。与PCV2感染组相比,FEA处理后,25、50和100 μg/mL FEA药物组的p38 MAPK、p-p38 MAPK、ERK1/2和磷酸化细胞外调节蛋白激酶1/2(p-ERK1/2)的蛋白相对表达水平均极显著降低(P<0.01)。其中,25和100 μg/mL的FEA作用效果最佳。
图5 FEA对PCV2感染的3D4/2细胞中p38 MAPK、ERK1/2蛋白相对表达水平的影响

Fig.5 Effects of FEA on protein relative expression levels of p38 MAPK and ERK1/2 in PCV2-infected 3D4/2 cells

3 讨论

PCV2是断奶仔猪多系统衰弱综合征(PMWS)的主要致病因子[25]。PCV2感染巨噬细胞将促进炎性因子的表达,当病毒侵入宿主细胞后,免疫细胞释放的细胞因子和趋化因子是消除入侵病原体的必要因素[26]。但炎症介质的过度释放同样也不利于机体抵抗病毒感染[27]。研究表明,在多种炎症的刺激下,COX会诱导花生四烯酸产生前列腺素E2(PGE2)和COX-2,而COX-2的过度表达会促进炎症信号级联反应[28]。巨噬细胞在由炎症引发的先天性和适应性免疫应答中起关键作用[29]。IL-10是一种具有抗炎和免疫抑制作用的细胞因子,由巨噬细胞、树突状细胞、T细胞和B细胞分泌,主要在晚期免疫效应阶段产生[30]。IL-10的产生将抑制其他促炎细胞因子的产生,如白细胞介素-1(IL-1)、IL-2、IFN-γ和TNF-α等[6]。此外,Borghetti等[31]研究表明,PCV2感染的早期阶段,TNF-αIL-8和IL-1β的基因表达增加,证明了在PCV2感染的早期阶段,炎症反应更加迅速。此外,Sipos等[32]研究发现,PDNS猪外周血单核细胞中IFN-γIL-6的mRNA表达上调。Yang等[33]研究发现,PCV2感染的3D4/2细胞中,IL-1βTNF-αIL-6和IL-10的mRNA表达水平增加,进而诱发炎症反应。在本试验中,PCV2感染3D4/2细胞后,IL-6、IL-10和IFN-γ含量呈上升的趋势,但与空白对照组相比无显著差异,其可能的原因是,细胞炎性因子的分泌水平较基因的表达而言相对滞后,因此在取细胞上清液进行测定时,尚未得出差异显著的结果。另外,PCV2感染3D4/2细胞使得COX-1和COX-2活性显著增加。这与前人的研究结果相类似。而FEA处理后,可使得IL-6、IL-10、IFN-γ含量和COX-1、COX-2活性显著减少,说明FEA能有效调节PCV2诱导的炎症反应,并抵抗病毒感染。
黄酮类化合物因其具有抗炎和抗氧化等生物活性,成为了科学研究领域值得探索的药物。Hsieh等[34]研究表明,人参皂苷Rh2(GRh2)可减少促炎因子TNF-α、一氧化氮(NO)和IL-1β的产生,并促进肺脏组织中白细胞介素-4(IL-4)、IL-6和IL-10的产生。此外,GRh2还会抑制核因子-κB抑制蛋白(IκB-α)、ERK、c-Jun氨基末端激酶(JNK)、p38 MAPK、原癌基因丝氨酸/苏氨酸蛋白激酶(Raf-1)、丝裂原活化蛋白激酶激酶(MEK)、一氧化氮合成酶(iNOS)和COX-2的蛋白表达水平。还有相关研究表明,黄酮类化合物可减少各种炎性细胞因子或趋化因子的表达。例如,在LPS诱导的人血单核细胞中,染料木黄酮会减弱细胞因子IL-1β、IL-6和TNF-α的分泌[35]。病毒的感染通常伴随着炎症的发生,病毒感染诱导细胞产生炎症因子,在此过程中NF-κB被激活,一方面其通过分泌抗病毒细胞因子如IFN-γ等发挥抗病毒作用,另一方面NF-κB通过激活ERK1/2、p38 MAPK和PI3K/Akt信号通路诱导促炎介质和细胞因子的过量产生[16,20]。研究发现,PCV2感染也同样通过以上通路参与炎症反应[19-21]。在本研究中,我们发现PCV2感染3D4/2细胞后,炎症因子IL-6、IL-10、COX-1和p38 MAPKERK1/2 mRNA相对表达水平升高,FEA处理后,p38 MAPKERK1/2 mRNA相对表达水平下降。这表明FEA可通过p38 MAPK和ERK1/2信号通路调节炎症反应,这与上述的研究报道结果一致。另外,FEA也降低了PCV2感染3D4/2细胞中COX-2、IL-10和IL-6的mRNA相对表达水平,其中25 μg/mL的浓度效果最好。这些结果说明,FEA通过下调炎症相关mRNA的表达抵抗病毒感染诱导的炎症反应。
c-fosc-junc-myc为原癌基因家族早期基因,大量研究表明原癌基因参与了各种不同的细胞过程,如增殖、分化和凋亡[36]c-myc编码一种核磷蛋白和一种转录因子。此外,c-fosc-jun所编码的蛋白还可构成二聚体活性蛋白-1(activation protein-1,AP-1),而AP-1是一种核转录活化因子,已被证实在各种炎症蛋白的表达中起着关键作用。另外,AP-1还参与了炎性信号的调控[37]。本研究发现,PCV2感染3D4/2细胞后,原癌基因c-fosc-junc-myc的mRNA相对表达水平增加。不仅如此,炎症细胞因子IL-6、IL-10和COX-2的mRNA相对表达水平也增加,这表明原癌基因的表达与炎症因子的基因转录有关。25~100 μg/mL的FEA可显著降低PCV2感染3D4/2细胞中的c-fosc-junc-myc的mRNA相对表达水平,表明FEA可能通过调节炎症相关基因的转录起始水平来抑制炎性因子的释放。
蛋白质磷酸化是真核生物中关键的可逆翻译后修饰方式,蛋白质的磷酸化与去磷酸化,参与调控诸多生命过程,如免疫应激、基因表达、细胞增殖、信号转导等。在生命体内至少有30%的蛋白被磷酸化修饰后参与生命活动[13-14]。本研究发现,PCV2感染3D4/2细胞后,p38 MAPK和ERK1/2的蛋白磷酸化水平显著增加,而FEA处理显著抑制了ERK1/2和p38 MAPK的磷酸化,这与基因表达的结果一致。这表明FEA可能通过抑制MAPK和ERK1/2信号通路来减少PCV2感染3D4/2细胞的炎症反应。综上所述,FEA可通过抑制MAPK和ERK1/2信号通路的相关蛋白磷酸化发挥抗炎作用,可作为一种潜在的有效药物以防治病毒诱导的炎症性疾病。

4 结论

FEA通过抑制p38 MAPK和ERK1/2通路的关键蛋白的磷酸化,减少相关炎症细胞因子的分泌,降低相关炎症细胞因子的mRNA相对表达水平,而保护3D4/2细胞受PCV2诱导的炎症损伤。此外,25 μg/mL的FEA为适宜的作用剂量。
[1]
OPRIESSNIG T, KARUPPANNAN A K, CASTRO A M M G, et al. Porcine circoviruses:current status,knowledge gaps and challenges[J]. Virus Research, 2020, 286:198044.

DOI

[2]
OUYANG T, ZHANG X W, LIU X H, et al. Co-infection of swine with porcine circovirus type 2 and other swine viruses[J]. Viruses, 2019, 11(2):185.

DOI

[3]
FARNHAM M W, CHOI Y K, GOYAL S M, et al. Isolation and characterization of porcine circovirus type-2 from sera of stillborn fetuses[J]. Canadian Journal of Veterinary Research, 2003, 67(2):108-113.

[4]
XIA X H, YUAN Y Y, LIU M. The assessment of the chronic hepatotoxicity induced by Polygoni multiflori Radix in rats:a pilot study by using untargeted metabolomics method[J]. Journal of Ethnopharmacology, 2017, 203:182-190.

DOI

[5]
TRAN T T, KIM M, JANG Y, et al. Characterization and mechanisms of anti-influenza virus metabolites isolated from the Vietnamese medicinal plant Polygonum chinense[J]. BMC Complementary and Alternative Medicine, 2017, 17(1):162.

DOI

[6]
RUTZ S, OUYANG W J. Regulation of interleukin-10 expression[J]. Advances in Experimental Medicine and Biology, 2016, 941:89-116.

PMID

[7]
YAHFOUFI N, ALSADI N, JAMBI M, et al. The immunomodulatory and anti-inflammatory role of polyphenols[J]. Nutrients, 2018, 10(11):1618.

DOI

[8]
CHOI K C, SON Y O, HWANG J M, et al. Antioxidant,anti-inflammatory and anti-septic potential of phenolic acids and flavonoid fractions isolated from Lolium multiflorum[J]. Pharmaceutical Biology, 2017, 55(1):611-619.

DOI

[9]
任守忠, 苏文琴, 朱宏锐, 等. 辣蓼提取物对大鼠急性胃黏膜损伤的保护作用研究[J]. 中国药房, 2018, 29(7):955-958.

REN S Z, SU W Q, ZHU H R, et al. Study on protective effects of Polygonum hydropiper extract on acute gastric mucosal injury in rats[J]. China Pharmacy, 2018, 29(7):955-958. (in Chinese)

[10]
PENG Z F, STRACK D, BAUMERT A, et al. Antioxidant flavonoids from leaves of Polygonum hydropiper L.[J]. Phytochemistry, 2003, 62(2):219-228.

DOI

[11]
谷俐媛, 陶俊宇, 吴苑滢, 等. 辣蓼黄酮乙酸乙酯部分对脂多糖诱导内毒素血症小鼠生化指标和炎性细胞的影响[J]. 中国中医药信息杂志, 2018, 25(4):40-45.

GU L Y, TAO J Y, WU Y Y, et al. Effects of FEA from Polygonum hydropiper L. on biochemical indexes and inflammatory cytokines in mice with endotoxemia induced by lipopolysaccharide[J]. Chinese Journal of Information on Traditional Chinese Medicine, 2018, 25(4):40-45. (in Chinese)

[12]
谷俐媛, 陶俊宇, 杨剑, 等. 辣蓼黄酮正丁醇部分对脂多糖诱导内毒素血症小鼠的保护作用[J]. 动物医学进展, 2018, 39(2):84-90.

GU L Y, TAO J Y, YANG J, et al. Protective effects of FNB from Polygonum hydropiper on endotoxemia induced by lipopolysaccharides in mice[J]. Progress in Veterinary Medicine, 2018, 39(2):84-90. (in Chinese)

[13]
KRUPA A, PREETHI G, SRINIVASAN N. Structural modes of stabilization of permissive phosphorylation sites in protein kinases:distinct strategies in Ser/Thr and Tyr kinases[J]. Journal of Molecular Biology, 2004, 339(5):1025-1039.

DOI

[14]
FICARRO S B, MCCLELAND M L, STUKENBERG P T, et al. Phosphoproteome analysis by mass spectrometry and its application to Saccharomyces cerevisiae[J]. Nature Biotechnology, 2002, 20(3):301-305.

DOI

[15]
ARTHUR J S C, LEY S C. Mitogen-activated protein kinases in innate immunity[J]. Nature Reviews Immunology, 2013, 13(9):679-692.

DOI PMID

[16]
ENDALE M, PARK S C, KIM S, et al. Quercetin disrupts tyrosine-phosphorylated phosphatidylinositol 3-kinase and myeloid differentiation factor-88 association,and inhibits MAPK/AP-1 and IKK/NF-κB-induced inflammatory mediators production in RAW 264.7 cells[J]. Immunobiology, 2013, 218(12):1452-1467.

DOI

[17]
HUANG B P, LIN C H, CHEN H M, et al. AMPK activation inhibits expression of proinflammatory mediators through downregulation of PI3K/p38 MAPK and NF-κB signaling in murine macrophages[J]. DNA and Cell Biology, 2015, 34(2):133-141.

DOI

[18]
YANG J, TAN H L, GU L Y, et al. Sophora subprosrate polysaccharide inhibited cytokine/chemokine secretion via suppression of histone acetylation modification and NF-κB activation in PCV2 infected swine alveolar macrophage[J]. International Journal of Biological Macromolecules, 2017,104 (Pt.A):900-908.

[19]
CHEN X X, SHI X L, GAN F, et al. Glutamine starvation enhances PCV2 replication via the phosphorylation of p38 MAPK,as promoted by reducing glutathione levels[J]. Veterinary Research, 2015, 46(1):32.

DOI

[20]
LIU D D, XU J, QIAN G, et al. Selenizing astragalus polysaccharide attenuates PCV2 replication promotion caused by oxidative stress through autophagy inhibition via PI3K/AKT activation[J]. International Journal of Biological Macromolecules, 2018, 108:350-359.

DOI PMID

[21]
GAN F, ZHANG Z Q, HU Z H, et al. Ochratoxin a promotes porcine circovirus type 2 replication in vitro and in vivo[J]. Free Radical Biology & Medicine, 2015, 80:33-47.

DOI

[22]
CHEN H L, TAN H L, YANG J, et al. Sargassum polysaccharide inhibits inflammatory response in PCV2 infected-RAW264.7 cells by regulating histone acetylation[J]. Carbohydrate Polymers, 2018, 200:633-640.

DOI

[23]
SU Z J, WEI Y Y, YIN D, et al. Effect of Sophora subprosrate polysaccharide on oxidative stress induced by PCV2 infection in RAW264.7 cells[J]. International Journal of Biological Macromolecules, 2013, 62:457-464.

DOI

[24]
WANG Q H, KUANG N, HU W Y, et al. The effect of Panax notoginseng saponins on oxidative stress induced by PCV2 infection in immune cells:in vitro and in vivo studies[J]. Journal of Veterinary Science, 2020, 21(4):e61.

DOI

[25]
PALINSKI R, PIÑEYRO P, SHANG P C, et al. A novel porcine circovirus distantly related to known circoviruses is associated with porcine dermatitis and nephropathy syndrome and reproductive failure[J]. Journal of Virology, 2017, 91(1):e01879-16.

[26]
LI W T, LIU S Q, WANG Y, et al. Transcription analysis of the porcine alveolar macrophage response to porcine circovirus type 2[J]. BMC Genomics, 2013, 14(1):353.

DOI

[27]
CHANG H W, JENG C R, LIN T L, et al. Immunopathological effects of porcine circovirus type 2 (PCV2) on swine alveolar macrophages by in vitro inoculation[J]. Veterinary Immunology and Immunopathology, 2006, 110(3/4):207-219.

DOI

[28]
NORBERG J K, SELLS E, CHANG H H, et al. Targeting inflammation:multiple innovative ways to reduce prostaglandin E2[J]. Pharmaceutical Patent Analyst, 2013, 2(2):265-288.

DOI

[29]
MENG X J. Porcine circovirus type 2 (PCV2):pathogenesis and interaction with the immune system[J]. Annual Review of Animal Biosciences, 2013, 1:43-64.

DOI

[30]
WEI H X, LI B F, SUN A Y, et al. Interleukin-10 family cytokines immunobiology and structure[J]. Advances in Experimental Medicine and Biology, 2019, 1172:79-96.

DOI PMID

[31]
BORGHETTI P, MORGANTI M, SALERI R, et al. Innate pro-inflammatory and adaptive immune cytokines in PBMC of vaccinated and unvaccinated pigs naturally exposed to porcine circovirus type 2 (PCV2) infection vary with the occurrence of the disease and the viral burden[J]. Veterinary Microbiology, 2013, 163(1/2):42-53.

DOI

[32]
SIPOS W, DUVIGNEAU J C, PIETSCHMANN P, et al. Porcine dermatitis and nephropathy syndrome (PDNS) is associated with a systemic cytokine expression profile indicative of proinflammation and a Th1 bias[J]. Veterinary Immunology and Immunopathology, 2005, 107(3/4):303-313.

DOI

[33]
YANG J, CAO M X, HU W Y, et al. Sophorasubprosrate polysaccharide suppress the inflammatory reaction of RAW264.7 cells infected with PCV2 via regulation NF-κB/MAPKs/c-Jun signal pathway and histone acetylation modification[J]. International Journal of Biological Macromolecules, 2020, 159:957-965.

DOI PMID

[34]
HSIEH Y H, DENG J S, CHANG Y S, et al. Ginsenoside Rh2 ameliorates lipopolysaccharide-induced acute lung injury by regulating the TLR4/PI3K/Akt/mTOR,Raf-1/MEK/ERK,and Keap1/Nrf2/HO-1 signaling pathways in mice[J]. Nutrients, 2018, 10(9):1208.

DOI

[35]
GENG Y, ZHANG B, LOTZ M. Protein tyrosine kinase activation is required for lipopolysaccharide induction of cytokines in human blood monocytes[J]. Journal of Immunology, 1993, 151(12):6692-6700.

PMID

[36]
REINER G, HECHT W, LEEB T, et al. Isolation and characterization of the porcine c-myc proto-oncogene and chromosomal assignment to SSC 4p13[J]. Animal Genetics, 1999, 30(3):204-206.

DOI PMID

[37]
LEE I T, YANG C M. Inflammatory signalings involved in airway and pulmonary diseases[J]. Mediators of Inflammation, 2013, 2013:791231.

Outlines

/