RESEARCH PAPER

Effects of Mitochondrial Regulation on Endoplasmic Reticulum Pathway Apoptosis of Sertoli Cells Induced by Zearalenone and Deoxynivalenol in Piglets

  • CHEN Jiawen ,
  • HAI Sirao ,
  • MA Li ,
  • QIU Zhi ,
  • HAN Mengyi ,
  • WANG Chenlong ,
  • FENG Shibin ,
  • ZHAO Chang ,
  • WANG Xichun , *
Expand
  • College of Animal Science and Technology, Anhui Agricultural University, Hefei 230036, China
* professor, E-mail:

Received date: 2022-07-26

  Online published: 2023-02-13

Abstract

This experiment was conducted to investigate the regulatory mechanism of mitochondria on endoplasmic reticulum pathway apoptosis of Sertoli cells (SCs) induced by combined treatment with zearalenone (ZEA) and deoxynivalenol (DON) in piglets. The SCs at logarithmic growth stage were divided into control, ZEA+DON, mitochondrial division inhibitor-1 (Mdivi-1) and ZEA+DON+Mdivi-1 treatments. After 24 h of treatment, the cell viability was observed by fluorescence microscope; the ultrastructure, mitochondria and endoplasmic reticulum morphology were detected by transmission electron microscope; the cell apoptosis rate was detected by flow cytometry; the mRNA relative expression levels of protein kinase R-like endoplasmic reticulum kinase (PERK), activating transcription factor 4 (ATF4), CCAAT/enhancer binding protein homolog (CHOP) and eukaryotic translation initiation factor 2α (eIF2α) genes in endoplasmic reticulum apoptosis pathway were detected by real-time quantitative PCR; and the protein relative expression levels of PERK, ATP4, CHOP and eIF2α were detected by Western blot. The results showed as follows: 1) compared with ZEA+DON treatment, adding Mdivi-1 extremely significantly increased the cell viability (P<0.01), and alleviated the structural damage of cells, mitochondria and endoplasmic reticulum. 2) Compared with the control treatment, the cell apoptosis rate in Mdivi-1 treatment had no significant difference (P>0.05), while the cell apoptosis rate in ZEA+DON and ZEA+DON+Mdivi-1 treatments were extremely significantly increased (P<0.01); compared with ZEA+DON treatment, the cell apoptosis rate in ZEA+DON+Mdivi-1 treatment was extremely significantly decreased (P<0.01). 3) Compared with the control treatment, the mRNA relative expression levels and protein relative expression levels of PERKATF4, CHOP and eIF2α in ZEA+DON and ZEA+DON+Mdivi-1 treatments were extremely significantly increased (P<0.01); but compared with ZEA+DON treatment, the mRNA relative expression levels and protein relative expression levels of PERKATF4, CHOP and eIF2α in ZEA+DON+Mdivi-1 treatment were significantly or extremely significantly decreased (P<0.05 or P<0.01). In conclusion, mitochondria play an important role in the apoptosis of SCs infected with ZEA and DON through endoplasmic reticulum pathway, and intervention of this process can provide new ideas for removing the reproductive toxicity of mycotoxins.

Cite this article

CHEN Jiawen , HAI Sirao , MA Li , QIU Zhi , HAN Mengyi , WANG Chenlong , FENG Shibin , ZHAO Chang , WANG Xichun . Effects of Mitochondrial Regulation on Endoplasmic Reticulum Pathway Apoptosis of Sertoli Cells Induced by Zearalenone and Deoxynivalenol in Piglets[J]. Chinese Journal of Animal Nutrition, 2023 , 35(2) : 1261 -1269 . DOI: 10.12418/CJAN2023.118

玉米赤霉烯酮(zearalenone,ZEA)是由镰刀菌属真菌产生的一种霉菌毒素,广泛污染谷物与饲料[1]。当哺乳动物误食被ZEA污染的饲料后,主要产生生殖毒性,造成繁殖性能和生产性能降低[2]。有研究表明,ZEA可通过核因子E2相关因子2(nuclear factor E2 related factor 2,Nrf2)信号通路诱导猪生殖细胞氧化损伤和凋亡[3-4];ZEA对小鼠精原细胞具有毒性作用,可引起细胞凋亡与自噬[5]。脱氧雪腐镰刀菌烯醇(deoxynivalenol,DON)是单端孢霉烯B族中最具代表性的一种霉菌毒素。DON暴露可引起BALB/c小鼠精子损伤、氧化应激、睾丸细胞凋亡和c-Jun氨基末端激酶(c-Jun N-terminal kinase,JNK)/c-Jun信号通路磷酸化[6]。在细胞水平上,DON的主要毒性作用是破坏线粒体、内质网等细胞器结构,引起细胞膜破裂,抑制蛋白质和核酸的合成,并通过诱导细胞凋亡发挥毒性效应[7]。自然情况下,ZEA和DON在饲料中常共同存在。许多研究显示,ZEA与DON具有一定的互作效应,ZEA与DON联合处理会影响小鼠睾丸间质细胞生殖激素的分泌[8];ZEA与DON可通过线粒体途径诱导仔猪睾丸支持细胞(Sertoli cells,SCs)凋亡,且联合毒性大于单一毒性[9]
近年来,线粒体与内质网之间的相互作用已成为细胞生物学的研究热点[10]。线粒体与内质网之间存在一个结构域为线粒体相关内质网膜(mitochondria-associated endoplasmic reticulum membranes,MAM),其在调节细胞钙稳态、磷脂合成、细胞凋亡、线粒体动力学以及内质网应激等方面均发挥着重要的作用[11]。有研究表明,凋亡诱导因子刺激时,多功能分选蛋白2(multifunctional sorting protein 2,PACS2)与去磷酸化的BH3结构域凋亡诱导蛋白(BH3 interacting-domain death agonist,Bid)结合,并将凋亡信号从内质网运输至线粒体中[12]。同时,线粒体分裂蛋白1(mitochondrial fission protein 1,Fis1)与B细胞受体相关蛋白31(B-cell receptor-associated protein 31,Bap31)相互作用,通过胱天蛋白酶-8(procaspase-8)促进其分裂为促凋亡的p20 Bap31,从而将凋亡信号从线粒体传递至内质网[13]。但是,线粒体是否调控ZEA与DON联合染毒仔猪SCs过程中内质网应激介导的凋亡,目前研究较少。因此,本研究以仔猪SCs为模型,通过添加线粒体分裂抑制剂——线粒体分裂抑制因子-1(mitochondrial division inhibitor-1,Mdivi-1)抑制线粒体分裂,研究线粒体在ZEA与DON联合染毒仔猪SCs过程中对内质网途径凋亡的调控作用机制,为ZEA与DON生殖毒性危害的解除提供理论依据。

1 材料与方法

1.1 试验材料

1.1.1 试验试剂

ZEA、DON标准品均购自美国Sigma公司;SCs购自上海青旗生物技术发展有限公司;DMEM高糖培养基购自上海源培生物科技股份有限公司;Mdivi-1购自TargetMol生物公司;0.25%胰蛋白酶消化液购自武汉赛维尔生物科技有限公司;二喹啉甲酸(BCA)蛋白浓度测定试剂盒购自Sparkjade公司;膜联蛋白Ⅴ的异硫氰酸荧光素(Annexin V-FITC)/碘化丙啶(PI)试剂盒购自翌圣生物科技(上海)股份有限公司;β-肌动蛋白(β-actin)、蛋白激酶R样内质网激酶(PERK)、活化转录因子4(ATF4)、CCAAT/增强子结合蛋白同源蛋白(CHOP)和真核生物翻译起始因子2α(eIF2α)抗体均购自武汉赛维尔生物科技有限公司。

1.1.2 试验仪器

BB-15二氧化氮(CO2)恒温培养箱(美国Thermo公司);Multiskan MK3酶标仪(美国Thermo公司);FACS Calibar流式细胞仪(美国BD公司);TEOL-2010透射电子显微镜(日本电子株式会社);2500凝胶成像仪(美国Thermo公司);荧光定量PCR仪(美国Thermo公司)。

1.2 细胞培养和传代

从-80 ℃冰箱中取出SCs,迅速置于37 ℃恒温水浴锅,按细胞冻存液与培养基1∶9配制后离心,去上清,并加入4 mL新鲜培养基,转移到4 cm×6 cm细胞培养瓶中,置于37 ℃、5% CO2培养箱中;待细胞贴壁至80%,用胰酶消化细胞至60%后加培养基终止消化,离心后去上清,重悬细胞置于细胞培养箱中。

1.3 ZEA与DON及Mdivi-1浓度筛选

将细胞按密度8 000个/孔接种于96孔板,培养24 h后将ZEA与DON按照浓度梯度[ZEA+DON分别为(0+0)(对照)、(15+0.4) μmol/L、(30+0.8) μmol/L、(30+1.2) μmol/L、(45+1.8) μmol/L、(60+2.4) μmol/L和(80+4.8) μmol/L]处理细胞,24 h后用CCK-8法检测细胞活率,探索半数抑制浓度。重复操作将细胞接种到96孔板,按照浓度梯度添加Mdivi-1[0(对照)、0.1、0.5、1.5、5、10和15 μmol/L]预处理细胞,2 h后添加此前测得的半数抑制浓度的ZEA+DON,探索Mdivi-1的最适浓度。每组设置3个重复,下同。

1.4 仔猪SCs存活状态观察

将细胞按密度8 000个/mL接种于24孔板,培养24 h后根据分组处理24 h,用磷酸盐缓冲液(PBS)洗涤1次细胞,根据Cytotoxicity Assay Kit说明书添加Calcein AM/PI检测工作液,37 ℃条件下避光孵育30 min,通过荧光光学显微镜观察细胞存活状态并拍照记录。

1.5 细胞超微结构、线粒体及内质网形态观察

将细胞按密度8 000个/mL接种于6孔板,培养24 h后根据分组处理24 h,PBS冲洗,离心后去上清,缓慢加入2.5%戊二醛;固定24 h后置于PBS 6 h,再转移至1%锇酸固定2 h;再将样本置于乙醇中进行梯度脱水、包埋、加热、切片和染色后用透射电子显微镜观察细胞、线粒体及内质网结构。

1.6 细胞凋亡率检测

取对数生长期的细胞,按每孔24万个细胞接种在6孔板,培养至融合率达到50%后,按照分组添加ZEA、DON及Mdivi-1处理24 h,采用Annexin V-FITC/PI试剂盒处理后1 h内用流式细胞仪检测细胞凋亡率。

1.7 内质网途径凋亡相关基因mRNA相对表达量测定

按上述方法接种细胞并处理24 h后,采用TRIzol法提取RNA,并使用PrimeScriptTM RT reagent Kit with gDNA Eraser合成cDNA。根据GenBank相关序列设计合成目的基因PERKATF4、CHOPeIF2α及内参基因磷酸甘油醛脱氢酶(GAPDH)的引物序列,引物序列见表1。实时荧光定量PCR(qRT-PCR)反应程序:95 ℃ 1 min,(95 ℃ 20 s,60 ℃ 1 min)×40个循环。采用2-△△Ct法计算目的基因mRNA相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
登录号
Accession number
上游引物
Forward primer
(5'—3')
下游引物
Reverse primer
(5'—3')
扩增物大小
Amplicon
size/bp
磷酸甘油醛脱氢酶
GAPDH
XM_021091114.1 TGACCCCTTCATT-
GACCTCC
CCATTTGATGTT-
GGCGGGAT
160
蛋白激酶R样内质网激酶
PERK
XM_003124925.4 TCTTGGTAGGG-
TCTGATGAA
GCTTGTAGTAT-
GGCAGGTAAT
132
活化转录因子4
ATF4
NM_001123078.1 AATGGCTAGCCG-
TGGATG
TCGAAGTCGAA-
CTCCTTCAG
112
CCAAT/增强子结合
蛋白同源蛋白
CHOP
XM_0056778.2 CTTCACCACTCTTG-
ACCCTG
CACTTTGTTT-
CCGTTTCCTG
170
真核生物翻译起始因子2α
eIF2α
XM_001928339.4 TTTGTAGTTCAG-
TGCCTCCA
GGTGACAATAA-
GGAAGAAGCCT
138

1.8 内质网途径凋亡相关蛋白相对表达量测定

按上述方法接种细胞并处理24 h后去除培养基,用PBS清洗1遍后加入RIPA快速裂解液,用枪吹打数下使细胞充分裂解,再以14 000×g离心10 min后收集上清液。按照BCA蛋白浓度测定试剂盒说明书测定蛋白浓度,将提取的蛋白样品煮沸8 min,十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)、转膜、封闭、孵一抗、洗膜、孵二抗、洗膜后进行凝胶成像。

1.9 数据处理

采用SPSS 20.0软件中的ANOVA程序进行方差分析,并采用LSD法进行显著性检验,P<0.05为差异显著,P<0.01为差异极显著;采用GraphPad Prism 9.0绘制柱状图。

2 结果与分析

2.1 ZEA与DON对仔猪SCs存活率的影响及Mdivi-1浓度的确定

图1-A所示,与对照相比,当ZEA+DON浓度为(30+0.8) μmol/L时,可极显著降低细胞存活率(P<0.01),且细胞存活率随着ZEA+DON浓度的升高而降低,呈剂量依赖性关系,并在ZEA+DON浓度为(30+1.2) μmol/L时,细胞存活率在50%附近,故选择ZEA+DON浓度为(30+1.2) μmol/L进行后续试验。
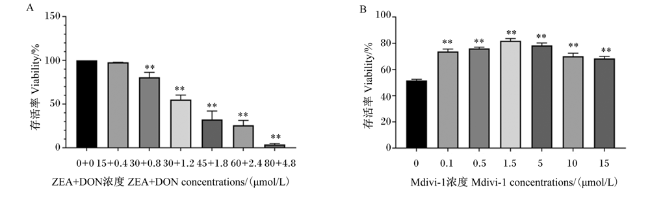
图1 不同浓度ZEA+DON对仔猪SCs存活率的影响

与对照处理相比,*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。下图同。

Fig.1 Effects of ZEA+DON at different concentrations on SCs viability in piglets

Compared with the control treatment, * represented significant difference (P<0.05), and ** represented extremely significant difference (P<0.01). The same as below.

图1-B所示,当Mdivi-1浓度为1.5 μmol/L时,对细胞基本无损伤作用,同时也能达到极显著缓解ZEA与DON对细胞的损伤作用(P<0.01),故选择此浓度进行后续试验。

2.2 仔猪SCs存活状态

采用钙黄绿素-AM(Calcein-AM)/PI染色检测ZEA与DON对仔猪SCs细胞死亡的影响。活细胞被非荧光Calcein-AM染成绿色,死亡细胞或细胞膜受损的细胞被PI染成红色。如图2所示,对照和Mdivi-1处理绿色荧光分布均匀且荧光较强;当细胞暴露于ZEA与DON中,红色荧光增强,表明ZEA与DON可致仔猪SCs死亡;当添加Mdivi-1预处理后,ZEA+DON+Mdivi-1处理红色荧光明显较少且绿色荧光增多,表明Mdivi-1能够缓解ZEA与DON引起的仔猪SCs死亡。
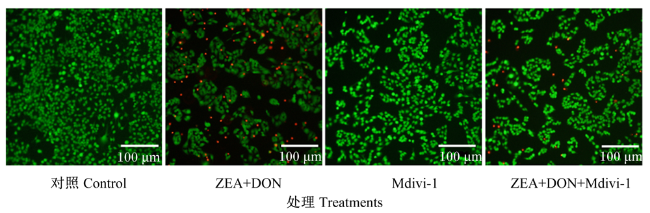
图2 仔猪SCs存活状态的变化

Fig.2 Changes of SCs survival status in piglets

2.3 仔猪SCs超微结构及内质网形态变化

图3所示,对照处理细胞饱满,线粒体嵴清晰可见,内质网数量较多且结构完整;Mdivi-1处理细胞较饱满,线粒体与内质网结构基本无损伤;ZEA+DON处理细胞破裂,染色质贴近核膜,核膜损伤,内质网断裂且边缘模糊,线粒体数量减少、肿胀并出现空泡变性;与ZEA+DON处理相比,ZEA+DON+Mdivi-1处理细胞凋亡有所缓解,线粒体结构较清晰,内质网断裂有所改善。
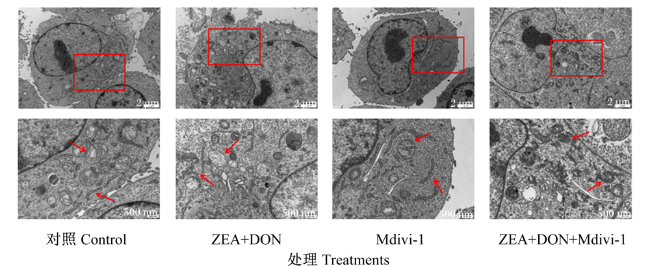
图3 仔猪SCs超微结构的变化

Fig.3 Changes of SCs ultrastructure in piglets

2.4 仔猪SCs凋亡率

图4所示,与对照处理相比,ZEA+DON处理细胞凋亡率极显著提高(P<0.01),Mdivi-1处理细胞凋亡率无明显差异(P>0.05);与ZEA+DON处理相比,ZEA+DON+Mdivi-1处理细胞凋亡率极显著降低(P<0.01)。
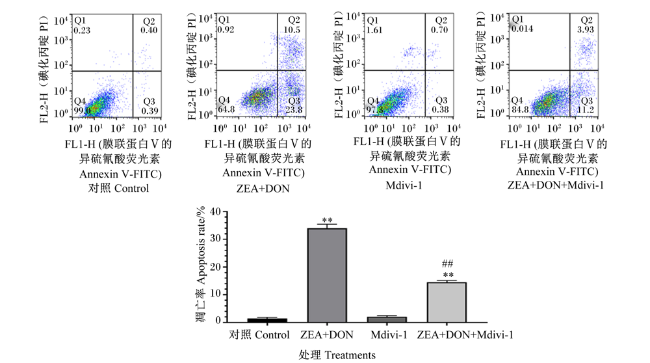
图4 仔猪SCs凋亡率

与ZEA+DON处理相比,#表示差异显著(P<0.05),##表示差异极显著(P<0.01)。下图同。

Fig.4 Apoptosis rate of SCs in piglets

Compared with the ZEA+DON treatment, # represented significant difference (P<0.05), and ## represented extremely significant difference (P<0.01). The same as below.

2.5 内质网途径凋亡相关基因mRNA相对表达量

在细胞中添加Mdivi-1,探究线粒体是否调控ZEA与DON诱导仔猪SCs的内质网途径凋亡,并通过qRT-PCR法分别检测内质网途径引起的凋亡相关基因的mRNA相对表达量,结果如图5所示。与对照处理相比,ZEA+DON处理PERKATF4、CHOPeIF2α mRNA相对表达量均极显著提高(P<0.01),而Mdivi-1处理各基因mRNA相对表达量无显著差异(P>0.05);但与ZEA+DON处理相比,ZEA+DON+Mdivi-1处理内质网途径凋亡相关基因mRNA相对表达量显著或极显著降低(P<0.05或P<0.01)。以上试验结果显示,线粒体参与了调控ZEA与DON诱导的仔猪SCs内质网途径凋亡。
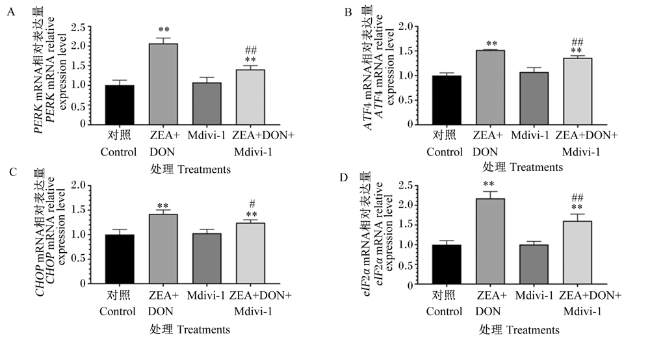
图5 仔猪SCs内质网途径凋亡相关基因mRNA相对表达量

Fig.5 mRNA relative expression levels of SCs endoplasmic reticulum pathway apoptosis-related genes in piglets

2.6 内质网途径凋亡相关蛋白相对表达量

Western blot结果如图6所示,与对照处理相比,ZEA+DON处理PERK、ATF4、CHOP和eIF2α蛋白相对表达量均极显著提高(P<0.01),而Mdivi-1处理各蛋白相对表达量均无显著差异(P>0.05);但与ZEA+DON处理相比,ZEA+DON+Mdivi-1处理内质网途径相关凋亡蛋白相对表达量均极显著降低(P<0.01)。以上试验结果再次验证,线粒体参与了调控ZEA与DON诱导的仔猪SCs内质网途径凋亡。
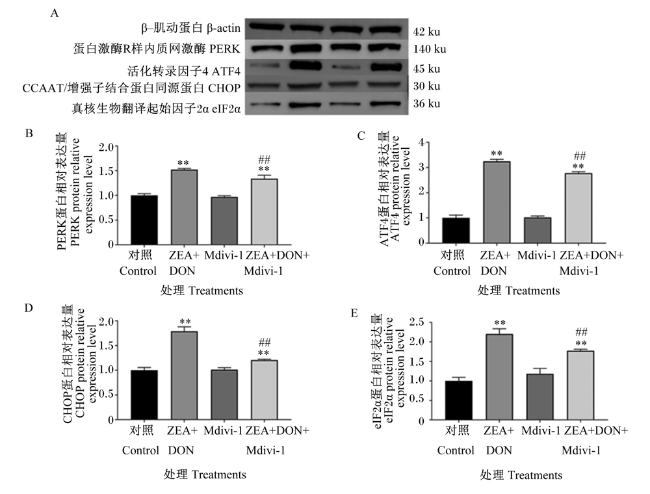
图6 仔猪SCs内质网途径凋亡相关蛋白相对表达量

Fig.6 Relative expression levels of SCs endoplasmic reticulum pathway apoptosis-related protein in piglets

3 讨论

目前,霉菌毒素是动物饲料安全的主要威胁之一,但由于霉菌毒素的叠加毒性和危害研究不多,导致其在畜牧业的危害常被忽视。其中,ZEA与DON对猪最为敏感,研究表明,ZEA与DON均可通过内质网应激(endoplasmic reticulum stress,ERS)引起生殖细胞凋亡。王宗捷等[14]在ZEA处理的山羊子宫内膜基质细胞中添加ERS特异性抑制剂4-苯基丁酸(4-PBA),可显著其凋亡率;此外,Fu等[15]发现,4-PBA可显著降低ZEA诱导的奶牛乳腺上皮细胞凋亡;DON刺激导致ERS相关蛋白的丰度增加,从而诱导刺激牛卵巢卵膜细胞凋亡[16];Wang等[17]发现,蒲公英甾醇可缓解DON诱导牛乳腺上皮细胞ERS引起的凋亡。本试验以仔猪SCs为模型,用ZEA与DON联合染毒仔猪SCs后,凋亡率极显著上升,且ERS引起的凋亡基因PERKATF4、CHOPeIF2α mRNA相对表达量和PERK、ATF4、CHOP、eIF2α蛋白相对表达量均极显著上调,这表明ZEA与DON诱导仔猪SCs通过ERS引起凋亡,试验结果与上述报道保持一致。
细胞器互作是近年来细胞生物学的研究热点之一。内质网是真核细胞里最大的细胞器,弥散分布在整个胞质区域,在细胞蛋白质和脂质的合成、钙信号调控等过程中发挥了重要的作用[18]。当内质网腔内错误折叠的蛋白质堆积,内质网的蛋白质折叠需求被淹没时,内质网就会发生应激。ERS通过减少蛋白质翻译,启动未折叠蛋白反应(UPR)来恢复体内平衡,如果细胞受到不可修复的损伤,则启动细胞凋亡[19]。线粒体是细胞中制造能量的主要结构,是细胞进行有氧呼吸的主要场所。线粒体和内质网之间存在动态的膜接触位点,即MAM,MAM上存在着多种跨膜蛋白,在线粒体和内质网之间搭建了一个复杂的物理空间结构,此结构为线粒体和内质网之间的相互调节提供了平台[20]。MAM的作用不可忽视,其参与调控ERS、钙稳态、胆固醇和磷脂代谢、线粒体功能和动力学以及细胞凋亡等[21-22]。有研究表明,线粒体和内质网可以通过耦联区域互相传递凋亡信号[12-13]。比如,抑制ERS可以影响线粒体融合和分裂,导致线粒体抗凋亡性增强[23];Wu等[24]发现,线粒体分裂导致ERS凋亡关键蛋白CHOP和裂解的半胱氨酸天冬氨酸蛋白酶-3(Caspase-3)水平均显著提高,从而诱导ERS引起细胞凋亡;Xie等[25]通过添加Mdivi-1抑制ERS标志物葡萄糖调节蛋白78(GRP78)、CHOP表达及Caspase-3的激活降低海马神经元凋亡率。因此,本试验以仔猪SCs为模型,采用ZEA与DON联合染毒仔猪SCs,并添加Mdivi-1,结果显示Mdivi-1可以缓解ZEA与DON联合染毒仔猪SCs引起的细胞超微结构、线粒体和内质网损伤,显著或极显著降低ERS引起的凋亡基因PERKATF4、CHOPeIF2α mRNA相对表达量和PERK、ATF4、CHOP、eIF2α蛋白相对表达量以及细胞凋亡率的提高,表明线粒体可能通过干扰ERS凋亡通路,参与ZEA与DON联合染毒诱导仔猪SCs凋亡,这与上述报道保持一致。

4 结论

添加ZEA与DON染毒仔猪SCs可引起内质网途径凋亡,而添加Mdivi-1后可明显缓解细胞超微结构及线粒体和内质网的损伤,极显著降低细胞凋亡率,显著或极显著下调内质网途径凋亡相关基因和蛋白的表达。结果提示,线粒体作为内质网途径凋亡的上游参与了ZEA与DON联合染毒诱导的仔猪SCs凋亡,干预该过程可以为霉菌毒素生殖毒性危害的解除提供新思路。
[1]
RAI A, DAS M, TRIPATHI A. Occurrence and toxicity of a fusarium mycotoxin,zearalenone[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(16):2710-2729.

DOI

[2]
杨玉婷, 赵世姣, 程永超. 霉菌毒素危害及其防除[J]. 青海畜牧兽医杂志, 2017, 47(6):60-64.

YANG Y T, ZHAO S J, CHENG Y C. Mycotoxin harm and its prevention[J]. Chinese Qinghai Journal of Animal and Veterinary Sciences, 2017, 47(6):60-64. (in Chinese)

[3]
YAN R, WANG H L, ZHU J N, et al. Procyanidins inhibit zearalenone-induced apoptosis and oxidative stress of porcine testis cells through activation of Nrf2 signaling pathway[J]. Food and Chemical Toxicology, 2022, 165:113061.

DOI

[4]
CAO L, ZHAO J, MA L, et al. Lycopene attenuates zearalenone-induced oxidative damage of piglet Sertoli cells through the nuclear factor erythroid-2 related factor 2 signaling pathway[J]. Ecotoxicology and Environmental Safety, 2021, 225:112737.

DOI

[5]
LEE R, KIM D W, LEE W Y, et al. Zearalenone induces apoptosis and autophagy in a spermatogonia cell line[J]. Toxins, 2022, 14(2):148.

DOI

[6]
YANG J H, WANG J H, GUO W B, et al. Toxic effects and possible mechanisms of deoxynivalenol exposure on sperm and testicular damage in BALB/c mice[J]. Journal of Agricultural and Food Chemistry, 2019, 67(8):2289-2295.

DOI

[7]
WANG X C, XU W, FAN M X, et al. Deoxynivalenol induces apoptosis in PC12 cells via the mitochondrial pathway[J]. Environmental Toxicology and Pharmacology, 2016, 43:193-202.

DOI PMID

[8]
SAVARD C, NOGUES P, BOYER A, et al. Prevention of deoxynivalenol- and zearalenone-associated oxidative stress does not restore MA-10 Leydig cell functions[J]. Toxicology, 2016, 341/343:17-27.

DOI

[9]
朱雷, 贾北平, 曹利, 等. ZEA与DON单一及联合染毒致仔猪睾丸支持细胞凋亡的影响[J]. 浙江农业学报, 2020, 32(11):1954-1962.

DOI

ZHU L, JIA B P, CAO L, et al. Effect of Sertoli cells apoptosis in piglets induced by single or combined administration of zearalenone and deoxynivalenol[J]. Acta Agriculturae Zhejiangensis, 2020, 32(11):1954-1962. (in Chinese)

DOI

[10]
杨梅桂, 郑凯, 宋质银. 线粒体-内质网相互作用机制、功能及其与相关疾病的关系研究进展[J]. 新乡医学院学报, 2020, 37(10):996-1000.

YANG M G, ZHENG K, SONG Z Y. Research progress on the mechanism and function of mitochondria-endoplasmic reticulum interaction and its relationship with related diseases[J]. Journal of Xinxiang Medical University, 2020, 37(10):996-1000. (in Chinese)

[11]
VANCE J E. Phospholipid synthesis in a membrane fraction associated with mitochondria[J]. The Journal of Biological Chemistry, 1990, 265(13):7248-7256.

DOI

[12]
SIMMEN T, ASLAN J E, BLAGOVESHCHENSKAYA A D, et al. PACS-2 controls endoplasmic reticulum-mitochondria communication and Bid-mediated apoptosis[J]. The EMBO Journal, 2005, 24(4):717-729.

DOI

[13]
IWASAWA R, MAHUL-MELLIER A L, DATLER C, et al. Fis1 and Bap31 bridge the mitochondria-ER interface to establish a platform for apoptosis induction[J]. The EMBO Journal, 2011, 30(3):556-568.

DOI

[14]
王宗捷, 张瑞雪, 刘守勤, 等. 玉米赤霉烯酮诱导山羊子宫内膜基质细胞凋亡的研究[J]. 畜牧兽医学报, 2021, 52(2):535-542.

WANG Z J, ZHANG R X, LIU S Q, et al. The apoptotic effect of zearalenone on goat endometrial stromal cells[J]. Acta Veterinaria Et Zootechnica Sinica, 2021, 52(2):535-542. (in Chinese)

[15]
FU Y R, JIN Y C, ZHAO Y, et al. Zearalenone induces apoptosis in bovine mammary epithelial cells by activating endoplasmic reticulum stress[J]. Journal of Dairy Science, 2019, 102(11):10543-10553.

DOI PMID

[16]
GUERRERO-NETRO H M, ESTIENNE A, CHORFI Y, et al. The mycotoxin metabolite deepoxy-deoxynivalenol increases apoptosis and decreases steroidogenesis in bovine ovarian theca cells[J]. Biology of Reproduction, 2017, 97(5):746-757.

DOI

[17]
WANG J X, ZHENG K X, JIN Y C, et al. Protective effects of taraxasterol against deoxynivalenol-induced damage to bovine mammary epithelial cells[J]. Toxins, 2022, 14(3):211.

DOI

[18]
颜冰, 胡俊杰. 内质网相关细胞器互作的研究进展[J]. 中国细胞生物学学报, 2019, 41(2):175-184.

YAN B, HU J J. Advances in the organelle interactions connected by endoplasmic reticulum associated[J]. Chinese Journal of Cell Biology, 2019, 41(2):175-184. (in Chinese)

[19]
SIMS S G, CISNEY R N, LIPSCOMB M M, et al. The role of endoplasmic reticulum stress in astrocytes[J]. Glia, 2022, 70(1):5-19.

DOI

[20]
刘慧宇, 李汶, 刘子璇, 等. 线粒体相关内质网膜调控糖尿病胰岛β细胞内质网应激机制的探讨[J]. 激光生物学报, 2022, 31(2):97-103.

LIU H Y, LI M, LIU Z X, et al. discussion on the pathogenesis of type 2 diabetes:mitochondria-associated ER membranes regulates endoplasmic reticulum stress in islet β cell[J]. Acta Laser Biology Sinica, 2022, 31(2):97-103. (in Chinese)

[21]
PERA M, MONTESINOS J, LARREA D, et al. MAM and C99,key players in the pathogenesis of Alzheimer’s disease[J]. International Review of Neurobiology, 2020, 154:235-278.

[22]
AREA-GOMEZ E, DEL CARMEN LARA CASTILLO M, TAMBINI M D, et al. Upregulated function of mitochondria-associated ER membranes in Alzheimer disease[J]. The EMBO Journal, 2012, 31(21):4106-4123.

DOI

[23]
DROMPARIS P, PAULIN R, SUTENDRA G, et al. Uncoupling protein 2 deficiency mimics the effects of hypoxia and endoplasmic reticulum stress on mitochondria and triggers pseudohypoxic pulmonary vascular remodeling and pulmonary hypertension[J]. Circulation Research, 2013, 113(2):126-136.

DOI PMID

[24]
WU Y, YAO Y M, KE H L, et al. Mdivi-1 protects CD4+ T cells against apoptosis via balancing mitochondrial fusion-fission and preventing the induction of endoplasmic reticulum stress in sepsis[J]. Mediators of Inflammation, 2019, 2019:7329131.

[25]
XIE N C, WANG C, WU C J, et al. Mdivi-1 protects epileptic hippocampal neurons from apoptosis via inhibiting oxidative stress and endoplasmic reticulum stress in vitro[J]. Neurochemical Research, 2016, 41(6):1335-1342.

DOI

Outlines

/