REVIEW

Research Progress of MicroRNA Regulating Placenta Development in Sows

  • CHANG Junlei ,
  • PAN Xujing ,
  • WU De ,
  • XU Shengyu , *
Expand
  • Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 611130, China
* associate professor, E-mail:

Received date: 2022-07-31

  Online published: 2023-02-13

Abstract

MicroRNA (miRNA) is an endogenous non-coding small RNA, which exists in animals, plants and viruses, and participates in various physiological processes mainly by regulating the translation and mRNA stability of target genes. The placenta is a temporary endocrine organ that exists during pregnancy in mammals and is essential for the development of the fetus. The development of the sow’s placenta not only affects the development of fetus or, but also causes a certain loss of production efficiency. Some studies have shown that miRNA has important regulatory roles in mammalian placental trophoblast cells and angiogenesis. In present review, we summarized the biosynthesis and functions of miRNA, as well as the current regulatory effects of miRNA on placenta development in sows, in order to provide theoretical references for improving sow reproductive performance and production efficiency.

Cite this article

CHANG Junlei , PAN Xujing , WU De , XU Shengyu . Research Progress of MicroRNA Regulating Placenta Development in Sows[J]. Chinese Journal of Animal Nutrition, 2023 , 35(2) : 718 -726 . DOI: 10.12418/CJAN2023.069

微小RNA(microRNA,miRNA)是一类非编码RNA基因,是一种大小约22 nt的功能性RNA分子。自miRNA发现以来,科学家们通过分子克隆和生物信息学等方法在植物、动物和病毒中发现了数百个miRNA,并且在理解其结构、调节和作用机制方面取得了许多新进展。miRNA已经被确定为调控基因表达的主要调控因子,并且其参与动物体内许多生理过程[1]。据报道,人类基因组中已鉴定出约800个miRNA基因,它们可调控哺乳动物细胞中多达50%的蛋白质编码基因[2]。可见,miRNA在哺乳动物生长发育的过程中作用是至关重要的。胎盘是哺乳动物胚胎生存和发育必不可少的一个暂时性器官。胎盘是胎儿和母体之间营养物质、氧气和废物交换的主要界面[3-4]。此外,胎盘还是妊娠相关激素和生长因子的重要来源,并参与胎儿的免疫保护,对胎儿的生长发育至关重要[5]。因此,一旦胎盘发育障碍或出现缺陷,必将影响胚胎的发育,并会引发一些疾病,例如先兆子痫、子宫内生长受限和流产等[6-7]。胎盘是由滋养层干细胞分化而来,且胎盘的主要结构成分为滋养层。胎盘的正常发育需要许多信号分子,包括miRNA、生长因子和激素的精确调节。越来越多的证据表明,miRNA在调节胎盘发育的许多关键过程中起着重要作用,例如miRNA参与调控滋养层细胞的增殖、分化和迁移以及胎盘血管生成等过程[8],进而调控胎盘的发育。因此,本文综述了miRNA的合成、作用机制以及其对母猪胎盘发育的调控作用,以期为提高母猪繁殖力提供新的研究思路。

1 miRNA的合成与作用机制

1.1 miRNA的合成
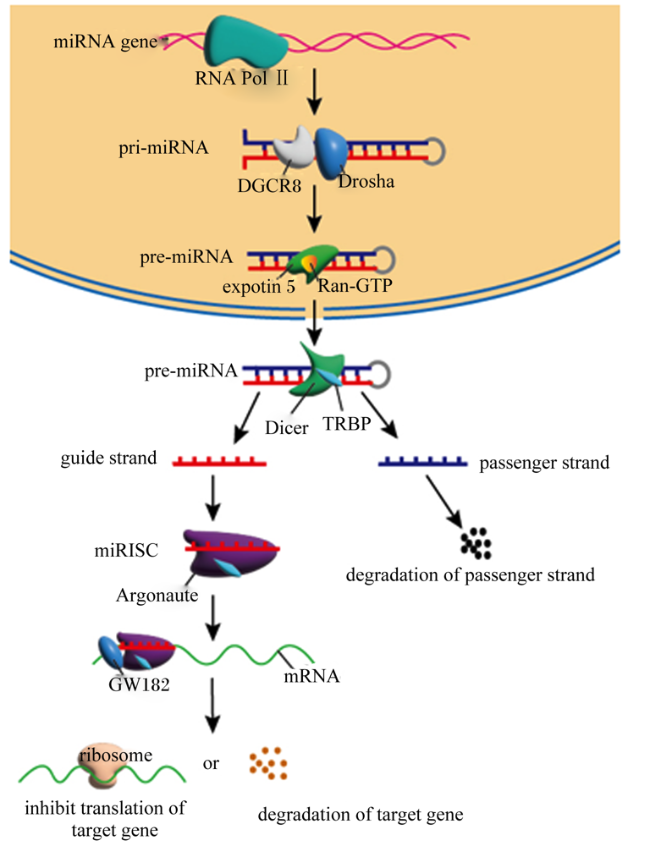
对于动物来说,大多数miRNA是由独立基因的RNA聚合酶Ⅱ(RNA polymerase Ⅱ,RNAPⅡ)特异性转录而来的[9]。在RNAPⅡ途径中(图1),RNAPⅡ先转录得到初级miRNA(primary miRNA,pri-miRNA),其大小从数百个核苷酸到几千个碱基不等[10];然后,pri-miRNA加工分2步进行,首先在细胞核内由一种微处理复合蛋白处理,其核心成分是Drosha和DGCR8,该复合物将pri-miRNA加工成约70个核苷酸的前体miRNA(previous miRNA,pre-miRNA)[11-12];pre-miRNA生成后,会被通道蛋白5(exportin 5)所识别,然后通过GTP酶Ran(Ran-GTP)依赖机制转运到细胞质中[13-15]。在细胞质中,由TAR RNA结合蛋白(TRBP)的协助,Dicer在细胞质中切割pre-miRNA产生约20 bp的双链miRNA,miRNA双链中的一条即引导链(guide strand)优先并入miRNA诱导沉默复合物(miRNA induced silencing complex,miRISC)中发挥作用,而另一条链即乘客链(passenger strand)通常被降解[16]。引导链一般是miRNA双链中碱基配对不太稳定的5'端的那条链[12];乘客链也并不总是miRNA生成的副产物,也可以被加载到miRISC中,作为miRNA发挥作用[17-18]
图1 miRNA的合成及其作用机制(根据参考文献[16]修改)

miRNA gene:微小RNA基因 microRNA gene;RNA Pol Ⅱ:RNA聚合酶Ⅱ RNA polymerase Ⅱ;pri-miRNA:初级miRNA primary miRNA;expotin 5:通道蛋白5;Ran-GTP:GTP酶Ran GTPase Ran;pre-miRNA:前体miRNA previous miRNA;TRBP:TAR RNA结合蛋白TAR RNA binding protein;guide strand:引导链;passenger strand:乘客链;miRISC:miRNA诱导沉默复合物 miRNA induced silencing complex;Argonaute:AGO蛋白 AGO protein;degradation of passenger strand:乘客链降解;GW182:182 kDa的甘氨酸色氨酸蛋白 182 kDa glycine-tryptophan protein;ribosome:核糖体;mRNA:miRNA靶向的信使RNA miRNA targeted messenger RNA;inhibit translation of target gene:抑制靶基因的翻译;degradation of target gene:靶基因的降解。

Fig.1 Synthesis and mechanism of miRNA(modified from the reference [16])

1.2 miRNA的作用机制

大多数关于miRNA的研究表明,miRNA通过与靶基因的3'非翻译区(untranslated region,UTR)处的靶基因结合位点结合以抑制其表达。研究表明,miRNA一旦整合到miRISC中,miRNA就通过碱基配对作用将miRISC引导至其靶基因靶点,miRISC通过识别靶基因上的miRNA反应元件(miRNA response element,MRE)的序列并与其结合,然后miRISC发挥功能[16]。MRE通常位于动物的3' UTR,位于植物mRNA的编码区[19]。miRNA的作用通常是降低靶蛋白的表达,以及降解mRNA(图1)。此外,miRNA还具有诱导脱帽、诱导去烯基化、改变Cap蛋白结合、减少核糖体占有率以及从翻译机制分离mRNA等作用[20]。研究表明,这些机制大多数是通过miRNA降低靶mRNA的表达水平来介导的[21]
关于miRISC的组成也有相关的研究。AGO蛋白(Argonaute)与miRNA直接相关,是miRISC的核心成分[22]。哺乳动物细胞中含有AGO蛋白的miRISC遇到与miRNA几乎完全互补的miRNA MRE时,完全互补的miRNA MRE会促进AGO蛋白2核酸内切酶的活性和靶向mRNA分子的切割,从而导致这些mRNA被内切并降解[8,23-24]。此外,182 kDa的甘氨酸色氨酸蛋白(GW182)也是miRISC的核心成分,与AGO蛋白相互作用并在其下游发挥作用[25]。研究表明,同一个miRNA可以调控多个甚至数百个靶基因,而多个miRNA也可以共同调控同一个靶基因,从而形成了一个复杂的miRNA调控网络[19]。大多数研究中,miRNA是通过与靶mRNA的3' UTR处的MRE结合;但是也有研究表明,miRNA也可以与5' UTR处的MRE结合,通过mRNA特异性机制促进或抑制翻译[26-27]

2 母猪胎盘的发育

胎盘是哺乳动物胎儿和母体进行物质交换的特殊结构,由胎盘的母体部分和胎儿部分所组成。按照母体与胎儿的物质交换方式,胎盘可分为上皮绒毛膜型、结缔绒毛膜型、内皮绒毛膜型、血窦绒毛膜型和血窦内皮型[28]。母猪胎盘属于上皮绒毛膜型胎盘,其有一个绒毛状的表面,紧密排列的微绒毛覆盖整个绒毛膜表面。研究表明,猪胎盘的结构和功能不仅对胎儿的生长和存活产生影响,也可能对产仔数产生影响[29]。由此可见,胎盘的发育对早期胚胎的发育及其繁殖性能是至关重要的。有研究表明,母猪胎盘在妊娠13~14 d的时候开始形成,此时胚胎滋养层上皮逐渐与母体的子宫内膜上皮相互黏附,形成滋养层-子宫内膜双上皮细胞层[30];在妊娠的27~32 d,胎盘已基本形成,并开始出现大量的微血管[31]。在妊娠的30~60 d,发生绒毛膜和尿囊的融合;在妊娠的60~70 d,胎盘在重量、表面积和胎盘乳晕数量方面已经完全发育,从而为胎儿妊娠后期的生长发育做好准备[32]

3 miRNA对滋养层细胞的调控

3.1 miRNA对滋养层细胞增殖和分化的作用

3.1.1 附着过程

在母猪妊娠过程中,胚胎的附植期大约发生在妊娠12~30 d,胚胎附植的失败是胎儿早期死亡的原因之一,会对生产产生很大的影响。在附植过程中,需要滋养层细胞的迁移、增殖等过程,从而才能使得胚胎与子宫建立组织及生理联系。研究发现,miR-26a-5p可通过抑制SMAD家族成员1(SMAD family member 1,SMAD1)信号分子刺激猪妊娠期间滋养层细胞的增殖,并减弱其与层黏连蛋白之间的亲和力,而miR-125b-5可以通过抑制信号转导及转录激活蛋白3(signal transducer and activator of transcription 3,STAT3)、成纤维细胞生长因子受体2(fibroblast growth factor receptor 2,FGFR2)、白细胞介素-6受体(interleukin-6 receptor,IL-6R)和白血病抑制因子受体(leukemia inhibitory factor receptor,LIFR)基因表达降低猪滋养层细胞的迁移,进而调控胎儿附植过程(表1[33]。此外,Hu等[34]对母猪胎儿附植时期子宫腔液的研究发现,子宫腔液中富含的外囊泡中miRNA不仅调节滋养层细胞的迁移和增殖,而且还参与免疫反应相关的通路。这表明miRNA通过调节滋养层细胞的生理活动,以及调控免疫反应以维持正常妊娠。在人上的研究也发现,miR-149通过靶向调控人子宫内膜和基质细胞内的多腺苷二磷酸核糖聚合酶2[poly (ADP-ribose) polymerase 2,PARP2],从而调控滋养层细胞对子宫内膜的贴附过程,进而影响胎儿的附着[35]。综上所述,miRNA可以通过调节胎儿附植期间滋养层的增殖和迁移以及调控免疫反应,从而促进胎儿与母体子宫内膜建立生理联系,从而有利于胎儿的附植。
表1 miRNA作用靶基因及其作用

Table 1 Target genes of miRNA and their effects

miRNA种类
miRNA species
靶基因
Target genes
作用
Effects
参考文献
References
miR-26a-5p SMAD1 刺激猪滋养层细胞的增殖,减弱其与层
黏连蛋白之间的亲和力
[33]
miR-125b-5 STAT3、FGFR2、
IL-6RLIFR
降低猪滋养层细胞的迁移 [33]
miR-149 PARP2 抑制人滋养层细胞对子宫内膜的贴附 [35]
miR-18a CDC42 抑制人类滋养层细胞侵袭 [41]
miR-290簇 miR-290 cluster P21、P27和WEE1 促进小鼠滋养层干细胞的增殖 [43]
miR-322簇 miR-322 cluster cyclin E1、CDC25B 减少小鼠滋养层干细胞的增殖,诱导其分化 [43]
miR-365-3p PLET1 调控猪滋养层干细胞的分化 [44]
miR-92a-1-5p EGF 促进人滋养层细胞的侵袭 [48]
miR-141-3p
miR-200a-3p
IGF 抑制小鼠滋养层干细胞中蛋白激酶B的激活 [50]
miR-124-3p PLGF 促进人滋养层细胞的焦亡,抑制迁移和侵袭 [51]
miR-16 VEGF 抑制小鼠胎盘血管发育 [54]
miR-150-5p 抑制人胎盘血管发育 [59]
miRNA种类
miRNA species
靶基因
Target genes
作用
Effects
参考文献
References
miR-21 PTEN 促进人内皮细胞的增殖、迁移和血管的形成 [61]
miR-221 Angpl2 抑制猪胎盘血管的生成 [62]
miR-21 PDCD4 维持小鼠造血干细胞的稳态和功能 [65]
miR-646 VEGF-A 抑制人内皮祖细胞的增殖、分化和迁移 [66]

SMAD1:SMAD家族成员1 SMAD family member 1;STAT3:抑制信号转导及转录激活蛋白3 signal transducer and activator of transcription 3;FGFR2:成纤维细胞生长因子受体2 fibroblast growth factor receptor 2;IL-6R:白细胞介素-6受体 interleukin-6 receptor;LIFR:白血病抑制因子受体 leukemia inhibitory factor receptor;PARP2:多腺苷二磷酸核糖聚合酶2 poly (ADP-ribose) polymerase 2;CDC42:细胞分裂周期蛋白42 cell division cycle 42;cyclin E1:细胞周期蛋白E1;CDC25B:细胞分裂周期蛋白25B cell division cycle 25B;PLET1:胎盘表达转录本1 placenta-expressed transcript 1;EGF:表皮生长因子 epidermal growth factor;IGF:胰岛素样生长因子 insulin-like growth factor;PLGF:胎盘生长因子 placental growth factor;VEGF:血管内皮生长因子 vascular endothelial growth factor;PTEN:磷酸酯酶与张力蛋白同源物 phosphatase and tensin homolog;Angpl2:血管生成素样蛋白2 angiopoietin-like protein 2;PDCD4:程序性细胞死亡因子4 programmed cell death 4;VEGF-A:血管内皮生长因子A vascular endothelial growth factor A。

3.1.2 胎盘发育过程

滋养层细胞不仅参与胎儿附着过程,也参与胎盘的发育。母猪妊娠过程中,胎儿滋养层细胞与母体子宫内膜上皮细胞相互黏附,形成的双上皮细胞层称为胎盘褶皱[30]。随着妊娠的进行,褶皱的面积以及深度在不断加大加深,从而增加子宫内膜和胎盘绒毛膜上皮之间的接触表面积,以扩大母体与胎儿营养物质交换的面积[29],更有利于胎儿的发育。研究发现,猪胎盘的褶皱在妊娠25~30 d时开始形成,滋养层细胞表现出很高的增殖活性;在妊娠50 d左右时,已基本形成规则的褶皱,此时滋养层细胞处于较低的增殖活性[36-37]。Vallet等[37]提出,胎盘褶皱的发育是由于滋养层细胞向基质的迁移。由此可见,滋养层细胞是猪胎盘褶皱发育的关键。刘睿泽[38]对比妊娠26和50 d即胎盘褶皱形成阶段发现miR-205、miR-24等13个差异表达的miRNA,其中miR-27a、miR-30a等9个miRNA在妊娠26 d时的表达水平显著低于妊娠50 d时的表达水平,而miR-122、miR-17等4个miRNA在妊娠26 d的表达水平显著高于妊娠50 d时的表达水平,并且发现这些差异表达的miRNA的靶基因主要参与细胞增殖、细胞黏附和组织发育等与胎盘褶皱形成和发育相关的通路中。与此同时,对猪妊娠30和90 d胎盘的miRNA研究发现,差异表达的miR-125b、miR-106a等7个miRNA的靶基因主要参与黏附连接、Wnt以及丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)等信号通路,这些通路已被证明在滋养层细胞分化和血管发育中具有重要作用[39]。综上所述,这说明在猪妊娠时miRNA的表达水平随着母猪胎盘发育的进行而变化,进而在不同妊娠阶段调控其相关通路中相应的靶基因蛋白,从而对胎盘的发育起到一定的调控作用。
细胞分裂周期蛋白42(cell division cycle 42,CDC42)是小G蛋白Rho亚家族的一员,在细胞间黏附和细胞迁移过程中起重要作用[40]。Liu等[41]研究发现,miR-18a通过调节CDC42的表达水平从而调控猪胎盘褶皱的发育,并且miR-18a与CDC42的结合位点与母猪产仔数有关。此外,也有研究表明,当miR-18a表达量下降时,会导致人类滋养层细胞侵袭减少,细胞凋亡增加[42]。由此可以得出miR-18a不仅可以通过调控CDC42的表达水平参与胎盘发育,也可以通过调控滋养层细胞的生理活动进而对胎盘发育产生影响。滋养层干细胞的分化是胎盘发育的关键。有研究表明,miR-290簇可以通过抑制细胞周期抑制因子P21、P27和WEE1促进小鼠滋养层干细胞的增殖;而miR-322簇通过抑制细胞周期蛋白E1(cyclin E1)、细胞分裂周期蛋白25B(cell division cycle 25B,CDC25B),从而减少滋养层干细胞的增殖,诱导其分化[43]。胎盘表达转录本1(placenta-expressed transcript 1,PLET1)基因是猪胎盘滋养层细胞独特的标记物,在猪胎盘中,仅限于在滋养层细胞中表达[44]。研究证实,过度表达的PLET1还可以促进滋养层干细胞向滋养层巨细胞的分化,而抑制PLET1可以诱导合胞体滋养层的形成[45]。研究表明,miR-365-3p通过调节猪胎盘中PLET1基因的表达水平,从而调控猪滋养层干细胞的分化[44]。综上所述,miRNA可以通过调控胎盘发育中一些关键基因的表达水平,进而调控滋养层细胞增殖分化等生理过程,进而调控胎盘发育。

3.2 miRNA对滋养层细胞分泌生长因子的作用

妊娠早期,胚胎滋养层细胞可以分泌多种与胎盘发育相关的生长因子,如表皮生长因子(epidermal growth factor,EGF)、胰岛素样生长因子(insulin-like growth factor,IGF)和胎盘生长因子(placental growth factor,PLGF)等[28,46]。滋养层分泌的生长因子对维持妊娠、调控胎儿发育以及胎盘发育是极其重要的。研究表明,EGF可以促进猪滋养外胚层细胞的增殖、迁移,从而促进猪胚胎在子宫的附植[47]。Malik等[48]研究证明,过表达的miR-92a-1-5p会抑制EGF刺激人滋养层细胞的侵袭作用。IGF-2可以促进滋养层细胞增殖,促进胎盘的发育和功能[49]。研究表明,miR-141-3p和miR-200a-3p可以下调小鼠胎盘中IGF-2的表达和抑制小鼠滋养层干细胞中Wnt的激活,从而抑制胎盘的发育[50]。此外,子痫前期的患者胎盘中miR-124-3p表达量显著高于正常孕妇,且miR-124-3p可以通过靶向调控PLGF导致滋养层细胞的焦亡、迁移和侵袭[51]。目前关于miRNA对猪滋养层细胞分泌因子调控的研究很少,但是通过小鼠、人上的研究可以看出,miRNA可以通过调控滋养层细胞分泌EGF、IGF和PLGF等生长因子,从而调控胎盘的发育。

4 miRNA对胎盘血管发育的调控

胎盘是一种富含血管的器官,其血管的发育可以直接影响到子宫和脐带的血流速度,因此血管的发育是保证胎盘功能和胎儿发育的关键[52]。胎盘血管生成异常会导致胎儿宫内生长迟缓[53]、流产[54]和子痫[55]等疾病。因此胎盘血管的生成会直接影响到胎儿妊娠期间的发育以及出生后的生长。

4.1 miRNA对血管内皮生长因子(vascular endothelial growth factor,VEGF)的调控

VEGF是血管发育中重要的调节因子。研究表明,胎盘中VEGF mRNA水平与胎盘子宫内膜血管化呈正相关[56]。Guimarães等[57]研究证明,猪胎盘血管在妊娠80 d时发育完善,之后血管直径会有增加,并且VEGF与胎盘效率、血管化和血管通透性相关,可以刺激养分从母体向胎儿的转移。此外,低出生重仔猪的胎盘中VEGF-A的蛋白水平显著下降[58]。对妊娠小鼠研究发现,miR-16水平会影响胎盘和胚胎的重量、子代数量和微血管密度,并导致反复流产,并且miR-16表达上调会抑制VEGF的表达,进而导致胎盘血管发育受阻[54]。也有研究发现,子痫患者胎盘中的miR-150-5p表达水平显著高于正常孕妇,且抑制miR-150-5p可以上调VEGF的表达水平[59],因此可以推测子痫患者miR-150-5p可以抑制胎盘血管发育,从而影响妊娠期胎儿的发育。STAT3是VEGF-A重要的调控因子,STAT3可以转录激活VEGF-A以促进血管生成[60]。Chen等[61]研究表明,血管生成素Ⅱ(angiotensin Ⅱ,AngⅡ)可以通过激活STAT3上调内皮细胞中miR-21的表达,miR-21可通过直接靶向抑制磷酸酯酶与张力蛋白同源物(phosphatase and tensin homolog,PTEN)表达,从而增加内皮细胞的增殖、迁移和血管的形成。除了VEGF外,miRNA对其他血管生成因子也有调控作用。肥胖母猪脂肪组织分泌的外泌体中的miR-221通过调控血管生成素样蛋白2(angiopoietin-like protein 2,Angpl2)来抑制血管的生成[62]。这说明肥胖母猪可能会损害胎盘的血管发育从而导致胎儿宫内生长迟缓和仔猪初生重较低。由此可见,胎盘血管的发育与胎儿的发育是息息相关的,miRNA通过调控VEGF的表达,进而调控妊娠期胎盘血管的发育。

4.2 miRNA对造血干细胞的调控

胎盘血管的生成需要造血干细胞的参与,造血干细胞会分化成血管内皮祖细胞和血管母细胞,从而参与血管的生成[63]。Crisafulli等[64]研究证实,miR-127-3p可以限制造血干细胞的分化,进而维持造血干细胞的稳态。此外也有研究也表明,miR-21通过调节程序性细胞死亡因子4(programmed cell death 4,PDCD4)介导的核因子-κB(NF-κB)途径参与维持造血干细胞的稳态和功能[65]。妊娠过程中,造血干细胞稳态一旦被破坏,会直接影响到胎盘血管的发育进而会影响到胎儿对营养物质的吸收。对子痫前期患者研究发现,miR-646通过靶向调控VEGF-A抑制内皮祖细胞的增殖、分化和迁移,进而抑制血管生成[66],这说明miRNA表达异常会直接影响到血管生成,这可能也是子痫患者影响胎儿发育的重要原因。

5 小结与展望

综上所述,miRNA作为一类小分子的核苷酸,通过调控特定靶基因蛋白的表达参与母猪妊娠期滋养层细胞增殖、分化和迁移过程,以及通过调控滋养层分泌的各种生长因子和胎盘血管的形成和发育等生理活动,从而调节妊娠期母猪胎盘的发育。母猪胎盘的发育对于胎儿发育和母猪繁殖能力的影响是直接与实际生产相关的,miRNA水平可以间接反映母猪的生理状态。但是现有研究对miRNA在母猪妊娠不同阶段、不同营养水平和不同胎次等方面的研究较少。未来可以通过研究不同条件下miRNA的水平,进而通过营养或分子手段改善母猪不同时期的miRNA水平,使其达到更好的生理状态,从而更好的挖掘母猪的繁殖潜力,提高生产性能,产生更高的经济效益。
[1]
JONAS S, IZAURRALDE E. Towards a molecular understanding of microRNA-mediated gene silencing[J]. Nature Reviews Genetics, 2015, 16(7):421-433.

DOI PMID

[2]
PAGER C T, WEHNER K A, FUCHS G, et al. MicroRNA-mediated gene silencing[J]. Progress in Molecular Biology and Translational Science, 2009, 90:187-210.

DOI PMID

[3]
CHUCRI T M, MONTEIRO J M, LIMA A R, et al. A review of immune transfer by the placenta[J]. Journal of Reproductive Immunology, 2010, 87(1/2):14-20.

DOI

[4]
MALTEPE E, FISHER S J. Placenta:the forgotten organ[J]. Annual Review of Cell and Developmental Biology, 2015, 31:523-552.

DOI

[5]
王佳佳. Meg8-DMR对小鼠胎盘发育的影响[D]. 硕士学位论文. 哈尔滨: 哈尔滨工业大学, 2020.

WANG J J. The effect of meg8-DMR on mouse placenta development[D]. Master’s Thesis. Harbin: Harbin Institute of Technology, 2020. (in Chinese)

[6]
WOODS L, PEREZ-GARCIA V, HEMBERGER M. Regulation of placental development and its impact on fetal growth-new insights from mouse models[J]. Frontiers in Endocrinology, 2018, 9:570.

DOI PMID

[7]
PEREZ-GARCIA V, FINEBERG E, WILSON R, et al. Placentation defects are highly prevalent in embryonic lethal mouse mutants[J]. Nature, 2018, 555(7697):463-468.

DOI

[8]
HAYDER H, O’BRIEN J, NADEEM U, et al. MicroRNAs:crucial regulators of placental development[J]. Reproduction (Cambridge,England), 2018, 155(6):R259-R271.

DOI

[9]
HA M J, KIM V N. Regulation of microRNA biogenesis[J]. Nature Reviews Molecular Cell Biology, 2014, 15(8):509-524.

DOI PMID

[10]
LEE Y, KIM M, JINJU H, et al. MicroRNA genes are transcribed by RNA polymerase Ⅱ[J]. The EMBO Journal, 2004, 23(20):4051-4060.

DOI

[11]
DENLI A M, TOPS B B J, PLASTERK R H A, et al. Processing of primary microRNAs by the microprocessor complex[J]. Nature, 2004, 432(7014):231-235.

DOI

[12]
KROL J, LOEDIGE I, FILIPOWICZ W. The widespread regulation of microRNA biogenesis,function and decay[J]. Nature Reviews Genetics, 2010, 11(9):597-610.

DOI

[13]
BOHNSACK M T, CZAPLINSKI K, GORLICH D. Exportin 5 is a RanGTP-dependent dsRNA-binding protein that mediates nuclear export of pre-miRNAs[J]. RNA (New York,N.Y.), 2004, 10(2):185-191.

DOI

[14]
LUND E, GÜTTINGER S, CALADO A, et al. Nuclear export of microRNA precursors[J]. Science (New York,N.Y.), 2004, 303(5654):95-98.

DOI

[15]
YI R, QIN Y, MACARA I G, et al. Exportin-5 mediates the nuclear export of pre-microRNAs and short hairpin RNAs[J]. Genes & Development, 2003, 17(24):3011-3016.

DOI

[16]
BUSHATI N, COHEN S M. MicroRNA functions[J]. Annual Review of Cell and Developmental Biology, 2007, 23:175-205.

PMID

[17]
CHIANG H R, SCHOENFELD L W, RUBY J G, et al. Mammalian microRNAs:experimental evaluation of novel and previously annotated genes[J]. Genes & Development, 2010, 24(10):992-1009.

DOI

[18]
GHILDIYAL M, XU J, SEITZ H, et al. Sorting of Drosophila small silencing RNAs partitions microRNA* strands into the RNA interference pathway[J]. RNA (New York,N.Y.), 2010, 16(1):43-56.

DOI

[19]
DALMAY T. Mechanism of miRNA-mediated repression of mRNA translation[J]. Essays in Biochemistry, 2013, 54:29-38.

DOI PMID

[20]
MOHR A M, MOTT J L. Overview of microRNA biology[J]. Seminars in Liver Disease, 2015, 35(1):3-11.

DOI PMID

[21]
GUO H L, INGOLIA N T, WEISSMAN J S, et al. Mammalian microRNAs predominantly act to decrease target mRNA levels[J]. Nature, 2010, 466(7308):835-840.

DOI

[22]
GEBERT L F R, MACRAE I J. Regulation of microRNA function in animals[J]. Nature Reviews Molecular Cell Biology, 2019, 20(1):21-37.

DOI

[23]
BARTEL D P. MicroRNAs:target recognition and regulatory functions[J]. Cell, 2009, 136(2):215-233.

DOI

[24]
CHEKULAEVA M, FILIPOWICZ W. Mechanisms of miRNA-mediated post-transcriptional regulation in animal cells[J]. Current Opinion in Cell Biology, 2009, 21(3):452-460.

DOI PMID

[25]
DING L, HAN M. GW182 family proteins are crucial for microRNA-mediated gene silencing[J]. Trends in Cell Biology, 2007, 17(8):411-416.

DOI PMID

[26]
VALINEZHAD ORANG A, SAFARALIZADEH R, KAZEMZADEH-BAVILI M. Mechanisms of miRNA-mediated gene regulation from common downregulation to mRNA-specific upregulation[J]. International Journal of Genomics, 2014, 2014:970607.

[27]
VASUDEVAN S. Posttranscriptional upregulation by microRNAs[J]. Wiley Interdisciplinary Reviews:RNA, 2012, 3(3):311-330.

DOI

[28]
郭棚, 朱翠, 高开国, 等. 精氨酸对怀孕母猪胎盘滋养层细胞调控作用研究进展[J]. 东北农业大学学报, 2017, 48(3):89-96.

GUO P, ZHU C, GAO K G, et al. Progress advance on regulation of arginine on pregnant sow placental trophoblastic cells[J]. Journal of Northeast Agricultural University, 2017, 48(3):89-96. (in Chinese)

[29]
VALLET J L, FREKING B A. Differences in placental structure during gestation associated with large and small pig fetuses[J]. Journal of Animal Science, 2007, 85(12):3267-3275.

PMID

[30]
DANTZER V. Electron microscopy of the initial stages of placentation in the pig[J]. Anatomy and Embryology, 1985, 172(3):281-293.

PMID

[31]
CRISTOFOLINI A, FIORIMANTI M, CAMPOS M, et al. Morphometric study of the porcine placental vascularization[J]. Reproduction in Domestic Animals, 2018, 53(1):217-225.

DOI PMID

[32]
BAZER F W, JOHNSON G A. Pig blastocyst-uterine interactions[J]. Differentiation Research in Biological Diversity, 2014, 87(1/2):52-65.

DOI

[33]
SZUSZKIEWICZ J, NITKIEWICZ A, DRZEWIECKA K, et al. miR-26a-5p and miR-125b-5p affect trophoblast genes and cell functions important during early pregnancy[J]. Biology of Reproduction, 2022, 107(2):590-604.

DOI

[34]
HU Q, ZANG X P, DING Y, et al. Porcine uterine luminal fluid-derived extracellular vesicles improve conceptus-endometrial interaction during implantation[J]. Theriogenology, 2022, 178:8-17.

DOI

[35]
SONI U K, CHADCHAN S B, GUPTA R K, et al. miRNA-149 targets PARP-2 in endometrial epithelial and stromal cells to regulate the trophoblast attachment process[J]. Molecular Human Reproduction, 2021, 27(6):gaab039.

[36]
LIU R Z, WANG M, SU L J, et al. The expression pattern of microRNAs and the associated pathways involved in the development of porcine placental folds that contribute to the expansion of the exchange surface area[J]. Biology of Reproduction, 2015, 93(3):62.

DOI PMID

[37]
VALLET J L, MILES J R, FREKING B A. Development of the pig placenta[J]. Society of Reproduction and Fertility Supplement, 2009, 66:265-279.

PMID

[38]
刘睿泽. 猪胎盘褶皱发育相关非编码RNA (miRNA和lncRNA) 的鉴定和调控功能分析[D]. 博士学位论文. 武汉: 华中农业大学, 2017.

LIU R Z. Identification and characterization of regulatory non-coding RNA(miRNA and lncRNA) in development of porcine placental folds[D]. Ph.D. Thesis. Wuhan: Huazhong Agricultural University, 2017. (in Chinese)

[39]
SU L J, ZHAO S H, ZHU M J, et al. Differential expression of microRNAs in porcine placentas on days 30 and 90 of gestation[J]. Reproduction,Fertility,and Development, 2010, 22(8):1175-1182.

DOI

[40]
SASAKI S, TAKAHASHI R, LUO Y F, et al. Spatiotemporal distribution of PKCα,Cdc42,and Rac1 before directed cell migration[J]. Biochemical and Biophysical Research Communications, 2021, 584:26-31.

DOI

[41]
LIU R Z, DENG D D, LIU X D, et al. A miR-18a binding-site polymorphism in CDC42 3'UTR affects CDC42 mRNA expression in placentas and is associated with litter size in pigs[J]. Mammalian Genome, 2019, 30(1):34-41.

DOI

[42]
ZHU X M, YANG Y, HAN T, et al. Suppression of microRNA-18a expression inhibits invasion and promotes apoptosis of human trophoblast cells by targeting the estrogen receptor α gene[J]. Molecular Medicine Reports, 2015, 12(2):2701-2706.

DOI PMID

[43]
SAHA S, AIN R. MicroRNA regulation of murine trophoblast stem cell self-renewal and differentiation[J]. Life Science Alliance, 2020, 3(11):e202000674.

[44]
TENG L, HONG L J, LIU R Z, et al. Cellular localization and regulation of expression of the PLET1 gene in porcine placenta[J]. International Journal of Molecular Sciences, 2016, 17(12):2048.

DOI

[45]
MURRAY A, SIENERTH A R, HEMBERGER M. Plet1 is an epigenetically regulated cell surface protein that provides essential cues to direct trophoblast stem cell differentiation[J]. Scientific Reports, 2016, 6(1):25112.

DOI

[46]
黄今, 马海英. 胎盘滋养层细胞的功能[J]. 东南大学学报(医学版), 2015, 34(2):304-308.

HUANG J, MA H Y. The function of placental trophoblast cells[J]. Journal of Southeast University (Medical Science Edition), 2015, 34(2):304-308. (in Chinese)

[47]
JEONG W, KIM J, BAZER F W, et al. Epidermal growth factor stimulates proliferation and migration of porcine trophectoderm cells through protooncogenic protein kinase 1 and extracellular-signal-regulated kinases 1/2 mitogen-activated protein kinase signal transduction cascades during early pregnancy[J]. Molecular and Cellular Endocrinology, 2013, 381(1/2):302-311.

DOI

[48]
MALIK A, PAL R, GUPTA S K. EGF-mediated reduced miR-92a-1-5p controls HTR-8/SVneo cell invasion through activation of MAPK8 and FAS which in turn increase MMP-2/-9 expression[J]. Scientific Reports, 2020, 10(1):12274.

DOI PMID

[49]
BÖRZSÖNYI B, DEMENDI C, NAGY Z, et al. Gene expression patterns of insulin-like growth factor 1,insulin-like growth factor 2 and insulin-like growth factor binding protein 3 in human placenta from pregnancies with intrauterine growth restriction[J]. Journal of Perinatal Medicine, 2011, 39(6):701-707.

[50]
SAHA S, CHOUDHURY J, AIN R. MicroRNA-141-3p and miR-200a-3p regulate insulin-like growth factor 2 during mouse placental development[J]. Molecular and Cellular Endocrinology, 2015, 414:186-193.

DOI PMID

[51]
TAO J, XIA L Z, LIANG L L, et al. MiR-124-3p promotes trophoblast cell HTR-8/SVneo pyroptosis by targeting placental growth factor[J]. Placenta, 2020, 101:176-184.

DOI PMID

[52]
WECKMAN A M, NGAI M, WRIGHT J, et al. The impact of infection in pregnancy on placental vascular development and adverse birth outcomes[J]. Frontiers in Microbiology, 2019, 10:1924.

DOI PMID

[53]
LUO J, FAN Y, SHEN L Y, et al. The pro-angiogenesis of exosomes derived from umbilical cord blood of intrauterine growth restriction pigs was repressed associated with miRNAs[J]. International Journal of Biological Sciences, 2018, 14(11):1426-1436.

DOI PMID

[54]
ZHU Y S, LU H, HUO Z H, et al. MicroRNA-16 inhibits feto-maternal angiogenesis and causes recurrent spontaneous abortion by targeting vascular endothelial growth factor[J]. Scientific Reports, 2016, 6:35536.

DOI PMID

[55]
AL-JAMEIL N, AZIZ KHAN F, FAREED KHAN M, et al. A brief overview of preeclampsia[J]. Journal of Clinical Medicine Research, 2014, 6(1):1-7.

[56]
VONNAHME K A, WILSON M E, FORD S P. Relationship between placental vascular endothelial growth factor expression and placental/endometrial vascularity in the pig[J]. Biology of Reproduction, 2001, 64(6):1821-1825.

PMID

[57]
GUIMARÃES G C, ALVES L A, BETARELLI R P, et al. Expression of vascular endothelial growth factor (VEGF) and factor Ⅷ in the gilt placenta and its relation to fetal development[J]. Theriogenology, 2017, 92:63-68.

DOI

[58]
HU C J, YANG Y Y, DENG M, et al. Placentae for low birth weight piglets are vulnerable to oxidative stress,mitochondrial dysfunction,and impaired angiogenesis[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:8715412.

[59]
ZENG Y, WEI L J, LALI M S, et al. miR-150-5p mediates extravillous trophoblast cell migration and angiogenesis functions by regulating VEGF and MMP9[J]. Placenta, 2020, 93:94-100.

DOI PMID

[60]
NIU G, WRIGHT K L, HUANG M, et al. Constitutive Stat3 activity up-regulates VEGF expression and tumor angiogenesis[J]. Oncogene, 2002, 21(13):2000-2008.

DOI PMID

[61]
CHEN L Y, WANG X, QU X L, et al. Activation of the STAT3/microRNA-21 pathway participates in angiotensin Ⅱ-induced angiogenesis[J]. Journal of Cellular Physiology, 2019, 234(11):19640-19654.

DOI

[62]
ZHOU Y F, XIA M, CUI C B, et al. Circulating exosomal miR-221 from maternal obesity inhibits angiogenesis via targeting Angptl2[J]. International Journal of Molecular Sciences, 2021, 22(19):10343.

DOI

[63]
ARROYO J A, WINN V D. Vasculogenesis and angiogenesis in the IUGR placenta[J]. Seminars in Perinatology, 2008, 32(3):172-177.

DOI PMID

[64]
CRISAFULLI L, MUGGEO S, UVA P, et al. MicroRNA-127-3p controls murine hematopoietic stem cell maintenance by limiting differentiation[J]. Haematologica, 2019, 104(9):1744-1755.

DOI PMID

[65]
HU M J, LU Y K, ZENG H, et al. MicroRNA-21 maintains hematopoietic stem cell homeostasis through sustaining the NF-κB signaling pathway in mice[J]. Haematologica, 2021, 106(2):412-423.

DOI PMID

[66]
DONG D R, KHOONG Y, KO Y, et al. microRNA-646 inhibits angiogenesis of endothelial progenitor cells in pre-eclamptic pregnancy by targeting the VEGF-A/HIF-1α axis[J]. Experimental and Therapeutic Medicine, 2020, 20(3):1879-1888.

DOI PMID

Outlines

/