RESEARCH PAPER

Effects of Sodium Butyrate on Growth Performance, Plasma Indexes, Rumen Development of Hu Lambs during Suckling Period

  • JI Wenwen , 1 ,
  • YUN Yan 1 ,
  • ZHANG Yanfang 1 ,
  • ZHANG Yanzhen 1 ,
  • LI Zhefeng 2 ,
  • WANG Chong , 1, * ,
  • MAO Huiling , 1, *
Expand
  • 1 College of Animal Science and Technology, College of Veterinary Medicine, Zhejiang A&F University, Hangzhou 311300, China
  • 2 Hangzhou Kangdequan Technology Co., Ltd., Hangzhou 311107, China
*WANG Chong, professor, E-mail: ;
MAO Huiling, associate professor, E-mail:

Received date: 2022-09-14

  Online published: 2023-03-16

Abstract

This study was conducted to investigate the effects of sodium butyrate on growth performance, plasma indexes, rumen development of Hu lambs during suckling period. Forty newborn Hu lambs were selected and randomly divided into 2 groups according to the principle of similar body weight, there were 5 replicates in each group and 4 lambs in each replicate. Lambs in the sodium butyrate group (SB group) were orally administered 1.8 mL/kg BW sodium butyrate, and other in the control group (Con group) were orally administered the same volume normal saline. The experiment lasted for 35 days. The results showed as follows: 1) compared with the Con group, the dry matter intake during 29 to 35 days of age of SB group was significantly increased (P<0.05), and the average daily gain during 7 to 35 days of age was significantly increased (P<0.05). 2) Compared with the Con group, the plasma growth hormone content of SB group was significantly increased (P<0.05), and the D-lactate content was significantly decreased (P<0.05); the activities of total superoxide dismutase and catalase in plasma of SB group were significantly increased (P<0.05), and the malondialdehyde content was significantly decreased (P<0.05); the contents of immunoglobulin A and immunoglobulin G in plasma of SB group were significantly increased (P<0.05), and the tumor necrosis factor-α content was significantly decreased (P<0.05). 3) Compared with the Con group, the contents total volatile fatty acid (TVFA), acetic acid and butyric acid in rumen of SB group were significantly increased (P<0.05). 4) Compared with the Con group, the mRNA relative expression levels of insulin-like growth factor Ⅰ (IGF-Ⅰ), insulin-like growth factor Ⅰ receptor (IGF-ⅠR), insulin-like growth factor binding protein-5 (IGFBP-5), zonula occludens-1 (ZO-1), Claudin-1, monocarboxylate transporter isoform 1 (MCT1), sodium/proton exchanger isoform 3 (NHE3) and 3-hydroxy-3-methylglutaryl-CoA lyase (HMGCL) in rumen epithelium of SB group were significantly increased (P<0.05), and the B-cell lymphoma-2-associated X protein (Bax) mRNA relative expression level was significantly decreased (P<0.05). 5) The rumen TVFA content was significantly positively correlated with the mRNA relative expression levels of Claudin-1 and HMGCL in rumen epithelium (P<0.05 or P<0.01), and negatively correlated with the Bax mRNA relative expression level (P<0.01). The rumen butyric acid content was significantly positively correlated with the mRNA relative expression levels of IGF-Ⅰ, IGF-ⅠR, IGFBP-5 and sodium/proton exchanger isoform 1 (NHE1) (P<0.05), and negatively correlated with the Bax mRNA relative expression level (P<0.05). In conclusion, the sodium butyrate supplementation can improve the antioxidant capacity and immune function of lambs, inhibit the rumen epithelial cells apoptosis related genes expression, enhance the expression of genes related to rumen epithelial cells proliferation and development, volatile fatty acid uptake and metabolism, and improve the rumen fermentation function of lambs, so as to improve the growth performance of Hu lambs during suckling period.

Cite this article

JI Wenwen , YUN Yan , ZHANG Yanfang , ZHANG Yanzhen , LI Zhefeng , WANG Chong , MAO Huiling . Effects of Sodium Butyrate on Growth Performance, Plasma Indexes, Rumen Development of Hu Lambs during Suckling Period[J]. Chinese Journal of Animal Nutrition, 2023 , 35(3) : 1803 -1815 . DOI: 10.12418/CJAN2023.170

幼龄反刍动物的瘤胃功能尚未发育完全,不能充分消化和吸收固体饲料[1]。许多研究表明,促进幼龄反刍动物瘤胃发育可以缓解早期断奶产生的应激,提高动物生长性能[1-2]。因此,通过营养调控促进瘤胃早期发育对幼龄反刍动物实施早期断奶具有重要意义[2]。丁酸产品(包括其酸和盐的形式)可以提高动物生长性能,改善机体免疫力,因此被视为一种饲用抗生素的有效替代品[3]。丁酸钠是丁酸盐的一种常见形式,可以增加肠道菌群多样性,促进肠道上皮细胞分化,在调节畜禽肠道健康方面有着重要作用[4]。近年来,随着丁酸产品在养殖业的广泛应用,丁酸钠调节反刍动物生长发育的作用机理也备受研究学者的关注[5]。Liu等[6]研究报道,断奶前补饲丁酸钠可以提高犊牛生长性能、饲料转化效率和机体抗氧化能力。Górka等[7-8]研究发现,添加外源性丁酸钠不仅可以促进绵羊瘤胃乳头生长,还可增加瓣胃和皱胃上皮厚度,抑制皱胃上皮凋亡相关基因表达,促进皱胃上皮细胞增殖发育。有研究认为,外源性丁酸通过增加山羊瘤胃上皮细胞周期蛋白DⅠ(cyclin DⅠ)表达促进瘤胃上皮生长[9]。然而,丁酸钠对羔羊瘤胃挥发性脂肪酸(VFA)吸收和代谢的影响尚未被大量研究。因此,本研究以新生湖羊羔羊为研究对象,探究丁酸钠对哺乳期湖羊羔羊生长性能、血浆指标、瘤胃发酵以及瘤胃上皮基因表达影响。

1 材料与方法

1.1 试验材料

丁酸钠购于杭州某饲料有限公司,为饲料级产品,白色结晶状粉末,易溶于水,丁酸钠有效含量≥98%。

1.2 试验设计与饲养管理

选择40只体况良好、出生体重相近的新生湖羊羔羊,于7日龄时按体重相近原则分为2组,每组5个重复,每个重复4只羔羊。丁酸钠组(SB组)口腔灌服1.8 mL/kg BW丁酸钠,对照组(Con组)灌服相同体积的生理盐水。自7日龄起,每天08:00灌服1次,灌服体积根据每周称量的体重调整1次。丁酸钠溶解在生理盐水中,终浓度为0.2 g/mL。
试验在杭州市临安区明佳农业开发有限公司开展,试验期35 d。自21日龄起,羔羊与母羊于每日07:00—12:00、15:00—21:00分开,其余时间自由哺乳。7日龄时开始补饲开食料(主要成分包括:玉米、豆粕、玉米及其加工产品、麸皮、大豆皮、石粉、氯化钠、硫酸铜、硫酸锰、硫酸锌、维生素A、维生素D3、维生素E,购自英联饲料有限公司),每天饲喂2次,以确保所有羔羊始终都有新鲜的饲料采食。试验期间羔羊自由饮水,自由采食。开食料营养水平见表1
表1 开食料营养水平(干物质基础)

Table 1 Nutrient levels of the starter (DM basis)%

项目 Items 含量 Content
干物质 DM 88.61
粗蛋白质 CP 19.78
中性洗涤纤维 NDF 39.63
酸性洗涤纤维 ADF 14.44
粗灰分 Ash 7.41
钙 Ca 0.97
总磷 TP 0.61

营养水平均为实测值。

Nutrient levels were measured values.

1.3 样品采集

羔羊35日龄时,在早晨饲喂之前,每个重复随机选1只羔羊,用肝素钠采血管自颈静脉采集血液样本后屠宰,采集的血液3 000 r/min离心15 min,分离血浆,-20 ℃保存。羔羊屠宰后,立即采集瘤胃内容物,然后用灭菌的生理盐水将瘤胃冲洗干净,用载玻片刮下瘤胃上皮,先置于液氮中,后迅速转移至-80 ℃保存。

1.4 检测指标及方法

1.4.1 生长性能测定

试验期间每天记录各组羔羊的饲喂量和剩料量,计算试验期内各组羔羊的干物质采食量(DMI);自7日龄起,每周监测体重变化,计算羔羊平均日增重(ADG)和料重比(F/G)。

1.4.2 血浆生化、抗氧化和免疫指标测定

血浆一氧化氮(NO)、尿酸(UA)、白蛋白(ALB)、总蛋白(TP)、甘油三酯(TG)、葡萄糖(GLU)、丙二醛(MDA)含量和过氧化氢酶(CAT)、黄嘌呤氧化酶(XOD)、谷胱甘肽过氧化物酶(GSH-Px)、超氧化物歧化酶(SOD)活性测定试剂盒均购自南京建成生物工程研究所,血浆D-乳酸(D-LA)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)、白细胞介素-6(IL-6)、生长激素(GH)和肿瘤细胞坏死因子-α(TNF-α)含量测定试剂盒均购自上海邦奕生物科技有限公司,具体试验步骤严格参照试剂盒说明书。

1.4.3 瘤胃发酵参数测定

采用气相色谱(G3440B,Agilent Technilogies公司,美国)测定瘤胃VFA含量,采用苯酚次氯酸比色法测定瘤胃氨态氮(NH3-N)含量,采用考马斯亮蓝法测定瘤胃微生物蛋白(MCP)含量。

1.4.4 瘤胃上皮生长发育及VFA吸收和代谢相关基因表达测定

使用RNApure Total RNA Kit(北京艾德莱生物科技有限公司)提取总RNA,核酸蛋白检测仪(NanoDrop-2000,Thermo Fishier公司,美国)测定RNA浓度,ReverTra Ace qPCR RT Kit试剂盒(Toyobo公司,日本)反转录为cDNA。荧光定量PCR仪(MX3000P,Agilent Stratagene公司,美国)测定瘤胃上皮生长发育及VFA吸收和代谢相关基因[闭锁小带蛋白-1(ZO-1)、封闭蛋白-1(Claudin-1)、封闭蛋白-4(Claudin-4)、闭锁蛋白(Occludin)、B淋巴细胞瘤-2相关X蛋白(Bax)、B淋巴细胞瘤-2(Bcl-2)、天冬氨酸特异性半胱氨酸蛋白酶-3(Caspase-3)、天冬氨酸特异性半胱氨酸蛋白酶-8(Caspase-8)、单羧酸转运蛋白1(MCT1)、单羧酸转运蛋白4(MCT4)、腺瘤下调基因(DRA)、钠氢离子交换蛋白1(NHE1)、钠氢离子交换蛋白2(NHE2)、钠氢离子交换蛋白3(NHE3)、液泡膜H+-ATP酶(vH+-ATPase)、3-羟基-3-甲基戊二酰辅酶A合成酶2(HMGCS2)、3-羟基-3-甲基戊二酰辅酶A(HMGCL)、β-羟丁酸脱氢酶1(BDH1)、β-羟丁酸脱氢酶2(BDH2)、胰岛素生长因子-Ⅰ(IGF-Ⅰ)、胰岛素生长因子-Ⅰ受体(IGF-ⅠR)、胰岛素生长因子结合蛋白-2(IGFBP-2)、胰岛素生长因子结合蛋白-3(IGFBP-3)、胰岛素生长因子结合蛋白-5(IGFBP-5)、胰岛素生长因子结合蛋白-6(IGFBP-6)]mRNA相对表达量。PCR程序为:95 ℃ 1 min预变性;95 ℃ 30 s,58 ℃ 1 min,重复40个循环。以β-肌动蛋白(β-actin)为内参,采用2-ΔΔCt法计算目的基因mRNA相对表达量。引物序列见表2
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
闭锁小带蛋白-1
ZO-1
F:CGACCAGATCCTCAGGGTAA
R:AATCACCCACATCGGATTCT
161
封闭蛋白-1
Claudin-1
F:CACCCTTGGCATGAAGTGTA
R:AGCCAATGAAGAGAGCCTGA
212
封闭蛋白-4
Claudin-4
F:AAGGTGTACGACTCGCTGCT
R:GACGTTGTTAGCCGTCCAG
237
闭锁蛋白
Occludin
F:GTTCGACCAATGCTCTCTCAG
R:CAGCTCCCATTAAGGTTCCA
196
B淋巴细胞瘤-2相关X蛋白
Bax
F:TGTCCTCCCCCAGAGATCAG
R:GGGCCCTAGAGGAGAAAGGA
97
B淋巴细胞瘤-2
Bcl-2
F:GTGGATGACCGAGTACCTGAAC
R:CTTCACTTATGGCCCAGATAGG
197
天冬氨酸特异性半胱氨酸蛋白酶-3
Caspase-3
F:CAGCTACCTCAAACACAGTTGG
R:TGATACAGTGGCATACCCACAT
203
天冬氨酸特异性半胱氨酸蛋白酶-8
Caspase-8
F:TCCAGGATTCGCCTCTGGTA
R:CCGGCTTAGGAACTTGAGGG
133
单羧酸转运蛋白1
MCT1
F:ATCTACGCGGGATTCTTTGGAT
R:AAGGTCCATCAGCGTTTCAAAC
72
单羧酸转运蛋白4
MCT4
F:GTTTGGGATAGGCTACAGTGACACA
R:GCAGCCAAAGCGATTCACA
106
腺瘤下调基因
DRA
F:CCTAAAATCAACCTCCACA
R:TCATCATCAGTTCCAGCAA
145
钠氢离子交换蛋白1
NHE1
F:CCTCTACAGCTACATGGCCTAC
R:GGGAGATGTTGGCTTCCA
113
钠氢离子交换蛋白2
NHE2
F:TTGGAGAGTCCCTGCTGAAC
R:GGCCGTGATGTAGGACAAAT
122
钠氢离子交换蛋白3
NHE3
F:AGCTACGTGGCCGAGGG
R:AGACAGAGGCCTCCACGGT
121
液泡膜H+-ATP酶
vH+-ATPase
F::TTTTATTGAACAAGAAGCCAATGA
R:GATTCATCAAATTGGACATCTGAA
182
3-羟基-3-甲基戊二酰辅酶A合成酶2
HMGCS2
F:TACCTGGAGCGAGTGGATGA
R:GGCGAGTCATCTGGATCTGG
363
3-羟基-3-甲基戊二酰辅酶A
HMGCL
F:TCCACGAGACGGACTACAAAA
R:AGAGGCGGCTCCAAAGATG
277
β-羟丁酸脱氢酶1
BDH1
F:GAGAAGGAAACGGCGGTAG
R:AAAAGGCAGAATGGTCAGG
169
β-羟丁酸脱氢酶2
BDH2
F:ATTGATGGAGGCTGGAGTT
R:ATTGGAAAGAGAGGTTGGG
121
胰岛素生长因子-Ⅰ
IGF-Ⅰ
F:GCTCTCAACATCTCCCATCTCC
R:CCCATTGCTTCTGAAGTGCAAA
94
胰岛素生长因子-Ⅰ受体
IGF-ⅠR
F:AGAAGATCACCATGAGCCGC
R:TCACCGTCTTAATGGCCACC
120
胰岛素生长因子结合蛋白-2
IGFBP-2
F:GTCCTGGAACGGATCTCCAC
R:GAGGTTGTACAGGCCATGCT
108
胰岛素生长因子结合蛋白-3
IGFBP-3
F:AAATGGAGGACACACTGAACG
F:TTATCCACACACCAGCAGAAAC
152
胰岛素生长因子结合蛋白-5
IGFBP-5
F:TGAAGGCTGAGGCTGTGAAG
R:GGCCCCTGCTCAGATTCC
133
胰岛素生长因子结合蛋白-6
IGFBP-6
F:GGGTCTACACTCCCAACTGC
R:TAGGATTCTCTCCCGAGGGC
132
β-肌动蛋白
β-actin
F:TCCGTGACATCAAGGAGAAGC
R:CCGTGTTGGCGTAGAGGT
266

1.5 数据统计与分析

数据采用Excel 2010进行整理,结果采用SAS 8.0统计软件进行方差分析,Duncan氏法进行多重比较。P≤0.05表示差异显著,0.05<P<0.10表示有趋势。

2 结果

2.1 丁酸钠对湖羊羔羊生长性能的影响

表3可知,与Con组相比,SB组的29~35日龄干物质采食量显著升高(P<0.05),35日龄体重有升高趋势(P=0.08),7~35日龄平均日增重显著升高(P<0.05),7~35日龄料重比无显著差异(P>0.05)。
表3 丁酸钠对湖羊羔羊生长性能的影响

Table 3 Effects of sodium butyrate on growth performance of Hu lambs

项目
Items
组别 Groups SEM P
P-value
Con SB
干物质采食量 DMI/(g/d)
7~14日龄 7 to 14 days of age 2.27 1.21 0.49 0.37
15~21日龄 15 to 21 days of age 18.40 15.60 2.99 0.56
22~28日龄 22 to 28 days of age 31.80 44.20 4.98 0.17
29~35日龄 29 to 35 days of age 85.80b 119.00a 7.89 0.04
7~35日龄 7 to 35 days of age 42.50 52.40 8.57 0.47
体重 BW/kg
7日龄 7 days of age 4.59 4.33 0.20 0.37
14日龄 14 days of age 5.90 5.95 0.28 0.92
21日龄 21 days of age 7.07 7.15 0.39 0.89
28日龄 28 days of age 8.55 8.60 0.53 0.95
35日龄 35 days of age 9.35 10.90 0.44 0.08
平均日增重 ADG/(g/d)
7~35日龄 7 to 35 days of age 168b 234a 12.10 0.015
料重比 F/G
7~35日龄 7 to 35 days of age 0.19 0.20 0.03 0.919

同行数据肩标相同或无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with the same or no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 丁酸钠对湖羊羔羊血浆生化、抗氧化和免疫指标的影响

表4可知,与Con组相比,SB组的血浆GH含量显著升高(P<0.05),血浆GLU含量有上升趋势(P=0.086),D-LA含量显著降低(P<0.05),TP、ALB、TG、UA、NO含量和XOD活性均无显著差异(P>0.05)。与Con组相比,SB组的血浆SOD和CAT活性显著升高(P<0.05),MDA含量显著降低(P<0.05),GSH-Px活性无显著差异(P>0.05)。与Con组相比,SB组的血浆TNF-α含量显著降低(P<0.05),IL-6含量有降低趋势(P=0.077),IgA和IgG含量显著升高(P<0.05),IgM含量有升高趋势(P=0.057)。
表4 丁酸钠对湖羊羔羊血浆生化、抗氧化和免疫指标的影响

Table 4 Effects of sodium butyrate on plasma biochemical, antioxidant and immune indexes of Hu lambs

项目
Items
组别 Groups SEM P
P-value
Con SB
生化指标 Biochemical indexes
总蛋白 TP/(g/L) 37.80 40.60 2.63 0.475
白蛋白 ALB/(g/L) 23.40 27.00 1.68 0.171
甘油三酯 TG/(mmol/L) 1.19 1.09 0.09 0.416
葡萄糖 GLU/(mmol/L) 4.43 6.23 0.65 0.086
尿酸 UA/(μmol/L) 143 113 13.20 0.203
黄嘌呤氧化酶 XOD/(U/L) 6.30 6.14 0.56 0.854
一氧化氮 NO/(μmol/L) 13.70 14.10 1.53 0.901
D-乳酸 D-LA/(ng/mL) 1 207a 1 003b 15.70 0.001
生长激素 GH/(ng/mL) 20.00b 24.20a 0.75 0.004
抗氧化指标 Antioxidant indexes
超氧化物歧化酶 SOD/(U/mL) 116b 150a 5.72 0.017
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 27.10 32.30 4.19 0.469
丙二醛 MDA/(nmol/mL) 4.62a 2.55b 0.38 0.014
过氧化氢酶 CAT/(U/mL) 0.99b 1.38a 0.09 0.015
免疫指标 Immune indexes
白细胞介素-6 IL-6/(pg/mL) 87.50 78.10 3.67 0.077
肿瘤坏死因子-α TNF-α/(pg/mL) 371a 276b 9.25 <0.001
免疫球蛋白A IgA/(μg/mL) 252b 283a 5.25 0.003
免疫球蛋白G IgG/(μg/mL) 2 233b 3 305a 128 <0.001
免疫球蛋白M IgM/(μg/mL) 326 372 14.80 0.057

2.3 丁酸钠对湖羊羔羊瘤胃发酵参数的影响

表5可知,与Con组相比,SB组瘤胃总挥发性脂肪酸(TVFA)、乙酸和丁酸含量显著升高(P<0.05),戊酸含量有升高趋势(P=0.09),丙酸、异丁酸、异戊酸、NH3-N和MCP含量无显著差异(P>0.05)。
表5 丁酸钠对湖羊羔羊瘤胃发酵参数的影响

Table 5 Effects of sodium butyrate on ruminal fermentation parameters of Hu lambs

项目
Items
组别 Groups SEM P
P-value
Con SB
总挥发性脂肪酸 TVFA/(mmol/L) 44.40b 71.80a 2.58 0.004
乙酸 Acetic acid/(mmol/L) 22.20b 33.00a 0.70 0.001
丙酸 Propionic acid/(mmol/L) 14.80 21.20 2.06 0.170
异丁酸 Isobutyric acid/(mmol/L) 0.50 0.86 0.17 0.305
丁酸 Butyric acid/(mmol/L) 4.76b 12.48a 0.50 0.001
异戊酸 Isovaleric acid/(mmol/L) 0.48 1.00 0.17 0.162
戊酸 Valeric acid/(mmol/L) 1.56 3.28 0.42 0.090
氨态氮 NH3-N/(mg/dL) 4.34 3.44 0.44 0.391
微生物蛋白 MCP/(mg/mL) 1.29 1.45 0.07 0.112

2.4 丁酸钠对湖羊羔羊瘤胃上皮生长和凋亡相关mRNA表达的影响

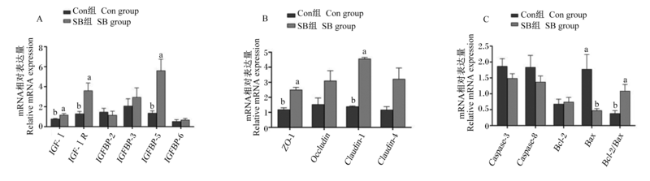
丁酸钠对湖羊羔羊瘤胃上皮中胰岛素生长因子相关mRNA表达的影响如图1-A所示,与Con组相比,SB组瘤胃上皮中IGF-Ⅰ、IGF-ⅠRIGFBP-5的mRNA相对表达量显著升高(P<0.05),IGFBP-2、IGFBP-3和IGFBP-6的mRNA相对表达量均无显著差异(P>0.05)。
图1 丁酸钠对湖羊羔羊瘤胃上皮生长发育相关mRNA表达的影响

A:胰岛素生长因子相关mRNA IGF-related mRNA;B:紧密连接相关mRNA tight junction-related mRNA;C:凋亡相关mRNA apoptosis-related mRNA。

IGF-Ⅰ:胰岛素生长因子-Ⅰ insulin-like growth factor-Ⅰ;IGF-ⅠR:胰岛素生长因子-Ⅰ受体 insulin-like growth factor-Ⅰ receptor;IGFBP-2:胰岛素生长因子结合蛋白-2 insulin-like growth factor binding protein-2;IGFBP-3:胰岛素生长因子结合蛋白-3 insulin-like growth factor binding protein-3;IGFBP-5:胰岛素生长因子结合蛋白-5 insulin-like growth factor binding protein-5;IGFBP-6:胰岛素生长因子结合蛋白-6 insulin-like growth factor binding protein-6;ZO-1:闭锁小带蛋白-1 zonula occludens-1;Occludin:闭锁蛋白;Claudin-1:封闭蛋白-1;Claudin-4:封闭蛋白-4;Caspase-3:天冬氨酸特异性半胱氨酸蛋白酶-3 cysteinyl aspartate specific proteinase-3;Caspase-8:天冬氨酸特异性半胱氨酸蛋白酶-8 cysteinyl aspartate specific proteinase-8;Bcl-2:B淋巴细胞瘤-2 B-cell lymphoma-2;Bax:B淋巴细胞瘤-2相关X蛋白 B-cell lymphoma-2-associated X protein。图3同 the same as Fig.3.

数据柱标记不同字母表示差异显著(P<0.05)。图2同。

Fig.1 Effects of sodium butyrate on rumen epithelial growth and development related mRNA expression of Hu lambs

Data column with different letter mean significant difference (P<0.05). The same as Fig.2.

丁酸钠对湖羊羔羊瘤胃上皮中紧密连接相关mRNA表达的影响如图1-B所示,与Con组相比,SB组瘤胃上皮中ZO-1和Claudin-1的mRNA相对表达量显著升高(P<0.05),Claudin-4的mRNA相对表达量有升高趋势(P=0.054),Occludin的mRNA相对表达量无显著差异(P>0.05)。
丁酸钠对湖羊羔羊瘤胃上皮凋亡相关mRNA表达的影响如图1-C所示,与Con组相比,SB组瘤胃上皮中Bax的mRNA相对表达量显著降低(P<0.05),Bcl-2/Bax显著升高(P<0.05),Caspase-3、Caspase-8和Bcl-2的mRNA相对表达量均无显著差异(P>0.05)。

2.5 丁酸钠对湖羊羔羊瘤胃上皮VFA吸收和代谢相关mRNA表达的影响

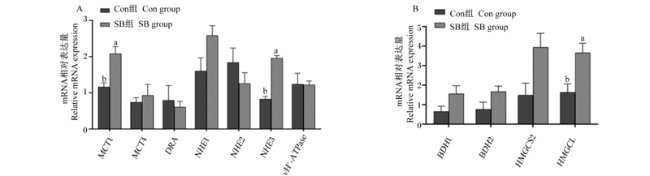
丁酸钠对湖羊羔羊瘤胃上皮VFA吸收相关mRNA表达的影响如图2-A所示,与Con组相比,SB组瘤胃上皮中MCT1和NHE3的mRNA相对表达量显著升高(P<0.05),NHE1的mRNA相对表达量有升高趋势(P=0.095),MCT4、DRANHE2和vH+-ATPase的mRNA相对表达量均无显著差异(P>0.05)。
图2 丁酸钠对湖羊羔羊瘤胃上皮VFA吸收和代谢相关mRNA表达的影响

A:VFA吸收相关mRNA VFA absorption-related mRNA;B:VFA代谢相关mRNA VFA metabolism-related mRNA。

MCT1:单羧酸转运蛋白1 monocarboxylate transporter isoform 1;MCT4:单羧酸转运蛋白4 monocarboxylate transporter isoform 4;DRA:腺瘤下调基因 downregulated in adenoma;NHE1:钠氢离子交换蛋白1 sodium/proton exchanger isoform 1;NHE2:钠氢离子交换蛋白2 sodium/proton exchanger isoform 2;NHE3:钠氢离子交换蛋白3 sodium/proton exchanger isoform 3;vH+-ATPase:液泡膜H+-ATP酶 vacuolar-type H+-adenosine triphosphatase;BDH1:β-羟丁酸脱氢酶1 β-hydroxybutyrate dehydrogenase-1;BDH2:β-羟丁酸脱氢酶2 β-hydroxybutyrate dehydrogenase-2;HMGCS2:3-羟基-3-甲基戊二酰辅酶A合成酶2 3-hydroxy-3-methylglutaryl-CoA synthase isoform 2;HMGCL:3-羟基-3-甲基戊二酰辅酶A 3-hydroxy-3-methylglutaryl-CoA lyase。图3同 the same as Fig.3.

Fig.2 Effects of sodium butyrate on rumen epithelial VFA absorption and metabolism related mRNA expression of Hu lambs

丁酸钠对湖羊羔羊瘤胃上皮VFA代谢相关mRNA表达的影响如图2-B所示,与Con组相比,SB组羔羊瘤胃上皮中HMGCL的mRNA相对表达量显著升高(P<0.05),HMGCS2的mRNA相对表达量有升高趋势(P=0.059),BDH1和BDH2的mRNA相对表达量均无显著差异(P>0.05)。

2.6 瘤胃VFA含量与瘤胃上皮基因mRNA相对表达量相关性研究

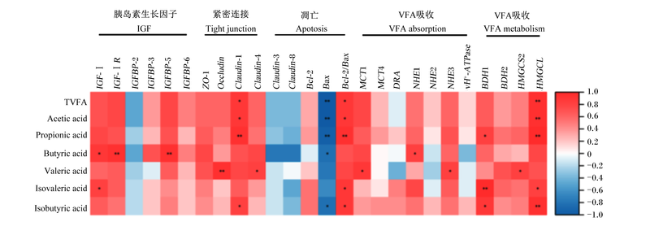
图3所示,瘤胃TVFA、乙酸和丙酸含量与瘤胃上皮Claudin-1、HMGCL的mRNA相对表达量和Bcl-2/Bax呈显著或极显著正相关(P<0.05或P<0.01),与Bax的mRNA相对表达量呈极显著负相关(P<0.01);此外,瘤胃丙酸含量还与瘤胃上皮BDH1的mRNA相对表达量呈显著正相关(P<0.05)。瘤胃丁酸含量与瘤胃上皮IGF-Ⅰ、IGF-ⅠRIGFBP-5和NHE1的mRNA相对表达量呈显著或极显著正相关(P<0.05或P<0.01),与Bax的mRNA相对表达量呈显著负相关(P<0.05)。瘤胃戊酸含量与瘤胃上皮OccludinClaudin-4、MCT1、NHE3和HMGCS2的mRNA相对表达量呈显著或极显著正相关(P<0.05或P<0.01)。瘤胃异戊酸含量与瘤胃上皮IGF-Ⅰ、BDH1、HMGCL的mRNA相对表达量和Bcl-2/Bax呈显著或极显著正相关(P<0.05或P<0.01)。瘤胃异丁酸含量与瘤胃上皮Claudin-1、BDH1、HMGCL的mRNA相对表达量和Bcl-2/Bax呈显著或极显著正相关(P<0.05或P<0.01),与Bax的mRNA相对表达量呈显著负相关(P<0.05)。
图3 瘤胃VFA含量与瘤胃上皮基因mRNA相对表达量相关性分析

红色表示正相关,蓝色表示负相关;*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

TVFA:总挥发性脂肪酸 total volatile fatty acid;Acetic acid:乙酸;Propionic acid:丙酸;Butyric acid:丁酸;Valeric acid:戊酸;异戊酸:Isovaleric acid;异丁酸:Isobutyric acid。

Fig.3 Correlation analysis of rumen VFA contents and rumen epithelial genes mRNA expression

Red mean positive correlation, blue mean negative correlation; * mean significant correlation (P<0.05), ** mean significant correlation (P<0.01).

3 讨论

3.1 丁酸钠对湖羊羔羊生长性能的影响

有研究表明,丁酸钠可以提高动物的生长性能。添加2和3 g/kg的丁酸钠均显著提高断奶羔羊的平均日采食量和平均日增重,同时降低羔羊的料重比[10]。赵会利等[11]发现,在饲粮中添加1%丁酸钠提高断奶犊牛的体增重和平均日增重,促进断奶犊牛的生长发育。Liu等[12]研究报道,口腔灌服0.36 g/kg的丁酸钠提高35和42日龄羔羊的平均日增重。本试验结果与Liu等[12]的结果一致,这可能是由于丁酸钠刺激羔羊的瘤胃发育,促进瘤胃乳头生长,增加瘤胃的吸收面积,从而提高羔羊的生长性能[13]

3.2 丁酸钠对湖羊羔羊血浆生化、抗氧化和免疫指标的影响

血液生理生化指标可反映动物机体对蛋白质的代谢情况,如血液中的TP、GLU、尿素氮(UN)含量是蛋白质代谢、合成与沉积的重要指标[14]。孟玲[15]研究发现,饲粮中添加1 000和1 500 g/t的包膜丁酸钠均可提高断奶仔猪血清GLU含量。犊牛补饲丁酸钠后血浆GLU含量有升高趋势[16]。本试验结果显示,与Con组相比,SB组血浆GLU含量有升高趋势。这表明丁酸钠可以促进羔羊采食,提高饲料转化率,从而导致血浆GLU含量有所升高。
当机体受到外界刺激时,会产生大量的自由基,从而引发脂质过氧化,产生MDA,MDA含量则能反映机体的损伤程度[17]。动物机体的酶促系统是由SOD、GSH-Px、T-AOC等抗氧化酶构成,可以清除或减少机体自由基的生成,维持细胞内的氧化-还原平衡[18]。有研究发现,饲粮中添加丁酸钠可提高肉鸡血清SOD、GSH-Px和CAT活性,同时MDA含量有下降趋势[19]。Ma等[20]报道,丁酸钠不仅可以提高山羊肝脏中SOD1、SOD2、SOD3、GPX1和CAT的mRNA相对表达量,其机制可能是激活核因子-E2相关因子2(Nrf2),从而提高抗氧化基因的表达。本试验中,SB组的血浆SOD和CAT活性显著高于Con组,MDA含量显著低于Con组。这表明丁酸钠可以增强羔羊机体对自由基的清除能力,改善机体的抗氧化功能。
免疫球蛋白包括IgA、IgG、IgM等,它们可以与特异性抗原结合,与动物机体的免疫能力密切相关[21]。张昕妍等[22]研究发现,妊娠后期添加丁酸钠可以提高血清IgG含量。本试验中,添加丁酸钠提高了羔羊血浆IgA和IgG含量,IgM含量也有升高趋势。这表明丁酸钠增强羔羊机体免疫屏障,从而提高机体的免疫力。丁酸钠中的有效因子丁酸不仅可以促进免疫细胞分化,还可以抑制炎症因子的产生,从而缓解动物机体炎症的发生[23-24]。IL-6和TNF-α是重要的炎性细胞因子,能够激活系统的免疫系统,诱导炎症的发生[23]。机体炎症反应的传导机制与丝裂源活化蛋白激酶(MAPK)信号通路密切相关。Jiang等[25]研究发现,丁酸钠可以缓解脂多糖诱导的牛巨噬细胞的炎症反应,降低IL-6的mRNA相对表达量,其机制可能是丁酸钠可以下调核转录因子-κB(NF-κB)、核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)信号通路,并激活牛巨噬细胞中的组蛋白乙酰化。本试验结果表明,丁酸钠可以提高羔羊血浆GH含量,降低TNF-α和D-LA含量,IL-6含量也有下降趋势。这表明丁酸钠可以防止免疫系统过度活化,调节机体炎症反应。此外,对于丁酸钠发挥抗炎作用的途径还需进一步研究。

3.3 丁酸钠对湖羊羔羊瘤胃发酵的影响

稳定的瘤胃内环境对反刍动物来说尤为重要。瘤胃VFA、NH3-N和MCP含量是反映瘤胃内环境和发酵程度的重要指标。有研究发现,添加1 g/kg的丁酸钠可以提高奶牛瘤胃丁酸、异丁酸和TVFA含量[26]。本试验结果显示,添加丁酸钠提高了羔羊瘤胃TVFA、乙酸和丁酸含量,戊酸含量也有升高趋势,与Liu等[12]报道的一致。瘤胃TVFA含量升高可能是因为添加丁酸钠促进了羔羊干物质采食量增加,导致瘤胃微生物对饲粮进行大量发酵。丁酸钠的有效成分是丁酸,进入瘤胃后被分解,这可能导致瘤胃丁酸含量升高。

3.4 丁酸钠对湖羊羔羊瘤胃上皮生长发育相关mRNA表达的影响

外源性丁酸钠可以促进胃肠道上皮细胞有丝分裂,减缓细胞凋亡,从而促进细胞增殖[5,27]。瘤胃乳头的长度和宽度是评价瘤胃发育的重要指标[28],而促进瘤胃乳头生长的分子机制引起了很多国内外学者的关注。本试验结果显示,添加丁酸钠可以提高羔羊瘤胃上皮中IGF-Ⅰ、IGF-ⅠRIGFBP-5的mRNA相对表达量。有研究表明,IGF-Ⅰ可以促进细胞周期蛋白的表达,加速细胞增殖分化,并促进瘤胃乳头的发育[2,29]IGF-Ⅰ通过调节胰岛素生长因子结合蛋白(IGFBPs)来诱导细胞反应,进而促进瘤胃上皮组织中营养物质的吸收和代谢,其中IGFBP-5可以正向调节IGF-Ⅰ的表达,从而促进瘤胃上皮细胞生长[30]。紧密连接是上皮屏障形成过程中最重要的细胞之间的相互作用,而ZO-1、OccludinClaudin是构成紧密连接的重要蛋白,对维持上皮细胞通透性至关重要[31]。Feng等[32]报道,丁酸钠可以增加结肠中紧密连接蛋白Claudin-3、OccludinZO-1的mRNA相对表达量,有助于缓解断奶仔猪的腹泻,这可能与丁酸钠通过激活AMP依赖的蛋白激酶(AMPK),抑制MAPK信号通路,促进紧密连接的相互连接有关[5]。丁酸钠可以提高山羊瘤胃上皮中Claudin-1、Claudin-4和Occludin的mRNA相对表达量,在亚急性瘤胃酸中毒期间对瘤胃上皮具有保护作用[33]。本试验中,添加丁酸钠提高了羔羊瘤胃上皮中ZO-1和Claudin-1的mRNA相对表达,Claudin-4的mRNA相对表达量也有升高趋势,与前人研究结果一致。由此可见,丁酸钠通过上调紧密连接蛋白基因的表达水平,从而增强瘤胃上皮紧密连接,促进瘤胃上皮增殖发育。而紧密连接的增强可能与丁酸钠改善血浆中免疫指标,减少TNF-α和IL-6含量有关。除细胞增殖以外,细胞凋亡也是瘤胃上皮生长发育的重要组成部分[2]Bcl-2和天冬氨酸特异性半胱氨酸蛋白酶(Caspase)是调节细胞凋亡的2个重要家族,Bcl-2/Bax也是评估细胞凋亡的重要指标。本试验结果显示,添加丁酸钠可以下调羔羊瘤胃上皮中Bax的mRNA的相对表达量,显著上调Bcl-2/Bax。以上结果表明,丁酸钠可以促进羔羊瘤胃上皮细胞生长,并抑制细胞凋亡。

3.5 丁酸钠对湖羊羔羊瘤胃上皮VFA吸收和代谢相关mRNA表达的影响

瘤胃中的VFA可通过蛋白质介导或扩散的途径被瘤胃上皮细胞吸收[1]。瘤胃上皮组织的主要代谢是生酮作用,它将VFA转化为酮体,为机体提供能量[34]。有研究表明,VFA吸收和代谢的能力与瘤胃上皮中编码VFA吸收和代谢相关基因的表达有关[35]。MCT1位于瘤胃上皮细胞的基底侧,可以转运VFA及其代谢产物。NHE存在于瘤胃上皮细胞中,可以将钠离子(Na+)运输进细胞,同时将氢离子(H+)运输出细胞外[36]。3-羟基-3-甲基戊二酰辅酶A合成酶(HMGCS)和HMGCL是生酮过程中重要的合成酶。Schlau等[37]报道,瘤胃中的丁酸可以上调瘤胃上皮细胞中NHE3的mRNA相对表达量,从而维持酸碱平衡,预防亚急性瘤胃酸中毒。Yang等[36]研究发现,丁酸钠可以上调牛瘤胃上皮细胞中MCT1和BDH1的mRNA相对表达量。本试验结果显示,添加丁酸钠提高了羔羊瘤胃上皮中MCT1和NHE3的mRNA相对表达量,NHE1的mRNA相对表达量也有升高趋势,促进VFA的吸收,这可能解释了添加丁酸钠导致羔羊瘤胃中VFA含量升高的原因。

3.6 羔羊瘤胃VFA含量与瘤胃上皮基因mRNA相对表达量相关性研究

通过羔羊瘤胃VFA含量与瘤胃上皮生长发育、VFA吸收和代谢基因mRNA相对表达量的相关性分析发现,瘤胃丁酸含量与胰岛素生长因子、凋亡和VFA吸收相关基因密切相关,而TVFA和其他VFA含量与紧密连接、凋亡、VFA吸收和代谢相关基因密切相关。以上结果表明,添加丁酸钠通过加强瘤胃上皮细胞增殖发育和抑制瘤胃上皮细胞凋亡来促进瘤胃发酵,进而增强瘤胃上皮VFA吸收和代谢相关基因的相对表达。

4 结论

丁酸钠可以改善哺乳期羔羊抗氧化能力和免疫功能,抑制瘤胃上皮细胞凋亡相关基因的表达,促进瘤胃上皮细胞生长发育、VFA吸收和代谢相关基因的表达,改善羔羊的瘤胃发酵功能,从而提高哺乳期湖羊羔羊的生长性能。
[1]
SUN D M, MAO S Y, ZHU W Y, et al. Effect of starter diet supplementation on rumen epithelial morphology and expression of genes involved in cell proliferation and metabolism in pre-weaned lambs[J]. Animal, 2018, 12(11):2274-2283.

DOI PMID

[2]
刘理想. 口腔灌服丁酸钠对哺乳期羔羊瘤胃上皮发育的影响及机制研究[D].硕士学位论文. 南京: 南京农业大学, 2019.

LIU L X. Effects of oral infusion of sodium butyrate on rumen epithelial development and its underlying mechanism in suckling lambs[D].Master's Thesis. Nanjing: Nanjing Agricultural University, 2019. (in Chinese)

[3]
WU Y N, ZHOU Y M, LU C H, et al. Influence of butyrate loaded clinoptilolite dietary supplementation on growth performance,development of intestine and antioxidant capacity in broiler chickens[J]. PLoS One, 2016, 11(4):e0154410.

[4]
谭名洋, 王芳, 杨媚, 等. 丁酸钠调控畜禽动物肠道健康的作用机制[J]. 中国畜牧杂志, 2022, 58(1):12-16.

TAN M Y, WANG F, YANG M, et al. Mechanism of sodium butyrate regulating intestinal health in livestock and poultry[J]. Chinese Journal of Animal Science, 2022, 58(1):12-16. (in Chinese)

[5]
吴东霖, 徐萍, 邵凯, 等. 丁酸在幼龄反刍动物中的作用机理及其产品应用的研究进展[J]. 动物营养学报, 2020, 32(3):1034-1046.

DOI

WU D L, XU P, SHAO K, et al. Mechanism of butyric acid and application of its products in young ruminants[J]. Chinese Journal of Animal Nutrition, 2020, 32(3):1034-1046. (in Chinese)

[6]
LIU W H, LA A L T Z, EVANS A, et al. Supplementation with sodium butyrate improves growth and antioxidant function in dairy calves before weaning[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):2.

DOI PMID

[7]
GÓRKA P, ŚLIWIÑSKI B, FLAGA J, et al. Effect of exogenous butyrate on the gastrointestinal tract of sheep.Ⅰ.Structure and function of the rumen,omasum,and abomasum[J]. Journal of Animal Science, 2018, 96(12):5311-5324.

DOI

[8]
GÓRKA P, ŚLIWIÑSKI B, FLAGA J, et al. Effect of exogenous butyrate on the gastrointestinal tract of sheep.Ⅱ.Hydrolytic activity in the rumen and structure and function of the small intestine[J]. Journal of Animal Science, 2018, 96(12):5325-5335.

DOI

[9]
MALHI M, GUI H B, YAO L, et al. Increased papillae growth and enhanced short-chain fatty acid absorption in the rumen of goats are associated with transient increases in cyclin D1 expression after ruminal butyrate infusion[J]. Journal of Dairy Science, 2013, 96(12):7603-7616.

DOI PMID

[10]
左丽君. 丁酸钠对断奶羔羊生长性能、胃肠道发育及肠道微生物的影响[D].硕士学位论文. 大庆: 黑龙江八一农垦大学, 2020.

ZUO L J. Effects of sodium butyrate on growth performance,gastrointestinal development and intestinal microorganism of weaned lambs[D].Master's Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2020. (in Chinese)

[11]
赵会利, 高艳霞, 李建国, 等. 丁酸钠对断奶犊牛生长、血液生化指标及胃肠道发育的影响[J]. 畜牧兽医学报, 2013, 44(10):1600-1608.

ZHAO H L, GAO Y X, LI J G, et al. Effect of sodium butyrate on growth,serum biochemical parameters and gastrointestinal development of weaning calves[J]. Acta Veterinaria et Zootechnica Sinica, 2013, 44(10):1600-1608. (in Chinese)

[12]
LIU L X, SUN D M, MAO S Y, et al. Infusion of sodium butyrate promotes rumen papillae growth and enhances expression of genes related to rumen epithelial VFA uptake and metabolism in neonatal twin lambs[J]. Journal of Animal Science, 2019, 97(2):909-921.

DOI PMID

[13]
GORKA P, KOWALSKI Z M, PIETRZAK P, et al. Effect of sodium butyrate supplementation in milk replacer and starter diet on rumen development in calves[J]. Journal of Physiology and Pharmacology, 2009, 60(Suppl 3):47-53.

DOI

[14]
张瑞阳, 孟玲, 李方方, 等. 包被丁酸钠对断奶仔猪生长性能、血清生化指标、养分表观消化率和粪便微生物菌群的影响[J]. 动物营养学报, 2019, 31(5):2296-2302.

ZHANG R Y, MENG L, LI F F, et al. Effects of coated sodium butyrate on growth performance,serum biochemical indices,nutrient apparent digestibility and fecal microflora population of weaning piglets[J]. Chinese Journal of Animal Nutrition, 2019, 31(5):2296-2302. (in Chinese)

[15]
孟玲. 包被丁酸钠对断奶仔猪生长性能和血液生化指标的影响[D].硕士学位论文. 沈阳: 沈阳农业大学, 2016.

MENG L. Effect of coated sodium butyrate on growth performance and blood biochemical indexes on weaning piglets[D].Master's Thesis. Shenyang: Shenyang Agricultural University, 2016. (in Chinese)

[16]
STAHL T C, HATUNGIMANA E, KLANDERMAN K D, et al. Sodium butyrate and monensin supplementation to postweaning heifer diets:effects on growth performance,nutrient digestibility,and health[J]. Journal of Dairy Science, 2020, 103(11):10207-10218.

DOI

[17]
陈想, 左丽君, 王可鑫, 等. 包膜丁酸钠对断奶羔羊免疫和抗氧化指标的影响[J]. 动物营养学报, 2021, 33(7):3949-3958.

DOI

CHEN X, ZUO L J, WANG K X, et al. Effects of coated sodium butyrate on immune and antioxidant indexes of weaned lambs[J]. Chinese Journal of Animal Nutrition, 2021, 33(7):3949-3958. (in Chinese)

[18]
阿明古丽·牙生. 日粮中添加丁酸钠对围产期奶牛和新生犊牛免疫力和抗氧化能力的影响[D].硕士学位论文. 乌鲁木齐市: 新疆农业大学, 2014.

YASHENG A M G L. Effects of sodium butyrate supplementation on immunity and its antioxidant functions in transition cows and neonatal calves[D].Master's Thesis. Urumqi: Xinjiang Agricultural University, 2014. (in Chinese)

[19]
LAN R X, ZHAO Z H, LI S Q, et al. Sodium butyrate as an effective feed additive to improve performance,liver function,and meat quality in broilers under hot climatic conditions[J]. Poultry Science, 2020, 99(11):5491-5500.

DOI

[20]
MA N N, ABAKER J A, BILAL M S, et al. Sodium butyrate improves antioxidant stability in sub-acute ruminal acidosis in dairy goats[J]. BMC Veterinary Research, 2018, 14(1):275.

DOI PMID

[21]
王彦东. 丁酸钠释放速率对犊牛抗氧化功能、免疫机能和断奶应激的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2020.

WANG Y D. Effects of release rate of sodium butyrate on anti-oxidative function、immune function and weaning stress of calves[D].Master's Thesis. Hohhot: Inner Mongolia Agricultural University, 2020. (in Chinese)

[22]
张昕妍, 段春辉, 杨若晨, 等. 妊娠后期添加丁酸钠对湖羊母羊生长性能、养分表观消化率、血清抗氧化和免疫指标及羔羊生长性能的影响[J]. 动物营养学报, 2022, 34(10):6550-6564.

DOI

ZHANG X Y, DUAN C H, YANG R C, et al. Effects of sodium butyrate supplementation during late gestation on growth performance,nutrient apparent digestibility,serum antioxidant and immune indices of Hu sheep ewes and growth performance of lambs[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6550-6564. (in Chinese)

[23]
SIKANDAR A, ZANEB H, YOUNUS M, et al. Effect of sodium butyrate on performance,immune status,microarchitecture of small intestinal mucosa and lymphoid organs in broiler chickens[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(5):690-699.

DOI

[24]
ZHANG T, XIA M, ZHAN Q, et al. Sodium butyrate reduces organ injuries in mice with severe acute pancreatitis through inhibiting HMGB1 expression[J]. Digestive Diseases and Sciences, 2015, 60(7):1991-1999.

DOI

[25]
JIANG L Q, WANG J J, LIU Z Y, et al. Sodium butyrate alleviates lipopolysaccharide-induced inflammatory responses by down-regulation of NF-κB,NLRP3 signaling pathway,and activating histone acetylation in bovine macrophages[J]. Frontiers in Veterinary Science, 2020, 7:579674.

[26]
HERRICK K J, HIPPEN A R, KALSCHEUR K F, et al. Single-dose infusion of sodium butyrate,but not lactose,increases plasma β-hydroxybutyrate and insulin in lactating dairy cows[J]. Journal of Dairy Science, 2017, 100(1):757-768.

DOI

[27]
MENTSCHEL J, LEISER R, MÜLLING C, et al. Butyric acid stimulates rumen mucosa development in the calf mainly by a reduction of apoptosis[J]. Animal Nutrition, 2001, 55(2):85-102.

[28]
LESMEISTER K E, TOZER P R, HEINRICHS A J. Development and analysis of a rumen tissue sampling procedure[J]. Journal of Dairy Science, 2004, 87(5):1336-1344.

PMID

[29]
HAYASHI K, CARPENTER K D, WELSH T H,Jr, et al. The IGF system in the neonatal ovine uterus[J]. Reproduction, 2005, 129(3):337-347.

PMID

[30]
FIRTH S M, BAXTER R C. Cellular actions of the insulin-like growth factor binding proteins[J]. Endocrine Reviews, 2002, 23(6):824-854.

DOI PMID

[31]
徐菊美. 丁酸钠对猪肠黏膜免疫、肠道发育和菌群区系的影响[D].硕士学位论文. 南京: 南京农业大学, 2017.

XU J M. Effects of sodium buryrate on mucosal immune,intestine development and microbiota in pigs[D].Master's Thesis. Nanjing: Nanjing Agricultural University, 2017. (in Chinese)

[32]
FENG W Q, WU Y C, CHEN G X, et al. Sodium butyrate attenuates diarrhea in weaned piglets and promotes tight junction protein expression in colon in a GPR109A-dependent manner[J]. Cellular Physiology and Biochemistry, 2018, 47(4):1617-1629.

DOI PMID

[33]
ZHANG K, MENG M J, GAO L P, et al. Sodium butyrate improves high-concentrate-diet-induced impairment of ruminal epithelium barrier function in goats[J]. Journal of Agricultural and Food Chemistry, 2018, 66(33):8729-8736.

DOI PMID

[34]
ALLEN M S. Drives and limits to feed intake in ruminants[J]. Animal Production Science, 2014, 54(10):1513-1524.

DOI

[35]
YAN L, ZHANG B, SHEN Z M. Dietary modulation of the expression of genes involved in short-chain fatty acid absorption in the rumen epithelium is related to short-chain fatty acid concentration and pH in the rumen of goats[J]. Journal of Dairy Science, 2014, 97(9):5668-5675.

DOI PMID

[36]
YANG W, SHEN Z, MARTENS H. An energy-rich diet enhances expression of Na+/H+ exchanger isoform 1 and 3 messenger RNA in rumen epithelium of goat[J]. Journal of Animal Science, 2012, 90(1):307-317.

DOI

[37]
SCHLAU N, GUAN L L, OBA M. The relationship between rumen acidosis resistance and expression of genes involved in regulation of intracellular pH and butyrate metabolism of ruminal epithelial cells in steers[J]. Journal of Dairy Science, 2012, 95(10):5866-5875.

DOI PMID

Outlines

/