RESEARCH PAPER

Effects of Dietary Fermented Silkworm Excrement on Growth, Digestive, Immune and Inflammation of Grass Carp (Ctenopharyngodon idella)

  • WU Cangcang ,
  • HE Jixiang , * ,
  • WU Benli ,
  • HUANG Long ,
  • CHEN Jing ,
  • CHEN Xiajun ,
  • ZHANG Ye ,
  • WU Song ,
  • WANG Xiang
Expand
  • Anhui Province Key Laboratory of Aquaculture & Stock Enhancement, Institute of Fisheries, Anhui Academy of Agricultural Sciences, Hefei 230031, China
*professor, E-mail:

Received date: 2022-09-15

  Online published: 2023-03-16

Abstract

This experiment was conducted to study the effects of dietary fermented silkworm excrement on growth, digestive, immune and inflammation of grass carp (Ctenopharyngodon idella). A total of 240 juvenile grass carp with initial average weight of (44.51±0.42) g were randomly divided into 5 groups with 3 replicates per group and 16 fish per replicate. Fish in 5 groups were fed experimental diets which the fermented silkworm excrement supplemental levels of 0 (control group), 5%, 10%, 15% and 20%, respectively. The experiment lasted for 8 weeks. The results showed as follows: 1) the final body weight, weight gain rate and specific growth rate of 15% and 20% fermented silkworm excrement groups were significantly lower than those of the control group (P<0.05), and the feed conversion rate was significantly higher than that of the control group (P<0.05). 2) The hepatosomatic index and viscerasomatic index of 10%, 15% and 20% fermented silkworm excrement groups were significantly lower than those of the control group (P<0.05), and the intestine weight index of 15% and 20% fermented silkworm excrement group was significantly higher than that of the control group (P<0.05). 3) The body crude protein content of 10%, 15% and 20% fermented silkworm excrement groups was significantly higher than that of the control group (P<0.05), and the body crude ash content of 20% fermented silkworm excrement group was significantly higher than that of the control group (P<0.05). 4) The activities of lipase and trypsin in intestine of the control group were significantly higher than those of other groups (P<0.05). 5) The contents of complement 3 and immunoglobulin M in serum of 15% fermented silkworm excrement group were significantly higher than those of other groups (P<0.05); the serum alanine aminotransferase activity of 20% fermented silkworm excrement group was significantly lower than that of the control group (P<0.05), and the serum lysozyme activity was significantly higher than that of the control group (P<0.05); the serum malondialdehyde (MDA) content of 10%, 15% and 20% fermented silkworm excrement groups was significantly lower than that of the control group (P<0.05). 6) The mRNA relative expression level of tumor necrosis factor-α in intestine of 15% and 20% fermented silkworm excrement groups was significantly higher than that of the control group (P<0.05). To sum up, the addition of fermented silkworm excrement within 10% in the diet dose not affect the growth performance of grass carp; fermented silkworm excrement can improve the non-specific immunity level of grass carp to a certain extent; when the supplemental level of fermented silkworm excrement is more than 15%, the growth performance and digestion of grass carp reduces, and the risk of intestinal inflammation increases. Therefore, the dietary fermented silkworm excrement supplemental level of grass carp should be controlled within 10%, and the regression analysis based on specific growth rate shows that the dietary fermented silkworm excrement suitable supplemental level of grass carp is 8.65%.

Cite this article

WU Cangcang , HE Jixiang , WU Benli , HUANG Long , CHEN Jing , CHEN Xiajun , ZHANG Ye , WU Song , WANG Xiang . Effects of Dietary Fermented Silkworm Excrement on Growth, Digestive, Immune and Inflammation of Grass Carp (Ctenopharyngodon idella)[J]. Chinese Journal of Animal Nutrition, 2023 , 35(3) : 1883 -1894 . DOI: 10.12418/CJAN2023.177

蚕沙,又名原蚕沙、马鸣肝等,一般是指蚕(Bombyx mori)排放的干燥粪便,混合了桑树枝叶、消毒剂、蚕座垫条等杂质[1]。我国桑蚕产业非常发达,每年能够收集的蚕沙将近500万t[2],然而大多数蚕沙或被废弃,或仅用于堆肥[3],未能得到较好的利用,造成了资源浪费。蚕沙可入药[4],含有丰富的营养物质,粗蛋白质含量约为15%,粗脂肪含量约为2%[5],氨基酸、维生素、叶绿素、果胶、黄酮和微量元素含量丰富[6]
草鱼(Ctenopharyngodon idella)隶属于鲤形目(Cypriniformes),鲤科(Cyprinidae),草鱼属(Cteno pharyngodon),是典型的草食性鱼类[7],也是我国最重要的淡水养殖品种之一,2020年全国草鱼产量已超过555万t[8]。养殖产量的增加意味着对饲料的需求加大,在全球饲料原料资源愈发紧缺、价格不断攀升的大背景下[9],寻找新的原料来源替代鱼粉、豆粕等大宗原料已成为动物营养学界共同研究的课题。蚕沙具有较高的营养价值,理论上可以成为一种新型非粮饲料蛋白质源[10]。传统的桑基鱼塘模式中,蚕沙被直接投入池塘养鱼,但是由于其中夹杂了很多桑树枝叶,容易造成水体污染[11]。蚕沙作为饲料原料在羊[12-14]、鹅[15]、兔[16]等畜禽类养殖中也有所应用,然而蚕沙作为渔用配合饲料原料成分的研究还鲜见报道。基于此,本试验通过配制不同发酵蚕沙添加水平的配合饲料养殖草鱼,研究其对草鱼生长、消化、免疫及肠道炎症的影响,探究发酵蚕沙作为草鱼饲料原料的可行性及其适宜添加水平,以期为解决饲料原料紧缺、推动蚕沙资源循环利用提供新的思路。

1 材料与方法

1.1 试验材料

试验所用蚕沙收集于肥西县金盛军蚕桑养殖专业合作社,为5龄末期蚕的鲜蚕沙,自然风干后筛除桑树枝叶、生石灰等杂质。为了降低蚕沙中亚硝酸盐和某些抗营养因子含量,蚕沙在使用前经过一步发酵过程。将蚕沙、豆粕、麦麸按48:1:1的质量比例混匀作为发酵基料。发酵在密封条件下以微生物(枯草芽孢杆菌、乳酸菌、酵母菌混合物,其中枯草芽孢杆菌和乳酸菌活菌数>1×10⁷ CFU/g,酵母菌活菌数>5×109 CFU/g)接种量2%、水分45%、温度32 ℃、时间64 h作为参数[17]。发酵桶中接入发酵基料总质量2%的糖蜜作为碳源,总质量0.2%的磷酸氢二钾作为无机盐来源。发酵前后蚕沙营养水平对比见表1
表1 发酵前后蚕沙营养水平对比

Table 1 Comparison of nutrient levels of silkworm excrement before and after fermentation

项目 Items 发酵前 Before fermentation 发酵后 After fermentation
粗蛋白质 Crude protein/% 14.77 15.87
粗脂肪 Ether extract/% 1.94 3.52
粗灰分 Ash/% 15.13 14.09
粗纤维 Crude fiber/% 17.36 16.21
总能 Gross energy/(MJ/kg) 15.11 16.44
亚硝酸盐 Nitrite/(mg/kg) 17.52
单宁 Tannins/(mg/g) 9.67 6.32
植酸 Phytic acid/(mg/g) 25.45 20.76

1.2 试验设计与饲养管理

试验鱼来自安徽省农业科学院水产研究所养殖基地,运回实验室后暂养1个月,适应室内养殖环境,暂养期间持续增氧,保持水体溶氧含量在5 mg/L以上;定期检测水体pH、氨氮和亚硝酸盐浓度,保证pH在7.5~8.0,氨氮浓度低于0.2 mg/L,亚硝酸盐浓度低于0.1 mg/L。养殖环境的光周期稳定在14L:10D。水温在25 ℃以上开始正式试验。试验挑选240尾体色正常、健壮无病、初始均重为(44.51±0.42) g的草鱼幼鱼,随机分为5组,每组3个重复,每个重复16尾鱼。随机投放入15个直径0.8 m、高0.8 m的圆柱形玻璃纤维桶内独立饲养。各组分别投喂发酵蚕沙添加水平分别为0(对照组)、5%、10%、15%和20%的试验饲料。养殖试验持续8周。试验期间,每天分别饱食投喂配合饲料2次(08:00和16:00),收集残饵粪便,并记录每日的摄食量。试验过程中每日换水1次,换水量约为总水体的1/3。试验期间水质条件与暂养保持一致。
以发酵蚕沙替代部分豆粕、面粉和玉米淀粉,按照发酵蚕沙添加水平(0、5%、10%、15%和20%)分别配制5组等氮等能的试验饲料。饲料配制前,各原料分别用粉碎机粉碎后过60目筛,按照重量从小到大逐级混匀,随后加入豆油和水(水占比30%),充分搅拌均匀。采用实验室的饲料制粒机制作直径为2 mm的沉性颗粒饲料(制粒温度90~95 ℃),风干后保存在-20 ℃冰箱中。试验饲料组成及营养水平见表2
表2 试验饲料组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of experimental diets (air-dry basis)%

项目
Items
发酵蚕沙添加水平 Fermented silkworm excrement supplemental level/%
0 5 10 15 20
原料 Ingredients
鱼粉 Fish meal 12.00 12.00 12.00 12.00 12.00
豆粕 Soybean meal 25.00 24.30 23.60 22.90 22.20
菜籽粕 Rapeseed meal 20.00 20.00 20.00 20.00 20.00
面粉 Wheat flour 30.00 26.50 23.00 19.50 16.00
玉米淀粉 Corn starch 8.50 7.70 6.90 6.10 5.30
发酵蚕沙 Fermented silkworm excrement 5.00 10.00 15.00 20.00
豆油 Soybean oil 2.00 2.00 2.00 2.00 2.00
磷酸二氢钙 Ca(H2PO4)2 1.46 1.46 1.46 1.46 1.46
维生素预混料 Vitamin premix1) 0.50 0.50 0.50 0.50 0.50
矿物质预混料 Mineral premix2) 0.50 0.50 0.50 0.50 0.50
防霉剂 Mould inhibitor 0.03 0.03 0.03 0.03 0.03
抗氧化剂 Antioxidant 0.01 0.01 0.01 0.01 0.01
合计 Total 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels3)
粗蛋白质 CP 32.91 33.02 33.31 33.11 33.29
粗脂肪 EE 5.71 5.28 5.56 5.27 5.64
粗灰分 Ash 6.15 7.22 8.05 8.85 9.70
粗纤维 CF 5.41 6.61 7.77 8.52 9.89
总能 GE/(MJ/kg) 16.58 16.50 16.47 16.17 16.25
水分 Moisture 9.82 9.87 9.84 9.91 9.79

1)每千克维生素预混料含有 One kilogram of vitamin premix contained the following: VA 6 000 IU,VD3 1 600 000 IU,VE 50 mg,VK3 5 mg,VB1 15 mg,VB2 20 mg,泛酸钙 calcium pantothenate 50 mg,叶酸 folic acid 5 mg,生物素 biotin 0.1 mg,肌醇 inositol 100 mg。

2)每千克矿物质预混料含有 One kilogram of mineral premix contained the following: FeSO4·H2O 300 mg,CuSO4·5H2O 20 mg,ZnSO4·H2O 400 mg,MnSO4·H2O 150 mg,MgSO4·H2O 2 000 mg,KCl 200 mg。

3)营养水平为实测值。Nutrient levels were measured values.

1.3 样品采集与指标测定

养殖试验结束后对鱼饥饿24 h处理,随后分别统计各组鱼数量,称量各组总重,计算各组鱼的生长性能。每缸中随机取3尾鱼,称量体重和体长后冻存在-20 ℃冰箱中,用于全鱼体成分的测定。从每缸中另随机取3尾鱼,用MS-222(间氨基苯甲酸乙酯甲磺酸盐,100 mg/L)麻醉后依次称量鱼体重和体长,随后于尾静脉取血,4 ℃静置过夜后用高速冷冻离心机3 000 r/min离心15 min获得血清样品,用于测定鱼体生化和免疫指标。取血后于冰盘上解剖鱼体,取出内脏团并分别称量内脏团、肝胰脏和肠道的重量,同时测量肠道长度,用以计算各形体指标。取部分肠道组织,先冻存于液氮中,随后转入-80 ℃冰箱中保存,用以测定鱼体消化酶活性和肠炎相关基因表达量。

1.3.1 全鱼体成分

鱼体粗蛋白质含量采用全自动凯氏定氮仪(Kjeltec-2300,FOSS,瑞典),按照凯氏定氮法(GB 5009.5—2016)测定,鱼体经过充分消化、蒸馏、稀释、洗涤和滴定,测出氮含量乘以6.25即为粗蛋白质含量;粗脂肪含量采用索氏抽提法(GB 5009.6—2016)测定,将鱼体放入索氏提取仪(Soxtec 2050,Hoganas,瑞典)中利用乙醚充分抽提,最后测得粗脂肪含量;粗灰分含量采用灼烧法(GB 5009.4—2016)测定,将鱼体放置于马福炉(Yamato Scientific Co., Ltd.,日本)中,550 ℃灼烧12 h后测得粗灰分含量;水分含量采用烘干法(GB 5009.3—2016)测定,将鱼体放入烘箱(DHG-9240A,上海齐欣科学仪器有限公司),105 ℃条件下烘干至恒重,通过计算鱼体失重测得水分含量。

1.3.2 生长指标

根据生长参数和饲料投喂情况,计算各组草鱼的存活率(survival rate,SR)、增重率(weight gain rate,WGR)、特定生长率(specific growth rate,SGR)、饲料系数(feed conversion rate,FCR)和摄食率(feeding rate,FR),计算公式如下:
存活率(%)=100×(终末鱼数量/初始鱼数量);
增重率(%)=100×(终末鱼总重-初始鱼总重)/初始鱼总重;
特定生长率(%/d)=100×(ln终末鱼均重-ln初始鱼均重)/试验天数;
饲料系数=总摄食量/(终末鱼总重-初始鱼总重);
摄食率(%/d)=100×总摄食量/(初始鱼总重/2+终末鱼总重/2)/试验天数。

1.3.3 形体指标

根据解剖时测量的参数,计算各组草鱼的肥满度(condition factor,CF)、肝体比(hepatosomatic index,HSI)、脏体比(viscerasomatic index,VSI)、肠体比(intestine weight index,IWI)和肠长比(intestine somatic index,ISI),计算公式如下:
肥满度(g/cm3)=100×体重/体长3;
肝体比(%)=100×肝脏重/体重;
脏体比(%)=100×内脏重/体重;
肠体比(%)=100×肠重/体重;
肠长比=肠长/体长。

1.3.4 血清生化、免疫指标和肠道消化酶活性

血清非特异性免疫指标补体3(complement 3,C3)、免疫球蛋白M(immunoglobulin M,IgM)、丙二醛(malondialdehyde,MDA)含量和溶菌酶(lysozyme,LZM)活性,血清生化指标谷丙转氨酶(alanine aminotransferase,ALT)、谷草转氨酶(aspartate aminotransferase,AST)活性,肠道组织中胰蛋白酶(trypsin,TPS)、α-淀粉酶(α-amylase,AMS)和脂肪酶(lipase,LPS)活性由试剂盒测定。试剂盒购买自南京建成生物工程研究所。各指标均严格按照试剂盒说明书进行测定,其中肠道组织在测定之前需按要求制成相应浓度的组织匀浆。

1.3.5 肠道炎症相关基因表达

在研钵中加入液氮冷冻降温,将肠道样品置于其中研磨成粉末。使用UNIQ-10柱式Trizol总RNA抽提试剂盒(B511321)提取RNA,操作步骤严格按照试剂盒说明书进行。随后分别用1.5%琼脂糖凝胶电泳和微量分光光度计(Merinton Instrument Inc,SMA4000)分析总RNA的质量和浓度。质检合格后以1 800 ng总RNA为模板,使用PrimeScriptTM反转录试剂盒(TaKaRa,日本)合成cDNA。通过查询NCBI网站信息和Primier 5.0软件设计目标基因的引物,以肌动蛋白(β-actin)为内参基因,引物均由生工生物工程(上海)股份有限公司合成,实时荧光定量PCR引物序列见表3。实时荧光定量PCR在QuantStudio 3&5 PCR仪(Thermo Fisher,美国)上进行,定量结果以2-ΔΔCt方法计算。
表3 实时荧光定量PCR引物序列

Table 3 Primer sequences for quantitative real-time PCR

基因
Genes
上游引物
Forward primer
下游引物
Reverse primer
退火温度
Tm/℃
β-肌动蛋白 β-actin TTGACTTCGAGCAGGAGAT GGCACCTGAACCTCTCATT 58.2
肿瘤坏死因子-α TNF-α AACCAGGACCAGGCTTTCTC GCATAACTGCGTGGCTCATA 58.1
白细胞介素-1β IL-1β ACTTTTGAATCCGTTAAATATCCTG TGTGAAGTCTGTGATTCGGCTA 58.4

1.4 数据统计与分析

试验数据由Excel 2019进行整理统计,采用SPSS 21.0软件进行单因素方差分析(one-way ANOVA)和Duncan氏法多重检验,P<0.05表示差异显著。结果用平均值±标准差(mean±SD)表示。

2 结果

2.1 饲料中添加发酵蚕沙对草鱼生长性能、形体指标和体成分的影响

表4可知,养殖期间,各组草鱼未出现死亡现象,存活率均为100%。对照组及5%和10%发酵蚕沙组之间草鱼的终末均重、增重率和特定生长率无显著差异(P>0.05),但是均显著高于15%和20%发酵蚕沙组(P<0.05);对照组和5%发酵蚕沙组草鱼的饲料系数显著低于15%和20%发酵蚕沙组(P<0.05);各组之间草鱼的摄食率无显著差异(P>0.05)。
表4 饲料中添加发酵蚕沙对草鱼生长性能的影响

Table 4 Effects of dietary fermented silkworm excrement on growth performance of grass carp

项目
Items
发酵蚕沙添加水平 Fermented silkworm excrement supplemental level/%
0(对照 Control) 5 10 15 20
初始均重 IBW/g 44.31±0.35 44.18±0.27 44.34±0.41 44.21±0.39 44.28±0.45
终末均重 FBW/g 115.93±0.82b 116.57±1.16b 120.65±2.19b 102.43±2.01a 104.75±1.95a
存活率 SR/% 100 100 100 100 100
增重率 WGR/% 161.12±5.41b 163.85±2.43b 172.32±4.32b 131.35±4.73a 136.27±2.94a
特定生长率 SGR/(%/d) 1.71±0.08b 1.73±0.01b 1.79±0.09b 1.50±0.09a 1.53±0.07a
摄食率 FR/(%/d) 1.88±0.01 1.86±0.05 1.94±0.07 1.91±0.09 1.96±0.10
饲料系数 FCR 1.16±0.05a 1.15±0.05a 1.24±0.02ab 1.31±0.06b 1.37±0.07b

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

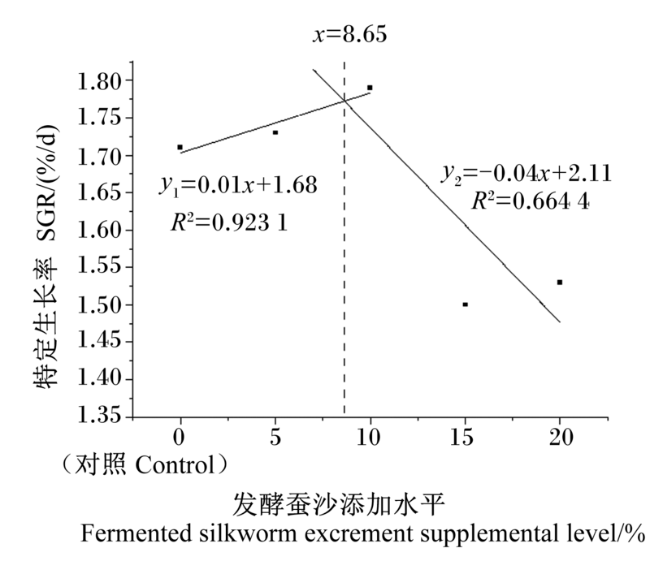
图1可知,本试验条件下,以特定生长率为依据,经过折线模型拟合得出,草鱼饲料发酵蚕沙适宜添加水平为8.65%。
图1 饲料发酵蚕沙添加水平与草鱼特定生长率的折线模型

Fig.1 Broken-line model between dietary fermented silkworm excrement supplemental level and specific growth rate of grass carp

解剖观察草鱼各脏器和肠道,形态和外观上均未出现异常情况。由表5可知,对照组和5%发酵蚕沙组草鱼的肝体比和脏体比均显著高于其他各组(P<0.05);15%和20%发酵蚕沙组草鱼的肠体比显著高于对照组(P<0.05);各组之间草鱼的肥满度和肠长比无显著差异(P>0.05)。
表5 饲料中添加发酵蚕沙对草鱼形体指标的影响

Table 5 Effects of dietary fermented silkworm excrement on body index of grass carp

项目
Items
发酵蚕沙添加水平 Fermented silkworm excrement supplemental level/%
0(对照 Control) 5 10 15 20
肥满度 CF/(g/cm3) 1.86±0.13 1.94±0.12 1.91±0.08 1.99±0.12 1.97±0.11
肝体比 HSI/% 1.75±0.08b 1.85±0.16b 1.46±0.13a 1.39±0.16a 1.51±0.15a
脏体比 VSI/% 15.94±1.49b 15.61±1.18b 13.49±1.27a 13.81±1.03a 13.99±0.93a
肠体比 IWI/% 2.27±0.09a 2.31±0.24a 2.47±0.29ab 3.09±0.15c 2.94±0.34bc
肠长比 ISI 1.83±0.13 1.88±0.14 1.95±0.07 1.94±0.08 1.90±0.14
表6可知,10%、15%和20%发酵蚕沙组草鱼的鱼体粗蛋白质含量显著高于对照组(P<0.05);20%发酵蚕沙组草鱼的鱼体粗灰分含量显著高于对照组(P<0.05);各组之间草鱼的鱼体粗脂肪和水分含量无显著差异(P>0.05)。
表6 饲料中添加发酵蚕沙对草鱼体成分的影响

Table 6 Effects of dietary fermented silkworm excrement on body composition of grass carp%

项目
Items
发酵蚕沙添加水平 Fermented silkworm excrement supplemental level/%
0(对照 Control) 5 10 15 20
粗蛋白质 CP 13.65±0.16a 13.86±0.22ab 14.23±0.20c 14.01±0.15bc 14.03±0.16bc
粗脂肪 EE 5.54±0.78 6.17±0.38 5.70±0.97 6.54±0.99 6.01±0.98
粗灰分 Ash 1.76±0.46a 2.15±0.49ab 2.10±0.33ab 1.72±0.21a 2.32±0.17b
水分 Moisture 75.22±0.69 75.04±1.02 75.47±1.38 74.40±0.87 75.22±0.65

2.2 饲料中添加发酵蚕沙对草鱼肠道消化酶活性、血清生化和免疫指标的影响

表7可知,对照组草鱼的肠道α-淀粉酶活性显著高于20%发酵蚕沙组(P<0.05),肠道脂肪酶和胰蛋白酶活性显著高于其他各组(P<0.05)。
表7 饲料中添加发酵蚕沙对草鱼肠道消化酶活性的影响

Table 7 Effects of dietary fermented silkworm excrement on intestinal digestive enzyme activities of grass carpU/g prot

项目
Items
发酵蚕沙添加水平 Fermented silkworm excrement supplemental level/%
0(对照 Control) 5 10 15 20
α-淀粉酶AMS 485.83±37.12b 370.29±31.31ab 345.78±24.13ab 466.55±40.52b 311.80±26.57a
脂肪酶 LPS 601.45±53.49c 336.17±27.10b 400.21±43.54b 228.49±22.19a 336.09±27.43b
胰蛋白酶 TPS 5.25±0.67b 2.28±0.38a 2.44±0.26a 2.17±0.24a 1.64±0.23a
表8可知,15%发酵蚕沙组草鱼的血清补体3和免疫球蛋白M含量显著高于其他各组(P<0.05);20%发酵蚕沙组草鱼的血清谷丙转氨酶活性显著低于对照组(P<0.05);20%发酵蚕沙组草鱼的血清溶菌酶活性显著高于其他各组(P<0.05);10%、15%和20%发酵蚕沙组草鱼的血清丙二醛含量显著低于对照组和5%发酵蚕沙组(P<0.05);各组之间草鱼的血清谷草转氨酶活性无显著差异(P>0.05)。
表8 饲料中添加发酵蚕沙对草鱼血清生化和免疫指标的影响

Table 8 Effects of dietary fermented silkworm excrement on serum biochemical and immune indexes of grass carp

项目
Items
发酵蚕沙添加水平 Fermented silkworm excrement supplemental levels/%
0(对照 Control) 5 10 15 20
补体3 C3/(μg/mL) 21.35±2.86a 25.40±4.57a 23.69±3.13a 35.14±6.01b 22.94±4.03a
免疫球蛋白M
IgM/(μg/mL)
10.04±1.59b 8.46±1.33ab 10.40±1.25b 13.62±1.64c 6.83±0.87a
谷丙转氨酶 ALT/(U/mL) 58.46±6.36b 60.33±9.40b 59.44±5.45b 43.29±5.62ab 33.78±3.25a
谷草转氨酶 AST/(U/mL) 32.72±3.02 32.81±2.87 34.90±3.86 32.34±3.53 31.01±2.79
溶菌酶 LZM/(μg/mL) 1.02±0.15ab 0.72±0.12a 1.18±0.21b 1.26±0.25b 1.65±0.24c
丙二醛 MDA/(nmol/mL) 15.34±0.89b 14.12±1.01b 13.01±0.43a 12.36±0.76a 12.13±0.48a

2.3 饲料中添加发酵蚕沙对草鱼肠道促炎因子mRNA相对表达量的影响

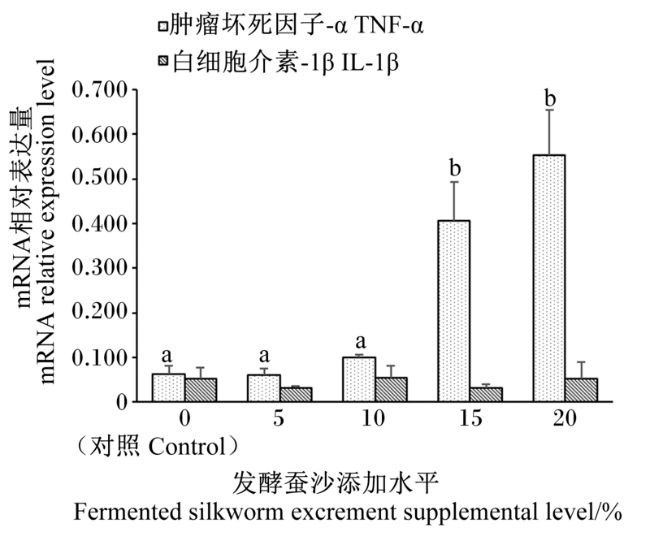
图2可知,随着饲料中发酵蚕沙添加水平升高,草鱼肠道促炎细胞因子肿瘤坏死因子-α(TNF-α)mRNA相对表达量持续上调,15%和20%发酵蚕沙组的肠道肿瘤坏死因子-α mRNA相对表达量显著高于其他各组(P<0.05);各组之间草鱼的肠道白细胞介素-1β(IL-1β)mRNA相对表达量无显著差异(P>0.05)。
图2 饲料中添加发酵蚕沙对草鱼肠道促炎因子mRNA相对表达量的影响

数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Fig.2 Effects of dietary fermented silkworm excrement on mRNA relative expression levels of proinflammatory factors in intestine of grass carp

Value columns with the same small letters mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05).

3 讨论

3.1 饲料中添加发酵蚕沙对草鱼生长、消化和体成分的影响

家蚕喜食的桑叶营养价值高,蚕沙作为家蚕的主要排泄物,其中残留了较多的未消化吸收的桑叶,加之收集蚕沙时不可避免地会混杂桑树枝叶,因此也含有丰富的营养成分[18]。目前,桑叶及其提取物在水产上已有诸多细致的研究[19-21],而蚕沙作为饲料在水产动物上的应用还仅限于较为简单粗放的养殖,未见系统的研究。20世纪80年代,诸德建等[22]就在桑基鱼塘的模式下,使用蚕沙为颗粒饲料的主要成分养殖草鱼,验证了蚕沙养鱼的可行性,但是饲料系数偏高。周祖波等[23]在异育银鲫的饲料中添加5%和10%的蚕沙,发现添加蚕沙组异育银鲫的增重率和特定生长率均显著提高,饵料系数显著降低。梁凌云等[24]利用蚕沙含量为10%、15%和20%的配合饲料饲养草鱼,结果显示蚕沙添加水平为10%和15%的饲料没有影响草鱼的增重,蚕沙添加水平达20%时草鱼增重显著下降。本试验中,发酵蚕沙添加水平10%以内对草鱼增重率、特定生长率以及饲料系数无显著影响,发酵蚕沙添加水平15%及以上则使草鱼增重率和特定生长率降低,饲料系数升高,这与上述研究结果基本一致,说明饲料中添加10%左右的发酵蚕沙可以满足草鱼的正常生长,并且能在一定程度上降低草鱼的肝体比和脏体比,促进草鱼健康生长。
然而蚕沙添加量过多会使鱼体生长减缓,其原因可能是蚕沙中的粗纤维、果胶等非淀粉多糖含量较高,影响了鱼体的消化功能。张得才[25]研究发现,饲料中添加9%及以上蚕沙后仔鹅的平均日采食量和平均日增重均显著降低,料重比显著升高。蚕沙中粗纤维含量通常达17%,研究表明,饲料中适量的粗纤维能够刺激肠道蠕动和消化酶的分泌,然而过高的粗纤维水平则会使肠道排空时间缩短,导致食物的消化率降低[26]。草鱼虽然是草食性动物,但是体内缺乏合成纤维素酶的相关基因,因此难以直接利用纤维素。对草鱼[27]、团头鲂[28]等草食性鱼类投喂含有纤维素酶的饲料后均发现鱼体增重率提高,饲料系数降低。蚕沙中果胶含量约占12%,果胶是一种水溶性非淀粉多糖,研究发现,摄入这种多糖后可能会改变鱼体肠道渗透压,增加肠道内水分含量,进而影响对食物的消化吸收[29]。本试验中,草鱼全鱼粗蛋白质含量随着发酵蚕沙添加水平的增加先上升后下降,考虑试验饲料的实测粗蛋白质含量在发酵蚕沙组有所上升造成了鱼体粗蛋白质含量的提高,而发酵蚕沙添加水平过多时,可能会因为果胶等非淀粉多糖较多影响了鱼体对饲料中蛋白质的利用和吸收,进而使鱼体粗蛋白质含量降低,张得才[25]在仔鹅的研究中发现了类似的结果。发酵蚕沙组草鱼全鱼粗灰分含量有所波动,可能是因为发酵蚕沙影响了鱼体对饲料中钙、磷等矿物质的吸收[30]。此外,研究显示非淀粉多糖能直接与肠道中的脂肪酶、胰蛋白酶等消化酶耦联[31],使其活性降低。本试验中,添加发酵蚕沙组草鱼的肠道脂肪酶、胰蛋白酶活性均显著低于对照组,与上述研究相吻合。有报道指出,非淀粉多糖类可能会改变鱼体肠道结构,并且增加消化器官的重量[32]。本试验结果也发现,添加15%以上发酵蚕沙组的草鱼肠体比显著高于对照组,这可能也是鱼体对肠道消化能力降低后的适应性改变。另外,蚕沙中往往会掺杂一些生石灰,添加量多容易造成饲料碱性过高和电解质失衡,也会影响鱼体的肠道功能[33]。因此,本试验条件下草鱼饲料中发酵蚕沙的添加水平应控制在10%以内,否则会影响草鱼的消化能力和生长性能。

3.2 饲料中添加发酵蚕沙对草鱼血清生化和免疫指标的影响

非特异性免疫是鱼体对抗外界病菌入侵的重要防线,补体3、免疫球蛋白M和溶菌酶等是其中具有代表性的免疫指标。补体3是血清补体系统中最主要的成分,同时参与补体的经典和旁路激活途径[34];免疫球蛋白M是免疫球蛋白系统中分子量最大的一支,发挥杀菌、激活补体等重要功能[35];溶菌酶能够通过水解细菌的细胞壁来杀死细菌,也可以激活补体系统和吞噬细胞[36]。本试验结果显示,饲粮中添加蚕沙后,草鱼血清补体3、免疫球蛋白M含量和溶菌酶活性均有不同程度地提高,说明蚕沙对于提高草鱼体液免疫水平有积极作用。正常情况下,血液中的谷丙转氨酶和谷草转氨酶活性都很低,当鱼体相应的细胞受到损伤时,谷丙转氨酶和谷草转氨酶就会大量释放到血液中,因此血清谷丙转氨酶和谷草转氨酶活性可以用来衡量鱼体肝脏和心脏等器官的健康程度[37]。丙二醛是机体中氧自由基攻击生物膜中的多不饱和脂肪酸引发脂质过氧化作用的产物,可以反映机体内细胞氧化损伤程度。本试验中,随着发酵蚕沙添加水平的增加,草鱼血清谷丙转氨酶活性有下降的趋势,并且15%及以上发酵蚕沙组血清谷丙转氨酶活性显著低于对照组。蚕沙中因为含有多种活性物质,如黄酮类化合物、叶绿素等具有抑菌、解毒和抗氧化等功效[33],这可能是本试验中蚕沙对草鱼非特异性免疫有正向作用的原因。陈冰等[38]发现饲粮中添加100 mg/kg桑叶黄酮后吉富罗非鱼肌肉超氧化物歧化酶(SOD)活性显著升高,而丙二醛含量显著降低。本试验中,草鱼血清丙二醛含量随着发酵蚕沙添加水平的提高呈下降趋势,10%及以上发酵蚕沙组血清丙二醛含量显著低于对照组,因此可以认为一定含量的蚕沙有助于提高鱼体的抗氧化能力。孙丽莎等[14]在饲粮中添加蚕沙养殖绵羊,发现添加蚕沙组绵羊血清总蛋白、球蛋白含量均高于对照组,各组绵羊血清谷丙转氨酶和谷草转氨酶活性无显著差异,与本试验结果有相似之处。

3.3 饲料中添加发酵蚕沙对草鱼炎症反应的影响

鱼类肠道不仅是重要的消化器官,对于鱼体的免疫也发挥不可替代的作用,肠道的完整和健康与否直接影响鱼体的生长甚至存活[39]。水体、食物中的细菌、病毒和寄生虫等入侵鱼体后容易损伤肠道黏膜,引发肠道炎症反应[40]。炎症反应的发生往往和鱼体内促炎细胞因子有关,其中,肿瘤坏死因子-α和白细胞介素-1β是在分子水平上评估肠道炎症反应的重要指标[41]。本试验结果发现,添加15%及以上发酵蚕沙组草鱼肠道肿瘤坏死因子-α的mRNA相对表达量显著上调,各组草鱼肠道白细胞介素-1β的mRNA相对表达量无显著差异,表明高发酵蚕沙添加水平可能会诱发草鱼肠道炎症,进而损伤肠道健康。饲料中添加蚕沙对于草鱼肠道炎症的影响目前并无相关报道,考虑到本试验中蚕沙虽然经过发酵,其中还存在一定的抗营养因子如单宁、植酸等,均来源于桑叶。蚕沙中单宁含量一般可达9 mg/g,植酸含量一般可达20 mg/g[17],蚕沙添加水平过多时容易造成饲料整体单宁和植酸水平偏高。Zhong等[42]研究发现,饲料中植酸含量在2.4%时,草鱼的生长性能没有受到影响,而肠道促炎因子瘤坏死因子-α、白细胞介素-1β等mRNA相对表达量均出现了显著上调;Li等[43]指出,饲料中单宁含量达3%时,草鱼肠道促炎因子白细胞介素-1β的mRNA相对表达量显著提高,而肿瘤坏死因子-α的mRNA相对表达量则无明显变化。这些研究虽然与本试验结果不完全相同,但是都说明了单宁、植酸对草鱼肠道炎症具有一定的诱导作用。因此,本试验条件下,饲料中发酵蚕沙添加水平需控制在10%以内,防止草鱼出现肠炎等健康问题。

4 结论

饲料中添加10%的发酵蚕沙可以满足草鱼的正常生长;饲料中添加发酵蚕沙对于提高草鱼的非特异性免疫水平有积极作用;饲料中发酵蚕沙添加水平达15%以上时,草鱼的生长性能和消化能力有所下降,并且存在诱发肠道炎症的风险。因此,草鱼饲料中发酵蚕沙添加水平应控制在10%以内为宜;以特定生长率为依据的回归分析表明,草鱼饲料中发酵蚕沙适宜添加水平为8.65%。
[1]
蒋勇兵, 黄仁志, 蒋诗梦, 等. 蚕沙的多元化利用研究进展[J]. 北方蚕业, 2019, 40(1):1-7,12.

JIANG Y B, HUANG R Z, JIANG S M, et al. Advances in the diversified utilization of silkworm excrement[J]. North Sericulture, 2019, 40(1):1-7,12. (in Chinese)

[2]
冉艳萍, 杨琼, 李丽, 等. 蚕沙资源利用研究进展[J]. 广东蚕业, 2014, 48(3):42-45.

RAN Y P, YANG Q, LI L, et al. Research progress on utilization of silkworm excrement resources[J]. Guangdong Sericulture, 2014, 48(3):42-45. (in Chinese)

[3]
岑忠用, 罗奉奉, 苏江, 等. 不同发酵处理对蚕沙腐熟及养分的影响试验初报[J]. 南方农业, 2019, 13(19):59-65.

CEN Z Y, LUO F F, SU J, et al. Preliminary report on the effects of different fermentation treatments on silkworm compost and nutrient[J]. South China Agriculture, 2019, 13(19):59-65. (in Chinese)

[4]
黄会桥, 杨华生, 聂晶. 试论蚕沙的功用[J]. 江西中医药, 2019, 50(7):8-9.

HUANG H Q, YANG H S, NIE J. On the function of silkworm excrement[J]. Jiangxi Journal of Traditional Chinese Medicine, 2019, 50(7):8-9. (in Chinese)

[5]
高云超, 肖更生, 廖森泰, 等. 蚕沙处理资源化利用研究进展[J]. 广东农业科学, 2011, 38(8):107-109.

GAO Y C, XIAO G S, LIAO S T, et al. Research progress on resource utilization of silkworm excrement treatment[J]. Guangdong Agricultural Sciences, 2011, 38(8):107-109. (in Chinese)

[6]
叶晶晶, 曹宁宁, 吴建梅, 等. 蚕沙资源的综合利用研究进展[J]. 四川蚕业, 2016, 44(4):10-11.

YE J J, CAO N N, WU J M, et al. Research progress on comprehensive utilization of silkworm excrement resources[J]. Sichuan Sericulture, 2016, 44(4):10-11. (in Chinese)

[7]
张瑞姿. 草鱼科学养殖和病害防治技术[J]. 农业工程技术, 2022, 42(8):83-84.

ZHANG R Z. Grass carp scientific breeding and disease control technology[J]. Applied Engineering Technology, 2022, 42(8):83-84. (in Chinese)

[8]
王宇光, 孙慧武. 中国草鱼产业发展的空间分布及演化研究——基于标准椭圆模型[J]. 中国农学通报, 2020, 36(25):142-151.

DOI

WANG Y G, SUN H W. Spatial distribution and evolution of grass carp industry in China:based on standard elliptic modela[J]. Chinese Agricultural Science Bulletin, 2020, 36(25):142-151. (in Chinese)

[9]
刘敏, 张海涛, 孙广文. 水产饲料中动物性蛋白源替代鱼粉的研究进展[J]. 饲料工业, 2019, 40(22):48-54.

LIU M, ZHANG H T, SUN G W. Advances in research on replacement of fishmeal by animal protein source in aquatic feed[J]. Feed Industry, 2019, 40(22):48-54. (in Chinese)

[10]
杜周和, 严旭, 张智勇, 等. 家蚕的营养摄食特性及蚕沙的饲用价值[J]. 江西农业学报, 2021, 33(4):91-97.

DU Z H, YAN X, ZHANG Z Y, et al. Ingestion property of silkworm and feeding value of silkworm litter[J]. Acta Agriculturae Jiangxi, 2021, 33(4):91-97. (in Chinese)

[11]
陈金洁, 程瑶, 章昕颖, 等. 桑基鱼塘陆面子系统物质循环利用研究进展[J]. 黑龙江农业科学, 2022(2):99-106.

CHEN J J, CHENG Y, ZHANG X Y, et al. Research progress of material recycling and utilization in mulberry-fish pond land surface system[J]. Heilongjiang Agricultural Sciences, 2022(2):99-106. (in Chinese)

[12]
郭春华, 柏雪, 黄艳玲, 等. 蚕沙对乐至黑山羊日粮干物质、能量和蛋白质消化代谢的影响[J]. 西南农业学报, 2011, 24(3):1144-1148.

GUO C H, BAI X, HUANG Y L, et al. Effect of silkworm feces on digestion and metabolism of dry matter,energy and protein for Lezhi black goats[J]. Southwest China Journal of Agricultural Sciences, 2011, 24(3):1144-1148. (in Chinese)

[13]
于婷婷, 柏雪, 郭春华, 等. 蚕沙对乐至黑山羊日粮纤维消化率的影响研究[J]. 中国饲料, 2011(7):17-19.

YU T T, BAI X, GUO C H, et al. Effects of replacement of different proportions of concentrate by silkworm feces on fiber digestibility of goat[J]. China Feed, 2011(7):17-19. (in Chinese)

[14]
孙丽莎, 赵睿, 崔慧慧, 等. 饲粮不同水平蚕沙对绵羊生长性能、屠宰性能、器官发育和血清生化指标的影响[J]. 动物营养学报, 2015, 27(3):941-947.

SUN L S, ZHAO R, CUI H H, et al. Effects of different silkworm excrement levels in diets on growth performance,slaughter performance,organ development and serum biochemical indexes of sheep[J]. Chinese Journal of Animal Nutrition, 2015, 27(3):941-947. (in Chinese)

[15]
陈翠玲, 陈晓华, 赵玮, 等. 育肥鹅日粮添加蚕沙的试验研究[J]. 中国科技信息, 2007(1):64-65,67.

CHEN C L, CHEN X H, ZHAO W, et al. Experimental study on adding silkworm excrement to diet of fattening geese[J]. China Science and Technology Information, 2007(1):64-65,67. (in Chinese)

[16]
尹永志, 郭春华, 黄艳玲, 等. 蚕沙对新西兰兔生产性能、屠宰性能及脏体比值的影响[J]. 中国饲料, 2010(20):23-25.

YIN Y Z, GUO C H, HUANG Y L, et al. Effects of silkworm feces on growth performance,slaughter performance and ratio of organ/body in New Zealand rabbits[J]. China Feed, 2010(20):23-25. (in Chinese)

[17]
陈乐乐. 蚕沙饲料用预加工方式及其亚硝酸盐降解措施的研究[D].硕士学位论文. 广州: 华南农业大学, 2018.

CHEN L L. Study on pretreatment method of silkworm excrement feed and its nitrite degradation measures[D].Master's Thesis. Guangzhou: South China Agricultural University, 2018. (in Chinese)

[18]
亐开兴, 李乔仙, 吴文荣, 等. 桑叶与蚕沙作为畜禽饲料的营养价值评定[J]. 云南农业大学学报(自然科学), 2018, 33(2):233-239.

QU K X, LI Q X, WU W R, et al. Evaluation on the nutritional values of mulberry leaf and silkworm feces as animal feed[J]. Journal of Yunnan Agricultural University (Natural Science), 2018, 33(2):233-239. (in Chinese)

[19]
冯麒凤, 李战福, 黄先智, 等. 日粮中添加桑叶提取物和1-脱氧野尻霉素对大鲵生长、消化、免疫能力和肠道菌群的影响[J]. 水生生物学报, 2021, 45(3):582-592.

FENG Q F, LI Z F, HUANG X Z, et al. Effects of dietary mulberry leaf extract and 1-deoxynojirimycin on growth,digestion and immunity capacity,and intestinal microorganism of Chinese giant salamander (Andrias davidianus)[J]. Acta Hydrobiologica Sinica, 2021, 45(3):582-592. (in Chinese)

[20]
孙彤, 李耀国, 肖调义, 等. 桑叶功能成分及其在水产养殖中的应用[J]. 饲料研究, 2021, 44(4):120-123.

SUN T, LI Y G, XIAO T Y, et al. Functional component of mulberry leave and its application in aquatic feed[J]. Feed Research, 2021, 44(4):120-123. (in Chinese)

[21]
黄静, 廖友新, 魏金涛, 等. 桑叶在水产养殖中的应用现状与发展方式探讨[J]. 北方蚕业, 2020, 41(4):45-49.

HUANG J, LIAO Y X, WEI J T, et al. Application status of mulberry leaves in aquaculture and the development pattern[J]. North Sericulture, 2020, 41(4):45-49. (in Chinese)

[22]
诸德建, 赵德蕴, 陆琤琤. 蚕沙养鱼的饲料价值应用试验[J]. 江苏蚕业, 1988(2):33-34.

ZHU D J, ZHAO D Y, LU C C. Application experiment of feed value of silkworm excrement fish culture[J]. Jiangsu Sericulture, 1988(2):33-34. (in Chinese)

[23]
周祖波, 郝传庆, 董思文, 等. 日粮中添加蚕沙对异育银鲫生长及饵料系数影响的应用试验[J]. 河北渔业, 2007(12):36,49.

ZHOU Z B, HAO C Q, DONG S W, et al. Trial on effect of adding silkworm excrement in diet on growth and feed conversion ratio of allogyogenetics silver crucian carp[J]. Hebei Fisheries, 2007(12):36,49. (in Chinese)

[24]
梁凌云, 韦欢. 草鱼配合饲料添加蚕沙养殖试验[J]. 农家科技(中旬刊), 2018(12):80-81.

LIANG L Y, WEI H. The experiment of adding silkworm excrement to compound feed of grass carp[J]. Farmhouse Technology (Midterm Issue), 2018, 2018(12):80-81. (in Chinese)

[25]
张得才. 蚕沙的营养价值评定及其在仔鹅饲粮中的应用研究[D].硕士学位论文. 扬州: 扬州大学, 2015.

ZHANG D C. Study on nutrition value and application in diets of silkworm excrement for geese[D].Master's Thesis. Yangzhou: Yangzhou University, 2015. (in Chinese)

[26]
魏远征, 林忠婷, 李建军. 诸氏鲻虾虎鱼幼鱼饲料纤维素适宜含量的初步研究[J]. 广东农业科学, 2017, 44(1):149-155.

WEI Y Z, LIN Z T, LI J J. Preliminary study on suitable cellulose content in formulated diet for juvenile Mugilogobius chulae[J]. Guangdong Agricultural Sciences, 2017, 44(1):149-155. (in Chinese)

[27]
谭崇桂, 戴朝洲, 许小霞, 等. 草鱼对饲料碳水化合物利用的研究进展[J]. 广东饲料, 2016, 25(11):40-41.

TAN C G, DAI C Z, XU X X, et al. Research progress on utilization of dietary carbohydrates by grass carp[J]. Guangdong Feed, 2016, 25(11):40-41. (in Chinese)

[28]
余丰年, 王道尊, 徐洪杰. 纤维素酶对团头鲂生长及饲料利用的影响[J]. 上海水产大学学报, 2001, 10(1):90-92.

YU F N, WANG D Z, XU H J. Influence of addition dietary cellulase on growth and feed utilization of fingerling Megalobrama amblycephala[J]. Journal of Shanghai Fisheries University, 2001, 10(1):90-92. (in Chinese)

[29]
HU J, RAN C, HE S X, et al. Dietary microbial phytase exerts mixed effects on the gut health of tilapia:a possible reason for the null effect on growth promotion[J]. British Journal of Nutrition, 2016, 115(11):1958-1966.

DOI

[30]
马恒甲, 叶金云, 郭建林, 等. 饲料中添加植酸酶对草鱼生长、体组成及各组织磷含量的影响[J]. 上海海洋大学学报, 2011, 20(6):845-852.

MA H J, YE J Y, GUO J L, et al. Effect of phytase on growth,body composition and phosphorus content in tissues of juvenile grass carp (Ctenopharyngodon idellus) fed plant protein based diet[J]. Journal of Shanghai Ocean University, 2011, 20(6):845-852. (in Chinese)

[31]
WANG Y B, WANG Q, LIAN S Y, et al. Dietary jellyfish affect digestive enzyme activities and gut microbiota of Pampus argenteus[J]. Comparative Biochemistry and Physiology Part D:Genomics and Proteomics, 2021, 40:100923.

[32]
WANG J, KORTNER T M, CHIKWATI E M, et al. Gut immune functions and health in Atlantic salmon (Salmo salar) from late freshwater stage until one year in seawater and effects of functional ingredients:a case study from a commercial sized research site in the Arctic region[J]. Fish & Shellfish Immunology, 2020, 106:1106-1119.

[33]
陈乐乐, 黄静, 邝哲师, 等. 蚕沙的饲用价值及应用现状与开发前景展望[J]. 蚕业科学, 2017, 43(5):713-719.

CHEN L L, HUANG J, KUANG Z S, et al. Feeding value,application status and development prospect of silkworm litter[J]. Acta Sericologica Sinica, 2017, 43(5):713-719. (in Chinese)

[34]
王志平, 张士璀, 王光锋. 鱼类补体系统成分及补体特异性和功能的研究进展[J]. 水生生物学报, 2008, 32(5):760-769.

WANG Z P, ZHANG S C, WANG G F. Advances on the complement components,characteristic and function of complement system in fish[J]. Acta Hydrobiologica Sinica, 2008, 32(5):760-769. (in Chinese)

DOI

[35]
MAGNADÓTTIR B. Innate immunity of fish (overview)[J]. Fish & Shellfish Immunology, 2006, 20(2):137-151.

[36]
ORTEGA-VILLAIZAN M D M, CHICO V, PEREZ L. Fish innate immune response to viral infection-an overview of five major antiviral genes[J]. Viruses, 2022, 14(7):1546.

DOI

[37]
李泽鑫, 宋凯, 鲁康乐, 等. 发酵中药制剂对石斑鱼肝细胞氧化损伤的保护作用[J]. 黑龙江畜牧兽医, 2018(14):171-175.

LI Z X, SONG K, LU K L, et al. Protective effect of fermented traditional Chinese medicine against oxidative damage of grouper liver cells[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(14):171-175. (in Chinese)

[38]
陈冰, 杨继华, 曹俊明, 等. 桑叶黄酮对吉富罗非鱼肌肉抗氧化指标及营养组成的影响[J]. 淡水渔业, 2018, 48(3):90-95.

CHEN B, YANG J H, CAO J M, et al. Effects of dietary mulberry leaf flavonoids on muscle antioxidant indices and nutritional compositions of GIFT,Oreochromis niloticus[J]. Freshwater Fisheries, 2018, 48(3):90-95. (in Chinese)

[39]
胡鹏莉, 吴瑞, 鲁康乐, 等. 复合蛋白替代鱼粉对花鲈生长、消化能力和肠道健康的影响[J]. 渔业科学进展, 2019, 40(6):56-65.

HU P L, WU R, LU K L, et al. Effects of replacing fish meal with composite protein on growth,diet digestibility,and gut health in Japanese seabass (Lateolabrax maculatus)[J]. Progress in Fishery Sciences, 2019, 40(6):56-65. (in Chinese)

[40]
刘立鹤, 张恒, 聂伟, 等. 草鱼配合饲料添加酵母培养物对草鱼生长性能、肝肠功能的影响[J]. 武汉轻工大学学报, 2014, 33(1):34-39.

LIU L H, ZHANG H, NIE W, et al. Effects of grass carp feed added yeast culture on growth performance,the function of liver and bowel of grass carp (Ctenopharyngodon idellus)[J]. Journal of Wuhan Polytechnic University, 2014, 33(1):34-39. (in Chinese)

[41]
张冬梅, 颜浩骁, 罗茂林, 等. 饲料中添加枯草芽孢杆菌对大口黑鲈幼鱼生长、肠道组织结构、抗氧化能力、免疫能力和肠炎的影响[J]. 动物营养学报, 2022, 34(1):575-588.

DOI

ZHANG D M, YAN H X, LUO M L, et al. Effects of dietary Bacillus subtilis on growth,intestinal tissue structure,antioxidant capacity,immunity and enteritis of juvenile largemouth bass (Micropterus salmoides)[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):575-588. (in Chinese)

[42]
ZHONG J R, FENG L, JIANG W D, et al. Phytic acid disrupted intestinal immune status and suppressed growth performance in on-growing grass carp (Ctenopharyngodon idella)[J]. Fish & Shellfish Immunology, 2019, 92:536-551.

[43]
LI M, FENG L, JIANG W D, et al. Condensed tannins decreased the growth performance and impaired intestinal immune function in on-growing grass carp (Ctenopharyngodon idella)[J]. British Journal of Nutrition, 2020, 123(7):737-755.

DOI

Outlines

/