RESEARCH PAPER

Effects of Enzymolytic Chicken Hemoglobin Meal Replacing Fish Meal on Growth Performance, Antioxidant Capacity,Immunity and Intestinal Flora of Juvenile Trachinotus ovatus

  • YUE Ru , 1, 2 ,
  • HUANG Xiaolin 2, 3 ,
  • TAN Xiaohong 4 ,
  • ZHOU Zengtai 5 ,
  • YU Wei 2, 3 ,
  • ZONG Zhilun 5 ,
  • HUANG Zhong 2, 3 ,
  • ZHOU Chuanpeng 2 ,
  • XUN Pengwei 2 ,
  • HUANG Jianbin 2 ,
  • LIN Heizhao , 2, 3, *
Expand
  • 1 College of Ocean, Hebei Agricultural University, Qinhuangdao 066003, China
  • 2 Guangdong Provincial Key Laboratory of Fishery Ecology and Environment, Key Laboratory of South China Sea Fishery Resources Exploitation&Utilization, Ministry of Agriculture and Rural Affairs, South China Sea Fisheries Research Institute, Chinese Academy of Fishery Sciences, Guangzhou 510300, China
  • 3 Shenzhen Base of South China Sea Fisheries Research Institute, Chinese Academy of Fishery Sciences, Shenzhen 518121, China
  • 4 College of Animal Sciences and Technology, Zhongkai University of Agriculture and Engineering, Guangzhou 510225, China
  • 5 Xiangyang Win-Plus Biotechnology Co., Ltd., Xiangyang 441200, China
*professor, E-mail:

Received date: 2022-08-24

  Online published: 2023-03-16

Abstract

This experiment was conducted to study the effects of enzymolytic chicken hemoglobin meal replacing fish meal on growth performance, plasma biochemical and immune parameters, blood cell counts, intestinal morphology, hepatic antioxidant capacity and intestinal flora of juvenile Trachinotus ovatus. A total of 300 robust Trachinotus ovatus with the average body weight of (6.66±0.17) g were randomly divided into 4 groups with 3 replicates per group and 25 fish per replicate. Fish in the control group were fed a basal diet, and others in experimental groups were fed isonitrogenous and isolipid diets with enzymolytic chicken hemoglobin meal replacing 1.5% (P1.5 group), 3.0% (P3.0 group) and 4.5% (P4.5 group) fish meal in the basal diet, respectively. The experiment lasted for 8 weeks. The results showed as follows: 1) the final body weight, weight gain rate, specific growth rate, feed intake and protein efficiency ratio in P3.0 and P4.5 groups were significantly lower than those in P0 and P1.5 groups (P<0.05). 2) There were no significant differences in the contents of moisture, ash, crude protein and ether extract in whole fish among all groups (P>0.05). 3) The plasma glucose (GLU), triglyceride (TG), low density lipoprotein (LDL) contents and glutamic-oxalacetic transaminase (AST) activity in P1.5 group were significantly lower than those in P0, P3.0 and P4.5 groups (P<0.05). 4) The contents of complement 3 (C3) and complement 4 (C4) in plasma in P1.5 and P3.0 groups were significantly higher than those in P0 and P4.5 groups (P<0.05), and the plasma alkaline phosphatase (ALP) activity and numbers of white blood cells and red blood cells in blood in P1.5, P3.0 and P4.5 groups were significantly higher than those in P0 group (P<0.05). 5) The activities of catalase (CAT), superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px) in liver in P3.0 and P4.5 groups were significantly lower than those in P0 and P1.5 groups (P<0.05), and the liver malondialdehyde (MDA) content in P4.5 group was significantly higher than that in P0, P1.5 and P3.0 groups (P<0.05). 6) The midgut and hindgut villus height in P3.0 and P4.5 groups was significantly lower than that in P0 and P1.5 groups (P<0.05), and the midgut and hindgut villus width in P4.5 group was significantly lower than that in P0 and P1.5 groups(P<0.05). 7) At the phylum level, the relative abundances of Cyanobacteria and Actinobacteriota in intestine in P1.5 and P4.5 groups were significantly higher than that in P0 group (P<0.05), and the relative abundances of Proteobacteria, Firmicutes and Bacteroidota in intestine were significantly lower than that in P0 group (P<0.05). At the genus level, the relative abundances of Cyanobium_PSC-6307 and Mycobacterium in intestine in P1.5 and P4.5 groups were significantly higher than those in P0 group (P<0.05), and the relative abundances of Lactococcus, Phreatobacter, Alphaproteobacteria_unclassified and Elizabethkingia in intestine were significantly lower than those in P0 group (P<0.05). In conclusion, the replacement of fish meal with 1.5% enzymolytic chicken hemoglobin meal in diet can enhance body immunity, improve the intestinal flora structure, and have similar effects on growth performance, intestinal morphology and antioxidant capacity as fish meal.

Cite this article

YUE Ru , HUANG Xiaolin , TAN Xiaohong , ZHOU Zengtai , YU Wei , ZONG Zhilun , HUANG Zhong , ZHOU Chuanpeng , XUN Pengwei , HUANG Jianbin , LIN Heizhao . Effects of Enzymolytic Chicken Hemoglobin Meal Replacing Fish Meal on Growth Performance, Antioxidant Capacity,Immunity and Intestinal Flora of Juvenile Trachinotus ovatus[J]. Chinese Journal of Animal Nutrition, 2023 , 35(3) : 1910 -1925 . DOI: 10.12418/CJAN2023.179

卵形鲳鲹(Trachinotus ovatus)隶属鲈形目、鲹科、鲳鲹属,是一种深受消费者喜爱的海水食用鱼类。随着水产动物营养研究水平的提高以及饲料生产工艺的改进,配合饲料在水产养殖上发挥重要作用,大部分养殖鱼类基本可以全程使用配合饲料。鱼粉具有适口性好、蛋白质含量高等优点[1]。近年来,鱼粉日渐缺乏[2],饲料成本不断上涨,严重制约了水产养殖行业的经济效益。因此,寻找营养丰富且成本低廉的新型鱼粉替代物,成为当下水产饲料产业研究的热点[3]。许多植物性蛋白质源如花生粕、豆粕等价格较低,但存在抗营养因子种类多、必需氨基酸(蛋氨酸、赖氨酸及苏氨酸)含量不足等问题[4],因此,动物性蛋白质源的研究不断拓展。
全球的畜禽屠宰量大,但对畜禽血液的利用远远不够,导致资源浪费和环境污染[5]。鸡血的蛋白质含量达到70%(干物质基础),且血球蛋白含量占总蛋白含量的1/2以上[6],而细胞膜的存在使血球蛋白难以被降解和吸收。酶解鸡血球蛋白粉是由鸡血经过独特的酶法定向水解制得。研究表明,饲料中血球蛋白粉替代50%的鱼粉对尼罗罗非鱼(Oreochromis niloticus)生长性能和饲料利用率无显著影响,而饲料中血球蛋白粉替代100%鱼粉显著降低了特定生长率(SGR)[7]。血球蛋白粉在大口黑鲈(Micropterus salmoides)饲料中替代鱼粉的水平为9.8%时,对特定生长率没有显著影响;当替代水平为19.61%时,特定生长率、红细胞数量和血红蛋白含量显著降低[8]。血球蛋白粉可替代珍珠龙胆石斑鱼(Epinephelus fuscoguttatus×Epinephelus lanceolatus)幼鱼饲料中17.3%~23.3%的鱼粉,且不会对鱼体生长性能和肠道发育产生负面影响;而高血球蛋白粉(45%~90%)替代鱼粉显著降低了幼鱼饲料利用率、生长性能和采食量,不利于肠道发育[9]。由此可见,血球蛋白粉有替代部分鱼粉的潜力。
本实验室在先前的猪肉粉替代鱼粉的研究中发现,饲料中鱼粉水平从30%降低到20%对卵形鲳鲹生长性能和饲料利用率无显著影响[10]。本研究在此基础上,对卵形鲳鲹饲料鱼粉替代水平进一步研究,通过探讨酶解鸡血球蛋白粉对卵形鲳鲹生长性能、血浆生化和免疫指标、血细胞数量、肠道形态、肝脏抗氧化能力及肠道菌群的影响,以期为卵形鲳鲹饲料中增加畜牧副产品的使用量以及畜禽血液资源的合理利用提供理论依据。

1 材料与方法

1.1 试验饲料

试验用酶解鸡血球蛋白粉由某生物科技有限公司提供。首先配制鱼粉含量为20%的基础饲料,记为P0;然后用酶解鸡血球蛋白粉分别替代基础饲料中1.5%、3.0%、4.5%的鱼粉,共配制3种等氮等脂的饲料,分别记为P1.5、P3.0、P4.5。试验饲料组成及营养水平见表1,饲料及原料氨基酸组成见表2。称取各类粉碎的原料并按组成比例由小至大进行逐级混匀,再将混匀的原料搅拌7 min;取出后,按试验配方加入相应比例的大豆卵磷脂和鱼油后过40目筛,再将适量蒸馏水加入原料中继续搅拌6 min;最后使用F-26双螺旋杆挤条机和G-500造粒机将原料挤压成直径为2.5 mm柱形条状物,然后切成颗粒饲料。风干后,将试验饲料分装到装有对应标签的真空密封袋内,于-20 ℃条件下保存。
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis)%

项目
Items
饲料 Diets
P0 P1.5 P3.0 P4.5
原料 Ingredients
鱼粉 Fish meal 20.0 18.5 17.0 15.5
酶解鸡血球蛋白粉 Enzymolytic chicken hemoglobin meal 1.5 3.0 4.5
大豆浓缩蛋白 Soybean protein concentrate 8.0 8.0 8.0 8.0
豆粕 Soybean meal 18.0 18.0 18.0 18.0
花生粕 Peanut meal 9.0 8.8 8.5 8.2
猪肉粉 Pork meal 10.0 10.0 10.0 10.0
啤酒酵母 Beer yeast 5.0 5.0 5.0 5.0
小麦粉 Wheat flour 21.9 21.9 21.9 21.9
鱼油 Fish oil 4.5 4.5 4.7 4.8
大豆卵磷脂 Soybean lecithin 1.0 1.0 1.0 1.0
氯化胆碱 Choline chloride 0.5 0.5 0.5 0.5
抗氧化剂 Antioxidant 0.1 0.1 0.1 0.1
预混料 Premix1) 1.0 1.0 1.0 1.0
磷酸二氢钙 Ca(H2PO4)2 0.5 0.5 0.5 0.5
微晶纤维 Micro-cellulose 0.5 0.7 0.8 1.0
合计 Total 100.0 100.0 100.0 100.0
营养水平 Nutrient levels2)
水分 Moisture 9.68 10.10 10.60 10.25
粗灰分 Ash 12.34 11.90 12.83 11.56
粗蛋白质 Crude protein 43.81 44.42 44.38 44.09
粗脂肪 Crude lipid 12.04 11.90 12.47 12.19

1)每千克预混料含有 One kilogram of premix contained the following: VA≥4 500 IU,VD3 3 000~4 000 IU,VE≥80 IU,VK3≥8 mg,VB1≥10 mg,VB2≥10 mg,VB6≥15 mg,VB12≥0.05 mg,VC≥105 mg,烟酰胺 nicotinamide≥20 mg,D-泛酸 D-pantothenic acid≥35 mg,叶酸 folic acid≥5 mg,D-生物素 D-biotin≥0.05 mg,肌醇 inositol≥120 mg,Cu 2~5 mg,Fe 200~300 mg,Mn 20~60 mg,Zn 60~135 mg,Mg 0.12~0.20 mg。

2)营养水平为实测值。Nutrient levels were measured values.

表2 饲料及原料氨基酸组成(干物质基础)

Table 2 Composition of amino acids in diets and raw materials (DM basis)%

项目
Items
原料 Raw materials 饲料 Diets
鱼粉
Fish meal
酶解鸡血球蛋白粉
Enzymolytic chicken
hemoglobin meal
P0 P1.5 P3.0 P4.5
必需氨基酸 EAA
苏氨酸 Thr 2.55 4.24 1.50 1.46 1.51 1.50
缬氨酸 Val 2.93 4.45 1.70 1.62 1.78 1.55
蛋氨酸 Met 1.82 1.28 0.68 0.65 0.64 0.61
异亮氨酸 Ilel 2.50 3.04 1.50 1.43 1.54 1.31
亮氨酸 Leu 4.53 7.63 2.87 2.75 2.87 2.82
苯丙氨酸 Phe 2.44 4.19 1.81 1.67 1.75 1.72
组氨酸 His 1.56 4.70 1.01 1.00 1.06 1.07
赖氨酸 Lys 4.94 7.65 2.36 2.25 2.35 2.31
精氨酸 Arg 4.00 3.68 2.69 2.56 2.62 2.51
色氨酸 Trp 0.00 0.76 0.00 0.00 0.00 0.00
必需氨基酸总量 Total EAA 27.27 41.62 16.12 15.39 16.12 15.40
非必需氨基酸 NEAA
脯氨酸 Pro 3.37 2.60 2.28 2.15 2.18 2.20
天冬氨酸 Asp 5.64 7.43 3.85 3.70 3.81 3.77
谷氨酸 Glu 9.06 7.62 6.83 6.56 6.63 6.55
丝氨酸 Ser 2.39 3.25 1.84 1.78 1.80 1.85
甘氨酸 Gly 5.79 3.29 2.53 2.41 2.46 2.41
丙氨酸 Ala 4.67 6.12 2.18 2.12 2.20 2.21
半胱氨酸 Cys 0.00 0.57 0.44 0.43 0.43 0.44
酪氨酸 Tyr 1.93 2.66 1.21 1.00 0.99 0.93
非必需氨基酸总量 Total NEAA 32.85 33.54 21.16 20.15 20.50 20.36

1.2 试验设计和饲养管理

养殖试验在南海水产研究所深圳基地池塘网箱(1.0 m×1.0 m×1.8 m)中进行。挑选300尾平均体质量为(6.66±0.17) g的健壮的卵形鲳鲹,随机分为4组,每组3个重复,每个重复25尾。对照组(P0组)投喂基础饲料,试验组分别投喂以酶解鸡血球蛋白粉替代基础饲料中1.5%(P1.5组)、3.0%(P3.0组)和4.5%(P4.5组)鱼粉的等氮等脂饲料。
试验期8周,每天07:00和17:00饱食投喂。试验期间,温度28.0~32.3 ℃,溶氧含量>5.0 mg/L,pH 7.4~8.0,氨氮含量<0.05 mg/L。

1.3 样品采集

采样前,将鱼禁食24 h。采样时,测量5尾鱼的体长及体重。使用经质量分数为1%的肝素钠溶液润洗的2.5 mL注射器抽取上述试验鱼的静脉血,离心(4 ℃、3 000×g)10 min后,收集上清液注入1.5 mL离心管,于-80 ℃保存,用于血浆生化和免疫指标的测定;使用未经润洗的1 mL注射器抽取上述试验鱼的静脉血,用于血细胞数量的测定;按上述测量顺序依次解剖试验鱼,称量并记录内脏团和肝脏的质量。称其质量后,分离出完整的肠道和肝脏,用解剖刀切取约5 mm长的中、后肠段组织,并用多聚甲醛固定液进行固定,于室温下保存,用于组织切片的制作;将肝脏样品于-20 ℃保存,用于抗氧化酶活性的测定。分别从P0组、P1.5组和P4.5组的每个网箱中额外随机选取3尾试验鱼,分离出完整的肠道于5 mL离心管内,-80 ℃保存,用于肠道菌群分析。

1.4 指标测定

1.4.1 生长性能与饲料利用率

增重率(WGR)、特定生长率、饲料系数(FCR)、摄食量(FI)、存活率(SR)、脏体指数(VSI)、肝体指数(HSI)、蛋白质效率(PER)、肥满度(CF)的计算公式如下;
增重率(%/d)=(Wt-W0)/W0×100;
特定生长率(%)=(lnWt-lnW0)/t×100;
饲料系数=Wf/(Wt-W0);
摄食量(g/d)=Wf/t;
存活率(%)=(Nt/N0)×100;
脏体指数(%)=Wv/W×100;
肝体指数(%)=Wh/W×100;
蛋白质效率=(Wt-W0)/Wp;
肥满度(g/cm3)=(W/I3)×100。
式中:W0为初始体质量(g);Wt为终末体质量(g);t为试验时长(d);Wf为总摄食量(g);Wh为肝脏质量(g);W为体质量(g);Wv为内脏团质量(g);Wp为摄入蛋白质的质量(g);I为体长(cm);Nt为终末鱼条数(条);N0为初始鱼条数(条)。

1.4.2 营养成分分析

试验结束后,将饲料和全鱼样品用DHG-9240电热恒温鼓风干燥箱(105 ℃)烘干测定水分含量。饲料和全鱼样品磨成粉末后,称取2 g粉末放入FO611C马弗炉(550 ℃)烘干后测定粗灰分含量;称取0.5 g粉末使用SOXTHERM-416全自动快速索式抽提仪测定粗脂肪含量;称取0.5 g粉末使用VAPODEST-500凯氏定氮仪测定粗蛋白质含量。
饲料氨基酸含量委托中国水产科学研究院南海水产研究所,参照《饲料中氨基酸的测定》(GB/T 18246—2019)进行检测。

1.4.3 血浆生化、免疫指标和血细胞数量

血浆葡萄糖(GLU)、甘油三酯(TG)、低密度脂蛋白(LDL)、高密度脂蛋白(HDL)含量及谷丙转氨酶(ALT)、谷草转氨酶(AST)和碱性磷酸酶(ALP)活性采用ROCHE-p800全自动生化分析仪进行测定,血浆补体3(C3)和补体4(C4)含量参照试剂盒(南京建成生物工程研究所)说明书进行测定,血液白细胞和红细胞数量使用五分类血液细胞分析仪(mindray BC-5000 Vet)进行测定。

1.4.4 肝脏抗氧化指标

参照试剂盒(南京建成生物工程研究所)说明书测定肝脏超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)活性和丙二醛(MDA)含量以及总抗氧化能力(T-AOC)。

1.4.5 肠道形态学指标

委托武汉塞维尔生物科技有限公司对中、后肠段组织样品进行苏木精-伊红(HE)染色,制作切片。用PANNORAMIC DESK全景切片扫描仪(3DHISTECH,匈牙利)扫描成像后,再使用CaseViewer 2.4软件(3DHISTECH,匈牙利)测量肠道绒毛高度、绒毛宽度和肌层厚度。

1.4.6 肠道菌群

委托广州吉瑞基因科技有限公司对全肠样品进行总DNA的提取、特异性扩增以及测序,并进行物种的分类及分析。

1.5 统计分析

采用Excel 2019对试验数据进行初步整理。采用SPSS 23.0软件对试验数据进行单因素方差分析(one-way ANOVA),试验数据通过方差同质性验证后采用Duncan氏法进行多重比较,显著水平为0.05。数据用“平均值±标准差(mean±SD)”表示。

2 结果

2.1 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼生长性能、饲料利用率和体成分的影响

表3所示,P3.0和P4.5组的终末体质量、增重率、特定生长率、摄食量和蛋白质效率显著低于P0和P1.5组(P<0.05),且增重率及特定生长率随着酶解鸡血球蛋白粉替代水平上升呈下降趋势。P4.5组的饲料系数显著高于P0和P1.5组(P<0.05),且各试验组饲料系数随着酶解鸡血球蛋白粉替代水平上升呈升高趋势。
表3 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼生长性能和饲料利用率的影响

Table 3 Effects of enzymolytic chicken hemoglobin meal replacing fish meal on growth performance and feed utilization of juvenile T. ovatus

项目
Items
组别 Groups P
P-value
P0 P1.5 P3.0 P4.5
初始体质量 IBW/g 6.71±0.03 6.55±0.11 6.63±0.08 6.71±0.04 0.082
终末体质量 FBW/g 54.86±0.11a 54.82±0.14a 51.40±0.05b 49.92±0.26c <0.001
增重率 WGR/% 717.99±1.97a 736.80±11.59a 674.90±9.77b 644.22±3.93c <0.001
特定生长率 SGR/(%/d) 3.45±0.01a 3.48±0.03a 3.36±0.02b 3.29±0.01c <0.001
饲料系数 FCR 1.55±0.01b 1.54±0.02b 1.58±0.01ab 1.61±0.01a <0.001
摄食量 FI/(g/d) 30.55±0.16a 30.46±0.25a 28.94±0.14b 28.56±0.16c <0.001
蛋白质效率 PER 1.47±0.01a 1.46±0.01a 1.43±0.00b 1.41±0.01c <0.001
存活率 SR/% 98.67±2.31 98.67±2.31 96.00±0.00 100.00±0.00 0.085
脏体指数 VSI/% 5.70±0.06 5.57±0.03 5.72±0.15 5.72±0.18 0.436
肝体指数 HSI/% 0.86±0.01 0.87±0.00 0.91±0.05 0.91±0.03 0.111
肥满度 CF/(g/cm3) 3.40±0.04 3.30±0.05 3.31±0.04 3.37±0.09 0.284

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

表4所示,各组之间全鱼水分、粗灰分、粗蛋白质和粗脂肪含量没有显著差异(P>0.05)。
表4 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼全鱼体成分的影响(鲜重基础)

Table 4 Effects of enzymolytic chicken hemoglobin meal replacing fish meal on whole body composition of juvenile T. ovatus (fresh weight basis)%

项目
Items
组别 Groups P
P-value
P0 P1.5 P3.0 P4.5
水分 Moisture 68.67±1.46 69.20±0.44 68.70±0.10 68.87±0.74 0.855
粗蛋白质Crude protein 17.39±0.90 17.20±0.08 17.45±0.17 17.51±0.46 0.895
粗脂肪 Crude lipid 9.55±0.35 8.95±0.21 9.26±0.30 9.22±0.10 0.118
粗灰分 Ash 4.29±0.22 4.31±0.08 4.38±0.03 4.35±0.14 0.815

2.2 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼血浆生化、免疫指标和血细胞数量的影响

表5所示,P1.5组的血浆GLU、TG、LDL含量和AST活性显著低于P3.0、P4.5和P0组(P<0.05),且随着酶解鸡血球蛋白粉替代水平升高呈先下降后升高趋势。P1.5组的血浆ALT活性显著低于P3.0和P0组(P<0.05)。各组之间血浆HDL含量没有显著差异(P>0.05)。
表5 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹血浆生化指标的影响

Table 5 Effects of enzymolytic chicken hemoglobin meal replacing fish meal on plasma biochemical parameters of juvenile T. ovatus

项目
Items
组别 Groups P
P-value
P0 P1.5 P3.0 P4.5
葡萄糖 GLU/(mmol/L) 17.57±0.18a 13.85±0.31c 15.48±0.41b 15.51±0.55b <0.001
甘油三酯 TG/(mmol/L) 1.68±0.02b 1.20±0.05c 1.88±0.15b 2.14±0.14a <0.001
谷丙转氨酶 ALT/(U/L) 11.00±1.00b 9.00±0.00c 13.00±1.00a 10.67±1.15bc 0.005
谷草转氨酶 AST/(U/L) 120.00±10.00a 59.33±6.51c 91.67±8.50b 85.67±6.11b <0.001
高密度脂蛋白 HDL/(mmol/L) 2.68±0.19 2.68±0.10 2.53±0.06 2.51±0.04 0.176
低密度脂蛋白 LDL/(mmol/L) 0.30±0.03b 0.20±0.01c 0.35±0.01a 0.36±0.01a <0.001
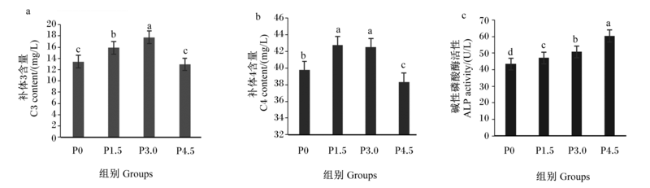
图1所示,P1.5和P3.0组的血浆C3和C4含量显著高于P4.5和P0组(P<0.05),且随着酶解鸡血球蛋白粉替代水平升高呈先上升后降低趋势。P4.5组的血浆ALP活性显著高于P1.5、P3.0和P0组(P<0.05),且随着酶解鸡血球蛋白粉替代水平升高呈上升趋势。
图1 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼血浆免疫指标的影响

数据柱标注不同字母表示差异显著(P<0.05)。图2同。

Fig.1 Effects of enzymolytic chicken hemoglobin meal replacing fish meal on plasma immune parameters of juvenile T. ovatus

Value columns with different small letters mean significant difference (P<0.05). The same as Fig.2.

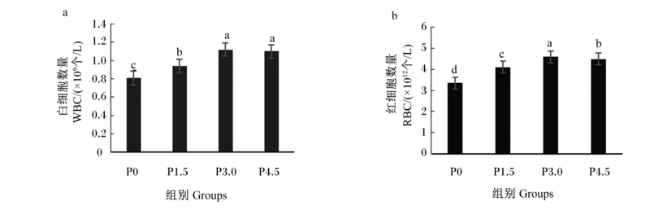
图2所示,P1.5组的血液白细胞和红细胞数量显著高于P0组(P<0.05),且血液白细胞数量随着酶解鸡血球蛋白粉替代水平升高呈上升趋势,血液红细胞数量随着酶解鸡血球蛋白粉替代水平升高呈先上升后降低趋势。
图2 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼血细胞数量的影响

Fig.2 Effects of enzymolytic chicken hemoglobin meal replacing fish meal on blood cell counts of juvenile T. ovatus

2.3 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肝脏抗氧化指标的影响

表6所示,P3.0和P4.5组的肝脏CAT、SOD和GSH-Px活性显著低于P0和P1.5组(P<0.05),P4.5组的肝脏MDA含量显著高于P1.5、P3.0和P0组(P<0.05),各组之间肝脏T-AOC没有显著差异(P>0.05)。
表6 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肝脏抗氧化指标的影响

Table 6 Effects of enzymolytic chicken hemoglobin meal replacing fish meal on liver antioxidant parameters of juvenile T. ovatus

项目
Items
组别 Groups P
P-value
P0 P1.5 P3.0 P4.5
超氧化物歧化酶 SOD/(U/mg) 271.47±14.12a 262.99±17.45a 209.89±13.33b 208.77±14.42b 0.001
过氧化氢酶 CAT/(U/mg) 14.80±0.61a 14.53±0.65a 12.61±0.56b 12.57±0.40b 0.002
丙二醛 MDA/(mmol/mg) 1.17±0.05b 1.09±0.04bc 1.00±0.08c 1.36±0.03a <0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/mg)
22.21±1.58a 22.43±1.30a 19.44±1.10b 19.81±0.71b 0.031
总抗氧化能力 T-AOC/(U/g) 0.82±0.02 0.77±0.02 0.74±0.08 0.74±0.02 0.079

2.4 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肠道组织结构的影响

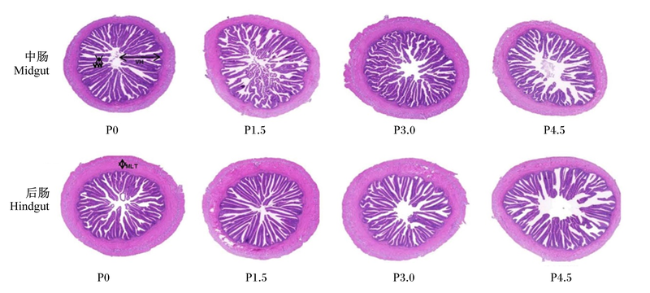
表7所示,P3.0和P4.5组的中肠和后肠的绒毛高度显著低于P0和P1.5组(P<0.05)。P4.5组的中肠绒毛宽度显著低于P0和P1.5组(P<0.05),P3.0和P4.5组的后肠绒毛宽度显著低于P0和P1.5组(P<0.05)。各组之间中肠和后肠肌层厚度没有显著差异(P>0.05)。此外,如图3所示,卵形鲳鲹幼鱼的肠道组织均没有发生明显的形态学病变。
表7 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肠道组织形态学指标的影响

Table.7 Effects of chicken hemoglobin meal replacing fish meal on intestinal histomorphological parameters of juvenile T. ovatusμm

项目
Items
组别 Groups P
P-value
P0 P1.5 P3.0 P4.5
中肠 Midgut
绒毛高度 Villus height 759.30±1.68a 758.17±5.67a 728.57±8.04b 611.90±4.27c <0.001
绒毛宽度 Villus width 77.00±3.05a 72.70±2.71a 70.53±4.76ab 63.97±3.65b 0.014
肌层厚度 Muscular layer thickness 164.03±1.55 161.93±1.76 162.60±3.04 160.67±2.18 0.368
后肠 Hindgut
绒毛高度 Villus height 752.93±3.97a 750.13±3.17a 742.23±3.63b 688.80±4.06c <0.001
绒毛宽度 Villus width 93.97±4.59a 92.27±2.30a 85.57±3.30b 79.33±2.68b 0.002
肌层厚度 Muscular layer thickness 227.20±5.50 226.67±5.82 221.50±1.67 221.33±6.18 0.382
图3 卵形鲳鲹幼鱼的肠道组织HE染色

P0:P0组 P0 group;P1.5:P1.5组 P1.5 group;P3.0:P3.0组 P3.0 group;P4.5:P4.5组 P4.5 group。下图同 The same as below。

VH:绒毛高度;VW:绒毛宽度;MLT:肌层厚度。VH: villus height; VW: villus width; MLT: muscular layer thickness.

Fig.3 HE staining of intestinal tissue of juvenile T. ovatus (500 μm)

2.5 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肠道菌群的影响

2.5.1 Alpha多样性分析

Chao1和observed_species数值越高,表明物种数越多。Shannon指数越大,表示群落中多样性高。如表8所示,P1.5和P4.5组的肠道菌群Chao1、Observed species和Shannon指数均显著高于P0组(P<0.05),各组之间Simpson指数和Pielou-e指数没有显著差异(P>0.05)。
表8 肠道菌群Alpha多样性分析

Table 8 Alpha diversity analysis of intestinal flora

项目
Items
组别 Groups P
P-value
P0 P1.5 P4.5
Chao1指数 Chao1 index 187.70±42.40b 410.17±42.77a 371.70±36.50a <0.001
Observed species指数 Observed species index 187.40±42.58b 410.00±42.72a 371.60±36.45a <0.001
Shannon指数 Shannon index 3.92±0.42b 4.68±0.31a 4.66±0.23a 0.005
Simpson指数 Simpson index 0.84±0.04 0.88±0.02 0.88±0.01 0.110
Pielou-e指数 Pielou-e index 0.52±0.04 0.54±0.03 0.55±0.02 0.521

2.5.2 操作分类单元(OTU)数量

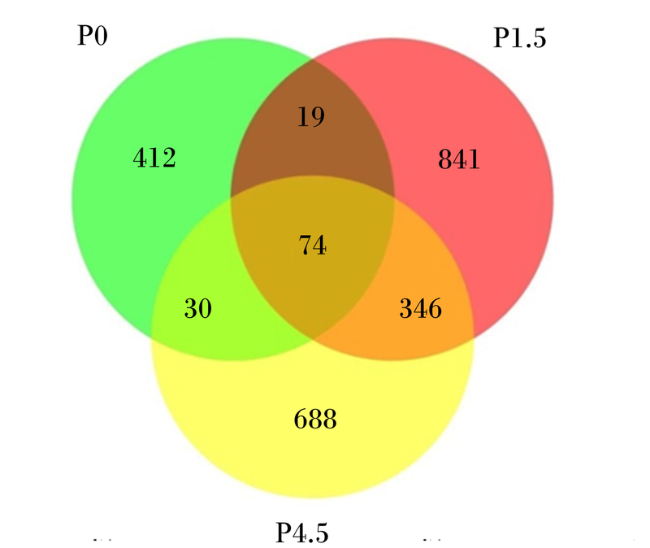
图4所示,3组肠道样品一共有2 410个OTU,其中74个共同OTU,占3组OTU总数的3.07%;P0组和P1.5组共同93个OTU,占P0组OTU数量的17.38%,占P1.5组OTU数量的7.27%;P0组和P4.5组共有104个OTU,占P0组OTU数量的19.44%,占P4.5组OTU数量的9.14%;P1.5组和P4.5组共有420个OTU,占P1.5组OTU数量的32.81%,占P4.5组OTU数量的36.91%。
图4 肠道菌群OTU的Venus图

Fig.4 Venus map of OTU of intestinal flora

2.5.3 Beta多样性分析

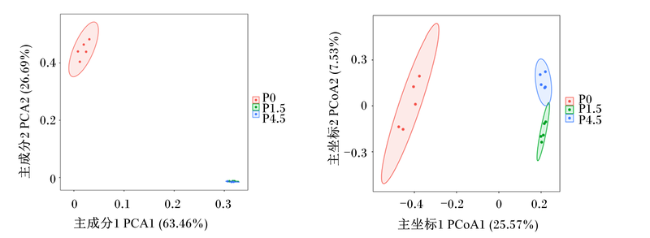
图5所示,P1.5和P4.5组距离较近,且与P0组距离较远,表明P1.5和P4.5组的亲缘关系较近,微生物组成结构相似,与P0组亲缘关系较远。
图5 肠道菌群主成分分析与主坐标分析

Fig.5 Principal component analysis and principal coordinates analysis of intestinal flora

2.5.4 聚类树与柱状组合图

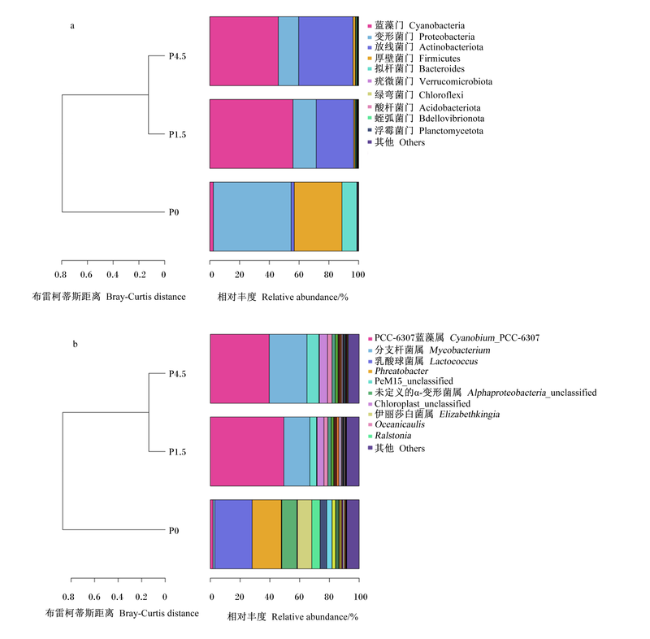
图6所示,由聚类树可知,P1.5和P4.5组分别与P0组不在同一个分支,表明P1.5和P4.5组分别与P0组之间差异显著(P<0.05)。而P1.5和P4.5组在同一个分支,表明P1.5和P4.5组没有显著差异(P>0.05)。
图6 肠道菌群聚类树与柱状组合图

Fig.6 Cluster tree and bar combination diagram of intestinal flora

从门水平上分析可知,在卵形鲳鲹幼鱼肠道中注释到30个门水平上的菌群。通过barplot差异分析,与P0组相比,P1.5和P4.5组的肠道蓝藻门(Cyanobacteria)和放线菌门(Actinobacteriota)相对丰度显著升高(P<0.05),P1.5和P4.5组的肠道变形菌门(Proteobacteria)、厚壁菌门(Firmicutes)和拟杆菌门(Bacteroides)相对丰度显著降低(P<0.05)。其中,蓝藻门、放线菌门和变形菌门在P1.5组中分别占55.88%、25.84%和15.64%,在P4.5组中分别占46.03%、37.32%和13.70%。因此,蓝藻门、放线菌门和变形菌门为P1.5和P4.5组肠道微生物主要优势菌门。
从属水平上分析可知,在卵形鲳鲹幼鱼肠道中注释到30个属水平上的菌群。通过barplot差异分析,与P0组相比,P1.5组和P4.5组的肠道乳酸球菌属(Lactococcus)、Phreatobacter、未定义的α-变形菌属(Alphaproteobacteria_unclassified)和伊丽莎白菌属(Elizabethkingia)相对丰度显著降低(P<0.05),PCC-6307蓝藻属(Cyanobium_PCC-6307)和分支杆菌属(Mycobacterium)相对丰度显著升高(P<0.05)。其中,PCC-6307蓝藻属和分支杆菌属在P1.5组分别占49.38%和17.47%,PCC-6307蓝藻属和分支杆菌属在P4.5组分别占39.58%和25.36%。因此,PCC-6307蓝藻属和分支杆菌属为P1.5组和P4.5组肠道微生物主要优势菌属。

3 讨论

3.1 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼生长性能、饲料利用率和体成分的影响

酶解鸡血球蛋白粉是一种优质新型动物性蛋白质源,在多种水产动物饲料中可部分替代鱼粉。研究表明,使用血球蛋白粉替代鱼粉可能导致水产动物生长性能或饲料利用率显著下降等负面后果[11];但如果血球蛋白粉替代鱼粉比例被控制在一定范围内,则对水产动物的生长性能和饲料利用率的不利影响较微弱[12]。本研究中,酶解鸡血球蛋白粉替代1.5%鱼粉时,对卵形鲳鲹的生长性能和摄食量不存在显著影响,但替代比例从1.5%提高至4.5%时会导致其生长性能和摄食量显著降低。这可能是因为酶解鸡血球蛋白粉中蛋氨酸和精氨酸含量较低,而亮氨酸和赖氨酸含量较高,造成必需氨基酸组成不平衡,因此降低了饲料利用率和生长性能。也可能是因为酶解鸡血球蛋白粉含有许多红细胞膜,鱼类肠道中缺乏分解红细胞膜的酶[13],因而造成其消化率较低。还可能是因为饲料中的酶解鸡血球蛋白粉有血腥味,以及加工方法不当致使其适口性差。杂交石斑鱼的研究表明,随着猪血红蛋白添加比例的增加,饲料的适口性和鱼的食欲显著降低[9]。本研究中,饲料中酶解鸡血球蛋白粉替代3.0%和4.5%鱼粉组的肠道绒毛萎缩,发育较差,也导致它们的饲料利用率不高。王剑桥等[14]在鸡血珠蛋白部分替代鱼粉的研究中发现,饲料中鸡血珠蛋白替代10%鱼粉不影响罗氏沼虾(Macrobrachium rosenbergii)的生长性能和饲料利用率,但当替代比例提高到30%时会导致其生长性能和饲料利用率降低,与本试验结果相似。本试验中,随着饲料中酶解鸡血球蛋白粉替代水平从0增至4.5%,各组之间全鱼水分、粗灰分、粗蛋白质和粗脂肪含量无显著差异,这与在玛拉巴石斑鱼(Epinephelus malabaricus)[15]上的研究结果相似。

3.2 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼血浆生化指标的影响

血浆生化指标广泛用于评估鱼类的健康状况、应激和疾病状况[16]。TG是脂肪代谢时营养物质被鱼体吸收后在血液中的主要表现形式。血球蛋白粉富含核苷酸,对提高某些鱼类的免疫力和增强抗病性具有潜在作用[17]。在本研究中,卵形鲳鲹血浆GLU、TG和LDL含量随酶解鸡血球蛋白粉替代水平提高呈先降低后升高的趋势,饲料中酶解鸡血球蛋白粉替代1.5%鱼粉显著降低了血浆GLU和TG含量,与在斑点叉尾鮰(Ictalurus punctatus)[18]上的研究结果类似,表明酶解鸡血球蛋白粉具有降低卵形鲳鲹血糖和血脂的作用,从而改善鱼体健康。其原因可能是酶解鸡血球蛋白粉含有丰富的微量元素,加速了血脂的代谢,降低了血浆中脂肪的含量[19]。AST和ALT活性随酶解鸡血球蛋白粉替代水平升高提高呈先下降后升高的趋势,饲料中酶解鸡血球蛋白粉替代1.5%鱼粉显著降低了血浆AST和ALT活性,说明酶解鸡血球蛋白粉替代1.5%鱼粉组的肝脏与对照组相比更健康。

3.3 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼血浆免疫指标和血细胞数量的影响

血球蛋白粉中还含有多种矿物元素,如钠、铁、锰、铜、磷、钙和锌等,这些矿物元素是鱼类体内重要的营养元素,能直接或间接对鱼体免疫和造血系统产生影响。补体系统是非特异性免疫的一部分[20]。本试验中,饲料中酶解鸡血球蛋白粉替代1.5%和3.0%鱼粉组的卵形鲳鲹幼鱼血浆C3和C4含量均显著高于对照组,说明酶解鸡血球蛋白粉可以增强卵形鲳鲹的补体系统。ALP在免疫反应中有不可或缺的作用[21]。本试验中,血浆ALP活性随着酶解鸡血球蛋白粉替代水平的提高呈上升趋势,在彭泽鲫(Carassius auratus)[22]上的研究中也有类似的报道,表明添加适量的酶解鸡血球蛋白粉可增强血浆ALP活性,这反映体液及细胞免疫能力的提高。白细胞数量是影响非特异性免疫的重要因素之一[23]。本研究中,卵形鲳鲹血液白细胞数量随着酶解鸡血球蛋白粉替代水平的提高呈上升趋势,与对照组相比,酶解鸡血球蛋白粉替代1.5%鱼粉组的血液白细胞数量显著升高,表明酶解鸡血球蛋白粉能提高卵形鲳鲹幼鱼的白细胞数量,进而增强鱼体免疫力。红细胞数量可反映鱼体对氧气的吸收、运输以及消耗能力[24]。本研究中,卵形鲳鲹血液红细胞数量随着酶解鸡血球蛋白粉替代水平的提高呈先上升后降低趋势,与对照组相比,酶解鸡血球蛋白粉替代3.0%鱼粉组的血液红细胞数显著升高,说明酶解鸡血球蛋白粉组能提高卵形鲳鲹幼鱼的呼吸机能。造成酶解鸡血球蛋白粉替代3.0%鱼粉组血液红细胞数显著升高的原因可能是随着酶解鸡血球蛋白粉替代水平的提高,血液中微量元素铁含量也随之增加,铁参与血红蛋白和肌红蛋白的合成,因此显著提高了血红蛋白含量和红细胞数量[25-26],有利于氧的运输和储存,铁和铜二者之间有协同效果[27],酶解鸡血球蛋白粉替代4.5%鱼粉组血液红细胞数显著降低可能是因为饲料中铁水平过量,造成其他微量元素不平衡,抑制了饲料中铜等微量元素的吸收,间接造成其他微量元素缺乏,不利于铁的利用。其次,适量铁能提高血清溶菌酶活性[28],有助于增强鱼类的免疫调节能力。在吉富罗非鱼(Oreochromis niloticus)[29]上的试验结果也表明,适量酶解鸡血球蛋白粉有助于机体非特异性免疫力。

3.4 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肝脏抗氧化指标的影响

本试验中,与对照组相比,酶解鸡血球蛋白粉替代1.5%鱼粉组的肝脏SOD、GSH-Px和CAT活性、MDA含量及T-AOC不存在显著差异,说明饲料中酶解鸡血球蛋白粉替代鱼粉的水平不超过1.5%时,阻止肝脏因自由基和脂质过氧化物过多而受损,对肝脏抗氧化能力无不良影响。本试验结果与血粉复合发酵蛋白替代鱼粉的研究结果[16]类似。与对照组相比,酶解鸡血球蛋白粉替代3.0%和4.5%鱼粉组的肝脏SOD、GSH-Px与CAT活性显著降低,而肝脏MDA含量显著提高,说明饲料中酶解鸡血球蛋白粉替代鱼粉的水平达3.0%和4.5%时,卵形鲳鲹的抗氧化酶活性降低,清除氧化自由基的能力削弱,脂质过氧化物增多,降低了肝脏的抗氧化能力,与朱选等[30]结论一致,这可能是由于过量添加铁造成微量元素不平衡,从而抑制硒的吸收,较少的硒仅可清理部分脂质过氧化物及减轻自由基对机体的伤害,降低肝脏的抗氧化能力。综上所述,酶解鸡血球蛋白粉替代鱼粉水平不超过1.5%时,对卵形鲳鲹的肝脏抗氧化作用与鱼粉相似。

3.5 酶解鸡血球蛋白粉替代鱼粉对卵形鲳鲹幼鱼肠道菌群的影响

肠道微生物菌群参与机体代谢、营养吸收、生长发育和免疫等生理过程[31],肠道正常菌群的稳定有利于宿主的健康。本试验中,与对照组相比,酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组的肠道菌群OTU数量有升高趋势。在鱼类中,肠道菌群多样性与宿主的肠道健康密切相关。酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组肠道菌群的Chao1、Shannon和Observed species指数均显著高于对照组,表明酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉能显著提高卵形鲳鲹肠道菌群多样性,可能是添加酶解鸡血球蛋白粉改变了卵形鲳鲹幼鱼肠道优势菌群数量,使其具有潜在的有益微生物群落。Beta多样性可以反映样本间的丰度分布差异程度。主成分分析能将物种进化程度相似的样品聚类,主坐标分析是将物种分布程度方面类似的样品聚类[32],二者都能判断样品的微生物组成相似程度。酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组的样品间的距离较近,说明样品之间的微生物组成差异较小。与之相反,酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组都与对照组的样品间的距离较远,表明肠道微生物菌落亲缘关系较远。由此可见,酶解鸡血球蛋白粉是卵形鲳鲹肠道菌群结构改变的主要因素。
肠道菌群组成结果显示,在门水平上,卵形鲳鲹幼鱼肠道菌群相对丰度最高的5个菌门主要为蓝藻门、变形菌门、放线菌门、厚壁菌门和拟杆菌门,与其他研究结果[33-34]略有不同。上述研究结果的差异可能与饲料成分和养殖水环境等因素有关。地理因素对鱼类肠道微生物群落的组成有重要影响,变形菌门是中国沿海地区养殖水体的优势菌门[35],这可能是变形菌门是卵形鲳鲹幼鱼肠道菌群优势菌门的重要原因之一。与对照组相比,酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组的肠道变形菌门相对丰度显著降低,且酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组的肠道优势菌门变为蓝菌门和放线菌门。这些结果表明饲料中添加酶解鸡血球蛋白粉替代鱼粉影响了卵形鲳鲹肠道菌群的结构。变形菌门被认为是肠道菌群失调的微生物标志物[36],脊椎动物肠道微生态失调过程中通常伴随着变形菌门相对丰度的增加[37]。放线菌门参与宿主的代谢以及维持宿主肠道微生态平衡等重要的生理活动[38]。因此,酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组肠道变形菌门相对丰度降低与肠道放线菌门相对丰度升高均有益于卵形鲳鲹幼鱼的肠道健康。在属水平上,卵形鲳鲹幼鱼肠道菌群相对丰度最高的4个菌属为蓝藻属、分支杆菌属、乳酸球菌属及Phreatobacter。伊丽莎白菌属是对照组特有的菌属。伊丽莎白菌属普遍生存在环境中且能感染动物,也可导致肝脏感染等疾病[39]。本研究结果显示,与对照组相比,酶解鸡血球蛋白粉替代1.5%和4.5%鱼粉组的肠道伊丽莎白菌属相对丰度显著降低,表明饲料中酶解鸡血球蛋白粉替代鱼粉导致卵形鲳鲹肠道内伊丽莎白菌属相对丰度降低,降低了鱼类患病的风险。

4 结论

本试验条件下,酶解鸡血球蛋白粉替代饲料中适量的鱼粉能增强机体免疫力,且有降血糖和降血脂作用,并能改善肠道菌群结构,而对生长性能、肠道形态和肝脏抗氧化能力的作用与鱼粉相似。综合考虑生长和生理状况,卵形鲳鲹幼鱼饲料中酶解鸡血球蛋白粉替代鱼粉的适宜水平为1.5%。
[1]
许聪, 王际英, 郝甜甜, 等. 发酵鱼溶浆替代鱼粉对大菱鲆幼鱼生长、抗氧化能力、蛋白质代谢及相关基因表达的影响[J/OL]. 渔业科学进展:1-13 [2022-08-20]. https://kns.cnki.net/kcms/detail/detail.aspx?FileName=HYSC20220218003&DbName=CAPJ2022DOI:10.19663/j.issn2095-9869.20210913003.

DOI

XU C, WANG J Y, HAO T T, et al. The effect of replacing fish meal with fermented stickwater on growth,antioxidant capacity,protein metabolism and related gene expression of juvenile turbot (Scophthalmus maximus L.)[J/OL]. Progress in Fishery Sciences:1-13 [2022-08-20]. https://kns.cnki.net/kcms/detail/detail.aspx?FileName=HYSC20220218003&DbName=CAPJ2022DOI:10.19663/j.issn2095-9869.20210913003. (in Chinese)

DOI

[2]
陈丽纯. 全球鱼粉市场回顾与供求现状分析[J]. 中国水产, 2018(6):67-71.

CHEN L C. Global fishmeal market review and analysis of supply and demand[J]. China Fisheries, 2018(6):67-71. (in Chinese)

[3]
刘敏, 孙广文, 张海涛, 等. 大菱鲆饲料中鱼粉替代蛋白源的研究进展[J]. 饲料工业, 2021, 42(10):23-30.

LIU M, SUN G W, ZHANG H T, et al. Research progress on replacement of fish meal by different protein sources in turbot feed[J]. Feed Industry, 2021, 42(10):23-30. (in Chinese)

[4]
王玲. 畜禽血液的开发利用与研究进展[J]. 畜牧兽医杂志, 2018, 37(5):42-43.

WANG L. Research progress and development and utilization of livestock and poultry blood[J]. Journal of Animal Science and Veterinary Medicine, 2018, 37(5):42-43. (in Chinese)

[5]
常寨成, 黄海龙, 施维. 发酵饲料原料的特点及发酵优势[J]. 粮食与饲料工业, 2019(1):44-48.

CHANG Z C, HUANG H L, SHI W. Characteristics and advantages of the raw material of fermented feed[J]. Cereal & Feed Industry, 2019(1):44-48. (in Chinese)

[6]
汪正熙, 王卫, 张旭, 等. 畜禽血精深加工利用及其研究进展[J]. 农产品加工, 2020(6):67-71.

WANG Z X, WANG W, ZHANG X, et al. Deep processing and utilization of livestock and poultry blood and its research progress[J]. Farm Products Processing, 2020(6):67-71. (in Chinese)

[7]
LEE K J, BAI S C. Hemoglobin powder as a dietary animal protein source for juvenile Nile tilapia[J]. The Progressive Fish-Culturist, 1997, 59(4):266-271.

DOI

[8]
DING G T, LI S L, WANG A, et al. Effect of chicken haemoglobin powder on growth,feed utilization,immunity and haematological index of largemouth bass (Micropterus salmoides)[J]. Aquaculture and Fisheries, 2020, 5(4):187-192.

DOI

[9]
YAO W, WU X Y, GAO Y J, et al. Effects of replacing fishmeal protein by hemoglobin powder protein on growth performance,food intake,feeding-related gene expression and gut histology of hybrid grouper (Epinephelus fuscoguttatus×Epinephelus lanceolatus) juveniles[J]. Aquaculture, 2018, 488:235-243.

DOI

[10]
黄健彬. 褐藻寡糖对卵形鲳鲹幼鱼饲料中猪肉粉替代鱼粉水平的影响[D].硕士学位论文. 上海: 上海海洋大学, 2022.

HUANG J B. Effect of alginate oligosaccharide on replacement of fish meal with porcine meat meal in diets of juvenile golden pompano (Trachinotus ovatus)[D].Master's Thesis. Shanghai: Shanghai Ocean University, 2022. (in Chinese)

[11]
晋鹏飞. 珍珠龙胆石斑鱼饲料中猪和鸡血蛋白源部分替代鱼粉的研究[D].硕士学位论文. 上海: 上海海洋大学, 2018.

JIN P F. Partial replacement of fish meal by pig and chicken blood protein in diets for hybrid grouper (Epinephelus fuscoguttatus ♀×E. lanceolatus ♂)[D].Master's Thesis. Shanghai: Shanghai Ocean University, 2018. (in Chinese)

[12]
赵治国, 吴桃, 青格勒, 等. 饲料中血球蛋白粉替代鱼粉对金鲫鱼生长和饲料利用的影响[J]. 畜牧与饲料科学, 2017, 38(10):47-49.

ZHAO Z G, WU T, QING G L, et al. Effects of dietary replacement of fish meal with haemoglobin meal on growth and feed utilization of golden crucian carp (Carassius auratus)[J]. Animal Husbandry and Feed Science, 2017, 38(10):47-49. (in Chinese)

[13]
周安国. 饲料学[M]. 成都: 四川农业大学动物营养研究所, 1996.

ZHOU A G. Feed science[M]. Chengdu: Institute of Animal Nutrition,Sichuan Agricultural University, 1996. (in Chinese)

[14]
王剑桥, 纪鹏, 施雨露, 等. 水解鸡血珠蛋白部分替代鱼粉对罗氏沼虾生长、体组成和消化酶活性的影响[J]. 淡水渔业, 2020, 50(2):100-106.

WANG J Q, JI P, SHI Y L, et al. Effects of hydrolyzed globin from chicken blood on growth,body composition and activities of digestive enzymes in Macrobrachium rosenbergii[J]. Freshwater Fisheries, 2020, 50(2):100-106. (in Chinese)

[15]
WANG Y, LI K, HAN H, et al. Potential of using a blend of rendered animal protein ingredients to replace fish meal in practical diets for malabar grouper (Epinephelus malabricus)[J]. Aquaculture, 2008, 281(1/4):113-117.

DOI

[16]
VAZIRZADEH A, DEHGHAN F, KAZEMEINI R. Changes in growth,blood immune parameters and expression of immune related genes in rainbow trout (Oncorhynchus mykiss) in response to diet supplemented with Ducrosia anethifolia essential oil[J]. Fish & Shellfish Immunology, 2017, 69:164-172.

[17]
PENG M, XU W, AI Q H, et al. Effects of nucleotide supplementation on growth,immune responses and intestinal morphology in juvenile turbot fed diets with graded levels of soybean meal (Scophthalmus maximus L.)[J]. Aquaculture, 2013, 392/395:51-58.

DOI

[18]
万祖德. 叶黄素、氧化豆油、铜和血球蛋白粉对斑点叉尾鮰生长和体色的影响[D].硕士学位论文. 上海: 上海海洋大学, 2016.

WAN Z D. Effects of xanthophylls,oxidized soybean oil,copper and spray-dried blood on growth and body color of channel catfish (Ictalurus punctatus)[D].Master's Thesis. Shanghai: Shanghai Ocean University, 2016. (in Chinese)

[19]
于万峰. 卵形鲳鲹幼鱼对饲料中铜、锌和硒需求量的研究[D].硕士学位论文. 上海: 上海海洋大学, 2020.

YU W F. The study on the optimum dietary copper,zinc and selenium requirement of juvenile golden pompano (Trachinotus ovatus)[D].Master's Thesis. Shanghai: Shanghai Ocean University, 2020. (in Chinese)

[20]
许晅, 李璋, 马群飞, 等. 胞内补体系统的研究进展[J]. 中国免疫学杂志, 2022, 38(4):482-487.

XU X, LI Z, MA Q F, et al. Research progress of intracellular complement system[J]. Chinese Journal of Immunology, 2022, 38(4):482-487. (in Chinese)

[21]
卢彤岩, 郭德文, 赵吉伟, 等. 哲罗鱼不同组织SOD、CAT、ACP和AKP活力的比较研究[J]. 水产学杂志, 2010, 23(4):10-13.

LU T Y, GUO D W, ZHAO J W, et al. Activity comparison of SOD,CAT,ACP and AKP in the tissues of Hucho taimen[J]. Chinese Journal of Fisheries, 2010, 23(4):10-13. (in Chinese)

[22]
陈任孝, 李洪琴, 罗莉, 等. 血粉复合发酵蛋白替代鱼粉对彭泽鲫的生长性能和肝脏功能的影响[J]. 淡水渔业, 2013, 43(2):54-59.

CHEN R X, LI H Q, LUO L, et al. Effects of replacing fish meal with fermented blood meal protein in the diet for Pengze crucian carp (Carassius auratus) on growth performance and liver function[J]. Freshwater Fisheries, 2013, 43(2):54-59. (in Chinese)

[23]
YONAR M E, MIŞE YONAR S, ĪSPIR Ü, et al. Effects of curcumin on haematological values,immunity,antioxidant status and resistance of rainbow trout (Oncorhynchus mykiss) against Aeromonas salmonicida subsp. achromogenes[J]. Fish & Shellfish Immunology, 2019, 89:83-90.

[24]
陈落落, 温海深, 李吉方, 等. 不同倍性虹鳟红细胞规格及血液学指标的比较[J]. 中国海洋大学学报(自然科学版), 2019, 49(3):138-145.

CHEN L L, WEN H S, LI J F, et al. Comparative studies on erythrocyte size and hematological parameters of different ploidy rainbow trout (Oncorhynchus mykiss)[J]. Periodical of Ocean University of China (Natural Science Edition), 2019, 49(3):138-145. (in Chinese)

[25]
乔永刚. 军曹鱼微量元素锌、铁、铜营养生理的研究[D].硕士学位论文. 青岛: 中国海洋大学, 2007.

QIAO Y G. Study on nutrition physiology of zinc,iron and copper in cobia (Rachycentron canadum)[D].Master's Thesis. Qingdao: Ocean University of China, 2007. (in Chinese)

[26]
ROEDER M, ROEDER R H. Effect of iron on the growth rate of fishes[J]. The Journal of Nutrition, 1966, 90(1):86-90.

DOI

[27]
赵宇江. 水产动物饲料中铜的营养与毒性的研究进展[J]. 饲料博览, 2009(1):28-31.

ZHAO Y J. Research progress in copper nutrition and toxicity of aquatic animal feed[J]. Feed Review, 2009(1):28-31. (in Chinese)

[28]
周立斌, 王安利, 马细兰, 等. 饲料中铁对美国红鱼(Sciaenops ocellatus)生长和免疫的影响[J]. 海洋与湖沼, 2009, 40(5):663-668.

ZHOU L B, WANG A L, MA X L, et al. Effects of dietary iron on growth and immune response of red drum Sciaenops ocellatus[J]. Oceanologia et Limnologia Sinica, 2009, 40(5):663-668. (in Chinese)

[29]
朱根廷. 吉富罗非鱼饲料中四种动物蛋白源替代鱼粉的营养效应研究[D].硕士学位论文. 重庆: 西南大学, 2013.

ZHU G T.Replacement of fish meal by FSM, MM,MBM and SBC in diets for GIFT tilapia (Oreochromis niloticus)[D].Master's Thesis. Chongqing: Southwest University, 2013. (in Chinese)

[30]
朱选, 曹俊明, 赵红霞, 等. 饲料中添加谷胱甘肽对草鱼组织中谷胱甘肽沉积和抗氧化能力的影响[J]. 中国水产科学, 2008, 15(1):160-166.

ZHU X, CAO J M, ZHAO H X, et al. Effects of dietary glutathione on tissue glutathione retention and anti-oxidative activities in juvenile grass carp Ctenopharyngodon idella[J]. Journal of Fishery Sciences of China, 2008, 15(1):160-166. (in Chinese)

[31]
宋月, 李娜, 岳莹雪, 等. 膳食中的主要成分对肠道微生物组成及代谢影响的研究进展[J]. 食品工业科技, 2019, 40(18):354-360.

SONG Y, LI N, YUE Y X, et al. Research progress on the effects of main components in diet on intestinal microbial composition and metabolism[J]. Science and Technology of Food Industry, 2019, 40(18):354-360. (in Chinese)

[32]
李秀玲, 刘宝锁, 刘波, 等. 不同脂肪源对卵形鲳鲹肠道微生物菌群的影响[J]. 水产科学, 2020, 39(1):88-95.

LI X L, LIU B S, LIU B, et al. Effects of different lipid sources on intestinal microbial flora in golden pompano Trachinotus ovatus[J]. Fisheries Science, 2020, 39(1):88-95. (in Chinese)

[33]
SHEN J F, LIU H Y, TAN B P, et al. Effects of replacement of fishmeal with cottonseed protein concentrate on the growth,intestinal microflora,haematological and antioxidant indices of juvenile golden pompano (Trachinotus ovatus)[J]. Aquaculture Nutrition, 2020, 26(4):1119-1130.

DOI

[34]
XUN P W, LIN H Z, WANG R X, et al. Effects of dietary vitamin B1 on growth performance,intestinal digestion and absorption,intestinal microflora and immune response of juvenile golden pompano (Trachinotus ovatus)[J]. Aquaculture, 2019, 506:75-83.

DOI

[35]
LIU M, DONG Y, ZHANG W C, et al. Diversity of bacterial community during spring phytoplankton blooms in the central Yellow Sea[J]. Canadian Journal of Microbiology, 2013, 59(5):324-332.

DOI PMID

[36]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

DOI

[37]
MAHARSHAK N, PACKEY C D, ELLERMANN M, et al. Altered enteric microbiota ecology in interleukin 10-deficient mice during development and progression of intestinal inflammation[J]. Gut Microbes, 2013, 4(4):316-324.

DOI PMID

[38]
孙玉宇, 贾晓慧. 动物肠道放线菌的研究展望[J]. 天津农业科学, 2014, 20(7):25-28.

SUN Y Y, JIA X H. Prospect of research on animal intestinal actinomycetes[J]. Tianjin Agricultural Sciences, 2014, 20(7):25-28. (in Chinese)

[39]
王蕾蕾, 郭庆兰, 杨帆. 伊丽莎白菌属细菌生物学特征及耐药性研究进展[J]. 中国感染与化疗杂志, 2020, 20(6):711-715.

DOI

WANG L L, GUO Q L, YANG F. Research advances on biological characteristics and drug resistance pattern of Elizabethkingia[J]. Chinese Journal of Infection and Chemotherapy, 2020, 20(6):711-715. (in Chinese)

Outlines

/