RESEARCH PAPER

Effects of α-Linolenic Acid on Cholesterol Synthesis, Steroid Hormone Synthesis and Apoptosis of Porcine Granulosa Cells

  • WU Dengke ,
  • LANG Yujie ,
  • LIU Ning ,
  • LU Xiaobin ,
  • REN Gehan ,
  • CHU Guiyan ,
  • WU Yonghou , * ,
  • CAI Chuanjiang , *
Expand
  • College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
*WU Yonghou, lecturer, E-mail: ;
CAI Chuanjiang, associate professor, E-mail:

Received date: 2022-08-22

  Online published: 2023-03-16

Abstract

The aim of this study was to explore the effects of α-linolenic acid (ALA) on cholesterol synthesis, steroid hormone synthesis and apoptosis of porcine granulosa cells (GCs). Ovarian GCs of 150-day-old healthy sows were collected and the enzyme linked immunosorbent assay (ELISA), real-time fluorescence quantitative PCR (RT-PCR), Western blot and flow cytometry were used to investigate the effects of ALA on cholesterol synthesis, steroid secretion and apoptosis of porcine GCs. The results showed as follows: 1) 50 μmol/L ALA treatment extremely significantly inhibited the synthesis of estradiol (E2) (P<0.01), but had no significant effect on the synthesis of progesterone (P4) (P>0.05). 2) 50 μmol/L ALA treatment significantly down-regulated the mRNA relative expression levels of cholesterol side-chain cleavage enzyme (CYP11A1) and 3β-hydroxy steroid dehydrogenase (3β-HSD) (P<0.05), and significantly down-regulated the protein relative expression levels of CYP11A1 and steroidogenic acute regulatory protein (StAR) (P<0.05). 3) 50 μmol/ L ALA treatment significantly down-regulated the mRNA relative expression levels of key cholesterol synthesis genes, including 3-hydroxy-3-methylglutaryl-CoA reductase (HMGCR), scavenger receptor class B type 1 (SCARB1) and sterol regulatory element-binding protein 2 (SREBP2) (P<0.05). 4) 50 μmol/ L ALA treatment significantly increased the number of live cells (P<0.05), significantly up-regulated the B-cell lymphoma/leukemia-2 (Bcl-2) mRNA relative expression level (P<0.05), and significantly down-regulated the B-cell lymphoma/leukemia-2 associated X protein (Bax) protein relative expression level (P<0.05). It can be seen that ALA inhibits the synthesis of steroids and apoptosis of GCs by inhibiting the synthesis of cholesterol.

Cite this article

WU Dengke , LANG Yujie , LIU Ning , LU Xiaobin , REN Gehan , CHU Guiyan , WU Yonghou , CAI Chuanjiang . Effects of α-Linolenic Acid on Cholesterol Synthesis, Steroid Hormone Synthesis and Apoptosis of Porcine Granulosa Cells[J]. Chinese Journal of Animal Nutrition, 2023 , 35(3) : 1966 -1975 . DOI: 10.12418/CJAN2023.184

α-亚麻酸(α-linolenic acid,ALA)是一种多不饱和ω-3脂肪酸,作为一种必需脂肪酸,其在人和猪体内无法直接合成,必须通过饮食获取[1]。ALA广泛存在与植物和水果中,近年来,其作为一种天然的绿色饲料添加剂备受关注[2-3]。研究发现,ALA广泛存在于猪的卵泡液[4]和卵母细胞[5]中。在母猪饲粮中添加ALA可以使发育到M期的卵母细胞数量显著增加,促进早期胚胎发育[6]。ALA的功能已在体外证实,在卵母细胞体外成熟过程中,ALA的添加提高了母猪卵母细胞中的谷胱甘肽含量,促进核成熟并提高卵母细胞的发育能力[7]。饲粮粮中添加ALA还可以显著提高母猪的产仔性能和泌乳性能,以此提高其经济效益[8]。同时,在绵羊饲粮中添加ALA改变了卵母细胞和颗粒细胞(GCs)中脂肪酸的比例,并提高了卵泡液中孕酮(P4)的含量,促进了GCs的增殖[9]
GCs主要通过分泌雌二醇(E2)和P4这2种类固醇激素来维持卵巢生理功能[10]。E2作为卵巢内重要的生长因子,能够促进GCs的增殖减少其凋亡,并通过提高由卵泡刺激素(FSH)诱导的黄体生成素(LH)受体表达来调节GCs分化[11];而P4的含量会随着卵泡的发育而提升,其水平在排卵中发挥重要作用[12]。一般来说,类固醇激素合成首先由类固醇激素合成急性调节蛋白(StAR)将游离细胞质中的胆固醇运输到线粒体中,随后由胆固醇侧链裂解酶(CYP11A1)通过去除6个碳侧链,介导所有类固醇激素产生的初始酶反应,胆固醇由此转化为孕烯醇酮,随之扩散到内质网,接着被3β-羟基类固醇脱氢酶(3β-HSD)和E2合成的芳香酶(CYP19A1)催化进一步代谢成类固醇激素产物[13-16]。不同浓度的ALA和亚油酸(CLA)均会显著抑制牛GCs中E2和P4的含量,并会导致GCs形态发生改变[17];在羊GCs中,油酸和亚油酸处理显著促进了P4的分泌[18]。但ALA对猪GCs类固醇激素的影响的研究较少,有待于进一步研究。
GCs的凋亡在卵泡发育过程中同样重要,颗粒细胞是卵泡闭锁的发起者,其凋亡早于卵母细胞和膜细胞;早期的闭锁卵泡中,先是壁层颗粒细胞开始凋亡,紧接着出现大量的颗粒细胞凋亡[19]。随着闭锁过程的逐步进行,闭锁卵泡中的凋亡GCs数量逐渐增加,并逐步被高度破坏[20]。大量研究表明,ALA在细胞凋亡中发挥作用[21-22]。饲粮中添加ALA已被证明会对母猪繁殖性能产生积极效应[8],鉴于ALA通过影响类固醇激素合成对牛、羊卵泡发育作用的研究,以及ALA在养殖业中作为饲料添加剂的广泛应用,这引起了我们对ALA猪GCs的作用的探索。
鉴于此,为了探究ALA是否可以通过影响类固醇激素合成进而影响母猪繁殖性能,本试验用ALA处理体外培养的猪GCs,并通过测定E2和P4含量、相关mRNA和蛋白的表达水平以及猪GCs的凋亡,以此阐述ALA对猪GCs的影响,并为ALA如何影响母猪的繁殖性能提供新的依据。

1 材料与方法

1.1 试验材料

本试验所用主要试剂包括:DMEM/F12培养基(Gibco)、澳洲胎牛血清(Gibco)、青-链霉素(索莱宝)、胰蛋白酶(Gibco)、RIPA裂解液(北京普利莱基因技术有限公司)、膜联蛋白Ⅴ(Annexin Ⅴ,BD Pharmingen)、碘化丙啶(PI,BD Pharmingen)、TRIzol(湖南艾科瑞生物工程有限公司)、反转录试剂盒(TaKaRa)、SYBR® Premix Ex TaqTM试剂盒(TaKaRa)、蛋白浓度检测试剂(索莱宝)、酶联免疫吸附试验(ELISA)试剂盒(上海酶联生物科技有限公司)和CCK8检测试剂(江西海明生物科技有限公司)。ALA购自北京某科技有限公司,纯度≥98%。本试验使用的一抗包括:多克隆兔抗StAR(1:1 000,Cell Signaling Technology,美国)、多克隆兔抗CYP11A1(1:1000,Abcam,英国)、多克隆兔抗CYP19A1(1:1 000,Gene Tex,美国)、单克隆鼠抗B细胞淋巴瘤/白血病-2(Bcl-2)和单克隆鼠抗B细胞淋巴瘤/白血病-2相关X蛋白(Bax)(1:500,Santa Cruz,美国)、多克隆兔抗裂解半胱氨酸天冬氨酸蛋白酶3(cleaved-Caspase3,1:1 000,ProteinTech,中国)和单克隆鼠抗3β-HSD(1:1 000,Abcam,美国)。

1.2 试验方法

本试验首先使用不同浓度[0(对照)、100、200、300、400和500 μmol/L,n=3]的ALA处理GCs 4 d,经毒性分析后,使用不同浓度[0(对照)、10、20、50、100和200 μmol/L,n=3]的ALA测定细胞活力,在确定ALA的最适添加浓度后,测定ALA对GCs胆固醇代谢相关基因和类固醇激素合成相关基因mRNA和蛋白的表达,细胞凋亡以及相关基因mRNA和蛋白的表达,探究ALA对猪GCs类固醇激素的影响。

1.2.1 试验动物和细胞培养

本试验中,动物的使用和试验方案经西北农林科技大学动物研究伦理委员会批准。从杨凌本地本香集团屠宰场的母猪(150日龄)中收集形态正常的卵巢(n=20),并在37 ℃添加了青-链霉素的生理盐水[0.9%氯化钠(NaCl)、100 IU/mL青霉素和100 IU/mL链霉素]中储存。卵巢在2 h内被运送到实验室,并在恒温盐水溶液中解剖和清洁。GCs的培养参考Wang等[23]的报道,GCs用含有10%胎牛血清、1 IU FSH和1 IU LH的DMEM/F12培养基悬浮,然后将它们以4×105个/孔的密度在6孔板中和1×105个/孔的12孔板中接种,然后在37 ℃的5%二氧化碳(CO2)细胞培养箱中培养。培养基每24 h更换1次。

1.2.2 细胞毒性分析

ALA是否可以作为添加剂直接添加到猪GCs中取决于其毒性。本试验首先测试了100、200、300、400和500 μmol/L ALA的细胞毒性,然后测量细胞活力以确定适当的ALA浓度进行进一步的试验。

1.2.3 细胞活力的测定

将猪GCs以2 000个/孔的浓度接种在96孔板中。用不同浓度[0(对照)、10、20、50、100和200 μmol/L,n=3]的ALA处理GCs 4 d,每天更换培养基。然后向每孔加入10 μL CCK8溶液,避光条件下在培养箱中孵育2~4 h。最后,使用酶标仪测量450 nm处的吸光度值,并计算细胞活力。
细胞活力=[(A-C)/(B-C)]×100。
式中:A为试验组的吸光度值(培养基、细胞、ALA和CCK8溶液的光吸收值);B为对照组的吸光度值(培养基、细胞和CCK8溶液的光吸收值);C为空白组的吸光度值(介质和CCK8溶液的光吸收值)。

1.2.4 流式细胞术

将猪GCs在6孔培养板中以每孔105个的密度培养,用ALA处理细胞,待细胞生长至80%以上时,用0.25%胰蛋白酶消化细胞。将细胞收集在70%冷乙醇中,4 ℃下固定过夜。用磷酸盐缓冲液(PBS)洗涤2次,并悬浮在含有5 μL PI和5 μL膜联蛋白Ⅴ-异硫氰酸荧光素(FITC)的500 μL结合缓冲液中,4 ℃孵育30 min。利用流式细胞仪测定细胞凋亡。

1.2.5 E2和P4含量的测定

用ALA处理GCs,待细胞生长至80%以上时,将细胞培养液在3 000 r/min的离心机中离心10 min,取上清液,用ELISA法测定E2和P4的含量。

1.2.6 实时荧光定量PCR

根据制造商的说明,使用TRIzol试剂从GCs中提取总RNA。使用分光光度计测量260和280 nm处吸光度值以确定RNA浓度和纯度。由于A260 nm/A280 nm比率大于1.6,因此确定RNA样品可用于进一步的试验。根据TaKaRa反转录试剂盒说明书,在去除mRNA组DNA后,进行反转录反应。所有mRNA序列来源均源自NCBI(https://www.ncbi.nlm.nih.gov/),引物委托生工生物工程(上海)股份有限公司合成,引物序列见表1。PCR反应按照SYBR® Premix Ex TaqTM Ⅱ说明书操作,反应在10 μL的体系下进行,包含上游和下游引物各0.6 μL、5 μL SYBR® Premix Ex TaqTM Ⅱ、1 μL cDNA,其余部分为ddH2O。反应条件:95 ℃预变性5 s;95 ℃ 5 s、60 ℃ 30 s,共计40个循环;70 ℃延伸10 min。mRNA的表达以β-肌动蛋白(β-actin)为内参,通过2-ΔΔCt方法计算mRNA的相对表达量。
表1 引物序列

Table 1 Primer sequences

基因 Genes 引物序列 Primer sequences (5'—3')
类固醇激素合成急性调节蛋白
StAR
F:CGTTTAAGCTGTGTGCTGGG
R:TCCATGACCCTGAGGTTGGA
胆固醇侧链裂解酶
CYP11A1
F:GGGCAACCCATTTCCTACCA
R:CGAGCACTGGTGGTACAGAC
芳香酶
CYP19A1
F:TCCGCAATGACTTGGGCTAC
R:GCCTTTTCGTCCAGTGGGAT
硬脂酰辅酶A去饱和酶
SCD
F:TACTACAAGCCCGGCCTCC
R:CAGCAGTACCAGGGCACCA
3-羟基-3-甲基戊二酰辅酶A还原酶
HMGCR
F:GCGCTTGCTGTGAGAATGTT
R:TGCTCTGCAGCCTCTATTGG
清道夫受体B类成员1
SCARB1
F:GCTGTTCATCCCCATCGTCT
R:GGCCTGAATGGCCTCCTTAT
胆固醇调节元件结合蛋白2
SREBP2
F:CTCACCTTCCTGTGCCTCTC
R:CCAGAAGGTGACTGAGGAGC
3β-羟基类固醇脱氢酶
3β-HSD
F:TCTTGTCTGCTTCTCGCCAC
R:CAACTGAGACTTGGGTGCCA
B细胞淋巴瘤/白血病-2
Bcl-2
F:CATGTGTGTGGAGAGCGTCA
R:TCTACCATGGACTTCCCCCA
B细胞淋巴瘤/白血病-2相关X蛋白
Bax
F:GCTGACGGCAACTTCAACTG
R:GCGTCCCAAAGTAGGAGAGG
半胱氨酸天冬氨酸蛋白酶3
Caspase3
F:GTGGGACTGAAGATGACA
R:ACCCGAGTAAGAATGTG
β-肌动蛋白
β-actin
F:GTCCCTGACCCTCCCAAAAG
R:GCTGCCTCAACACCTCAACCC

1.2.7 总蛋白提取和Western blot

待细胞生长至80%后,将细胞接种于6孔板,每孔加150 μL RIPA裂解液[含有苯甲基磺酰氟(PMSF)等蛋白酶抑制剂],冰上裂解30 min。4 ℃、12 000 r/min离心10 min,吸取上清液,用二喹啉甲酸(BCA)蛋白浓度测定试剂盒测定蛋白质浓度,然后在高温(99 ℃)环境中变性蛋白质。蛋白质样品经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)2 h后,用湿转移法转移到聚偏二氟乙烯(PVDF)膜上,50 g/L牛血清白蛋白室温封存1 h。在4 ℃摇床上加入一抗,过夜反应。孵育后,在室温下用TBST洗涤2~3次(每次10~15 min),然后加入二抗[辣根过氧化物酶标记的免疫球蛋白G(IgG,1:3 000),37 ℃孵育2 h。最后,用TBST清洗膜3次,浸泡在ECL超灵敏发光液中,在荧光成像仪下用条带灰度计进行拍摄和分析,使用β-肌动蛋白作为内参蛋白。

1.3 数据统计分析

试验数据使用SPSS 22.0进行统计分析,采用独立t检验对2组数据进行组建比较。每个选择鉴定的mRNA、蛋白均进行3次生物学重复以及3次技术重复。采用FlowJo 10软件进行流式结果分析,采用GraphPad Prism 8作图。数据结果采用“平均值±标准误”表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 不同浓度ALA对猪GCs细胞活力的影响

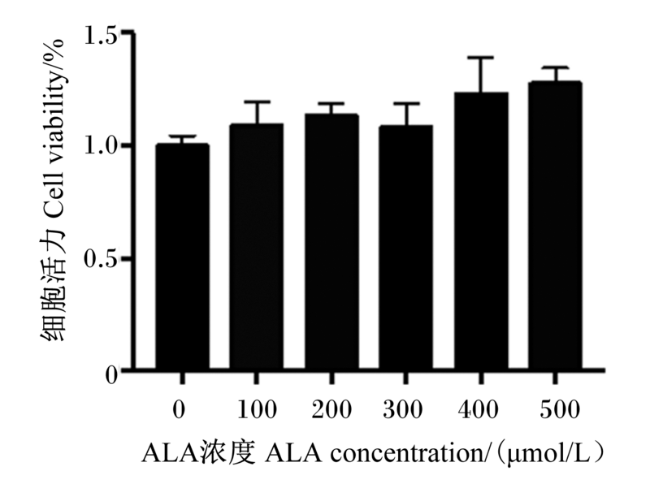
图1所示,不同浓度(0、100、200、300、400和500 μmol/L)ALA对猪GCs细胞活力的影响均无显著差异(P>0.05),这表明ALA可以直接添加到GCs中。
图1 不同浓度ALA对猪GCs细胞活力的影响

Fig.1 Effects of different concentrations of ALA on cell viability of porcine GCs

2.2 不同浓度ALA对猪GCs胆固醇合成的影响

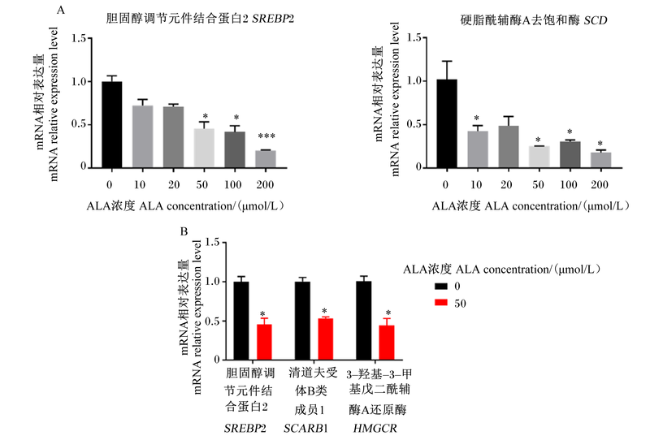
猪GCs会大量积累胆固醇,为了确定ALA是否影响胆固醇代谢,使用0(对照)、10、20、50、100和200 μmol/L的ALA处理猪GCs。如图2-A所示,与对照相比,50 μmol/L ALA处理显著下调了胆固醇合成基因胆固醇调节元件结合蛋白2(SREBP2)和硬脂酰辅酶A去饱和酶(SCD)的mRNA相对表达量(P<0.05),这表明ALA降低了胆固醇的合成。因此,选择了50 μmol/L作为有效的ALA浓度。
图2 不同浓度ALA对猪GCs胆固醇合成相关基因mRNA表达的影响

*表示P<0.05,**表示P<0.01,***表示P<0.001。下图同。

Fig.2 Effects of different concentrations of ALA on mRNA expression of cholesterol synthesis related genes in porcine GCs

* mean P<0.05, ** mean P<0.01, and *** mean P<0.001. The same as below.

图2-B所示,与对照相比,50 μmol/L ALA处理显著下调了胆固醇合成相关基因SREBP2、清道夫受体B类成员1(SCARB1)和3-羟基-3-甲基戊二酰辅酶A还原酶(HMGCR)的mRNA相对表达量(P<0.05),这表明ALA可抑制猪GCs中胆固醇的合成。

2.3 ALA对猪GCs类固醇激素的影响

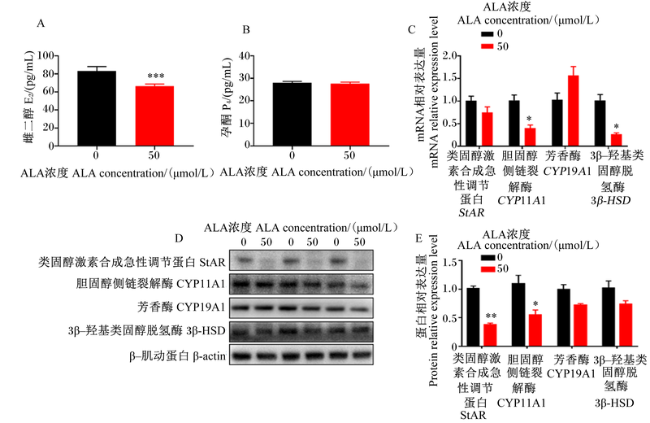
使用ELISA试剂盒测定细胞培养液上清液中的E2和P4含量。如图3所示,50 μmol/L ALA处理极显著降低了E2含量(P<0.01),但对P4含量无显著影响(P>0.05)。相关基因表达的测定结果表明,与对照相比,50 μmol/L ALA处理显著下调了CYP11A1和3β-HSD的mRNA相对表达量(P<0.05),但对StARCYP19A1的mRNA相对表达量无显著影响(P>0.05)。相关蛋白表达的测定结果表明,与对照相比,50 μmol/L ALA处理显著下调了CYP11A1的蛋白相对表达量(P<0.05),极显著下调了StAR的蛋白相对表达量(P<0.01),但对CYP19A1和3β-HSD的蛋白相对表达量无显著影响(P>0.05)。以上结果表明,50 μmol/L ALA处理抑制了E2的合成。
图3 ALA对猪GCs类固醇激素的影响

Fig.3 Effects of ALA on steroid hormones in porcine GCs

2.4 ALA对猪GCs细胞凋亡的影响

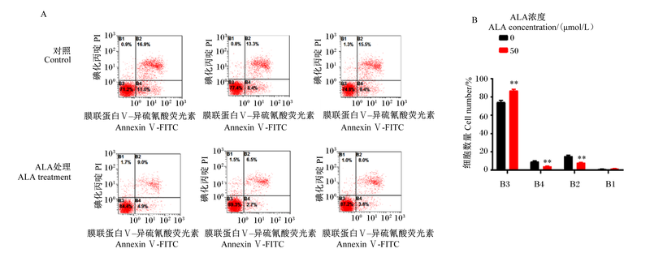
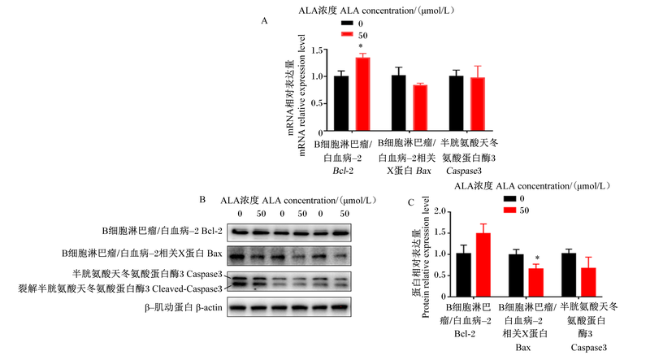
本试验采用流式细胞术检测GCs凋亡,如图4所示,与对照相比,50 μmol/L ALA处理显著降低了猪GCs早期和晚期凋亡细胞的数量(P<0.05),并且极显著提高了活细胞的数量(P<0.01)。相关基因表达的测定结果(图5-A)表明,与对照相比,50 μmol/L ALA处理显著上调了Bcl-2的mRNA相对表达量(P<0.05),而对Bax和半胱氨酸天冬氨酸蛋白酶3(Caspase3)的mRNA相对表达量无显著影响(P>0.05)。相关蛋白表达的测定结果(图5-B和图5-C)表明,与对照相比,50 μmol/L ALA处理显著下调了Bax的蛋白相对表达量(P<0.05),而对Bcl-2和Caspase3的蛋白相对表达量无显著影响(P>0.05)。
图4 ALA对猪GCs细胞凋亡的影响

B1表示凋亡细胞,B2表示晚期凋亡细胞,B3表示活细胞,B4表示早期凋亡细胞。

Fig.4 Effect of ALA on apoptosis of porcine GCs

B1 represented apoptotic cells, B2 represented late apoptotic cells, B3 represented live cells, and B4 represented early apoptotic cells.

图5 ALA对猪GCs细胞凋亡相关基因mRNA和蛋白表达的影响

Fig.5 Effects of ALA on mRNA and protein expression of apoptosis related genes in porcine GCs

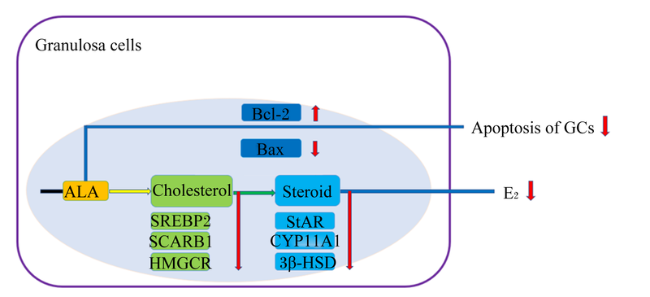
综上所述,本试验研究表明,ALA通过抑制胆固醇和类固醇激素相关mRNA和蛋白的表达来抑制类固醇激素E2的产生,并且ALA可以抑制GCs的凋亡(图6)。
图6 ALA对GCs影响的简单示意图

Granulosa cells:颗粒细胞;ALA:α-亚麻酸 α-linolenic acid;Bcl-2:B细胞淋巴瘤/白血病-2 B-cell lymphoma/leukemia-2;Bax:B细胞淋巴瘤/白血病-2相关X蛋白 B-cell lymphoma/leukemia-2 associated X protein;Apoptosis of GCs:颗粒细胞凋亡;Cholesterol:胆固醇;SREBP2:胆固醇调节元件结合蛋白2 sterol regulatory element-binding protein 2;SCARB1:清道夫受体B类成员1 scavenger receptor class B type 1;HMGCR:3-羟基-3-甲基戊二酰辅酶A还原酶 3-hydroxy-3-methylglutaryl-CoA reductase;Steroid:类固醇;StAR:类固醇激素合成急性调节蛋白 steroidogenic acute regulatory protein;CYP11A1:胆固醇侧链裂解酶 cholesterol side-chain cleavage enzyme;3β-HSD:3β-羟基类固醇脱氢酶 3β-hydroxy steroid dehydrogenase;E2:雌二醇 estradiol。

Fig.6 Simple diagram of effects of ALA on GCs

3 讨论

3.1 ALA对猪GCs胆固醇合成的影响

胆固醇是合成类固醇激素的关键底物。如果胆固醇低于正常生理水平,相关类固醇激素的相应生理水平也会随之降低。胆固醇来源多种多样,包括脂蛋白摄取、内源性胆固醇合成和细胞内低密度脂蛋白的释放[24]。研究表明,胆固醇在颗粒细胞中主要通过自身合成和体外转运储存2种方式为类固醇激素的合成提供底物[25]。在胆固醇的从头合成过程中,HMGCR是主要的限速酶[26];SREBP2是胆固醇和脂肪酸合成完整程序的激活剂[27],能直接激活30多个与胆固醇、脂肪酸、甘油三酯和磷脂的合成和吸收有关的基因的表达[28];SCARB1是高密度脂蛋白受体,其主要作用是将脂蛋白中的胆固醇转运至细胞内[29]。三者已被证明在胆固醇合成中发挥重要作用[30-31]。然而,目前关于ALA影响颗粒细胞胆固醇合成的研究较少,本研究结果显示,ALA显著下调了SREBP2、SCARB1和HMGCR的mRNA相对表达量,表明ALA可以抑制胆固醇的合成,该结果与试验预期一致。

3.2 ALA对猪GCs类固醇激素的影响

类固醇激素的合成是卵巢颗粒细胞的一个重要功能,排卵前E2和P4主要由GCs合成并分泌。本试验研究结果表明,50 μmol/L ALA处理显著抑制了猪GCs中E2的分泌。Sharma等[17]同样发现,ALA会抑制牛GCs中E2的分泌,表明ALA在GCs类固醇激素的合成中发挥负面作用。值得注意的是,50 μmol/L ALA处理对P4的分泌没有影响,在绵羊GCs中同样发现50 μmol/L ALA处理对P4分泌没有显着影响[18];而在牛GCs中发现不同的结果,40 μmol/L ALA处理显著抑制了牛GCs中P4的分泌[17]。不一致的结果可能是由于不同物种的GCs对ALA有不同的敏感性,存在一定的物种特异性。
为了进一步研究ALA对类固醇激素的影响,本试验检测了类固醇激素合成中相关基因的mRNA和蛋白的表达水平,结果发现:50 μmol/L ALA处理显著下调了CYP11A1和3β-HSD的mRNA相对表达量,同时显著下调了StAR和CYP11A1的蛋白相对表达量。而上述指标已被证明在类固醇激素合成中发挥重要作用[14,32-33]。关于ALA对GCs类固醇激素合成的研究有限,然而同为多不饱和脂肪酸——亚油酸(CLA)也表现出相同的结果,CLA已被证明可显著降低水牛GCs中CYP19A1 mRNA的表达和E2的产生[34];在牛GCs中高浓度CLA和ALA表现出一样的结果,都显著下调了StARCYP19A1的mRNA相对表达量[17];油酸(OA)同样有相似的结果[35]。在本试验中,50 μmol/L ALA处理后StAR的mRNA相对表达量没有改变,但蛋白相对表达量降低,这可能是由于添加ALA后发生了某些转录后修饰,其详细机制值得进一步探索。

3.3 ALA对猪GCs细胞凋亡的影响

GCs的凋亡与滤泡闭锁密切相关[36]。研究表明,Bcl-2及其家族蛋白Bax在调控细胞凋亡过程中发挥重要作用:Bcl-2是一种抗凋亡基因,过表达Bcl-2可以抑制人卵巢颗粒细胞的凋亡[37];而Bax作为Bcl-2家族的促凋亡成员,主要通过穿透线粒体外膜来触发细胞凋亡[38]。本试验结果表明,与对照相比,ALA处理显著下调了猪GCs凋亡细胞的数量,显著上调了Bcl-2的mRNA相对表达量以及显著下调了Bax的蛋白相对表达量。前人研究表明,用ALA处理山羊卵母细胞后进行体外成熟,囊胚细胞中凋亡细胞的数量显著下降,Bcl-2 mRNA表达增强,Bax mRNA表达降低[39];用ALA处理牛GCs也表现出同样的结果。这些结果与本试验结果一致,这表明ALA可能通过抑制细胞凋亡发挥作用。然而,也有研究表明,ALA诱导大鼠肝癌细胞凋亡[40],这表明ALA在不同物种和不同细胞中起着不同的作用。GCs中类固醇激素的抑制通常伴随着细胞凋亡,然而本试验显示出不同的结果:ALA虽然可以抑制GCs中E2的合成,但是ALA也抑制了GCs的凋亡,这与试验预期不一致。这可能是由于GCs本身的自我保护机制,当细胞感受到E2合成减少的信号时可能会产生一种负反馈调节,通过抑制GCs的凋亡来维持自身最基本的生理功能,目前仅在ALA处理猪GCs中发现,其详细机制值得进一步探索。
总之,本试验结果表明,ALA可以抑制E2的产生和GCs的凋亡。研究表明,饲粮中添加ALA通常对母猪的繁殖性能有积极影响[41-42]。本试验的发现提供了不同的见解,即在饲粮中大量添加ALA是不可行的,因为它可能导致卵巢中ALA浓度的积累,一旦积累浓度大于50 μmol/L,就会抑制GCs中E2的产生。E2水平的降低可能导致发情周期异常、卵巢发育异常和其他生殖疾病。综上所述,在养猪生产中,饲粮中过量添加ALA可能会对母猪的繁殖性能产生不利影响。

4 结论

ALA虽然可以抑制GCs的凋亡,但是ALA通过抑制GCs中胆固醇的合成进而抑制类固醇激素的合成,导致E2分泌降低,会影响母猪的繁殖能力,因此在生产过程中要慎重考虑ALA添加量及添加的生理阶段。
[1]
STURMEY R G, REIS A, LEESE H J, et al. Role of fatty acids in energy provision during oocyte maturation and early embryo development[J]. Reproduction in Domestic Animals, 2009, 44:50-58.

DOI

[2]
DE TONNAC A, LABUSSIÈRE E, VINCENT A, et al. Effect of α-linolenic acid and DHA intake on lipogenesis and gene expression involved in fatty acid metabolism in growing-finishing pigs[J]. The British Journal of Nutrition, 2016, 116(1):7-18.

DOI PMID

[3]
ADIBNIA S, ZAREI A, SADEGHI A A, et al. Effect of palmitic,linoleic and α-linolenic acids on blood cells count and interleukin-4,8 genes expression in lambs experimentally infected with foot and mouth disease virus[J]. Animal Biotechnology, 2022, 33(3):571-578.

DOI

[4]
YAO J K, RYAN R J, DYCK P J. The porcine ovarian follicle. Ⅵ. Comparison of fatty acid composition of serum and follicular fluid at different developmental stages[J]. Biology of Reproduction, 1980, 22(2):141-147.

DOI

[5]
MCEVOY T G, COULL G D, BROADBENT P J, et al. Fatty acid composition of lipids in immature cattle, pig and sheep oocytes with intact zona pellucida[J]. Journal of Reproduction and Fertility, 2000, 118(1):163-170.

PMID

[6]
SUIRYANRAYNA M V A N, RAMANA J V. A review of the effects of dietary organic acids fed to swine[J]. Journal of Animal Science and Biotechnology, 2015, 6:45.

DOI PMID

[7]
LEE Y, LEE H, PARK B, et al. Alpha-linolenic acid treatment during oocyte maturation enhances embryonic development by influencing mitogen-activated protein kinase activity and intraoocyte glutathione content in pigs[J]. Journal of Animal Science, 2016, 94(8):3255-3263.

PMID

[8]
ROSERO D S, BOYD R D, MCCULLEY M, et al. Essential fatty acid supplementation during lactation is required to maximize the subsequent reproductive performance of the modern sow[J]. Animal Reproduction Science, 2016, 168:151-163.

DOI PMID

[9]
WONNACOTT K E, KWONG W Y, HUGHES J, et al. Dietary omega-3 and -6 polyunsaturated fatty acids affect the composition and development of sheep granulosa cells,oocytes and embryos[J]. Reproduction, 2010, 139(1):57-69.

DOI

[10]
SHI S J, ZHOU X G, LI J J, et al. MiR-214-3p promotes proliferation and inhibits estradiol synthesis in porcine granulosa cells[J]. Journal of Animal Science and Biotechnology, 2020, 11(1):94.

DOI

[11]
GINTHER O J. Selection of the dominant follicle in cattle and horses[J]. Animal Reproduction Science, 2000,60-61:61-79.

[12]
ROBKER R L, RUSSELL D L, YOSHIOKA S, et al. Ovulation:a multi-gene,multi-step process[J]. Steroids, 2000, 65(10/11):559-570.

DOI

[13]
KRAEMER F B, SHEN W J, AZHAR S. SNAREs and cholesterol movement for steroidogenesis[J]. Molecular and Cellular Endocrinology, 2017, 441:17-21.

DOI PMID

[14]
MILLER W L, BOSE H S. Early steps in steroidogenesis:intracellular cholesterol trafficking[J]. Journal of Lipid Research, 2011, 52(12):2111-2135.

DOI

[15]
VANSELOW J, CONLEY A J, BERGER T. Aromatase and the three little paralogs[J]. Biology of Reproduction, 2021, 105(1):5-6.

DOI PMID

[16]
MILLER W L, AUCHUS R J. The molecular biology, biochemistry,and physiology of human steroidogenesis and its disorders[J]. Endocrine Reviews, 2011, 32(1):81-151.

DOI

[17]
SHARMA A, BADDELA V S, ROETTGEN V, et al. Effects of dietary fatty acids on bovine oocyte competence and granulosa cells[J]. Frontiers in Endocrinology, 2020, 11:87.

DOI PMID

[18]
COYRAL-CASTEL S, RAMÉ C, FATET A, et al. Effects of unsaturated fatty acids on progesterone secretion and selected protein kinases in goat granulosa cells[J]. Domestic Animal Endocrinology, 2010, 38(4):272-283.

DOI

[19]
INOUE N, MATSUDA F, GOTO Y, et al. Role of cell-death ligand-receptor system of granulosa cells in selective follicular atresia in porcine ovary[J]. The Journal of Reproduction and Development, 2011, 57(2):169-175.

PMID

[20]
MATSUDA F, INOUE N, MANABE N, et al. Follicular growth and atresia in mammalian ovaries:regulation by survival and death of granulosa cells[J]. The Journal of Reproduction and Development, 2012, 58(1):44-50.

DOI

[21]
ZHANG Y, DONG L, YANG X, et al. α-linolenic acid prevents endoplasmic reticulum stress-mediated apoptosis of stearic acid lipotoxicity on primary rat hepatocytes[J]. Lipids in Health and Disease, 2011, 10:81.

DOI PMID

[22]
ROY S, RAWAT A K, SAMMI S R, et al. Alpha-linolenic acid stabilizes HIF-1 α and downregulates FASN to promote mitochondrial apoptosis for mammary gland chemoprevention[J]. Oncotarget, 2017, 8(41):70049-70071.

DOI PMID

[23]
WANG L G, LI J J, ZHANG L T, et al. NR1D1 targeting CYP19A1 inhibits estrogen synthesis in ovarian granulosa cells[J]. Theriogenology, 2022, 180:17-29.

DOI

[24]
RONE M B, FAN J J, PAPADOPOULOS V. Cholesterol transport in steroid biosynthesis: role of protein-protein interactions and implications in disease states[J]. Biochimica et Biophysica acta, 2009, 1791(7):646-658.

DOI PMID

[25]
KRAEMER F B. Adrenal cholesterol utilization[J]. Molecular and Cellular Endocrinology, 2007,265-266:42-45.

[26]
VENUGOPAL S, MARTINEZ-ARGUELLES D B, CHEBBI S, et al. Plasma membrane origin of the steroidogenic pool of cholesterol used in hormone-induced acute steroid formation in Leydig cells[J]. Journal of Biological Chemistry, 2016, 291(50):26109-26125.

PMID

[27]
HORTON J D, GOLDSTEIN J L, BROWN M S. SREBPs:activators of the complete program of cholesterol and fatty acid synthesis in the liver[J]. Journal of Clinical Investigation, 2002, 109(9):1125-1131.

DOI

[28]
SAKAKURA Y, SHIMANO H, SONE H, et al. Sterol regulatory element-binding proteins induce an entire pathway of cholesterol synthesis[J]. Biochemical and Biophysical Research Communications, 2001, 286(1):176-183.

DOI PMID

[29]
ACTON S, RIGOTTI A, LANDSCHULZ K T, et al. Identification of scavenger receptor SR-BI as a high density lipoprotein receptor[J]. Science, 1996, 271(5248):518-520.

PMID

[30]
REVERCHON M, BERTOLDO M J, RAMÉ C, et al. CHEMERIN (RARRES2) decreases in vitro granulosa cell steroidogenesis and blocks oocyte meiotic progression in bovine species[J]. Biology of Reproduction, 2014, 90(5):102.

[31]
KHAN A A, AGARWAL H, REDDY S S, et al. MicroRNA 27a is a key modulator of cholesterol biosynthesis[J]. Molecular and Cellular Biology, 2020, 40(9):e00470-19.

[32]
YAO X L, EI-SAMAHY M A, XIAO S H, et al. CITED4 mediates proliferation,apoptosis and steroidogenesis of Hu sheep granulosa cells in vitro[J]. Reproduction, 2021, 161(3):255-267.

DOI

[33]
BILDIK G, AKIN N, ESMAEILIAN Y, et al. hCG improves luteal function and promotes progesterone output through the activation of JNK pathway in the luteal granulosa cells of the stimulated IVF cycles[J]. Biology of Reproduction, 2020, 102(6):1270-1280.

DOI

[34]
SHARMA I, SINGH D. Conjugated linoleic acids attenuate FSH- and IGF1-stimulated cell proliferation;IGF1,GATA4,and aromatase expression;and estradiol-17β production in Buffalo granulosa cells involving PPARγ,PTEN,and PI3K/Akt[J]. Reproduction, 2012, 144(3):373-383.

DOI

[35]
YENUGANTI V R, VIERGUTZ T, VANSELOW J. Oleic acid induces specific alterations in the morphology,gene expression and steroid hormone production of cultured bovine granulosa cells[J]. General and Comparative Endocrinology, 2016, 232:134-144.

DOI

[36]
JANCAR N, KOPITAR A N, IHAN A, et al. Effect of apoptosis and reactive oxygen species production in human granulosa cells on oocyte fertilization and blastocyst development[J]. Journal of Assisted Reproduction and Genetics, 2007, 24(2/3):91-97.

DOI

[37]
YANG H Y, XIE Y, YANG D Y, et al. Oxidative stress-induced apoptosis in granulosa cells involves JNK,p53 and Puma[J]. Oncotarget, 2017, 8(15):25310-25322.

DOI

[38]
SPITZ A Z, GAVATHIOTIS E. Physiological and pharmacological modulation of BAX[J]. Trends in Pharmacological Sciences, 2022, 43(3):206-220.

DOI

[39]
VESHKINI A, KHADEM A A, MOHAMMADI-SANGCHESHMEH A, et al. Linolenic acid improves oocyte developmental competence and decreases apoptosis of in vitro-produced blastocysts in goat[J]. Zygote, 2016, 24(4):537-548.

DOI

[40]
VECCHINI A, CECCARELLI V, SUSTA F, et al. Dietary alpha-linolenic acid reduces COX-2 expression and induces apoptosis of hepatoma cells[J]. Journal of Lipid Research, 2004, 45(2):308-316.

DOI PMID

[41]
ROSERO D S, BOYD R D, ODLE J, et al. Optimizing dietary lipid use to improve essential fatty acid status and reproductive performance of the modern lactating sow:a review[J]. Journal of Animal Science and Biotechnology, 2016, 7(1):34.

DOI

[42]
VODOLAZSKA D, LAURIDSEN C. Correction to:effects of dietary hemp seed oil to sows on fatty acid profiles,nutritional and immune status of piglets[J]. Journal of Animal Science and Biotechnology, 2020, 11(1):58.

DOI

Outlines

/