RESEARCH PAPER

Identification and Expression Analysis of Endogenous Cellulase Glycoside Hydrolase 9 Gene Family in Procambarus clarkia

  • WANG Tinghui , 1, 2 ,
  • LI Xuguang 2 ,
  • XU Yu 2 ,
  • LI Jiajia 2 ,
  • WANG Aimin 3 ,
  • MING Jianhua , 1, * ,
  • XU Zhiqiang , 2, *
Expand
  • 1 College of Life Sciences, Huzhou University, Huzhou 313000, China
  • 2 Key Laboratory of Genetic Breeding and Cultivation for Freshwater Crustacean, Ministry of Agriculture and Rural Affairs, Freshwater Fisheries Research Institute of Jiangsu Province, Nanjing 210017, China
  • 3 College of Marine and Bioengineering, Yancheng Institute of Technology, Yancheng 224000, China
*MING Jianhua, professor, E-mail: ;
XU Zhiqing, professor, E-mail:

Received date: 2022-09-15

  Online published: 2023-03-16

Abstract

This experiment was conducted to analyze and identify the glycoside hydrolase 9 (GH9) gene family of endogenous cellulase in Procambarus clarkii, and to study its expression characteristics when fed different feeds or under hypoxia-reoxygenation stress, so as to provide theoretical basis for the study of plant feed digestion and utilization in P. clarkii, and to accumulate data for the efficient utilization of endogenous cellulase in animals. The whole genome distribution of the GH9 gene family in P. clarkii was systematically studied by combining bioinformatics and molecular cloning strategies, and the structural characteristics, distribution characteristics of the GH9 gene family in P. clarkia and their expression response patterns when fed different feeds (plant feed, compound feed and animal feed) or under hypoxia-reoxygenation stress were obtained. The results showed as follows: 1) there were seven GH9 gene family members (PcGH9-1, PcGH9-2, PcGH9-3, PcGH9-4, PcGH9-5, PcGH9-6 and PcGH9-7) in the genome of P. clarkii. The cDNA length of GH9 gene family members was 1 843 to 2 354 bp, and the number of encoded amino acids was 490 to 583, which were distributed on the three chromosomes LG23, LG39 and LG54. The GH9 gene family of P. clarkii had one typical Glyco hydro 9 domains with exon number ranging from 7 to 14 and intron number ranging from 6 to 13. The GH9 gene family of P. clarkii could be divided into two subclasses according to whether it has cellulose binding domain (CBD). The first subclass included PcGH9-1, PcGH9-2 and PcGH9-7, and the second subclass included PcGH9-3, PcGH9-4, PcGH9-5 and PcGH9-6. 2) The GH9 gene family of P. clarkii was mainly highly expressed in hepatopancreas. 3) The GH9 gene family expression level and β-1,4-endoglucanase activity of P. clarkii were the highest when fed plant feed and the lowest when fed animal feed. 4) Under hypoxic-reoxygenation stress, the expression levels of PcGH9-1, PcGH9-2, PcGH9-3, PcGH9-4 and PcGH9-5 in hepatopancreas of P. clarkii were decreased with the prolongation of hypoxic-reoxygenation stress, while the expression levels of PcGH9-6 and PcGH9-7 had little change under hypoxic-reoxygenation stress. The of β-1,4-endoglucanase activity under hypoxic-reoxygenation stress was significantly decreased with the prolongation of hypoxic-reoxygenation stress (P<0.05). In conclusion, P. clarkii has endogenous cellulase GH9 gene family, and GH9 gene family members are mainly highly expressed in hepatopancreas. Feeding plant feed can significantly increase the expression of GH9 gene family and the activity of β-1,4-endoglucanasein in hepatopancreas of P. clarkii. Hypoxic-reoxygenation stress can significantly inhibit the expression of GH9 gene family and the activity of β-1, 4-endoglucanase in hepatopancreas of P. clarkii.

Cite this article

WANG Tinghui , LI Xuguang , XU Yu , LI Jiajia , WANG Aimin , MING Jianhua , XU Zhiqiang . Identification and Expression Analysis of Endogenous Cellulase Glycoside Hydrolase 9 Gene Family in Procambarus clarkia[J]. Chinese Journal of Animal Nutrition, 2023 , 35(3) : 1985 -1995 . DOI: 10.12418/CJAN2023.186

纤维素是自然界中分布最广、含量最丰富的一种可再生性生物资源,主要由葡萄糖通过β-1,4-糖苷键连接在一起[1]。纤维素酶属于糖苷水解酶(glycoside hydrolase,GH),是专门催化水解纤维素链中β-1,4-糖苷键的一类酶的总称,主要包括β-1,4-内切葡聚糖酶(EC3.2.1.4)、β-1,4-外切葡聚糖酶(EC3.2.1.91)和β-葡聚糖苷酶(EC3.2.1.21)。β-1,4-内切葡聚糖酶主要分布在GH5、GH7、GH9、GH45等GH家族中,其中GH9家族是动物体内关键的GH家族[2]。早期人们认为纤维素酶GH9家族只存在于微生物、植物中,动物对于纤维素类的分解利用主要是依靠肠道中的微生物来完成。Watanabe等[3]首次在黄胸散白蚁(Reticulitermes speratus)中获得β-1,4-内葡聚糖酶的基因序列,并根据其氨基酸序列将其归类为GH9基因家族,首次证实动物体内具有内源性纤维素酶。近年来,GH9基因陆续在节肢动物、软体动物以及环节动物中被发现[4-6],其在动物营养消化以及免疫应答等过程的重要功能受到了广泛关注[7]
克氏原螯虾(Procambarus clarkii)又名小龙虾,是我国重要的淡水杂食性虾类[8]。在自然条件下,克氏原螯虾主要摄食有机物碎屑以及水生植物的根和叶,如伊乐藻、水浮萍和水葫芦等;人工养殖条件下,含有一定动物性蛋白质的专用配合饲料以及水体中的植物性饲料是克氏原螯虾的主要营养来源。在克氏原螯虾养殖生产过程中,水草种植是决定最终养殖成效的关键环节。合理配比的水草不仅具有调控水质、提供隐蔽空间等作用,同时也为克氏原螯虾提供了丰富的植物性营养物质。研究显示,纤维素酶类在甲壳动物消化利用植物性饲料的过程中发挥着重要的作用[9],但是目前有关克氏原螯虾纤维素酶类系统鉴定与表达模式相关的研究报道较少。在克氏原螯虾规模化养殖过程中,水体溶解氧浓度昼夜变化较为剧烈,白天由于水草光合作用,溶解氧常处于饱和状态;夜间由于水体中生物的呼吸作用,容易导致水体持续性缺氧[10]。甲壳类对低氧应激的响应主要集中于抗氧化与能量代谢相关酶类研究,而低氧胁迫对消化酶类特别是内源性纤维素酶类的影响鲜有报道。本研究基于本课题组前期所获取的克氏原螯虾全基因组精细图谱[11],筛选鉴定克氏原螯虾内源性纤维素酶GH9基因家族,分析其序列特征、系统进化特点及其在不同饲料投喂与低氧-复氧胁迫下的表达模式,以期为克氏原螯虾生态养殖提供理论依据和参考。

1 材料与方法

1.1 克氏原螯虾GH9基因的生物信息学鉴定

基于克氏原螯虾全基因组注释信息[11],同时以红螯螯虾(Cherax quadricarinatus,AAD38027.1)、斑节对虾(Penaeus monodon,XP 037800235.1)、日本对虾(Penaeus japonicus,XP 042884863.1)等水生甲壳动物纤维素酶GH9氨基酸保守基序为种子序列在克氏原螯虾基因组数据库(JAIWQB000000000.1)进行本地序列对比,将初步获得的氨基酸序列进行结构域预测,初步获取克氏原螯虾全基因组中候选纤维素酶GH9基因的分布情况。

1.2 基因结构、染色体分布、序列比对以及系统进化分析

根据克氏原螯虾基因组中注释信息文件,使用GSDS2.0(http://gsds.cbi.pku.edu)和TBtools软件分别对GH9基因家族外显子-内含子结构以及染色体分布进行可视化分析。利用SMART(http://smart.embl-heidelberg.de/)在线工具对克氏原螯虾GH9基因家族的蛋白质结构域进行识别与鉴定,使用IBS(Illustrator for Biological Sequences)软件对预测的结构域进行可视化分析。用Prosite(https://prosite.expasy.org/)预测蛋白质氨基酸结构功能位点。利用ClustalW法比对筛选的克氏原螯虾GH9基因家族的氨基酸序列,并在GeneDoc中对其氨基酸数的大小、个数颜色以及显示模式进行处理。使用MEGA11.0软件构建系统进化树,采用最大似然法,最优模型为WAG+G模型,移除覆盖度少于95%的位点,Bootstrap设为1 000,利用在线工具iTOL(http://itol.embl.de/)展示GH9基因家族的系统进化关系。

1.3 GH9基因家族组织分布取样

选取规格为(25±1) g的克氏原螯虾进行不同组织的解剖,包括血液、表皮、鳃、心脏、肠道、肝胰腺、肌肉和性腺。每个组织取5个生物学重复。在解剖前,先对样品进行清洗并置于冰上降低克氏原螯虾的活跃度。所有收集样本经液氮速冻后置于-80 ℃冰箱保存备用。

1.4 不同饲料投喂试验

选取规格为(25±1) g的克氏原螯虾180尾,随机分为3组,每组3个重复,每个重复20尾虾。3组试验虾分别为投喂配合饲料(由江苏海普瑞饲料有限公司提供,主要原料为鱼粉、鱼油、大豆磷脂油、豆粕、花生粕和面粉,其粗蛋白质含量≥36.0%、粗灰分含量≤18.0%、粗脂肪含量≥5.0%、粗纤维含量≤6.5%)、动物性饲料(新鲜虾肉和贝类)和植物性饲料(伊乐藻)。将克氏原螯虾以重复为单位放养于水族箱(长55 cm,宽35 cm,高22 cm)中进行30 d的不同饲料投喂试验,每日08:30和18:00各投喂1次,每日投饵量为虾体重的3%~5%(上午投喂量为每日投饵量的30%,傍晚为70%),每天09:00清除池内粪便、少量残饵和死虾,养殖期间水温18~25 ℃,pH 7.0~8.5,溶解氧浓度大于5 mg/L,氨氮浓度小于0.01 mg/L。在最后1次投喂后2 h进行取样,每个水箱各取5只克氏原螯虾,采集肝胰腺组织,经液氮冷却后于-80 ℃保存,用于测定投喂不同饲料时GH9基因家族的mRNA相对表达量以及β-1,4-内切葡聚糖酶活性。

1.5 低氧-复氧胁迫试验

选取规格为(25±1) g的克氏原螯虾120尾,随机分为2组,分别为常氧对照组[养殖水体溶解氧浓度为(6.8±0.2) mg/L]和低氧-复氧胁迫组,每组分别设置3个重复,每个重复20只尾虾,以重复为单位放养于水族箱(长55 cm,宽35 cm,高22 cm)中。试验前48 h内停止投喂,且试验期间不投喂。在低氧[养殖水体溶解氧浓度为(1.0±0.1) mg/L]胁迫1和6 h以及复氧[养殖水体溶解氧浓度为(6.8±0.2) mg/L]1和12 h时,从各水族箱中随机取5只克氏原螯虾,采集肝胰腺组织置于RNA Keeper Tissue Stabilizer(南京诺唯赞生物科技股份有限公司)之中,4 ℃放置1 h,液氮速冻后-80 ℃保存,用于测定低氧-复氧胁迫下GH9基因家族的mRNA相对表达量以及β-1,4-内切葡聚糖酶活性。

1.6 总RNA提取与cDNA合成

采用Trizol法提取克氏原螯虾各组织(血液、表皮、鳃、心脏、肠道、肝胰腺、肌肉、性腺)以及不同饲料投喂试验、低氧-复氧胁迫试验中所采集的肝胰腺组织的总RNA,于-80 ℃保存备用。根据Prime ScriptTM RT reagent kit with gDNA eraser (Perfect Real Time)试剂说明书进行逆转录反应,获得cDNA后于-20 ℃保存备用。

1.7 GH9基因家族mRNA实时荧光定量PCR(qRT-PCR)检测

将第1链cDNA模板按1:20稀释,用CFX96实时PCR检测系统(Eppendorf,德国)进行qRT-PCR。以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,无菌超纯水为阴性对照,GAPDH和纤维素酶基因的引物如表1所示。每个样品设置3个生物学重复,用2-ΔΔCt法计算目的基因mRNA相对表达量。
表1 本研究所用引物

Table 1 Primers used in this study

引物 Primer 序列 Sequence (5'—3')
PcGH9-F1 ACTTCGCTGACAACTTCC
PcGH9-R1 CAGGCAACTTACATAGATTCC
PcGH9-F2 CGAGTTCAGCCTTAATGGA
PcGH9-R2 TGTGTCAATGCCGTTCTT
PcGH9-F3 TCTACAGGTCGTGGAGTG
PcGH9-R3 TCTTCAGGTAAGTCAGGAAC
PcGH9-F4 GATGTTGACTCAGCCTACT
PcGH9-R4 TCTGTGATGGAATTGTGGTA
PcGH9-F5 CGATAAGAAGGCTGGAGTC
PcGH9-R5 GAGAGGAAGGCGACATTAG
PcGH9-F6 GCAGTCCATTCTTCATCTTG
PcGH9-R6 TCAGGTAGGTGTCGTCTC
PcGH9-F7 TATTCGCCATTGCCTCAC
PcGH9-R7 ACCTGACCGTAGAACTCC
GAPDH-F GATGCCCCAATGTTCGTCTG
GAPDH-R CGTCATCCTCAGTGTAACCCA

1.8 β-1,4-内切葡聚糖酶活性测定

以羧甲基纤维素为底物,采用3,5-二硝基水杨酸(DNS)法测定肝胰腺组织中β-1,4-内切葡聚糖酶活性[12],共测定3次,每次6个重复。

1.9 数据处理

采用SPSS 27.0统计中的ANOVA过程进行单因素方差分析,分析各组数据的差异情况,P<0.05表示差异显著,采用Origin 2022软件绘图。

2 结果与分析

2.1 克氏原螯虾GH9基因的鉴定与理化性质

在克氏原螯虾全基因组中共鉴定出7条含有纤维素酶GH9基因家族的编码基因,根据其在染色体上的分布,依次命名为PcGH9-1、PcGH9-2、PcGH9-3、PcGH9-4、PcGH9-5、PcGH9-6、PcGH9-7,具体信息见表2。由表2可以看出,克氏原螯虾GH9基因家族cDNA长度为1 843~2 354 bp,氨基酸数为510~585个,相对分子质量为50 913.03~64 623.36,理论等电点为4.21~4.34;亲水性预测分析发现均为亲水性蛋白。
表2 克氏原螯虾7个GH9基因的理化性质

Table 2 Physicochemical properties of seven GH9 genes in P. clarkii

基因名称
Gene
names
登录号
Accession
ID
氨基酸数
Number of
amino acids/个
相对分子质量
Relative molecular
mass
cDNA长度
Length of
the cDNA
理论等电点
Theoretical
PI
亲水性
Hydrophilic
PcGH9-1 OP676254 573 62 598.34 2 105 4.21 亲水
PcGH9-2 OP414590 510 50 913.03 1 843 4.22 亲水
PcGH9-3 OP414591 584 64 135.08 2 152 4.29 亲水
PcGH9-4 OP414592 585 63 726.52 2 156 4.34 亲水
PcGH9-5 OP414593 584 64 623.36 2 354 4.26 亲水
PcGH9-6 OP414594 584 63 817.54 2 028 4.25 亲水
PcGH9-7 OP414595 578 63 764.56 2 014 4.28 亲水

2.2 克氏原螯虾GH9基因家族的结构及蛋白质结构域特征

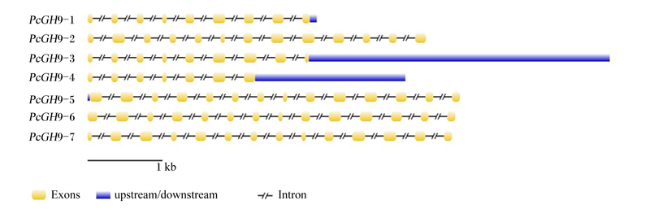
图1可知,克氏原螯虾GH9基因家族的外显子数从7到14不等,内含子数则从6到13不等。其中PcGH9-1和PcGH9-3均含有9个外显子,PcGH9-5、PcGH9-6和PcGH9-7均有14个外显子,PcGH9-2则有13个外显子,PcGH9-4外显子最少,为7个,表明克氏原螯虾GH9基因家族不同成员在外显子数上差异不大。
图1 克氏原螯虾GH9基因家族结构分析

Exons:外显子;upstream/downstream:上游/下游非翻译区 upstream/downstream untranslated region;Intron:内含子。

Fig.1 Structural analysis of GH9 gene family in P. clarkii

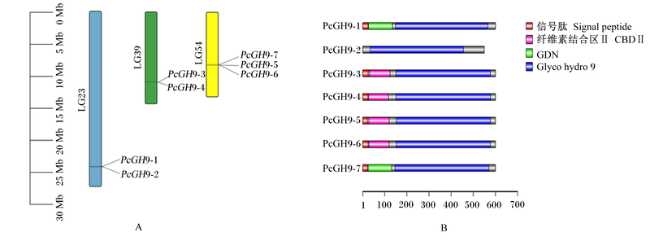
图2-A可知,7个GH9基因分布于LG23、LG39以及LG54等3条染色体上。其中PcGH9-1与PcGH9-2分布在LG23染色体上,PcGH9-3与PcGH9-4分布在LG39染色体上,PcGH9-5、PcGH9-6和PcGH9-7分布在LG54染色体上。
图2 克氏原螯虾GH9基因家族的染色体分布(A)与蛋白质结构(B)

Fig.2 Chromosome distribution (A) and protein structure (B) of GH9 gene family in P. clarkii

图2B可知,7个GH9基因均有Glyco hydro 9结构域,且结构域大小相似。其中PcGH9-2仅有Glyco hydro 9结构域,无信号肽(signal peptide)以及其他结构域,而PcGH9-3、PcGH9-4、PcGH9-5和PcGH9-6有1个纤维素结合区(cellulose binding domain,CBD)Ⅱ结构域,PcGH9-1、PcGH9-7仅有GDN结构域,无CBDⅡ结构域。

2.3 克氏原螯虾GH9基因家族的序列比对结果

图3可知,在LG23染色体上的PcGH9-1与PcGH9-2氨基酸序列一致性达到54.90%,在LG39染色体上的PcGH9-3与PcGH9-4氨基酸序列一致性为77.45%,在LG54染色体上的PcGH9-5、PcGH9-6和PcGH9-7氨基酸序列一致性为68.79%,总的一致性则为67.98%。根据Davison等[13]的发现,确定克氏原螯虾GH9基因家族有3个保守结构域Ⅰ、Ⅱ和Ⅲ。功能结构位点预测催化活性中心谷氨酸(Glu)为质子供体,2个天冬氨酸(Asp)为亲核基团。
图3 克氏原螯虾GH9基因家族序列比对分析

黑色区域:相似度=100%;深灰色区域:相似度≥75%;灰色区域:相似度≥50%;n为亲核基团,c为共亲核基团,p为质子供体。Ⅰ、Ⅱ、Ⅲ代表3个保守结构域。

Fig.3 Comparative analysis of GH9 gene family sequences in P. clarkii

Black area: similarity=100%; dark gray area: similarity≥75%; gray area: similarity≥50%; n is the nucleophile group, c is the co-nucleophile group, and p is the proton donor. Ⅰ, Ⅱ and Ⅲ represent three conserved domains.

2.4 克氏原螯虾GH9基因的进化分析结果

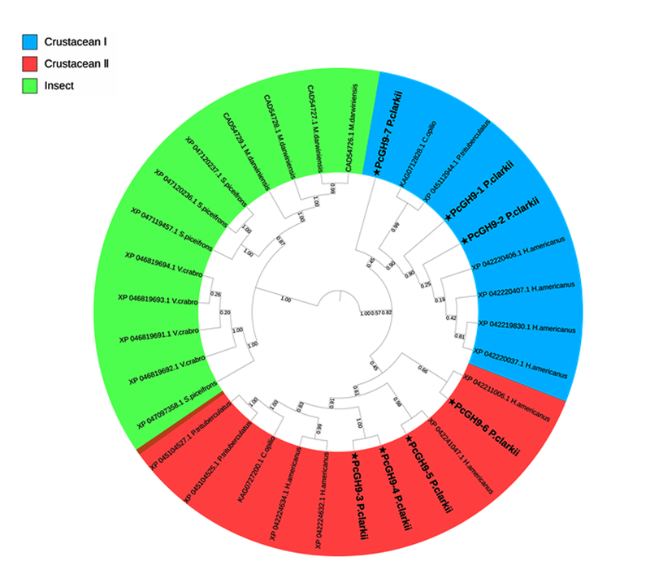
图4可知,克氏原螯虾GH9基因家族分支成2个亚类,第Ⅰ亚类包括PcGH9-1、PcGH9-2和PcGH9-7,这一亚类无CBD结构域;第Ⅱ亚类包括PcGH9-3、PcGH9-4、PcGH9-5和PcGH9-6,这一亚类拥有CBD结构域。
图4 基于氨基酸构建的克氏原螯虾及其他动物GH9基因的系统进化树

Crustacean:甲壳类动物;Insect:昆虫;P. clarkia: 克氏原螯虾;H. americanus:美洲螯龙虾;P. trituberculatus:三疣梭子蟹;C. opilio:雪蟹;M. darwiniensis:达尔文澳白蚁;V. crabro:黄边胡蜂;S. piceifrons:中美洲蝗虫。

Fig.4 Phylogenetic tree of GH9 genes in P. clarkii and other animals based on amino acids

2.5 克氏原螯虾GH9基因家族的组织表达分布

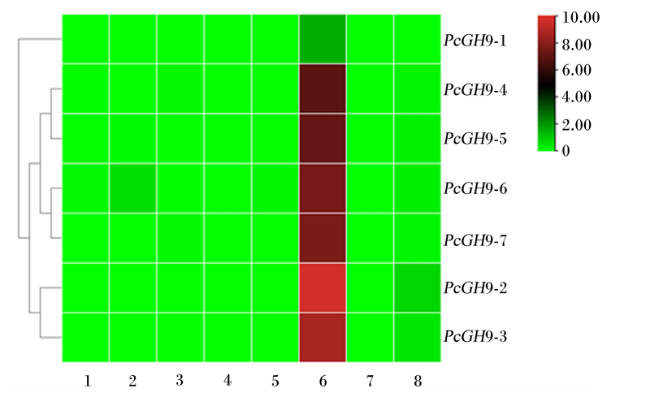
图5可知,GH9基因家族均在肝胰腺中高表达,其中PcGH9-2的表达量最多,PcGH9-1的表达量最少;PcGH9-2、PcGH9-3和PcGH9-6在性腺中低表达,在其他组织中不表达;此外,位于同一染色体的PcGH9-3与PcGH9-4在8个组织中表达模式基本一致,只在肝胰腺和性腺中表达。然而,位于同一染色体的PcGH9-1与PcGH9-2在8个组织中的表达模式却存在明显差异。
图5 克氏原螯虾GH9基因家族在不同组织中的表达

1:血液;2:表皮;3:鳃;4:心脏;5:肠道;6:肝胰腺;7:肌肉;8:性腺。颜色从绿到红,表示lg(TPM+1)从小到大,按列归一化数据。

Fig.5 Expression of GH9 gene family in different tissues of P. clarkii

1: blood; 2: epidermis; 3: gill; 4: heart; 5: intestines; 6: hepatopancreas; 7: muscle; 8: gonads. The color ranges from green to red, indicating that lg(TPM+1) is normalized in columns from small to large.

2.6 投喂不同饲料时克氏原螯虾GH9基因家族表达及β-1,4-内切葡聚糖酶活性的变化
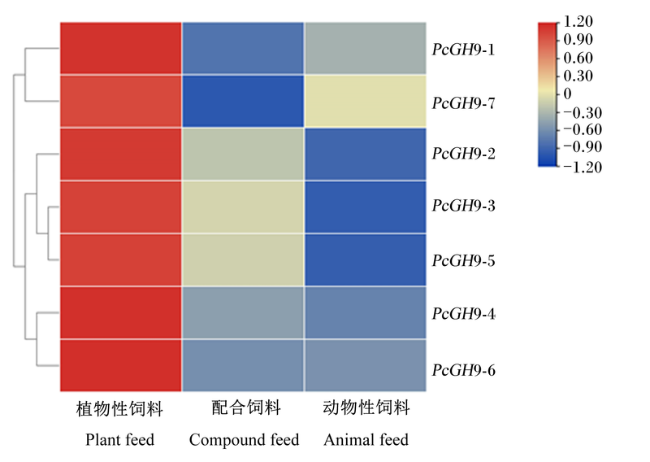
图6可知,克氏原螯虾GH9基因家族在投喂植物性饲料时表达量最高,在投喂配合饲料时次之,在投喂动物性饲料时最低。
图6 投喂不同饲料时克氏原螯虾GH9基因家族表达的变化

Fig.6 Changes of GH9 gene family expression in hepatopancreas of P. clarkii fed different feeds

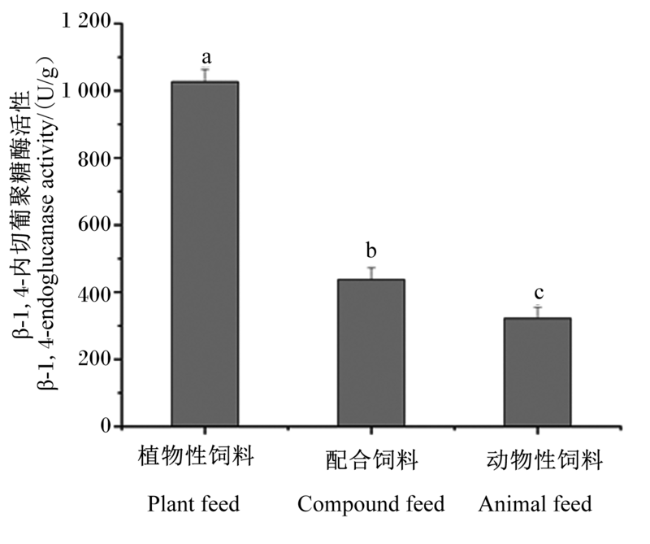
图7可知,不同饲料条件下克氏原螯虾肝胰腺中β-1,4-内切葡聚糖酶活性与GH9基因家族表达趋势一致,即在投喂植物性饲料时最高,在投喂配合饲料时次之,在投喂动物性饲料时最低,且不同饲料之间的差异达到显著水平(P<0.05)。
图7 投喂不同饲料时克氏原螯虾肝胰腺中β-1,4-内切葡聚糖酶活性的变化

数据柱标注不同字母表示存在显著差异(P<0.05)。图9同。

Fig.7 Changes of β-1,4-endoglucanase activity in hepatopancreas of P. clarkii fed different feeds

Data columns with different letters indicate significant difference (P<0.05). The same as Fig.9.

2.7 低氧-复氧胁迫下克氏原螯虾GH9基因家族表达及β-1,4-内切葡聚糖酶活性的变化
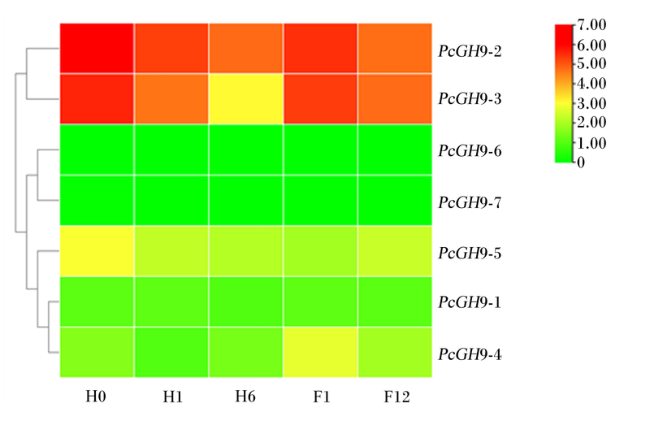
图8可知,克氏原螯虾GH9基因家族在受到低氧-复氧胁迫时各个时间点的表达量存在明显差异。PcGH9-1、PcGH9-2、PcGH9-3、PcGH9-4与PcGH9-5会随着低氧时间的增加而下降,PcGH9-6与PcGH9-7在低氧-复氧胁迫下的表达量变化不大。
图8 低氧-复氧胁迫下克氏原螯虾肝胰腺中GH9基因家族表达的变化

H0:常氧对照组;H1:低氧1 h;H6:低氧6 h;F1:复氧1 h;F12:复氧12 h。图9同。

Fig.8 Changes of GH9 gene family expression in hepatopancreas of P. clarkii under hypoxic-reoxygenation stress

H0: normoxia control group; H1: hypoxia for 1 h; H6: hypoxia for 6 h; F1: reoxygenation for 1 h; F12: reoxygenation for 12 h. The same as Fig.9.

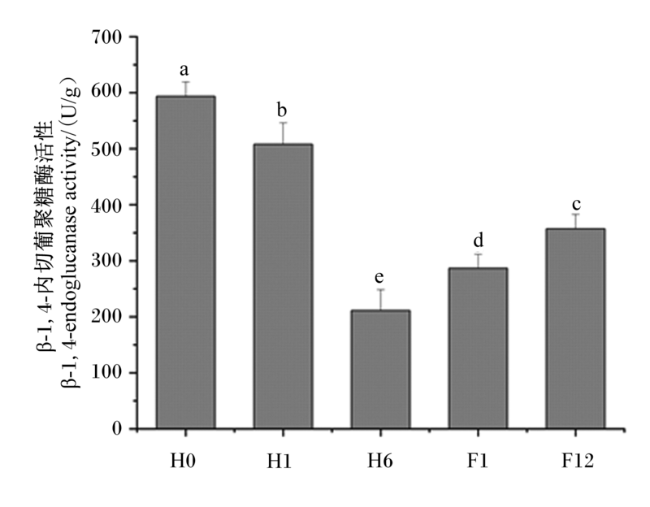
图9可知,随着低氧胁迫时间的增加,克氏原螯虾肝胰腺中β-1,4-内切葡聚糖酶活性显著下降(P<0.05),在低氧6 h时达到最低值;在复氧条件下,β-1,4-内切葡聚糖酶活性逐渐恢复,但复氧12 h仍显著低于常氧对照组(P<0.05)。
图9 低氧-复氧胁迫下克氏原螯虾肝胰腺中β-1,4-内切葡聚糖酶活性的变化

Fig.9 Changes of β-1,4-endoglucanase activity in hepatopancreas of P. clarkii under hypoxic-reoxygenation stress

3 讨论

3.1 克氏原螯虾内源性纤维素酶GH9基因家族的特性

纤维素酶不仅分布于微生物、植物等中,还广泛分布于昆虫、贝类、鱼类等动物体内。水生甲壳类内源性纤维素酶GH9基因首次于1999年在红螯螯虾中被证实[14]。Bui等[15]从红岸蟹(Parasesarma erythodactyla)肝胰腺组织中克隆出了β-1,4-内切葡聚糖酶基因的cDNA,且发现了包含GH9催化结构域;Gray等[16]发现,GH9基因序列在陆生草食性与非草食性甲壳类中广泛存在。本研究基于克氏原螯虾基因组,证实了克氏原螯虾自身含有内源性的纤维素酶GH9基因家族。
根据保守结构域中氨基酸序列的相似性,发现克氏原螯虾纤维素酶基因家族属于GH9家族,包含信号肽、功能催化区(catalytic domain,CD)和CBD。克氏原螯虾GH9基因家族的功能催化区催化活性中心的谷氨酸能够为羧酸性残基向糖苷氧提供质子,而天冬氨酸则作为碱性残基激活亲核性水分子攻击异头碳进行催化水解,切断纤维素非结晶区的糖链,产生系列寡糖与新的还原末端,并能够持续性降解[17]。克氏原螯虾GH9基因家族的CBD结构域能够提高β-1,4-内切葡聚糖酶与不溶性底物纤维素结合亲和力,缩短与底物的距离,增加底物表面酶的活性,从而提高分解能力[18]

3.2 克氏原螯虾纤维素酶GH9基因家族的组织表达分布

肝胰腺是甲壳动物重要的消化器官。在本次研究中,克氏原螯虾GH9基因家族在肝胰腺中高表达,与罗氏沼虾(Macrobrachium rosenbergii)[19]、中华绒螯蟹(Eriocheir sinensis)[20]和红螯螯虾[21]等杂食性虾蟹类上报道的结果一致。Byrne等[14]通过原位杂交方法证实了GH9基因能够定位甲壳类肝胰腺组织,在昆虫体内GH9基因主要由中肠柱状细胞分泌表达。甲壳类的肝胰腺与昆虫的中肠是同源器官,这反映了内源性纤维素酶GH9基因家族在节肢动物中组织分布的一致性[22-23]。克氏原螯虾的肝胰腺为复管状腺,与中肠的起始段相连,分泌的内源性纤维素酶能够将不易消化的大分子长链多糖降解成小分子,促进富含纤维素的植物细胞壁的溶解,为后肠肠道菌群进一步消化吸收奠定了基础。

3.3 投喂不同饲料对克氏原螯虾GH9基因家族表达及β-1,4-内切葡聚糖酶活性的影响

投喂不同种类的饲料对水生动物消化酶的活性有重要影响[24]。β-1,4-内切葡聚糖酶能够催化水解纤维素链中的β-1,4-糖苷键,根据蛋白质结构域中氨基酸序列的相似性,β-1,4-内切葡聚糖酶分布在多个糖苷水解酶家族中,其中GH9基因家族是动物体内关键的糖苷水解酶家族,在节肢动物、软体动物、腔肠动物、环节动物中均有报道。在水生甲壳类动物中,消化组织中β-1,4-内切葡聚糖酶的活性主要由GH9基因表达分泌所决定[14]。在本研究中,克氏原螯虾肝胰腺中GH9基因家族的表达量以及β-1,4-内切葡聚糖酶活性在投喂植物性饲料时最高,这与红螯螯虾[25]、罗氏沼虾[26]肝胰腺中纤维素酶活性随着纤维素摄入量的增加而升高的结果相一致,表明克氏原螯虾GH9基因家族可能参与植物性饲料的消化与吸收。克氏原螯虾内源纤维素酶通过分解摄食的藻类以及水生植物的细胞壁,促进了克氏原螯虾对纤维素及植物性饲料的消化与吸收,有利于克氏原螯虾的正常生长。

3.4 低氧-复氧胁迫对克氏原螯虾GH9基因家族表达及β-1,4-内切葡聚糖酶活性的抑制作用

消化酶类是机体消化吸收营养物质的基础,而溶解氧是影响消化酶活性的关键限制因子。本研究发现,在低氧胁迫下克氏原螯虾肝胰腺中GH9基因家族的表达及β-1,4-内切葡聚糖酶活性受到抑制,这与在凡纳滨对虾(Litopenaeus vannamei)[27]、三角帆蚌(Hyriopsis cumingii)[28]上所得结果相一致。低氧条件下,机体通过调控消化酶活性来应对低氧环境。动物自身主动选择葡萄糖、乳糖等短链多糖类消化,快速获得能量以适应缺氧环境,而纤维素、淀粉等长链多糖的消化分解酶类活性受到显著抑制。复氧后,长链多糖的消化分解酶类活性逐步恢复,有氧代谢能力增强,机体通过调控消化酶活性来适应缺氧下的能量代谢需求[29-30]。在克氏原螯虾养殖生产中,水体中溶解氧浓度不足会导致纤维素酶活性下降,抑制了克氏原螯虾摄食需求,不利于克氏原螯虾生长发育,影响最终养殖规格与产量。由于低氧胁迫试验周期短,长期低氧对于克氏原螯虾内源性消化酶活性及其生长的影响还有待进一步研究。

4 结论

本试验鉴定了克氏原螯虾内源性纤维素酶GH9基因家族,反映了杂食性的克氏原螯虾对纤维素摄食消化能力与适应不同生境的食性基础。低氧胁迫抑制了克氏原螯虾肝胰腺中GH9基因家族的表达及β-1,4-内切葡聚糖酶的活性,揭示了内源性消化酶类活性下降可能是导致克氏原螯虾低氧下生长缓慢的重要原因。
[1]
BARZKAR N, SOHAIL M. An overview on marine cellulolytic enzymes and their potential applications[J]. Applied Microbiology and Biotechnology, 2020, 104(16):6873-6892.

DOI PMID

[2]
TANIMURA A, LIU W, YAMADA K, et al. Animal cellulases with a focus on aquatic invertebrates[J]. Fisheries Science, 2013, 79(1):1-13.

DOI

[3]
WATANABE H, NODA H, TOKUDA G, et al. A cellulase gene of termite origin[J]. Nature, 1998, 394(6691):330-331.

DOI

[4]
XU B Z, JANSON J C, SELLOS D. Cloning and sequencing of a molluscan endo-β-1,4-glucanase gene from the blue mussel,Mytilus edulis[J]. European Journal of Biochemistry, 2001, 268(13):3718-3727.

DOI

[5]
WATANABE H, TOKUDA G. Animal cellulases[J]. Cellular and Molecular Life Sciences, 2001, 58(9):1167-1178.

DOI PMID

[6]
LINTON S M. Review:the structure and function of cellulase (endo-β-1,4-glucanase) and hemicellulase (β-1,3-glucanase and endo-β-1,4-mannase) enzymes in invertebrates that consume materials ranging from microbes,algae to leaf litter[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2020, 240:110354.

[7]
PARK I Y, CHA J R, OK S M, et al. A new earthworm cellulase and its possible role in the innate immunity[J]. Developmental & Comparative Immunology, 2017, 67:476-480.

[8]
徐宇, 许志强, 黄鸿兵, 等. 江苏小龙虾产业发展历程、现状和展望[J]. 水产养殖, 2021, 42(10):77-80.

XU Y, XU Z Q, HUANG H B, et al. Development history,present situation and prospect of Procambarus clarkii industry in Jiangsu[J]. Journal of Aquaculture, 2021, 42(10):77-80. (in Chinese)

[9]
冯光志, 石慧, 刘博, 等. 小龙虾肠道产纤维素酶细菌的分离与鉴定[J]. 生物技术通报, 2020, 36(2):65-70.

DOI

FENG G Z, SHI H, LIU B, et al. Screening and identification of cellulase-producing strains isolated from crayfish intestine[J]. Biotechnology Bulletin, 2020, 36(2):65-70. (in Chinese)

[10]
ZHANG L, SONG Z W, ZHONG S, et al. Acute hypoxia and reoxygenation induces oxidative stress, glycometabolism,and oxygen transport change in red swamp crayfish (Procambarus clarkii):application of transcriptome profiling in assessment of hypoxia[J]. Aquaculture Reports, 2022, 23:101029.

[11]
XU Z Q, GAO T H, XU Y, et al. A chromosome-level reference genome of red swamp crayfish Procambarus clarkii provides insights into the gene families regarding growth or development in crustaceans[J]. Genomics, 2021, 113(5):3274-3284.

DOI

[12]
黄玉兰, 李征, 刘晓宁, 等. 一株耐低温纤维素酶高产菌株的筛选、鉴定和产酶的初步试验[J]. 微生物学通报, 2010, 37(5):637-644.

HUANG Y L, LI Z, LIU X N, et al. Screening and identification of a cold-adapted cellulase-producing bacteria[J]. Microbiology, 2010, 37(5):637-644. (in Chinese)

[13]
DAVISON A, BLAXTER M. Ancient origin of glycosyl hydrolase family 9 cellulase genes[J]. Molecular Biology and Evolution, 2005, 22(5):1273-1284.

DOI PMID

[14]
BYRNE K A, LEHNERT S A, JOHNSON S E, et al. Isolation of a cDNA encoding a putative cellulase in the red claw crayfish Cherax quadricarinatus[J]. Gene, 1999, 239(2):317-324.

DOI

[15]
BUI T H H, LEE S Y. Endogenous cellulase production in the leaf litter foraging mangrove crab Parasesarma erythodactyla[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2015, 179:27-36.

DOI

[16]
GRAY M, LINTON S M, ALLARDYCE B J. cDNA sequences of GHF9 endo-β-1,4-glucanases in terrestrial Crustacea[J]. Gene, 2018, 642:408-422.

DOI PMID

[17]
WATANABE H, TOKUDA G. Cellulolytic systems in insects[J]. Annual Review of Entomology, 2010, 55(1):609-632.

DOI

[18]
李恒, 唐双焱. 碳水化合物结合结构域研究进展[J]. 微生物学报, 2017, 57(8):1160-1167.

LI H, TANG S Y. Carbohydrate-binding modules:assisted polysaccharide recognition[J]. Acta Microbiologica Sinica, 2017, 57(8):1160-1167. (in Chinese)

[19]
ONG S S, BHASSU S, KWONG Q B, et al. Identification of a putative cellulase gene in the giant freshwater prawn,Macrobrachium rosenbergii (De Man,1879)[J]. Aquaculture Research, 2016, 47(11):3653-3661.

DOI

[20]
刁澎云, 储俊东, 李旭光, 等. 中华绒螯蟹内源性纤维素酶EsGH9-1基因的克隆、表达及其对不同饵料的响应[J/OL]. 渔业科学进展:1-10. https://kns.cnki.net/kcms/detail/detail.aspx?FileName=HYSC20211207000&DbName=CAPJ2021DOI:10.19663/j.issn2095-9869.20210820002.

DOI

DIAO P Y, CHU J D, LI X G, et al. Molecular cloning and expression analysis of endogenous cellulase EsGH9-1 from Eriocheir sinensis and its response to different diets[J/OL]. Progress in Fishery Sciences:1-10. https://kns.cnki.net/kcms/detail/detail.aspx?FileName=HYSC20211207000&DbName=CAPJ2021DOI:10.19663/j.issn2095-9869.20210820002. (in Chinese)

DOI

[21]
TAN M H, GAN H M, GAN H Y, et al. First comprehensive multi-tissue transcriptome of Cherax quadricarinatus (Decapoda:Parastacidae) reveals unexpected diversity of endogenous cellulase[J]. Organisms Diversity & Evolution, 2016, 16(1):185-200.

[22]
NAKASHIMA K, WATANABE H, SAITOH H, et al. Dual cellulose-digesting system of the wood-feeding termite,Coptotermes formosanus Shiraki[J]. Insect Biochemistry and Molecular Biology, 2002, 32(7):777-784.

DOI

[23]
SHELOMI M, WIPFLER B, ZHOU X, et al. Multifunctional cellulase enzymes are ancestral in Polyneoptera[J]. Insect Molecular Biology, 2020, 29(1):124-135.

DOI

[24]
GUO H Y, TANG D, SHI X L, et al. Comparative transcriptome analysis reveals the expression and characterization of digestive enzyme genes in the hepatopancreas of the Chinese mitten crab[J]. Fisheries Science, 2019, 85(6):979-989.

DOI

[25]
PAVASOVIC A, RICHARDSON N A, MATHER P B, et al. Influence of insoluble dietary cellulose on digestive enzyme activity,feed digestibility and survival in the red claw crayfish,Cherax quadricarinatus (von Martens)[J]. Aquaculture Research, 2006, 37(1):25-32.

DOI

[26]
GONZÁLEZ-PEÑA M D C, ANDERSON A J, SMITH D M, et al. Effect of dietary cellulose on digestion in the prawn Macrobrachium rosenbergii[J]. Aquaculture, 2002, 211(1/2/3/4):291-303.

DOI

[27]
段妍, 张秀梅, 张志新. 溶解氧对凡纳滨对虾生长及消化酶活性的影响[J]. 中国海洋大学学报(自然科学版), 2013, 43(2):8-14.

DUAN Y, ZHANG X M, ZHANG Z X. The effect of dissolve oxygen concentration on the growth and digestive enzyme activity of whiteleg shrimp Litopenaeus vannamei[J]. Periodical of Ocean University of China (Natural Science), 2013, 43(2):8-14. (in Chinese)

[28]
GU H X, HU M H, WEI S S, et al. Combined effects of toxic Microcystis aeruginosa and hypoxia on the digestive enzyme activities of the triangle sail mussel Hyriopsis cumingii[J]. Aquatic Toxicology, 2019, 212:241-246.

DOI

[29]
HUO D, SUN L N, RU X S, et al. Impact of hypoxia stress on the physiological responses of sea cucumber Apostichopus japonicus:respiration,digestion,immunity and oxidative damage[J]. PeerJ, 2018, 6:e4651.

DOI

[30]
YANG E J, ZHANG J D, YANG L T, et al. Effects of hypoxia stress on digestive enzyme activities,intestinal structure and the expression of tight junction proteins coding genes in juvenile cobia (Rachycentron canadum)[J]. Aquaculture Research, 2021, 52(11):5630-5641.

DOI

Outlines

/