REVIEW

Toxic Effects of Zearalenone on Animal Reproductive Performance and Its Mechanism

  • NING Chunmei , 1, 2 ,
  • AN Jiaxiu 1, 2 ,
  • ZHAO Ying 1, 2 ,
  • YANG Yi , 1, 2, *
Expand
  • 1 Key Laboratory of Plateau Mountain Animal Genetics, Breeding and Reproduction, Ministry of Education, Guizhou University, Guiyang 550025, China
  • 2 Guizhou Provincial Key Laboratory of Animal Genetics, Breeding and Reproduction, Guiyang 550025, China
*associate professor, E-mail:

Received date: 2022-09-22

  Online published: 2023-04-12

Abstract

Zearalenone (ZEA) is a secondary metabolite produced by Fusarium spp. Its chemical structure is similar to that of endogenous estrogen. In this way, ZEA can competitively bind estrogen receptors to estrogen, leading to metabolic disorders of reproductive hormones in animals, and inducing deformation and dysfunction of reproductive organs. The problem of ZEA pollution has become an urgent matter. This article reviewed the physicochemical properties and toxic effects of ZEA, in order to provide a theoretical basis for effectively alleviating ZEA toxicity, and improving animal reproductive performance as well as promoting the healthy development of animal husbandry.

Cite this article

NING Chunmei , AN Jiaxiu , ZHAO Ying , YANG Yi . Toxic Effects of Zearalenone on Animal Reproductive Performance and Its Mechanism[J]. Chinese Journal of Animal Nutrition, 2023 , 35(4) : 2166 -2174 . DOI: 10.12418/CJAN2023.204

霉菌毒素是一类由产毒霉菌生成的一种次级代谢物,常见的霉菌毒素包括黄曲霉毒素B1(aflatoxinB1,AFB1)、玉米赤霉烯酮(zearalenone,ZEA)、呕吐毒素(deoxynivalenol,DON)、赭曲霉毒素A(ochratoxin A,OTA)、T-2毒素等[1-3],广泛存在于花生、玉米、小麦、豆类及其他食物和饲料原料中[4]。这些毒素大多化学性质稳定,难以自然或在饲料加工过程中降解,因而广泛存在于未经妥善收获、调制、加工、贮存的饲料及饲料原料中。动物食用霉菌毒素污染的饲料可引发急慢性中毒、免疫系统紊乱、繁殖障碍等症状,严重者可导致死亡[5]。世界卫生组织与联合国粮农组织指出,全球每年约25%粮食作物受到霉菌毒素污染,每年因霉菌毒素污染造成的经济损失可达数百亿美元,饲料及饲料原料中霉菌毒素污染已成为农业和畜牧业面临的棘手问题[6]
玉米赤霉烯酮,又称F-2毒素,由镰刀菌属产生,是畜禽养殖中污染情况极为严重的一种真菌毒素。与其他常见毒素相比,ZEA具有类雌激素活性,可与机体雌激素受体(estrogen receptor,ER)结合,激活雌激素敏感基因,使ER二聚化,造成机体激素代谢紊乱,尤其对动物繁殖机能造成极大损伤[7]。大量研究证明,ZEA具有致癌性[8-9]、免疫毒性[10-11]、繁殖毒性等多种毒性[12],动物食用ZEA污染的饲料易引发机体多种疾病,如繁殖机能紊乱、致癌以及诱发动物严重的肝脏、肾脏功能损伤等。此外,ZEA还易残留在肉、奶等动物产品中,进而通过食物链对人体造成毒害。Minervini等[13]研究证实,ZEA可抑制促卵泡激素的分泌及释放,抑制卵泡成熟,诱导母猪假发情;ZEA中毒时,可引发母猪子宫内膜增大、卵巢萎缩、妊娠母猪甚至出现流产、胎儿畸形等症状,ZEA中毒仔猪肝脏、肾脏发生氧化应激,表现为肝脏、肾脏总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性显著降低,丙二醛(MDA)含量显著升高[14-15]。ZEA还具有致癌性,可导致原癌基因c-Mycc-Fos等异常调控,诱导正常细胞转化为肿瘤细胞[16]。同时,原癌基因c-Myc、c-Jun和c-Fos蛋白表达水平显著提高,抗癌基因p53/磷酸酶和张力蛋白同源蛋白的蛋白表达水平显著降低;ZEA还干扰细胞间隙连接通讯,影响缝隙连接蛋白32(Cx32)和缝隙连接蛋白43(Cx43)的表达,抑制细胞间隙连接通讯活性,进而诱导正常细胞转化为肿瘤细胞[17]。ZEA具有多种毒性,ZEA污染对饲料行业造成威胁的同时也可损伤动物繁殖性能,对畜牧养殖业造成了巨大的经济损失。ZEA污染的谷类等作物或ZEA中毒畜禽的肉奶等产品一旦被人类食用,对人类健康也具有不可忽视的毒害作用。然而,目前对于ZEA的毒性机制尚不清楚。因此,本文通过对ZEA的理化性质、毒性作用及其毒性机制作详细阐述,以期为寻求有效降解ZEA或缓解其毒性作用的药物或方法提供参考。

1 ZEA的限量标准与污染现状

ZEA是由镰刀菌属产生,具有类雌激素活性的次级代谢产物,低温高湿条件下极易滋生。农作物及动物饲料在生长、加工、运输和贮存过程中极易受到ZEA的污染。随着贸易国际化、全球化发展,霉菌毒素污染也呈全球化大面积污染趋势[18]。调查结果表明,墨西哥玉米中ZEA污染率达70%,葡萄牙和荷兰约50%玉米面粉、35.2%混合面粉和31.6%小麦面粉存在ZEA污染[19];2008—2017年从全球100多个国家收集的74 821份饲料和饲料原料(如玉米、小麦、大豆)样品进行霉菌毒素含量检测,发现88%的样本存在霉菌毒素污染,其中64%的样本检测到2种以上的毒素,以ZEA-DON-AFB组合最为常见,并且,ZEA含量变化呈区域差异,与降雨和温度直接相关[20]。我国大部分地区温度适宜,雨量充沛,是ZEA污染的重灾区。Zhao等[21]对2018—2020年中国各省份饲料中霉菌毒素发生情况进行检测发现,ZEA单独污染率达96.9%,平均浓度为48.1~326.8 μg/kg,且多为ZEA-DON-AFB组合污染;2020年,李孟聪等[22]对广东省动物饲料中主要霉菌毒素污染调查结果表明,猪饲粮中ZEA的阳性检出率为76.14%,超标率达14.93%,鸡饲粮中ZEA的阳性检出率和超标率分别为66.67%和20%;2019年中国畜禽及奶牛全价混合饲料中单端孢霉烯族毒素B族毒素(以DON为代表)、伏马毒素和ZEA污染最为严重,其中ZEA在甜菜、豆皮中阳性检出率极高,达80%以上[23]。以上研究结果表明,饲料及饲料原料中ZEA污染极为严重且广泛,且严重超出GB 13078—2017《饲料卫生标准》[1]及欧盟委员会[2]对ZEA在动物饲料及饲料原料中的限量标准(表1表2),已成为饲料及畜牧行业的重大威胁。作为食品污染物,霉菌毒素对人类和畜禽均产生不利影响。
表1 饲料及饲料原料中ZEA的限量标准(《饲料卫生标准》)

Table 1 Limit standards of ZEA in feed and feed raw materials (Feed Sanitation Standard)[1]

项目Items 产品名称Product name 限量Limit/(mg/kg)
饲料原料
Feed raw materials
玉米及其加工产品(玉米皮、喷浆玉米皮、玉米浆干粉除外) ≤0.5
玉米皮、喷浆玉米皮、玉米浆干粉、玉米酒糟类产品 ≤1.5
其他植物性饲料原料 ≤1
饲料
Feed
犊牛、羔羊、泌乳期精料补充料 ≤0.5
仔猪配合饲料 ≤1.5
青年母猪配合饲料 ≤0.1
其他猪配合饲料 ≤0.25
其他配合饲料 ≤0.5
表2 饲料及饲料原料中ZEA的限量标准(欧盟委员会,2006年)

Table 2 Limit standards for ZEA in feed and feed raw materials for me (European Commission, 2006)[2]

项目Items 产品名称Product name 限量Limit/ppm
饲料原料
Feed raw materials
谷物及谷物制品(玉米副产品除外) 2
玉米副产品 3
饲料
Feed
猪和小母猪饲料 0.1
母猪和育肥猪饲料 0.25
小牛、奶牛、绵羊和山羊饲料 0.5

2 ZEA的理化特性

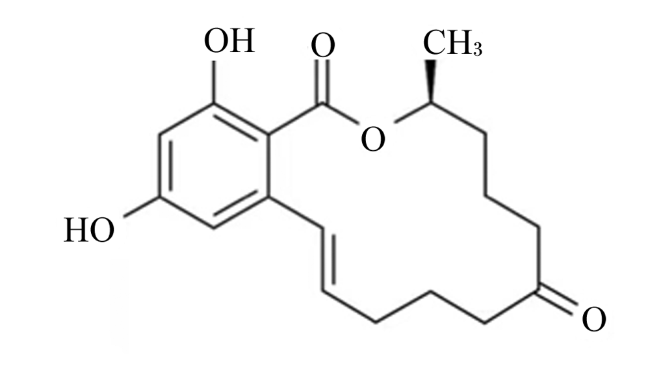
ZEA主要是由禾谷镰刀菌(Fusarium graminearum)产生的一种非类固醇类的、具有雌激素活性的霉菌毒素,主要由谷物镰刀菌(F. graminerum)、串珠镰刀菌(F. moniliforme)和三线镰刀菌(F. tricinctum)等产生[24]。ZEA化学名称为6-(10-羟基-6-氧代-反式-1-十一碳烯基)-β-二羟基苯甲酸内酯,分子式为C18H22O,相对分子质量为318.364,结构式如图1[25]所示。ZEA呈弱极性,以白色晶体的形式存在,在长激发波长(360 nm)下显示蓝绿色荧光,在短波紫外线辐射(260 nm)下显示更强的绿色荧光。ZEA在236(ε=29 700 dm3/mol·cm)、274(ε=13 909 dm3/mol·cm)和316 nm(ε=6 020 dm3/mol·cm)处有最大紫外吸收波长;ZEA不溶于水、二硫化碳(CS2)和四氧化碳(CO4),微溶于石油醚,易溶于碱性水溶液和醇类,熔点为161~163 ℃,稳定性强,高温下及巴氏消毒均不易降解,但在碱性环境及紫外线辐射的条件下会发生降解[26]
图1 玉米赤霉烯酮分子结构式

Fig.1 Molecular structure of zearalenone

3 ZEA对动物繁殖性能的影响

3.1 对雌性动物的毒性作用

由于与雌激素化学结构相似,ZEA可与雌激素竞争性与哺乳动物靶细胞ER结合,使ER空间结构改变,ZEA-ER复合物转移至细胞核与胞内核酸结合,影响动物生殖系统重要元件的表达,进而造成相应靶组织、靶器官功能异常,引发机体生殖障碍。ZEA中毒时,母猪表现为外阴红肿、直肠及阴道脱落、子宫增大和卵巢萎缩等症状[14,27];妊娠母猪易流产或早产、新生仔猪畸形率、弱胎率增加、甚至产下干尸和死胎[15]。Young等[28]研究表明,食用10和50 μg/kg的ZEA饲料可使母猪乏情,且具有剂量依赖效应;周敏等[29]使用ZEA含量分别为0、0.5、1.0、1.5 mg/kg的饲粮饲喂断奶小母猪,发现ZEA可诱发母猪子宫肌层和内膜显著增厚,子宫腺数量显著增多,子宫腺密度显著增大,子宫内热应激蛋白70(heat shock protein 70,HSP70)免疫阳性反应增强,表达量显著上升,且该毒性作用有剂量效应;用含不同剂量的ZEA饲粮饲喂高产蛋鸡,结果表明,与对照组相比,低剂量ZEA(5 mg/kg)可显著提高蛋鸡产蛋性能,表现为蛋鸡产蛋率、采食量和料蛋比等显著提高,高剂量ZEA(5 mg/kg以上)影响蛋鸡生产性能以及干扰生殖激素的分泌,表现为ZEA含量为5 mg/kg以上时,蛋鸡平均蛋重显著降低,蛋鸡血液中黄体生成素水平显著降低,孕激素水平显著上升,并且该变化呈剂量依赖效应[30];Dänicke等[31]研究结果表明,妊娠母猪食用ZEA(含量为0.358 mg/kg)污染的饲料可显著降低仔猪体重及脾脏指数,并可在仔猪机体检测到ZEA及其代谢物,证明ZEA的毒性作用可通过母体传递给下一代。ZEA及其代谢物通过扰乱雌性动物生殖激素的分泌,损伤其生殖器官,并且其毒性作用可传递给下一代,对母体繁殖系统及后代机体各组织器官以及繁殖性能等方面产生不可忽视的毒性作用。

3.2 对雄性动物的毒性作用

ZEA可通过诱导睾丸、生精小管组织异常、精子活力降低、生殖细胞凋亡、睾酮分泌水平降低等作用方式毒害动物繁殖系统,ZEA可使小鼠附睾中未成熟精子的比例升高、能动精子比例降低、睾丸组织紊乱、生精小管中细胞排列杂乱、生精细胞层数减少、生精细胞分离并出现空泡变化[32]。ZEA毒性作用还可通过母体遗传给后代,严重损伤后代繁殖系统,诱导精子畸形及精液品质不良[33]。Boeira等[34]研究结果证实,40 mg/kg的ZEA可显著降低雄性大鼠活精子数量、精子活力及睾酮水平。用不同浓度ZEA(0、1、2、4 mg/mL)及0.1 mg/kg的17β-雌二醇(17β-estradiolum,17β-E2)对雄性大鼠连续腹腔注射28 d,发现1 mg/mL以上浓度的ZEA及0.1 mg/kg的17β-E2可引发大鼠强烈的毒性作用,如诱导大鼠生精小管萎缩、结缔组织严重水肿、血清睾酮水平降低、精子活力降低等[35]。通过对妊娠大鼠饲喂ZEA(0、5、10和20 mg/kg)污染的饲粮来探索ZEA对妊娠大鼠雄性后代的生殖发育毒性,发现20 mg/kg的ZEA处理组中雄性后代大鼠成年后睾丸重量增加,生精小管萎缩,精母细胞数量减少35%,成熟精子减少31%,另外,在胎盘中,ZEA和α-玉米赤霉烯醇(α-zearalenol,α-ZOL)残留量呈剂量依赖性增加,且在20 mg/kg ZEA组的胎儿脑和胎儿肝脏中也检测到ZEA残留量,同时,20 mg/kg组大鼠中,黄体生成素和睾酮水平显著下降,而雌二醇水平增加,10和20 mg/kg组的3β-羟基类固醇脱氢酶(3β-HSD)、类固醇急性应激调节蛋白(StAR)和ATP结合盒转运蛋白C5(ABCc5)mRNA表达显著抑制,由此推测,ZEA可诱发妊娠大鼠的雄性后代生殖功能障碍,且该作用与胎儿脑内促性腺激素释放激素受体(GnRHr)和雌激素受体1(Esr1)基因表达的改变以及睾丸发育过程中3β-HSDStAR表达的下调密切相关[36]。低浓度ZEA也可促进小鼠间质细胞增殖,降低细胞凋亡率,10、20 μg/L的ZEA作用72 h时,B淋巴细胞瘤-2(Bcl-2)相关X蛋白(Bax)/Bcl-2蛋白水平呈剂量依赖式显著降低[17];Yan等[37]研究发现,57.5 μmol/L ZEA可诱导猪睾丸细胞凋亡及氧化应激,降低其抗氧化能力;并且,200 μmol/L ZEA可显著降低湖羊睾丸间质细胞活力,显著促进促凋亡基因半胱氨酸天冬氨酸蛋白酶3(Caspase3)的mRNA及蛋白质表达水平,显著降低抗凋亡基因Bcl-2的mRNA及其蛋白表达水平[38]。Tsakmakidis等[39]研究发现,150~250 mmol/L ZEA体外暴露可显著降低野猪精液质量,包括对精子活力、存活率和顶体反应等方面的负面影响,并且该作用呈时间剂量依赖效应。以上研究结果均明确指出,ZEA不仅通过饲料直接进入雄性动物机体损害其生殖系统,还会通过母体将其毒性作用传递给下一代,造成F1代雄性动物繁殖器官组织结构异常、精子活力降低,并在动物机体仍可检测到ZEA及其代谢物,造成雄性动物繁殖机能障碍。

4 ZEA的毒性机制

4.1 经典ER信号通路

研究报道,ER有ERα和ERβ 2种异构体。已有研究证明,ZEA是ERα的完全激活剂,是ERβ的部分激活剂,雌激素活性主要受ERα调控[40]。低剂量时,ZEA主要依赖激活ER信号通路发挥毒性作用,表现为抗凋亡及促增殖作用。ZEA可与雌激素竞争性地与雌激素受体结合,ER/ZEA复合体转移到细胞核内,与雌激素响应元件(estrogen-responsive elements,ERE)结合,激活雌激素信号通路,干扰靶基因转录及蛋白质合成[36]。ZEA在机体可转化为α-ZOL和β-玉米赤霉烯醇(β-ZOL)2种代谢产物[41]。其中α-ZOL对雌激素受体的亲和力更高,而β-ZOL对雌激素受体亲和力相对较弱,三者的雌激素活性大小依次为:α-ZOL>ZEA>β-ZOL[42-43]。吕斌等[44]研究结果表明,ZEA既通过影响E2与雌激素受体结合,又通过减少雌激素受体数量发挥类雌激素作用。ZEA及其代谢物可通过干扰ER的mRNA和蛋白水平表达发挥类雌激素作用,从而造成动物机体基因表达异常、激素代谢紊乱、组织器官结构异常等。张伟伦等[45]也证明,2 mg/kg的ZEA可极显著提高卵巢ERα的阳性表达,增强卵母细胞、卵母细胞颗粒层细胞ERα的免疫阳性反应,阻碍雄性动物睾酮合成以及干扰3β-HSD-1、P450胆固醇侧链裂解酶(P450scc)和StAR的转录,影响机体激素代谢水平[46]

4.2 非经典ER信号通路

4.2.1 G蛋白偶联受体途径

大量研究证明,除经典雌激素受体途径,ZEA还可通过非经典的GPR途径发挥毒性作用。G蛋白偶联受体30(GPR30),也被称为GPER1,是一种G蛋白偶联受体,它与E2的亲和力类似于经典的核ER,并激活PKA和细胞外调节激酶信号通路。GPR30的表达已被证明在各种生殖功能中发挥重要作用,如增加大鼠的前凸行为[47],促进小鼠卵母细胞成熟[48],介导绵羊输卵管上皮细胞SBD-1基因的表达[49]以及雌二醇诱导永生化GnRH神经元(GT1-7细胞)中基因表达的直接作用[50]。已有研究表明,ZEA并非通过核受体(ERα和ERβ)发挥类雌激素作用,而是通过膜受体发挥类雌激素作用[51]。He等[52]发现,G蛋白偶联受体拮抗剂G15处理和GPR30-siRNA试验均可缓解17β-E2、ZEA和α-ZOL对促卵泡素(FSH)合成和分泌的抑制作用。ZEA也可促进GPER1蛋白表达,从而促进结肠癌细胞增殖,而该促生长作用被其拮抗剂G15抑制[53],ZEA及其代谢产物均通过GPR30抑制牛垂体前叶细胞LH的分泌[54]。与E2和ZEA类似物(浓度均为0.001~10 nM)处理组相比,GPR30特异性拮抗剂(G36)预处理5 min可以逆转E2和ZEA类似物诱导的垂体前叶细胞促黄体素(LH)分泌的抑制作用,而单独使用G36对LH分泌无明显影响[54]。因此,ZEA和α-ZOL可能通过非经典的GPR信号通路发挥类雌激素作用。

4.2.2 氧化应激途径

研究证明,除经典雌激素受体途径和非经典的GPR途径外,ZEA及其代谢产物还通过诱导细胞发生氧化应激发挥毒性作用[55-56]。氧化应激是指机体活性氧(reactive oxygen species,ROS)大量积累且超出抗氧化系统对其的清除能力,导致体内氧化作用和抗氧化作用严重失衡,产生大量氧化中间产物的状态。氧化应激的发生常伴随内质网应激。内质网应激是由错误折叠蛋白在内质网腔大量积聚并超过阈值引发的,ROS的积累可促进错误折叠蛋白积累、降低蛋白折叠效率,从而诱导细胞发生内质网应激反应[57]。细胞发生内质网应激时,积累的错误折叠蛋白又可升高胞内ROS含量[58]。遭受ZEA污染的饲料摄入体内后,可干扰线粒体膜电位,损害呼吸链电子传递系统;甚至破坏氧化还原平衡,导致ROS积累,自由基稳态失衡;这又可进一步激活炎症小体及炎症因子释放(REF),成为维持机体健康的负面因素[59-60]。同时,内质网应激通过激活早期凋亡因子(proapoptotic molecules),包括转录因子C/EBP同源蛋白(CHOP)、凋亡信号调节激酶1(ASK1)/C-Jun氨基末端激酶(JNK)和半胱氨酸蛋白酶12(Caspase12)诱导细胞凋亡。有研究证实,ZEA可显著提高仔猪MDA含量和降低仔猪肝脏SOD、GSH-Px活性及T-AOC[61];Qin等[62]也证实,ZEA(60 μM,24 h)可显著提高猪颗粒细胞ROS含量,降低细胞SOD和CAT活性;Zhu等[63]也指出,40 mg/mL的ZEA处理可促进脾脏凋亡基因Caspase3、半胱氨酸蛋白酶9(Casepase9)、BaxBcl-2高表达以及诱发凋亡小体的产生,同时,ZEA处理显著降低了动物机体抗氧化酶(SOD、CAT、GSH-Px等)活性及抗氧化能力,诱发激烈的氧化应激反应,造成脾脏严重损伤。Yu等[64]研究发现,30 μmol/L的ZEA可通过诱发严重的内质网应激诱导奶牛乳腺上皮细胞凋亡,显著提高内质网应激标志物葡萄糖调节蛋白78(GRP78)和CHOP mRNA及细胞凋亡相关基因Bax mRNA表达水平,显著降低Bcl-2 mRNA表达水平。

5 小结

国内外饲料广泛受到霉菌毒素污染,ZEA是污染最严重的毒素之一。由于具有独特的类雌激素活性,ZEA对动物繁殖系统损害尤为严重,可造成动物生殖器官形态改变及功能退化,并且其毒性作用对其后代仍有影响。目前已了解到ZEA可通过雌激素样作用、G蛋白偶联受体途径以及氧化应激3条通路发挥毒性作用,但其毒性作用及机制尚未完善,仍需研究人员继续深入探索,以求明确ZEA毒性作用机制,为探索有效缓解ZEA毒性作用及降解方法提供参考。
[1]
佚名. 饲料卫生标准[J]. 饲料与畜牧, 2018(1):16-24.

Anon. Hygienical standard for feeds[J]. Feed and Animal Husbandry, 2018(1):16-24. (in Chinese)

[2]
European Commission. Commission recommendation of 17 August 2006 on the presence of deoxynivalenol,zearalenone,ochratoxin A,T-2 and HT-2 and fumonisins in products intended for animal feeding[DB/OL].(2006-08-17)[ 2022-12-15]. https://eur-lex.europa.eu/legal-content/EN/ALL/?uri=CELEX:32006H0576#document1.

[3]
PODGÓRSKA-KRYSZCZUK I, SOLARSKA E, KORDOWSKA-WIATER M. Reduction of the fusarium mycotoxins:deoxynivalenol,nivalenol and zearalenone by selected non-conventional yeast strains in wheat grains and bread[J]. Molecules, 2022, 27(5):1578.

DOI

[4]
JIANG K Q, HUANG Q W, FAN K, et al. Reduced graphene oxide and gold nanoparticle composite-based solid-phase extraction coupled with ultra-high-performance liquid chromatography-tandem mass spectrometry for the determination of 9 mycotoxins in milk[J]. Food Chemistry, 2018, 264:218-225.

DOI PMID

[5]
龙淼, 董双, 任艳苗, 等. 三种主要霉菌毒素的危害与微生物脱毒研究进展[J]. 动物医学进展, 2014, 35(4):106-109.

LONG M, DONG S, REN Y M, et al. Progress on harm and bacterial detoxification of three kinds of mycotoxins[J]. Progress in Veterinary Medicine, 2014, 35(4):106-109. (in Chinese)

[6]
PERAICA M, RADIĆ B, LUCIĆ A, et al. Toxic effects of mycotoxins in humans[J]. Bulletin of the World Health Organization, 1999, 77(9):754-766.

PMID

[7]
TATAY E, ESPÍN S, GARCÍA-FERNÁNDEZ A J, et al. Estrogenic activity of zearalenone,α-zearalenol and β-zearalenol assessed using the E-screen assay in MCF-7 cells[J]. Toxicology Mechanisms and Methods, 2018, 28(4):239-242.

DOI

[8]
PAJEWSKA M, ŁOJKO M, CENDROWSKI K, et al. The determination of zearalenone and its major metabolites in endometrial cancer tissues[J]. Analytical and Bioanalytical Chemistry, 2018, 410(5):1571-1582.

DOI PMID

[9]
WANG Y J, ZHENG W L, BIAN X J, et al. Zearalenone induces apoptosis and cytoprotective autophagy in primary Leydig cells[J]. Toxicology Letters, 2014, 226(2):182-191.

DOI PMID

[10]
钟昉, 蔡国栋, 朱根生, 等. ZEA、DON及其联合作用对李斯特菌感染小鼠CD4+ T细胞活化的影响[J]. 中国兽医科学, 2020, 50(12):1594-1601.

ZHONG F, CAI G D, ZHU G S, et al. Effects of ZEA,DON and their combination on the activation of CD4+ T cells in listeria-infected mouse[J]. Chinese Veterinary Science, 2020, 50(12):1594-1601. (in Chinese)

[11]
WENTZEL J F, LOMBARD M J, DU PLESSIS L H, et al. Evaluation of the cytotoxic properties,gene expression profiles and secondary signalling responses of cultured cells exposed to fumonisin B1,deoxynivalenol and zearalenone mycotoxins[J]. Archives of Toxicology, 2017, 91(5):2265-2282.

DOI

[12]
GAO X, XIAO Z H, LIU M, et al. Dietary silymarin supplementation alleviates zearalenone-induced hepatotoxicity and reproductive toxicity in rats[J]. The Journal of Nutrition, 2018, 148(8):1209-1216.

DOI

[13]
MINERVINI F, DELL'AQUILA M E. Zearalenone and reproductive function in farm animals[J]. International Journal of Molecular Sciences, 2008, 9(12):2570-2584.

DOI PMID

[14]
JIANG S Z, YANG Z B, YANG W R, et al. Effects of purified zearalenone on growth performance,organ size,serum metabolites,and oxidative stress in postweaning gilts[J]. Journal of Animal Science, 2011, 89(10):3008-3015.

DOI

[15]
唐紫雯, 程华琴, 刘冬菊, 等. 原花青素对玉米赤霉烯酮诱导牦牛颗粒细胞氧化损伤的保护作用研究[J]. 畜牧兽医学报, 2022, 53(9):3006-3017.

TANG Z W, CHENG H Q, LIU D J, et al. Protective effect of proanthocyanidins on zearalenone-induced oxidative damage of yak granulosa cells[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(9):3006-3017. (in Chinese)

[16]
王欢欢, 傅春妮, 李元辉, 等. 壳聚糖硒抗ZEA对仔猪肝肾抗氧化功能、血清E2含量和肝脏3β-HSD活性的影响[J]. 中国兽医杂志, 2021, 57(6):43-52.

WANG H H, FU C N, LI Y H, et al. Anti-zearalenone effects of chitosan selenium on hepatic and renal oxidative damage,serum E2 and 3β-HSD activity in weaning gilts[J]. Chinese Journal of Veterinary Medicine, 2021, 57(6):43-52. (in Chinese)

[17]
ZHENG W, HUANG Q, PAN S, et al. Regulation of oncogenes and gap junction intercellular communication during the proliferative response of zearalenone in TM3 cells[J]. Human & Experimental Toxicology, 2017, 36(7):701-708.

[18]
ZHENG W L, WANG B J, LI X, et al. Zearalenone promotes cell proliferation or causes cell death?[J]. Toxins, 2018, 10(5):184.

DOI

[19]
SINGKONG W, RATANAPOL H, LIAMKAEW W. Zearalenone contamination in corn for human consumption in kamphaengphet,Thailand[J]. Chiang Mai Journal of Science, 2013, 40(3):534-539.

[20]
GRUBER-DORNINGER C, JENKINS T, SCHATZMAYR G. Global mycotoxin occurrence in feed:a ten-year survey[J]. Toxins, 2019, 11(7):375.

DOI

[21]
ZHAO L, ZHANG L, XU Z J, et al. Occurrence of aflatoxin B1,deoxynivalenol and zearalenone in feeds in China during 2018—2020[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):74.

DOI

[22]
李孟聪, 丁燕玲, 谭磊, 等. 2020年广东省动物饲料中4种主要霉菌毒素污染调查[J]. 畜牧与兽医, 2021, 53(5):122-126.

LI M C, DING Y L, TAN L, et al. Investigation of four mycotoxins contamination in feed in Guangdong Province in 2020[J]. Animal Husbandry & Veterinary Medicine, 2021, 53(5):122-126. (in Chinese)

[23]
王庆伟, 安纲, 王金勇, 等. 2019年中国饲料与原料霉菌毒素检测报告[J]. 饲料工业, 2020, 41(24):52-57.

WANG Q W, AN G, WANG J Y, et al. China mycotoxin survey of feed and raw material in 2019[J]. Feed Industry, 2020, 41(24):52-57. (in Chinese)

[24]
关舒. 镰孢霉菌的侵染规律、单端孢霉烯族毒素形成及调控机制[J]. 饲料工业, 2011, 32(6):44-48.

GUAN S. Fusarium infection,trichothecene mycotoxins formation and control strategy[J]. Feed Industry, 2011, 32(6):44-48. (in Chinese)

[25]
DELLAFIORA L, RUOTOLO R, PEROTTI A, et al. Molecular insights on xenoestrogenic potential of zearalenone-14-glucoside through a mixed in vitro/in silico approach[J]. Food and Chemical Toxicology, 2017,108, Part A:257-266.

[26]
TAHEUR F B, FEDHILA K, CHAIEB K, et al. Adsorption of aflatoxin B1,zearalenone and ochratoxin A by microorganisms isolated from Kefir grains[J]. International Journal of Food Microbiology, 2017, 251:1-7.

DOI

[27]
肖治军. 猪玉米赤霉烯酮中毒与繁殖障碍[J]. 中国畜牧兽医, 2005, 32(2):45-46.

XIAO Z J. Porcine zearalenone poison and reproductive disorders[J]. China Animal Husbandry & Veterinary Medicine, 2005, 32(2):45-46. (in Chinese)

[28]
YOUNG L G, PING H, KING G J. Effects of feeding zearalenone to sows on rebreeding and pregnancy[J]. Journal of Animal Science, 1990, 68(1):15-20.

PMID

[29]
周敏, 周雪梅, 杨立杰, 等. 玉米赤霉烯酮对断奶小母猪子宫形态学及热应激蛋白70分布和表达的影响[J]. 中国农业科学, 2018, 51(4):778-788.

DOI

ZHOU M, ZHOU X M, YANG L J, et al. Effects of zearalenone on expression of heat shock protein 70 and morphology of uterus tissues of post-weaning piglets[J]. Scientia Agricultura Sinica, 2018, 51(4):778-788. (in Chinese)

DOI

[30]
凌阿茹, 郭晋丽, 郭文博, 等. 玉米赤霉烯酮对蛋鸡生产性能、血液指标和生殖激素水平的影响[J]. 上海农业学报, 2019, 35(4):100-106.

LING A R, GUO J L, GUO W B, et al. Effects of zearalenone on laying performance,hematological indices and reproductive hormone levels in laying hens[J]. Acta Agriculturae Shanghai, 2019, 35(4):100-106. (in Chinese)

[31]
DÄNICKE S, BRÜSSOW K P, GOYARTS T, et al. On the transfer of the Fusarium toxins deoxynivalenol (DON) and zearalenone (ZON) from the sow to the full-term piglet during the last third of gestation[J]. Food and Chemical Toxicology, 2007, 45(9):1565-1574.

DOI

[32]
易江南, 陈汉明, 刘冰贤, 等. 玉米赤霉烯酮诱导睾丸细胞线粒体路径的凋亡损伤小鼠生殖能力[J]. 中国兽医学报, 2021, 41(12):2461-2467.

YI J N, CHEN H M, LIU B X, et al. Zearalenone impairs the reproductive ability of mice by inducing mitochondrial pathway apoptosis of testicular cell[J]. Chinese Journal of Veterinary Science, 2021, 41(12):2461-2467. (in Chinese)

[33]
ZHOU Y W, ZHANG D, SUN D H, et al. Zearalenone affects reproductive functions of male offspring via transgenerational cytotoxicity on spermatogonia in mouse[J]. Comparative Biochemistry and Physiology Part C:Toxicology & Pharmacology, 2020, 234:108766.

DOI

[34]
BOEIRA S P, FUNCK V R, BORGES FILHO C, et al. Lycopene protects against acute zearalenone-induced oxidative,endocrine,inflammatory and reproductive damages in male mice[J]. Chemico-Biological Interactions, 2015, 230:50-57.

DOI

[35]
ADIBNIA E, RAZI M, MALEKINEJAD H. Zearalenone and 17 β-estradiol induced damages in male rats reproduction potential;evidence for ERα and ERβ receptors expression and steroidogenesis[J]. Toxicon, 2016, 120:133-146.

DOI

[36]
GAO X, XIAO Z H, LI C, et al. Prenatal exposure to zearalenone disrupts reproductive potential and development via hormone-related genes in male rats[J]. Food and Chemical Toxicology, 2018,116, Part B:11-19.

[37]
YAN R, WANG H L, ZHU J N, et al. Procyanidins inhibit zearalenone-induced apoptosis and oxidative stress of porcine testis cells through activation of Nrf2 signaling pathway[J]. Food and Chemical Toxicology, 2022, 165:113061.

DOI

[38]
苏晓彤, 李慧贤, 胡康瑶, 等. 玉米赤霉烯酮对湖羊睾丸间质细胞毒性及m6A甲基化修饰相关基因表达的影响[J/OL]. 南京农业大学学报:1-10.(2022-09-14)[2022-12-15]. http://kns.cnki.net/kcms/detail/32.1148.S.20220913.1732.002.html.

SU X T, LI H X, HU K Y, et al. Effects of zearalenone on cytotoxicity and m6A methylation related gene expression in Leydig cells of Hu sheep[J/OL]. Journal of Nanjing Agricultural University:1-10.(2022-09-14)[2022-12-15]. http://kns.cnki.net/kcms/detail/32.1148.S.20220913.1732.002.html. (in Chinese)

[39]
TSAKMAKIDIS I A, LYMBEROPOULOS A G, ALEXOPOULOS C, et al. In vitro effect of zearalenone and α-zearalenol on boar sperm characteristics and acrosome reaction[J]. Reproduction in Domestic Animals, 2006, 41(5):394-401.

DOI

[40]
COUSE J F, KORACH K S. Estrogen receptor null mice:what have we learned and where will they lead us?[J]. Endocrine Reviews, 1999, 20(3):358-417.

DOI

[41]
OLSEN M, PETTERSSON H, KIESSLING K H. Reduction of zearalenone to zearalenol in female rat liver by 3 alpha-hydroxysteroid dehydrogenase[J]. Acta Pharmacologica et Toxicologica, 1981, 48(2):157-161.

DOI PMID

[42]
FRIZZELL C, NDOSSI D, VERHAEGEN S, et al. Endocrine disrupting effects of zearalenone,alpha- and beta-zearalenol at the level of nuclear receptor binding and steroidogenesis[J]. Toxicology Letters, 2011, 206(2):210-217.

DOI

[43]
KRÓL A, POMASTOWSKI P, RAFIÑSKA K, et al. Microbiology neutralization of zearalenone using Lactococcus lactis and Bifidobacterium sp[J]. Analytical and Bioanalytical Chemistry, 2018, 410(3):943-952.

DOI

[44]
吕斌, 闻京伟, 李振国, 等. 玉米赤酶烯酮对大鼠子宫雌激素受体影响的探讨[J]. 医药论坛杂志, 2010, 31(18):37-38.

LYU B, WEN J W, LI Z G, et al. Effects of ZEA on estrogen receptor in rat uterine tissue[J]. Journal of Medical Forum, 2010, 31(18):37-38. (in Chinese)

[45]
张伟伦, 李樵锋, 罗颖, 等. 玉米赤霉烯酮对蛋鸡生产性能、卵巢组织结构及ERα表达的影响[J]. 中国家禽, 2021, 43(8):30-35.

ZHANG W L, LI Q F, LUO Y, et al. Effects of zearalenone on production performance,ovarian tissue and ERα expression in laying hens[J]. China Poultry, 2021, 43(8):30-35. (in Chinese)

[46]
YANG J Y, ZHANG Y F, WANG Y Q, et al. Toxic effects of zearalenone and alpha-zearalenol on the regulation of steroidogenesis and testosterone production in mouse Leydig cells[J]. Toxicology in Vitro, 2007, 21(4):558-565.

PMID

[47]
ANCHAN D, GAFUR A, SANO K, et al. Activation of the GPR30 receptor promotes lordosis in female mice[J]. Neuroendocrinology, 2014, 100(1):71-80.

DOI PMID

[48]
LI Y R, REN C E, ZHANG Q, et al. Expression of G protein estrogen receptor (GPER) on membrane of mouse oocytes during maturation[J]. Journal of Assisted Reproduction and Genetics, 2013, 30(2):227-232.

DOI

[49]
WEN S Y, CAO G F, BAO T Y, et al. Modulation of ovine SBD-1 expression by 17beta-estradiol in ovine oviduct epithelial cells[J]. BMC Veterinary Research, 2012, 8:143.

DOI

[50]
JACOBI J S, MARTIN C, NAVA G, et al. 17-Beta-estradiol directly regulates the expression of adrenergic receptors and kisspeptin/GPR54 system in GT1-7 GnRH neurons[J]. Neuroendocrinology, 2007, 86(4):260-269.

PMID

[51]
LUM J J, DEBERARDINIS R J, THOMPSON C B. Autophagy in metazoans:cell survival in the land of plenty[J]. Nature Reviews Molecular Cell Biolog, 2005, 6(6):439-448.

[52]
HE J, WEI C, LI Y Q, et al. Zearalenone and alpha-zearalenol inhibit the synthesis and secretion of pig follicle stimulating hormone via the non-classical estrogen membrane receptor GPR30[J]. Molecular and Cellular Endocrinology, 2018, 461:43-54.

DOI PMID

[53]
LO E K K, LEE J C Y, TURNER P C, et al. Low dose of zearalenone elevated colon cancer cell growth through G protein-coupled estrogenic receptor[J]. Scientific Reports, 2021, 11(1):7403.

DOI PMID

[54]
NAKAMURA U, KADOKAWA H. The nonsteroidal mycoestrogen zearalenone and its five metabolites suppress LH secretion from the bovine anterior pituitary cells via the estradiol receptor GPR30 in vitro[J]. Theriogenology, 2015, 84(8):1342-1349.

DOI

[55]
KWAK H J, CHOI H E, CHEON H G. 5-LO inhibition ameliorates palmitic acid-induced ER stress,oxidative stress and insulin resistance via AMPK activation in murine myotubes[J]. Scientific Reports, 2017, 7(1):5025.

DOI

[56]
TATAY E, FONT G, RUIZ M J. Cytotoxic effects of zearalenone and its metabolites and antioxidant cell defense in CHO-K1 cells[J]. Food and Chemical Toxicology, 2016, 96:43-49.

DOI PMID

[57]
PLAISANCE V, BRAJKOVIC S, TENENBAUM M, et al. Endoplasmic reticulum stress links oxidative stress to impaired pancreatic beta-cell function caused by human oxidized LDL[J]. PLoS One, 2016, 11(9):e0163046.

DOI

[58]
ZEESHAN H M A, LEE G H, KIM H R, et al. Endoplasmic reticulum stress and associated ROS[J]. International Journal of Molecular Sciences, 2016, 17(3):327.

DOI PMID

[59]
卢德勋. 论动物机体自我防御功能的系统观及其实践应用(一)[J]. 饲料工业, 2022, 43(3):1-9.

LU D X. The systemic concept on body self-defense function and its practical application[J]. Feed Industry, 2022, 43(3):1-9. (in Chinese)

[60]
卢德勋. 论动物机体自我防御功能的系统观及其实践应用(二)[J]. 饲料工业, 2022, 43(16):1-3.

LU D X. The systemic concept on body self-defense function and its practical application (2)[J]. Feed Industry, 2022, 43(16):1-3. (in Chinese)

[61]
SHI B M, SU Y, CHANG S Y, et al. Vitamin C protects piglet liver against zearalenone-induced oxidative stress by modulating expression of nuclear receptors PXR and CAR and their target genes[J]. Food & Function, 2017, 8(10):3675-3687.

[62]
QIN X S, CAO M J, LAI F N, et al. Oxidative stress induced by zearalenone in porcine granulosa cells and its rescue by curcumin in vitro[J]. PLoS One, 2015, 10(6):e0127551.

DOI

[63]
ZHU W F, GE M, LI X Y, et al. Hyperoside attenuates zearalenone-induced spleen injury by suppressing oxidative stress and inhibiting apoptosis in mice[J]. International Immunopharmacology, 2022, 102:108408.

DOI

[64]
FU Y R, JIN Y C, ZHAO Y, et al. Zearalenone induces apoptosis in bovine mammary epithelial cells by activating endoplasmic reticulum stress[J]. Journal of Dairy Science, 2019, 102(11):10543-10553.

DOI PMID

Outlines

/