RESEARCH PAPER

Effects of Plant miR156a-5p on Intestinal Microbiota and Epithelial Barrier of Wuzhishan Weaned Piglets

  • WANG Yi , 1 ,
  • SUN Ruiping 2, * ,
  • PENG Yongjia 1 ,
  • JIANG Hanchen 1 ,
  • MA Fei 1 ,
  • ZHANG Jin , 1, ** ,
  • LI Meng , 1, **
Expand
  • 1 College of Biological Chemical Sciences and Engineering, Jiaxing University, Jiaxing 314000, China
  • 2 Institute of Animal Science and Veterinary Medicine, Hainan Academy of Agricultural Science, Haikou 571100, China
** ZHANG Jin, professor, E-mail: ;
LI Meng, lecturer, E-mail:

*Contributed equally

Received date: 2022-10-26

  Online published: 2023-04-12

Abstract

This study aimed to investigate the effects of plant miR156a-5p on intestinal microbiota and epithelial barrier of Wuzhishan weaned piglets. Twelve 35-day-old Wuzhishan weaned piglets with initial body weight of (5.82±0.13) kg were randomly divided into 2 groups with 6 replicates per group and one piglet per replicate. Piglets in the control group were fed nonsense single-stranded nucleic acids, and others in experimental group were fed synthetic plant miR156a-5p (600 pmol/kg per day).The experiment lasted for 7 days. The results showed that compared with the control group, 1) the final body weight and average daily gain of experimental group were no significant difference (P>0.05), and the lung index was significantly increased (P<0.05); 2) the serum albumin and high-density lipoprotein cholesterol contents of experimental group were significantly increased (P<0.05 or P<0.01); 3) the duodenal Chao1 index and Observed_otus index of experimental group were significantly increased (P<0.05), the jejunal Simpson index was significantly decreased (P<0.05), the cecal Shanon index and Simpson index were significantly increased (P<0.05 or P<0.01), and the colonic Simpson index was significantly increased (P<0.05); 4) the enrichment of Bacteroidales, Bacteroidia, and Bacteroides in duodenum of experimental group were significantly increased (P<0.05), and the enrichment of Leptotrichia, Oscillibacter, UCG-010, Helicobacter, Desulfovibrio, Clostridia_vadinBB60_group, Parasutterella and Rikenella in duodenum were significantly increased (P<0.05); 5) the duodenal crypt depth and pH of experimental group were significantly increased (P<0.01); 6) the mRNA relative expression levels of apolipoprotein A1 (APOA1) and tail-type homology cassette transcription factor 2 (CDX2) in duodenum of experimental group were significantly increased (P<0.01), and the mRNA relative expression levels of mucin 2 (MUC2), tumor necrosis factor-α (TNF-α) and β defensin 1 (DEFB1) in duodenum were significantly increased (P<0.05). In conclusion, plant miR156a-5p can regulate the α variety of microbiota in duodenum, jejunum, caecum and colon of Wuzhishan weaned piglets, it can also increase the pH and the enrichment of Bacteroidales, Bacteroidia and Bacteroides in duodenum, as well as duodenal epithelial differentiation, chemical and mucosal immune barrier functions.

Cite this article

WANG Yi , SUN Ruiping , PENG Yongjia , JIANG Hanchen , MA Fei , ZHANG Jin , LI Meng . Effects of Plant miR156a-5p on Intestinal Microbiota and Epithelial Barrier of Wuzhishan Weaned Piglets[J]. Chinese Journal of Animal Nutrition, 2023 , 35(4) : 2184 -2195 . DOI: 10.12418/CJAN2023.206

肠道是动物抵抗外界病原菌发挥屏障功能的重要组织,是维持仔猪健康生长的前提。其中,肠道上皮黏膜和菌群发挥关键的作用。早期断奶仔猪肠道尚未发育完全,饲料形态的改变易造成黏膜形态结构改变、肠上皮屏障受损及肠道菌群紊乱等,导致仔猪生长受阻以及存活率下降[1]。因此,保证肠道健康是保障仔猪生长、提高仔猪存活率和提升生产水平的关键。miRNA是约含22个核苷酸(nt)的单链非编码小RNA,可在动物、植物和微生物等体内中转录形成,通过与翻译蛋白质的mRNA互补配对,改变mRNA稳定性或抑制翻译进而调节生物机体生理活动[1]。近年来的研究表明,miRNA的调节作用不仅局限于自身物种内[2],还在物种间如植物向动物[3]、植物向微生物[4-5]、动物向微生物[6]、植物向寄生植物、细菌向真菌传递[8],发挥调控功能。研究表明,外源miRNA可以参与肠道健康的调节,这些miRNA可被肠道微生物吸收,调节肠道菌群[5-6],或被肠道干细胞和巨噬细胞吸收促进抗炎因子的分泌[9]。我们先前的研究在小鼠活体和细胞水平上也发现植物源miRNA可抑制肠道上皮细胞增殖[10-11]。植物源miRNA作为一种新型的跨界功能成分,对肠道功能影响的研究可为植物源miRNA参与调控断奶仔猪健康提供试验依据。因此,本研究以断奶五指山仔猪为模型,探讨植物源miR156a-5p对断奶仔猪肠道菌群及黏膜屏障的影响,为植物源miRNA在仔猪生产中的研究和应用提供参考。

1 材料与方法

1.1 试验设计与饲料

选取初始体重为(5.82±0.13) kg的35日龄五指山断奶仔猪12头,随机分为2组,每组6个重复(公母各占1/2),每个重复1头。对照组(CON group)饲喂无意义单链核酸,试验组(EXP组)饲喂合成的植物源miR156a-5p。参考先前的研究中玉米miR156a-5p的含量和植物源miRNA进入细胞的有效浓度[3,12],于每天08:00将无意义单链核酸和植物源miR156a-5p分别按照600 pmol/kg的浓度溶于5 mL磷酸盐缓冲液(PBS),并喷洒于20 g饲料中混匀捏成团进行饲喂,连续饲喂7 d。饲粮采用定量饲喂,每头仔猪150 g/d,分别于每天08:00、13:00和18:00饲喂各50 g,自由饮水。基础饲粮组成及营养水平见表1。试验于海南省农业科学院畜牧研究所试验场进行。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米Maize 54.60
豆粕Soybean meal (CP 46%) 6.90
膨化大豆Expanded soybean 14.00
发酵豆粕Fermented soybean meal 4.00
项目Items 含量Content
低蛋白乳清粉Low protein whey powder 7.50
豆油Soybean oil 1.00
预混料Premix1) 12.00
合计Total 100.00
营养水平Nutrient levels2)
粗蛋白质CP 19.56
中性洗涤纤维NDF 7.18
粗灰分Ash 5.72
粗脂肪EE 6.99
钙Ca 0.79
可消化磷DP 0.44
可消化赖氨酸DLys 1.28
净能NE/(MJ/kg) 10.95

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 140 000 IU,VD3 40 000 IU,VE 210 mg,VK3 24 mg,VB2 40 mg,Cu 1 g,Fe 3 g,Zn 15 g,Mn 1.2 g,Se 3 mg,I 18 mg。

2)营养水平为计算值。Nutrient levels were calculated values.

1.2 测定指标及方法

1.2.1 生长性能测定

试验期间记录断奶仔猪初始体重和终末体重(08:00,禁食12 h使空腹),计算平均日增重。

1.2.2 器官指数测定

断奶仔猪经颈动脉放血处死后,开腹并游离获取完整的心脏、肝脏、脾脏、肺脏和肾脏组织,分别进行称重,计算器官指数,计算公式如下:
器官指数(%)=(器官重/体重)×100。

1.2.3 血清生化指标测定

经颈动脉采集全血,室温倾斜静止1 h,室温条件下3 500 r/min离心10 min获取血清。用AU5800全自动生化分析仪(美国贝克曼库尔特有限公司)和试剂盒(中生北控生物科技股份有限公司)测定血清总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、总胆固醇(TC)、甘油三酯(TG)、高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)含量及谷丙转氨酶(ALT)、谷草转氨酶(AST)活性。

1.2.4 胃肠消化道pH的测定

仔猪处死后迅速打开腹腔,游离胃肠道,对胃、十二指肠、空肠、回肠、盲肠和结肠进行分区无菌结扎,分别收集内容物至于烧杯中混匀,吸取少量上清液,使用pH计(SD20,瑞士梅特勒托利多公司)测定pH。

1.2.5 肠道微生物16S rDNA测序

采用溴化十六烷基三甲铵/十二烷基硫酸钠(CTAB/SDS)方法提取各段肠道内容物菌群基因组DNA,用2%琼脂糖凝胶电泳检测DNA纯度和浓度,无菌水稀释样品至1 ng/μL,将样本送至北京诺禾致源科技有限公司对16S rDNA进行V3~V4区测序分析。

1.2.6 生物信息学分析

根据特异barcode标签将测序得到的原始数据(raw data)进行拆分后,剪切barcode和引物序列,随后利用FLASH软件(V1.2.11, http://ccb.jhu.edu/software/FLASH/)进行拼接、过滤,得到有效数据(clean data);基于有效数据通过DADA2进行降噪,并过滤掉丰度小于5的序列,最终获得扩增子序列变异(amplicon sequence variant,ASV)以及特征表。随后,使用QIIME2软件(2019.1版)中的classify-sklearn模块将得到的ASV与数据库比对从而得到每个ASV的物种信息。选用t检验(t test)和线性判别分析效应(LEfSe)统计分析方法对对照组和试验组的物种组成和群落结构进行差异显著性检验。使用α多样性指数分别从物种丰富度(Chao1指数、Observed_otus指数)、均匀性(Shannon指数)和多样性(Simpson指数)进行评价,并采用t检验评估组间各指数差异。β多样性分析比较组间微生物群落构成,基于ASV水平的主成分分析(PCA)、基于Unweighted unifrac距离的主坐标分析(PCoA)显示样本间的差异。采用LEfSe统计分析各组生物标志物物种,用线性判别分析(LDA)得分表示差异物种影响的大小,LDA得分≥4为差异显著。

1.2.7 苏木精-伊红(HE)染色

分别取近端十二指肠、中段空肠和远端回肠肠段约1.5 cm组织样品,置于4%多聚甲醛,室温固定过夜,预处理后进行石蜡包埋,将石蜡切成厚度为6 mm的水平切片,进行HE染色。对切片进全景拍照扫描(3DHISTECH,CaseViewer2.2,匈牙利),于30倍下获取图片(标尺500 μm),利用Media Cybemetics(Image-Pro Plus 6.0,美国)测定肠道绒毛高度和隐窝深度。

1.2.8 实时荧光定量PCR(qRT-PCR)检测

用磷酸盐缓冲液冲洗肠腔后,用玻片轻轻刮取十二指肠内壁黏膜样品分装于1.5 mL冻存管中,液氮速冻,-80 ℃冷冻保存。利用TRIzol(TaKaRa,日本)裂解法提取总RNA。使用HiFiScript gDNA Removal cDNA Synthesis Kit(北京康为世纪生物科技有限公司)反转录试剂盒进行反转录,采用qRT-PCR方法(实时荧光定量PCR仪,Quantstudio3,美国Thermo公司)检测尾型同源盒基因2(CDX2)、载脂蛋白A1(APOA1)、黏糖蛋白2(MUC2)、肿瘤坏死因子-α(TNF-α)、β防御素1(DEFB1)和甘油醛-3-磷酸脱氢酶(GAPDH)mRNA表达量,反应程序为:95 ℃ 2 min预变性;95 ℃ 15 s变性,60 ℃ 15 s退火,72 ℃ 40 s延伸,反应40个循环;最后95 ℃ 1 min,30 s退火,95 ℃ 30 s,绘制相应的熔解曲线,反应设立无模板定量反应为阴性对照(NTC)。以GAPDH为内参基因,按照2-△△Ct法计算各目的基因mRNA相对表达量,引物序列见表2
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
产物片段
Product size/bp
基因编号
Gene ID
甘油醛-3-磷酸脱氢酶
GAPDH
F:AGGTCGGAGTGAACGGATTTG
R:ACCATGTAGTGGAGGTCAATGAAG
118 ENSSSCG00000000694
β防御素1
DEFB1
F:CGCCTCCTCCTTGTATTCCT
R:ATCTTTGGAGCACACTTGCC
128 ENSSSCG00000027555
载脂蛋白A1
APOA1
F:GAGTTCTGGGACAACCTGGA
R:CGGTACGTCTCCATCTCCTC
140 ENSSSCG00000030921
黏糖蛋白2
MUC2
F:AGGACAAACACCGAACGGT
R:CAGATGACGATGACGCCAA
182 ENSSSCG00000037900
基因
Genes
引物序列
Primer sequence (5'—3')
产物片段
Product size/bp
基因编号
Gene ID
肿瘤坏死因子-α
TNF-α
F:TACCTGAACCAGAGCCAAGG
R:GCAGGGTGGGATCAGGTTAT
72 ENSSSCG00000001404
尾型同源盒基因2
CDX2
F:TCTCCGAGAGGCAGGTTAAAAT
R:ACACTCCCTCACACCAAACA
116 ENSSSCG00000009317

1.3 统计分析

试验数据使用SPSS 26软件进行统计分析,组间比较采用独立样本t检验进行统计分析,结果以平均值±标准误差表示。使用GraphPad 8.0制图,以P<0.05为差异显著标准,P<0.01为差异极显著标准,以0.05<P<0.10为趋势标准。

2 结果与分析

2.1 植物源miR156a-5p对断奶仔猪生长性能、器官指数和血清生化指标的影响

表3可知,与对照组相比,试验组的终末体重和平均日增重均无显著差异(P>0.05)。与对照组相比,试验组的肺脏指数显著提高(P<0.05),其他器官指数无显著差异(P>0.05)。
表3 植物源miR156a-5p对断奶仔猪生长性能和器官指数的影响

Table 3 Effects of plant miR156a-5p on growth performance and organ indexes of weaned piglets

项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
生长性能Growth performance
终末体重Final body weight/g 5.965 5.795 0.18 0.39
平均日增重Average daily gain/(g/d) 0.05 0.03 0.01 0.24
平均日采食量Average daily feed intake/(g/d) 150 150
器官指数Organ indexes/%
心脏Heart 32.60 32.43 1.10 0.88
肝脏Liver 117.4 121.8 4.22 0.34
脾脏Spleen 13.50 16.20 2.28 0.27
肺脏Lung 54.17 62.90 2.80 0.03
肾脏Kidney 37.45 37.60 1.92 0.94
表4可知,与对照组相比,试验组的血清白蛋白含量显著提高(P<0.05),血清高密度脂蛋白胆固醇含量极显著提高(P<0.01),血清总胆固醇含量有增加趋势(P=0.08),其他血清生化指标均无显著差异(P>0.05)。
表4 植物源miR156a-5p对断奶仔猪血清生化指标的影响

Table 4 Effects of plant miR156a-5p on serum biochemical indexes of weaned piglets

项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
生化指标Biochemical indexes
总蛋白TP/(g/L) 65.12 65.35 1.31 0.87
项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
白蛋白ALB/(g/L) 32.10 33.97 0.54 0.03
球蛋白GLB/(g/L) 33.05 33.70 0.66 0.37
白蛋白/球蛋白ALB/GLB 0.97 1.08 0.08 0.18
丙氨酸氨基转移酶ALT/(U/L) 60.50 68.50 8.11 0.36
尿素Urea/(mmol/L) 2.25 1.92 0.23 0.19
脂质代谢指标Lipid metabolism indexes
总胆固醇TC/(mmol/L) 2.14 2.47 0.16 0.08
甘油三酯TG/(mmol/L) 0.43 0.43 0.05 0.94
高密度脂蛋白胆固醇HDL-C/(mmol/L) 0.64 0.76 0.03 <0.01
低密度脂蛋白胆固醇LDL-C/(mmol/L) 1.21 1.38 0.15 0.29
免疫指标Immune indexes
补体3 C3/(g/L) 0.04 0.04 0.01 0.65
补体4 C4/(g/L) 0.08 0.10 0.01 0.17
免疫球蛋白A IgA/(g/L) 0.01 0.01 0.00
免疫球蛋白G IgG/(g/L) 0.01 0.01 0.00
免疫球蛋白M IgM/(g/L) 0.01 0.01 0.00

2.2 植物源miR156a-5p对断奶仔猪肠道菌群的影响

经16S rDNA测序得断奶仔猪十二指肠、空肠、回肠、盲肠和结肠菌群平均有效序列数为77 420条,聚类生成43 489个ASV。共检测到40个门、92个纲、223个目、387个科、924个属和1 455个种。由表5表6可知,与对照组相比,试验组十二指肠Chao1指数和Observed_otus指数显著提高(P<0.05),空肠Simpson指数显著降低(P<0.05),盲肠Shanon指数和Simpson指数显著或极显著提高(P<0.05或P<0.01),结肠Simpson指数显著提高(P<0.05)。
表5 植物源miR156a-5p对断奶仔猪小肠菌群α多样性指数的影响

Table 5 Effects of plant miR156a-5p on α diversity indexes of small intestinal microbiota of weaned piglets

项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
十二指肠Duodenum
Chao1指数Chao1 index 560.55 652.45 45.95 0.04
Observed_otus指数Observed_otus index 547.50 637.50 45.00 0.04
Shannon指数Shannon index 5.73 6.26 0.27 0.31
Simpson指数Simpson index 0.95 0.96 0.01 0.70
空肠Jejunum
Chao1指数Chao1 index 652.97 652.98 0.00 1.00
Observed_otus指数Observed_otus index 645.25 603.25 21.00 0.48
Shannon指数Shannon index 6.54 5.88 0.33 0.20
Simpson指数Simpson index 0.97 0.92 0.03 0.04
回肠Ileum
Chao1指数Chao1 index 665.55 631.25 17.15 0.57
Observed_otus指数Observed_otus index 650.75 617.75 16.50 0.57
Shannon指数Shannon index 5.96 5.34 0.31 0.42
Simpson指数Simpson index 0.96 0.90 0.03 0.17
表6 植物源miR156a-5p对断奶仔猪大肠菌群α多样性指数的影响

Table 6 Effects of plant miR156a-5p on α diversity indexes of large intestinal microbiota of weaned piglets

项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
盲肠Cecum
Chao1指数Chao1 index 937.37 868.51 34.43 0.29
项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
Observed_otus指数Observed_otus index 889.50 856.00 16.75 0.54
Shannon指数Shannon index 7.46 7.79 0.17 0.03
Simpson指数Simpson index 0.98 0.99 0.01 <0.01
结肠Colon
Chao1指数Chao1 index 906.72 867.99 0.43 0.43
Observed_otus指数Observed_otus index 901.00 855.50 0.36 0.36
Shannon指数Shannon index 7.43 7.86 0.12 0.12
Simpson指数Simpson index 0.98 0.99 0.02 0.02
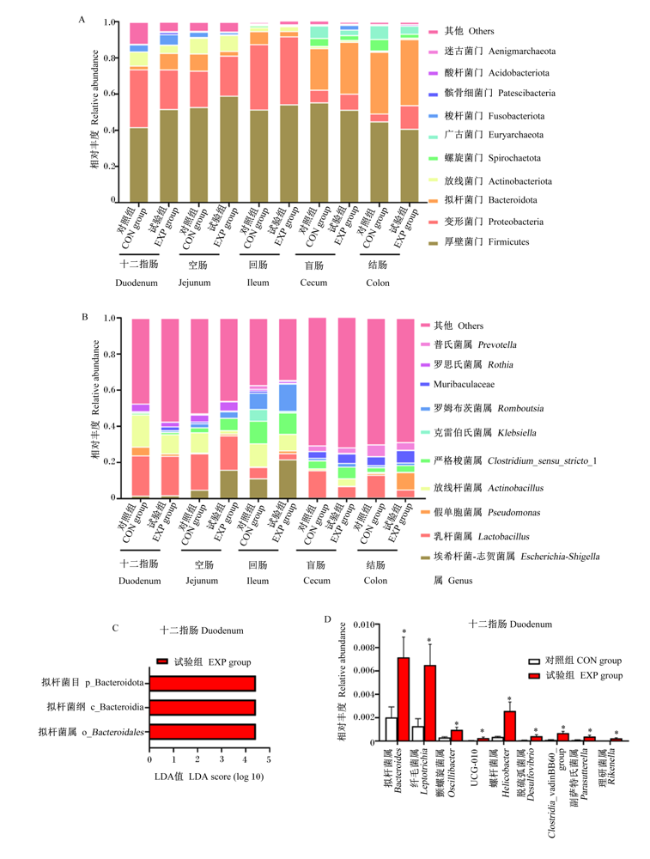
Top10门水平菌群组成分析结果显示,对照组和试验组十二指肠、空肠和回肠均主要由厚壁菌门(Firmicutes)和变形菌门(Proteobacteria)组成,盲肠和结肠菌群主要由Firmicutes和拟杆菌门(Bacteroidota)组成(图1-A),共占比70%以上;与对照组相比,试验组十二指肠和空肠Firmicutes的相对丰度增加(41.72% vs 51.75%;52.80% vs 59.09%),十二指肠Proteobacteriade的相对丰度降低(31.94% vs 21.86%)(图1-A)。Top10属水平菌群组成分析结果显示,对照组和试验组十二指肠优势菌群均为乳杆菌属(Lactobacillus)(22.28%和21.85%)和放线杆菌属(Actinobacillus)(17.81%和10.64%);对照组空肠优势菌属为Lactobacillus(20.19%)和Actinobacillus(11.24%),试验组空肠优势菌属为埃希杆菌-志贺菌属(Escherichia-Shigella)(16.01%)和Actinobacillus(18.97%);对照组回肠优势菌属为Escherichia-Shigella(11.24%)、Actinobacillus(12.78%)和严格梭菌属(Clostridium_sensu_stricto_1)(12.51%),试验组回肠优势菌属为Escherichia-Shigella(21.72%)、罗姆布茨菌属(Romboutsia)(15.10%)和Clostridium_sensu_stricto_1(11.89%);对照组盲肠和结肠优势菌属为Lactobacillus(15.20%和12.58%),试验组盲肠优势菌属为Lactobacillus(6.37%)和Clostridium_sensu_stricto_1(6.45%),试验组结肠优势菌属为为假单胞菌属(Pseudomonas)(9.59%)和Muribaculaceae(6.81%)(图1-B)。
图1 植物源miR156a-5p对断奶仔猪肠道菌群物种的影响

*:差异显著(P<0.05);**:差异显著极(P<0.01);n=6。下图同。

Fig.1 Effects of plant miR156a-5p on intestinal microbial species of weaned piglets

*: significant difference (P<0.05); **: significant difference (P<0.01); n=6. The same as below.

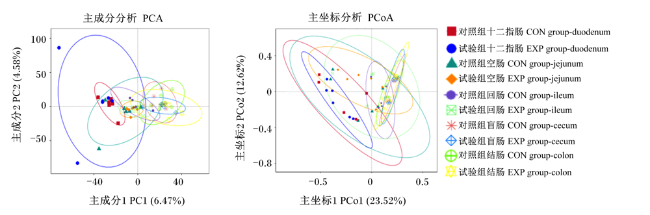
LEfSe分析发现,与对照组相比,试验组十二指肠拟杆菌目(Bacteroidales)、拟杆菌纲(Bacteroidia)和拟杆菌属(Bacteroides)的富集显著增加(P<0.05)(图1-C)。进行t检验分析发现,与对照组相比,试验组十二指肠Bacteroides、纤毛菌属(Leptotrichia)、颤螺旋菌属(Oscillibacter)、UCG-010、螺杆菌属(Helicobacter)、脱硫弧菌属(Desulfovibrio)、Clostridia_vadinBB60_group、副萨特氏菌属(Parasutterella)和理研菌属(Rikenella)等的富集显著增加(P<0.05)(图1-D)。基于ASV水平的PCA和基于Unweighted unifrac距离的PCoA显示植物源miR156a-5p对各肠道菌群β多样性无显著影响(P>0.05)(图2)。
图2 植物源miR156a-5p对断奶仔猪肠道菌群β多样性的影响

Fig.2 Effects of plant miR156a-5p on intestinal microbiota β diversity of weaned piglets

2.3 植物源miR156a-5p对断奶仔猪肠道pH和肠道形态的影响

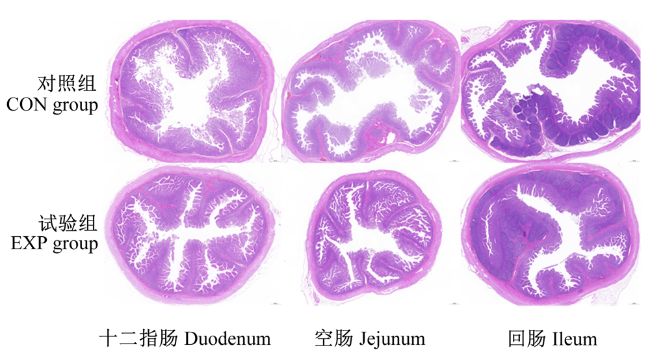
表7可知,与对照组相比,试验组的十二指肠pH极显著提高(P<0.01)。由图3可知,组织切片显示对照组肠道绒毛断裂、稀疏,而试验组肠道绒毛更纤长排列紧密且整齐。由表8可知,与对照组相比,试验组的十二指肠隐窝深度极显著提高(P<0.01)。
表7 植物源miR156a-5p对断奶仔猪肠道pH值的影响

Table 7 Effects of plant miR156a-5p on intestinal pH of weaned piglets

项目Items 对照组CON group 试验组EXP group SEM PP-value
胃Stomach 4.76 4.19 0.57 0.36
十二指肠Duodenum 5.48 6.57 0.19 <0.01
空肠Jejunum 6.67 6.73 0.10 0.59
回肠Ileum 7.06 7.18 0.10 0.31
盲肠Cecum 6.45 6.53 0.15 0.60
结肠Colon 6.53 6.54 0.14 0.94
图3 断奶仔猪肠道形态

n=6,标尺=500 μm,3×。

Fig.3 Intestinal morphology of weaned piglets

n=6, scale bar=500 μm, 3×.

表8 植物源miR156a-5p对断奶仔猪肠道形态的影响

Table 8 Effects of plant miR156a-5p on intestinal morphology of weaned piglets

项目
Items
对照组
CON group
试验组
EXP group
SEM P
P-value
十二指肠Duodenum
绒毛高度Villi height/mm 0.32 0.39 0.04 0.18
隐窝深度Crypt depth/mm 0.11 0.14 0.00 <0.01
绒毛高度/隐窝深度Villi height/crypt depth 2.95 2.83 0.16 0.53
空肠Jejunum
绒毛高度Villi height/mm 0.30 0.34 0.02 0.17
隐窝深度Crypt depth/mm 0.11 0.12 0.00 0.79
绒毛高度/隐窝深度Villi height/crypt depth 2.81 2.79 0.29 0.96
回肠Ileum
绒毛高度Villi height/mm 0.29 0.26 0.03 0.44
隐窝深度Crypt depth/mm 0.13 0.12 0.01 0.37
绒毛高度/隐窝深度Villi height/crypt depth 2.24 2.45 0.23 0.40

2.4 植物源miR156a-5p对断奶仔猪十二指肠黏膜屏障相关基因表达的影响

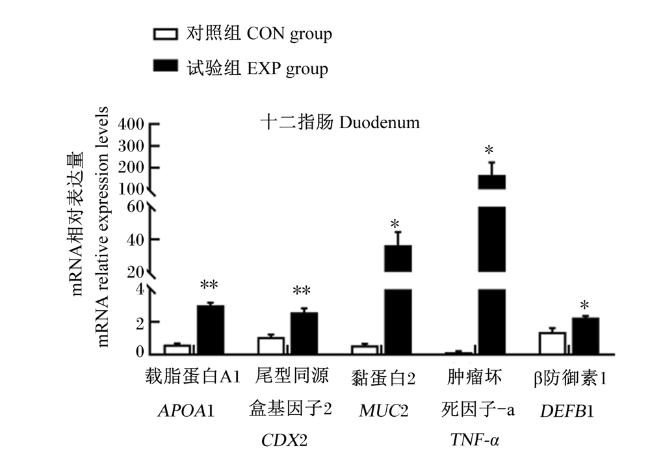
图4可知,与对照组相比,试验组的十二指肠APOA1和CDX2 mRNA相对表达量极显著上调(P<0.01),十二指肠MUC2、TNF-αDEFB1 mRNA相对表达量显著上调(P<0.05)。
图4 植物源miR156a-5p对断奶仔猪十二指肠黏膜屏障相关基因表达的影响

Fig.4 Effects of plant miR156a-5p on expression of duodenal mucosal barrier-related genes of weaned piglets

3 讨论

植物是饲料的重要成分,可为畜禽提供能量和营养,植物中的miRNA也可能进入机体发挥调节功能。一系列研究报道表明,植物源miRNA可以通过胃SID-1跨膜蛋白(SID1 transmembrane protein 1,SIDT1)进入胃细胞,并包裹于外泌体通过血液循环进入机体各个靶器官并发挥调控功能[3,13-14]
大米miR168a可进入小鼠的肝脏抑制低密度脂蛋白受体连接蛋白1(low density lipoprotein receptor adaptor protein 1,LDLRAP1)的表达,从而抑制肝脏对血液低密度脂蛋白(low density lipoprotein,LDL)的代谢转运[3]。我们先前的研究也证明植物源miRNA可以进入动物体内发挥调节作用。将玉米总RNA灌服小鼠可加强小鼠血脂代谢,抑制附睾脂肪沉积[15];在小鼠活体和细胞水平证明植物源miR156a-5p可被肠细胞吸收,抑制肠道上皮细胞增殖[10]。本研究给断奶仔猪持续饲喂植物源miR156a-5p发现,血清高密度脂蛋白胆固醇和白蛋白含量显著提高,总胆固醇含量有增加的趋势,提示仔猪机体代谢增加;此外,肠道菌群α多样性受到调节,十二指肠拟杆菌在纲、目和属水平的富集显著增加;同时十二指肠的pH和隐窝深度显著增加,上皮分化标志性基因APOA1和CDX2、化学屏障黏蛋白MUC2、免疫指标TNF-αDEFB1 mRNA相对表达量显著上调。这些调节作用可能通过直接作用于靶组织和基因调节基因的表达[3],或通过调节肠道菌群进而调节仔猪肠道的发育[10],还可能调节肠道菌群和肠道屏障互相制约相互影响[5],进而调节仔猪机体的代谢。
早期断奶仔猪肠道消化道发育尚未成熟,吸收营养能力弱,消化酶和胃酸分泌不足,肠道微生物系统及免疫功能发育尚未成熟。所以断奶应激容易造成早期断奶仔猪生长迟缓和抗病力弱等问题。本研究发现,饲喂植物源miR156a-5p能显著调节断奶仔猪肠道菌群物种的多样和丰富度。先前的研究已经证实外源miRNA可被肠道微生物吸收,维持肠道菌群稳态[5-6]。宿主肠道细胞的miRNA可被肠道菌群吸收,专门调节细菌基因转录和增长,维持肠道菌群的稳定,缓解结肠炎[6]。Teng等[5]在小鼠活体研究中证明,生姜等的miRNA可以通过采食被小鼠肠道微生物群吸收,改变菌群组成;其中mdo-miR7267-3p可靶向抑制鼠李糖杆菌单氧酶(ycnE),进而增加吲哚-3-羧醛(I3A)产量,诱导肠道白细胞介素-22(IL-22)表达,改善由葡聚糖硫酸钠(DSS)诱导的肠上皮损伤,缓解结肠炎。这些研究提示植物源miR156a-5p也可能进入肠道微生物中发挥调节作用。此外,植物源miR156a-5p能显著增加十二指肠拟杆菌在纲、目和属水平的富集。Bacteroides是疫系统免疫调节的关键参与者,可以刺激和维持免疫系统的稳态[16]。脆弱拟杆菌可通过抑制肠道白细胞介素-17(IL-17)的产生和增强肠道调节性T细胞(Tregs)的活性,增加抗炎因子白细胞介素-10(IL-10)以应对肠道炎症损伤[17]。不同拟杆菌分泌的代谢物,如丁酸盐增加肠道紧密连接蛋白的表达,可能降低肠道通透性[18]。拟杆菌还可以抑制有害菌的生长,预防细菌和病毒感染。在小鼠模型中,多形拟杆菌(Bacteroides thetaiotaomicron)可以刺激潘氏细胞产生抗生素蛋白等,杀死某些病原微生物(如单核细胞增生李斯特菌),防止病原体在该空间定植[19]。除了微生物屏障,包括肠道黏液糖蛋白、肠细胞间的紧密连接和防御素等在内构成的表皮屏障也起到防御作用[20]。本研究检测十二指肠黏膜相关基因发现,化学屏障黏蛋白MUC2、免疫指标TNF-αDEFB1基因的表达均显著上调,结果提示饲喂植物源miR156a-5p可能调节断奶仔猪肠道菌群,增加微生物屏障功能和十二指肠上皮防御功能。
消化道中,由于胃酸进入肠道后被肠液稀释、中和及被肠细胞吸收,导致肠道内容物pH在小肠逐渐升高;但是在微生物发酵的作用下,大肠pH又有所降低[21]。本研究得到一致的规律,各肠段pH维持在断奶仔猪的生理范围[22]。生产实际中,断奶仔猪由于饮食的结构的剧烈变化,胃内容pH会有所升高,同时会导致肠内容物pH增高,约在断奶后1周达到峰值,可达8.03[23],这不利于胃对蛋白质的消化和胃肠道菌群的稳态。本研究发现,植物源miR156a-5p在生理范围内极显著提高十二指肠pH(5.49 vs 6.58),对胃和其他肠道pH无显著影响。而断奶应激与其胃肠道菌群和pH变化规律是一致的[23]。植物源miR156a-5p可能调节十二指肠pH变化,缓解应激。
本课题组先前在细胞水平证明植物源miR156a-5p抑制猪十二指肠上皮细胞的增殖[10]。而本研究在仔猪活体水平发现,饲喂植物源miR156a-5p后十二指肠隐窝加深,但上皮化标志性基因APOA1和CDX2 mRNA相对表达量显著增加。随着对肠道上皮与肠道微生物互作的认识不断深入,发现肠道菌群与肠道细胞之间属于一个双向交流系统[24-25],即肠道上皮调节并维持肠道微生物的定殖与分布,肠道微生物也影响肠道上皮的多种屏障功能,二者通过一系列细胞分子机制紧密联系,共同维持肠道稳态。利用全胃肠外营养喂养大鼠,拟杆菌比例显著增加,同时潘氏细胞分泌的溶菌酶、α防御素5和α防御素8的表达量极显著增加,并发现两者的改变存在相关性,推测可能由于肠道微生物的变化和肠道潘氏细胞的改变产生相互作用而引起肠道稳态的改变[26]。结合本研究十二指肠菌群分析结果和前人证明的外源miRNA可进入肠道微生物发挥调节作用[6],推测植物源miR156a-5p很有可能进入微生物体内调节断奶仔猪肠道群的稳态和多样性,或与肠道上皮相互作用,共同增强肠道屏障促进肠道上皮的发育,其机制有待进一步研究。

4 结论

植物源miR156a-5p可增加断奶仔猪肠十二指肠菌群物种丰富度及盲肠和结肠菌群物种多样性,降低空肠菌群物种多样性,调节肠道菌群α多样性。植物源miR156a-5p还可增加断奶仔猪十二指肠pH及拟杆菌在纲、目和属水平的富集,可改善十二指肠上皮分化及化学屏障和黏膜免疫屏障功能。
[1]
LIM L P, LAU N C, GARRETT-ENGELE P, et al. Microarray analysis shows that some microRNAs downregulate large numbers of target mRNAs[J]. Nature, 2005, 433(7027):769-773.

DOI

[2]
KOSAKA N, IGUCHI H, YOSHIOKA Y, et al. Secretory mechanisms and intercellular transfer of microRNAs in living cells[J]. Journal of Biological Chemistry, 2010, 285(23):17442-17452.

DOI PMID

[3]
ZHANG L, HOU D X, CHEN X, et al. Exogenous plant MIR168a specifically targets mammalian LDLRAP1:evidence of cross-kingdom regulation by microRNA[J]. Cell Research, 2012, 22(1):107-126.

DOI

[4]
ZHANG T, ZHAO Y L, ZHAO J H, et al. Cotton plants export microRNAs to inhibit virulence gene expression in a fungal pathogen[J]. Nature Plants, 2016, 2(10):16153.

DOI PMID

[5]
TENG Y, REN Y, SAYED M, et al. Plant-derived exosomal microRNAs shape the gut microbiota[J]. Cell Host & Microbe, 2018, 24(5):637-652.e8.

[6]
LIU S R, DA CUNHA A P, REZENDE R M, et al. The host shapes the gut microbiota via fecal microRNA[J]. Cell Host & Microbe, 2016, 19(1):32-43.

[7]
SHAHID S, KIM G, JOHNSON N R, et al. MicroRNAs from the parasitic plant Cuscuta campestris target host messenger RNAs[J]. Nature, 2018, 553(7686):82-85.

DOI

[8]
CAI Q, QIAO L L, WANG M, et al. Plants send small RNAs in extracellular vesicles to fungal pathogen to silence virulence genes[J]. Science, 2018, 360(6393):1126-1129.

DOI PMID

[9]
MU J Y, ZHUANG X Y, WANG Q L, et al. Interspecies communication between plant and mouse gut host cells through edible plant derived exosome-like nanoparticles[J]. Molecular Nutrition & Food Research, 2014, 58(7):1561-1573.

[10]
LI M, CHEN T, WANG R, et al. Plant MIR156 regulates intestinal growth in mammals by targeting the Wnt/β-catenin pathway[J]. American Journal of Physiology.Cell Physiology, 2019, 317(3):C434-C448.

[11]
LI M, CHEN T, HE J J, et al. Plant MIR167e-5p inhibits enterocyte proliferation by targeting β-catenin[J]. Cells, 2019, 8(11):1385.

DOI

[12]
LUO Y, WANG P J, WANG X, et al. Detection of dietetically absorbed maize-derived microRNAs in pigs[J]. Scientific Reports, 2017, 7(1):645.

DOI PMID

[13]
CHEN Q, ZHANG F, DONG L, et al. SIDT1-dependent absorption in the stomach mediates host uptake of dietary and orally administered microRNAs[J]. Cell Research, 2021, 31(3):247-258.

DOI

[14]
ZHOU Z, ZHOU Y, JIANG X M, et al. Decreased HD-MIR2911 absorption in human subjects with the SIDT1 polymorphism fails to inhibit SARS-CoV-2 replication[J]. Cell Discovery, 2020, 6(1):63.

DOI PMID

[15]
黎梦, 魏立民, 陈婷, 等. 玉米RNA对小鼠脂肪沉积的影响[J]. 动物营养学报, 2021, 33(2):1091-1099.

DOI

LI M, WEI L M, CHEN T, et al. Effects of maize RNA on fat deposition of mice[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):1091-1099. (in Chinese)

[16]
ZAFAR H, SAIER M H,Jr. Gut Bacteroides species in health and disease[J]. Gut Microbes, 2021, 13(1):1-20.

[17]
ROUND J L, MAZMANIAN S K. Inducible Foxp3+ regulatory T-cell development by a commensal bacterium of the intestinal microbiota[J]. Proceedings of the National Academy of Sciences of the United States of America, 2010, 107(27):12204-12209.

[18]
王克, 郭世坤, 张鹏杰, 等. 丁酸对哺乳期大鼠肠黏膜屏障发育的作用[J]. 中华小儿外科杂志, 2019, 40(3):258-262.

WANG K, GUO S K, ZHANG P J, et al. Effects of butyric acid on development of intestinal mucosal barrier in lactating rats[J]. Chinese Journal of Pediatric Surgery, 2019, 40(3):258-262. (in Chinese)

[19]
HOOPER L V, STAPPENBECK T S, HONG C V, et al. Angiogenins:a new class of microbicidal proteins involved in innate immunity[J]. Nature Immunology, 2003, 4(3):269-273.

DOI

[20]
SALVO ROMERO E, ALONSO COTONER C, PARDO CAMACHO C, et al. The intestinal barrier function and its involvement in digestive disease[J]. Revista Espanola de Enfermedades Digestivas, 2015, 107(11):686-696.

DOI PMID

[21]
陈元明, 刘金旭. 猪消化道的酸碱度(pH)[J]. 中国畜牧杂志, 1964(10):5-6.

CHEN Y M, LIU J X. pH of pig digestive tract[J]. Chinese Journal of Animal Science, 1964(10):5-6. (in Chinese)

[22]
温晓鹿, 蒋宗勇, 高开国, 等. 饲粮纤维水平对不同断奶体重仔猪生长性能、脏器指数、肠道pH和抗氧化性能的影响[J]. 动物营养学报, 2021, 33(8):4760-4768.

DOI

WEN X L, JIANG Z Y, GAO K G, et al. Effects of dietary fiber level on growth performance,organ indexes,intestinal pH and antioxidant capacity of piglets with different weaning weights[J]. Chinese Journal of Animal Nutrition, 2021, 33(8):4760-4768. (in Chinese)

[23]
赵晓明, 李世丁, 郭凤英. 早期断奶仔猪消化道环境变化与营养调控[J]. 饲料工业, 2003, 24(4):44-46.

ZHAO X M, LI S D, GUO F Y. Alimentary tract environment change and nutrition regulation and control of weaned piglets[J]. Feed Industry, 2003, 24(4):44-46. (in Chinese)

[24]
FREITAS M, TAVAN E, CAYUELA C, et al. Host-pathogens cross-talk.Indigenous bacteria and probiotics also play the game[J]. Biology of the Cell, 2003, 95(8):503-506.

DOI

[25]
ZHU P P, LU T K, WU J Y, et al. Gut microbiota drives macrophage-dependent self-renewal of intestinal stem cells via niche enteric serotonergic neurons[J]. Cell Research, 2022, 32(6):555-569.

DOI PMID

[26]
HODIN C M, VISSCHERS R G J, RENSEN S S, et al. Total parenteral nutrition induces a shift in the Firmicutes to Bacteroidetes ratio in association with Paneth cell activation in rats[J]. The Journal of Nutrition, 2012, 142(12):2141-2147.

DOI

Outlines

/