RESEARCH PAPER

Effects of High-Concentrate Diet on Rumen Epithelium Development and Transcriptome Change of Tan Sheep

  • LI Shuanghong ,
  • ZHANG Boyan ,
  • ZHANG Han ,
  • LUO Hailing , * ,
  • WANG Bing , *
Expand
  • State Key Laboratory of Animal Nutrition, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
*LUO Hailing, professor, E-mail: ;
WANG Bing, associate professor, E-mail:

Received date: 2022-09-28

  Online published: 2023-04-12

Abstract

To explore the effects of high-concentrate dietary on the rumen epithelium development and transcriptome change of Tan sheep, 40 health Tan sheep male lambs with similar body weight were randomly divided into 2 groups (with 4 replicates per group and 5 lambs per replicate), the concentrate proportion in the high concentrate diet group (HE group) was 84%, and the concentrate proportion in the conventional forage group (HE group) was 65%. The experiment lasted for 80 days, including an adaptation period of 20 days and a formal period of 60 days. At the end of the feeding experiment, six lambs from each group were randomly selected and slaughter, the rumen tissue was taken from the ventral part of the left rumen, the rumen tissue was used for histochemical section analysis, and the rumen epithelium was used for RNA-seq. The results showed that compared with the HF group, the rumen papilla length of HE group tended to be higher (P=0.089). Twenty-six different expressed genes (DEGs) were found by RNA-seq between 2 groups, which with 3 up-regulated genes and 23 down-regulated genes. The pathways of complement and coagulation cascades, Staphylococcus aureus infection, ascorbate and aldarate metabolism were enriched by KEGG pathway analysis and gene set enrichment analysis (GSEA). The DEGs of complement factor 2 (C2), complement factor B (CFB) and complement factor l (CFI) were significantly correlated with blood interleukin-2 (IL-2), interleukin-6 (IL-6), interleukin-13 (IL-13), interleukin-17 (IL-17) and interleukin-1β (IL-1β) (P<0.05). the complement factor H (CFH) was significantly correlated with blood IL-2 (P<0.05). Among them, C2 had extreme strong negative correlation with blood IL-2, IL-17, IL-6, IL-13 and IL-1β (|r|=0.8 to 1.0); CFB had extreme strong negative correlation with blood IL-2 and IL-17 (|r|=0.8 to 1.0), and had strong negative correlation with blood IL-6, IL-13, IL-1β and transforming growth factor- β (TGF-β) (|r|=0.6 to 0.8). In conclusion, long term feeding high-concentrate diet lead to immune response and inflammation in rumen epithelium of Tan sheep by changing complement system and other immune related pathways and gene changes.

Cite this article

LI Shuanghong , ZHANG Boyan , ZHANG Han , LUO Hailing , WANG Bing . Effects of High-Concentrate Diet on Rumen Epithelium Development and Transcriptome Change of Tan Sheep[J]. Chinese Journal of Animal Nutrition, 2023 , 35(4) : 2651 -2660 . DOI: 10.12418/CJAN2023.247

我国是养羊大国,年存栏量和出栏量近些年来都维持在年均3亿只左右。与此同时,肉羊养殖模式仍较为粗放,在肉羊育肥后期,养殖户常通过提高饲粮精料比例来实现肉羊快速生长育肥。然而,精料比例或者饲粮能量水平过高极易诱发瘤胃亚急性瘤胃酸中毒(SARA)[1],造成脂多糖(LPS)、组胺和D-乳酸等异常代谢产物在瘤胃中大量积累[2],这些异常代谢产物破坏瘤胃内环境的同时还容易使瘤胃上皮屏障的功能受到损伤,更严重的情况下甚至会影响动物的生理健康及生产性能。前人研究表明,高精料饲粮会造成瘤胃紧密连接蛋白表达下调,细胞间隙变大,瘤胃屏障功能受损[3];同时,LPS通过旁细胞通路和跨细胞转运等方式易位进入血液或者瘤胃上皮,随后被免疫细胞和上皮细胞识别[4],通过LPS/Toll样受体4(TLR4)信号转导途径触发炎症反应,产生大量促炎细胞因子和炎症介质[5-6],炎症因子和炎症介质进一步破坏瘤胃上皮屏障[7]。滩羊作为我国西北地区生产优质羊肉的绵羊品种,近些年来受到越来越多消费者的喜爱。在传统滩羊养殖中,主要以放牧或放牧补饲为主,而随着滩羊需求量和规模化的提升,高精料饲粮舍饲育肥模式在滩羊中也越来越普遍。然而,高精料饲粮对滩羊瘤胃健康以及瘤胃上皮转录组影响的研究仍较为缺乏。因此,本试验以高精料饲粮饲喂育肥滩羊,研究高精料饲粮对滩羊瘤胃上皮发育及转录组变化的影响,为进一步优化滩羊精准营养和实现滩羊健康养殖提供理论依据。

1 材料与方法

1.1 试验设计和饲养管理

本研究中使用的动物经中国农业大学动物保护委员会批准。选择40只(77±5)日龄、体重[(15.3±1.92) kg]相近及健康状况良好的滩羊公羔,随机分为2组(每组4个重复,每个重复5只):高精料饲粮组(HE组,饲粮中精料比例为84%)和常规饲草组(HF组,饲粮中精料比例为65%),HF组和HE组的饲粮代谢能水平分别为9.94和10.87 MJ/kg(干物质基础)。饲粮参照NRC(2007)肉羊饲养标准设计,饲粮原料代谢水平能参考《中国肉用绵羊营养需要》,以全混合日粮(TMR)模式饲喂,饲养条件保持一致,每日07:00、17:00定时饲喂,自由采食、饮水。试验饲粮组成及营养水平见表1。试验期80 d,其中包含20 d的预试期,60 d的正试期。
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
组别Groups
HE HF
原料Ingredients
玉米Corn 59.49 28.19
小麦麸Wheat bran 20.33
豆粕Soybean meal 20.02 12.13
苜蓿干草Alfalfa hay 10.00
玉米青贮Corn silage 20.00
玉米秸秆Corn stover 16.00 5.00
碳酸氢钠NaHCO3 0.79 0.65
预混料Premix1) 3.70 3.70
合计Total 100.00 100.00
项目
Items
组别Groups
HE HF
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 10.87 9.94
粗蛋白质CP 14.48 14.50
中性洗涤纤维NDF 22.03 32.07
酸性洗涤纤维ADF 10.23 15.69
非纤维碳水化合物NFC 51.75 40.82
粗脂肪EE 5.38 4.36
粗灰分Ash 2.80 4.85
钙Ca 0.45 0.62
磷P 0.41 0.49

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 18 500 IU,VD3 5 920 IU,VE 24.05 IU,NaCl 5.55 g,Ca 7.4 g,P 0.74 g,Zn 64.75 mg,Se 0.555 mg,I 1.85 mg,Fe 74 mg,Co 0.74 mg,Mn 55.5 mg,Cu 22.2 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 样品采集

饲喂试验结束,从每组各随机选取6只羊屠宰。屠宰前进行颈静脉采血,3 000 r/min离心10 min,分离血清并收集保存。屠宰后收集瘤胃组织,所有取得的样品保存在液氮中用于后续试验,部分瘤胃组织用10%中性福尔马林固定,石蜡包埋,切片,用苏木精-伊红染色,并用40×光学显微镜观察,每个样本随机选取2张照片,用于测量瘤胃乳头长度和厚度。

1.3 血清参数检测

血清白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-13(IL-13)、白细胞介素-17(IL-17)、转化生长因子-β(TGF-β)和LPS含量由商品化试剂盒(南京建成生物工程研究所)检测。

1.4 转录组测序(RNA-seq)

使用试剂盒提取瘤胃组织总RNA。随后分别使用琼脂糖凝胶电泳、Nanodrop微量分光光度计、Qubit 2.0 Fluorometer、Agiflent-2100检测RNA完整性、浓度及纯度。所有样品RNA提取并检测合格后由广州基迪奥生物科技有限公司Illumina HiSeq-2500高通量测序平台进行RNA-seq。
建立参考基因组索引,使用HISAT2.2.4将双端测序reads与绵羊参考基因组(Oar_rambouillet_v1.0)比对。利用StringTie软件计算每个转录区域每千碱基转录片段每百万读取值,以量化其表达丰富度和表达变异。采用DESeq2软件进行组间RNA差异表达分析。采用差异表达倍数(fold change,FC)以及错误发现率(false discovery rate,FDR)对组间基因表达差异的程度进行筛选,FDR<0.05且|log2FC|≥1定义为差异表达基因(differentially expressed genes,DEGs)。随后进一步结合KEGG数据库对筛选出的DEGs进行功能注释及KEGG通路分析,以P<0.05作为相关基因富集到的差异生物学通路筛选条件。

1.5 实时荧光定量PCR(RT-qPCR)

为验证RNA-seq结果,从最显著的补体级联通路中挑选出补体因子2(C2)、补体因子B(CFB)2个DEGs,使用Oligo 7软件计扩增引物,引物序列及参数见表2。反应体系20 μL:10 μL 2×SYBR qPCR Mix,8.2 μL ddH2O,上、下游引物各0.4 μL,cDNA 1 μL。反应条件:95 ℃预变性2 min,95 ℃变性15 s,60 ℃延伸30 s,共40个循环;以β-肌动蛋白(β-actin)为内参,并采用2-ΔΔCt法计算不同组中基因的mRNA相对表达量。
表2 引物序列及参数

Table 2 Primer sequences and parameters

基因Genes 基因ID Gene ID 引物序列Primer sequences (5'—3')
补体因子2
C2
ncbi_101115321 F: CGTCACTATTAAGCCCAAGAGC
R: ATGTCATCGCCATAGAACTCCG
补体因子B
CFB
ncbi_101115072 F: CTTGATGAAAGCCGGACACT
R: ACAGCTCTCATGCCCCTT
β-肌动蛋白
β-actin
ncbi_443052 F: TCAGCAAGCAGGAGTACGAC
R: ACGAGGCCAATCTCATCTCG

1.6 数据统计与分析

HE组和HF组之间瘤胃乳头长度和厚度、DEGs mRNA相对表达量均使用SPSS 19.0软件采用t检验进行评估,P<0.05时表示显著差异,0.05≤P<0.10时表示有趋势。计算斯皮尔曼相关系数(R),P<0.01时表示统计学差异。炎症因子与DEGs相关性分析使用Person分析,相关系数(r)为正表示正相关,为负表示负相关。常用的相关性强弱判断标准(绝对值范围):极强相关(|r|=0.8~1.0),强相关(|r|=0.6~0.8),中等程度相关(|r|=0.4~0.6),弱相关(|r|=0.2~0.4),极弱相关或无相关(|r|=0~0.2)。利用Cytoscape v3.8.0软件来进行关联网络图绘制,RT-qPCR结果使用Excel统计后利用GraphPad prism 8.0绘制。

2 结果与分析

2.1 高精料饲粮对瘤胃乳头形态的影响

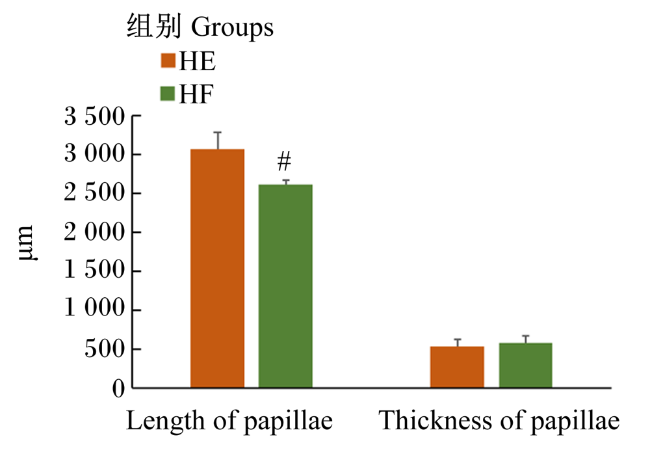
图1可知,HE组绵羊的瘤胃乳头长度相比于HF组具有增长的趋势(P=0.089),HE组绵羊的瘤胃乳头厚度相比于HF组有降低的趋势(P=0.085)。
图1 瘤胃乳头形态学评价

Length of papillae:乳头长度;Thickness of papillae:乳头厚度。

Fig.1 Morphological evaluation of rumen papillae

2.2 高精料饲粮对瘤胃上皮基因表达的影响

表3所示,通过HE组和HF组对比,总共有26个DEGs被鉴定出来(FDR<0.05),其中包含3个上调基因,23个下调基因。
表3 HE组和HF组之间的DEGs

Table 3 DEGs between HE group and HF group

基因ID
Gene ID
基因名
Gene names
P
P-value
错误发现率
FDR
HE组/HF组
HE group/HF group
ncbi_101119307 补体因子l CFl 3.32E-08 <0.01 下调
ncbi_101115072 补体因子B CFB 1.64E-07 <0.01 下调
ncbi_443407 丝氨酸蛋白酶抑制剂C1 SERPINC1 1.81E-06 0.01 下调
ncbi_101117258 丝氨酸蛋白酶抑制剂F2 SERPINF2 3.25E-06 0.01 下调
ncbi_101108999 脂肪酸结合蛋白1 FABP1 3.38E-06 0.01 下调
ncbi_101107762 甲硫氨酸腺苷转移酶1A MAT1A 5.31E-06 0.02 下调
ncbi_101107590 载脂蛋白B APOB 5.75E-06 0.02 下调
ncbi_101119440 血管紧张素原AGT 7.37E-06 0.02 下调
ncbi_443389 甲状腺素运载蛋白TTR 7.47E-06 0.02 下调
ncbi_101113499 还原型辅酶Ⅱ氧化酶5 NOX5 8.29E-06 0.02 上调
ncbi_101119842 2A1样磺基转移酶SULT2A1 9.21E-06 0.02 下调
ncbi_100037690 磷酸烯醇丙酮酸羧激酶1 PCK1 1.49E-05 0.02 下调
ncbi_443043 表面活性蛋白B SFTPB 1.71E-05 0.02 上调
ncbi_101110405 苯丙氨酸羟化酶PAH 1.93E-05 0.03 下调
ncbi_100171395 钙调素RGN 2.30E-05 0.03 下调
ncbi_114117340 补体因子H CFH 2.43E-05 0.03 下调
ncbi_100568285 细胞色素P450 2E1 CYP2E1 2.50E-05 0.03 下调
ncbi_101106395 L-古洛糖酸内酯氧化酶GULO 2.91E-05 0.03 下调
ncbi_443053 血浆铜蓝蛋白CP 2.96E-05 0.03 下调
ncbi_101105089 黄素单氧化酶1 FMO1 3.07E-05 0.03 下调
ncbi_101105682 羧酸酯酶3 CES3 3.66E-05 0.03 下调
ncbi_101115321 补体因子2 C2 4.37E-05 0.04 下调
MSTRG.20988 pol 4.81E-05 0.04 上调
ncbi_443440 果糖二磷酸醛缩酶B ALDOB 6.24E-05 0.05 下调
ncbi_443510 分泌型磷蛋白2 SPP2 6.56E-05 0.05 下调
MSTRG.21228 6.59E-05 0.05 下调

2.3 高精料饲粮差异的通路分析

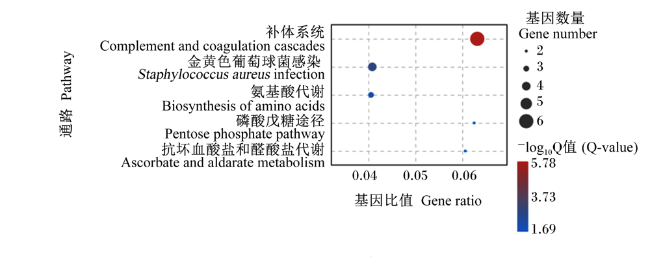
图2表4所示,通过KEGG富集分析处理发现,DEGs富集于补体系统、金黄色葡萄球菌感染、氨基酸生物合成、磷酸戊糖途径、抗坏血酸盐和醛酸盐代谢这5条通路(P<0.01)。
图2 KEGG富集通路

Fig.2 KEGG enriched pathway

表4 HE组和HF组DEGs的KEGG富集通路

Table 4 DEGs of KEGG enriched pathway between HE group and HF group

KEGG通路
KEGG pathway
KEGG class B
KEGG B类
P
P-value
错误发现率
FDR
补体系统Complement and coagulation cascades 免疫系统Immune system <0.01 <0.01
金黄色葡萄球菌感染Staphylococcus aureus infection 疾病感染Infectious diseases <0.01 <0.01
氨基酸生物合成Biosynthesis of amino acids 全局与概述Global and overview maps <0.01 <0.01
磷酸戊糖途径Pentose phosphate pathway 碳水化合物代谢Carbohydrate metabolism <0.01 0.02
抗坏血酸盐和醛酸盐代谢
Ascorbate and aldarate metabolism
碳水化合物代谢Carbohydrate metabolism <0.01 0.02
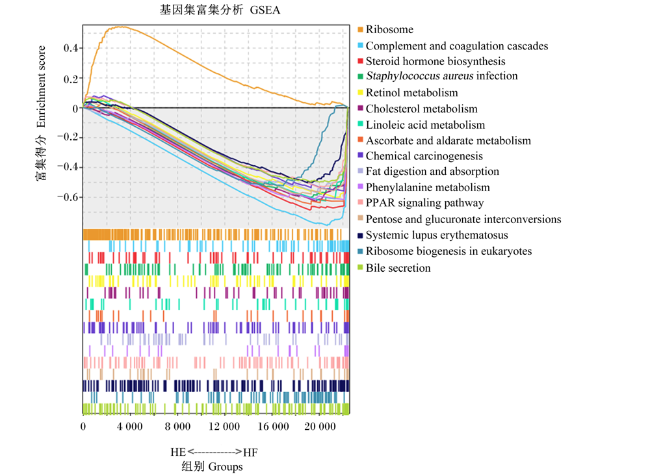
图3所示,通过基因集富集分析(gene set enrichment analysis,GSEA),结合KEGG数据库处理发现,得到16条差异通路(FDR<0.05)。与HF组相比,HE组的1条通路整体上调,15条通路整体下调,涉及转录、免疫、脂质代谢、疾病感染、消化系统等多个功能,其中补体系统、金黄色葡萄球菌感染、抗坏血酸盐和醛酸盐代谢3条通路与KEGG富集通路分析相符合,而其他13条通路为GSEA另外筛选出随饲粮调控的通路。
图3 GSEA-KEGG富集通路

Ribosome:核糖体;Complement and coagulation cascades:补体系统;Steroid hormone biosynthesis:类固醇生物合成;Staphylococcus aureus infection:金黄色葡萄球菌感染;Retinol metabolism:视黄醇代谢;Cholesterol metabolism:胆固醇代谢;Linoleic acid metabolism:亚油酸代谢;Chemical carcinogenesis:化学致癌;Ascorbate and aldarate metabolism:抗坏血酸盐和醛酸盐代谢;Fat digestion and absorption:脂肪消化与吸收;Phenylalanine metabolism:苯丙烷代谢;Pentose and glucuronate interconversions:戊糖和葡萄糖醛酸酯相互转化;PPAR signaling pathway:PPAR信号通路;Ribosome biogenesis in eukaryotes:真核生物核糖体生物发生;Systemic lupus erythematosus:系统性红斑狼疮;Bile secretion:胆汁分泌。

Fig.3 GSEA-KEGG enriched pathway

2.4 RT-qPCR验证

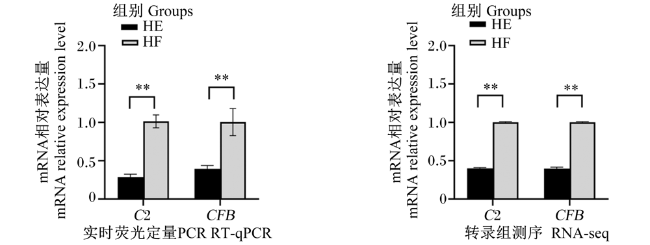
图4所示,选取补体通路包含的DEGs(C2、CFB),采用RT-qPCR验证,结果表明,RT-qPCR验证结果与RNA-seq变化模式一致,说明测序数据可靠。
图4 RT-qPCR验证DEGs

C2:补体因子2 complement factor 2;CFB:补体因子B complement factor B;**:P<0.01。

Fig.4 DEGs verified by RT-qPCR

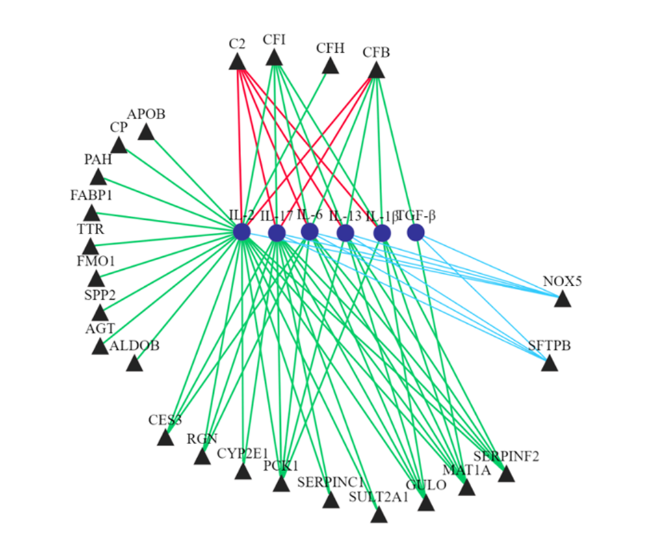
2.5 炎症因子与DEGs相关性分析

进一步对炎症因子与DEGs进行了相关性分析,并绘制了定向网络图,如图5所示,补体通路内基因C2、CFB、补体因子I(CFI)与血液炎症因子IL-1β、IL-2、IL-6、IL-13、IL-17均显著相关(P<0.05),补体因子H(CFH)与血液IL-2显著相关(P<0.05)。其中,C2与血液IL-2、IL-17、IL-6、IL-13、IL-1β为极强负相关关系(|r|=0.8~1.0);CFB与血液IL-2、IL-17为极强负相关关系(|r|=0.8~1.0),与IL-6、IL-13、IL-1β、TGF-β为强负相关关系(|r|=0.6~0.8);CFI与血液IL-2、IL-17、IL-6、IL-13、IL-1β为强负相关关系(|r|=0.6~0.8)。
图5 炎症因子与DEGs定向网络图

CFI:补体因子I complement factor I;CFB:补体因子B complement factor B;SERPINC1:丝氨酸蛋白酶抑制剂C1 serine protease inhibitor C1;SERPINF2:丝氨酸蛋白酶抑制剂F2 serine protease inhibitor F2;FABP1:脂肪酸结合蛋白1 fatty acid binding protein 1;MAT1A:甲硫氨酸腺苷转移酶1A methionine adenosyltransferase 1A;APOB:载脂蛋白B apolipoprotein B;AGT:血管紧张素原 angiotensinogen;TTR:甲状腺素运载蛋白 thyroxine transporter;NOX5:还原型辅酶Ⅱ氧化酶5 nicotinamide adenine dinucleotide phosphate oxidase;SULT2A1:2A1样磺基转移酶 sulfotransferase 2A1;PCK1:磷酸烯醇丙酮酸羧激酶1 phosphoenolpyruvate carboxykinase 1;SFTPB:表面活性蛋白B surfactant protein;PAH:苯丙氨酸羟化酶 phenylalanine hydroxylase;RGN:钙调素 calmodulin;CFH:补体因子H complement factor H;CYP2E1:细胞色素P450 2E1 cytochrome P450 2E1;GULO:L-古洛糖酸内酯氧化酶 L-gulonolactone oxidase;CP:血浆铜蓝蛋白 ceruloplasmin;FMO1:黄素单氧化酶1 flavin monooxidase 1;CES3:羧酸酯酶3 carboxylesterase 3;C2:补体因子2 complement factor 2;ALDOB:果糖二磷酸醛缩酶B fructose diphosphate aldolase B;SPP2:分泌型磷蛋白2 secretory phosphoprotein 2。

红色:极强负相关;绿色:强负相关;蓝色:强正相关。

Fig.5 Orientation network diagram of inflammatory cytokines and DEGs orientation network

Red: extreme strong negative correlation; green: strong negative correlation; blue: strong positive correlation.

3 讨论

瘤胃作为反刍动物消化系统的重要组成部分,其上皮分布着大量角质化乳头,具有提高瘤胃上皮与瘤胃内容物接触面积、促进吸收的作用,瘤胃上皮乳头高度和宽度是衡量反刍动物瘤胃发育情况的重要指标。同时,瘤胃发育及健康状况进一步也决定着反刍动物的生长发育能否正常进行。因此,确保瘤胃乳头的正常发育在反刍动物的饲养管理中显得尤为重要。不同的饲粮对瘤胃上皮形态起着十分关键的调控作用。饲粮的物理形态、精粗比例、饲喂方式均对瘤胃上皮的生理生化指标,如上皮形态、pH、挥发性脂肪酸(VFA)比例等有着关键的调控作用[7-9]。Devant等[10]研究表明,饲喂高精料但不补充秸秆饲粮的公牛瘤胃pH显著降低,且出现了乳头融合的情况,改变了瘤胃上皮形态。同时,由精粗饲料配置不均衡所导致的一系列病理状态也会引起瘤胃上皮形态发生改变[11],如亚急性瘤胃酸中毒(SARA)对瘤胃上皮细胞的凋亡有促进作用,对瘤胃上皮细胞的增殖有抑制作用[12]。先前的研究表明,不同饲粮粒度和能量密度对瘤胃乳头形态和瘤胃VFA浓度有着关键的调控作用[11-15]。在本试验中,高精料饲粮在保持蛋白质水平、饲粮物理形态及饲喂方式一致的情况下,HE组绵羊在前40 d内体重相较于HF组显著升高,但在试验结束时体重无显著差异,血清细胞因子提示可能是高精饲粮引起较强炎症反应导致HE组后期生长性能下降,相关生长数据及血清细胞因子数据已发表[16]。同时,瘤胃乳头长度有增长的趋势,但并不显著,这与前人的研究结果[17]一致。
不同饲粮处理导致瘤胃上皮细胞的基因表达出现变化,并且形态学变化与转录水平的变化有着紧密联系。因此,我们随后通过RNA-seq得到了诸多DEGs,并通过对DEGs进行KEGG富集分析及GSEA,得到了一些差异通路。GSEA的基本思想是使用预定义的基因集(通常来自功能注释或先前试验的结果),将基因按照在2类样本中的差异表达程度排序,然后检验预先设定的基因集合是否在这个排序表的顶端或者底端富集。
GSEA检测基因集合而不是单个基因的表达变化,因此可以包含这些细微的表达变化,预期得到更为理想的结果。相对于普通的KEGG富集分析,GSEA可以关注到单个基因变化并不显著,但通路整体变化显著的通路,进而挖掘到更细微的基因表达变化情况。在本试验中,通过GSEA总共挖掘到16条受饲粮能量水平显著调控的通路,其中补体级联系统、金黄色葡萄球菌感染、抗坏血酸盐和醛酸盐代谢3条通路在2种富集分析中均出现差异,而剩下的13条通路为GSEA所特有,提示多条单个基因变化不显著但可能起到重要调控作用的通路。
补体级联通路的富集与前人的研究结果[11,15]一致。在Mu等[11]的研究中,高谷物饲粮(60%精料)相比于对照组(40%精料)的瘤胃上皮DEGs也主要富集于补体和凝血级联通路。这说明补体通路可能在精粗比影响瘤胃乳头形态的变化中起着重要的调控作用。作为血浆中古老的蛋白质水解级联反应补体级联通路,在宿主防御中发挥着重要的作用,补体蛋白作为非活性前体在血液中循环,直至与目标结构接触时被激活,并由此介导蛋白质水解级联反应,产生多种蛋白质裂解产物,这些产物对于炎症发生起着十分关键的作用[18-20]。在本研究中,C2、CFICFHCFB的表达受到HE组饲粮的调控而显著降低,血液中炎症因子与这些基因的显著负相关关系可能是由于强烈的炎症反应导致的负反馈调节。
表面活性蛋白B(SFTPB)为表面活性蛋白,目前在瘤胃上皮中的作用尚未见报道,但在小鼠肺上皮细胞中,LPS处理显著激活了SFTPB的蛋白表达[21]。在本研究中,HE组的SFTPB的表达显著上调,可能也是由于高精料饲粮的快速发酵导致瘤胃内LPS含量升高。随着饲粮精粗比的升高,瘤胃pH下降[9],且在亚急性瘤胃酸中毒模型中,瘤胃微生物的菌群组成结构发生改变,微生物群落多样性及丰度下降[22],并进一步导致瘤胃内LPS含量升高,引起强烈的炎症反应,破坏细胞间的紧密连接[23],而升高的LPS反过来进一步改变瘤胃菌群结构[24],导致更加严重的瘤胃稳态失衡。因此,补体通路变化的显著富集提示我们,高精料饲粮在瘤胃内快速发酵,引起瘤胃pH下降,瘤胃微生物菌群结构发生改变,并进一步导致瘤胃内LPS含量升高,激活的补体级联通路随之被激活,补体蛋白的级联水解引起瘤胃炎症的进一步加剧,对瘤胃造成严重损害,出现严重的炎症反应和病菌入侵,金黄色葡萄球菌通路的显著富集佐证了此观点,提示饲喂高精料饲粮不利于绵羊的健康养殖。
除此之外,补体级联通路被认为是一个在免疫检测、细胞和组织稳态及修复过程中起到连接其他生物过程的网络中枢[25],并且在巨噬细胞对凋亡细胞的吞噬过程中补体系统起着至关重要的作用[26]。奶牛饲粮中非饲草纤维源可通过补体和凝血级联途径影响瘤胃免疫功能[27]。先前的报道表明,高精料饲粮引起瘤胃上皮凋亡及增殖相关基因表达上升,瘤胃上皮细胞凋亡比率升高,细胞周期进程加快,这使上皮细胞加速增殖[28],并最终导致瘤胃乳头数量和厚度增加[8]。补体系统通路中的C2、丝氨酸蛋白酶抑制剂C1(SERPINC1)起到抑制细胞凋亡的作用[29-30]。因此,本研究中HE组C2、SERPINC1的相对丰度降低提示我们饲喂高精料饲粮也可能引起瘤胃上皮细胞凋亡及增殖稳态失衡,并进一步影响瘤胃上皮的营养物质消化转运功能,降低饲料利用效率,损害绵羊的健康。

4 结论

在本试验条件下,饲喂高精料饲粮在一定程度可以改变滩羊瘤胃上皮形态,通过RNA-seq技术进一步发现高精料饲粮改变了滩羊瘤胃上皮中的补体系统、金黄色葡萄球菌感染、抗坏血酸盐和醛酸盐代谢通路,C2、CFICFHCFB为高精料饲粮作用下的关键DEGs,且与炎症因子呈显著负相关关系。综上所述,长期饲喂高精料饲粮可能诱发瘤胃上皮组织的免疫反应及炎症反应,影响瘤胃上皮稳态及瘤胃发育,从而影响正常的生理功能,对滩羊健康养殖不利。
[1]
PENNER G B, OBA M, GÄBEL G, et al. A single mild episode of subacute ruminal acidosis does not affect ruminal barrier function in the short term[J]. Journal of Dairy Science, 2010, 93(10):4838-4845.

DOI PMID

[2]
KHAFIPOUR E, KRAUSE D O, PLAIZIER J C. A grain-based subacute ruminal acidosis challenge causes translocation of lipopolysaccharide and triggers inflammation[J]. Journal of Dairy Science, 2009, 92(3):1060-1070.

DOI PMID

[3]
LIU J H, XU T T, LIU Y J, et al. A high-grain diet causes massive disruption of ruminal epithelial tight junctions in goats[J]. American Journal of Physiology. Regulatory:Integrative and Comparative Physiology, 2013, 305(3):R232-R241.

DOI

[4]
DA SILVA CORREIA J, SOLDAU K, CHRISTEN U, et al. Lipopolysaccharide is in close proximity to each of the proteins in its membrane receptor complex.Transfer from CD14 to TLR4 and MD-2[J]. Journal of Biological Chemistry, 2001, 276(24):21129-21135.

DOI

[5]
OPAL S M. The host response to endotoxin,antilipopolysaccharide strategies,and the management of severe sepsis[J]. International Journal of Medical Microbiology, 2007, 297(5):365-377.

DOI

[6]
LU Y C, YEH W C, OHASHI P S. LPS/TLR4 signal transduction pathway[J]. Cytokine, 2008, 42(2):145-151.

DOI

[7]
STEELE M A, GREENWOOD S L, CROOM J, et al. An increase in dietary non-structural carbohydrates alters the structure and metabolism of the rumen epithelium in lambs[J]. Canadian Journal of Animal Science, 2012, 92(2):123-130.

DOI

[8]
GUI H B, SHEN Z M. Concentrate diet modulation of ruminal genes involved in cell proliferation and apoptosis is related to combined effects of short-chain fatty acid and pH in rumen of goats[J]. Journal of Dairy Science, 2016, 99(8):6627-6638.

DOI PMID

[9]
LACERDA N G, OLIVEIRA L R S, OLIVEIRA C M C, et al. Whole or coarsely broken açai seed as a source of roughage in the diet of feedlot cattle:intake,digestibility,and ruminal parameters[J]. Tropical Animal Health and Production, 2022, 54(4):206.

DOI

[10]
DEVANT M, PENNER G B, MARTI S, et al. Behavior and inflammation of the rumen and cecum in Holstein bulls fed high-concentrate diets with different concentrate presentation forms with or without straw supplementation[J]. Journal of Animal Science, 2016, 94(9):3902-3917.

DOI PMID

[11]
MU Y Y, QI W P, ZHANG T, et al. Multi-omics analysis revealed coordinated responses of rumen microbiome and epithelium to high-grain-induced subacute rumen acidosis in lactating dairy cows[J]. mSystems, 2022, 7(1):e0149021.

DOI

[12]
邬宇航, 殷兆丽, 刘大程, 等. 亚急性瘤胃酸中毒对瘤胃和瓣胃上皮细胞增殖与凋亡的影响[J]. 动物营养学报, 2013, 25(11):2612-2622.

DOI

WU Y H, YIN Z L, LIU D C, et al. Effects of subacute rumen acidosis on proliferation and apoptosis of rumen and omasum epithelial cells[J]. Chinese Journal of Animal Nutrition, 2013, 25(11):2612-2622. (in Chinese)

[13]
WANG B, WANG D M, WU X H, et al. Effects of dietary physical or nutritional factors on morphology of rumen papillae and transcriptome changes in lactating dairy cows based on three different forage-based diets[J]. BMC Genomics, 2017, 18(1):353.

DOI PMID

[14]
WANG L, QI W B, MAO S Y, et al. Effects of whole corn high-grain diet feeding on ruminal bacterial community and epithelial gene expression related to VFA absorption and metabolism in fattening lambs[J]. Journal of Animal Science, 2022, 100(3):skac056.

DOI

[15]
XUE Y, YIN Y, TRABI E B, et al. Transcriptome analysis reveals the effect of high-grain pelleted and non-pelleted diets on ruminal epithelium of Hu-lamb[J]. Animal, 2021, 15(7):100278.

DOI

[16]
WANG B, ZHANG B Y, ZHOU L, et al. Multi-omics reveals diet-induced metabolic disorders and liver inflammation via microbiota-gut-liver axis[J]. The Journal of Nutritional Biochemistry, 2023, 111:109183.

DOI

[17]
JIANG Y H, DAI P, DAI Q D, et al. Effects of the higher concentrate ratio on the production performance,ruminal fermentation,and morphological structure in male cattle-yaks[J]. Veterinary Medicine and Science, 2022, 8(2):771-780.

DOI

[18]
LUPU F, KESHARI R S, LAMBRIS J D, et al. Crosstalk between the coagulation and complement systems in sepsis[J]. Thrombosis Research, 2014, 133(Suppl 1):S28-S31.

[19]
PATTHY L. Evolution of blood coagulation and fibrinolysis[J]. Blood Coagulation & Fibrinolysis, 1990, 1(2):153-166.

[20]
SATYAM A, GRAEF E R, LAPCHAK P H, et al. Complement and coagulation cascades in trauma[J]. Acute Medicine & Surgery, 2019, 6(4):329-335.

[21]
BEIN K, DI GIUSEPPE M, MISCHLER S E, et al. LPS-treated macrophage cytokines repress surfactant protein-B in lung epithelial cells[J]. American Journal of Respiratory Cell and Molecular Biology, 2013, 49(2):306-315.

DOI PMID

[22]
CHEN X D, SU X D, LI J L, et al. Real-time monitoring of ruminal microbiota reveals their roles in dairy goats during subacute ruminal acidosis[J]. NPJ Biofilms and Microbiomes, 2021, 7(1):45.

DOI PMID

[23]
STEELE M A, CROOM J, KAHLER M, et al. Bovine rumen epithelium undergoes rapid structural adaptations during grain-induced subacute ruminal acidosis[J]. American Journal of Physiology.Regulatory,Integrative and Comparative Physiology, 2011, 300(6):R1515-R1523.

[24]
PETRI R M, ADITYA S, HUMER E, et al. Effect of an intramammary lipopolysaccharide challenge on the hindgut microbial composition and fermentation of dairy cattle experiencing intermittent subacute ruminal acidosis[J]. Journal of Dairy Science, 2021, 104(5):5417-5431.

DOI PMID

[25]
EHRNTHALLER C, IGNATIUS A, GEBHARD F, et al. New insights of an old defense system:structure,function,and clinical relevance of the complement system[J]. Molecular Medicine, 2011, 17(3/4):317-329.

DOI

[26]
MEVORACH D, MASCARENHAS J O, GERSHOV D, et al. Complement-dependent clearance of apoptotic cells by human macrophages[J]. Journal of Experimental Medicine, 1998, 188(12):2313-2320.

DOI PMID

[27]
QUAN S Y, DU C M, WANG K, et al. Different diets change milk extracellular vesicle-protein profile in lactating cows[J]. Agriculture, 2022, 12(8):1234.

DOI

[28]
LU J, ZHAO H, XU J, et al. Elevated cyclin D1 expression is governed by plasma IGF-1 through Ras/Raf/MEK/ERK pathway in rumen epithelium of goats supplying a high metabolizable energy diet[J]. Journal of Animal Physiology and Animal Nutrition, 2013, 97(6):1170-1178.

DOI PMID

[29]
XU D C, WU J W, DONG L, et al. Serpinc1 acts as a tumor suppressor in hepatocellular carcinoma through inducing apoptosis and blocking macrophage polarization in an ubiquitin-proteasome manner[J]. Frontiers in Oncology, 2021, 11:738607.

DOI

[30]
GAGAOUA M, HAFID K, BOUDIDA Y, et al. Caspases and thrombin activity regulation by specific serpin inhibitors in bovine skeletal muscle[J]. Applied Biochemistry and Biotechnology, 2015, 177(2):279-303.

DOI PMID

Outlines

/