REVIEW

Effects of Glucose Metabolic Intermediates on Whole-Body Metabolism and Their Applications in Pig Production

  • SUN Haijun , 1 ,
  • GUO Naiwei 2 ,
  • ZHANG Xin , 1, * ,
  • YIN Jingdong 1
Expand
  • 1 State Key Laboratory of Animal Nutrition, College of Animal Science and Technology, China Agricultural University, Beijing 100193, China
  • 2 Anhui Sealong Biotechnology Co., Ltd., Bengbu 233313, China
*associate professor, E-mail:

Received date: 2022-10-18

  Online published: 2023-05-11

Abstract

Glucose is the main energy supplier for animals, and the metabolic dysfunction of glucose is closely related to the occurrence of metabolic diseases, including obesity and type Ⅱ diabetes. The concentrations of some glucose metabolic intermediates, such as succinate, L-malic acid, α-ketoglutarate and lactate can reflect the health status, and also influence the biological processes related to growth rate and meat quality traits formation of livestock and poultry, including muscle fiber type conversion and fat deposition, implying that glucose metabolic intermediates are of application prospects in the efficient and high-quality production of meat. Therefore, in this review, the relationship between glucose metabolic disturbance and the occurrence of metabolic diseases were introduced, and the beneficial effects of succinate, L-malic acid and α-ketoglutarate intake at different physiological stages were analyzed. Furthermore, the role of glucose metabolic intermediates in improving growth performance, carcass quality and meat quality of pigs were reviewed, which will provide a basis for improving the quality and efficiency of pig production.

Cite this article

SUN Haijun , GUO Naiwei , ZHANG Xin , YIN Jingdong . Effects of Glucose Metabolic Intermediates on Whole-Body Metabolism and Their Applications in Pig Production[J]. Chinese Journal of Animal Nutrition, 2023 , 35(5) : 2748 -2755 . DOI: 10.12418/CJAN2023.257

葡萄糖是动物的主要供能物质,机体通过利用葡萄糖为细胞维持正常功能与状态提供能量。无氧酵解、有氧氧化和磷酸戊糖途径是葡萄糖分解代谢的主要途径。无氧酵解是指在缺氧情况下葡萄糖分解形成乳酸提供能量;有氧氧化是指在有氧条件下,葡萄糖经过一系列生物化学反应被完全氧化成二氧化碳和水,同时产生能量的过程,这是细胞内糖分解代谢提供能量的主要途径;磷酸戊糖途径是葡萄糖直接氧化脱氢和脱羧,最终生成烟酰胺腺嘌呤二核苷酸磷酸(NAPDH)作为还原剂供生物合成的过程。当葡萄糖供给充裕时,葡萄糖以糖原的形式储存。糖原合成主要在肝脏和肌肉细胞中进行,形成肝糖原和肌糖原,当细胞缺乏能量时,再将糖原分解为葡萄糖。葡萄糖在体内的代谢受到精准调控,其代谢的紊乱可能会诱发以胰岛素抵抗为特征的Ⅱ型糖尿病、肥胖、非酒精性脂肪肝和肌肉损失等一系列代谢性疾病[1],引起肌肉损失和脂肪的过度沉积[2]。对于产肉动物而言,肌肉重量和脂肪沉积直接影响胴体品质和肉品质。肌肉重量是衡量猪产肉性能的关键指标,与瘦肉率密切相关,而皮下脂肪的过度沉积会降低瘦肉率,破坏胴体品质,增加肌内脂肪则会改善肉风味,对系水力和嫩度也会产生积极影响[3]。鉴于饲粮是影响猪胴体品质和肉品质的直接影响因素[4],饲粮中添加葡萄糖代谢中间产物可能会调控猪的生长性能、胴体品质和肉品质。因此,本文将探讨葡萄糖代谢中间产物对机体代谢的影响及其机制,在此基础上,分析饲粮添加葡萄糖代谢中间产物对猪生长性能、胴体品质和肉品质的影响,为养猪生产的提质增效提供营养方案。

1 葡萄糖代谢紊乱与代谢性疾病的关系

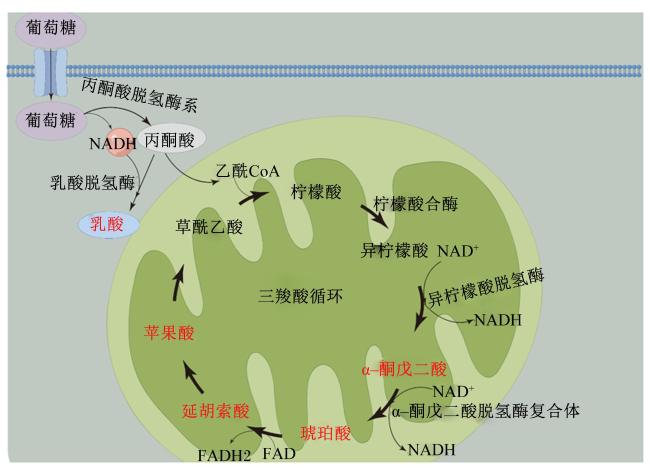
葡萄糖在胞质中首先经过糖酵解过程生成丙酮酸,有氧条件下在线粒体内进入三羧酸循环,该过程是以乙酰辅酶A与草酰乙酸结合生成6碳分子的柠檬酸开始的。柠檬酸异构为异柠檬酸;由异柠檬酸进行三羧酸循环的第1次脱氢反应,生成α-酮戊二酸(α-ketoglutarate,AKG);AKG再次脱氢形成琥珀酰辅酶A,经过琥珀酸的第3次脱氢反应生成延胡索酸;延胡索酸加水生成苹果酸;苹果酸进行第4次脱氢重新形成草酰乙酸。柠檬酸合酶、异柠檬酸脱氢酶和α-酮戊二酸脱氢酶复合体是三羧酸循环的限速酶。在缺氧条件下,丙酮酸接受从3-磷酸甘油醛脱下的由还原型烟酰胺腺嘌呤二核苷酸(NADH)携带的氢,在乳酸脱氢酶催化下形成乳酸(图1)。
图1 葡萄糖的无氧酵解和有氧氧化

NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide;CoA:辅酶A coenzyme A;NAD+:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide;FAD:黄素腺嘌呤二核苷酸 flavin adenine dinucleotide;FADH2:还原型黄素腺嘌呤二核苷酸 reduced flavin adenine dinucleotide。
红色标注的物质为本文重点分析的葡萄糖代谢中间产物。The substances marked in red were the intermediate products of glucose metabolism analyzed in this paper.

Fig.1 Aerobic and anaerobic oxidation of glucose

随着生活水平的升高,大众的饮食结构发生改变,高能(高糖高脂)饮食逐渐成为主流[5]。高能饮食直接引起了体内大量血糖不能被及时代谢,糖异生增强,致使糖原和脂肪大量积累。同时,高浓度的血糖导致胰岛素的过度分泌,使得在正常的血浆胰岛素水平下,靶组织无法启动正常的协调降糖反应,抑制脂肪分解,这种由于高血糖引起的胰岛素分泌代偿的情况即为高胰岛素血症[6]。空腹血糖和胰岛素水平的升高是Ⅱ型糖尿病的典型特征,持续的高能饮食是导致肥胖患者患Ⅱ型糖尿病的重要因素[7]。Nagy等[8]连续用葡萄糖溶液强饲C57BL/6J小鼠,通过葡萄糖耐受和胰岛素耐受试验发现,长期高糖饮食破坏了葡萄糖耐受能力,引起胰岛素抵抗,这一试验模型也证明了葡萄糖代谢紊乱是引起Ⅱ型糖尿病的重要原因。Ⅱ型糖尿病又会通过激活多元醇途径、增加高级糖基化(advanced glycation end products,AGEs)终产物及其受体和配体表达、激活蛋白激酶C异构体以及过度激活己糖胺途径等方式提高胞内氧自由基的产生,引起微血管和心血管并发症[9]。在Ⅱ型糖尿病及其并发症发生的过程中,肠道微生物发挥了重要作用[10]。高糖饮食会引起肠道微生物组成、肠道通透性、炎症、肝脏脂肪变性和脂质积累的变化[11],而二甲双胍可以调节肠道微生物,通过作用于脆弱拟杆菌-甘草酸脱氧胆酸-肠道法尼醇受体轴发挥降血糖的作用[12]
琥珀酸、L-苹果酸、AKG和乳酸等葡萄糖代谢中间产物的浓度可以作为生物标志物反映机体的健康情况。对人工诱导的慢性炎症小鼠模型进行血浆代谢物分析,发现三羧酸循环中间体(AKG、延胡索酸、柠檬酸、L-苹果酸和琥珀酸)在血浆中的浓度显著降低[13]。近年来的研究同样发现,琥珀酸可以在巨噬细胞中蓄积,激活促炎基因的表达。琥珀酸在缺血组织中含量升高,促进再灌注过程中活性氧的产生,引发缺血再灌注损伤。因此,琥珀酸不仅是呼吸链代谢底物,还作为“信号分子”在炎症、低氧和代谢信号传导中发挥重要作用,且有潜力作为炎症和代谢紊乱的生物标志物[14]。乳酸与琥珀酸不同,通常被认为是无氧代谢的废弃物,但是无氧状态下乳酸与代谢稳态的关系受到了关注。Broskey等[15]综述了乳酸与代谢健康的关系,发现在肥胖患者的肌肉中丙酮酸的氧化受到抑制,过多的乳酸进入肝脏参与糖异生过程,因此血液中的乳酸水平和血糖水平呈正相关关系。最新研究表明,肥胖导致脂肪细胞缺氧和乳酸积累,引起脂肪细胞产生炎症因子,进而使巨噬细胞聚集引起全身的炎症反应,敲除脂肪组织的乳酸转运载体单羧酸转运蛋白1(monocarboxylate transporter 1,MCT1)会恶化肥胖引起的胰岛素抵抗[16]。值得关注的是,乳酸可以介导组蛋白的乳酸化修饰,促进巨噬细胞由促炎的M1型向抗炎的M2型转变[17]。组蛋白乳酸化修饰被认为是糖酵解开关的表观遗传标记,在败血症、阿兹海默症等领域的研究中很快得到了重视[18-19]。因此,乳酸介导的乳酸化修饰对于代谢性疾病发展的影响同样值得关注。

2 摄入葡萄糖代谢中间产物对机体代谢的改善作用

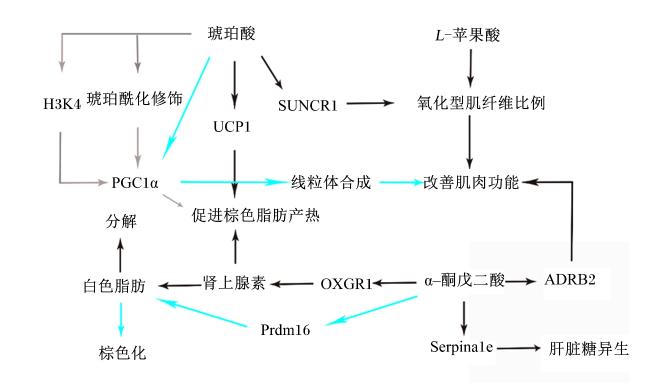
应用模式动物的研究发现,通过饮食或饮水摄入琥珀酸、L-苹果酸和AKG等葡萄糖代谢的中间产物可以增强有氧代谢、改善肌肉功能。Wang等[20]研究表明,小鼠饲粮中添加0.5%和1%的琥珀酸盐,饲喂8周,可以降低肌纤维的横截面积,增强肌肉耐力,究其原因可以发现,琥珀酸不仅提高了过氧化物酶体增殖物激活受体γ共激活因子1α(PGC1α)的蛋白表达,促进了骨骼肌线粒体合成,还能通过激活内源受体琥珀酸受体1(SUNCR1)促进酵解型肌纤维向氧化型肌纤维的转化。在小鼠饮水中添加琥珀酸盐也可以通过琥珀酸脱氢酶介导的琥珀酸氧化启动活性氧的产生,以驱动体内解偶联蛋白1(UCP1)依赖性棕色脂肪产热,增强棕色脂肪的产热能力,从而抵抗高脂饲粮引起的肥胖,提高葡萄糖耐受能力[21]。与此研究相类似,在C57BL/6J母鼠妊娠期和哺乳期的饮水中加入0.5%的琥珀酸可以提高新生仔鼠和断奶仔鼠棕色脂肪占体重的比例和棕色脂肪的产热能力,琥珀酸主要通过增强PGC1α启动子转录起始位点区域的琥珀酰化修饰和组蛋白H3K4三甲基化修饰提高PGC1α的表达水平,进而增强棕色脂肪的功能;母体摄入琥珀酸可以保护后代抵抗高脂饲粮引起的肥胖,因此在母体对后代产生营养程序化的窗口期,母体摄入琥珀酸对后代的代谢具有持续性的影响[22]
L-苹果酸与琥珀酸的作用相类似,参与线粒体的能量代谢,在食品、医药和化工等领域多有应用[23]。饲粮中添加1% L-苹果酸可以提高断奶仔猪氧化型肌纤维的比例,增强葡萄糖的有氧代谢,但是L-苹果酸对机体运动能力的影响并不清楚[24]。作为机体最大的胰岛素敏感的组织,骨骼肌负责餐后大约30%的葡萄糖利用[25-26]。肌纤维是骨骼肌的基本单位,根据形态、功能和代谢特征可以分为Ⅰ型肌纤维(慢速氧化型)、Ⅱa型肌纤维(快速氧化型)、Ⅱb型肌纤维(快速酵解型)以及Ⅱx型肌纤维(中间型)。与Ⅱ型肌纤维相比,Ⅰ型肌纤维具有更多的线粒体、更高的氧化磷酸化能力和毛细血管密度。Ⅱ型糖尿病患者股外侧肌的Ⅰ型肌纤维比例低于正常人[27];而股外侧肌β受体抑制试验证实,胰岛素敏感性与骨骼肌Ⅰ型肌纤维的比例呈正相关关系[28]。受试者的股外侧肌活检试验同样证明了Ⅰ型肌纤维对胰岛素敏感性的重要贡献[29]。鉴于琥珀酸和L-苹果酸在肌纤维类型转化中的作用,增加琥珀酸和L-苹果酸的摄入为预防甚至治疗Ⅱ型糖尿病提供了饮食策略。
AKG与琥珀酸和L-苹果酸的作用不同,AKG主要通过增强蛋白质合成改善肌肉的功能。AKG可以抵抗皮质酮引起的C2C12肌管和小鼠骨骼肌的蛋白质降解;更重要的是,在饮水中加入2%的AKG能够增加Mdx小鼠的体增重和肌肉重量,增强后肢力量和小鼠的耐力,在这个过程中,AKG通过抑制脯氨酸羟化酶3(PHD3)的表达,降低了PHD3与下游靶标肾上腺素能受体β2(ADRB2)之间的相互作用,提高了ADRB2的稳定性,最终抑制了蛋白质降解和肌肉萎缩[2]。除了促进肌肉肥大,摄入AKG可以对代谢产生有益作用。研究发现,小鼠饮水中加入2% AKG通过激活肾上腺的氧化戊二酸(α-酮戊二酸)受体1[oxoglutarate (alpha-ketoglutarate) receptor 1,OXGR1],促进肾上腺素释放,增强棕色脂肪产热和白色脂肪的分解[30]。通过饮水摄入AKG也可以通过促进丝氨酸(或半胱氨酸)肽酶抑制剂分支A成员1E[serine (or cysteine) peptidase inhibitor, clade A, member 1E,Serpina1e]的表达抑制肥胖小鼠肝脏的糖异生,降低血糖水平[31]。除了缓解饲粮引起的肥胖和代谢紊乱,AKG还能通过上调PR结构域蛋白16(PR domain-containing 16,Prdm16)的表达促进中龄鼠(10月龄)的白色脂肪棕色化,改善中龄鼠的健康状况[32]
综上可以看出,饮食或者饮水摄入琥珀酸、L-苹果酸和AKG可以通过增加机体产热和改善骨骼肌的功能等途径缓解高能饮食或衰老引起的代谢紊乱(图2),但是大部分的研究是在模式动物上开展的,关于摄入三羧酸循环代谢中间产物对人代谢健康的影响还需要进一步确认。
图2 葡萄糖中间代谢产物调节机体代谢的作用机制

PGC1α:过氧化物酶体增殖物激活受体γ共激活因子1α peroxisome proliferator activating receptor γ coactivator 1α;UCP1:解偶联蛋白1 uncoupling protein 1;SUNCR1:琥珀酸受体1 succinate receptor 1;OXGR1:氧化戊二酸(α-酮戊二酸)受体1 oxoglutarate (alpha-ketoglutarate) receptor 1;ADRB2:肾上腺素能受体β2 adrenergic receptor beta 2;Prdm16:PR结构域蛋白16 PR domain-containing 16;Serpina1e:丝氨酸(或半胱氨酸)肽酶抑制剂分支A成员1E serine (or cysteine) peptidase inhibitor, clade A, member 1E。
不同颜色的线表示不同的代谢调节途径。

Fig.2 Mechanisms underlying regulation of glucose metabolic intermediates on whole-body metabolism

Different colored lines indicated different metabolic regulatory pathways.

3 葡萄糖代谢中间产物在猪生产中的应用

饲粮中的碳水化合物是猪体内葡萄糖的主要来源。淀粉是占比最大的可消化碳水化合物,经过胃肠道分泌的内源酶消化产生葡萄糖,经肠道吸收后通过门静脉进入血液;不可消化碳水化合物主要是非淀粉多糖,被肠道微生物代谢产生短链脂肪酸。肝糖原分解也可以产生葡萄糖,这是猪空腹时血糖的主要来源。与猪相似,小肠是家禽淀粉消化吸收的主要部位,但是与猪相比,家禽后肠段较短,发酵潜力小[33]。研究发现,猪胆酸、猪脱氧胆酸及其与甘氨酸和牛磺酸共轭的衍生物占人和大鼠血浆总胆汁酸的1%,占猪血浆总胆汁酸的80%,胆汁酸组成的差异使得猪在采食高糖/高脂饲粮的情况下不容易出现Ⅱ型糖尿病,维持正常的血糖水平(过夜禁食情况下,猪的血糖水平4.3 mmol/L,人的血糖水平6.1 mmol/L,小鼠的血糖水平6.0 mmol/L)[34]。关于猪作为模型在研究Ⅱ型糖尿病中的应用本文不做讨论,主要关注饲粮添加葡萄糖代谢中间产物对猪生长性能、胴体品质和肉品质的影响。

3.1 饲粮添加葡萄糖代谢中间产物对猪生长性能的影响

由饲粮或外部应激源引发的炎症反应通常对猪的生长性能和肠道健康产生不利影响[35]。肠道功能紊乱首先体现在肠道微生物的紊乱,肠道微生物通过与宿主的共生相互作用,广泛参与营养物质吸收、能量平衡和免疫防御[36]。琥珀酸是肠道微生物的重要代谢物,有研究表明,饲粮添加1%琥珀酸可以显著提高生长猪空肠绒毛高度,降低隐窝深度,提高绒毛高度与隐窝深度的比值,起到了改善肠道形态的作用;结合猪肠道上皮细胞IPEC-J2的培养试验可以发现,琥珀酸能够降低肠道上皮通透性,提高紧密连接蛋白的表达水平,改善肠上皮屏障功能[37]。需要注意的是,饲粮中添加的琥珀酸在进入盲肠之前就被吸收,而通过直肠给药方式用琥珀酸处理断奶仔猪会引起腹泻[38]。结肠中普雷沃氏菌属过多产生琥珀酸也会增加结肠液体的分泌,通过激活依赖髓样分化因子88(MyD88)的Toll样受体4(TLR4)信号恶化结肠的炎症反应,导致断奶仔猪腹泻[38]。因此,琥珀酸对肠道健康的影响与其发挥作用的部位是直接相关的。类似于饲粮添加琥珀酸对肠道健康的改善作用,断奶仔猪饲粮添加1% L-苹果酸同样可以显著提高空肠的绒毛高度和绒毛高度/隐窝深度值,增强空肠的抗炎和抗氧化能力[39]。同时也要注意到,L-苹果酸在改善断奶仔猪肠道吸收能力和健康状况的同时,增强了骨骼肌葡萄糖的有氧代谢,提高了面积较小的氧化型肌纤维的比例,对仔猪的日增重带来了一定的负面影响[24]
AKG同样可以增强机体的抗氧化能力,有效缓解氧化损伤。在母猪卵细胞体外培养中加入AKG可以提高胚胎质量,通过增加谷胱甘肽含量、减少活性氧积累以及增强线粒体功能促进胚胎发育[40]。在体内试验中,断奶仔猪饲粮添加1%的AKG能够提高小肠中葡萄糖、小肽和脂肪酸转运载体的表达水平以及紧密连接蛋白的表达,增加空肠绒毛高度和黏膜厚度,缓解脂多糖(LPS)诱导的炎症反应,并促进蛋白质沉积,提高断奶仔猪的平均日增重和平均日采食量[41-43]。当0.25%的AKG添加到母猪哺乳期饲粮中,除了改善仔猪的生长性能,还可以改善21日龄仔猪的骨密度,这可能与AKG刺激母猪乳腺的乳糖合成和钙摄取能力有关[44]
从前人的研究中可以看出,饲粮添加琥珀酸、L-苹果酸和AKG等葡萄糖代谢中间产物可以增强猪的抗氧化能力、改善肠道功能,通过直接摄入或者母子营养传递的方式均可以改善哺乳仔猪或断奶仔猪的生长性能。在养殖端禁抗的行业背景下,葡萄糖代谢中间产物对于仔猪肠道健康和生长性能的改善作用及其机制值得进一步挖掘。

3.2 葡萄糖代谢中间产物对猪胴体品质和肉品质的影响

实现猪肉的高效优质生产是养猪业的终极目标之一。胴体品质与养猪生产的经济效益直接挂钩,评价指标包括屠宰率、背膘厚、眼肌面积和瘦肉率等。而长期以来,由于养猪业对猪的生长速度和瘦肉率的高度追求,导致猪肌肉内脂肪含量降低、风味变差、系水力降低,猪肉品质和消费者预期存在较大的差距。猪肉品质的关键指标包括肉色、嫩度、风味、多汁性和系水力等,上述指标的形成与肌纤维生长及其类型转化、肌内脂肪沉积以及肌肉糖原代谢等生物学过程密切相关[45]。考虑到葡萄糖代谢中间产物在肌纤维类型转化、肌肉蛋白质合成以及抵抗高脂饲粮引起的肥胖中的重要作用,葡萄糖代谢中间产物对于猪胴体品质和肉品质的影响值得关注。
出生至60日龄左右是猪肌纤维类型转化的高峰期。本实验室前期研究发现,在此阶段的饲粮中添加L-苹果酸可以增加氧化型肌纤维的比例,最终降低育肥猪猪肉的滴水损失,对胴体品质没有影响[24]。而在育肥猪饲粮中添加1% L-苹果酸可以提高骨骼肌中总抗氧化能力(T-AOC)和氧合肌红蛋白的比例,提高氧化型肌纤维标志性蛋白肌球蛋白重链Ⅰ型(MyHC Ⅰ)的表达水平,显著提高屠宰后24 h的红度值[46]。由上述研究可以得知,L-苹果酸主要通过增强肌肉的抗氧化能力和推动肌纤维类型转化改善猪肉品质,而其对猪肉品质的改善效果与猪的生长阶段密切相关。
其余葡萄糖代谢中间产物对猪胴体品质和肉品质的影响报道较少。在生长猪[初始体重(11.96±0.18) kg]饲粮中添加1%的AKG可以增加股二头肌的肌内脂肪含量,改变肌肉的脂肪酸组成,具体体现在显著提高油酸(C18∶1 n-9)和单不饱和脂肪酸的含量[47],但是AKG是否可以增加育肥猪肌内脂肪含量、进而改善猪肉品质并不清楚。除了单一的葡萄糖代谢中间产物,在饲粮中添加0.05%和0.10%的延胡索酸、柠檬酸、磷酸和苹果酸的混合物(包含20%延胡索酸、10%柠檬酸、10%磷酸和10%苹果酸)可以线性降低猪肉的烹饪损失,但是也会增加育肥猪的背膘厚,对胴体品质产生不利影响[48],相关研究还需要进一步开展。

4 小结与展望

葡萄糖代谢稳态与机体健康密切相关,琥珀酸、L-苹果酸、AKG和乳酸等葡萄糖有氧代谢和无氧酵解的代谢产物能够在一定程度上反映肥胖、Ⅱ型糖尿病和心血管疾病等代谢性疾病的发生情况。猪摄入琥珀酸、L-苹果酸和AKG等能够通过提高机体抗氧化能力、增强肌肉有氧代谢、改变肌纤维类型组成以及增加产热等途径改善机体的健康状况。鉴于猪胴体品质和肉品质的形成过程与葡萄糖、蛋白质和脂质代谢的错综复杂的关系,诸多研究结果表明了饲粮添加葡萄糖代谢中间产物对猪的生长性能、胴体品质和肉品质的改善作用。但是,目前的研究主要集中在哺乳仔猪和断奶仔猪上,葡萄糖代谢中间产物在育肥猪上的应用仍然比较缺乏。因此,未来需要继续结合模式动物,深入研究肉品质性状形成的代谢调节机制;根据肌肉生长、肌纤维类型转化和脂肪沉积的生物学规律以及代谢物发挥作用的生物学途径,确定不同葡萄糖代谢中间产物的最佳使用阶段和添加剂量,扩宽其在优质肉生产中的应用,为养猪生产的提质增效提供科学、精准的营养方案。
[1]
HEINDEL J J, BLUMBERG B, CAVE M, et al. Metabolism disrupting chemicals and metabolic disorders[J]. Reproductive Toxicology, 2017, 68:3-33.

DOI PMID

[2]
CAI X C, YUAN Y X, LIAO Z R, et al. α-ketoglutarate prevents skeletal muscle protein degradation and muscle atrophy through PHD3/ADRB2 pathway[J]. FASEB Journal, 2018, 32(1):488-499.

DOI PMID

[3]
SCHUMACHER M, DELCURTO-WYFFELS H, THOMSON J, et al. Fat deposition and fat effects on meat quality-a review[J]. Animals:an Open Access Journal From MDPI, 2022, 12(12):1550.

[4]
CHENG Q F, SUN D W. Factors affecting the water holding capacity of red meat products:a review of recent research advances[J]. Critical Reviews in Food Science and Nutrition, 2008, 48(2):137-159.

DOI

[5]
ZHANG J G, WANG Z H, DU W W, et al. Twenty-five-year trends in dietary patterns among Chinese adults from 1991 to 2015[J]. Nutrients, 2021, 13(4):1327.

DOI

[6]
PETERSEN M C, SHULMAN G I. Mechanisms of insulin action and insulin resistance[J]. Physiological Reviews, 2018, 98(4):2133-2223.

DOI PMID

[7]
刘秀梅, 吕萍, 刘玉青, 等. Ⅱ型糖尿病肥胖型患者的研究进展[J]. 当代护士(中旬刊), 2018, 25(11):10-13.

LIU X M, LYU P, LIU Y Q, et al. Advances in the study of obese patients with type Ⅱ diabetes mellitus[J]. Modern Nurse (Mid Term Journal), 2018, 25(11):10-13. (in Chinese)

[8]
NAGY C, EINWALLNER E. Study of in vivo glucose metabolism in high-fat diet-fed mice using oral glucose tolerance test (OGTT) and insulin tolerance test (ITT)[J]. Journal of Visualized Experiments, 2018(131):e56672.

[9]
GIACCO F, BROWNLEE M. Oxidative stress and diabetic complications[J]. Circulation Research, 2010, 107(9):1058-1070.

DOI PMID

[10]
BRUNKWALL L, ORHO-MELANDER M. The gut microbiome as a target for prevention and treatment of hyperglycaemia in type 2 diabetes:from current human evidence to future possibilities[J]. Diabetologia, 2017, 60(6):943-951.

DOI

[11]
DO M H, LEE E, OH M J, et al. High-glucose or-fructose diet cause changes of the gut microbiota and metabolic disorders in mice without body weight change[J]. Nutrients, 2018, 10(6):761.

DOI

[12]
SUN L L, XIE C, WANG G, et al. Gut microbiota and intestinal FXR mediate the clinical benefits of metformin[J]. Nature Medicine, 2018, 24(12):1919-1929.

DOI PMID

[13]
WANG H J, WANG X M, QI D M, et al. Establishment of the circadian metabolic phenotype strategy in spontaneously hypertensive rats:a dynamic metabolomics study[J]. Journal of Translational Medicine, 2020, 18(1):38.

DOI

[14]
曾严, 危当恒, 曾高峰. 琥珀酸与动脉粥样硬化的研究进展[J]. 中国动脉硬化杂志, 2022, 30(1):83-87.

ZENG Y, WEI D H, ZENG G F. Research progress of succinate and atherosclerosis[J]. Chinese Journal of Arteriosclerosis, 2022, 30(1):83-87. (in Chinese)

[15]
BROSKEY N T, ZOU K, DOHM G L, et al. Plasma lactate as a marker for metabolic health[J]. Exercise and Sport Sciences Reviews, 2020, 48(3):119-124.

DOI PMID

[16]
LIN Y J, BAI M J, WANG S, et al. Lactate is a key mediator that links obesity to insulin resistance via modulating cytokine production from adipose tissue[J]. Diabetes, 2022, 71(4):637-652.

DOI PMID

[17]
ZHANG D, TANG Z Y, HUANG H, et al. Metabolic regulation of gene expression by histone lactylation[J]. Nature, 2019, 574(7779):575-580.

DOI

[18]
DAI X F, LV X Y, THOMPSON E W, et al. Histone lactylation:epigenetic mark of glycolytic switch[J]. Trends in Genetics, 2022, 38(2):124-127.

DOI

[19]
YANG K, FAN M, WANG X H, et al. Lactate promotes macrophage HMGB1 lactylation,acetylation,and exosomal release in polymicrobial sepsis[J]. Cell Death and Differentiation, 2022, 29(1):133-146.

DOI

[20]
WANG T, XU Y Q, YUAN Y X, et al. Succinate induces skeletal muscle fiber remodeling via SUNCR1 signaling[J]. EMBO Reports, 2019, 20(9):e47892.

[21]
MILLS E L, PIERCE K A, JEDRYCHOWSKI M P, et al. Accumulation of succinate controls activation of adipose tissue thermogenesis[J]. Nature, 2018, 560(7716):102-106.

DOI

[22]
LIU X D, CHEN Y T, ZHAO L, et al. Dietary succinate supplementation to maternal mice improves fetal brown adipose tissue development and thermogenesis of female offspring[J]. The Journal of Nutritional Biochemistry, 2022, 100:108908.

DOI

[23]
CHI Z, WANG Z P, WANG G Y, et al. Microbial biosynthesis and secretion of L-malic acid and its applications[J]. Critical Reviews in Biotechnology, 2016, 36(1):99-107.

DOI

[24]
ZHANG X, CHEN M X, YAN E F, et al. Dietary malic acid supplementation induces skeletal muscle fiber-type transition of weaned piglets and further improves meat quality of finishing Pigs[J]. Frontiers in Nutrition, 2022, 8:825495.

DOI

[25]
CHERRINGTON A D. Banting lecture 1997.Control of glucose uptake and release by the liver in vivo[J]. Diabetes, 1999, 48(5):1198-1214.

DOI

[26]
MOORE M C, COATE K C, WINNICK J J, et al. Regulation of hepatic glucose uptake and storage in vivo[J]. Advances in Nutrition, 2012, 3(3):286-294.

DOI

[27]
ALBERS P H, PEDERSEN A J T, BIRK J B, et al. Human muscle fiber type-specific insulin signaling:impact of obesity and type 2 diabetes[J]. Diabetes, 2015, 64(2):485-497.

DOI

[28]
BLACKWOOD S J, HORWATH O, MOBERG M, et al. Extreme variations in muscle fiber composition enable detection of insulin resistance and excessive insulin secretion[J]. The Journal of Clinical Endocrinology & Metabolism, 2022, 107(7):e2729-e2737.

DOI

[29]
FISHER G, WINDHAM S T, GRIFFIN P, et al. Associations of human skeletal muscle fiber type and insulin sensitivity,blood lipids,and vascular hemodynamics in a cohort of premenopausal women[J]. European Journal of Applied Physiology, 2017, 117(7):1413-1422.

DOI

[30]
YUAN Y X, XU P W, JIANG Q Y, et al. Exercise-induced α-ketoglutaric acid stimulates muscle hypertrophy and fat loss through OXGR1-dependent adrenal activation[J]. EMBO Journal, 2020, 39(7):e103304.

[31]
YUAN Y X, ZHU C J, WANG Y L, et al. α-ketoglutaric acid ameliorates hyperglycemia in diabetes by inhibiting hepatic gluconeogenesis via serpina1e signaling[J]. Science Advances, 2022, 8(18):eabn2879.

DOI

[32]
TIAN Q Y, ZHAO J X, YANG Q Y, et al. Dietary alpha-ketoglutarate promotes beige adipogenesis and prevents obesity in middle-aged mice[J]. Aging Cell, 2020, 19(1):e13059.

[33]
LIU Y S, ZHANG Y Y, LI J L, et al. Growth performance,carcass traits and digestive function of broiler chickens fed diets with graded levels of corn resistant starch[J]. British Poultry Science, 2020, 61(2):146-155.

DOI

[34]
ZHENG X J, CHEN T L, JIANG R Q, et al. Hyocholic acid species improve glucose homeostasis through a distinct TGR5 and FXR signaling mechanism[J]. Cell Metabolism, 2021, 33(4):791-803.e7.

DOI PMID

[35]
BROOM L J, KOGUT M H. Inflammation:friend or foe for animal production?[J]. Poultry Science, 2018, 97(2):510-514.

DOI

[36]
SHANG Y, KUMAR S, OAKLEY B, et al. Chicken gut microbiota:importance and detection technology[J]. Frontiers in Veterinary Science, 2018, 5:254.

DOI

[37]
LI X, MAO M Y, ZHANG Y N, et al. Succinate modulates intestinal barrier function and inflammation response in pigs[J]. Biomolecules, 2019, 9(9):486.

DOI

[38]
ZHOU X H, LIU Y H, XIONG X, et al. Intestinal accumulation of microbiota-produced succinate caused by loss of microRNAs leads to diarrhea in weanling piglets[J]. Gut Microbes, 2022, 14(1):2091369.

DOI

[39]
张鹏光, 闫恩法, 王黎琦, 等. L-苹果酸对断奶仔猪炎症反应和肠道健康的影响[J/OL]. 畜牧兽医学报:1-9.(2022-04-29)[2022-09-15]http://kns.cnki.net/kcms/detail/11.1985.S.20220429.1133.004.html.

ZHANG P G, YAN E F, WANG L Q, et al. Effects of dietary supplementation of L-malic acid on inflammatory response and intestinal health status in weaned piglets[J/OL]. Acta Veterinaria et Zootechnica Sinica:1-9.(2022-04-29)[2022-09-15]http://kns.cnki.net/kcms/detail/11.1985.S.20220429.1133.004.html. (in Chinese)

[40]
CHEN Q, GAO L L, LI J N, et al. α-ketoglutarate improves meiotic maturation of porcine oocytes and promotes the development of PA embryos,potentially by reducing oxidative stress through the Nrf2 pathway[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:7113793.

[41]
HE L Q, ZHOU X H, HUANG N, et al. Administration of alpha-ketoglutarate improves epithelial restitution under stress injury in early-weaning piglets[J]. Oncotarget, 2017, 8(54):91965-91978.

DOI PMID

[42]
HE L Q, LI H, HUANG N, et al. Effects of alpha-ketoglutarate on glutamine metabolism in piglet enterocytes in vivo and in vitro[J]. Journal of Agricultural and Food Chemistry, 2016, 64(13):2668-2673.

DOI

[43]
ZHAO L, GUO H L, SUN H. Effects of low-protein diet supplementation with alpha-ketoglutarate on growth performance,nitrogen metabolism and mTOR signalling pathway of skeletal muscle in piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(1):300-309.

DOI

[44]
JIANG Q, ADEBOWALE T O, TIAN J Q, et al. Effects of maternal alpha-ketoglutarate supplementation during lactation on the performance of lactating sows and suckling piglets[J]. Archives of Animal Nutrition, 2019, 73(6):457-471.

DOI PMID

[45]
张鑫, 王宇波, 黄志清, 等. 猪肉品质营养调控的研究进展[J]. 动物营养学报, 2020, 32(10):4555-4564.

DOI

ZHANG X, WANG Y B, HUANG Z Q, et al. Research progress of nutritional regulation for meat quality of pigs[J]. Chinese Journal of Animal Nutrition, 2020, 32(10):4555-4564. (in Chinese)

[46]
YAN E F, WANG Y B, HE L J, et al. Effects of dietary L-malic acid supplementation on meat quality,antioxidant capacity and muscle fiber characteristics of finishing pigs[J]. Foods, 2022, 11(21):3335.

DOI

[47]
CHEN J S, ZHANG H H, GAO H, et al. Effects of dietary supplementation of alpha-ketoglutarate in a low-protein diet on fatty acid composition and lipid metabolism related gene expression in muscles of growing pigs[J]. Animals:an Open Access Journal From MDPI, 2019, 9(10):838.

[48]
MUNIYAPPAN M, PALANISAMY T, KIM I H. Effect of microencapsulated organic acids on growth performance,nutrient digestibility,blood profile,fecal gas emission,fecal microbial,and meat-carcass grade quality of growing-finishing pigs[J]. Livestock Science, 2021, 252:104658.

DOI

Outlines

/