REVIEW

Effects and Mechanisms of Low-Molecular-Weight Organic Acid on Disease Resistance and Nutrition of Livestock and Poultry

  • LIU Baiheng , 1 ,
  • XU Yihao 1 ,
  • CHEN Song 2 ,
  • SONG Daijun , 1, *
Expand
  • 1 College of Animal Science and Technology, Southwest University, Beibei 400716, China
  • 2 Biotechnology Research Center, Southwest University, Beibei 400716, China
*associate professor, E-mail:

Received date: 2022-10-21

  Online published: 2023-05-11

Abstract

The problem of drug resistance of pathogenic microorganisms and drug residues in livestock and poultry products caused by long-term feeding antibiotics is becoming more and more serious. Low-molecular-weight organic acid (LOA) has a variety of disease resistant and nutritional functions, such as anti-bacterial, immune regulation and growth promotion, and is an important acidifier to replace antibiotics. In this paper, the nutritional characteristics, disease resistant functions, mechanisms and measures for improving disease resistant and nutritional efficacy of LOA were reviewed in order to provide reference for further research of its disease resistant nutritional functions.

Cite this article

LIU Baiheng , XU Yihao , CHEN Song , SONG Daijun . Effects and Mechanisms of Low-Molecular-Weight Organic Acid on Disease Resistance and Nutrition of Livestock and Poultry[J]. Chinese Journal of Animal Nutrition, 2023 , 35(5) : 2765 -2776 . DOI: 10.12418/CJAN2023.259

从20世纪中叶以来,抗生素一直作为畜禽生产中的重要生长促进剂被广泛使用。随着长期饲用,抗生素的弊端逐渐凸现,公众对于食品安全问题的高度关注促进了寻找抗生素替代品的研究[1]。酸化剂作为抗生素的替代品,已经在实践中使用了数十年,其效果得到了广泛的认可[2-3],目前酸化剂由单一酸制剂化合物和复合酸制剂化合物构成,其主体是有机酸。根据有机酸之间化学成分和形式、解离常数(pKa)、分子质量等的不同,它们之间的作用效果也存在差异[4]。小分子有机酸(LOA)是一种倍受关注的有机酸化剂,有着比大分子有机酸化剂更强的抗病营养功能,可通过改善畜禽的肠道健康,增强机体抗病力和提高畜禽生产力[2,5]。本文对LOA的营养特性、抗病作用效果、作用机理和改进抗病营养功效的措施进行了综述。

1 LOA的抗病营养特性

LOA以甲酸、乙酸和丙酸等为代表,对畜禽有着极强的抗病营养性能。其抗病营养性能主要表现为对肠道致病菌的抗菌性和对肠道免疫系统的调控。LOA具有广泛的抗菌活性,能通过降低消化道pH和直接作用于病原菌的方式,抑制病原菌入侵和定植[6]。有机酸的直接抗菌效果与其本身的分子质量和解离度相关,单位重量下酸的解离程度越低,分子质量越小,抗菌效果越强。大分子有机酸如柠檬酸、富马酸等因解离程度较高和相对分子质量较大,抗菌效果较差;甲酸、乙酸等LOA的解离度较低和相对分子质量较小,在单位重量下能发挥更强的抗菌效果,有利于调控肠道菌群结构,提高畜禽抗病力,这已在许多研究中得到了印证[4,7]
近年来有大量研究表明,LOA能通过多种不同的下游调控机制,改善宿主肠道免疫系统,增强机体抗病力。未被肠道菌群利用的LOA可通过激活特定的细胞信号通路,影响肠道内免疫细胞和肠上皮细胞(intestinal epithelial cells,IECs)的增殖、分化和基因表达,并促进抗菌肽(antimicrobial peptides,AMPs)分泌[8]。大分子有机酸与LOA相比,在免疫调控方面的研究较少,更多情况下是直接作为代谢的中间产物,参与机体代谢[9-10]
但是,LOA具有强烈的刺激性气味和腐蚀性,提高存储和运输成本,并降低饲料适口性和畜禽采食量。因此,在实际生产中常通过将LOA转化为盐的方式,降低腐蚀性和刺激性气味[11]。常见的LOA及其理化性质如表1所示。
表1 常见的LOA及其理化性质

Table 1 Common low-molecular-weight organic acids and their physicochemical properties[12]

种类
Species
化学式
Chemical
formula
解离常数
pKa
相对分子质量
Relative molecular
mass
气味
Odour
物理形态
Physical
form
腐蚀率
Corrosiveness
rate
甲酸 Formic HCOOH 3.75 46.03 刺激性气味 液体 +++
乙酸 Acetic CH3COOH 4.76 60.05 刺激性气味 液体 +++
丙酸 Propionic CH3CH2COOH 4.88 74.08 刺激性气味 油性液体 ++
丁酸 Butyric CH3CH2CH2COOH 4.81 88.12 腐臭 油性液体 +

+++:高;++:中;+:低。

+++:high;++:medium;+:low.

2 LOA在畜禽抗病营养中的作用效果

LOA作为酸化剂,具有降低肠道致病菌数量、提高肠道免疫功能、增强畜禽生长性能的效果。Adhikari等[6]在肉鸡上研究发现,饲粮添加0.9%甲酸和甲酸钠的混合物可显著降低沙门氏菌在消化道中的定植,降低死亡率,改善了感染伤寒沙门氏菌肉鸡的生长性能。Dai等[13]分别对比了饲粮添加量为0.3%(0~21日龄)和0.2%(22~42日龄)的甲酸、乙酸和丙酸混合物组与5 mg/kg的黄霉素抗生素组对肉鸡的影响,发现LOA使肉鸡平均日增重(ADG)显著提高3.5%,封闭蛋白(Claudin)-3与闭锁小带蛋白(ZO)-1的mRNA表达和回肠绒毛高度均显著提高,密闭蛋白(Occludin)的表达量也呈上升趋势;同时,厚壁菌门与拟杆菌门的比例显著提高,产生短链脂肪酸的瘤胃球菌科、克里斯滕内尔科和乳球菌科富集,改善了畜禽的营养利用率,显著提高了盲肠组织中丁酸的含量;而抗生素在促生长方面的功效与LOA相比,并未有显著差异,仅提高了Claudin-2的mRNA表达,降低了厚壁菌门和乳杆菌的丰度,对肠道免疫产生了负面影响。Ma等[14]进行了类似的研究,其试验结果表明,在肉鸡饲粮中添加0.3%以甲酸、乙酸和丙酸为主的LOA混合添加剂,在22~42日龄,ADG和饲料转化率(FCR)分别显著提高11.9%和9.3%,并在42日龄时观察到十二指肠和回肠的绒毛高度与隐窝深度的比值分别显著提高1.46与1.81;但这些在1~21日龄期间差异不显著,说明LOA的促生长作用发挥依赖于动物的生长阶段。其原因可能是动物处于生长阶段时,肠道功能趋于完善,对营养物质的消化吸收能力增强,可以有效地吸收和利用LOA,提高营养物质的消化率和生长性能。Ren等[15]在感染产肠毒素大肠杆菌(ETEC)的断奶仔猪饲粮中添加1%的甲酸与丙酸混合物,发现仔猪腹泻评分与直肠温度显著降低,在感染24与48 h时,血浆中白细胞介素(interleukin,IL)-1β浓度分别下降46.4%与39.1%,IL-6与肿瘤坏死因子(tumor necrosis factor,TNF)-α在感染9 h时分别降低25.3%与39.3%,干扰素(interferon,IFN)-γ在24 h时也降低了51.7%,腹泻与炎症情况得到改善。另一项研究发现,0.6%甲酸对感染ETEC的仔猪存在积极影响,其下调了回肠IL-6的mRNA表达,厚壁菌相对丰度从48.09%增加到57.60%,并显著提高空肠绒毛高度,显著降低仔猪腹泻评分,但对直肠温度的降低并不显著,这可能是由于甲酸对相关信号通路的激活能力相对于丙酸较弱,对炎症相关细胞因子的影响有限[16]。Xiang等[17]研究表明,在断奶仔猪饮水中添加以0.2%甲酸为主的LOA混合物,在试验第1~14天采食量增加10.9%,体增重提高13%,试验全期血清中超氧化物歧化酶(superoxide dismutase,SOD)活性提高13.5%,丙二醛(malondialdehyde,MDA)含量显著降低45.7%,宿主AMPs和紧密连接蛋白(tight junction protein,TJP)家族mRNA表达水平提高,同时提高了与抗菌和缓解炎症有关的黏液真杆菌属的丰度,降低了可代谢黏蛋白(mucoprotein,MUC)并诱导促炎细胞因子的多尔氏菌属的丰度,维护了肠道健康。表2总结了LOA对畜禽产生的积极影响。综上所述,LOA可以有效提高畜禽生长性能,调控肠道菌群,改善肠道形态,维护肠道屏障完整性,抑制炎症发生,增强畜禽抗病力。
表2 LOA对畜禽生长性能和肠道健康的影响

Table 2 Effects of low-molecular-weight organic acid on growth performance and intestinal health of livestock and poultry

动物
Animals
种类
Species
剂量
Dose/%
生长性能
Growth performance
肠道健康
Intestinal health
参考文献
References
肉鸡
Broiler
甲酸+甲酸钠 0.9 饲料转化率提高;伤寒沙门氏菌导致的
死亡率降低5.63%
显著降低伤寒沙门氏菌的肠道定植 Adhikari等[6]
肉鸡
Broiler
甲酸+乙酸+丙酸 0.3 平均日增重提高3.5%,显著提高在
22~42日龄的生长性能
空肠杯状细胞密度和回肠绒毛高度增加,
Claudin-3和ZO-1的mRNA表达显著上调,厚壁菌门
与拟杆菌门的比值显著提高,产生短链脂肪酸的瘤胃球
菌科、克里斯滕内尔科和乳球菌科富集
Dai等[13]
肉鸡
Broiler
甲酸+乙酸+丙酸 0.3 22~42日龄平均日增重提高11.9%,饲料转
化率提高9.3%;1~42日龄平均日增重提高
11.4%,饲料转化率提高8.6%
42日龄时十二指肠和回肠的绒毛高度与隐窝
深度的比值分别提高1.46与1.81
Ma等[14]
肉鸡
Broiler
甲酸+甲酸铵+丙酸 0.3 42日龄时胰腺淀粉酶活性显著提高 十二指肠的pH呈线性显著降低,十二指肠中
Claudin-1、ZO-1和Claudin-2,空肠中Claudin-1、
Claudin-2,回肠中OccludinClaudin-2、ZO-2的相对表
达上升,盲肠微生物区系的丰度显著增加
Ma等[18]
蛋鸡
Laying hen
丁酸钠 0.05 蛋鸡产蛋率提高3.33%,第4周的哈氏
单位、第8周的蛋壳强度、哈氏单位和蛋
白高度均显著提升
绒毛高度与隐窝深度的比值提高0.74,
空肠ZO-1和Occludin表达上调;回肠
Claudin-1、OccludinZO-2表达上调
Miao等[19]
仔猪
Piglet
甲酸 0.6 显著减少产肠毒素大肠杆菌引起的腹泻 回肠IL-6的mRNA表达下调,厚壁菌
相对丰度增加9.51%,空肠绒毛高度显著提高
Ren等[16]
仔猪
Piglet
甲酸+丙酸 1 显著减少产肠毒素大肠杆菌引起的腹泻 血浆IL-1β含量在24 h时降低46.4%,在48 h时
降低39.1%,IL-6与TNF-α含量在9 h时分别降
低25.3%与39.3%,IFN-γ含量在24 h时降低了51.7%
Ren等[15]
仔猪
Piglet
主要为甲酸 0.2 试验第1~14天采食量增加10.9%,
体增重提高13%,第1~49天体
增重提高4.3%
血清中SOD活性提高13.5%,MDA含量显著降
低45.7%;黏液真杆菌属丰度增加,多尔氏菌属丰度降
低;在第14天与第49天,增加PBD1、PBD2、NPG1和
NPG3和Claudin-1的空肠mRNA表达水平;降低
IL-1β和IL-2 mRNA表达水平。
Xiang等[17]
母猪
Sow
丁酸钠 0.1 平均日采食量提高17.3%,断奶发情间隔缩短
18.1%,断奶仔猪存活率提高9.3%,仔猪腹泻发病
率降低8.4%,初乳中脂肪含量提升0.42%,蛋白质含量
提升4.6%,仔猪血浆中的IgA、IgG、IgM含量极显著提升
显著提高隐窝深度,22日龄哺乳仔猪结肠黏膜
TJP的mRNA表达水平显著上升,炎性细胞
因子mRNA表达水平显著下调
Chen等[20]

claudin:封闭蛋白;ZO:闭锁小带蛋白 zonula occluden;occludin:密闭蛋白;IL:白细胞介素 interleukin;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IFN-γ:干扰素-γ interferon-γ;SOD:超氧化物歧化酶 superoxide dismutase;MDA:丙二醛malonaldehyde;Ig:免疫球蛋白 immune globulin;TJP:紧密连接蛋白 tight junction protein。

所有值均与对照组进行计算对比。All values are calculated and compared with the control group.

3 LOA的抗病营养作用机理

3.1 LOA的抗菌作用

以前的研究认为,酸化剂主要是通过解离释放氢离子,以降低消化道pH的方式,实现对肠道菌群的调控[21]。由于有益菌的耐酸性普遍强于有害菌,在消化道pH下降的情况下,有害菌的生长繁殖受阻,有益菌的生长不受影响。
但是,这并不能完全解释LOA的抗菌机理。已有研究表明,LOA的抗菌作用并不完全依赖于pH变化,例如LOA的盐能在不降低环境pH的情况下,发挥与LOA相似的抗菌效果[6]
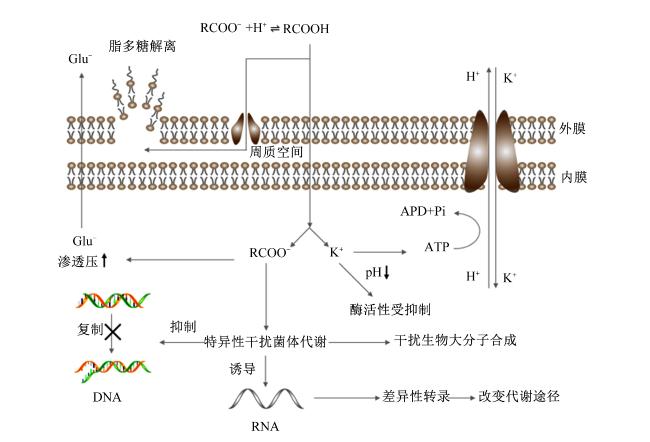
近年来,对LOA抗菌机制的研究有了新的进展。研究表明,LOA的抗菌作用并不仅归因于对消化道pH降低,更在于其能从细胞水平上阻止病原菌生存[8,22]。如图1所示,LOA在细胞水平上的抗菌作用主要通过对革兰氏阴性细菌细胞壁的透化和对菌体内部生长代谢的干扰来实现。
图1 LOA的抗菌作用机制

Glu:谷氨酸 glutamic acid;ATP:三磷酸腺苷 adenosine triphosphate;ADP:二磷酸腺苷 adenosine diphosphate;DNA:脱氧核糖核酸 deoxyribonucleic acid;RNA:核糖核酸 ribonucleic acid。

Fig.1 Antibacterial mechanism of low-molecular-weight organic acid[8,12]

3.1.1 透化细胞外膜

LOA在进入消化道后,会因消化道内偏中性的pH而发生解离,降低环境的pH,直到使环境pH与LOA的pKa相同,此时,LOA处于离子态和分子态的动态平衡中[12]。其中,处于分子态的有机酸是抗菌功能的主要承担者。
革兰氏阴性菌的细胞壁含有大量具有防御作用的脂多糖(LPS),可以有效阻止大分子有机酸进入菌体内部[23-24]。分子态LOA有着较强的亲脂性,不但能够通过自由扩散进入细菌内部,而且可由细菌外膜上的孔道蛋白进入周质空间,质子化细菌外膜的脂多糖羧基和磷酸基,使外膜逐渐裂解,削弱细菌防御力与破坏细菌完整性,导致细菌死亡,达成抗菌目的[25]

3.1.2 干扰菌体代谢

LOA对菌体代谢的干扰,主要是通过酸分子在菌体细胞内解离来实现。LOA的相对分子质量小,单位质量下可以有更多的酸分子进入菌体内部。研究表明,酸分子一旦进入细菌,就会因胞质pH接近中性(pH=7)而解离,释放出氢离子和酸根阴离子[12]
LOA在胞内解离出的氢离子无法通过自由扩散的方式转运至细胞外,会在细菌内部大量累积,导致胞内pH下降。过高的酸性会抑制细菌体内一系列生理功能的正常运转,酸敏感蛋白和DNA发生变性,以酶为基础的微生物代谢趋于下降[4]。同时,LOA可通过解偶联氧化磷酸化进一步阻止能量产生。在细菌中,内膜上的ATP合成酶可利用由电子传输链产生的跨膜质子梯度和膜电位,将ADP转化为ATP。当胞内氢离子浓度因LOA的解离而上升时,跨膜质子梯度遭到破坏,电子传输链产生的势能作为热量消散,ATP合成酶无法继续工作,最终导致细胞产能下降[26]。不能耐受跨膜质子梯度变化的细菌,如大肠杆菌、沙门氏菌和弯曲杆菌,将经受细胞应激,最终死亡。为维持环境稳态,细菌需通过H+-ATP酶将H+转运至细胞外。H+的排出会消耗大量ATP,减少细菌正常生长和新陈代谢所需的能量,最终可能导致细胞因能量不足而死亡[8]
Russell等[27]证明了阴离子在胞内的不断累积是LOA发挥抗菌能力的主要方式。据目前研究表明,阴离子具有疏脂性,无法自由穿过细胞膜。阴离子在菌体内部的不断富集会升高渗透压,改变胞内环境。细菌为维持渗透压平衡,需将带有同种电荷的谷氨酸等排出菌体细胞外,导致细菌的正常生长所需的前体物质不足[28]。但是,在菌体将阴离子排出时,膜转运蛋白泵也会将钾离子转运至胞内,增加胞内渗透压,致使细胞膜负荷过重而破裂,细菌死亡。例如,Roe等[28]研究表明,在大肠杆菌的培养基中添加乙酸,会导致胞内谷氨酸水平下降,细菌生长速率降低。
除了上述的一般阴离子效应外,不同阴离子还可以通过其特异性效应对细菌代谢产生干扰,导致细菌代谢相关基因发生差异性转录并影响蛋白合成。研究表明,在大肠杆菌培养环境中添加乙酸,甲硫氨酸的生物合成会受到抑制,细胞中高浓度的乙酸根离子会特异性地抑制甲硫氨酸合酶的活性,从而导致有毒中间产物同型半胱氨酸的积累,致使细菌死亡[28-30]。在福氏志贺氏菌的培养基中添加乙酸,可以显著抑制细菌对葡萄糖的吸收,降低葡萄糖利用效率,破坏糖代谢,减少产能[31]。甲酸胁迫可诱导酿酒酵母发生氧化应激,抑制蛋白质生物合成,使细胞经历自噬[32]。Kang等[33]也发现,随着生长环境中乙酸的增加,副干酪乳杆菌HD1.7的氨基酸代谢、嘌呤和嘧啶代谢的相关基因表达发生改变,脯氨酸、嘌呤和嘧啶的生物合成减弱,生长受阻。同时,与生物膜合成的相关基因也会受到影响,目前已有研究发现,乙酸的存在会抑制食源性病原体(如大肠杆菌或鼠伤寒沙门氏菌)中胞外多糖的产生,从而影响细菌生物膜的形成[34]。除了在蛋白质和转录水平进行影响外,LOA还能对DNA合成产生干扰。例如,Türko g ˇlu等[35]表明,丙酸根离子会抑制DNA合成,改变有丝分裂的时间。Jacobson等[36]的研究也证实了这一观点,他们通过对鼠伤寒沙门氏菌细胞进行体外培养,发现加入外源性的丙酸能延长第1次细胞分裂的时间,并降低指数生长期间的瞬时延伸率。

3.2 LOA对肠道免疫系统的调节

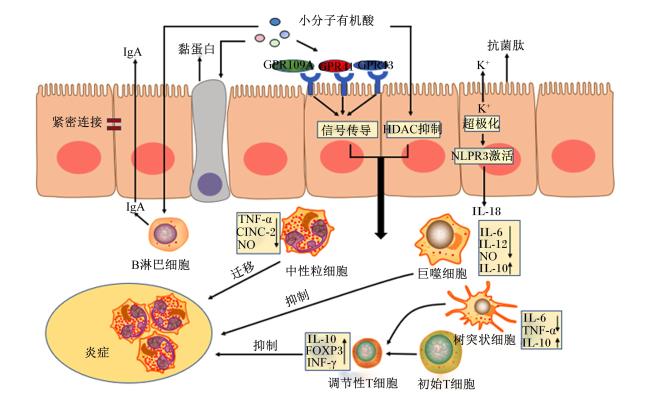
肠道是机体最大的免疫器官,具有大量的免疫细胞。LOA可以通过影响IECs和免疫细胞,调控宿主免疫系统。如图2所示,LOA对宿主免疫系统的调节有2种主要机制:一种机制是LOA作为一种信号分子与G蛋白偶联受体(G-protein coupled receptors,GPCRs)结合,调节宿主生理功能,另一种机制则是LOA直接抑制组蛋白去乙酰化酶(histone deacetylase,HDAC)活性,调节基因表达[5]
图2 LOA对肠道免疫功能的调节机制

IgA:免疫球蛋白A immunoglobulin A;GPR:G蛋白偶联受体 G-protein-coupled receptors;HDAC:组蛋白去乙酰化酶 histone deacetylase;NLPR3:核苷酸结合寡聚化结构域样受体蛋白3 nucleotide binding oligomerization domain-like receptor protein;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL:白细胞介素 interleukin;CINC-2:中性粒细胞趋化因子-2 cytokine-induced neutrophil chemoattractants-2;NO:一氧化氮 nitric oxide;FOXP3: 叉头样转录因子3 forkhead box P3; INF-γ:干扰素-γ interferon-γ。

Fig.2 Regulatory mechanism of low-molecular-weight organic acid on intestinal immune function[5,8,37]

3.2.1 GPCRs调控途径

GPCRs是最大和最多样化的跨膜蛋白家族,在调节肠道内稳态和调控机体免疫上有着重要作用。LOA可与IECs和免疫细胞上的GPCRs结合,激活相关的免疫调控途径。LOA主要激活的GPCRs分别为G蛋白偶联受体41(GPR41)、G蛋白偶联受体43(GPR43)和G蛋白偶联受体109A(GPR109A)。Macia等[38]研究表明,LOA以GPR109A和GPR43依赖的方式促进IECs的钾离子流出并诱导膜超极化,激活炎症小体途径,提高IL-18的产生,促进上皮修复和防止发生结肠炎。Takakuwa等[39]发现,丁酸可诱导小肠Paneth细胞分泌α-防御素,但在GPR41拮抗剂干扰下,观察到α-防御素水平显著降低,表明Paneth细胞通过GPR41识别丁酸并分泌α-防御素作为响应。Zhao等[40]也发现LOA可依赖于GPR43,诱导IECs分泌Reg Ⅲ γ和β-防御素。这证明LOA可通过GPCRs调控AMPs的产生。在免疫系统中,LOA可以激活GPCRs在T细胞、中性粒细胞和树突状细胞(dendritic cells,DCs)等多种类型细胞上的表达,增强机体免疫功能。调节性T细胞(regulator T cells,Tregs)是一类控制体内自身免疫反应的T细胞亚群。经研究发现,LOA可促进Tregs的增殖分化[41]。其潜在的机制可能是LOA可在GPR43介导下提高Tregs中叉头样转录因子3(forkhead box P3,FOXP3)和IL-10的表达;GPR109A在丁酸刺激下,也可激活IECs、DCs和巨噬细胞中的炎症小体途径,导致IECs产生IL-18,巨噬细胞和DCs产生IL-10,且IL-10进一步促进Tregs分化[42]。Chen等[43]的试验得到了相似的结论,他们发现丁酸钠不能改善GPCR109A-/-小鼠TNBS诱导的结肠炎,但对野生型小鼠的炎症反应和肠上皮屏障功能障碍起到了显著的改善作用,表明丁酸钠可通过激活GPR109A调控肠道免疫,增强机体抗病力。Tian等[44]研究表明,丙酸能与GPR43结合,诱导颗粒
酶B的产生来稳定B细胞中IL-10 mRNA的表达,提高IL-10水平。Wu等[45]研究发现,乙酸能通过GPR43调控B细胞分泌IgA,且在GPR43介导下,乙酸能调控细胞因子的产生和中性粒细胞的募集,缓解细菌感染引起的炎症损伤。此外,也有研究表明,LOA可作为GPR43激活剂,促进ILC3先天性淋巴细胞的增殖,并上调IL-22的表达,维持肠上皮屏障健康[46]

3.2.2 HDAC调控途径

LOA可以凭借极小的尺寸进入细胞核,通过对HDAC抑制程度的变化,改变核小体结构,有效提高基因的转录,促使特定基因表达,诱导Tregs分化[47-48],并抑制中性粒细胞[49]和巨噬细胞[50]等免疫细胞造成的炎症。Xiang等[17]在18日龄的断奶仔猪饮用水中添加了甲酸和乙酸,观察到第14天空肠mRNA水平上宿主防御肽PBD1、PBD2、NPG1和NPG3的表达显著增加。其机制可能为LOA作为HDAC抑制剂,能通过调节组蛋白修饰,诱导IECs产生AMPs[51-52]。Furusawa等[53]研究发现,在肠腔内,丁酸等LOA的含量与结肠中Tregs数量呈正相关,并且丁酸可在体外及体内诱导Tregs分化,缓解小鼠的结肠炎。这可能是LOA抑制HDAC,上调了FOXP3基因的表达,从而促进Tregs分化。Yang等[54]研究证明,LOA能通过组蛋白修饰增加芳基烃受体和缺氧诱导因子1α表达,增加缺氧诱导因子1α与IL-22启动子的结合,促进IL-22生成,从而保护肠道免受炎症。Park等[55]表明,LOA通过抑制HDAC,特别是HDAC6和HDAC9的表达,调节哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)与转录活化因子(signal transducer and activator of transcription,STAT)通路,促进T细胞分化为Tregs。mTOR-S6K和STAT3通路的激活能促进Th17、Th1、FoxP3+Tregs和IL-10+Tregs细胞分化,并提高INF-γ、IL-10与IL-17的分泌,抑制效应T细胞的促炎细胞因子释放,增强机体的抗病力。Vinolo等[49]观察到LOA可通过抑制TNF-α、中性粒细胞趋化因子(cytokine-induced neutrophil chemoattractants,CINC)-2和诱导型一氧化氮合酶mRNA的表达,减少中性粒细胞中LPS诱导的TNF-α、CINC-2和NO的产生,且该现象存在剂量依赖性;再以HDAC活性的有效抑制剂曲古抑菌素A(TSA)做对照试验,发现25 nmol/L的TSA也可显著减少LPS刺激的中性粒细胞产生TNF-α、CINC-2αβ和NO。这表明抑制HDAC活性可能是LOA调节中性粒细胞炎症介质表达的机制之一。Chang等[56]以TSA和正丁酸在巨噬细胞上进行了相似的试验,他们在分别用正丁酸和TSA处理巨噬细胞后,均观察到LPS诱导的促炎介质NO、IL-6和IL-12的水平显著下降,且不影响TNF-α和单核细胞趋化蛋白-1的分泌,表明丁酸主要通过抑制HDAC下调巨噬细胞促炎因子表达。此外,Schulthess等[50]也证明了丁酸可通过抑制HDAC3,在不影响炎症细胞因子生成的情况下诱导具有强抗菌性的稳态巨噬细胞的分化,并降低其炎症潜能,促进肠道内稳态。

3.2.3 其他机制

LOA可维护肠道化学屏障和机械屏障,促进上皮细胞增殖、分化,减少细胞凋亡,增强宿主抗病力。肠道化学屏障主要由一层覆盖在肠上皮细胞上的黏液组成,在维持肠道屏障功能方面发挥着重要作用。由杯状细胞合成和分泌的MUC是化学屏障的主要成分[5]。LOA能激活上皮杯状细胞MUC1、MUC2、MUC3和MUC4的基因表达,促进MUC分泌[8]。Diao等[57]发现以丁酸对断奶仔猪灌胃后,凋亡基因BaxCaspase-3的表达下调,肠道MUC1和MUC2基因的表达上调。由此推断,LOA能够在转录水平上调MUC分泌,从而影响肠化学屏障。
LOA还可能通过与TJP,如ZO-1、ZO-2和ZO-3、Occludin和Claudin等的协同作用,降低肠道通透性并维持肠道机械屏障的稳定性。Saleri等[58]探索了体外补充不同浓度的乙酸、丙酸和丁酸对TJP的作用,结果表明,发现乙酸和丙酸分别可在5和1 mmol/L下通过claudin-4激活屏障反应。此外,丁酸也可在0.5~1.0 mmol/L时对屏障保护起主要作用。在断奶仔猪肠屏障模型中胃内灌注LOA混合物,观察到十二指肠和回肠中OccludinClaudin-1的mRNA丰度增加,从而积极改善肠道机械屏障[57]。虽然LOA增强紧密连接功能的潜在机制尚不清楚,但一项研究表明,肌球蛋白轻链激酶可能在其调节紧密连接中发挥重要作用[59]。同时,也有报道称LOA可作为HDAC抑制剂,提高结肠上皮细胞和小肠上皮细胞中的跨上皮电阻,抑制炎症小体过度激活,促进TJP形成,防止机械屏障受损[52,60]。总之,LOA对肠道机械屏障的调节主要是通过促进相关连接紧密蛋白的基因表达,从而降低肠道通透性,改善畜禽的肠道屏障功能。

4 LOA抗病性能的改进措施

4.1 选择适宜的种类和确定合理用量

根据LOA种类和剂量的不同,其发挥的抗病效力存在差异。Kovanda等[7]的试验表明,丁酸对大肠杆菌和鼠伤寒沙门氏菌的最小抗菌浓度分别为2 300和2 500 mg/L。此外,他们还证明了甲酸钠仅对空肠弯曲菌、产气荚膜梭菌、猪链球菌和肺炎链球菌菌株有抑制作用,对大肠杆菌、鼠伤寒沙门菌或粪肠球菌没有抑制作用;而甲酸及甲酸盐的混合物比单一甲酸钠具有更广泛的抗菌谱和更强的抗菌效果。Vinolo等[49]表明,不同LOA对LPS刺激的中性粒细胞产生促炎因子的抑制效力存在差异;试验证明,乙酸对促炎因子的产生没有影响,而0.4 mmoL/L丁酸和4 mmoL/L丙酸能显著降低中性粒细胞TNF-α和CINC-2αβ的分泌。Nielsen等[61]结果表明,浓度在1~10 mmol/L的丁酸钠通过增加MUC2的表达水平显著改善了E12人结肠细胞的上皮屏障功能。然而,在50~100 mmol/L,它对MUC2表达模式没有显示出有益的影响,这可能是由于在较高剂量下丁酸诱导了细胞凋亡。在实际的畜禽养殖中,对LOA的种类和剂量进行合理的搭配,能够降低LOA的添加量,在增强机体抗病力的同时减少成本。

4.2 LOA与其他饲料添加剂的协同效应

LOA在与不同饲料添加剂共同使用时存在协同效应,从而使这种混合物的作用比其单个组分更有效,在整个消化道上发挥积极作用[3]。大量研究表明,根据理化性质的不同,每种LOA都有其自身的抗菌活性谱[62],并且对于GPCRs的激活效果也有所不同[8]。因此,在饲粮中使用LOA混合物的优势在于可更全面地发挥LOA的抗病营养功能,并对生长性能和养分利用具有潜在的协同效应[8,12]。同时,LOA与中链脂肪酸月桂酸甘油酯[16]、与植物精油[63]之间的协同效应也多有报道。例如,Han等[64]报告了LOA与中链脂肪酸的协同效应,证明其能改善断奶仔猪的生长性能,降低腹泻率,并增强免疫力。Ren等[16]对单月桂酸与甲酸间的协同作用进行了研究,得到了相似的结论,结果表明,在仔猪饲粮中同时添加0.2%单月桂酸和0.6%甲酸显著减轻了ETEC造成的腹泻与发热,这归因于单月桂酸和甲酸协同抑制核转录因子-κB与丝裂原活化蛋白激酶信号通路减轻肠道炎症,并改变了肠道微生物群落,丰富有益菌,降低致病菌数量。Cerisuelo等[65]的试验证明了LOA与精油的协同效应,观察到使用50 mg/kg精油与1 g/kg丁酸钠混合即可有效降低37日龄时鸡粪便中的沙门氏菌的数量,控制肉鸡体内沙门氏菌的定植,且效果要强于单独使用100 mg/kg的精油。但在Ren等[15]的研究中,却未发现LOA分别与中链脂肪酸、益生菌混合使用对粪便得分和直肠温度的额外影响。Iqbal等[66]的试验也表明,同时使用精油与LOA对肉鸡生产性能和肠道健康的促进作用并未强于单独使用精油;该现象可能与未经保护的有机酸在到达消化道后半部分前就被吸收,未能完全发挥其作用有关。

4.3 LOA的微囊化

畜禽的消化道有着较强的缓冲作用,未经保护的LOA进入消化道后,其浓度会随着消化和代谢而下降,对消化道中后段起到的效果有限[21]。微囊化是一种用于将物质输送至消化道特定部分的技术,以微囊化技术对LOA进行保护,可使LOA沿着整个消化道逐渐释放,靶向运输到指定的肠段,防止它们在上段的快速降解,并避免与饮食的其他成分相互作用,精确发挥其营养生理作用[4]。例如,Makowski等[67]研究表明,同游离丁酸钠相比,饲粮中添加0.1%的微囊化丁酸钠对火鸡粪便微生物的影响更显著;还发现在饲粮中添加0.1%的微囊化丁酸钠能显著降低粪便中产气荚膜梭菌和大肠杆菌数量,抗菌效果强于等量游离丁酸钠。此外,经过微囊化LOA本身的刺激性气味会得到掩盖,防止畜禽采食量下降。

5 小结

LOA具有抗病营养作用,在调控肠道菌群结构、抑制致病菌定植、维护机体免疫系统、提高畜禽生产性能及增强机体抗病力等方面,有着极佳的效果,具有极其广阔的应用前景。但是目前LOA在畜禽中的作用机制尚不完全清楚,与其他饲料添加剂协同使用的效果模型仍然缺乏;LOA的作用效果受畜禽的饲养环境、生长阶段和健康状况影响的研究结果也并不一致。因此,可通过分子生物技术在分子水平上对LOA做进一步研究,有利于根据需求更准确地发挥其特定效果,更好地开发其潜能。此外,为畜禽养殖业的使用提供更完善的理论支撑,未来应着眼于研究LOA、肠道菌群与免疫间的关系,优化LOA的剂量、持续时间、加工工艺和成本;并对各种LOA和其余饲料添加剂的组合进行探索,建立协同作用模型,以验证和扩大其有益用途,最大程度发挥其抗病营养作用。
[1]
HAULISAH N A, HASSAN L, BEJO S K, et al. High levels of antibiotic resistance in isolates from diseased livestock[J]. Frontiers in Veterinary Science, 2021, 8:652351.

DOI

[2]
KHAN R U, NAZ S, RAZIQ F, et al. Prospects of organic acids as safe alternative to antibiotics in broiler chickens diet[J]. Environmental Science and Pollution Research, 2022, 29(22):32594-32604.

DOI

[3]
XU B C, FU J, ZHU L Y, et al. Overall assessment of antibiotic substitutes for pigs:a set of Meta-analyses[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):3.

DOI

[4]
SCICUTELLA F, MANNELLI F, DAGHIO M, et al. Polyphenols and organic acids as alternatives to antimicrobials in poultry rearing:a review[J]. Antibiotics, 2021, 10(8):1010.

DOI

[5]
LIU L X, LI Q Q, YANG Y J, et al. Biological function of short-chain fatty acids and its regulation on intestinal health of poultry[J]. Frontiers in Veterinary Science, 2021, 8:736739.

DOI

[6]
ADHIKARI P, YADAV S, COSBY D E, et al. Research note:effect of organic acid mixture on growth performance and Salmonella typhimurium colonization in broiler chickens[J]. Poultry Science, 2020, 99(5):2645-2649.

DOI

[7]
KOVANDA L, ZHANG W, WEI X H, et al. In vitro antimicrobial activities of organic acids and their derivatives on several species of gram-negative and gram-positive bacteria[J]. Molecules, 2019, 24(20):3770.

DOI

[8]
MA J Y, PIAO X S, MAHFUZ S, et al. The interaction among gut microbes,the intestinal barrier and short chain fatty acids[J]. Animal Nutrition, 2022, 9:159-174.

DOI

[9]
SAM Q H, LING H, YEW W S, et al. The divergent immunomodulatory effects of short chain fatty acids and medium chain fatty acids[J]. International Journal of Molecular Sciences, 2021, 22(12):6453.

DOI

[10]
PARTANEN K H, MROZ Z. Organic acids for performance enhancement in pig diets[J]. Nutrition Research Reviews, 1999, 12(1):117-145.

DOI PMID

[11]
KHAN S H, IQBAL J. Recent advances in the role of organic acids in poultry nutrition[J]. Journal of Applied Animal Research, 2016, 44(1):359-369.

DOI

[12]
NG W K, KOH C B. The utilization and mode of action of organic acids in the feeds of cultured aquatic animals[J]. Reviews in Aquaculture, 2017, 9(4):342-368.

DOI

[13]
DAI D, QIU K, ZHANG H J, et al. Organic acids as alternatives for antibiotic growth promoters alter the intestinal structure and microbiota and improve the growth performance in broilers[J]. Frontiers in Microbiology, 2021, 11:618144.

DOI

[14]
MA J Y, WANG J, MAHFUZ S, et al. Supplementation of mixed organic acids improves growth performance,meat quality,gut morphology and volatile fatty acids of broiler chicken[J]. Animals, 2021, 11(11):3020.

DOI

[15]
REN C X, ZHOU Q Q, GUAN W T, et al. Immune response of piglets receiving mixture of formic and propionic acid alone or with either capric acid or Bacillus licheniformis after Escherichia coli challenge[J]. Biomed Research International, 2019, 2019:6416187.

[16]
REN C X, WANG Y J, LIN X F, et al. A combination of formic acid and monolaurin attenuates enterotoxigenic Escherichia coli induced intestinal inflammation in piglets by inhibiting the NF-κB/MAPK pathways with modulation of gut microbiota[J]. Journal of Agricultural and Food Chemistry, 2020, 68(14):4155-4165.

DOI

[17]
XIANG X D, DENG Z C, WANG Y W, et al. Organic acids improve growth performance with potential regulation of redox homeostasis,immunity,and microflora in intestines of weaned piglets[J]. Antioxidants, 2021, 10(11):1665.

DOI

[18]
MA J Y, MAHFUZ S, WANG J, et al. Effect of dietary supplementation with mixed organic acids on immune function,antioxidative characteristics,digestive enzymes activity,and intestinal health in broiler chickens[J]. Frontiers in Nutrition, 2021, 8:673316.

DOI

[19]
MIAO S S, ZHOU W T, LI H Y, et al. Effects of coated sodium butyrate on production performance,egg quality,serum biochemistry,digestive enzyme activity,and intestinal health of laying hens[J]. Italian Journal of Animal Science, 2021, 20(1):1452-1461.

DOI

[20]
CHEN J C, XU Q Q, LI Y X, et al. Comparative effects of dietary supplementations with sodium butyrate,medium-chain fatty acids,and n-3 polyunsaturated fatty acids in late pregnancy and lactation on the reproductive performance of sows and growth performance of suckling piglets[J]. Journal of Animal Science, 2019, 97(10):4256-4267.

DOI

[21]
NGUYEN D H, SEOK W J, KIM I H. Organic acids mixture as a dietary additive for pigs-a review[J]. Animals, 2020, 10(6):952.

DOI

[22]
PINHAL S, ROPERS D, GEISELMANN J, et al. Acetate metabolism and the inhibition of bacterial growth by acetate[J]. Journal of Bacteriology, 2019, 201(13):e00147-00119.

[23]
SHEU C W, FREESE E. Lipopolysaccharide layer protection of gram-negative bacteria against inhibition by long-chain fatty acids[J]. Journal of Bacteriology, 1973, 115(3):869-875.

DOI PMID

[24]
ALJUMAAH M R, ALKHULAIFI M M, ABUDABOS A M, et al. Organic acid blend supplementation increases butyrate and acetate production in Salmonella enterica serovar Typhimurium challenged broilers[J]. PLoS One, 2020, 15(6):e0232831.

DOI

[25]
ALAKOMI H L, SKYTTÄ E, SAARELA M, et al. Lactic acid permeabilizes gram-negative bacteria by disrupting the outer membrane[J]. Applied and Environmental Microbiology, 2000, 66(5):2001-2005.

DOI PMID

[26]
HERRERO A A, GOMEZ R F, SNEDECOR B, et al. Growth inhibition of Clostridium thermocellum by carboxylic acids:a mechanism based on uncoupling by weak acids[J]. Applied Microbiology and Biotechnology, 1985, 22(1):53-62.

[27]
RUSSELL J B. Another explanation for the toxicity of fermentation acids at low pH:anion accumulation versus uncoupling[J]. Journal of Applied Bacteriology, 1992, 73(5):363-370.

DOI

[28]
ROE A J, MCLAGGAN D, DAVIDSON I, et al. Perturbation of anion balance during inhibition of growth of Escherichia coli by weak acids[J]. Journal of Bacteriology, 1998, 180(4):767-772.

DOI

[29]
ROE A J, O’BYRNE C, MCLAGGAN D, et al. Inhibition of Escherichia coli growth by acetic acid:a problem with methionine biosynthesis and homocysteine toxicity[J]. Microbiology, 2002, 148(7):2215-2222.

DOI

[30]
MORDUKHOVA E A, PAN J G. Evolved cobalamin-independent methionine synthase (MetE) improves the acetate and thermal tolerance of Escherichia coli[J]. Applied and Environmental Microbiology, 2013, 79(24):7905-7915.

DOI

[31]
BASKETT R C, HENTGES D J. Shigella flexneri inhibition by acetic acid[J]. Infection and Immunity, 1973, 8(1):91-97.

DOI

[32]
ZENG L J, HUANG J X, FENG P X, et al. Transcriptomic analysis of formic acid stress response in Saccharomyces cerevisiae[J]. World Journal of Microbiology and Biotechnology, 2022, 38(2):34.

DOI

[33]
KANG J, ZHOU X H, ZHANG W, et al. Transcriptomic analysis of bacteriocin synthesis and stress response in Lactobacillus paracasei HD1.7 under acetic acid stress[J]. LWT, 2022, 154:112897.

DOI

[34]
AMRUTHA B, SUNDAR K, SHETTY P H. Effect of organic acids on biofilm formation and quorum signaling of pathogens from fresh fruits and vegetables[J]. Microbial Pathogenesis, 2017, 111:156-162.

DOI PMID

[35]
TÜRKOĞLU S. Evaluation of genotoxic effects of sodium propionate,calcium propionate and potassium propionate on the root meristem cells of Allium cepa[J]. Food and Chemical Toxicology, 2008, 46(6):2035-2041.

DOI

[36]
JACOBSON A, LAM L, RAJENDRAM M, et al. A gut commensal-produced metabolite mediates colonization resistance to Salmonella infection[J]. Cell Host & Microbe, 2018, 24(2):296-307.e7.

[37]
SUN M M, WU W, LIU Z J, et al. Microbiota metabolite short chain fatty acids,GPCR,and inflammatory bowel diseases[J]. Journal of Gastroenterology, 2017, 52(1):1-8.

DOI

[38]
MACIA L, TAN J, VIEIRA A T, et al. Metabolite-sensing receptors GPR43 and GPR109A facilitate dietary fibre-induced gut homeostasis through regulation of the inflammasome[J]. Nature Communications, 2015, 6(1):6734.

DOI

[39]
TAKAKUWA A, NAKAMURA K, KIKUCHI M, et al. Butyric acid and leucine induce α-defensin secretion from small intestinal paneth cells[J]. Nutrients, 2019, 11(11):2817.

DOI

[40]
ZHAO Y, CHEN F D, WU W, et al. GPR43 mediates microbiota metabolite SCFA regulation of antimicrobial peptide expression in intestinal epithelial cells via activation of mTOR and STAT3[J]. Mucosal Immunology, 2018, 11(3):752-762.

DOI PMID

[41]
HU M J, ALASHKAR ALHAMWE B, SANTNER-NANAN B, et al. Short-chain fatty acids augment differentiation and function of human induced regulatory T cells[J]. International Journal of Molecular Sciences, 2022, 23(10):5740.

DOI

[42]
SINGH N, GURAV A, SIVAPRAKASAM S, et al. Activation of Gpr109a,receptor for niacin and the commensal metabolite butyrate,suppresses colonic inflammation and carcinogenesis[J]. Immunity, 2014, 40(1):128-139.

DOI

[43]
CHEN G X, RAN X, LI B, et al. Sodium butyrate inhibits inflammation and maintains epithelium barrier integrity in a TNBS-induced inflammatory bowel disease mice model[J]. EBioMedicine, 2018, 30:317-325.

DOI PMID

[44]
TIAN G X, PENG K P, YU Y, et al. Propionic acid regulates immune tolerant properties in B cells[J]. Journal of Cellular and Molecular Medicine, 2022, 26(10):2766-2776.

DOI

[45]
WU W, SUN M, CHEN F, et al. Microbiota metabolite short-chain fatty acid acetate promotes intestinal IgA response to microbiota which is mediated by GPR43[J]. Mucosal Immunology, 2017, 10(4):946-956.

DOI PMID

[46]
CHUN E, LAVOIE S, FONSECA-PEREIRA D, et al. Metabolite-sensing receptor Ffar2 regulates colonic group 3 innate lymphoid cells and gut immunity[J]. Immunity, 2019, 51(5):871-884.e6.

DOI PMID

[47]
ALRAFAS H R, BUSBEE P B, CHITRALA K N, et al. Alterations in the gut microbiome and suppression of histone deacetylases by resveratrol are associated with attenuation of colonic inflammation and protection against colorectal cancer[J]. Journal of Clinical Medicine, 2020, 9(6):1796.

DOI

[48]
HAO F Q, TIAN M M, ZHANG X B, et al. Butyrate enhances CPT1A activity to promote fatty acid oxidation and iTreg differentiation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(22):e2014681118.

[49]
VINOLO M A R, RODRIGUES H G, HATANAKA E, et al. Suppressive effect of short-chain fatty acids on production of proinflammatory mediators by neutrophils[J]. The Journal of Nutritional Biochemistry, 2011, 22(9):849-855.

DOI

[50]
SCHULTHESS J, PANDEY S, CAPITANI M, et al. The short chain fatty acid butyrate imprints an antimicrobial program in macrophages[J]. Immunity, 2019, 50(2):432-445.e7.

DOI PMID

[51]
ROBINSON K, MA X, LIU Y L, et al. Dietary modulation of endogenous host defense peptide synthesis as an alternative approach to in-feed antibiotics[J]. Animal Nutrition, 2018, 4(2):160-169.

DOI PMID

[52]
BEISNER J, ROSA L F, KADEN-VOLYNETS V, et al. Prebiotic inulin and sodium butyrate attenuate obesity-induced intestinal barrier dysfunction by induction of antimicrobial peptides[J]. Frontiers in Immunology, 2021, 12:678360.

DOI

[53]
FURUSAWA Y, OBATA Y, FUKUDA S, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells[J]. Nature, 2013, 504(7480):446-450.

DOI

[54]
YANG W J, YU T M, HUANG X S, et al. Intestinal microbiota-derived short-chain fatty acids regulation of immune cell IL-22 production and gut immunity[J]. Nature Communications, 2020, 11(1):4457.

DOI PMID

[55]
PARK J, KIM M, KANG S G, et al. Short-chain fatty acids induce both effector and regulatory T cells by suppression of histone deacetylases and regulation of the mTOR-S6K pathway[J]. Mucosal Immunology, 2015, 8(1):80-93.

DOI PMID

[56]
CHANG P V, HAO L M, OFFERMANNS S, et al. The microbial metabolite butyrate regulates intestinal macrophage function via histone deacetylase inhibition[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(6):2247-2252.

DOI PMID

[57]
DIAO H, JIAO A R, YU B, et al. Gastric infusion of short-chain fatty acids can improve intestinal barrier function in weaned piglets[J]. Genes & Nutrition, 2019, 14:4.

[58]
SALERI R, BORGHETTI P, RAVANETTI F, et al. Effects of different short-chain fatty acids (SCFA) on gene expression of proteins involved in barrier function in IPEC-J2[J]. Porcine Health Management, 2022, 8(1):21.

DOI PMID

[59]
GRAHAM W V, HE W Q, MARCHIANDO A M, et al. Intracellular MLCK1 diversion reverses barrier loss to restore mucosal homeostasis[J]. Nature Medicine, 2019, 25(4):690-700.

DOI PMID

[60]
FENG Y H, WANG Y, WANG P, et al. Short-chain fatty acids manifest stimulative and protective effects on intestinal barrier function through the inhibition of NLRP3 inflammasome and autophagy[J]. Cellular Physiology and Biochemistry, 2018, 49(1):190-205.

DOI PMID

[61]
NIELSEN D S G, JENSEN B B, THEIL P K, et al. Effect of butyrate and fermentation products on epithelial integrity in a mucus-secreting human colon cell line[J]. Journal of Functional Foods, 2018, 40:9-17.

DOI

[62]
COBAN H B. Organic acids as antimicrobial food agents:applications and microbial productions[J]. Bioprocess and Biosystems Engineering, 2020, 43(4):569-591.

DOI

[63]
MA J Y, LONG S F, WANG J, et al. Microencapsulated essential oils combined with organic acids improves immune antioxidant capacity and intestinal barrier function as well as modulates the hindgut microbial community in piglets[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):16.

DOI PMID

[64]
HAN Y S, TANG C H, ZHAO Q Y, et al. Effects of dietary supplementation with combinations of organic and medium chain fatty acids as replacements for chlortetracycline on growth performance,serum immunity,and fecal microbiota of weaned piglets[J]. Livestock Science, 2018, 216:210-218.

DOI

[65]
CERISUELO A, MARÍN C, SÁNCHEZ-VIZCAÍNO F, et al. The impact of a specific blend of essential oil components and sodium butyrate in feed on growth performance and Salmonella counts in experimentally challenged broilers[J]. Poultry Science, 2014, 93(3):599-606.

DOI

[66]
IQBAL H, RAHMAN A, KHANUM S, et al. Effect of essential oil and organic acid on performance,gut health,bacterial count and serological parameters in broiler[J]. Brazilian Journal of Poultry Science, 2021, 23(3): eRBCA-2021-1443.

[67]
MAKOWSKI Z, LIPIÑSKI K, MAZUR-KUśNIREK M, The effects of sodium butyrate,coated sodium butyrate,and butyric acid glycerides on nutrient digestibility,gastrointestinal function,and fecal microbiota in turkeys[J]. Animals, 2022, 12(14): eRBCA-1836.

DOI

Outlines

/