RESEARCH PAPER

Effects of Compound Probiotics on Intestinal Immunity, Antioxidation and Apoptosis of Broilers

  • WANG Yanfei ,
  • LIU Xuan ,
  • ZHANG Ruonan ,
  • JIA Hao ,
  • ZHANG Lihuan , *
Expand
  • College of Life Sciences, Shanxi Agricultural University, Taigu 030801, China
*professor, E-mail:

Received date: 2022-11-07

  Online published: 2023-05-11

Abstract

The purpose of this experiment was to explore the effects of compound probiotics with three different ratios of Lactobacillus casei, Lactobacillus acidophilus and Bifidobacterium lactis on the intestinal immunity, antioxidation and apoptosis of broilers. Four hundred 1-day-old male jute broilers were randomly divided into 4 groups with 5 replicates in each group and 20 replicates in each group. Lactobacillus casei, Lactobacillus acidophilus and Bifidobacterium lactis were formulated into composite bacterial preparations in proportions of 2∶1∶1, 1∶2∶1 and 1∶1∶2, and supplemented to drinking water at a ratio of 1% for the probiotics groupⅠ, group Ⅱ and group Ⅲ, and the normal drinking water group served as the control group. The feeding cycle was divided into 2 stages: 1 to 21 days of age and 22 to 42 days of age. The results showed as follows: during the entire growth period, compared with the control group, the average daily gain (ADG) of broilers in all probiotic groups was significantly increased (P<0.05). At 21 days of age, compared with the control group, the contents of immunoglobulin A (IgA), immunoglobulin G (IgG), interleukin-2 (IL-2) and interleukin-10 (IL-10), and total antioxidant capacity (T-AOC) and the relative expression levels of mucin 2 (MUC2), occludin, claudin-1 and B cell lymphoma-2 (Bcl-2) mRNA in the jejunum were significantly increased in the probiotic groups (P<0.05), while the relative expression levels of B cell lymphoma-2 associated X protein (Bax) and cysteine aspastic acid-specific protease 3 (Caspase-3) mRNA were significantly reduced (P<0.05). At 42 days of age, compared with the control group, the IL-10 content, superoxide dismutase (SOD) activity and T-AOC and the relative expression levels of heme oxygenase-1 (HO-1), claudin-1 and Bcl-2 mRNA in jejunum were significantly increased in the probiotic groups (P<0.05), while the relative expression levels of Caspase-3 mRNA was significantly reduced (P<0.05). In the probiotic groups, the probiotic group Ⅰ had the best effect on promoting IgA and IgG contents in intestinal mucosa; the probiotic group Ⅰ and group Ⅲ had the best effect on increasing the contents of IL-2 and IL-10 intestinal mucosa; the probiotic group Ⅲ had the best effect on promoting the intestinal barrier gene expression, increasing the antioxidant activity, up-regulating Bcl-2 and down-regulating the expression of Bax and Caspase-3 mRNA was the best. In summary, compound probiotics with different ratios of Lactobacillus casei, Lactobacillus acidophilus and Bifidobacterium lactis all can improve the growth performance of broilers, enhance the intestinal antioxidant function and immune function, alleviate intestinal apoptosis, and the mixing ratio of 1∶1∶2 has the best effect on broilers.

Cite this article

WANG Yanfei , LIU Xuan , ZHANG Ruonan , JIA Hao , ZHANG Lihuan . Effects of Compound Probiotics on Intestinal Immunity, Antioxidation and Apoptosis of Broilers[J]. Chinese Journal of Animal Nutrition, 2023 , 35(5) : 2916 -2928 . DOI: 10.12418/CJAN2023.273

在“禁抗”背景下,寻找绿色、安全的抗生素替代品成为研究热点。益生菌因其独特的生理功能,在家禽养殖业中取得了显著的效果,引起了广泛的关注[1]。世界卫生组织将益生菌定义为在体内定居时可使宿主受益的活的微生物[2]。乳酸菌是一种非致病性和毒素性的革兰氏阳性发酵菌,无芽孢与鞭毛,菌落白色粗糙,区别于其他厌氧菌,大多数可以在氧气存在下生长[3]。双歧杆菌是最早定居于人胃肠道的微生物之一,虽不属于乳酸菌,但可以产生乳酸。益生菌有效活性以菌落形成单位(CFU)来衡量,对胃液、水解酶和胆汁酸具有高耐受性,在饮用含有1×10⁹ CFU的干酪乳杆菌溶液时,益生菌可在胃肠道中存活并停留3 d[4]。乳酸菌在肠道中因可分泌诸如细菌素的抗菌物质而具有抑菌和抗炎特性,产生的酸可降低肠道pH并防止产气荚膜梭菌的增殖,有利于肠道健康。嗜酸乳杆菌和干酪乳杆菌是乳酸菌中常用的益生菌,与双歧杆菌合称为“健康三益菌”。在家禽养殖中,大多数研究主要集中在单一益生菌对肉鸡生长性能的影响,然而与单一菌株相比,复合益生菌具有更全面、更容易通过消化道并在肠道中定植的优点[5-6]。Talebi等[7]研究表明,多菌株益生菌可提高肉鸡的体重并降低料重比(F/G)。刘石等[8]研究表明,饮水中添加复合益生菌可以改善岭南黄羽肉鸡的生长性能。目前,嗜酸乳杆菌、干酪乳杆菌和双歧杆菌分别作为单一添加剂在肉鸡中应用研究报道较多,复合益生菌具有更容易在肠道定植、作用效果更佳的优点,但对上述3种益生菌联合应用的相关研究相对匮乏。因此,本研究以幼龄黄麻肉鸡为研究对象,探讨不同混合比例的“健康三益菌”对肉鸡肠道免疫、抗氧化及细胞凋亡的影响,为改善肉鸡肠道健康进而提高肉鸡的生产效率提供理论基础。

1 材料与方法

1.1 试验材料

“健康三益菌”嗜酸乳杆菌、干酪乳杆菌与双歧杆菌的冻干菌粉购自陕西某生物科技有限责任公司,有效活菌数均为1×10¹⁰ CFU/g。

1.2 试验设计与饲养管理

干酪乳杆菌、嗜酸乳杆菌与双歧杆菌分别按2∶1∶1、1∶2∶1、1∶1∶2的比例配制成3种复合益生菌。选取400只1日龄雄性黄麻肉鸡(购自太谷县田建胜养殖场),随机分为4组,每组5个重复,每个重复20只。对照组正常饮水,益生菌Ⅰ组(混合比例为2∶1∶1)、Ⅱ组(混合比例为1∶2∶1)、Ⅲ组(混合比例为1∶1∶2)饮用水中补充1%的复合益生菌[9],试验分为生长前期(1~21日龄)、后期(22~42日龄)2个阶段。基础饲粮参照NRC(1994)和《鸡饲养标准》(NY/T 33—2004)配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis) %

项目
Items
1~21日龄
1 to 21
days of age
22~42日龄
22 to 42
days of age
原料Ingredients
玉米Corn 56.49 61.42
大豆油Soybean oil 2.22 3.00
豆粕Soybean meal 30.24 25.30
棉籽粕Cottonseed meal 5.00 5.00
鱼粉Fish meal 2.43 1.98
磷酸氢钙CaHPO4 1.60 1.39
石粉Limestone 1.16 1.10
蛋氨酸Met 0.15 0.05
食盐NaCl 0.30 0.35
胆碱Choline 0.19 0.19
预混料Premix1) 0.22 0.22
合计Total 100.00 100.00
营养成分Nutrient levels2)
代谢能ME/(MJ/kg) 12.12 12.54
粗蛋白质CP 21.00 19.00
赖氨酸Lys 1.12 0.98
蛋氨酸+半胱氨酸Met+Cys 0.84 0.68
钙Ca 1.00 0.90
有效磷AP 0.30 0.30

1)预混料为每千克饲粮提供 Premix provided the following per kg of diets:Fe 80 mg,Mn 80 mg,Zn 80 mg,Cu 8 mg,I 0.35 mg,Se 0.15 mg,VA 12 000 IU,VD3 3 000 IU,VE 30 IU,VK3 1 mg,VB1 2 mg,VB2 6 mg,泛酸 pantothenic acid 9 mg,吡哆醇 pyridoxine 5 mg,烟酸 niacin 30 mg,VB12 0.01 mg,生物素 biotin 0.10 mg,叶酸 folic acid 0.30 mg。

2)营养水平为计算值。Nutrition levels were calculated values.

肉鸡皆按规定接种疫苗,每天早(08:00)、晚(20:00)定时饲喂,鸡舍保持整洁且定期消毒,保证肉鸡正常活动,自由摄食和饮水,采用3层立笼式饲养于山西农业大学生命科学学院动物房。温度从育雏第1周的33 ℃每天降低1 ℃,直至降到23 ℃结束。

1.3 样品采集与分析

1.3.1 样品采集

饲养试验结束后,每组选取10只体重接近平均体重的健康公鸡(每个重复2只),用戊巴比妥钠(50 mg/kg)对鸡进行麻醉并解剖,打开腹腔,取空肠中段约2 cm,用预冷的生理盐水将其冲洗干净,-80 ℃保存。另取部分空肠肠段迅速取黏膜,空肠黏膜样品于-80 ℃保存,用于后续指标的测定。

1.3.2 生长性能指标的测定

在21和42日龄以重复为单位对空腹12 h肉鸡称重,统计各阶段肉鸡的平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G,F/G=ADG/ADFI)。

1.3.3 肠道黏膜免疫和抗氧化指标的测定

采用酶联免疫吸附试验(ELISA)法分别测定空肠黏膜中以下指标的含量或活性:1)免疫球蛋白,包括免疫球蛋白A(IgA)、免疫球蛋白G(IgG);2)免疫因子,包括白细胞介素-2(IL-2)、白细胞介素-10(IL-10);3)抗氧化指标,包括谷胱甘肽过氧化酶(GSH-Px)、总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)。上述指标测定所用试剂盒均购自上海酶联生物科技有限公司,操作步骤按照试剂盒说明书进行。

1.3.4 肠道屏障、抗氧化以及细胞凋亡相关基因表达的测定

1.3.4.1 空肠总RNA提取与逆转录

取空肠肠段样品,TRIzol法提取总RNA。用NanoDrop核酸蛋白检测仪测定样品在260和280 nm处的吸光度值,检测样品浓度和纯度。以总RNA浓度为1 μg/mL进行反转录合成cDNA,反转录参考反转录酶试剂盒的使用说明进行,cDNA样品置于-20 ℃保存。

1.3.4.2 实时荧光定量PCR(RT-qPCR)

以合成的cDNA为模板,将各组分按总体系10 μL加入到八连排管中:SYBR Premix Ex TaqTM Ⅱ(2×)5 μL,上、下游引物各0.4 μL,cDNA模板1 μL,ddH2O 3.2 μL。PCR反应条件:95 ℃预变性5 min;95 ℃变性5 s,60 ℃退火35 s,72 ℃延伸20 s,共40个循环。熔解曲线的反应条件为:每30 s提高0.5 ℃直至95 ℃。RT-qPCR检测目标基因[黏蛋白2(MUC2)、闭合蛋白(occludin)、封闭蛋白-1(claudin-1)、闭锁小带蛋白-1(ZO-1)、半胱天冬酶-3(Caspase-3)、B淋巴细胞瘤-2(Bcl-2)、Bcl-2相关X蛋白(Bax)、核因子E2相关因子2(Nrf2)、血红素加氧酶-1(HO-1)]mRNA的相对表达量,每个样品皆是重复测定4次。所用引物是由NCBI获得基因序列通过Primer 3.0设计获得,如表2所示。使用的引物目标扩增后进行熔解曲线分析确定反应的特异性。以β-肌动蛋白(β-actin)为内参基因,目标基因的mRNA相对表达量采用2-ΔΔCt法进行计算。
表2 实时荧光定量PCR引物

Table 2 Primers for RT-qPCR

基因
Genes
引物序列
Primer sequence (5'—3')
目的基因片段
Target gene
fragment/bp
退火温度
Anealing
temperature/℃
β-肌动蛋白β-actin F:GTCCACCGCAAATGCTTCTA
R:AGCCATGCCAATCTCCGTCTT
154 60
黏蛋白2 MUC2 F:AATGCTGAGTTCTTGCCTAA
R:TGTTGCAGTTCATATCCTGGT
155 60
闭合蛋白Occludin F:CTGCTCTGCCTCATCTGCTTCTTC
R:CCATCCGCCACGTTCTTCACC
143 60
封闭蛋白-1 Claudin-1 F:ACCCACAGCCTAAGTGCTTC
R:AGGTCTCATAAGGCCCCACT
200 60
闭锁小带蛋白-1 ZO-1 F:GCGCCTCCCTATGAGGAGCA
R:CAAATCGGGGTTGTGCCGGA
160 65
半胱天冬酶-3 Caspase-3 F:AAAGATGGACCACGCTCAGG
R:TCCGGTATCTCGGTGGAAGT
189 65
Bcl-2相关X蛋白Bax F:CGCAAGGTCTACGCCATCATCTC
R:GCAGCAGACCAGCACCAAGTAG
165 65
B淋巴细胞瘤-2 Bcl-2 F:GAGTTCGGCGGCGTGATGTG
R:TTCAGGTACTCGGTCATCCAGGTG
92 65
核因子E2相关因子2 Nrf2 F:ACGCTTTCTTCAGGGGTAGC
R:GTTCGGTGCAGAAGAGGTGA
170 60
血红素加氧酶-1 HO-1 F:GCTGGGAAGGAGAGTGAGAGGAC
R:GCGACTGTGGTGGCGATGAAG
107 60

1.4 数据统计与分析

利用Excel 2018进行数据处理,采用SPSS 24.0统计软件进行方差分析,并采用Duncan氏法来检验组间差异显著性。部分指标运用GraphPad Prism 8进一步分析并制作柱状图。

2 结果与分析

2.1 复合益生菌对肉鸡生长性能的影响

表3所示,在整个生长期间,与对照组相比,3个益生菌组肉鸡的ADG显著增加(P<0.05),F/G、ADFI无显著差异(P>0.05);3个益生菌组之间,肉鸡的ADG、ADFI与F/G皆无显著差异(P>0.05)。
表3 复合益生菌对肉鸡生长性能的影响

Table 3 Effects of compound probiotics on growth performance of broilers

项目
Items
对照组
Control
group
益生菌Ⅰ组
Probiotics
group Ⅰ
益生菌Ⅱ组
Probiotics
group Ⅱ
益生菌Ⅲ组
Probiotics
group Ⅲ
均值标准误
SEM
P
P-value
1~21日龄1 to 21 days of age
平均日增重ADG/g 20.79b 22.73a 21.97a 22.59a 0.53 0.01
平均日采食量ADFI/g 40.85 40.49 40.84 41.53 1.84 0.61
料重比F/G 1.98 1.78 1.86 1.84 0.11 0.12
22~42日龄22 to 42 days of age
平均日增重ADG/g 48.82b 53.89a 52.44a 52.60a 1.56 0.03
平均日采食量ADFI/g 98.92 99.32 100.12 100.34 3.35 0.70
料重比F/G 2.03 1.85 1.91 1.91 0.08 0.05

同行数据肩标字母不同表示差异有统计学意义(P<0.05)。下表同。

Values with different superscript letters in the same row indicated that the difference was statistically significant (P<0.05). The same as below.

2.2 复合益生菌对肉鸡肠道黏膜免疫指标的影响

表4所示,在21日龄时,与对照组相比,3个益生菌组空肠黏膜IgG、IgA含量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅲ组空肠黏膜IgA含量显著高于益生菌Ⅰ组(P<0.05)。在42日龄时,与对照组相比,3个益生菌组空肠黏膜IgG含量无显著变化(P>0.05),益生菌Ⅰ组、Ⅲ组空肠黏膜IgA含量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅰ组空肠黏膜IgA含量显著高于益生菌Ⅱ组、Ⅲ组(P<0.05)。
表4 复合益生菌对肉鸡肠道黏膜免疫球蛋白含量的影响

Table 4 Effects of compound probiotics on immunoglobulin contents in intestinal mucosa of broilers μg/mg prot

项目
Items
对照组
Control
group
益生菌Ⅰ组
Probiotics
group Ⅰ
益生菌Ⅱ组
Probiotics
group Ⅱ
益生菌Ⅲ组
Probiotics
group Ⅲ
均值标准误
SEM
P
P-value
21日龄21 days of age
免疫球蛋白A IgA 1.764c 2.154b 2.221ab 2.376a 0.093 0.001
免疫球蛋白G IgG 9.733b 12.371a 12.205a 12.851a 0.500 0.001
42日龄42 days of age
免疫球蛋白A IgA 2.268c 2.702a 2.404bc 2.457b 0.066 0.001
免疫球蛋白G IgG 12.455 12.109 13.190 12.558 0.940 0.714
表5所示,在21日龄时,与对照组相比,3个益生菌组空肠黏膜IL-2、IL-10含量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅲ组空肠黏膜IL-2、IL-10含量显著高于益生菌Ⅰ组(P<0.05)。在42日龄时,与对照组相比,益生菌Ⅱ组、Ⅲ组空肠黏膜IL-2含量显著增加(P<0.05),3个益生菌组空肠黏膜IL-10含量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅰ组空肠黏膜IL-2、IL-10含量显著低于益生菌Ⅱ组(P<0.05)。
表5 复合益生菌对肉鸡肠道黏膜免疫因子含量的影响

Table 5 Effects of compound probiotics on immune factor contents in intestinal mucosa of broilers pg/mg prot

项目
Items
对照组
Control
group
益生菌Ⅰ组
Probiotics
group Ⅰ
益生菌Ⅱ组
Probiotics
group Ⅱ
益生菌Ⅲ组
Probiotics
group Ⅲ
均值标准误
SEM
P
P-value
21日龄21 days of age
白细胞介素-2 IL-2 1.445c 1.776b 1.809b 2.364a 0.068 0.001
白细胞介素-10 IL-10 0.430c 0.496b 0.527ab 0.575a 0.030 0.001
42日龄42 days of age
白细胞介素-2 IL-2 1.429c 1.622bc 2.109a 1.905ab 0.154 0.001
白细胞介素-10 IL-10 0.433c 0.537b 0.618a 0.538ab 0.030 0.001

2.3 复合益生菌对肉鸡肠道屏障相关基因表达的影响

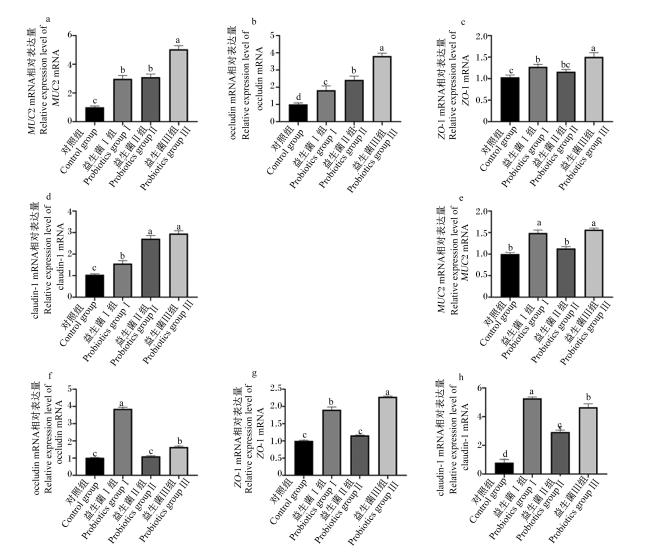
图1所示,在21日龄时,与对照组相比,3个益生菌组空肠MUC2、occludin、claudin-1 mRNA的相对表达量显著增加(P<0.05),益生菌Ⅰ组、Ⅲ组空肠ZO-1 mRNA的相对表达量显著增加(P<0.05),益生菌Ⅱ组虽然也有所增加,但差异未达显著水平(P>0.05);3个益生菌组之间,MUC2、occludin、ZO-1 mRNA的相对表达量在益生菌Ⅲ组中最高,显著高于益生菌Ⅰ组、Ⅱ组(P<0.05),益生菌Ⅱ组、Ⅲ组claudin-1 mRNA的相对表达量显著高于益生菌Ⅰ组(P<0.05)。在42日龄时,与对照组相比,3个益生菌组空肠claudin-1 mRNA的相对表达量显著增加(P<0.05),益生菌Ⅰ组、Ⅲ组空肠MUC2、occludin、ZO-1 mRNA的相对表达量显著增加(P<0.05),益生菌Ⅱ组虽然也增加,但差异未达显著水平(P>0.05);3个益生菌组之间,益生菌Ⅰ组空肠occludin、claudin-1 mRNA的相对表达量最高,益生菌Ⅲ组空肠ZO-1 mRNA的相对表达量最高,均显著高于另外2个益生菌组(P<0.05),益生菌Ⅰ组、Ⅲ组空肠MUC2 mRNA的相对表达量显著高于益生菌Ⅱ组(P<0.05)。
图1 复合益生菌对肠道屏障相关基因表达的影响

a~d分别展示的是21日龄肉鸡空肠MUC2、occludin、ZO-1与claudin-1 mRNA的相对表达量,e~h分别展示的是42日龄肉鸡空肠MUC2、occludin、ZO-1与claudin-1 mRNA的相对表达量。结果以平均值±标准差表示,数据柱上标不同字母表示差异显著(P<0.05),下图同。

Fig.1 Effects of compound probiotics on intestinal barrier related genes expression of broilers

a to d showed the relative expression levels of MUC2, occludin, ZO-1 and claudin-1 mRNA in jejunum of broilers at 21 days of age, respectively, and e to h showed the relative expression levels of MUC2, occludin, ZO-1 and claudin-1 mRNA in jejunum of broilers at 42 days of age, respectively. The results were expressed as mean±SD, different letters on the data columns indicated that the difference was significant (P<0.05), the same as below.

2.4 复合益生菌对肉鸡肠道抗氧化指标及抗氧化相关基因表达的影响

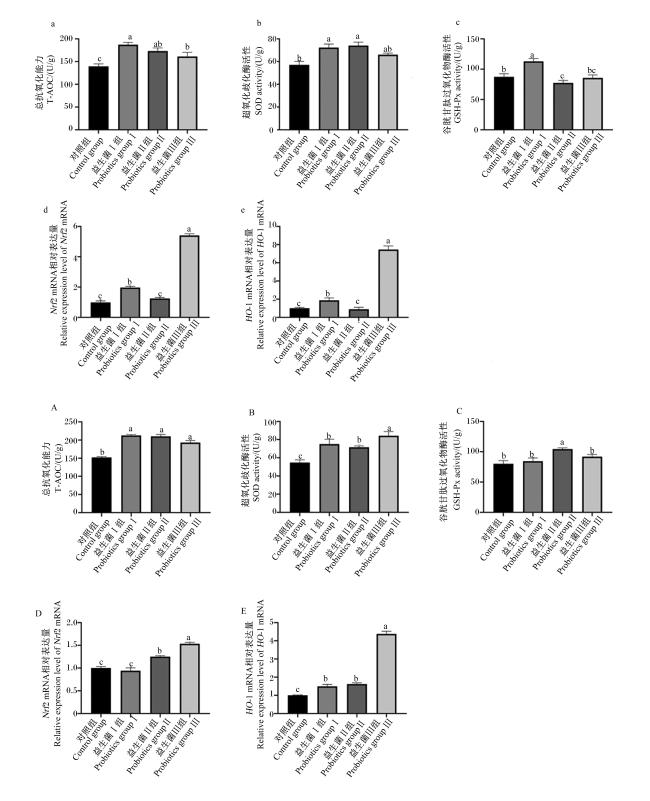
图2所示,在21日龄时,与对照组相比,3个益生菌组空肠T-AOC显著增加(P<0.05);益生菌Ⅰ组、Ⅱ组空肠SOD活性显著增加(P<0.05),益生菌Ⅰ组空肠GSH-Px活性显著增加(P<0.05),而益生菌Ⅱ组空肠GSH-Px活性显著降低(P<0.05),益生菌Ⅰ组、Ⅲ组空肠Nrf2与HO-1 mRNA的相对表达量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅰ组空肠T-AOC、GSH-Px活性显著高于益生菌Ⅲ组(P<0.05),益生菌Ⅲ组空肠Nrf2与HO-1 mRNA的相对表达量最高,显著高于益生菌Ⅰ组、Ⅱ组(P<0.05)。在42日龄时,与对照组相比,3个益生菌组空肠SOD活性、T-AOC与HO-1 mRNA的相对表达量均显著增加(P<0.05),益生菌Ⅱ组空肠GSH-Px活性显著增加(P<0.05),益生菌Ⅱ组、Ⅲ组空肠Nrf2 mRNA的相对表达量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅲ组空肠SOD活性与Nrf2、HO-1 mRNA的相对表达量显著高于益生菌Ⅰ组、Ⅱ组(P<0.05),益生菌Ⅱ组空肠GSH-Px活性显著高于益生菌Ⅰ组、Ⅲ组(P<0.05)。
图2 复合益生菌对肠道抗氧化指标及抗氧化相关基因表达的影响

a~e分别展示的是21日龄肉鸡空肠T-AOC、SOD和GSH-Px活性与Nrf2、HO-1 mRNA的相对表达量,A~E分别展示的是42日龄肉鸡空肠T-AOC、SOD和GSH-Px活性与Nrf2、HO-1 mRNA的相对表达量。

Fig.2 Effects of compound probiotics on intestinal antioxidant indexes and antioxidant-regulated genes expression of broilers

a to e showed the T-AOC, SOD and GSH-Px activities and the relative expression levels of Nrf2, HO-1 mRNA in jejunum of broilers at 21 days of age, respectively, and A to E showed the T-AOC, SOD and GSH-Px activities and the relative expression levels of Nrf2, HO-1 mRNA in jejunum of broilers at 42 days of age, respectively.

2.5 复合益生菌对肉鸡肠道细胞凋亡的影响

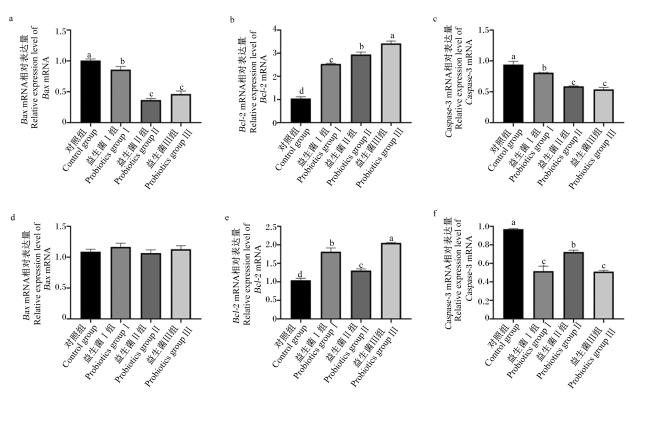
图3所示,在21日龄时,与对照组相比,3个益生菌组空肠BaxCaspase-3 mRNA的相对表达量显著降低(P<0.05),Bcl-2 mRNA的相对表达量显著增加(P<0.05);3个益生菌组之间,益生菌Ⅰ组空肠BaxCaspase-3 mRNA的相对表达量显著高于益生菌Ⅱ组、Ⅲ组(P<0.05),益生菌Ⅲ组空肠Bcl-2 mRNA的相对表达量最高,显著高于其他2个益生菌组(P<0.05)。在42日龄时,与对照组相比,3个益生菌组空肠Bax mRNA的相对表达量无显著变化(P>0.05),Bcl-2 mRNA的相对表达量显著增加(P<0.05),Caspase-3 mRNA的相对表达量显著降低(P<0.05);3个益生菌组之间,益生菌Ⅲ组空肠Bcl-2 mRNA的相对表达量最高,显著高于益生菌Ⅰ组、Ⅱ组(P<0.05);益生菌Ⅱ组空肠Caspase-3mRNA的相对表达量显著高于益生菌Ⅰ组、Ⅲ组(P<0.05)。
图3 复合益生菌对肠道细胞凋亡相关基因表达的影响

a~c分别展示的是21日龄肉鸡空肠BaxBcl-2与Caspase-3 mRNA的相对表达量,d~f分别展示的是42日龄肉鸡空肠BaxBcl-2与Caspase-3 mRNA的相对表达量。

Fig.3 Effects of compound probiotics on intestinal apoptosis-related gene expression of broilers

a to c showed the relative expression levels of Bax, Bcl-2 and Caspase-3 mRNA in jejunum of broilers at 21 days of age, respectively, and d to f showed the relative expression levels of Bax, Bcl-2 and Caspase-3 mRNA in jejunum of broilers at 42 days of age, respectively.

3 讨论

3.1 复合益生菌对肉鸡生长性能的影响

较高的生长性能参数表明家禽具有高效生产经济产品的能力。在整个试验期间,3种复合益生菌对肉鸡的ADFI均无显著影响,但可改善肉鸡体重与F/G,表明本试验所用菌株可改善肉鸡的生长性能,不影响鸡的食欲,且在生长的不同阶段益生菌一直保持此促进效果。这与许多研究结果相似。邢爽等[10]和董佳楠等[11]研究表明,饮水或饲粮中添加105~1010 CFU/g的乳酸杆菌或乳酸菌混合物均可显著提高肉鸡的ADG,且促生长效果在前期较佳,可能是添加乳酸菌有利于雏鸡肠道优势菌群建立,促进雏鸡的生长,而生长后期有外源有害菌侵入导致增重缓慢。
刘淑娇等[12]的研究表明,4×109 CFU/g的乳酸菌复合菌可降低血糖水平,提高动物体合成代谢功能,改善动物生长及生理状态。然而,也有一些研究报道显示使用益生菌补充剂对肉鸡的生长性能没有积极的结果。王雪飞等[13]研究表明,由于合生元剂型的不适口性影响肉鸡采食量,饲粮中添加7.67×107 CFU/g的合生元有降低肉鸡生长性能的趋势,剂型转变为微胶囊提高适口性后可能会改变此效果。Samanya等[14]发现,1×108~1×1010 CFU/g纳豆枯草杆菌对肉鸡的生长性能无效,可能是由于使用了成年雄性蛋鸡,不需要太多的代谢能量。Makled等[15]研究发现,17.6×107 CFU/g的乳酸菌复合菌对21日龄前雏鸡的生长性能无显著影响,可能是由于使用脂质包衣包裹乳酸菌的饲喂方式,在雏鸡肠道功能和消化酶活性发育不完全的起始期,脂质包被在肠道中未完全乳化影响了乳酸菌活性。综上所述,益生菌对动物生长性能的有益作用存在差异,这种差异可能是由许多因素造成的,包括使用的微生物种类和制备方法、给药浓度和方式以及肉鸡特征(年龄、品种和生产阶段)、饲粮组成和卫生条件等。

3.2 复合益生菌对肉鸡肠道免疫功能的影响

IgA与IgG含量被认为是反映动物免疫状态的重要指标。唐志刚等[16]和Min等[17]在基础饲粮中分别添加1×10⁶和4×10⁵ CFU/g枯草芽孢杆菌,发现益生菌提高了肉鸡肠黏膜分泌型免疫球蛋白A(sIgA)含量。Yang等[18]研究显示,8×1010 CFU/g的复合益生菌(包含枯草芽孢杆菌Bs964、产朊假丝酵母BKM-Y74和嗜酸乳杆菌LH1F)在第7天提高了蛋鸡肠道黏膜IgA含量。Bai等[19]发现,1.0×1011 CFU/g的枯草芽孢杆菌fmbj提高了肉鸡小肠sIgA含量。王博[20]研究表明,复合益生菌制剂可促进断奶仔猪的免疫调节。本研究得到相同的结果,即复合益生菌对肠道内免疫球蛋白的产生有促进效应,以益生菌Ⅲ组的促进效应最佳。益生菌Ⅲ组作用效果最佳的原因可能是双歧杆菌活菌数的增加可以产生更多的短链脂肪酸(SCFAs),进而调控免疫球蛋白的产生。益生菌通过提高球蛋白含量来刺激免疫器官的生长发育,诱导产生调节适应性免疫反应的细胞因子,保护肠道与机体免受细菌和病毒感染,进而提高免疫功能[21]。益生菌增强肠道免疫能力的作用模式可能为:益生菌及其代谢产物可作为一种抗原,刺激浆细胞分泌产生sIgA,诱导肠道局部免疫反应。
促炎与抗炎细胞因子功能的平衡是机体维持正常免疫功能的关键。本试验中复合益生菌可提高肉鸡肠道促炎与抗炎因子的表达,使肠道黏膜内IL-2、IL-10的含量提高,且以益生菌Ⅱ组、Ⅲ组的效应较佳。Haller等[22]报道,乳酸菌可增加单核细胞系中Th1细胞因子的产生。高权新[23]研究表明,益生菌可通过提高肠道内IL-10的表达来增强肠道免疫。炎症是一种保护性防御机制,它引发对感染和各种创伤的免疫反应,加快身体恢复过程。益生菌诱发IL-2的表达,促进Th1细胞分化,增强细胞免疫,从而抑制肿瘤和疾病的发生[24]。促炎因子的高度表达诱导巨噬细胞分泌大量的IL-10积聚在炎症部位,抑制肠道炎症,保护肠道黏膜免疫屏障,提高抗病力。益生菌的免疫调节能力可能是由于代谢产物SCFAs可活化G蛋白偶联受体41(GPR41)和G蛋白偶联受体43(GPR43),从而产生不同的细胞因子。

3.3 复合益生菌对肉鸡肠道屏障功能的影响

紧密连接蛋白常被用作观察肠道通透性功能的指标。此外,MUC2具有阻止病原体入侵、启动免疫反应、改善肠屏障功能的作用[25]。张中伟等[26]研究表明,乳酸菌可降低大肠杆菌在肠上皮的黏附,通过上调紧密连接蛋白表达来减轻肠道感染。Paparo等[27]研究表明,芽孢杆菌可上调紧密连接蛋白与黏蛋白的表达来保护肠上皮细胞免受轮状病毒的感染。李秋粉[28]的研究也表明1×10⁹ CFU/g的乳酸菌可显著提高肠黏膜紧密连接蛋白的丰度,缓解肠道受损,修复肠道屏障。益生菌也可通过增加大鼠体内ZO-1和occludin的表达来降低结肠上皮通透性[29]。本研究也有相同的结果,复合益生菌可改善肉鸡肠道黏膜屏障,且益生菌Ⅲ组的效应最佳,而益生菌Ⅱ组、Ⅰ组分别在生长初期、后期效应最佳。益生菌Ⅲ组作用效果最佳的原因可能是增加双歧杆菌的活菌数使得双歧杆菌产生的代谢产物增加,这些物质可抑制病原体黏附,保护肠道上皮屏障,并增强紧密连接蛋白的表达。益生菌改善肠道屏障功能的主要机制可能是通过调控肠道微生态来上调MUC2的基因表达,促进杯状细胞分泌黏蛋白,黏蛋白占据微生物结合位点,为微生物入侵创造重要的防线;上调上皮细胞紧密连接蛋白的基因表达,防止大分子的传播;上调肠道IL-10的基因表达,抑制肠道炎症,保护肠道结构完整性。

3.4 复合益生菌对肉鸡肠道抗氧化能力的影响

环境压力会打破正常生理状态下的平衡,加速氧化物质产生并导致自由基功能失常,诱发氧化应激。此时需要抗氧化酶来清除过量的活性氧,构成抵御氧化损伤第1道防线。研究表明,益生菌可作为一种天然抗氧化剂保护宿主免受氧化损伤[30]。Allam等[31]研究发现,乳杆菌通过提高抗氧化酶的活性来恢复四氯化碳对肝脏的损伤。研究表明,益生菌可诱导肉仔鸡[32]和拉氏大吻鱥[33]具有较强的抗活性氧能力,提高抗病能力。在本试验中也有相同的结果,复合益生菌可通过提高抗氧化酶活性来增强肉鸡的抗氧化能力,且益生菌Ⅲ组的增强效应最佳,而益生菌Ⅰ组、Ⅱ组分别在生长前期、后期具有最佳的增强效应。抗氧化酶如SOD可将线粒体电子传递链产生的初级活性氧超氧自由基转化为过氧化氢(H2O2),之后GSH-Px利用还原型谷胱甘肽还原为水或相应的醇,防止氧化应激导致肉鸡生长性能的下降、肉质变质和免疫抑制。Nrf2是细胞抵抗氧化应激的一种多功能调节因子,可以调节其下游靶基因如抗氧化酶与HO-1的表达,其表达上调可参与异生素和活性氧解毒,以抵抗氧化剂和亲电环境应激源,成为氧化应激下细胞自我保护的一种适应性机制。Ho等[34]研究表明,乳杆菌复合菌可恢复半乳糖处理衰老小鼠肝脏中Nrf2和HO-1的表达,提高抗氧化酶活性,增强衰老小鼠的抗氧化防御系统。Malyar等[35]研究表明,益生菌可提高Nrf2 mRNA的表达量,保护大鼠免受热应激诱导的氧化应激。本研究也有相同观点,复合益生菌可提高肉鸡肠道的抗氧化能力,可能是通过提高肠道抗氧化能力来提高整个机体抵抗氧化应激的能力。HO-1、SOD、GSH-Px是典型的Ⅱ期代谢酶,具有抗氧化反应元件(ARE)结合元件结构。在氧化应激下,Nrf2可从其胞质抑制因子Kelch样环氧氯丙烷相关蛋白1(Keap1)中释放并作为转录因子进入细胞核,磷酸化的Nrf2可与ARE结合,实现其调节第2阶段代谢酶基因表达的功能[36]。Nrf2对HO-1及抗氧化酶的调节作用可激活各种酶或非酶化合物作为抗氧化剂,维持细胞氧化还原状态平衡。因此推测,益生菌可能通过调节肠道抗氧化酶及相关基因的表达来增强肉鸡的抗氧化能力,维护肠道功能。

3.5 复合益生菌对肉鸡肠道细胞凋亡的影响

凋亡是进化上保守的细胞死亡途径,负责在发育过程中适当地剔除细胞并维持生物体内稳态。在线粒体介导的内源性细胞凋亡途径中,Bcl-2家族蛋白可分为2类:一类为抑凋亡蛋白,如Bcl-2,可阻止线粒体孔的形成,保持膜的完整性,防止细胞色素C渗漏,延长细胞生长期;另一类为促凋亡蛋白,如Bax,可降低线粒体膜电位,破坏膜的完整性。因此,细胞内Bcl-2与Bax的平衡是影响细胞生长活性的关键因素[37]。此外,半胱天冬酶(Caspases)是凋亡和细胞分解信号通路的中介。近年来研究表明,益生菌及其分泌成分可通过调控BaxBcl-2的表达来延长正常细胞存活周期和促进癌细胞的凋亡。Gharib-Naseri等[38]研究表明,1×106 CFU/g的芽孢杆菌可降低肠炎感染肉鸡Caspases-3的相对表达量,降低肠道细胞损伤。Xin等[39]研究表明,1×109 CFU/mL的乳杆菌可逆转氟化物感染小鼠中Bcl-2含量的减少和Caspase-3含量的增加,抑制神经元凋亡。Sun等[40]与Nowak等[41]研究表明,乳酸杆菌及其分泌成分可激活Caspase-3,发挥抗癌细胞增殖和促凋亡作用。本试验中复合益生菌可通过上调Bcl-2、下调BaxCaspase-3的表达来抑制肠道细胞凋亡途径活化,防止肠道上皮细胞过度损伤,维持肠道功能,其中以益生菌Ⅲ组的效果最佳,益生菌Ⅲ组作用效果最佳的原因可能是增加双歧杆菌的活菌数后,其产生的代谢产物增多,阻断细胞因子诱导的细胞凋亡。综上可知,益生菌可能通过调节细胞凋亡相关基因的表达来激活细胞凋亡通路,维护肠道健康。

4 结论

由干酪乳杆菌、嗜酸乳杆菌与双歧杆菌以不同比例配制成的复合益生菌均能够提高肉鸡的生长性能,增强肠道抗氧化功能和免疫功能,减轻肠道细胞凋亡,且以混合比例为1∶1∶2时对肉鸡的作用效果最佳。
[1]
刘冰冰. 饲料中添加枯草芽孢杆菌和解淀粉芽孢杆菌对鸡的产蛋率、免疫水平及鸡蛋品质的影响[D].硕士学位论文. 沈阳: 辽宁大学, 2022.

LIU B B. Effects of Bacillus subtilis and Bacillus amylum supplementation on laying rate,immune level of chickens and egg quality[D].Master’s Thesis. Shenyang: Liaoning University, 2022. (in Chinese)

[2]
JAFARI M T, KHAYAMIAN T, SHAER V, et al. Determination of veterinary drug residues in chicken meat using corona discharge ion mobility spectrometry[J]. Analytica Chimica Acta, 2007, 581(1):147-153.

PMID

[3]
施安辉, 周波. 乳酸菌分类、生理特性及在食品酿造工业上的应用[J]. 中国调味品, 2001(11):3-8.

SHI A H, ZHOU B. Classification and physiologic character of Lactobacillus and application in production[J]. China Condiment, 2001(11):3-8. (in Chinese)

[4]
RADICIONI M, KOIRALA R, FIORE W, et al. Survival of L. casei DG (Lactobacillus paracasei CNCMI1572) in the gastrointestinal tract of a healthy paediatric population[J]. European Journal of Nutrition, 2019, 58(8):3161-3170.

DOI

[5]
TIMMERMAN H M, KONING C J M, MULDER L, et al. Monostrain,multistrain and multispecies probiotics—a comparison of functionality and efficacy[J]. International Journal of Food Microbiology, 2004, 96(3):219-233.

DOI

[6]
VANDERHOOF J A. Probiotics:future directions[J]. The American Journal of Clinical Nutrition, 2001, 73(6):1152S-1155 S.

[7]
TALEBI A, AMIRZADEH B, MOKHTARI B, et al. Effects of a multi-strain probiotic (PrimaLac) on performance and antibody responses to Newcastle disease virus and infectious bursal disease virus vaccination in broiler chickens[J]. Avian Pathology, 2008, 37(5):509-512.

DOI PMID

[8]
刘石, 刘静, 陈庄, 等. 饮水中添加复合益生菌对岭南黄羽肉鸡生长性能和肠道微生物菌群结构的影响[J]. 中国畜牧兽医, 2022, 49(1):98-108.

LIU S, LIU J, CHEN Z, et al. Effects of compound probiotics added to drinking water on growth performance and intestinal microflora in Lingnan yellow feather broilers[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(1):98-108. (in Chinese)

[9]
ZHANG L H, WANG Y F, ZHANG R N, et al. Effects of three probiotics and their interactions on the growth performance of and nutrient absorption in broilers[J]. PeerJ, 2022, 10:e13308.

DOI

[10]
邢爽, 冯京海. 乳酸杆菌对肉鸡生长性能影响的Meta分析[J]. 中国农业科学, 2020, 53(1):183-190.

DOI

XING S, FENG J H. Effects of Lactobacillus supplements on growth performance of broilers:a meta-analysis[J]. Scientia Agricultura Sinica, 2020, 53(1):183-190. (in Chinese)

[11]
董佳楠, 易晓菲, 张维刚, 等. 乳酸菌和酵母菌复合培养物对肉仔鸡生长性能的影响[J]. 饲料工业, 2019, 40(6):17-22.

DONG J N, YI X F, ZHANG W G, et al. Effect of compound culture of lactic acid bacteria and yeast on growth performance of broilers[J]. Feed Industry, 2019, 40(6):17-22. (in Chinese)

[12]
刘淑娇, 张东旭, 刘丽敏. 复合益生菌制剂对肉仔鸡生产性能、血清生化指标和免疫功能的影响[J]. 中国饲料, 2019(2):34-38.

LIU S J, ZHANG D X, LIU L M. Effects of compound probiotics on growth performance,serum biochemical indexes and immunity function of broilers[J]. China Feed, 2019(2):34-38. (in Chinese)

[13]
王雪飞, 班慧, 王炼, 等. 苦豆籽粕-双歧杆菌合生元对肉鸡生产性能及肠道黏膜形态结构的影响[J]. 中国兽医学报, 2015, 35(3):497-506.

WANG X F, BAN H, WANG L, et al. The effects of the foxtail-like sophara seed’s dregs-Bifidobacterum synbiotics on performace and intestinal mucosal morphology in broilers[J]. Chinese Journal of Veterinary Science, 2015, 35(3):497-506. (in Chinese)

[14]
SAMANYA M, YAMAUCHI K E. Histological alterations of intestinal villi in chickens fed dried Bacillus subtilis var. natto[J]. Comparative Biochemistry and Physiology.Part A,Molecular & Integrative Physiology, 2002, 133(1):95-104.

[15]
MAKLED M N, ABOUELEZZ K F M, GAD-ELKAREEM A E G, et al. Comparative influence of dietary probiotic,yoghurt,and sodium butyrate on growth performance,intestinal microbiota,blood hematology,and immune response of meat-type chickens[J]. Tropical Animal Health and Production, 2019, 51(8):2333-2342.

DOI

[16]
唐志刚, 温超, 王恬, 等. 在不同营养水平日粮中添加益生菌对肉鸡抗氧化功能、黏膜免疫及回肠菌群的影响[J]. 中国粮油学报, 2013, 28(1):70-75.

TANG Z G, WEN C, WANG T, et al. Effects of probiotics on antioxidant function,mucosal immunity and ileum microflora in broilers fed diets with different nutrient levels[J]. Journal of the Chinese Cereals and Oils Association, 2013, 28(1):70-75. (in Chinese)

[17]
MIN Y N, YANG H L, XU Y X, et al. Effects of dietary supplementation of synbiotics on growth performance,intestinal morphology,sIgA content and antioxidant capacities of broilers[J]. Journal of Animal Physiology and Animal Nutrition, 2016, 100(6):1073-1080.

DOI

[18]
YANG Y R, SHE R P, ZHENG S M, et al. Effect of probiotics on intestinal mucosal immunity and ultrastructure of cecal tonsils of chickens[J]. Archives of Animal Nutrition, 2005, 59(4):237-246.

PMID

[19]
BAI K W, FENG C C, JIANG L Y, et al. Dietary effects of Bacillus subtilis fmbj on growth performance,small intestinal morphology,and its antioxidant capacity of broilers[J]. Poultry Science, 2018, 97(7):2312-2321.

DOI

[20]
王博. 益生菌、果寡糖对后备母猪生长性能、免疫功能和肠道微生物的影响研究[D].硕士学位论文. 北京: 中国农业科学院, 2015.

WANG B. Effects of diets supplemented with probiotics and fructooligosaccharide on growth performance,immunity and intestinal flora of replacement gilts[D].Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2015. (in Chinese)

[21]
俞昊男, 刘志华. 肠道微生物与黏膜免疫研究的前沿进展[J]. 中国免疫学杂志, 2019, 35(16):1921-1930.

YU H N, LIU Z H. Recent progress in intestinal microbiota and mucosal immunity[J]. Chinese Journal of Immunology, 2019, 35(16):1921-1930. (in Chinese)

[22]
HALLER D, BLUM S, BODE C, et al. Activation of human peripheral blood mononuclear cells by nonpathogenic bacteria in vitro:evidence of NK cells as primary targets[J]. Infection and Immunity, 2000, 68(2):752-759.

DOI

[23]
高权新. 丁酸梭菌与肠道上皮细胞互作的分子机制的研究[D].博士学位论文. 杭州: 浙江大学, 2012.

GAO Q X. Study on molecular mechanism of the interaction between Clostridium butyricum and intestinal epithelial cells[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2012. (in Chinese)

[24]
张鑫, 郭军. 益生菌与肠道黏膜免疫研究进展[J]. 畜牧与饲料科学, 2017, 38(11):58-64.

ZHANG X, GUO J. Research progress on association of probiotics with intestinal mucosal immunity[J]. Animal Husbandry and Feed Science, 2017, 38(11):58-64. (in Chinese)

[25]
OHLAND C L, MACNAUGHTON W K. Probiotic bacteria and intestinal epithelial barrier function[J]. American Journal of Physiology Gastrointestinal and Liver Physiology, 2010, 298(6):G807-G819.

DOI

[26]
张中伟, 秦环龙. 乳酸菌对感染肠上皮细胞通透性及紧密连接蛋白表达的影响[J]. 肠外与肠内营养, 2007, 14(4):193-196,200.

ZHANG Z W, QIN H L. Effect of Lactobacillus plantarun Onlly regulating intestinal epithelial permeability and tight junction response to pathogenic bacteria[J]. Parenteral & Enteral Nutrition, 2007, 14(4):193-196,200. (in Chinese)

[27]
PAPARO L, TRIPODI L, BRUNO C, et al. Protective action of Bacillus clausii probiotic strains in an in vitro model of Rotavirus infection[J]. Scientific Reports, 2020, 10(1):12636.

DOI

[28]
李秋粉. 益生菌对热应激肉鸡肠道屏障功能的影响[D].硕士学位论文. 南昌: 江西农业大学, 2017.

LI Q F. Effect of probiotic on intestinal barrier function of heat-stressed broilers[D].Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2017. (in Chinese)

[29]
MENNIGEN R, NOLTE K, RIJCKEN E, et al. Probiotic mixture VSL3 protects the epithelial barrier by maintaining tight junction protein expression and preventing apoptosis in a murine model of colitis[J]. American Journal of Physiology.Gastrointestinal and Liver Physiology, 2009, 296(5):G1140-G1149.

[30]
贺驭, 孔祥峰, 王振勇, 等. 益生菌抗氧化机制的研究进展[J]. 中国家禽, 2017, 39(24):41-44.

HE Y, KONG X F, WANG Z Y, et al. Advances in antioxidant mechanisms of probiotics[J]. China Poultry, 2017, 39(24):41-44. (in Chinese)

[31]
ALLAM N G, EL-SHEEKH M M, SARHAN N I, et al. A new trend in the medication of hepatocyte cytoxicity in mice:protective role of probiotic bacteria[J]. Environmental Science and Pollution Research International, 2021, 28(2):1555-1564.

DOI

[32]
董秀梅, 张超范, 魏萍. 复合微生态制剂对肉仔鸡肠道菌群及抗氧化机能的影响[J]. 中国家禽, 2004, 26(14):11-13.

DONG X M, ZHANG C F, WEI P. The effect of compound probiotics on intestinal bacteria and anti-oxidation in broilers[J]. China Poultry, 2004, 26(14):11-13. (in Chinese)

[33]
YU Z, DAI Z Y, QIN G X, et al. Alleviative effects of dietary microbial floc on copper-induced inflammation,oxidative stress,intestinal apoptosis and barrier dysfunction in Rhynchocypris lagowski Dybowski[J]. Fish & Shellfish Immunology, 2020, 106:120-132.

[34]
HO S T, HSIEH Y T, WANG S Y, et al. Improving effect of a probiotic mixture on memory and learning abilities in D-galactose-treated aging mice[J]. Journal of Dairy Science, 2019, 102(3):1901-1909.

DOI

[35]
MALYAR R M, NASERI E, LI H, et al. Hepatoprotective effects of selenium-enriched probiotics supplementation on heat-stressed Wistar rat through anti-inflammatory and antioxidant effects[J]. Biological Trace Element Research, 2021, 199(9):3445-3456.

DOI PMID

[36]
CHEN X M, WANG Q J, GUO Z X, et al. Effects of dietary oxidized fish oil on growth performance and antioxidant defense mechanism of juvenile Rhynchocypris lagowski Dybowski[J]. Aquaculture, 2019, 512:734368.

DOI

[37]
高薇, 侯微, 李伟, 等. 细胞凋亡机制研究进展[J]. 中国畜牧兽医, 2014, 41(10):150-156.

GAO W, HOU W, LI W, et al. Research progress on cell apoptosis mechanism[J]. China Animal Husbandry & Veterinary Medicine, 2014, 41(10):150-156. (in Chinese)

[38]
GHARIB-NASERI K, DE PAULA DORIGAM J C, DORANALLI K, et al. Modulations of genes related to gut integrity,apoptosis,and immunity underlie the beneficial effects of Bacillus amyloliquefaciens CECT 5940 in broilers fed diets with different protein levels in a necrotic enteritis challenge model[J]. Journal of Animal Science and Biotechnology, 2020, 11:104.

DOI

[39]
XIN J G, ZENG D, WANG H S, et al. Lactobacillus johnsonii BS15 improves intestinal environment against fluoride-induced memory impairment in mice-a study based on the gut-brain axis hypothesis[J]. PeerJ, 2020, 8:e10125.

DOI

[40]
SUN M Y, LIU W W, SONG Y L, et al. The effects of Lactobacillus plantarum-12 crude exopolysaccharides on the cell proliferation and apoptosis of human colon cancer (HT-29) cells[J]. Probiotics and Antimicrobial Proteins, 2021, 13(2):413-421.

DOI

[41]
NOWAK A, PALIWODA A, BŁASIAK J. Anti-proliferative,pro-apoptotic and anti-oxidative activity of Lactobacillus and Bifidobacterium strains:a review of mechanisms and therapeutic perspectives[J]. Critical Reviews in Food Science and Nutrition, 2019, 59(21):3456-3467.

DOI

Outlines

/