RESEARCH PAPER

Effects of Proline on Growth Performance, Antioxidant Capacity and Resistance to Aeromonas hydrophila Infection of Pelodiscus sinensis

  • DENG Zilian ,
  • SONG Wei ,
  • RUI Qianlong ,
  • SHI Changhao ,
  • ZHANG Jikai ,
  • LI Caiyan , *
Expand
  • College of Biology and Environment, Zhejiang Wanli University, Ningbo 315000, China
*professor, E-mail:

Received date: 2022-10-18

  Online published: 2023-05-11

Abstract

The aim of this study was to investigate the effects of proline on growth performance, antioxidant capacity and resistance to Aeromonas hydrophila infection of Pelodiscus sinensis. Forty-eight healthy young Pelodiscus sinensis with an initial body weight of about 200 g were randomly divided into control group (P0 group) and proline group (P4 group), which fed diets supplemented with 0 (basal diet) and 40 g/kg proline, respectively, and each group had 3 replicates and each replicate had 8 turtles. The experiment lasted for 42 days. After the feeding experiment, 3 turtles were randomly selected from each group to be intraperitoneally injected with 1 mL Aeromonas hydrophila (Ah) bacteria solution, and labeled as P0+Ah group and P4+Ah group, respectively; another 3 turtles were randomly selected in each group to be intraperitoneally injected with the same amount of sterile normal saline and labeled as P0+NS group and P4+NS group, respectively. After 24 h of challenge, the relevant indices were determined by sampling. The results showed as follows: 1) compared with the control group, the survival rate, weight gain rate and specific growth rate of Pelodiscus sinensis in proline group were significantly increased (P<0.05), but there were no significant differences in hepatosomatic ratio and viscerosomatic ratio (P>0.05). 2) Compared with P0+NS group, the activities of glutathione peroxidase (GSH-Px) and superoxide dismutase (SOD) in calipash tissues of Pelodiscus sinensis in P4+NS group were significantly improved (P<0.05), and the production rate of mitochondrial reactive oxygen species (ROS) was significantly decreased (P<0.05). Under Ah stress, compared with P0+Ah group, the activities of GSH-Px and SOD in calipash tissues in P4+Ah group were significantly increased (P<0.05), while the production rate of mitochondrial ROS was significantly decreased (P<0.05). 3) Compared with P0+NS group, the content of proline and hydroxyproline in calipash tissues of Pelodiscus sinensis in P4+NS group was significantly improved (P<0.05). Under Ah stress, compared with P0+Ah group, the contents of proline and hydroxyproline in calipash tissues in P4+Ah group were significantly increased (P<0.05). 4) Compared with P0+NS group, the mRNA relative expression levels of collagen type Ⅰ A1 (COL1A1), collagen type Ⅰ A2 (COL1A2), prolyl 4-hydroxylase A1 (P4HA1), prolyl 4-hydroxylase A3 (P4HA3), transforming growth factor-β2 (TGF-β2) and transforming growth factor-β3 (TGF-β3) in calipash tissues of Pelodiscus sinensis in P4+NS group were significantly increased (P<0.05), and the mRNA relative expression levels of tissue metalloproteinase inhibitor 2 (TIMP2) and tissue metalloproteinase inhibitor 4 (TIMP4) were significantly decreased (P<0.05). Under Ah stress, compared with P0+Ah group, the mRNA relative expressions of COL1A1, COL1A2, P4HA1, P4HA3, TGF-β2, TGF-β3, matrix metalloproteinase 1 (MMP1), matrix metalloproteinase 2 (MMP2), TIMP2 and TIMP4 in calipash tissues in P4+Ah group were significantly increased (P<0.05). 5) Histological studies had shown that the collagen layer in calipash tissues of Pelodiscus sinensis in P4+NS group was clearly delimited and the collagen fibers were orderly arranged, while that in P4+Ah group tended to be blurred and disordered, and the collagen fibers tended to be degraded internally. In conclusion, dietary supplementation of 40 g/kg proline can improve the growth performance of young Pelodiscus sinensis, and also play a role in resisting Ah stress by enhancing the activity of antioxidant enzymes, reducing ROS production and balancing collagen metabolism.

Cite this article

DENG Zilian , SONG Wei , RUI Qianlong , SHI Changhao , ZHANG Jikai , LI Caiyan . Effects of Proline on Growth Performance, Antioxidant Capacity and Resistance to Aeromonas hydrophila Infection of Pelodiscus sinensis[J]. Chinese Journal of Animal Nutrition, 2023 , 35(5) : 3213 -3227 . DOI: 10.12418/CJAN2023.299

中华鳖(Pelodiscus sinensis)是我国传统的营养保健水产品,深受人们喜爱[1-2]。近年来,我国养鳖业快速发展,2021年全国鳖产量高达36.49万t[3]。在集约化养殖中,中华鳖会面临营养不良、细菌感染、冷热胁迫和运输密集等应激因素的影响[4],导致生产效益降低。在致使中华鳖发病的各种病原中以细菌性疾病最易出现,其中又以嗜水气单胞菌(Aeromonas hydrophila,Ah)致病造成的损失最为严重[5-6]。裙边是中华鳖背甲周围最具有特色的营养组织,一直以来都是评价其营养品质的关键。裙边中胶原蛋白含量非常丰富,且主要为Ⅰ型胶原蛋白,并含有大量具有生物活性的氨基酸。正常情况下,裙边组织饱满坚挺,但是在应激状态下容易发生塌陷和褶皱,从而影响其经济价值。本课题组前期研究表明,中华鳖受到应激时裙边组织胶原蛋白会发生降解[7],且可能与胶原的组成和结构有关。
脯氨酸是组成蛋白质唯一的亚氨基酸[8],广泛分布于各种动植物中,对维持蛋白质骨架结构有着重要的作用,因此也是胶原蛋白的特征性氨基酸。早期观点认为,脯氨酸是动物营养中的非必需氨基酸,但大量研究表明,脯氨酸在营养代谢中发挥许多重要和独特的生理功能,是水产动物的条件性必需氨基酸或功能性氨基酸[9-10],在调节炎症反应、减少氧化应激等方面发挥了重要作用[11-12]。荣华等[13-14]研究发现,饲料中添加脯氨酸有助于提高浅色黄姑鱼(Nibea coibor)鱼体粗蛋白质含量和抗氧化能力,并且影响浅色黄姑鱼鱼鳔组织中涉及Ⅰ型胶原蛋白和脯氨酰4-羟化酶(P4H)等胶原蛋白代谢相关基因的表达。Lin等[15]研究也发现,饲料中添加脯氨酸可以促进浅色黄姑鱼胶原蛋白沉积。饲料中添加适宜水平的脯氨酸可以增加鱼体羟脯氨酸含量,提高机体总抗氧化能力以及机体抗逆性[16]。目前,关于脯氨酸对龟鳖类营养生理的研究较少,脯氨酸是否具有影响中华鳖裙边胶原蛋白沉积从而抵抗应激的作用尚不清楚。探讨脯氨酸对Ah感染中华鳖的响应机制,对于研发抗病抗逆功能的饲料添加剂进而探讨水产动物的抗病营养、提升环境适应能力具有重要的科学价值和现实意义。
因此,本研究通过开展在饲料中添加脯氨酸的养殖试验和Ah的感染试验,探讨脯氨酸对中华鳖生长性能、抗氧化能力和抗细菌应激作用的影响,并基于胶原物质沉积,分析脯氨酸对细菌应激状态下中华鳖裙边氨基酸组成、胶原蛋白分布、胶原蛋白代谢相关基因mRNA表达及胶原蛋白含量的影响,以期从胶原蛋白代谢的角度揭示脯氨酸对中华鳖抗应激的作用机制,为脯氨酸在中华鳖配合饲料中的应用提供科学参考。

1 材料与方法

1.1 试验饲料

本试验饲料以鱼粉(粗蛋白质含量为69%,秘鲁进口)、大豆浓缩蛋白(粗蛋白质含量为80%,山东华瑞生物科技有限公司)和大豆油为主要原料配制出等氮等脂饲料。参考中华鳖对饲料中氨基酸的需求量[17],对照组(P0组)和脯氨酸组(P4组)饲料中分别添加0(基础饲料)和40 g/kg脯氨酸,2组饲料中实际检测到的脯氨酸含量分别为4.98和45.11 g/kg。饲料组成及营养水平见表1,饲料氨基酸组成见表2
表1 饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis) g/kg

项目Items 对照组Control group 脯氨酸组Proline group
原料Ingredients
鱼粉Fish meal1) 520.0 520.0
α-淀粉α-starch 160.0 120.0
大豆浓缩蛋白Soy protein concentrate 170.0 170.0
酵母粉Yeast powder 20.0 20.0
大豆油Soybean oil 100.0 100.0
维生素预混料Vitamin premix2) 15.0 15.0
矿物质预混料Mineral premix3) 15.0 15.0
脯氨酸Proline 40.0
合计Total 1 000.0 1 000.0
营养水平Nutrient levels4)
粗蛋白质CP 437.8 439.1
粗脂肪EE 94.5 96.1
粗灰分Ash 75.7 75.5
水分Moisture 102.3 101.9

1)秘鲁进口鱼粉,粗蛋白质含量为69%。Fish meal was imported from Peru, with crude protein content of 69%.

2)每千克维生素预混料含有 One kilogram of vitamin premix contained the following:VA 2 200 000 IU,VD3 320 000 IU,VE 9 200 IU,VK3 2 g,VB1 3 g,VB2 5.6 g,VB6 2 g,VB12 16 mg,叶酸 folic acid 0.8 g,泛酸 pantothenic acid 4 g,烟酸 nicotinic acid 15.6 g,肌醇 inositol 25.6 g,生物素 biotin 16 mg。

3)每千克矿物质预混料含有 One kilogram of mineral premix contained the following:MgSO4 15 g,FeSO4 2.5 g,CuSO4 0.031 g,MnSO4 0.162 g,ZnSO4 0.353 g,KIO3 0.003 g,Na2SeO3 0.003 g,CoSO4 0.001 g。

4)营养水平为实测值。Nutrient levels were measured values.

表2 饲料氨基酸组成(干物质基础)

Table 2 Amino acid composition of diets (DM basis) %

项目Items 对照组Control group 脯氨酸组Proline group
天冬氨酸Asp 4.872 4.894
苏氨酸Thr 1.929 1.859
丝氨酸Ser 2.131 2.097
谷氨酸Glu 7.183 7.193
甘氨酸Gly 2.314 2.379
丙氨酸Ala 1.523 1.554
半胱氨酸Cys 0.516 0.528
缬氨酸Val 1.646 1.666
甲硫氨酸Met 0.844 0.868
异亮氨酸Ile 1.365 1.353
亮氨酸Leu 3.752 3.657
酪氨酸Tyr 1.201 1.153
苯丙氨酸Phe 2.564 2.502
赖氨酸Lys 2.762 2.556
组氨酸His 0.842 0.820
精氨酸Arg 1.961 1.934
脯氨酸Pro 0.498 4.511
总氨基酸Total amino acids 37.903 41.524

1.2 试验动物与饲养管理

养殖试验在浙江万里学院水生动物养殖室进行。选择同一批次孵化的幼鳖,用基础饲料投喂驯化2周,使其逐渐适应饲料和养殖环境。然后挑选健康、规格一致的中华鳖48只(初始平均体重约为200 g),消毒后随机分到6个养殖水箱(50 cm×50 cm×50 cm)中,每个水箱8只。试验期42 d。试验期间,按照体重2%~3%进行饱食投喂,每天投喂2次,第2次喂食前清除残饵,观察幼鳖活动情况,记录发病死亡数。

1.3 应激试验及样品收集

采用活化后的Ah(T4株由南京农业大学陆承平教授分离自患病中华鳖,本实验室保存,浓度为1.3×10⁷ CFU/mL)进行中华鳖攻毒试验。在投喂各组饲料42 d后,从各组随机选择3只中华鳖经腹腔(腹甲与左后腿间凹陷处进针)注射1 mL的Ah菌液,分别标记为P0+Ah组和P4+Ah组;再各组随机选择另3只中华鳖经腹腔注射等量无菌生理盐水,分别标记为P0+NS组和P4+NS组。中华鳖攻毒24 h后断头取血,分离血清冻存备用;采血后解剖取肝脏、内脏称重,另取裙边组织液氮速冻保存。

1.4 饲料营养成分分析

饲料干物质、粗蛋白质、粗脂肪和粗灰分含量参照AOAC(2002)进行检测。采用自动水分仪(MEITLER HE53,瑞士)测定粗水分含量,采用全自动凯氏定氮仪(FOSS 8400,丹麦)测定粗蛋白质含量,采用全自动脂肪抽提仪(FOSS ST310,丹麦)测定粗脂肪含量,采用马弗炉在550 ℃下灼烧6 h测定粗灰分含量。

1.5 抗氧化指标测定

中华鳖裙边组织中谷胱甘肽过氧化物酶(GSH-Px)和超氧化物歧化酶(SOD)活性采用南京建成生物工程研究所的试剂盒测定,线粒体活性氧(ROS)产生速率采用苏州科铭生物技术有限公司的试剂盒测定。

1.6 氨基酸含量测定

饲料和裙边组织中氨基酸含量采用全自动氨基酸分析仪(L-8900,日本)测定。准确称取干燥的固体样品50 mg,用6 mol/L盐酸在110 ℃条件下水解24 h,水解后取0.2 mL水解液于进样瓶中进行上机分析。

1.7 裙边胶原蛋白含量测定

羟脯氨酸是胶原蛋白的特征氨基酸,其含量变化可以反映总胶原蛋白含量变化。裙边胶原蛋白含量采用羟脯氨酸标准曲线法测定,具体参考Yang等[18]的操作方法。

1.8 裙边组织学染色

采用苏木素-伊红染色(HE)法进行中华鳖裙边组织的组织学分析。将裙边组织在4 ℃下固定于4%多聚甲醛内24 h,分别经无水乙醇梯度脱水、二甲苯透明、浸蜡包埋和切片(6 μm;LEICA RM2235切片机,德国),再进行HE染色,最后用中性树胶封片。Van Gieson(VG)、天狼星红染色法步骤同上。HE、VG染色在正置荧光显微镜(LEICA DM-4000,德国)下观察组织形态及结构,天狼星红染色在偏光显微镜(NIKON LV100NPOL,日本)下观察裙边组织中胶原蛋白分布情况。

1.9 实时荧光定量PCR

采用实时荧光定量PCR进行胶原蛋白合成[Ⅰ型胶原蛋白A1(COL1A1)、Ⅰ型胶原蛋白A2(COL1A2)、脯氨酰4-羟化酶A1(P4HA1)、脯氨酰4-羟化酶A3(P4HA3)、转化生长因子-β2(TGF-β2)和转化生长因子-β3(TGF-β3)]和胶原蛋白降解[基质金属蛋白酶1(MMP1)、基质金属蛋白酶2(MMP2)、组织金属蛋白酶抑制因子2(TIMP2)和组织金属蛋白酶抑制因子4(TIMP4)]关键基因mRNA相对表达量的测定。组织总RNA使用TRIzol试剂进行提取,使用HiScript®Ⅱ逆转录酶试剂盒(Vazyme)合成cDNA,并使用SYBR qPCR Master Mix(Vazyme)进行PCR。扩增循环包括在95 ℃下初始加热30 s,然后进行40个循环,95 ℃、10 s,55~57 ℃、30 s。以P0+NS组中华鳖裙边组织的基因mRNA表达量为基准,以磷酸甘油醛脱氢酶(GAPDH)作为内参基因,并采用2-ΔΔCt法计算目的基因的mRNA相对表达量。引物序列见表3
表3 胶原蛋白代谢相关基因的实时荧光定量PCR引物序列

Table 3 Real-time fluorescent quantitative PCR primer sequences of genes related to collagen metabolism

基因
Genes
引物序列
Primer sequences (5'—3')
退火温度
Tm/℃
扩增长度
Amplification length/bp
磷酸甘油醛脱氢酶GAPDH F:CCTGGTATGACAATGAGTT
R:GTGCCTGGTTTATTCCTT
57 83
Ⅰ型胶原蛋白A1 COL1A1 F:AATATGGTGGTGAGGAATC
R:AGTGGTAGGTGATGTTCT
57 99
Ⅰ型胶原蛋白A2 COL1A2 F:GAGGCAAAGGTGAAAAGG
R:CCAATAGCACCAGGAATAC
57 91
基质金属蛋白酶1 MMP1 F:ACACCAGATATGAATCCA
R:GAGAATTGTCACGATGAT
57 154
基质金属蛋白酶2 MMP2 F:AAGTTGTTAAGGTGAAGTAT
R:AAGTTGTATGTGGTTGAG
57 139
组织金属蛋白酶抑制因子2 TIMP2 F:CTAATTGAGGTGGATTCTGG
R:CGCTCTATGTCCTGCTC
55 110
组织金属蛋白酶抑制因子4 TIMP4 F:GAGTCTTAACCAGAGATA
R:CTTGATACAGGCATAATG
55 160
脯氨酰4-羟化酶A1 P4HA1 F:CTACGGCTCCAGGATACC
R:GACACCTCTCCATCATCAAG
57 197
脯氨酰4-羟化酶A3 P4HA3 F:TGGCTGAAGGACACTGTAGAC
R:GCATACGGCGGCTGAATG
57 174
转化生长因子-β2 TGF-β2 F:GCAGGTATTGATGACTC
R:GGTAATAACATTAGCAGAAG
57 110
转化生长因子-β3 TGF-β3 F:TGATGAACACATAGCAAAG
R:GAAGGACAACCACTCTG
57 79

1.10 计算公式及统计分析方法

存活率(SR,%)=100×Nf/Ni;
增重率(WGR,%)=100×[Wf(g)-Wi(g)]/Wi(g);
特定生长率(SGR,%/d)=100×[lnWf(g)-lnWi(g)]/d;
肝体比(HSI,%)=100×肝脏重(g)/Wf(g);
脏体比(VSI,%)=100×内脏重(g)/Wf(g)。
式中:NfNi分别表示试验终末鳖数和初始鳖数;WfWi分别表示为试验鳖的终末体重和初始体重;d为养殖试验天数。
试验数据均采用Excel 2010和SPSS 25.0软件进行统计分析,其中生长性能指标数据采用独立样本t检验进行分析,其余指标数据均使用单因素方差分析(one-way ANOVA)中的Duncan氏法进行多重比较分析,结果以“平均值±标准误”(mean±SE)表示,P<0.05表示统计学差异显著。

2 结果与分析

2.1 脯氨酸对中华鳖生长性能的影响

表4可知,与对照组相比,脯氨酸组中华鳖存活率、增重率和特定生长率显著提高(P<0.05);但是2组间肝体比和脏体比相近(P>0.05),基本不受饲料脯氨酸水平的影响。
表4 脯氨酸对中华鳖生长性能的影响

Table 4 Effects of proline on growth performance of Pelodiscus sinensis

项目Items 对照组Control group 脯氨酸组Proline group
初始体重IBW/g 185.63±5.09 187.13±5.23
终末体重FBW/g 221.87±5.32 228.19±5.13
增重率WGR/% 19.63±0.53b 22.21±0.70a
特定生长率SGR/(%/d) 0.43±0.01b 0.48±0.01a
存活率SR/% 79.17±4.17b 95.83±4.17a
脏体比VSI/% 5.84±0.17 5.77±0.37
肝体比HSI/% 2.57±0.16 2.47±0.26

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant differences (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 脯氨酸对中华鳖裙边抗氧化指标的影响

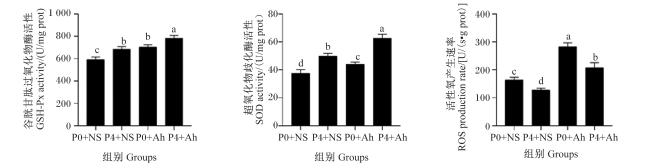
图1可知,与P0+NS组相比,P4+NS组中华鳖裙边组织中GSH-Px和SOD活性显著提高(P<0.05),且线粒体ROS产生速率显著降低(P<0.05)。在Ah应激作用下,与P0+Ah组相比,P4+Ah组裙边组织中GSH-Px和SOD活性显著提高(P<0.05),而线粒体ROS产生速率显著降低(P<0.05)。
图1 脯氨酸对中华鳖裙边抗氧化指标的影响

数据柱标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of proline on antioxidant indices in calipash of Pelodiscus sinensis

Value columns with different small letters mean significant difference (P<0.05). The same as below.

2.3 脯氨酸对中华鳖裙边氨基酸含量的影响

表5可知,与P0+NS组相比,P4+NS组中华鳖裙边组织中胶原蛋白降解特征性氨基酸-脯氨酸和羟脯氨酸含量显著提高(P<0.05)。在Ah应激作用下,与P0+Ah组相比,P4+Ah组裙边组织中脯氨酸和羟脯氨酸含量显著提高(P<0.05)。从整体上看,中华鳖裙边组织氨基酸组成中以甘氨酸含量最高,丙氨酸含量次之。
表5 脯氨酸对中华鳖裙边氨基酸含量的影响

Table 5 Effects of proline on amino acid contents in calipash of Pelodiscus sinensis

项目
Items
组别Groups
P0+NS P4+NS P0+Ah P4+Ah
天冬氨酸Asp 61.61±0.42a 58.87±1.02b 57.92±0.49b 55.17±0.27c
苏氨酸Thr 34.27±0.24a 32.56±0.82ab 31.83±0.42b 30.86±0.56b
丝氨酸Ser 46.39±0.65a 44.54±0.70b 43.42±0.47bc 42.03±0.39c
谷氨酸Glu 93.84±0.69 93.33±1.55 92.19±0.47 90.84±0.56
甘氨酸Gly 301.23±1.18ab 288.54±8.03b 303.73±1.03a 298.42±2.21ab
丙氨酸Ala 130.45±2.75a 129.75±1.03ab 124.22±1.27bc 123.44±1.32c
半胱氨酸Cys 9.56±0.23 9.33±0.50 9.14±0.31 8.88±0.21
缬氨酸Val 29.52±0.93 30.47±0.61 31.05±0.44 30.81±0.25
甲硫氨酸Met 8.89±0.26 9.01±0.46 9.13±0.09 8.99±0.19
异亮氨酸Ile 17.10±0.66 16.73±0.60 17.23±0.25 16.48±0.30
亮氨酸Leu 34.95±0.81 35.82±0.49 34.40±0.75 34.97±0.47
酪氨酸Tyr 9.78±0.40 9.77±0.64 10.27±0.24 9.89±0.21
苯丙氨酸Phe 21.06±0.54a 18.35±0.41b 18.77±0.54b 18.09±0.47b
赖氨酸Lys 30.95±0.44ab 31.84±0.30a 30.94±0.08ab 30.63±0.27b
组氨酸His 14.28±0.18bc 15.34±0.31a 14.20±0.22c 14.97±0.16ab
精氨酸Arg 46.31±0.27a 46.38±0.61a 44.57±0.18b 43.86±0.13b
羟脯氨酸Hyp 49.32±1.20c 56.14±0.92b 57.62±0.61b 60.84±0.27a
脯氨酸Pro 60.50±0.95d 73.21±0.38b 69.36±0.75c 80.82±1.11a

以每1 000个残基中所占残基数表示。

Expressed as residues per 1 000 residues.

2.4 脯氨酸对中华鳖裙边组织学特征的影响

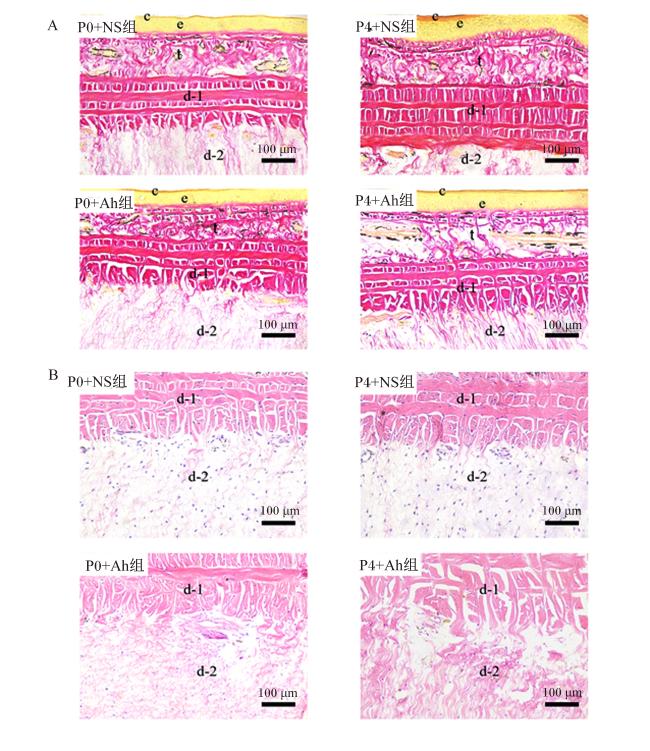
图2显示了中华鳖裙边组织VG和HE染色的组织学特征。饲料中添加脯氨酸后,中华鳖裙边组织结构特征出现明显的区别。从图2-A可以看出,与P0+NS组相比,P4+NS组中华鳖裙边组织过渡层和致密胶原纤维层胶原纤维排列整齐且更加紧密,且真皮层厚度有所增加。在Ah应激作用下,P0+Ah组和P4+Ah组裙边组织过渡层胶原纤维均变得紊乱无序,但在P4+Ah组过渡层出现了空泡,并且其胶原纤维层的细纤维排列松散及有向组织内部迁移的趋势。
图2 脯氨酸对中华鳖裙边组织学特征的影响

A:VG染色 VG staining (200×);B:HE染色 HE staining (200×);c:角质层 stratum corneum;e:表皮层 epidermis;t:过渡层 transition layer;d-1:致密胶原纤维层 dense collagen fiber layer;d-2:疏松胶原纤维层 loose collagen fiber layer。

Fig.2 Effects of proline on histological characteristics of calipash of Pelodiscus sinensis

图2-B可以看出,与P0+NS组相比,P4+NS组中华鳖裙边组织结构清晰且排列有序,具有明显分层。在Ah应激作用下,P0+Ah组和P4+Ah组均出现胶原纤维层之间边界不清晰、松散胶原结缔组织中纤维弯曲、纤维束方向不一致以及排列紊乱的现象,且在P4+Ah组裙边组织中观察到原本纵横交替排列规则的致密胶原纤维层纤维束排列变得无序,以及向组织内部移动的趋势更明显,与上述VG染色结果一致。

2.5 脯氨酸对中华鳖裙边胶原蛋白含量的影响

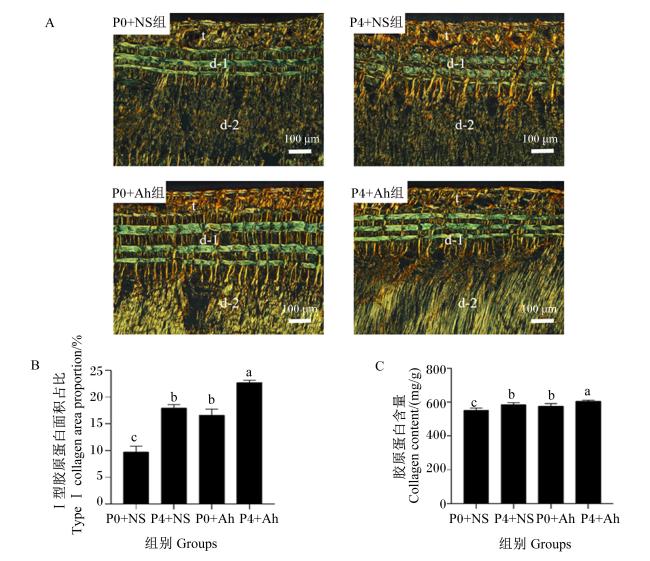
饲料中添加脯氨酸对感染Ah中华鳖裙边组织中胶原蛋白沉积,包括Ⅰ型胶原蛋白含量和不同类型胶原蛋白分布的影响如图3所示。从整体上看,与P0+NS组相比,P4+NS组双折射随着偏振橙色或红色的增强而增加,松散的胶原结缔组织中黄色或绿色明显增强。在Ah应激作用下,与P0+Ah组相比,P4+Ah组双折射也会随着偏振橙色或红色的增强而增加,并且在过渡层以及致密和疏松胶原纤维层交界处更为明显,松散的胶原结缔组织中黄色明显增强。通过计算,天狼星红染色图片中Ⅰ型胶原蛋白的分布分析如图3-B所示,与P0+NS组相比,P4+NS组裙边组织中Ⅰ型胶原蛋白面积占比显著提高(P<0.05);且在Ah应激作用下,与P0+Ah组相比,P4+Ah组裙边组织中Ⅰ型胶原蛋白面积占比也显著提高(P<0.05)。此外,中华鳖裙边组织中胶原蛋白含量的分析结果如图3-C所示,其胶原蛋白含量变化同裙边组织中Ⅰ型胶原蛋白面积占比结果一致。
图3 脯氨酸对中华鳖裙边胶原蛋白含量的影响

A:天狼星红染色 Sirius red staining (100×);B:裙边组织中Ⅰ型胶原蛋白占比 the proportion of type Ⅰ collagen in calipash tissue;C:裙边组织中胶原蛋白含量 collagen content in calipash tissue。t:过渡层 transition layer;d-1:致密胶原纤维层 dense collagen fiber layer;d-2:疏松胶原纤维层 loose collagen fiber layer。

Fig.3 Effects of proline on collagen content in calipash of Pelodiscus sinensis

2.6 脯氨酸对裙边胶原代谢相关基因表达水平的影响

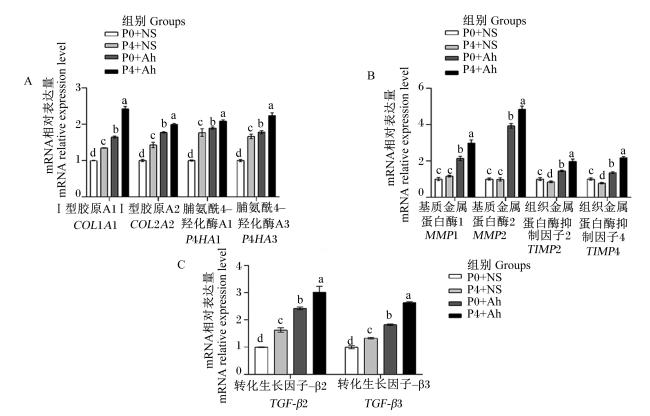
图4可知,饲料中添加脯氨酸对中华鳖裙边组织中胶原蛋白合成和降解相关基因mRNA相对表达量有显著影响。与P0+NS组相比,P4+NS组中华鳖裙边组织中Ⅰ型胶原蛋白基因(COL1A1和COL1A2)、脯氨酰4-羟化酶基因(P4HA1和P4HA3)和转化生长因子基因(TGF-β2与TGF-β3)mRNA相对表达量显著提高(P<0.05),胶原蛋白降解相关基因(TIMP2和TIMP4)mRNA相对表达量显著降低(P<0.05),但2组间MMP1和MMP2 mRNA相对表达量无显著差异(P>0.05)。在Ah应激作用下,与P0+Ah组相比,P4+Ah组裙边组织中COL1A1、COL1A2、P4HA1、P4HA3、TGF-β2、TGF-β3、MMP1、MMP2、TIMP2和TIMP4 mRNA相对表达量均显著提高(P<0.05)。
图4 脯氨酸对中华鳖裙边胶原蛋白代谢相关基因mRNA相对表达量的影响

Fig.4 Effects of proline on mRNA relative expression levels of collagen metabolism related genes in calipash of Pelodiscus sinensis

3 讨论

3.1 脯氨酸对中华鳖生长性能的影响

脯氨酸及其衍生物羟脯氨酸约占胶原蛋白分子总氨基酸含量的23%[19],在保护细胞结构和功能方面发挥着独特的作用,被认为是幼龄哺乳动物、鸟类和水产动物的条件性必需氨基酸[20]。关于脯氨酸和羟脯氨酸对水产动物的研究已有部分报道。Aksnes等[21]在对鲑鱼(Salmo salar)的研究中发现,在高植物蛋白质饲料中添加晶体羟脯氨酸能显著促进其生长和脊椎骨的发育;Wei等[22]在大黄鱼(Larimichthys crocea)的研究中发现,饲料中添加脯氨酸显著提高了鱼体的生长性能。而在本研究中也发现,饲料中添加脯氨酸能显著提高中华鳖幼鳖增重率、特定生长率以及存活率。这可能与脯氨酸的生物学活性和抗氧化功能有关[22],它提高了中华鳖的抗氧化能力和免疫功能,从而提高了生长性能。但是也有一些学者在浅色黄姑鱼[13](Nibea coibor)和大菱鲆[23](Scophthalmus maximus L.)的研究中发现了脯氨酸未显著提高生长性能等不完全一致的结果。因此,推测导致各研究结果差异的原因可能与动物物种、生长阶段、个体大小、养殖模式及饲料氨基酸组成等有关,具体原因有待进一步研究。

3.2 脯氨酸对中华鳖裙边抗氧化能力及氨基酸组成的影响

GSH-Px是机体广泛存在的一种催化过氧化氢分解的酶;SOD活性与机体免疫水平关系密切,是机体内天然存在的超氧自由基清除因子,也是生物体内清除自由基的首要物质[24-25]。在本研究中发现,中华鳖裙边组织中GSH-Px和SOD活性受脯氨酸的显著影响,饲料中添加脯氨酸显著提高了上述抗氧化酶的活性,并且在Ah攻毒应激时,脯氨酸添加组的抗氧化能力也显著增强。相似结果在Xie等[16]的研究中也有报道,低鱼粉饲料中添加脯氨酸提高了凡纳滨对虾(Litopenaeus vannamei)的抗氧化能力、免疫反应能力以及氨(NH3)抗逆性。ROS是机体有氧代谢产生的高活性的含氧及其衍生物,包括超氧阴离子自由基( O 2 -·)、羟自由基(·OH)和过氧化氢(H2O2)等。当生物体受到外界不良因素刺激时,机体会产生大量ROS自由基,而过量的ROS会引起机体组织细胞氧化应激反应,造成生物大分子物质损伤,甚至引起疾病和死亡,因此机体必须通过抗氧化防御系统及时清除过量的ROS自由基来维持体内活性氧自由基平衡[26-27]。本研究中,饲料中添加脯氨酸使中华鳖在攻毒应激状态下其裙边线粒体ROS产生速率显著降低,说明饲料中添加脯氨酸可以提高机体清除氧自由基的能力,从而改善中华鳖机体抗氧化能力。这可能与脯氨酸本身或其代谢产物的抗炎或抗氧化活性有关,体内高水平脯氨酸会诱导SOD、GSH-Px等其他多种抗氧化酶大量产生来清除体内ROS,从而调节机体氧化还原平衡。张丽丽[28]也研究发现,脯氨酸显著提高了仔猪血浆SOD活性以及清除自由基的能力。此外,本研究还发现,脯氨酸能引起应激状态下中华鳖裙边组织中氨基酸含量的变化。类似的研究也表明,当生物体暴露于环境胁迫时,脯氨酸可能会在生物体中发生积累[16,29-30],推测其原因可能是因为脯氨酸可以提高组织的抗氧化能力,清除体内多余的自由基,降低组织的氧化损伤,响应氨基酸的代谢来动员各氨基酸在组织中的积累[31-32]。同时,这也说明饲料中添加脯氨酸可能增强了机体胶原蛋白代谢的水平。

3.3 脯氨酸对中华鳖裙边组织中胶原蛋白代谢的影响

本试验通过3组组织学染色观察了中华鳖在补充脯氨酸后应对Ah攻毒时裙边组织中胶原蛋白分布及类型的变化。VG和HE染色观察到,饲料中添加脯氨酸可使得胶原层排列更加紧密结实,纤维束变得更加粗壮。在机体受到应激时,过渡层和胶原纤维层纤维束变得紊乱无序,并且在脯氨酸添加组中明显观察到胶原层纤维有向组织内部降解的趋势。这与Zhou等[7]发现中华鳖在应激状态下其裙边组织胶原纤维层出现松散、排列紊乱的结果类似。天狼星红染色对不同类型胶原纤维的特异性表征使其成为一种检测胶原的选择性组织化学染色法[33],它能够在偏振光显微镜下清楚地区分出Ⅰ型胶原蛋白纤维并进行量化分析,Ⅰ型胶原蛋白呈现红色或橙色[34-35]。本研究发现,饲料中补充脯氨酸后,中华鳖裙边内橙红色偏光增多,Ⅰ型胶原蛋白面积占比增加;并且在Ah应激时,脯氨酸添加组的Ⅰ型胶原蛋白面积占比也显著高于对照组。这些结果提示,饲料中添加脯氨酸改变了裙边中胶原蛋白的分布以及类型,并且可能在抵抗应激过程中发挥了作用。另外,脯氨酸作为胶原蛋白合成的底物,在胶原蛋白合成过程中至关重要,可以调控胶原蛋白代谢,促进损伤组织的修复[36]。本研究发现,脯氨酸能够显著增加应激时裙边内的胶原蛋白含量,说明饲料中脯氨酸的添加可以增强机体胶原蛋白代谢能力来抵抗细菌应激。原因可能是脯氨酸具有抗炎作用,加速了Ah应激后炎症因子的分泌,导致裙边胶原蛋白分解增加,使其羟脯氨酸含量升高,从而促进裙边胶原蛋白沉积。在虹鳟鱼(Oncorhynchus)和斑马鱼(Danio rerio)上的研究发现,鱼体在应激过程中其结缔组织胶原蛋白含量显著增加[37-38]。同时,有许多研究已经表明,饲料中添加脯氨酸可以促进鱼体的胶原蛋白沉积[15,39-40]
为了深入探讨脯氨酸促进胶原蛋白合成及其抵抗细菌应激的分子机制,本研究随后对胶原蛋白代谢相关基因表达量进行了分析,一类是胶原蛋白合成相关的基因,包括编码Ⅰ型胶原蛋白基因(COL1A1和COL1A2)、脯氨酰4-羟化酶基因(P4HA1和P4HA3)以及参与合成编码转化生长因子的基因(TGF-β2和TGF-β3);另一类是胶原蛋白降解关键代表性的基因,包括基质金属蛋白酶基因(MMP1和MMP2)以及组织金属蛋白酶抑制因子基因(TIMP2和TIMP4)。已有研究证明,P4HA1编码P4H,这是一种可以催化脯氨酸翻译后形成4-羟脯氨酸的酶[41],这一过程对于新合成的前胶原多肽链至关重要[42]。转化生长因子可诱导成纤维细胞分化,增加Ⅰ型胶原蛋白的表达[43],以及通过抑制基质金属蛋白酶和组织金属蛋白酶抑制因子表达,提高细胞外基质沉积并稳定新基质[44]。基质金属蛋白酶在伤口愈合、组织修复中具有重要作用[45],特别是MMP1(胶原酶)和MMP2(明胶酶),并且MMP1可以降解Ⅰ型胶原蛋白[46]。组织金属蛋白酶抑制因子是组织中基质金属蛋白酶的主要抑制剂[47-48],两者的同步变化更有助于调控胶原蛋白的沉积[49-50]。本研究发现,饲料中添加脯氨酸显著上调了COL1A1、COL1A2、P4HA1、P4HA3、TGF-β2和TGF-β3 mRNA相对表达量,但脯氨酸添加组裙边组织中TIMP2和TIMP4 mRNA相对表达量显著下降。这与荣华等[14,51]报道类似,该研究结果表明,提高脯氨酸水平能够促进大黄鱼(Nibea coibor)鱼鳔中Ⅰ型胶原蛋白A(COL1A)、转化生长因子-β(TGF-β)和P4HA1的表达,使得胶原蛋白的生物合成量增加。这些结果说明脯氨酸可能是通过调控这些基因的转录来实现促进胶原蛋白的沉积。值得注意得是,饲料中添加脯氨酸仍显著上调了Ah应激作用下中华鳖裙边组织中关于胶原蛋白生物合成和降解关键代表性基因的表达量,这进一步表明脯氨酸对应激状态下中华鳖裙边种胶原蛋白的沉积同样具有显著促进作用。虽然目前没有关于脯氨酸影响应激状态下鱼类机体胶原蛋白沉积的文献报道。但是已有研究发现,在应激过程中,五彩鲍(Haliotis rufescens)[52]和草鱼(Ctenopharyngdon idellus)[53]的胶原蛋白降解相关基因会被诱导表达。在Zhou等[7]的研究中也发现,中华鳖在应激后基质金属蛋白酶基因表达量显著升高,胶原蛋白合成相关基因(COL1AP4HA1)表达量显著降低。同时,许多研究也表明,饲料中添加脯氨酸会影响胶原蛋白的沉积[36,40]。因此推测,应激状态下机体对脯氨酸的需求更大,添加脯氨酸能够加速胶原蛋白的合成,从而导致胶原蛋白沉积增加。这与之前学者的研究报道相吻合,脯氨酸具有促进抗氧化、免疫和胶原蛋白合成的作用,特别是对一些受伤和应激的动物[8,31]。本研究结果表明,脯氨酸对中华鳖裙边的抗氧化能力以及胶原蛋白代谢水平具有促进的作用。在正常生长情况下脯氨酸通过促进蛋白质的合成,降低体内氨基酸的降解,加快组织的生长;在受到外界不良因素刺激时,脯氨酸通过响应机体应激快速提高抗氧化能力以及调控胶原蛋白相关基因的转录水平来增强机体免疫,促进胶原蛋白沉积发挥抗应激的作用,加快组织的愈合。综上所述,本试验为脯氨酸作为中华鳖促产保活类饲料添加剂的研发提供了理论参考,但脯氨酸对胶原蛋白代谢酶活性及下游调控途径尚需进一步研究。

4 结论

饲料中添加脯氨酸可以改善中华鳖幼鳖的生长性能;在中华鳖受到Ah应激作用时,饲料中添加脯氨酸可以提高裙边组织中抗氧化酶活性以及特征性氨基酸和胶原蛋白的含量,改变裙边组织胶原蛋白合成和降解过程,这与脯氨酸有助于中华鳖机体动员胶原蛋白沉积和抵抗细菌应激有关。
[1]
蒋晓妍. 不同养殖模式下相同规格中华鳖裙边特性研究[D].硕士学位论文. 无锡: 江南大学, 2014.

JIANG X Y. Study on calipash features of the same size Chinese Trionyx sinensis under different breeding modes[D].Master’s Thesis. Wuxi: Jiangnan University, 2014. (in Chinese)

[2]
彭娜, 王佩, 王晓清. 中华鳖裙边组织功效及其研究概述[J]. 水产研究, 2016, 3(4):59-62.

PENG N, WANG P, WANG X Q. Research overview on efficacy of Trionyx sinensis calipash organization[J]. Open Journal of Fisheries Research, 2016, 3(4):59-62. (in Chinese)

DOI

[3]
农业农村部渔业渔政管理局, 全国水产技术推广总站,中国水产学会.中国渔业统计年鉴:2022[M]. 北京: 中国农业出版社, 2022.

Fishery and Fishery Administration of the Ministry of Agriculture and Rural Affairs,National Aquatic Technology Promotion Station, China Society of Fisheries.China fishery statistical yearbook:2022[M]. Beijing: China Agriculture Press, 2022. (in Chinese)

[4]
薛明洋, 周勇, 梁宏伟, 等. 一株中华鳖源嗜水气单胞菌的分离鉴定及毒力基因分析[J]. 中国农学通报, 2021, 37(20):152-159.

DOI

XUE M Y, ZHOU Y, LIANG H W, et al. Isolation,identification and virulence gene analysis of an Aeromonas hydrophila from diseased pelodiscus sinensis[J]. Chinese Agricultural Science Bulletin, 2021, 37(20):152-159. (in Chinese)

[5]
郑杰夫, 张一柳, 钟蕾. 中华鳖源嗜水气单胞菌的研究进展[J]. 水产科学, 2016, 35(2):191-198.

ZHENG J F, ZHANG Y L, ZHONG L. Research advances on diseases of Aeromonas hydrophila in Chinese soft-shelled turtle Trionyx sinensis[J]. Fisheries Science, 2016, 35(2):191-198. (in Chinese)

[6]
王志铮, 申屠琰, 赵蓓蓓, 等. 注射鳖源致病性嗜水气单胞菌ZHYYZ-1引发中华鳖(Trionyx sinensis)稚鳖感染和致死的定量研究[J]. 海洋与湖沼, 2010, 41(4):524-529.

WANG Z Z, SHEN T Y, ZHAO B B, et al. Quantitative analysis of infection and lethal effects on juvenile Trionyx sinensis by injecting pathogenicenic Aeromonas hydrophila ZHYYZ-1[J]. Oceanologia Et Limnologia Sinica, 2010, 41(4):524-529. (in Chinese)

[7]
ZHOU B N, SONG W, LI C Y, et al. Texture quality,histological and extracellular matrix-related molecular changes of the calipash of Chinese soft-shelled turtle Pelodiscus sinensis in response to Aeromonas hydrophila challenge[J]. Aquaculture Research, 2022, 53(10):3706-3717.

DOI

[8]
WU G Y, BAZER F W, BURGHARDT R C, et al. Proline and hydroxyproline metabolism:implications for animal and human nutrition[J]. Amino Acids, 2011, 40(4):1053-1063.

DOI

[9]
LI P, MAI K S, TRUSHENSKI J, et al. New developments in fish amino acid nutrition:towards functional and environmentally oriented aquafeeds[J]. Amino Acids, 2009, 37(1):43-53.

DOI

[10]
WU G, BAZER F W, DATTA S, et al. Proline metabolism in the conceptus:implications for fetal growth and development[J]. Amino Acids, 2008, 35(4):691-702.

DOI

[11]
DABROWSKI K, ZHANG Y F, KWASEK K, et al. Effects of protein-,peptide- and free amino acid-based diets in fish nutrition[J]. Aquaculture Research, 2010, 41(5):668-683.

DOI

[12]
LI P, WU G Y. Roles of dietary Glycine,proline,and hydroxyproline in collagen synthesis and animal growth[J]. Amino Acids, 2018, 50(1):29-38.

DOI

[13]
荣华, 夏优, 王晓雯, 等. 饲料中添加脯氨酸对浅色黄姑鱼生长、体组成及抗氧化能力的影响[J]. 上海海洋大学学报, 2023, 32(1):89-97.

RONG H, XIA Y, WANG X W, et al. Effects of dietary proline on growth,body composition and antioxidant capacity of Chu’s croaker (Nibea coibor)[J]. Journal of Shanghai Ocean University, 2023, 32(1):89-97. (in Chinese)

[14]
荣华, 杨钰香, 王晓雯, 等. 脯氨酸对浅色黄姑鱼鱼鳔胶原蛋白沉积及相关基因表达的影响[J]. 动物营养学报, 2022, 34(5):3184-3193.

DOI

RONG H, YANG Y X, WANG X W, et al. Effects of proline on collagen deposition and related gene expression in swim bladder of Chu’s croaker (Nibea coibor)[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):3184-3193. (in Chinese)

DOI

[15]
LIN F, RONG H, LIN J L, et al. Enhancement of collagen deposition in swim bladder of Chu’s croaker (Nibea coibor) by proline:view from in-vitro and in-vivo study[J]. Aquaculture, 2020, 523:735175.

DOI

[16]
XIE S W, TIAN L X, LI Y M, et al. Effect of proline supplementation on anti-oxidative capacity,immune response and stress tolerance of juvenile Pacific white shrimp,Litopenaeus vannamei[J]. Aquaculture, 2015, 448:105-111.

DOI

[17]
寇红岩, 梁雄, 林仲伟, 等. 中华鳖饲料中蛋白和氨基酸需求的研究进展[J]. 饲料研究, 2020, 43(2):97-100.

KOU H Y, LIANG X, LIN Z W, et al. Progress on requirements for protein and amino acidof soft-shelled turtle (Trionyx sinensis)[J]. Feed Research, 2020, 43(2):97-100. (in Chinese)

[18]
YANG J, SONG W, LI C Y, et al. Comparative study of collagen distribution in the dermis of the embryonic carapace of soft- and hard-shelled cryptodiran turtles[J]. Journal of Morphology, 2021, 282(4):543-552.

DOI PMID

[19]
KRANE S M. The importance of proline residues in the structure,stability and susceptibility to proteolytic degradation of collagens[J]. Amino Acids, 2008, 35(4):703-710.

DOI

[20]
HOU Y Q, YAO K, YIN Y L, et al. Endogenous synthesis of amino acids limits growth,lactation,and reproduction in animals[J]. Advances in Nutrition, 2016, 7(2):331-342.

DOI

[21]
AKSNES A, MUNDHEIM H, TOPPE J, et al. The effect of dietary hydroxyproline supplementation on salmon (Salmo salar L.) fed high plant protein diets[J]. Aquaculture, 2008, 275(1/2/3/4):242-249.

DOI

[22]
WEI Z H, DENG K Y, ZHANG W B, et al. Interactions of dietary vitamin C and proline on growth performance,anti-oxidative capacity and muscle quality of large yellow croaker Larimichthys crocea[J]. Aquaculture, 2020, 528:735558.

DOI

[23]
ZHANG K K, MAI K S, XU W, et al. Proline with or without hydroxyproline influences collagen concentration and regulates prolyl 4-hydroxylase α (Ⅰ) gene expression in juvenile turbo (Scophthalmus maximus L.)[J]. Journal of Ocean University of China, 2015, 14(3):541-548.

DOI

[24]
杨移斌, 艾晓辉, 宋怿, 等. 黄芪多糖对中华鳖生长,免疫及抗病力的影响[J]. 中国渔业质量与标准, 2018, 8(4):58-64.

YANG Y B, AI X H, SONG Y, et al. Effects of Astragalus Polysaccharides on growth,immunity and diseases resistance of Trionyx sinensis[J]. Chinese Fishery Quality and Standards, 2018, 8(4):58-64. (in Chinese)

[25]
周冬仁, 罗毅志, 叶雪平, 等. 2种复方制剂对中华鳖非特异性免疫功能的作用效果[J]. 贵州农业科学, 2015, 43(6):146-148.

ZHOU D R, LUO Y Z, YE X P, et al. Effect of two compound preparations on nonspecific immunity function of Trionyx sinensis[J]. Guizhou Agricultural Sciences, 2015, 43(6):146-148. (in Chinese)

[26]
王丽, 韩艳楠, 金珊, 等. 水体Cu2+对三疣梭子蟹主要组织ROS含量和抗氧化能力的影响[J]. 农业环境科学学报, 2015, 34(7):1261-1268.

WANG L, HAN Y N, JIN S, et al. Effects of aqueous copper on reactive oxygen species content and anti-oxidation capacity of major tissues in Portunus trituberculatus[J]. Journal of Agro-Environment Science, 2015, 34(7):1261-1268. (in Chinese)

[27]
王晓煜, 胡春兰, 程鹏丽, 等. 低温驯化对斑马鱼ZF4细胞凋亡和ROS的影响[J]. 基因组学与应用生物学, 2020, 39(10):4475-4480.

WANG X Y, HU C L, CHENG P L, et al. Effects of cold acclimation on the apoptosis and ROS of zebrafish ZF4 cells[J]. Genomics and Applied Biology, 2020, 39(10):4475-4480. (in Chinese)

[28]
张丽丽. 脯氨酸对脂多糖刺激仔猪生长性能的影响及其机理[D].硕士学位论文. 武汉: 武汉工业学院, 2010.

ZHANG L L. Effects of proline on growth performance in piglets challenged with lipopolysaccharide and its mechanism[D].Master’s Thesis. Wuhan: Wuhan Polytechnic University, 2010. (in Chinese)

[29]
ALIA, MOHANTY P, MATYSIK J, Effect of proline on the production of singlet oxygen[J]. Amino Acids, 2001, 21(2):195-200.

DOI PMID

[30]
SIGNORELLI S, ARELLANO J B, MELØ T B, et al. Proline does not quench singlet oxygen:evidence to reconsider its protective role in plants[J]. Plant Physiology and Biochemistry, 2013, 64:80-83.

DOI

[31]
PHANG J M, LIU W, ZABIRNYK O. Proline metabolism and microenvironmental stress[J]. Annual Review of Nutrition, 2010, 30:441-463.

DOI PMID

[32]
季昀. 羟脯氨酸对葡聚糖硫酸钠诱导的小鼠肠炎的缓解作用及机制[D].博士学位论文. 北京: 中国农业大学, 2018.

JI Y. The role and mechanisms for hydroxyproline in ameliorating intestinal inflammation induced by dextran sulfate sodium in mice[D].Master’s Thesis. Beijing: China Agricultural University, 2018. (in Chinese)

[33]
BORGES L F, GUTIERREZ P S, MARANA H R C, et al. Picrosirius-polarization staining method as an efficient histopathological tool for collagenolysis detection in vesical prolapse lesions[J]. Micron, 2007, 38(6):580-583.

DOI PMID

[34]
黄波, 肖影群, 钟青梅, 等. 苦味酸-天狼猩红偏振光法在肝纤维化研究中的应用[J]. 现代诊断与治疗, 2015, 26(20):4569-4572.

HUANG B, XIAO Y Q, ZHONG Q M, et al. The application method of picric sirius red polarized light in the study of hepatic fibrosis[J]. Modern Diagnosis and Treatment, 2015, 26(20):4569-4572. (in Chinese)

[35]
TOKI D, ZHANG W, HOR K L M, et al. The role of macrophages in the development of human renal allograft fibrosis in the first year after transplantation[J]. American Journal of Transplantation, 2014, 14(9):2126-2136.

DOI PMID

[36]
ALBAUGH V L, MUKHERJEE K, BARBUL A. Proline precursors and collagen synthesis:biochemical challenges of nutrient supplementation and wound healing[J]. Journal of Nutrition, 2017, 147(11):2011-2017.

DOI

[37]
KEEN A N, KLAIMAN J M, SHIELS H A, et al. Temperature-induced cardiac remodelling in fish[J]. Journal of Experimental Biology, 2017, 220(Pt 2):147-160.

[38]
林佳丽. 温度对斑马鱼肌肉营养组成和胶原蛋白含量的影响及初步机制研究[D].硕士学位论文. 汕头: 汕头大学, 2021:202.

LIN J L. Preliminary study on the effects of temperature on muscle nutritional composition and collagen content of zebrafish (Danio rerio)[D].Master’s Thesis. Shantou: Shantou University, 2021:202. (in Chinese)

[39]
RONG H, ZHANG Y L, HAO M L, et al. Effect of hydroxyproline supplementation on growth performance,body composition,amino acid profiles,blood-biochemistry and collagen synthesis of juvenile Chu’s croaker (Nibea coibor)[J]. Aquaculture Research, 2020, 51(3):1264-1275.

DOI

[40]
KARNA E, SZOKA L, HUYNH T Y L, et al. Proline-dependent regulation of collagen metabolism[J]. Cellular and Molecular Life Sciences, 2020, 77(10):1911-1918.

DOI PMID

[41]
FALCIONI F, BLANK L M, FRICK O, et al. Proline availability regulates proline-4-hydroxylase synthesis and substrate uptake in proline-hydroxylating recombinant Escherichia coli[J]. Applied and Environmental Microbiology, 2013, 79(9):3091-3100.

DOI

[42]
HYVÄRINEN J, PARIKKA M, SORMUNEN R, et al. Deficiency of a transmembrane prolyl 4-hydroxylase in the zebrafish leads to basement membrane defects and compromised kidney function[J]. Journal of Biological Chemistry, 2010, 285(53):42023-42032.

DOI PMID

[43]
PARK S H, JEONG S H, KIM S W. β-lapachone regulates the transforming growth factor-β-Smad signaling pathway associated with collagen biosynthesis in human dermal fibroblasts[J]. Biological and Pharmaceutical Bulletin, 2016, 39(4):524-531.

DOI

[44]
ZHANG J L, YANG A H, WU Y, et al. Stachydrine ameliorates carbon tetrachloride-induced hepatic fibrosis by inhibiting inflammation,oxidative stress and regulating MMPs/TIMPs system in rats[J]. Biomedicine & Pharmacotherapy, 2018, 97:1586-1594.

DOI

[45]
MITTEN E K, JING D N, SUZUKI Y. Matrix metalloproteinases (MMPs) are required for wound closure and healing during larval leg regeneration in the flour beetle,Tribolium castaneum[J]. Insect Biochemistry and Molecular Biology, 2012, 42(11):854-864.

DOI

[46]
KESSENBROCK K, PLAKS V, WERB Z. Matrix metalloproteinases:regulators of the tumor microenvironment[J]. Cell, 2010, 141(1):52-67.

DOI

[47]
牛海玲. 刺参MMPTIMP基因的克隆及在自溶过程中的变化研究[D].硕士学位论文. 大连: 大连工业大学, 2014.

NIU H L. Molecular cloning of MMP and TIMP from Stichopus japonicus and their expression profile during autolysis[D].Master’s Thesis. Dalian: Dalian Polytechnic University, 2014. (in Chinese)

[48]
张明辉. 皱纹盘鲍基质金属蛋白酶1及组织抑制剂的研究[D].硕士学位论文. 厦门: 集美大学, 2021.

ZHANG M H. Study on matrix metalloproteinase 1 and tissue inhibitor of metalloproteinase in Haliotis discus hannai[D].Master’s Thesis. Xiamen: Jimei University, 2021. (in Chinese)

[49]
JOHNSTON E F, GILLIS T E. Transforming growth factor beta-1 (TGF-β1) stimulates collagen synthesis in cultured rainbow trout cardiac fibroblasts[J]. Journal of Experimental Biology, 2017, 220(14):2645-2653.

[50]
JOHNSON A C, TURKO A J, KLAIMAN J M, et al. Cold acclimation alters the connective tissue content of the zebrafish (Danio rerio) heart[J]. Journal of Experimental Biology, 2014, 217(11):1868-1875.

[51]
荣华, 李德强, 马敏伟, 等. TGF-β/Smads信号通路介导脯氨酸促进浅色黄姑鱼鱼鳔胶原蛋白沉积[J]. 水生生物学报, 2022, 46(11):1649-1657.

RONG H, LI D Q, MA M W, et al. TGF-β/Smads signaling pathway regulates pro to promote collagen deposition in the swim bladder of Chu’s croaker (Nibea coibor)[J]. Acta Hydrobiologica Sinica, 2022, 46(11):1649-1657. (in Chinese)

[52]
CHOVAR-VERA O, VALENZUELA-MUÑOZ V, GALLARDO-ESCÁRATE C. Molecular characterization of collagen Ⅳ evidences early transcription expression related to the immune response against bacterial infection in the red abalone (Haliotis rufescens)[J]. Fish & Shellfish Immunology, 2015, 42(2):241-248.

[53]
XU X Y, SHEN Y B, YANG X M, et al. Cloning and characterization of TIMP-2b gene in grass carp[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2011, 159(2):115-121.

DOI

Outlines

/