RESEARCH PAPER

Effects of Different Doses of Linoleic Acid and Oleic Acid Supplementation on Milk Fat Synthesis in Mammary Epithelial Cells of Lactating Dairy Cows

  • BAI Chen ,
  • LI Zeting ,
  • AO Changjin ,
  • KHAS-Erdene *
Expand
  • Key Laboratory of Animal Nutrition and Feed Science at Universities of Inner Mongolia Autonomous Region, College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
*lecturer, E-mail: hsed-2002@hotmail.com

Received date: 2022-11-22

  Online published: 2023-05-11

Abstract

This study aimed to investigate the effects of different doses of linoleic acid and oleic acid supplementation on triglyceride synthesis in mammary epithelial cells of lactating dairy cows. Bovine mammary epithelial cells were used as the research object. The experiment consisted of two parts. In the first experiment, the control group was not supplemented with fatty acids, and the experimental groups were supplemented with 100 μmol/L oleic acid, 100 μmol/L linoleic acid, 100 μmol/L oleic acid + 100 μmol/L linoleic acid, respectively. In the second experiment, the control group was supplemented with 100 μmol/L oleic acid alone, and the experimental groups were supplemented with 100 μmol/L oleic acid and mixed with 25, 50 and 75 μmol/L linoleic acid. Each group was repeated 6 times. The viability of mammary epithelial cells, the relative content of triglyceride, and the mRNA relative expression levels of genes related to milk fat synthesis were measured. Results showed as follows: 1) the results of experiment 1 showed that compared with control group, supplemented with oleic acid and linoleic acid alone or in combination significantly increased the mammary epithelial cell viability (P<0.05); supplemented with oleic acid or linoleic acid significantly increased the relative content of triglyceride (P<0.05), while the mixed supplementation did not affect the relative content of triglyceride (P>0.05); supplemented with oleic acid alone significantly increased the mRNA relative expression levels of acetyl-CoA carboxylase (ACACA), 1-monoacylglycerol-3-phosphate acyltransferase 6 (AGPAT6), glycerol-3-phosphate acyltransferase (GPAM) (P<0.05). The mRNA relative expression levels of AGPAT6 and sterol regulatory element binding protein 1 (SREBF1) were significantly increased by supplementing of linoleic acid alone (P<0.05). Mixed supplemented with equal amounts of oleic and linoleic acid significantly reduced the mRNA relative expression levels of ACACA, SREBF1, differentiation antigen cluster 36 (CD36), acyl-CoA synthetase 1 (ACSL1) (P<0.05). 2) The results of experiment 2 showed that supplemented with fixed amount of oleic acid and increasing amount of linoleic acid had no effect on the relative content of triglyceride (P>0.05). Supplemented with 100 μmol/L oleic acid and 25 μmol/L linoleic acid significantly increased the mRNA relative expression levels of ACACA and SREBF1 (P<0.05) and significantly decreased the mRNA relative expression level of fatty acid binding protein 3 (FABP3) (P<0.05). Supplemented with 100 μmol/L oleic acid and 50 μmol/L linoleic acid significantly increased the mRNA relative expression levels of fatty acid synthetase (FASN), stearyl CoA desaturase (SCD), CD36, AGPAT6, diacylglyceryl transferase 1 (DGAT1), GPAM and phospholipid acid phosphatase (LPIN1) (P<0.05) and significantly decreased the mRNA relative expression level of peroxisome proliferator activated receptor γ (PPARG) (P<0.05). Supplemented with 100 μmol/L oleic acid and 75 μmol/L linoleic acid significantly increased the mRNA relative expression levels of ACACA, FASN, SREBF1 and PPARG (P<0.05), and significantly decreased the mRNA relative expression level of AGPAT6 (P<0.05). These results suggest that the supplementation amount of linoleic acid is an important factor in regulating milk fat synthesis in mammary epithelial cells when linoleic acid and oleic acid are supplemented in combination.

Cite this article

BAI Chen , LI Zeting , AO Changjin , KHAS-Erdene . Effects of Different Doses of Linoleic Acid and Oleic Acid Supplementation on Milk Fat Synthesis in Mammary Epithelial Cells of Lactating Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2023 , 35(5) : 3280 -3289 . DOI: 10.12418/CJAN2023.304

提高牛奶乳脂中不饱和脂肪酸的含量一直是国内外学者研究的热点问题,乳脂是易受饲粮因素调控的乳成分之一,通过在奶牛饲粮中添加油脂或油料籽实以增加乳脂前体物的供给,可以显著改变乳中不饱和脂肪酸的组成,从而达到调控乳脂脂肪酸组成的目的[1]。明确不饱和脂肪酸在乳腺进行乳脂合成的作用机制可以有效调控乳脂的脂肪酸组成。课题组前期研究表明,当给奶牛静脉灌注等量油酸和亚油酸时,亚油酸抑制乳中油酸的产出,即二者在乳腺合成乳脂时,可能存在互作效应[2],此互作效应是否发生在乳腺内部、是否与亚油酸添加剂量相关,尚不明确。有学者提出,奶牛乳腺上皮细胞中涉及乳脂合成的相关基因存在协同作用[3]。因此,本试验通过体外培养奶牛乳腺上皮细胞,分别从等剂量单独或混合添加以及固定油酸增量添加亚油酸2个方面,观测其对甘油三酯相对含量以及乳脂合成相关基因的mRNA相对表达量的影响,试从分子角度解析剂量因素对亚油酸与油酸乳脂合成的影响。

1 材料与方法

1.1 试验试剂

磷酸盐缓冲液(PBS)购自HyClone公司;DMEM/F12培养基、胎牛血清、0.25%胰蛋白酶-乙二胺四乙酸(EDTA)、Ⅱ型胶原酶、青链霉素均购自Gibco公司;氢化可的松、表皮生长因子、亚油酸、油酸、无脂肪酸牛血清白蛋白(BSA)均购自Sigma公司;二甲基亚砜(DMSO)、两性霉素均购自AMRESCO公司;总RNA提取试剂盒、反转录试剂盒、实时荧光定量PCR试剂、BCA法蛋白定量试剂均购自天根公司;组织细胞甘油三酯酶法试剂购自普利莱公司。

1.2 乳腺上皮细胞培养

选取健康、无病变的新鲜奶牛乳腺组织,剪开组织表层,在乳腺组织深处避开结缔组织和导管取适量腺泡丰富的组织块,放入PBS浸泡10 min左右。经3次PBS清洗,1次乙醇清洗,3次PBS清洗,各清洗30 s后,利用眼科剪取腺泡组织并剪成糊状。利用Ⅱ型胶原酶消化法获得乳腺上皮原代细胞,待原代细胞长到90%时进行传代,具体细胞培养方法参考课题组Dan等[4]的前期研究报道。

1.3 试验设计

本试验使用第3代乳腺上皮细胞。试验采用单因子完全随机设计,包括试验1和试验2,试验1为单独或混合添加等量油酸和亚油酸,试验2为固定油酸添加量增量添加亚油酸。试验所用添加量参考前期试验结果[5]
试验1共4组,分别为:1)空白对照组;2)100 μmol/L油酸添加组(油酸组);3)100 μmol/L亚油酸添加组(亚油酸组);4)油酸和亚油酸各100 μmol/L混合添加组(油酸+亚油酸组)。
试验2共4个组,分别为:1)100 μmol/L油酸添加组(油酸对照组);2)100 μmol/L油酸和25 μmol/L亚油酸混合添加组(油酸+25亚油酸组);3)100 μmol/L油酸和50 μmol/L亚油酸混合添加组(油酸+50亚油酸组);4)100 μmol/L油酸和75 μmol/L亚油酸混合添加组(油酸+75亚油酸组)。
每组均设置6个重复,在第3代乳腺上皮细胞中添加试验处理后,继续在二氧化碳(CO2)恒温培养箱中培养48 h,测定细胞活力、甘油三酯相对含量以及乳脂合成相关基因mRNA相对表达量。

1.4 细胞活力的测定

采用CCK-8法检测乳腺上皮细胞活力。将奶牛乳腺上皮细胞用诱导培养基制成细胞悬液,接种于96孔细胞培养板中,放在5% CO2、37 ℃恒温培养箱中培养,待细胞长到80%左右,吸出培养基换成BSA培养基,再次培养12 h后,添加试验处理100 μL继续培养48 h。培养结束后,吸出各孔培养基,加入10% CCK-8的新鲜基础培养基,再次培养4 h。用全自动酶标仪检测各组的450 nm波长下吸光度(OD)450 nm。按试剂盒方法计算细胞活力。

1.5 甘油三酯相对含量的测定

试验处理培养结束后,测定细胞内甘油三酯相对含量。将6孔板内的培养液弃去,用PBS清洗2次,每个孔内加入0.2 mL的细胞裂解液,用移液枪仔细吹打混匀,将其移入2个1.5 mL的离心管中,一管用于甘油三酯相对含量的测定,另一管用于蛋白相对含量的标定。
用70 ℃水浴锅加热裂解液10 min,室温2 000 r/min离心5 min,吸取上清液。在96孔板中加入10 μL的样品或标准品和190 μL的工作液,同时设置1个空白组加入10 μL的蒸馏水和190 μL的工作液。在37 ℃培养箱中反应15 min,用全自动酶标仪在550 nm波长下检测各组OD550 nm。按试剂盒方法计算甘油三酯相对含量。

1.6 乳脂合成相关基因mRNA相对表达量的测定

在冰上条件下,将培养结束后的6孔板中的培养液吸去,加入PBS清洗2次,用0.25%胰蛋白酶-EDTA消化细胞,加入RNA裂解液TRIzol,充分吹打混匀使细胞充分裂解。总RNA提取方法参照试剂盒说明书进行,提取后检测RNA的纯度和浓度确保OD260/280在1.8~2.1。
反转录、实时荧光定量PCR根据相应试剂盒说明书进行,具体方法和反应体系见课题组已发表文献[6],引物序列信息见表1
表1 引物序列

Table 1 Primer sequence

基因
Genes
登录号
Accession No.
引物序列
Primer sequence (5'—3')
β-肌动蛋白
β-actin
280979 F: TAGACTTCGAGCAGGAGATG
R: CCACCAGACAGCACTGTGTT
乙酰辅酶A羧化酶
ACACA
NM_174224.2 F: CATCTTGTCCGAAACGTCGAT
R: CCCTTCGAACATACACCTCCA
脂肪酸合成酶
FASN
NM_001012669 F: ACCTCGTGAAGGCTGTGACTCA
R: TGAGTCGAGGCCAAGGTCTGAA
硬酯酰辅酶A去饱和酶
SCD
NM_173959.4 F: TCCTGTTGTTGTGCTTCATCC
R: GGCATAACGGAATAAGGTGGC
酰基辅酶A合成酶1
ACSL1
NM_001076085 F: GTGGGCTCCTTTGAAGAACTGT
R: ATAGATGCCTTTGACCTGTTCAAAT
分化抗原簇36
CD36
BC103112 F: CCTCTTGGCAACCACTTTCA
R: GCAATGAGCCCACAGTTTCG
固醇调节元件结合蛋白1
SREBF1
NM_001113302 F: CTGACGACCGTGAAAACAGA
R: AGACGGCAGATTTATTCAACTT
脂肪酸结合蛋白3
FABP3
NM_174313 F: AAGCCTACCACAATCATCGAAG
R: GAACTCGACTCCCAGCTTGAA
过氧化物酶体增殖物激活受体γ
PPARG
NM_181024.2 F: AAGAGCTGACCCGATGGTTG
R: TGAGGGAGTTGGAAGGCTCT
1-单酰甘油-3-磷酸酰基转移酶6
AGPAT6
NM_001083669 F: AAGCAAGTTGCCCATCCTCA
R: AAACTGTGGCTCCAATTTCGA
二脂酰甘油酰基转移酶1
DGAT1
NM_174693 F: CCACTGGGACCTGAGGTGTC
R: GCATCACCACACACCAATTCA
3-磷酸甘油酰基转移酶
GPAM
NM_001012282 F: GCAGGTTTATCCAGTATGGCATT
R: GGACTGATATCTTCCTGATCATCTTG
磷脂酸磷酸酶1
LPIN1
NM_001206156 F: TGGCCACCAGAATAAAGCATG
R: GCTGACGCTGGACAACAGG

1.7 数据处理与统计分析

实时荧光定量PCR结果通过2-△△Ct方法计算,试验数据利用Excel 2018进行整理和计算。整理后数据利用SAS 9.2软件进行分析,分析方法采用MIXED模块,多重比较采用TUKEY法。显著性差异定义为P<0.05。

2 结果

2.1 试验1结果分析

表2可知,与对照组相比,油酸组、亚油酸组、油酸+亚油酸组乳腺上皮细胞的活力均显著提高(P<0.05),且亚油酸组促进作用最显著。油酸+亚油酸组细胞活力显著低于单独添加任一种脂肪酸组(P<0.05)。
表2 添加油酸和亚油酸对奶牛乳腺上皮细胞活力的影响

Table 2 Effects of supplementation with oleic and linoleic acid on viability in bovine mammary epithelial cells

项目
Item
组别Groups SEM
对照
Control
油酸
Oleic
亚油酸
Linoleic
油酸+亚油酸
Oleic+linoleic
细胞活力Cell viability 1.00d 1.28b 1.40a 1.23c 0.01

同行数据肩标不同小写字母表示差异显著(P<0.05),无字母或相同字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while no letter or the same letter superscripts mean no significant difference (P>0.05). The same as below.

表3可知,与对照组相比,油酸组和亚油酸组乳腺上皮细胞中甘油三酯相对含量显著提高(P<0.05),且油酸组的促进作用显著高于亚油酸组(P<0.05);油酸+亚油酸组的甘油三酯相对含量无显著变化(P>0.05)。
表3 添加油酸和亚油酸对奶牛乳腺上皮细胞甘油三酯相对含量的影响

Table 3 Effects of supplementation with oleic and linoleic acid on relative content of triglyceride in bovine mammary epithelial cells

项目
Item
组别Groups SEM
对照
Control
油酸
Oleic
亚油酸
Linoleic
油酸+亚油酸
Oleic+linoleic
甘油三酯相对含量
Relative content of triglyceride
1.00c 2.60a 1.68b 1.21c 0.05
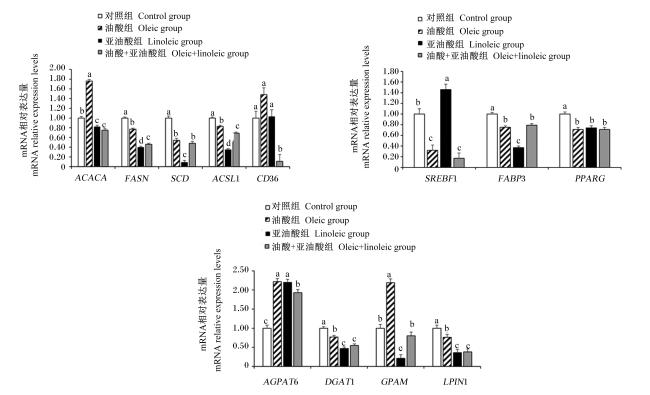
图1可知,与对照组相比,油酸组乙酰辅酶A羧化酶(ACACA)的mRNA相对表达量显著提高(P<0.05),亚油酸组和油酸+亚油酸组ACACA的mRNA相对表达量显著降低(P<0.05),但2组间无显著差异(P>0.05);各添加组脂肪酸合成酶(FASN)和酰基辅酶A合成酶1(ACSL1)的mRNA相对表达量显著降低(P<0.05),各组间显著性关系为亚油酸组<油酸+亚油酸组<油酸组<对照组(P<0.05);各添加组硬酯酰辅酶A去饱和酶(SCD)和脂肪酸结合蛋白3(FABP3)mRNA相对表达量均显著降低(P<0.05),且亚油酸组显著低于油酸组和油酸+亚油酸组(P<0.05),但油酸组和油酸+亚油酸组之间无显著差异(P>0.05);油酸+亚油酸组分化抗原簇36(CD36)mRNA相对表达量显著降低(P<0.05),其他组间无显著差异(P>0.05);亚油酸组固醇调节元件结合蛋白1(SREBF1)mRNA相对表达量显著提高(P<0.05),而其他组显著降低其表达量(P<0.05);各添加组过氧化物酶体增殖物激活受体γ(PPARG)mRNA相对表达量显著降低(P<0.05);各添加组1-单酰甘油-3-磷酸酰基转移酶6(AGPAT6)mRNA相对表达量均显著提高(P<0.05),但油酸+亚油酸组显著低于油酸组和亚油酸组(P<0.05);各添加组二脂酰甘油酰基转移酶1(DGAT1)和磷脂酸磷酸酶(LPIN1)mRNA相对表达量均显著降低(P<0.05),亚油酸组和油酸+亚油酸组之间无显著差异(P>0.05),但显著低于油酸组(P<0.05);油酸组3-磷酸甘油酰基转移酶(GPAM)mRNA相对表达量显著提高(P<0.05),亚油酸组其表达量显著降低(P<0.05),而油酸+亚油酸组与对照组相比无显著差异(P>0.05)。
图1 添加油酸和亚油酸对奶牛乳腺上皮细胞乳脂合成相关基因mRNA相对表达量的影响

ACACA:乙酰辅酶A羧化酶 acetyl-CoA carboxylase;FASN:脂肪酸合成酶 fatty acid synthetase;SCD:硬酯酰辅酶A去饱和酶stearoyl-CoA desaturase;ACSL1:酰基辅酶A合成酶1 acy-CoA synthase 1;CD36:分化抗原簇36 cluster of differentiation 36;SREBF1:固醇调节元件结合蛋白1 sterol regulatory element binding transcription factor 1;FABP3:脂肪酸结合蛋白3 fatty acid binding protein 3;PPARG:过氧化物酶体增殖物激活受体γ peroxisome proliferator-activated receptor gamma;AGPAT6:1-单酰甘油-3-磷酸酰基转移酶6 1-acylglycerol-3-phosphate-acyltransferases 6;DGAT1:二脂酰甘油酰基转移酶1 diglyceride acyltransferase 1;GPAM:3-磷酸甘油酰基转移酶 glycerol-3-phosphate acyltransferase;LPIN1:磷脂酸磷酸酶phosphatidic acid phosphatase 1。数据柱标注不同字母表示差异显著(P<0.05)。图2同。Data column with different letter superscripts mean significant difference (P<0.05). The same as Fig.2.

Fig.1 Effects of supplementation with oleic and linoleic acid on mRNA relative expression levels of genes related to milk fat synthesis in bovine mammary epithelial cells

2.2 试验2结果分析

表4可见,各组均未影响甘油三酯相对含量,虽然数值上均高于对照组,但差异不显著(P>0.05)。
表4 固定油酸添加量、增量添加亚油酸对奶牛乳腺上皮细胞甘油三酯相对含量的影响

Table 4 Effects of supplementation with fixed amount of oleic and increased amount of linoleic acid on relative content of triglyceride in bovine mammary epithelial cells

项目
Item
组别Groups SEM
油酸对照
Oleic control
油酸+25亚油酸
Oleic+25linoleic
油酸+50亚油酸
Oleic+50linoleic
油酸+75亚油酸
Oleic+75linoleic
甘油三酯相对含量
Relative content of triglyceride
1.00 1.34 1.48 1.30 0.22
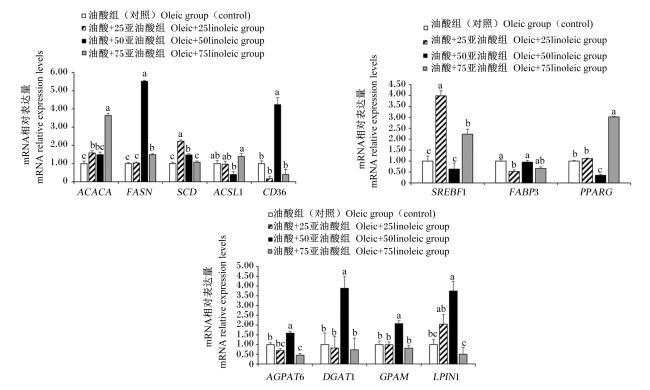
图2可知,与油酸组(对照)相比,油酸+25亚油酸组和油酸+75亚油酸组ACACA的mRNA相对表达量显著提高(P<0.05),而油酸+50亚油酸组无显著变化(P>0.05),油酸+75亚油酸组显著高于油酸+25亚油酸组(P<0.05);油酸+50亚油酸组和油酸+75亚油酸组FASN mRNA相对表达量显著提高(P<0.05),且油酸+25亚油酸组显著高于油酸+75亚油酸组(P<0.05);油酸+25亚油酸组和油酸+50亚油酸组SCD mRNA相对表达量显著提高(P<0.05);油酸+50亚油酸组ACSL1 mRNA相对表达量显著降低(P<0.05),且显著低于油酸+75亚油酸组(P<0.05);油酸+50亚油酸组CD36、DGAT1和GPAM的mRNA相对表达量显著升高(P<0.05);油酸+25亚油酸组和油酸+75亚油酸组SREBF1 mRNA相对表达量显著提高(P<0.05),且油酸+25亚油酸组显著高于油酸+75亚油酸组(P<0.05);油酸+25亚油酸组FABP3 mRNA相对表达量显著降低(P<0.05),但与油酸+75亚油酸组相比无显著差异(P>0.05);油酸+50亚油酸组PPARG的mRNA相对表达量显著降低(P<0.05),但油酸+75亚油酸组PPARG的mRNA相对表达量显著升高(P<0.05);油酸+50亚油酸组AGPAT6的mRNA相对表达量显著提高(P<0.05),油酸+75亚油酸组AGPAT6的mRNA相对表达量显著降低(P<0.05);油酸+50亚油酸组LPIN1的mRNA相对表达量显著提高(P<0.05),油酸+75亚油酸组LPIN1 mRNA相对表达量显著低于油酸+25亚油酸组和油酸+50亚油酸组(P<0.05)。
图2 固定油酸添加量、增量添加亚油酸对奶牛乳腺上皮细胞乳脂合成相关基因mRNA相对表达量的影响

Fig.2 Effects of supplementation with fixed amount of oleic and increased amount of linoleic acid on mRNA relative expression levels of genes related to milk fat synthesis in bovine mammary epithelial cells

3 讨论

奶牛乳脂中甘油三酯含量占98%左右,是乳脂中主要的脂类物质,因此细胞中甘油三酯含量的变化可以反映乳脂合成的变化。课题组前期研究表明,外源等量混合供给油酸和亚油酸时,亚油酸通过抑制油酸而影响乳脂合成[2]。因此本试验在乳腺上皮细胞层面,首先探明上述现象是否由于等量混合添加所致(试验1),在此基础上再次探究亚油酸的供给量是否是混合添加时影响乳脂合成的重要因素(试验2)。本试验中单独添加油酸、亚油酸均增加了甘油三酯的相对含量,与前人研究结果[7]一致,但当混合添加油酸和亚油酸时,等量或变量添加亚油酸均对甘油三酯合成无显著影响。与本试验结果不同,有研究发现油酸、亚油酸、亚麻酸混合添加可显著提高乳腺上皮细胞中甘油三酯含量[8]。这提示油酸、亚油酸、亚麻酸对甘油三酯合成的调控作用并不一致,且等剂量的油酸和亚油酸混合对甘油三酯合成的影响可能具有拮抗效应,但尚需进一步研究证实。
脂肪酸在乳腺内进行乳脂合成的分子代谢调控网络已经做了充分的研究[3,9]。油酸和亚油酸是牛奶中主要的18碳不饱和脂肪酸,国内外关于18碳不饱和脂肪酸在乳腺细胞分子水平上的研究重点更多集中在单一、混合添加18碳不饱和脂肪酸,以及不同18碳不饱和脂肪酸配比对乳脂合成相关基因表达和甘油三酯合成的影响上[4,10-11],虽然已较为充分阐述了乳腺上皮细胞进行乳脂合成过程的关键调控网络,然而鲜有研究关注18碳不饱和脂肪酸之间可能存在的交互作用。
在乳腺组织中,GPAM、AGPAT6、DGAT1、LPIN1是主要参与甘油三酯结构形成的酶,通过催化酰基脂肪酸结合在甘油骨架上而促进甘油三酯的合成[12]。本试验1中,DGAT1、LPIN1 mRNA相对表达量受亚油酸的抑制作用强于油酸,GPAM mRNA相对表达量被亚油酸抑制但被油酸促进,而AGPAT6 mRNA相对表达量则均被油酸和亚油酸促进。此外,油酸单独添加对GPAMAGPAT6、DGAT1、LPIN1 mRNA相对表达量的调控均显著高于混合添加。混合添加等量油酸和亚油酸时,GPAM的mRNA相对表达量出现了“中和”效应,而GPAM是乳腺甘油三酯合成过程的起始关键限速酶[4],上述结果提示,二者混合对上述基因的影响可能具有组合效应。通过试验2结果可以发现,AGPAT6、DGAT1、GPAMLPIN1 mRNA相对表达量均在油酸+50亚油酸组最高,而当降低或增加亚油酸添加量时,上述基因的mRNA相对表达量无显著变化。综合2个试验结果发现,油酸与亚油酸的混合添加对甘油三酯合成基因的调控与亚油酸的添加剂量因素有关,需要适宜配比。Sheng等[13]也提出,适宜的不饱和脂肪酸之间的配比可以有效调控乳腺内甘油三酯的合成。
乳腺中的SREBF1和PPARG是调控乳脂合成的重要因子[9,14]。本试验中,SREBF1 mRNA相对表达量在添加油酸后显著降低,这与前人研究结果[15]一致。脂肪酸是PPARG的天然配体,能够通过激活其受体从而调控下游相关靶基因的表达水平[5],但不同的脂肪酸对PPARG mRNA相对表达量的影响并不一致[16]。本试验结果表明,单独或混合添加油酸和亚油酸均对PPARG mRNA相对表达量具有抑制作用,但当不同剂量混合添加二者时表现并不一致,体现在试验2中油酸+75亚油酸组显著提高PPARG的mRNA相对表达量,而油酸+50亚油酸组显著降低PPARG的mRNA相对表达量,原因可能与添加剂量有关,有研究表明,100 μmol/L油酸显著降低PPARG的mRNA相对表达量[15],也有研究发现,40 μmol/L亚油酸显著抑制PPARG的mRNA相对表达量而80 μmol/L则对其mRNA相对表达量无显著影响[17]
乳腺中的ACACA和FASN是参与从头合成脂肪酸的重要酶。有学者提出外源添加长链脂肪酸对乳腺内ACACA和FASN具有抑制作用从而抑制从头合成过程,进而降低乳脂中短链脂肪酸的产出[9]。本试验中,单独或混合添加油酸和亚油酸均显著降低FASN的mRNA相对表达量,但ACACA mRNA相对表达量在单独添加油酸时显著升高,且在油酸+25亚油酸组和油酸+75亚油酸组显著升高,提示油酸可能促进从头合成起始步骤,且不高于100 μmol/L的亚油酸与之混合添加时增加这种促进作用,但此推测尚需进一步深入探究。
泌乳奶牛乳腺组织中的ACSL1作用是将长链脂肪酸活化形成酯酰辅酶A。本试验中,ACSL1 mRNA相对表达量在单独或混合添加油酸和亚油酸后均出现降低,与PPARG mRNA相对表达量的变化较为一致,而PPARG正向调控ACSL1 mRNA相对表达量[18],不同的是ACSL1 mRNA相对表达量被亚油酸抑制的程度强于油酸,提示不同长链脂肪酸在乳腺被活化为酯酰辅酶A时存在差异性。乳腺中的CD36和FABP3是调控长链脂肪酸转运的蛋白,其中CD36主要功能是转运长链脂肪酸穿过毛细血管内皮进入乳腺上皮细胞[19],而FABP3主要功能是胞内转运长链脂肪酸。外源长链脂肪酸的添加可以刺激CD36的表达且与脂肪酸碳原子数目相关[20]。本试验中,CD36 mRNA相对表达量在单独添加油酸和亚油酸时无显著变化,但混合添加时则受到显著抑制且受亚油酸不同添加剂量的影响,提示长链脂肪酸对CD36表达的调控不仅与碳原子数量有关,还与脂肪酸的配比有关。有学者提出不同不饱和脂肪酸比例对FABP3的mRNA表达量影响较小[10],本试验结果与之不同,可能的原因是前人研究中添加的混合不饱和脂肪酸同时包括亚麻酸[10],也提示18碳不饱和脂肪酸对乳脂合成相关基因的影响存在交互作用。
奶牛乳腺中的SCD对甘油三脂合成和乳脂流动性具有重要贡献,被认为是乳脂肪酸合成的核心基因之一[3]。研究证实SCD基因表达与牛奶中油酸和总不饱和脂肪酸含量呈显著正相关[21]。然而,细胞中添加油酸对SCD基因的表达具有显著下调作用[9],这可能是因为产物增加所发生的负反馈调节机制所致。另有研究报道,奶牛乳腺中SCD1对饲粮供给的亚油酸较为敏感,强于油酸和亚麻酸,相比于饲粮供给菜籽油和亚麻籽油,饲喂大豆油显著下调了SCD的mRNA表达量[22],与本研究结果一致。然而,前人报道的亚油酸对SCD mRNA相对表达量的影响并不相同[5,23]。综合比较,可能与添加剂量有关,也可能与添加形式有关,且添加混合不饱和脂肪酸对SCD mRNA相对表达量的影响较添加单一不饱和脂肪酸更为复杂[5]

4 结论

本试验结果提示,单独添加油酸和亚油酸可增加甘油三酯相对含量,混合添加时,等量或变量添加亚油酸均对甘油三酯相对含量无显著影响。单独添加油酸对GPAMAGPAT6、DGAT1、LPIN1 mRNA相对表达量的调控作用强于混合添加油酸和亚油酸,但当100 μmol/L油酸和50 μmol/L亚油酸混合添加时,上述基因表达显著提升。本试验结果表明,油酸和亚油酸混合添加对乳脂合成相关基因表达的调控与亚油酸的添加剂量有关。
[1]
BERNARD L, POMIÈS D, ARONEN I, et al. Effect of concentrate enriched with palmitic acid versus rapeseed oil on dairy performance,milk fatty acid composition,and mammary lipogenic gene expression in mid-lactation Holstein cows[J]. Journal of Dairy Science, 2021, 104(11):11621-11633.

DOI

[2]
BAI C, CAO Q N, KHAS-ERDENE, et al. Combined effects of oleic,linoleic and linolenic acids on lactation performance and the milk fatty acid profile in lactating dairy cows[J]. Animal, 2018, 12(5):983-989.

DOI

[3]
BIONAZ M, LOOR J J. Gene networks driving bovine milk fat synthesis during the lactation cycle[J]. BMC Genomics, 2008, 9:366.

DOI PMID

[4]
DAN N, ZHANG H, AO C J, et al. Transcriptional regulation of milk lipid synthesis by exogenous C16∶0 and C18 fatty acids in bovine mammary epithelial cells[J]. Canadian Journal of Animal Science, 2018, 98(2):260-270.

DOI

[5]
丹妮. 粗饲料品质对奶牛乳脂脂肪酸组成的影响及其机理研究[D].博士学位论文. 呼和浩特: 内蒙古农业大学, 2018.

DAN N. Effects of roughage quality on milk fatty acid composition and its mechanism in dairy cows[D].Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2018. (in Chinese)

[6]
李泽廷. 亚油酸和油酸对奶牛乳腺上皮细胞中乳脂合成的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2021.

LI Z T. Effects of linoleic acid and oleic acid on milk fat synthesis in bovine mammary epithelial cell[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2021. (in Chinese)

[7]
YONEZAWA T, YONEKURA S, KOBAYASHI Y, et al. Effects of long-chain fatty acids on cytosolic triacylglycerol accumulation and lipid droplet formation in primary cultured bovine mammary epithelial cells[J]. Journal of Dairy Science, 2004, 87(8):2527-2534.

DOI PMID

[8]
ZHANG H, DAN N, AO C J, et al. Effects of exogenous C18 unsaturated fatty acids on milk lipid synthesis in bovine mammary epithelial cells[J]. Journal of Dairy Research, 2020, 87(3):344-348.

DOI PMID

[9]
KADEGOWDA A K G, BIONAZ M, PIPEROVA L S, et al. Peroxisome proliferator-activated receptor-γ activation and long-chain fatty acids alter lipogenic gene networks in bovine mammary epithelial cells to various extents[J]. Journal of Dairy Science, 2009, 92(9):4276-4289.

DOI

[10]
VARGAS-BELLO-PÉREZ E, LOOR J J, GARNSWORTHY P C. Effect of different exogenous fatty acids on the cytosolic triacylglycerol content in bovine mammary cells[J]. Animal Nutrition, 2019, 5(2):202-208.

DOI

[11]
BERNARD L, TORBATI M B M, GRAULET B, et al. Long-chain fatty acids differentially alter lipogenesis in bovine and caprine mammary slices[J]. Journal of Dairy Research, 2013, 80(1):89-95.

DOI PMID

[12]
ALI I, LI C M, LI L, et al. Effect of acetate,β-hydroxybutyrate and their interaction on lipogenic gene expression,triglyceride contents and lipid droplet formation in dairy cow mammary epithelial cells[J]. In Vitro Cellular & Developmental Biology-Animal, 2021, 57(1):66-75.

DOI

[13]
SHENG R, YAN S M, QI L Z, et al. Effect of the ratios of unsaturated fatty acids on the expressions of genes related to fat and protein in the bovine mammary epithelial cells[J]. In Vitro Cellular & Developmental Biology-Animal, 2015, 51(4):381-389.

DOI

[14]
NAFIKOV R A, SCHOONMAKER J P, KORN K T, et al. Sterol regulatory element binding transcription factor 1 (SREBF1) polymorphism and milk fatty acid composition[J]. Journal of Dairy Science, 2013, 96(4):2605-2616.

DOI PMID

[15]
邢媛媛, 李红磊, 李大彪, 等. 油酸对奶牛乳腺上皮细胞内甘油三酯含量和乳脂肪合成相关基因表达的影响[J]. 中国畜牧杂志, 2017, 53(7):56-61.

XING Y Y, LI H L, LI D B, et al. Effects of oleic acid on triglyceride content and gene expressions involved in milk fat synthesis in bovine mammary epithelial cells[J]. Chinese Journal of Animal Science, 2017, 53(7):56-61. (in Chinese)

[16]
LIU L L, LIN Y, LIU L X, et al. Regulation of peroxisome proliferator-activated receptor gamma on milk fat synthesis in dairy cow mammary epithelial cells[J]. In Vitro Cellular & Developmental Biology-Animal, 2016, 52(10):1044-1059.

DOI

[17]
李红磊. 二、三维培养模式下添加十八碳不饱和脂肪酸对奶牛乳腺上皮细胞乳成分合成的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2016.

LI H L. Effect of 18-carbon unsaturated fatty acids supplementation on milk composition synthesis in two and three-dimensional cultured bovine mammary epithelial cells[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2016. (in Chinese)

[18]
MU T, HU H H, MA Y F, et al. Regulation of key genes for milk fat synthesis in ruminants[J]. Frontiers in Nutrition, 2021, 8:765147.

DOI

[19]
BIONAZ M, VARGAS-BELLO-PÉREZ E, BUSATO S. Advances in fatty acids nutrition in dairy cows:from gut to cells and effects on performance[J]. Journal of Animal Science and Biotechnology, 2020, 11(1):110.

DOI

[20]
YONEZAWA T, YONEKURA S, SANOSAKA M, et al. Octanoate stimulates cytosolic triacylglycerol accumulation and CD36 mRNA expression but inhibits acetyl coenzyme A carboxylase activity in primary cultured bovine mammary epithelial cells[J]. Journal of Dairy Research, 2004, 71(4):398-404.

DOI

[21]
XIONG L, PEI J, WU X Y, et al. Explaining unsaturated fatty acids (UFAs),especially polyunsaturated fatty acid (PUFA) content in subcutaneous fat of yaks of different sex by differential proteome analysis[J]. Genes, 2022, 13(5):790.

DOI

[22]
JACOBS A A A, VAN BAAL J, SMITS M A, et al. Effects of feeding rapeseed oil,soybean oil,or linseed oil on stearoyl-CoA desaturase expression in the mammary gland of dairy cows[J]. Journal of Dairy Science, 2011, 94(2):874-887.

DOI

[23]
HARVATINE K J, BAUMAN D E. SREBP1 and thyroid hormone responsive spot 14 (S14) are involved in the regulation of bovine mammary lipid synthesis during diet-induced milk fat depression and treatment with CLA[J]. Journal of Nutrition, 2006, 136(10):2468-2474.

PMID

Outlines

/