REVIEW

Research Progress of Antioxidant Activity of Lactic Acid Bacteria in Livestock and Poultry Production

  • WANG Shaolong ,
  • ZHANG Chaosheng ,
  • LIU Guohua ,
  • CHEN Zhimin , *
Expand
  • Key Laboratory of Feed Biotechnology of Ministry of Agriculture and Rural Affairs, Institute of Feed Research of Chinese Academy of Agricultural Sciences, Beijing 100081, China
*associate professor, E-mail:

Received date: 2022-12-05

  Online published: 2023-06-08

Abstract

In recent years, studies have pointed out that free radical homeostasis and oxidative stress are important causes of animal lesions. Therefore, it is very important to develop safe and efficient animal health gain products. Lactic acid bacteria are recognized as food-grade probiotics, and their unique antioxidant activity has been confirmed, which has great potential in the development and utilization of antioxidants in livestock and poultry, and can be used as antioxidant microecologics to alleviate oxidative stress and its complications in livestock and poultry. This paper not only summarizes the research and application of antioxidants, but also reviews the mechanism and evaluation methods of antioxidant activities of lactic acid bacteria in the field of livestock and poultry. It aims to provide reference for the research and development of new micro-ecological antioxidants in the field of animal husbandry and further research on antioxidant activities of lactic acid bacteria.

Cite this article

WANG Shaolong , ZHANG Chaosheng , LIU Guohua , CHEN Zhimin . Research Progress of Antioxidant Activity of Lactic Acid Bacteria in Livestock and Poultry Production[J]. Chinese Journal of Animal Nutrition, 2023 , 35(6) : 3431 -3444 . DOI: 10.12418/CJAN2023.319

研究表明,动物机体健康与自由基稳态存在重要关系,一旦自由基生成和清除的动态平衡被打破,就会产生氧化应激[1-3]。氧化应激可以影响到基因的转录,细胞信号的传导,酶和生物大分子的活性,细胞和器官的功能[4]以及细胞的增殖、分化、凋亡和坏死等许多生理和病理过程,成为疾病发生和发展的重要原因[5-7]。正常细胞可以通过自身抗氧化体系维持细胞活性氧(reactive oxygen species,ROS)水平和整体氧化还原系统的稳衡,避免氧化应激对自身造成损伤[8]。然而,在自由基与细胞自身抗氧化体系的制衡对抗中前者往往更占据优势[9]。生产中,氧化应激会导致多种疾病,如断奶仔猪猝死、鸡胚氧化应激、家禽腹水症、猪恶性高热症、牛乳房水肿和奶牛繁殖疾患等,从而影响畜禽的生产性能[10-11]。为了防止出现氧化应激,除了供应满足畜禽营养充足、平衡的饲粮外,通过添加外源性抗氧化活性物质也可以达到减轻畜禽氧化应激的目的[12-14]
乳酸菌是国内外公认的食品级微生物,是一类无芽孢、革兰氏阳性细菌,在自然环境中分布广泛,大部分兼性厌氧,可以利用碳水化合物,主要代谢产物是乳酸。根据细菌分类学,可以将乳酸菌归于厚壁菌门和放线菌门,目前乳酸菌共有41个属,常见的属有乳酸杆菌属、双歧杆菌属、乳球菌属、链球菌属、明串珠菌属、肠球菌属、片球菌属、芽孢乳杆菌属、奇异菌株属以及肉食杆菌属等[15]。近年来,逐渐揭示了乳酸菌对人类和动物的益生潜力,包括平衡肠道菌群、调节机体免疫、降低血清胆固醇含量和抗肿瘤活性等生理功能[16-18];其作为益生菌剂添加到饲粮中,能够促进畜禽肠黏膜系统的发育并减轻肠道损伤,进而提高生长性能。一些研究还发现了乳酸菌其他重要的生物学功能,如抗细胞衰老和抗氧化活性[19-20]。目前,研究发现具有抗氧化活性的乳酸菌种属有鼠李糖乳杆菌、植物乳杆菌、嗜酸乳杆菌、乳酸片球菌和瑞士乳杆菌,各自具有其独特的抗氧化特性。提高养殖动物抗氧化水平对改善动物健康状况和产品品质十分重要,乳酸菌的抗氧化潜力对畜禽新型抗氧化剂的研发是一个重要的启示。因此,本文首先对当前抗氧化剂研究现状进行了概述,并重点对乳酸菌抗氧化活性在畜禽生产领域的研究应用、发挥抗氧化活性的机制和评估方法进行了综述,以期为今后畜禽生产领域微生态抗氧化制剂的研发和应用以及深入探究乳酸菌抗氧化活性机制和完善抗氧化活性评估体系提供参考。

1 抗氧化剂概述

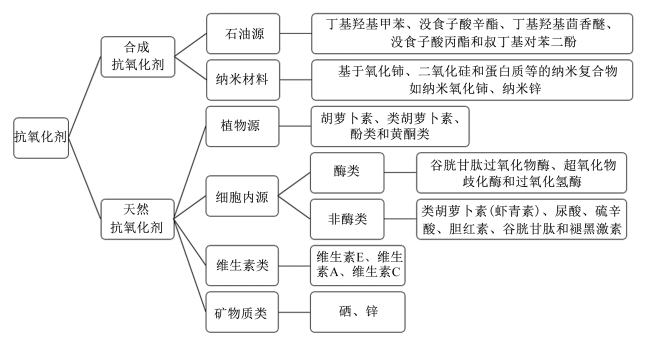
抗氧化剂按照获取来源可以分为天然抗氧化剂和合成抗氧化剂(图1)。植物源的有胡萝卜素、酚类和黄酮类等[21];细胞内源的有抗氧化酶类以及虾青素[22]、褪黑激素等;维生素及矿物质元素类的有维生素E、维生素A、维生素C[23]、硒[24-25]和锌等。目前,研究和应用比较多的有植物酚类[26]、胞内虾青素[27]和褪黑素[28]、维生素[14]和矿物质类抗氧化剂[29],这些都属于天然抗氧化剂范畴。合成抗氧化剂可以分为2类,即石油来源和纳米技术制造的抗氧化剂。应用石油等化工原料合成的抗氧化剂如丁基羟基甲苯(butylated hydroxytoluene,BHT)、叔丁基对苯二酚(tertiary butylhydroquinone,TBHQ)、丁基羟基茴香醚(butylated hydroxyabisole,BHA)、没食子酸辛酯(octane gallate,OG)和没食子酸丙酯(propyl gallate,PG)等,广泛应用于食品防腐[30]。纳米工程技术的快速发展为创新型“纳米抗氧化剂”的开发提供了新工具,这些纳米抗氧化剂具有强大的自由基清除能力,与常规抗氧化剂相比具有更强的稳定性和对抗恶劣微环境的能力[31],如氧化锌纳米粒子、氧化铈纳米粒子、聚多巴胺纳米粒子、蛋白质纳米抗氧化剂等[32]
图1 抗氧化剂分类图

Fig.1 Antioxidant classification chart

微生物源抗氧化剂具备天然特性、药用特性、营养价值和生产可控性,蕴含着抗氧化剂开发利用的巨大潜力[33-34]。与天然植物源抗氧化剂相比,微生物源抗氧化剂具备在可控条件下借助微生物的繁殖特点快速提高产能的特性;与合成抗氧化剂相比,微生物源抗氧化剂具有无毒、非致癌、可生物降解的特性[35]。研究表明,乳酸菌自身合成的生物活性化合物——胞外多糖(exopolysaccharides,EPS),具备独特的生物相容性、非毒性和生物可降解性[36],Li等[37]对瑞士乳杆菌KLDS1.8701产生的EPS研究发现,EPS对1,1-二苯基-2-三硝基苯肼(1,1-diphenyl-2-picrylhydrazy,DPPH)、超氧阴离子( O 2 -)、羟基(OH-)自由基有较强的清除能力,并对铁离子(Fe2+)具有螯合活性。

2 乳酸菌抗氧化活性作用机制

近年来,关于乳酸菌发挥抗氧化活性的潜在作用机制研究逐渐深入,研究指出,乳酸菌可能是通过清除ROS自由基、螯合金属离子、增加抗氧化酶活性和调节微生物菌群来发挥抗氧化作用[8,38]。通过查阅分析近年来关于乳酸菌抗氧化机制的研究文献,乳酸菌自身具备的抗氧化体系与底物发酵过程中所产生的活性物质共同赋予了、增强了乳酸菌的抗氧化活性。因此,这里将乳酸菌发挥高抗氧化活性机制总结为乳酸菌自身抗氧化和乳酸菌发酵代谢产物抗氧化2个作用途径,并以此展开论述。由于不同种属的乳酸菌拥有不尽相同的代谢特性,因此不同种属的乳酸菌将会拥有各自独特的一套发挥抗氧化活性的机制。

2.1 乳酸菌自身抗氧化

菌体细胞作为一个完整且独立的微生物个体,其自身具备抵御外界氧化压力的能力。当菌体细胞受到氧化自由基侵害时,自身的抗氧化防护系统会调控产生更多的抗氧化酶类或其他活性抗氧化类物质。目前研究报道,乳酸菌自身发挥抗氧化活性主要依赖4个体系:氧化还原调控体系、信号通路调控体系、金属离子螯合体系和ROS调控与自由基清除体系,当乳酸菌受到过多自由基侵害时,菌体细胞将依赖这些抗氧化体系的相互作用去抵御氧化应激的发生[20]

2.1.1 氧化还原调控体系

研究发现,乳酸菌参与的氧化还原调控体系是复杂的,目前认为其主要由硫氧还蛋白(thioredoxin,Trx)系统、谷胱甘肽(glutathione,GSH)系统组成,并且电子转移是该氧化还原体系的关键调控因素[39-40]。GSH和Trx系统都是通过供氢体转换和电子转移来调整自身氧化/还原状态,从而达到清除脂质过氧化物和过氧化氢(H2O2)等氧化性物质,增强细胞抵抗氧化胁迫能力,维持细胞氧化/还原稳衡的目的,是细胞中普遍存在的巯基依赖型氧化还原酶系统[41]。而还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)将为这些氧化还原系统提供还原当量,通过可逆的巯基氧化还原将电子传递到下游。2个系统相互协同发挥抗氧化调节作用,当Trx系统电子传递受阻时GSH系统可以作为备用通道,最终达到清除自由基维持细胞氧化还原平衡的目的[42]

2.1.2 信号通路调控体系

乳酸菌还可以通过调控宿主体内多种信号通路来维持氧化还原的稳衡,目前研究证实,可调控的通路涉及到核转录因子E2相关因子2(nuclear transcription factor-E2 related factor 2,Nrf2)/抗氧化反应元件(antioxidant response element,ARE)、沉默信息调节因子(silent information regulator,SIRT)。调控Nrf2信号通路是一种对抗氧化应激及其并发症的细胞策略,当高水平的氧化自由基刺激细胞时,胞质中的Nrf2会被从Nrf2-Kelch样环氧氯丙烷相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)沉默复合体中解离激活出来,然后转位到细胞核并与相应ARE序列结合,进而启动细胞抗氧化酶和防护基因的转录[43-45]。因此,Nrf2的激活会导致体内抗氧化酶和细胞保护类蛋白质水平升高,这些蛋白质在应对氧化应激和维持氧化还原平衡方面发挥着重要作用,Nrf2已被证实是抗氧化益生菌中最重要的氧化应激保护机制之一[46]。SIRT属于烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NAD)依赖性组蛋白去乙酰酶(histone deacetylase,HDAC)家族,具有使组蛋白和非组蛋白靶点脱乙酰化的能力,可以通过调节对氧化还原稳态不可或缺的关键基因和分子,在哺乳动物抗氧化中发挥至关重要的作用[47]

2.1.3 金属离子螯合体系

金属离子螯合体系的特殊之处在于它不依靠抗氧化酶类,而是一种非酶的氧化应激防御体系,主要依赖于菌株对金属离子的螯合作用。Fe2+和铜离子(Cu2+)是自由基形成过程中的最普遍和最活跃的离子,多项研究报道,乳酸菌菌株对Fe2+和Cu2+具有很强的螯合能力[48-51]。Hougaard等[52]研究发现,在嗜酸乳杆菌NCFM生长过程中,培养液中的金属离子(Fe2+、Cu2+)浓度下降,这是氧化还原活性金属离子(Fe2+、Cu2+)被抗氧化剂螯合在细菌膜上的结果。

2.1.4 ROS调控与自由基清除体系

抵抗氧化应激产生、调控细胞ROS生成、清除体内过多自由基是缓解机体氧化应激的有效途径。烟酰胺腺嘌呤二核苷酸磷酸氧化酶(nicotinamide adenine dinucleotide phosphate oxidases,NOX)和线粒体代谢被认为是ROS产生的重要来源,乳酸菌通过下调某些产生ROS的酶活性,进而发挥抗氧化作用以减轻氧化应激损伤[53]。嗜酸乳杆菌可以下调嗜水气单胞菌诱导攻击的鱼胸腺巨噬细胞中环加氧酶-2(cyclooxygenase-2,COX-2)的表达[54],且已证实COX-2与ROS的产生高度相关[55],因此这类产生ROS的酶活性下调将对乳酸菌发挥抗氧化能力有显著提升。研究表明,多种乳酸菌菌株及其代谢产物对DPPH、OH- O 2 -和H2O2表现出很高的清除降解能力[51,56-58],且清除活性通常随着菌体细胞浓度的增加而增加,乳酸菌高效而广泛的自由基清除体系是其发挥高抗氧化活性的重要保障。

2.1.5 乳酸菌胞外囊泡(extracellular vesicles,EVs)

EVs是真核、原核生物向菌体外膜分泌的一类具有磷脂膜双层结构,携带多种生物信息分子,如核酸、蛋白质、脂类等的纳米级膜囊泡,这些多样性生物分子会使EVs在细胞进化中具备细胞间信息传递、物质交换和多种生存调控的重要功能[59]。益生菌来源的EVs可以调节多种信号通路,包括参与免疫反应信号通路的调控,能有效改善机体免疫和肠道屏障功能,是细菌-细菌和细菌-宿主之间相互作用的关键介体[60]。Seo等[61]通过研究乳酸菌来源EVs对肠炎模型小鼠的治疗作用,发现EVs可以被受体Caco-2细胞摄取,通过减少炎症Caco-2细胞模型和肠炎小鼠模型中炎性细胞因子的产生来调节炎症反应的作用,EVs组小鼠结肠内壁白细胞浸润和杯状细胞丢失量显著减少,且血清过氧化氢酶(catalase,CAT)活性显著低于对照组,显著改善了小鼠体重减轻和直肠出血症状。根据目前的研究结论,乳酸菌EVs有望成为一种新的肠炎治疗方法;乳酸菌EVs在调控小鼠肠道炎症反应过程中,能够对血清CAT表达进行干预,因此对于其在氧化应激方面的功效也值得进一步深入探究。

2.2 乳酸菌发酵代谢产物抗氧化

乳酸菌作为发酵剂的历史是悠久的,应用领域非常广泛,在发酵过程中产生的EPS、乳酸、羧酸以及醛类、多酚类物质在多项体内体外研究中被证实均表现出显著的抗氧化活性,进而提高发酵产品的抗氧化活性。饲料原料在经过乳酸菌发酵后营养价值得到进一步改善的同时,还被赋予了更好的功能性(提升饲料原料抗氧化活性)。

2.2.1 EPS

EPS因其独特的生物特性和抗氧化性能在医疗药物和营养保健品中广泛应用,可以作为抗氧化剂、降胆固醇剂、抗菌剂和益生元剂。对乳酸菌产生的EPS体外研究表明,EPS具有抗氧化和清除自由基的活性[62-63],在干酪乳杆菌EPS干预高脂血症大鼠模型和植物乳杆菌EPS干预的氧化应激小鼠模型试验中,EPS的抗氧化作用被再次证实。EPS表现出的抗氧化作用,在提高细胞抗氧化酶类活性的同时,也降低了氧化应激标志物丙二醛(malondialdehyde,MDA)含量[64-65],进而达到缓解氧化应激的目的。

2.2.2 酚类

酚类化合物是由许多分子组成的次生植物代谢物,自然存在于植物性饲料原料中,包括酚酸、类黄酮、二苯乙烯和木酚素。一般来说,酚类化合物可分为2类,单酚类和多酚类。众多研究表明,酚类化合物具有抗氧化活性,对机体健康有益生作用,包括抗炎、抗糖尿病和血管舒张作用。乳酸菌在发酵果蔬过程中检测到多酚类化合物的产生,并最终对果蔬制品的抗氧化活性和风味等方面表现出积极作用[66]。Nisa等[67]利用乳酸乳杆菌和植物乳杆菌混合发酵米糠,指出当植物乳杆菌的添加比例为10%时,其总酚含量达到最高,且抗氧化活性也达到最高。

2.2.3 其他抗氧化代谢产物

研究表明,植物乳杆菌发酵可以通过提高紫花苜蓿青贮α-生育酚和β-胡萝卜素的浓度以及多不饱和脂肪酸(polyunsaturated fatty acids,PUFA)的比例,进而提高青贮饲料的抗氧化活性[68]。植物乳杆菌发酵米糠能够提高米糠抗氧化活性,发现其发酵代谢产物中抗氧化活性化合物(阿魏酸、ρ-香豆酸)含量升高[69]。不同的乳酸菌发酵(培养)底物和时间对抗氧化活性成分的组成[70-71]和性能[67]会有显著影响。这些研究结果对于在制备乳酸菌抗氧化组分和开发乳酸菌深加工工艺方面奠定了理论基础。

3 乳酸菌抗氧化活性在畜禽生产中的应用

3.1 在猪生产中的应用

乳酸菌作为益生菌添加剂在断奶仔猪中应用,能有效缓解仔猪断奶应激和保护仔猪顺利度过保育期。Wang等[56]曾对一株植物乳杆菌ZLP001进行了体外、体内抗氧化活性评估,该菌株体外对H2O2有较高抗性,对OH- O 2 -和DPPH表现出较高清除能力,作为仔猪饲料添加剂不仅提高了仔猪血清超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)和CAT活性,还降低了血清MDA含量,改善了仔猪抗氧化状态,提高了饲料转化率和生产性能。Dowarah等[72]从仔猪粪便中获取一株乳酸菌FT28并对其益生特性进行研究,发现饲喂乳酸菌FT28的仔猪红细胞CAT和SOD活性升高,有效提高了仔猪抗氧化水平。Tang等[73]在断奶仔猪饲粮中添加植物乳杆菌CGMCC 1258同样也发现了血清SOD活性升高、MDA含量降低的现象。另有研究报道,仔猪饲粮添加植物乳杆菌可改善仔猪肝脏疾病、肠道炎症和氧化应激标志物指标,缓解仔猪肝肠损伤[74]。乳酸菌作为添加剂应用在猪生产中,表现出的抗氧化活性已被逐渐证实,对于改善猪群健康和缓解病症起到了积极作用。
近年来,以乳酸菌作为发酵剂制作的发酵饲料在猪生产中逐渐得到推广应用,同时研究发现,乳酸菌发酵可以增加饲料抗氧化活性。徐秀景等[75]将饲粮经乳酸菌发酵后饲喂生长育肥猪,结果显示发酵饲粮组血液的SOD、CAT、GPx活性和总抗氧化能力(total antioxidant capacity,T-AOC)显著提高,MDA含量显著下降。在另一研究中也得到了相似的结果,添加1%乳酸菌发酵饲粮显著提高了生长育肥猪血清SOD、GPx活性,并显著降低了MDA含量[76]。这与乳酸菌作为添加剂直接饲喂产生了相似效果,表明经乳酸菌发酵后的产物同样具有抗氧化活性,Le等[69]研究乳酸菌发酵对米糠抗氧化活性的影响可以证实这一点,研究发现,发酵后的米糠具有更高的清除DPPH和一氧化氮(NO)自由基的活性,乳酸菌发酵提高了米糠抗氧化活性。Wang等[70]对用植物乳杆菌423发酵的米糠和麦糠发酵液中抗氧化活性物质及其中的硫化物、芳香烃等风味物质进行了检测分析,米糠和麦糠发酵液中主要的抗氧化成分为酸(70.21%)和酮(10.64%),并且发酵后风味物质含量升高,植物乳杆菌发酵生成抗氧化物质的同时在改善动物饲粮适口性方面前景良好。

3.2 在家禽生产中的应用

乳酸菌作为饲料添加剂和发酵剂在家禽生产中对于缓解鸡群肠道疾病,改善机体抗氧化水平起到了重要作用。Yang等[57]从健康藏鸡肠道内容物中分离出一株植物乳杆菌JM113,在肉鸡试验饲粮中添加植物乳杆菌JM113使得空肠黏膜中CAT活性显著降低,表明植物乳杆菌JM113具有很强的抗氧化活性,有效保护了肉鸡肠道的完整性,缓解了脱氧雪腐镰刀菌烯醇(deoxynivalenol,DON)对家禽的侵害。Deepthi等[77]研究了植物乳杆菌MYS6对伏马菌素B1(fumonisin B1,FB1)诱导的肉仔鸡毒性和氧化损伤的改善作用,结果同样显示,植物乳杆菌MYS6降低了FB1诱导的试验组肉仔鸡血清和肝脏组织匀浆中氧化应激标志物的水平。因此,植物乳杆菌通过增强肉仔鸡抗氧化水平可以缓解由致病菌和毒素导致的机体病变,为肉仔鸡的高效生产提供保障。张晓羊等[78]将21日龄健康黄羽肉鸡分为对照组、嗜酸乳杆菌发酵棉籽粕组和棉籽粕+嗜酸乳杆菌组,结果显示,饲粮中添加发酵棉籽粕显著增强了肉鸡的免疫功能和抗氧化性能,而嗜酸乳杆菌对肉鸡免疫功能和抗氧化性能有促进作用但不显著。这种现象的出现可能与菌株在肠道内的定植能力和胃肠适应性有关,这些因素在益生菌添加剂开发利用过程中是至关重要的,目前微囊包被技术是解决该问题的一种方案,而有效后生元制备提取是另一种方案。Humam等[79]曾对3株植物乳杆菌的代谢产物进行了后生元制备(无细胞上清液),研究结果显示,在肉仔鸡饲粮中添加后生元制剂(尤其是植物乳杆菌RI11)提高了肌肉中T-AOC、CAT活性、GSH含量,肌肉中MDA含量低于抗生素对照组和抗坏血酸对照组,同时还改善了多项肉品质指标,该菌株后生元制剂在开发替代缓解肉鸡热应激抗生素和抗氧化剂方面潜力巨大。后续Humam等[80]对植物乳杆菌RI11后生元益生特性进行了更深入的研究,得出当植物乳杆菌RI11后生元制剂按照0.6%(体积质量比)水平在饲粮中添加时,可作为家禽饲用抗生素和抗氧化剂合适的天然替代物。以开发利用具有抗氧化活性后生元的形式对乳酸菌在家禽养殖行业发挥抗氧化、缓解氧化应激、维持动物健康状况的特性进行研究,将大大拓宽乳酸菌抗氧化活性在实际生产中的应用。

3.3 在反刍动物生产中的应用

从乳酸菌发酵制作青贮饲料改善饲草营养价值从而提高反刍动物生产性能,到促进幼龄反刍动物的瘤胃发育、调控瘤胃酸碱平衡和肠道微生物平衡[81-82],这些都是目前乳酸菌在反刍动物营养中的研究和应用成果,而关于乳酸菌更广泛益生功能的研究还在不断继续。窦露等[83]曾在苏尼特羊饲粮添加乳酸菌,结果显示,与对照组相比,乳酸菌组羊肉组织中CAT、GPx活性和T-AOC均升高,并且还改善了羊肉的肉质与风味特性,通过对抗氧化酶相关调控基因表达量的分析得出,乳酸菌组的CATGPx基因表达量显著高于对照组,证实了乳酸菌作为肉羊饲粮添加剂可以调控肉羊体内的抗氧化酶基因。Izuddin等[84]在断奶羔羊饲粮中添加植物乳杆菌后生元,提高了羔羊血清和瘤胃液中GPx活性,上调了肝脏抗氧化酶基因表达量,证实了植物乳杆菌后生元类物质在羔羊养殖生产中同样具有良好的抗氧化活性和调控宿主提升抗氧化水平的能力,且在改善羔羊免疫机能和肠道屏障功能方面也效果显著。Zhang等[68]利用植物乳杆菌24-7制作紫花苜蓿青贮,结果显示,与对照组相比,植物乳杆菌菌株处理组青贮苜蓿的T-AOC和GPx、CAT活性提高,紫花苜蓿青贮饲料的抗氧化性能得到了显著改善。以上研究实例从益生菌添加剂和发酵青贮剂的角度揭示了乳酸菌在反刍动物营养领域的抗氧化活性研究现状,为今后乳酸菌在反刍动物营养领域抗氧化活性的研究奠定了良好基础。
综上所述,目前有关乳酸菌抗氧化活性的报道在食品与医疗健康领域较多,而在畜禽养殖抗氧化保健康方面仍蕴藏着巨大潜力。近年来,随着畜牧养殖业集约化发展的推进,中国全面禁抗政策的施行,为了缓解养殖环境、致病菌等方面的压力对动物健康带来的负面影响,许多研究在替抗增益方面做了大量工作,其独特的抗氧化活性也逐渐在畜禽养殖领域得到证实和认可,近年来的研究结果详见表1
表1 乳酸菌在畜禽生产中抗氧化活性研究

Table 1 Study on antioxidant activity of lactic acid bacteria in animal husbandry

项目
Items
研究对象
Object of study
结果
Results
菌株
Strains
参考文献
Reference

Pig
断奶仔猪 提高了仔猪血清SOD、GPx和CAT活性,
降低血清MDA含量
植物乳杆菌ZLP001 [56]
断奶仔猪 改善仔猪血液生化指标,提高红细胞中
CAT和SOD活性
乳酸片球菌FT28 [72]
断奶仔猪 提高血清SOD活性,降低血清MDA含量 植物乳杆菌CGMCC 1258、
罗伊氏乳杆菌LR1
[73]
断奶仔猪 增加回肠内容物中乳酸杆菌丰度,改善肝脏
炎症和氧化应激标志物指标
植物乳杆菌CGMCC 1258 [74]
育肥猪
育肥猪
显著提高育肥猪血液SOD、CAT、GPx活性,
显著降低血液MDA含量
乳酸菌
乳酸菌
[75]
[76]

Poultry
肉仔鸡 显著降低肉仔鸡空肠黏膜MDA含量 植物乳杆菌JM113 [57]
肉仔鸡 减轻肉仔鸡血清和肝脏组织匀浆中
氧化应激标志物的水平
植物乳杆菌MYS6 [77]
黄羽肉鸡 显著提高黄羽肉鸡血清GPx活性以及
肝脏GPx、SOD活性
嗜酸乳杆菌 [78]
肉仔鸡 提高了T-AOC、CAT活性和GSH含量,
肌肉中MDA含量低于抗生素对照组和
抗坏血酸对照组,改善鸡肉品质
植物乳杆菌RI11、
RS5、UL4
[79]
反刍动物
Ruminant
育肥羊 提高了羊肉组织中T-AOC和CAT、GPx活性,
相关抗氧化酶CATGPx基因上调
干酪乳杆菌HM-09、
植物乳杆菌HM-10
[83]
羔羊 提高了羔羊血清和瘤胃液GPx活性,且肝脏中
GPx1、GPx4和SOD基因上调
植物乳杆菌RG14、RG11、TL1 [84]
青贮饲料 提高了紫花苜蓿青贮的α-生育酚和
β-胡萝卜素含量,还提高了T-AOC和
GPx、CAT活性
植物乳杆菌24-7 [68]

SOD:超氧化物歧化酶 superoxide dismutase;GPx:谷胱甘肽过氧化物酶 glutathione peroxidase;CAT:过氧化氢酶 catalase;MDA:丙二醛 malondialdehyde;T-AOC:总抗氧化能力 total antioxidant capacity。

4 乳酸菌抗氧化活性评估方法

目前,已经使用多种方法来对乳酸菌抗氧化活性进行评估,主要是针对乳酸菌完整菌体细胞、发酵上清液和胞内提取物作为评估目标,通过体外直接检测的化学方法或构建动物和细胞试验模型的模拟生物机体内环境循环的方法,以清除自由基、螯合金属离子、抑制脂质过氧化、耐H2O2能力、抗氧化酶活性和还原能力等为评估指标进行抗氧化活性研究。这些用于乳酸菌抗氧化活性的评估方法,根据研究途径和评估指标可以分为体外和体内2种评估体系,详见表2表3。体外抗氧化评估体系包含着可以在体外条件下运用化学反应原理就能对乳酸菌某种成分的抗氧化活性进行准确高效检测的方法,如DPPH、OH- O 2 -自由基清除率和T-AOC的测定。体外抗氧化评估方法试验操作简单、周期短,在当今的抗氧化性能测评和高抗氧化活性功能菌株开发选育工作中应用较为广泛。为了研究乳酸菌抗氧化活性在动物体内的真实作用效果,在采取体外评估法测评之后,还会继续运用体内评估方法去构建动物模型和细胞模型,对其抗氧化活性及产生的效应进行更深入的验证和探究。构建动物抗氧化模型的研究结果,虽能真实准确的反映出乳酸菌在体内的抗氧化效果,但试验成本高、周期较长。然而细胞抗氧化模型的构建是直接选用人源或其他对应动物源细胞制作的试验模型,在不涉及动物伦理问题降低试验成本的同时,利用细胞快速增殖的特点大大缩短试验周期,并且可以从细胞代谢层面对乳酸菌发挥抗氧化活性作用机制给予更精准直观的反映,使得抗氧化活性的预测评估结果更具有生物相关性。近十年来,猪、鸡、牛、羊和兔等农业动物肠道类器官培养体系相继建立,能够高度模拟动物组织,因此被广泛应用于动物营养学、生理学、毒理学、病理学和药理学研究[85-86],有望成为推动饲料添加剂活性评价和疾病机制解析的新平台。
表2 乳酸菌抗氧化活性体外评估方法

Table 2 In vitro evaluation method of antioxidant activity of lactic acid bacteria

评估指标
Evaluation
indexes
评估方法
Evaluation
method
原理
Theory
菌株
Strains
参考文献
Reference
ABTS Trolox等效抗氧化
能力测定法
测定抗氧化剂清除
ABTS的能力
7种双歧杆菌、11种乳酸杆菌、6种乳球
菌和10种嗜热链球菌
[87]
植物乳杆菌RI11、RS5、UL4 [79]
DPPH DPPH自由基溶液法 抗氧化剂可将游离的、稳定的、
呈紫色的2,2-二苯基-1-苦基肼
还原为黄色的二苯基苦肼
植物乳酸杆菌FC22 [88]
植物乳酸杆菌Y44 [89]
瑞士乳杆菌KLDS1.8701 [37]
过氧化物
自由基
Peroxide
radical
硝基蓝四氮唑法 通过NBT、还原型烟酰胺腺嘌呤
二核苷酸和吩嗪硫酸甲酯的
显色反应,分析其对 O 2 -的清除活性
乳酸菌CLFP 100、肠膜明串珠菌
CLFP 196和乳杆菌CLFP 202
[90]
罗伊乳杆菌SHA101和阴道
乳杆菌SHA110
[91]
邻苯三酚自氧化法 邻苯三酚可在溶液中自氧化
生成 O 2 -,抗氧化剂通过
干预邻苯三酚自氧化作用
来抑制 O 2 -产生
植物乳酸杆菌FC22 [88]
屎肠球菌BDU7 [92]
植物乳酸杆菌LP2 [93]
植物乳杆菌ZLP001 [56]
羟基
自由基
Hydroxyl radical
邻二氮菲/硫酸亚铁法 基于邻二氮菲、硫酸亚铁和
过氧化氢产生有色产物的
反应来分析OH-清除活性
植物乳酸杆菌FC225 [88]
植物乳酸杆菌LP6 [94]
植物乳酸杆菌Y44 [89]
屎肠球菌WEFA23 [95]
植物乳杆菌423 [70]
水杨酸法 基于水杨酸可作为OH-
捕集剂的原理,测定
水杨酸的OH-清除活性
植物乳杆菌AR113、戊糖小球菌
AR243和植物乳杆菌AR501
[96]
嗜酸乳杆菌LA5和益生菌亚种BB12 [97]

ABTS:2,2'-联氮-双-3-乙基苯并噻唑啉-6-磺酸 2,2'-azino-bis-3-ethylbenzothiazoline-6-sulfonic acid;Trolox:6-羟基-2,5,7,8-四甲基色烷-2-羧酸 6-hydroxy-2,5,7,8-tetramethylchroman-2-carboxylic acid;DPPH:1,1-二苯基-2-三硝基苯肼 1,1-diphenyl-2-picrylhydrazy;NBT:硝基蓝四氮唑 nitroblue tetrazolium; O 2 -:超氧阴离子 superoxide anion;OH-:羟基 hydroxyl。

表3 乳酸菌抗氧化活性体内评估方法

Table 3 In vivo evaluation method of antioxidant activity of lactic acid bacteria

评估模型
Evaluation
models
评估途径
Evaluation
pathway
结果
Results
菌株
Strains
参考文献
Reference
小鼠
Mouse
Nrf2基因表达显著升高,上调了小鼠
肝脏中抗氧化基因GSTO1、HO-1、GCL表达
植物乳杆菌AR113、戊糖小球菌
AR243和植物乳杆菌AR501
[96]
IPEC-J2
Nrf2/ARE
Nrf2在细胞核内富集,降低了活性氧生成和
细胞MDA含量,提高了线粒体膜电位
植物乳杆菌ZLP001 [98]
IPEC-1 增加CATGST的表达 丁酸梭菌MIYAIRI 588 [44]
大鼠 Rat 依赖于电弧的激活基因,即GSTTrx 植物乳酸杆菌FC255 [99]
小鼠
Mouse
SIRT1 增加抗氧化酶活性,显着降低阿尔茨海
默病损伤小鼠大脑中的氧化应激
复合益生菌制剂SLAB51(嗜热链
球菌、双歧杆菌、乳酸杆菌)
[100]

Caco-2

PKC
增强SOD和CAT活性 植物乳酸杆菌LP6 [94]
抑制MDA形成,提高SOD活性 植物乳酸杆菌C88 [62]
RAW 264.7 NF-κB 减少诱导脂多糖细胞内活性氧积累 干酪乳杆菌LBP32 [101]
小鼠巨噬细胞
Mouse
macrophages
诱导M2巨噬细胞的表达 植物乳酸杆菌CLP-0611 [102]

IPEC-J2:猪小肠上皮细胞 porcine small intestinal epithelial cells;IPEC-1:猪小肠上皮细胞 porcine small intestinal epithelial cells;RAW 264.7:小鼠单核巨噬细胞白血病细胞 leukemia cells of mouse mononuclear macrophage;Nrf2:核转录因子E2相关因子2 nuclear transcription factor-E2 related factor 2;ARE:抗氧化反应元件 antioxidant response element;SIRT1:沉默信息调节因子1 silent information regulator 1:PKC:蛋白激酶 C protein kinase C;NF-κB:核因子-κB nuclear factor kappa-B;GSTO1:谷胱甘肽S-转移酶Ω1 glutathione S-transferase omega 1;HO-1:血红素氧合酶-1 heme oxygenase-1;GCL:谷氨酰半胱氨酸连接酶 glutamate cysteine ligase;MDA:丙二醛 malondialdehyde;CAT:过氧化氢酶 catalase;GST:谷胱甘肽S-转移酶 glutathione S-transferase:Trx:硫氧还蛋白 thioredoxin:SOD:超氧化物歧化酶 superoxide dismutase。

5 小结与展望

多年以来,乳酸菌得到了广泛的研究和应用,涉及到食品、医药和畜禽生产等领域。越来越多的研究证实,乳酸菌菌株在畜禽生产中能够发挥抗氧化活性功能,可以通过多种途径对畜禽机体进行调控,缓解机体氧化应激及其并发症,提升抗氧化水平,改善畜禽健康状况,提高畜禽生产性能和产品品质。乳酸菌在生产中所表现出的抗氧化能力,是由菌株自身及其发酵代谢产物两者的抗氧化活性相互加持、共同作用的结果。目前乳酸菌的抗氧化能力主要通过自由基清除率、螯合金属离子能力和抗氧化酶活性等指标进行表征,有多种抗氧化活性检测方法,它们基于不同的原理和标准。
然而,在今天仍有许多关于乳酸菌抗氧化方面的问题存在。目前,关于乳酸菌发挥抗氧化活性机制的研究尚未完全阐明体外与体内抗氧化之间的“联动机制”,需要进行更深层次的研究;与此同时,关于乳酸菌抗氧化活性评估方法标准的建立不容忽视,只有建立起标准化的检测方法和评估标准才能更方便不同研究之间进行结果的比较;抗氧化活性乳酸菌菌种来源复杂,发酵效果缺少质量标准,发酵饲料添加量和使用标准难以统一。以上这些问题是制约抗氧化活性乳酸菌在畜禽生产中推广应用的重要因素,也是目前亟待解决的问题。
[1]
SARNIAK A, LIPIÑSKA J, TYTMAN K, et al. Endogenous mechanisms of reactive oxygen species (ROS) generation[J]. Postepy Higieny i Medycyny Doswiadczalnej (Online), 2016, 70:1150-1165.

[2]
WILLEMS P H G M, ROSSIGNOL R, DIETEREN C E J, et al. Redox homeostasis and mitochondrial dynamics[J]. Cell Metabolism, 2015, 22(2):207-218.

DOI PMID

[3]
WANG Y J, CHEN Y, ZHANG X Y, et al. New insights in intestinal oxidative stress damage and the health intervention effects of nutrients:a review[J]. Journal of Functional Foods, 2020, 75:104248.

DOI

[4]
MARTINDALE J L, HOLBROOK N J. Cellular response to oxidative stress:signaling for suicide and survival[J]. Journal of Cellular Physiology, 2002, 192(1):1-15.

DOI

[5]
WANG M X, LIU Y, LIANG Y, et al. Systematic understanding of pathophysiological mechanisms of oxidative stress-related conditions-diabetes mellitus,cardiovascular diseases,and ischemia-reperfusion injury[J]. Frontiers in Cardiovascular Medicine, 2021, 8:649785.

DOI

[6]
MAGALLÓN M, NAVARRO-GARCÍA M M, DASÍ F. Oxidative stress in COPD[J]. Journal of Clinical Medicine, 2019, 8(11):1953.

DOI

[7]
AZMANOVA M, PITTO-BARRY A. Oxidative stress in cancer therapy:friend or enemy?[J]. ChemBioChem, 2022, 23(10):e202100641.

[8]
WANG Y, WU Y P, WANG Y Y, et al. Antioxidant properties of probiotic bacteria[J]. Nutrients, 2017, 9(5):521.

DOI

[9]
MORIS D, SPARTALIS M, SPARTALIS E, et al. The role of reactive oxygen species in the pathophysiology of cardiovascular diseases and the clinical significance of myocardial redox[J]. Annals of Translational Medicine, 2017, 5(16):326.

DOI PMID

[10]
LI Q H, YANG S W, CHEN F, et al. Nutritional strategies to alleviate oxidative stress in sows[J]. Animal Nutrition, 2022, 9:60-73.

DOI PMID

[11]
李海鹏. 热应激对肉鸡生长性能、脂肪沉积及肝脏抗氧化性能的影响[D]. 硕士学位论文. 荆州: 长江大学, 2021:88-89.

LI H P. Effects of heat stress on growth performance,fat deposition and liver anti-oxidative capacity in broilers[D]. Master’s Thesis. Jingzhou: Yangtz University, 2021:88-89. (in Chinese)

[12]
SURAI P F, KOCHISH I I. Nutritional modulation of the antioxidant capacities in poultry:the case of selenium[J]. Poultry Science, 2019, 98(10):4231-4239.

DOI

[13]
CHANG Y Q, TANG H Y, ZHANG Z Y, et al. Zinc methionine improves the growth performance of meat ducks by enhancing the antioxidant capacity and intestinal barrier function[J]. Frontiers in Veterinary Science, 2022, 9:774160.

DOI

[14]
ZHOU H B, HUANG X Y, BI Z, et al. Vitamin a with L-ascorbic acid sodium salt improves the growth performance,immune function and antioxidant capacity of weaned pigs[J]. Animal, 2021, 15(2):100133.

DOI

[15]
李玉琴. 7个乳酸菌新种的多相鉴定和新疆肠球菌(Enterococcus xinjiangensis)的重新分类[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2021:67-68.

LI Y Q. Polyphasic identification of 7 novel species of lactic acid bacteria and reclassification of Enterococcus xinjiangensis[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2021:67-68. (in Chinese)

[16]
SLATTERY C, COTTER P D, O’TOOLE P W. Analysis of health benefits conferred by Lactobacillus species from kefir[J]. Nutrients, 2019, 11(6):1252.

DOI

[17]
LIU C R, ZHENG J Q, OU X, et al. Anti-cancer substances and safety of lactic acid bacteria in clinical treatment[J]. Frontiers in Microbiology, 2021, 12:722052.

DOI

[18]
SUZUKI H, YAMAZAKI T, OHSHIO K, et al. A specific strain of lactic acid bacteria,Lactobacillus paracasei,inhibits inflammasome activation in vitro and prevents inflammation-related disorders[J]. Journal of Immunology, 2020, 205(3):811-821.

DOI

[19]
GE Q F, YANG B, LIU R, et al. Antioxidant activity of Lactobacillus plantarum NJAU-01 in an animal model of aging[J]. BMC Microbiology, 2021, 21(1):182.

DOI

[20]
FENG T, WANG J. Oxidative stress tolerance and antioxidant capacity of lactic acid bacteria as probiotic:a systematic review[J]. Gut Microbes, 2020, 12(1):1801944.

DOI

[21]
BEN ABDESSLEM S, BOULARES M, ELBAZ M, et al. Chemical composition and biological activities of fennel (Foeniculum vulgare Mill.) essential oils and ethanolic extracts of conventional and organic seeds[J]. Journal of Food Processing and Preservation, 2021, 45(1):e15034.

[22]
CHINTONG S, PHATVEJ W, RERK-AM U, et al. In vitro antioxidant,antityrosinase,and cytotoxic activities of astaxanthin from shrimp waste[J]. Antioxidants, 2019, 8(5):128.

DOI

[23]
SHAH A K, DHALLA N S. Effectiveness of some vitamins in the prevention of cardiovascular disease:a narrative review[J]. Frontiers in Physiology, 2021, 12:729255.

DOI

[24]
KHAN A Z, KHAN I U, KHAN S, et al. Selenium-enriched probiotics improve hepatic protection by regulating pro-inflammatory cytokines and antioxidant capacity in broilers under heat stress conditions[J]. Journal of Advanced Veterinary and Animal Research, 2019, 6(3):355-361.

DOI PMID

[25]
BOJANOWSKA M, BRODOWSKA M S, JACKOWSKA I. The role of selenium in the risk and prevention of neoplastic diseases[J]. Journal of Elementology, 2018, 23(3):1073-1085.

[26]
BENABDERRAHIM M A, YAHIA Y, BETTAIEB I, et al. Antioxidant activity and phenolic profile of a collection of medicinal plants from Tunisian arid and Saharan regions[J]. Industrial Crops and Products, 2019, 138:111427.

DOI

[27]
NISHIDA Y, NAWAZ A, HECHT K, et al. Astaxanthin as a novel mitochondrial regulator:a new aspect of carotenoids,beyond antioxidants[J]. Nutrients, 2021, 14(1):107.

DOI

[28]
SEHIRLI A O, SAYINER S, CHUKWUNYERE U, et al. Role of melatonin in angiotensin and aging[J]. Molecules, 2021, 26(15):4666.

DOI

[29]
ELGENDEY F, AL WAKEEL R A, HEMEDA S A, et al. Selenium and/or vitamin E upregulate the antioxidant gene expression and parameters in broilers[J]. BMC Veterinary Research, 2022, 18(1):310.

DOI PMID

[30]
NEHA K, HAIDER M R, PATHAK A, et al. Medicinal prospects of antioxidants:a review[J]. European Journal of Medicinal Chemistry, 2019, 178:687-704.

DOI

[31]
FERREIRA C A, NI D L, ROSENKRANS Z T, et al. Scavenging of reactive oxygen and nitrogen species with nanomaterials[J]. Nano Research, 2018, 11(10):4955-4984.

DOI PMID

[32]
OMRAN B, BAEK K H. Nanoantioxidants:pioneer types,advantages,limitations,and future insights[J]. Molecules, 2021, 26(22):7031.

DOI

[33]
AMANY M B, ABDEL-RAHEAM H E F. Red and yellow Monascus pigments as potential natural antioxidants for fatty foods[J]. Plant Archives, 2020,20 (Suppl.2):444-449.

[34]
SUN X Q, SHI J J, KONG L Y, et al. Recent insights into the hepatoprotective effects of lactic acid bacteria in alcoholic liver disease[J]. Trends in Food Science & Technology, 2022, 125:91-99.

[35]
RANI A, SAINI K C, BAST F, et al. Microorganisms:a potential source of bioactive molecules for antioxidant applications[J]. Molecules, 2021, 26(4):1142.

DOI

[36]
PRETE R, ALAM M K, PERPETUINI G, et al. Lactic acid bacteria exopolysaccharides producers:a sustainable tool for functional foods[J]. Foods, 2021, 10(7):1653.

DOI

[37]
LI B L, DU P, SMITH E E, et al. In vitro and in vivo evaluation of an exopolysaccharide produced by Lactobacillus helveticus KLDS1.8701 for the alleviative effect on oxidative stress[J]. Food & Function, 2019, 10(3):1707-1717.

[38]
HOFFMANN A, KLENIEWSKA P, PAWLICZAK R. Antioxidative activity of probiotics[J]. Archives of Medical Science, 2021, 17(3):792-804.

DOI PMID

[39]
DU Y T, ZHANG H H, ZHANG X, et al. Thioredoxin 1 is inactivated due to oxidation induced by peroxiredoxin under oxidative stress and reactivated by the glutaredoxin system[J]. Journal of Biological Chemistry, 2013, 288(45):32241-32247.

DOI PMID

[40]
ARTS I S, VERTOMMEN D, BALDIN F, et al. Comprehensively characterizing the thioredoxin interactome in vivo highlights the central role played by this ubiquitous oxidoreductase in redox control[J]. Molecular & Cellular Proteomics, 2016, 15(6):2125-2140.

DOI

[41]
SUN Q A, KIRNARSKY L, SHERMAN S, et al. Selenoprotein oxidoreductase with specificity for thioredoxin and glutathione systems[J]. Proceedings of the National Academy of Sciences of the United States of America, 2001, 98(7):3673-3678.

PMID

[42]
HOLMGREN A. Antioxidant function of thioredoxin and glutaredoxin systems[J]. Antioxidants & Redox Signaling, 2000, 2(4):811-820.

[43]
WANG L L, LIU Q H, CHEN Y W, et al. Antioxidant potential of Pediococcus pentosaceus strains from the sow milk bacterial collection in weaned piglets[J]. Microbiome, 2022, 10(1):83.

DOI

[44]
WANG Y, WU Y P, WANG Y B, et al. Bacillus amyloliquefaciens SC06 alleviates the oxidative stress of IPEC-1 via modulating Nrf2/Keap1 signaling pathway and decreasing ROS production[J]. Applied Microbiology and Biotechnology, 2017, 101(7):3015-3026.

DOI

[45]
SAEEDI B J, LIU K H, OWENS J A, et al. Gut-resident Lactobacilli activate hepatic Nrf2 and protect against oxidative liver injury[J]. Cell Metabolism, 2020, 31(5):956-968.e5.

DOI

[46]
JONES R M, DESAI C, DARBY T M, et al. Lactobacilli modulate epithelial cytoprotection through the Nrf2 pathway[J]. Cell Reports, 2015, 12(8):1217-1225.

DOI

[47]
SINGH C K, CHHABRA G, NDIAYE M A, et al. The role of sirtuins in antioxidant and redox signaling[J]. Antioxidants & Redox Signaling, 2018, 28(8):643-661.

[48]
CHEN Y, LI Q, XIA C C, et al. Effect of selenium supplements on the antioxidant activity and nitrite degradation of lactic acid bacteria[J]. World Journal of Microbiology and Biotechnology, 2019, 35(4):61.

DOI PMID

[49]
SIRIN S, ASLIM B. Characterization of lactic acid bacteria derived exopolysaccharides for use as a defined neuroprotective agent against amyloid beta1-42-induced apoptosis in SH-SY5Y cells[J]. Scientific Reports, 2020, 10(1):8124.

DOI

[50]
GAWLIK-DZIKI U, BARANIAK B, SIKORA M, et al. Potentially bioaccessible phenolic and antioxidant potential of fresh and stored lentil sprouts-effect of Lactobacillus plantarum 299v enrichment[J]. Molecules, 2021, 26(8):2109.

DOI

[51]
DÜZ M, DOĞAN Y N, DOĞAN Ī. Antioxidant activitiy of Lactobacillus plantarum,Lactobacillus sake and Lactobacillus curvatus strains isolated from fermented Turkish Sucuk[J]. Anais da Academia Brasileira de Ciencias, 2020, 92(4):e20200105.

DOI

[52]
HOUGAARD A B, PINDSTRUP H, ARNEBORG N, et al. Free radical formation by Lactobacillus acidophilus NCFM is enhanced by antioxidants and decreased by catalase[J]. Food Research International, 2016, 79:81-87.

DOI

[53]
GÓMEZ-GUZMÁN M, TORAL M, ROMERO M, et al. Antihypertensive effects of probiotics Lactobacillus strains in spontaneously hypertensive rats[J]. Molecular Nutrition & Food Research, 2015, 59(11):2326-2336.

[54]
PATEL B, KUMAR P, BANERJEE R, et al. Lactobacillus acidophilus attenuates Aeromonas hydrophila induced cytotoxicity in catla thymus macrophages by modulating oxidative stress and inflammation[J]. Molecular Immunology, 2016, 75:69-83.

DOI

[55]
MARTÍNEZ-REVELLES S, AVENDAÑO M S, GARCÍA-REDONDO A B, et al. Reciprocal relationship between reactive oxygen species and cyclooxygenase-2 and vascular dysfunction in hypertension[J]. Antioxidants & Redox Signaling, 2013, 18(1):51-65.

[56]
WANG J, JI H F, WANG S X, et al. Lactobacillus plantarum ZLP001:in vitro assessment of antioxidant capacity and effect on growth performance and antioxidant status in weaning piglets[J]. Asian-Australasian Journal of Animal Sciences, 2012, 25(8):1153-1158.

DOI

[57]
YANG X, LI L, DUAN Y L, et al. Antioxidant activity of Lactobacillus plantarum JM113 in vitro and its protective effect on broiler chickens challenged with deoxynivalenol[J]. Journal of Animal Science, 2017, 95(2):837-846.

[58]
YANG S J, KIM K T, KIM T Y, et al. Probiotic properties and antioxidant activities of Pediococcus pentosaceus SC28 and Levilactobacillus brevis KU15151 in fermented black gamju[J]. Foods, 2020, 9(9):1154.

DOI

[59]
黄海宁, 黄乾生. 细菌胞外囊泡的研究进展[J]. 微生物学报, 2022, 62(5):1613-1628.

HUANG H N, HUANG Q S. Research progress on extracellular vesicles of bacteria[J]. Acta Microbiologica Sinica, 2022, 62(5):1613-1628. (in Chinese)

[60]
MOLINA-TIJERAS J A, GÁLVEZ J, RODRÍGUEZ-CABEZAS M E. The immunomodulatory properties of extracellular vesicles derived from probiotics:a novel approach for the management of gastrointestinal diseases[J]. Nutrients, 2019, 11(5):1038.

DOI

[61]
SEO M K, PARK E J, KO S Y, et al. Therapeutic effects of kefir grain Lactobacillus-derived extracellular vesicles in mice with 2,4,6-trinitrobenzene sulfonic acid-induced inflammatory bowel disease[J]. Journal of Dairy Science, 2018, 101(10):8662-8671.

DOI

[62]
ZHANG L, LIU C H, LI D, et al. Antioxidant activity of an exopolysaccharide isolated from Lactobacillus plantarum C88[J]. International Journal of Biological Macromolecules, 2013, 54:270-275.

DOI

[63]
LIU C F, TSENG K C, CHIANG S S, et al. Immunomodulatory and antioxidant potential of Lactobacillus exopolysaccharides[J]. Journal of the Science of Food and Agriculture, 2011, 91(12):2284-2291.

[64]
LI S Y, ZHAO Y J, ZHANG L, et al. Antioxidant activity of Lactobacillus plantarum strains isolated from traditional Chinese fermented foods[J]. Food Chemistry, 2012, 135(3):1914-1919.

DOI

[65]
ZHANG Y, DU R T, WANG L F, et al. The antioxidative effects of probiotic Lactobacillus casei Zhang on the hyperlipidemic rats[J]. European Food Research and Technology, 2010, 231(1):151-158.

DOI

[66]
王静雯. 乳酸菌发酵对蓝莓酚类物质组成和抗氧化活性的影响[D]. 硕士学位论文. 沈阳: 沈阳农业大学, 2020:69-70.

WANG J W. Study on iactic acid bacteria fermentation on phenolic composition and antioxidant activity of blueberries[D]. Master’s Thesis. Shenyang: Shenyang Agricultural University, 2020:69-70. (in Chinese)

[67]
NISA K, ROSYIDA V T, NURHAYATI S, et al. Total phenolic contents and antioxidant activity of rice bran fermented with lactic acid bacteria[J]. IOP Conference Series:Earth and Environmental Science, 2019, 251(1):012020.

DOI

[68]
ZHANG Y X, KE W C, VYAS D, et al. Antioxidant status,chemical composition and fermentation profile of alfalfa silage ensiled at two dry matter contents with a novel Lactobacillus plantarum strain with high-antioxidant activity[J]. Animal Feed Science and Technology, 2021, 272:114751.

DOI

[69]
LE B, ANH P T N, KIM J E, et al. Rice bran fermentation by lactic acid bacteria to enhance antioxidant activities and increase the ferulic acid,ρ-coumaric acid,and γ-oryzanol content[J]. Journal of Applied Biological Chemistry, 2019, 62(3):257-264.

DOI

[70]
WANG M, LEI M, SAMINA N, et al. Impact of Lactobacillus plantarum 423 fermentation on the antioxidant activity and flavor properties of rice bran and wheat bran[J]. Food Chemistry, 2020, 330:127156.

DOI

[71]
CHANG H M, FOO H L, LOH T C, et al. Comparative studies of inhibitory and antioxidant activities,and organic acids compositions of postbiotics produced by probiotic Lactiplantibacillus plantarum strains isolated from Malaysian foods[J]. Frontiers in Veterinary Science, 2020, 7:602280.

DOI

[72]
DOWARAH R, VERMA A K, AGARWAL N, et al. Selection and characterization of probiotic lactic acid bacteria and its impact on growth,nutrient digestibility,health and antioxidant status in weaned piglets[J]. PLoS One, 2018, 13(3):e0192978.

DOI

[73]
TANG Q S, YI H B, HONG W B, et al. Comparative effects of L. plantarum CGMCC 1258 and L. reuteri LR1 on growth performance,antioxidant function,and intestinal immunity in weaned pigs[J]. Frontiers in Veterinary Science, 2021, 8:728849.

DOI

[74]
WANG W P, WANG Y, LIU Y, et al. Lactobacillus plantarum supplementation alleviates liver and intestinal injury in parenteral nutrition-fed piglets[J]. Journal of Parenteral and Enteral Nutrition, 2022, 46(8):1932-1943.

DOI

[75]
徐秀景, 谢长文, 刘敏, 等. 乳酸菌发酵饲料对猪生长性能、肉品质和血液抗氧化指标的影响[J]. 中国饲料, 2018(10):67-71.

XU X J, XIE C W, LIU M, et al. Effects of Lactobacillus fermented feed on growth performance,meat quality and blood antioxidant capacity of pigs[J]. China Feed, 2018(10):67-71. (in Chinese)

[76]
刘辉, 季海峰, 王四新, 等. 复合乳酸菌发酵饲料对生长猪生长性能、粪便菌群、血清免疫和抗氧化指标的影响[J]. 动物营养学报, 2022, 34(2):783-794.

DOI

LIU H, JI H F, WANG S X, et al. Effects of compound lactic acid bacteria fermented feed on growth performance,fecal microflora,serum immune and antioxidant indexes of growing pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):783-794. (in Chinese)

[77]
DEEPTHI B V, SOMASHEKARAIAH R, POORNACHANDRA RAO K, et al. Lactobacillus plantarum MYS6 ameliorates fumonisin B1-induced hepatorenal damage in broilers[J]. Frontiers in Microbiology, 2017, 8:2317.

DOI

[78]
张晓羊, 张文举, 王永强, 等. 嗜酸乳杆菌发酵棉粕对黄羽肉鸡免疫功能和抗氧化性能的影响[J]. 中国畜牧兽医, 2017, 44(8):2311-2318.

ZHANG X Y, ZHANG W J, WANG Y Q, et al. Effects of cottonseed meal fermented by Lactobacillus acidophilus on immune function and oxidation resistance of yellow-feathered broilers[J]. China Animal Husbandry & Veterinary Medicine, 2017, 44(8):2311-2318. (in Chinese)

[79]
HUMAM A M, LOH T C, FOO H L, et al. Dietary supplementation of postbiotics mitigates adverse impacts of heat stress on antioxidant enzyme activity,total antioxidant,lipid peroxidation,physiological stress indicators,lipid profile and meat quality in broilers[J]. Animals, 2020, 10(6):982.

DOI

[80]
HUMAM A M, LOH T C, FOO H L, et al. Supplementation of postbiotic RI11 improves antioxidant enzyme activity,upregulated gut barrier genes,and reduced cytokine,acute phase protein,and heat shock protein 70 gene expression levels in heat-stressed broilers[J]. Poultry Science, 2021, 100(3):100908.

DOI

[81]
BAN Y J, GUAN L L. Implication and challenges of direct-fed microbial supplementation to improve ruminant production and health[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):109.

DOI PMID

[82]
WANG T W, TENG K L, CAO Y H, et al. Effects of Lactobacillus hilgardii 60TS-2,with or without homofermentative Lactobacillus plantarum B90,on the aerobic stability,fermentation quality and microbial community dynamics in sugarcane top silage[J]. Bioresource Technology, 2020, 312:123600.

DOI

[83]
窦露, 刘畅, 巴吉木色, 等. 日粮添加乳酸菌对苏尼特羊生长、肉品质、风味物质和抗氧化能力的影响[J]. 食品科学, 2021, 42(1):25-32.

DOU L, LIU C, BA J M S, et al. Effects of dietary lactic acid bacteria on growth,meat quality,flavor compounds and antioxidant capacity of Sunit sheep[J]. Food Science, 2021, 42(1):25-32. (in Chinese)

DOI

[84]
IZUDDIN W I, HUMAM A M, LOH T C, et al. Dietary postbiotic Lactobacillus plantarum improves serum and ruminal antioxidant activity and upregulates hepatic antioxidant enzymes and ruminal barrier function in post-weaning lambs[J]. Antioxidants, 2020, 9(3):250.

DOI

[85]
赵英博, 张君涛, 贺来增, 等. 胎牛子宫类器官及内膜上皮细胞的分离培养[J]. 畜牧与兽医, 2021, 53(11):54-60.

ZHAO Y B, ZHANG J T, HE L Z, et al. Isolation and culture of organs and endometrial epithelial cells of fetal bovine uterine[J]. Animal Husbandry & Veterinary Medicine, 2021, 53(11):54-60. (in Chinese)

[86]
李娟娟, 张君涛, 赵英博, 等. 类器官的研究进展及应用前景[J]. 中国畜牧兽医, 2021, 48(6):1985-1994.

LI J J, ZHANG J T, ZHAO Y B, et al. Research progress and application prospect of organoids[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(6):1985-1994. (in Chinese)

[87]
AMARETTI A, DI NUNZIO M, POMPEI A, et al. Antioxidant properties of potentially probiotic bacteria:in vitro and in vivo activities[J]. Applied Microbiology and Biotechnology, 2013, 97(2):809-817.

DOI

[88]
GAO D W, GAO Z R, ZHU G H. Antioxidant effects of Lactobacillus plantarum via activation of transcription factor Nrf2[J]. Food & Function, 2013, 4(6):982-989.

[89]
MU G Q, GAO Y, TUO Y F, et al. Assessing and comparing antioxidant activities of lactobacilli strains by using different chemical and cellular antioxidant methods[J]. Journal of Dairy Science, 2018, 101(12):10792-10806.

DOI PMID

[90]
BALCÁZAR J L, DE BLAS I, RUIZ-ZARZUELA I, et al. Enhancement of the immune response and protection induced by probiotic lactic acid bacteria against furunculosis in rainbow trout (Oncorhynchus mykiss)[J]. FEMS Immunology and Medical Microbiology, 2007, 51(1):185-193.

DOI PMID

[91]
RAJOKA M S R, MEHWISH H M, HAYAT H F, et al. Characterization,the antioxidant and antimicrobial activity of exopolysaccharide isolated from poultry origin lactobacilli[J]. Probiotics and Antimicrobial Proteins, 2019, 11(4):1132-1142.

DOI

[92]
ABDHUL K, GANESH M, SHANMUGHAPRIYA S, et al. Antioxidant activity of exopolysaccharide from probiotic strain Enterococcus faecium (BDU7) from Ngari[J]. International Journal of Biological Macromolecules, 2014, 70:450-454.

DOI

[93]
CHEN Y, LI Q, XIA C C, et al. Effect of selenium supplements on the antioxidant activity and nitrite degradation of lactic acid bacteria[J]. World Journal of Microbiology & Biotechnology, 2019, 35(4):61.

DOI

[94]
LI J Y, JIN M M, MENG J, et al. Exopolysaccharide from Lactobacillus planterum LP6:antioxidation and the effect on oxidative stress[J]. Carbohydrate Polymers, 2013, 98(1):1147-1152.

DOI

[95]
JIA K Y, TAO X Y, LIU Z Q, et al. Characterization of novel exopolysaccharide of Enterococcus faecium WEFA23 from infant and demonstration of its in vitro biological properties[J]. International Journal of Biological Macromolecules, 2019, 128:710-717.

DOI

[96]
LIN X N, XIA Y J, WANG G Q, et al. Lactic acid bacteria with antioxidant activities alleviating oxidized oil induced hepatic injury in mice[J]. Frontiers in Microbiology, 2018, 9:2684.

DOI PMID

[97]
AMIRI S, REZAEI MOKARRAM R, SOWTI KHIABANI M, et al. Exopolysaccharides production by Lactobacillus acidophilus LA5 and Bifidobacterium animalis subsp. lactis BB12:optimization of fermentation variables and characterization of structure and bioactivities[J]. International Journal of Biological Macromolecules, 2019, 123:752-765.

DOI

[98]
WANG J, ZHANG W, WANG S X, et al. Lactobacillus plantarum exhibits antioxidant and cytoprotective activities in porcine intestinal epithelial cells exposed to hydrogen peroxide[J]. Oxidative Medicine and Cellular Longevity, 2021, 2021:8936907.

[99]
ENDO H, NIIOKA M, KOBAYASHI N, et al. Butyrate-producing probiotics reduce nonalcoholic fatty liver disease progression in rats:new insight into the probiotics for the gut-liver axis[J]. PLoS One, 2013, 8(5):e63388.

DOI

[100]
BONFILI L, CECARINI V, CUCCIOLONI M, et al. SLAB51 probiotic formulation activates SIRT1 pathway promoting antioxidant and neuroprotective effects in an AD mouse model[J]. Molecular Neurobiology, 2018, 55(10):7987-8000.

DOI PMID

[101]
DIAO Y, XIN Y Q, ZHOU Y, et al. Extracellular polysaccharide from Bacillus sp. strain LBP32 prevents LPS-induced inflammation in RAW 264.7 macrophages by inhibiting NF-κB and MAPKs activation and ROS production[J]. International Immunopharmacology, 2014, 18(1):12-19.

DOI

[102]
JANG S E, HAN M J, KIM S Y, et al. Lactobacillus plantarum CLP-0611 ameliorates colitis in mice by polarizing M1 to M2-like macrophages[J]. International Immunopharmacology, 2014, 21(1):186-192.

DOI

Outlines

/