REVIEW

Biological Function of Carnosic Acid and Its Application in Livestock and Poultry Production

  • WANG Qin , 1, 2 ,
  • JIANG Shouqun 2 ,
  • WANG Yibing , 2, *
Expand
  • 1 College of Animal Science and Technology, Huazhong Agricultural University, Wuhan 430072, China
  • 2 Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Livestock and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
*associate professor, E-mail:

Received date: 2022-12-05

  Online published: 2023-06-08

Abstract

In the context of the comprehensive implementation of the feed ban order, livestock and poultry production in China is facing severe challenges, such as the damage of intestinal health, degradation in growth performance, and quality reduction in meat, eggs, or other animal products. Therefore, antibiotic-free products such as natural, safe and efficient plant extracts have become a research hotspot. Carnosic acid (CA) is a natural phenolic terpenoid compound, which exists in sage, rosemary and other plants. In this paper, through the analysis of domestic and foreign literature, the source, extraction method and physical and chemical properties of CA were introduced. The biological functions such as antioxidation, anti-inflammation, bacteriostasis and regulation of fat metabolism and the relevant potential mechanisms of CA were reviewed, and the application prospect of CA and its main sources, such as rosemary and sage, in livestock and poultry production was discussed on this basis. It aimed to provide theoretical basis for promoting the development of new bioactive additives and their application in livestock and poultry production.

Cite this article

WANG Qin , JIANG Shouqun , WANG Yibing . Biological Function of Carnosic Acid and Its Application in Livestock and Poultry Production[J]. Chinese Journal of Animal Nutrition, 2023 , 35(6) : 3467 -3477 . DOI: 10.12418/CJAN2023.322

在饲料禁抗令全面实施的大背景下,我国畜禽生产面临着严峻挑战,比如,肠道健康受损、生长性能降低、肉蛋等动物产品品质下降等。在这种情况下,研发天然、安全、高效的替抗生物活性添加剂成为畜牧业当务之急。酶类、微生态制剂(如乳酸菌)、酸化剂、抗菌肽、中草药制剂及植物提取物等具有促生长、抗氧化、抗病毒、抑菌杀菌和免疫调节等作用特点,逐渐被应用于畜禽养殖[1]。其中,植物提取物因其天然、无毒、生物学功能广泛等特性备受关注。
从迷迭香、鼠尾草等植物中提取出来的鼠尾草酸,是一种天然的抗氧化剂,其生物学功能逐渐受到关注。但是目前为止,关于鼠尾草酸在畜禽养殖中的应用研究还较少。全面认识鼠尾草酸的生物学功能对于鼠尾草酸资源的开发利用具有重要意义。本文就鼠尾草酸抗氧化、抗炎、抑菌和脂肪代谢调节等生物学功能及其在畜禽生产中的应用进行综述,旨在进一步了解鼠尾草酸的生物学功能,以期为鼠尾草酸在畜禽生产中的应用提供参考依据,从而推动新型生物活性添加剂的开发及畜禽生产的绿色高效发展。

1 鼠尾草酸的来源与提取

1.1 鼠尾草酸的来源

鼠尾草酸最早在1964年由Linde[2]在鼠尾草(Salvia officinalis L.)中发现,陆续也在其他鼠尾草种和唇形科中被发现,广泛存在于鼠尾草、迷迭香(Rosmarinus officinalis L.)等植物中[3]。但是,在不同植物中鼠尾草酸的含量有所不同,Wenkert等[4]研究发现,在迷迭香叶片中鼠尾草酸的含量较高,为(18.72±0.33) mg/g,而在鼠尾草中仅有(3.76±0.13) mg/g[5]。同一种植物在不同地区也会出现鼠尾草酸含量不同的现象,除了受到遗传背景的影响外,鼠尾草酸含量也可能受到生长条件的调节,比如,更温暖、干旱的英国气候比地中海国家更有利于鼠尾草酸的产生;此外,经UV-B辐射增强的迷迭香植物比未经处理的植物表现出更高的鼠尾草酸产量[6]。另外,水、盐度、强光和热应激也可能对植物中鼠尾草酸含量有负面影响[7]

1.2 鼠尾草酸的提取方法

目前,提取鼠尾草酸常用的方法有:溶剂提取、匀浆提取、超临界二氧化碳萃取、超声波辅助提取、无机碱液提取、微波辅助萃取和亚临界萃取等。传统溶剂提取法的提取效率相对较低,而且会有少量的溶剂残留,对鼠尾草酸等天然活性部分缺乏有效的选择[8]。匀浆提取与其他提取方法相比,所用时间短、不需加热,且提取率高,因此,该方法在提高产率、节省时间等方面具有明显的优势[9]。超临界二氧化碳萃取法能最大限度地保持提取物的天然特征,具有提取效率高、无溶剂残留、天然活性成分和热敏性成分不易被破坏、可实现选择性分离等诸多优点[10],在提取鼠尾草酸等酚类物质时,通常加入共溶剂进行萃取[11]。微波辅助提取法与传统浸提法相比浸提液受热均匀,可缩短提取时间,减少溶剂用量,提高酚类化合物的萃取量,此法被公认为是一种替代传统提取法从植物原料中提取目标成分的有效方法[12]。亚临界萃取亦称为过热水法,是指在压力不断增加的条件下,使水的沸点升高,从而使水的温度能达到100 ℃以上,此法对鼠尾草酸等活性成分有较高的选择性,并且随着温度的上升,提取物的抗氧化活性随之上升,鼠尾草酸的萃取含量也显著提高[13]。超声波辅助法主要是利用超声波产生的强烈振动、空化作用和搅拌作用,使植物细胞壁快速破坏以及溶剂快速渗透,从而使被提取的鼠尾草酸等抗氧化成分迅速溶解到溶剂中,具有节省加工时间和溶剂、提取率高、能耗低等优点[14]。不同的萃取方法对鼠尾草酸提取率的影响如表1所示。
表1 采用不同方法从迷迭香中提取鼠尾草酸的提取率

Table 1 Exreaction rate of carnosic acid extracted from rosemary by different methods

方法
Methods
鼠尾草酸提取率
Extraction rate of
carnosic acid/%
参考文献
Reference
传统溶剂提取 Traditional solvent extraction 2.47 魏静等[8]
匀浆提取 Homogenate extraction 92.67 杨磊等[9]
超临界二氧化碳萃取 Supercritical CO2 extraction 37.00 吕岱竹等[10]
超声波辅助提取 Ultrasonic-assisted extraction 21.06 程贤等[11]
微波辅助萃取 Microwave-assisted extraction 33.29 Liu等[12]
亚临界萃取 Subcritical extraction 48.60 Ibañez等[13]

2 鼠尾草酸的理化性质及代谢

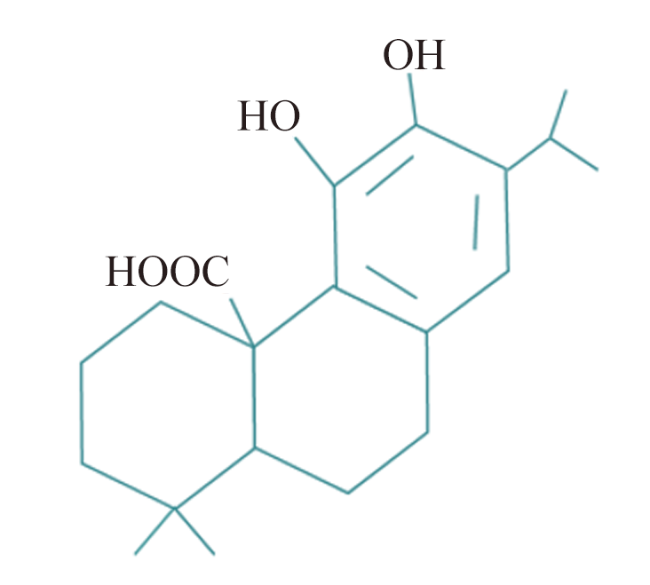
鼠尾草酸是酚萜类化合物,也称为类异戊二烯或萜类,是一种邻二氢醌型分子,与自由基反应后产生亲电剂[7]。鼠尾草酸分子式为C20H28O4,相对分子质量为332.433 9,分子结构如图1所示。鼠尾草酸外观是淡黄色粉末晶体,不溶于水,易溶于脂类,具有安全无毒、结构稳定和耐高温等特性[14]
图1 鼠尾草酸的分子结构

Fig.1 Molecular structure of carnosic acid

动物对鼠尾草酸的吸收、代谢及组织分布对其活性的发挥至关重要。闫海霞[15]研究发现,雄性Sprague-Dawley大鼠对鼠尾草酸生物利用度高于60%,其血药浓度-时间曲线表现出一定程度的相似性,存在轻微的肝肠循环;鼠尾草酸在血流丰富的组织中无分布或极少分布,在血浆中的清除很慢,而且在肠道的吸收较慢,主要在盲肠和结肠被吸收;在大鼠尿液和胆汁中的鼠尾草酸含量远小于粪便中排泄的量,表明粪便为鼠尾草酸主要排泄途径;在静脉注射给药后,鼠尾草酸在大鼠体内的分布和消除速度较快且半衰期很短,说明其排泄代谢速度很快[15]。Chen等[16]测定了灌胃小鼠后鼠尾草酸的组织分布,发现其在胃、肠和肝脏有分布,而在脑、脾脏、肺脏、睾丸和肌肉中均检测不到鼠尾草酸,表明其以代谢产物的形式存在。综上所述,对鼠尾草酸的组织分布和代谢途径的研究发现,鼠尾草酸的生物利用度高,组织分布低,代谢快,但其药理作用的物质基础有待于进一步研究。

3 鼠尾草酸的生物学功能

3.1 抗氧化作用

鼠尾草酸具有酚羟基,因此表现出较强的抗氧化能力。夏田娟等[17]通过评价鼠尾草酸对二苯代苦味酰肼基自由基(DPPH)和2,2-联氮基-二(3-乙基-苯并二氢噻唑-6-磺酸)二铵盐(ABTS)自由基清除能力及铁还原力,发现其具有比合成抗氧化剂维生素E(VE)更高的抗氧化活性。杨磊等[18]有关鼠尾草酸和VE对自由基(DPPH、ABTS)的清除率研究中得到相同结论。所以,鼠尾草酸可以很好地替代化学合成的抗氧化剂。
鼠尾草酸促进抗氧化相关基因的活化,以发挥抗氧化作用。核因子E2相关因子(Nrf2)与DNA内的抗氧化反应元件(ARE)结合,激活抗氧化基因。1.0 mg/kg鼠尾草酸通过激活Nrf2-ARE信号通路降低小鼠皮质线粒体中4-羟基炔醛(4-HNE)、3-硝基酪氨酸(3-NT)等脂质过氧化和蛋白质硝化标记物水平,从而保护线粒体功能,减少创伤性脑损伤小鼠的氧化损伤[19]
鼠尾草酸能通过上调机体抗氧化酶的表达来提高机体抗氧化能力。有研究表明,鼠尾草酸预处理(1 μmol/L,12 h)SH-SY5Y人神经母细胞瘤细胞,可通过减少自由基阴离子超氧化物歧化酶(SOD)活性、增加γ-谷氨酰半胱氨酸连接酶(γ-GCL)的活性来促进还原型谷胱甘肽(GSH)的合成,还可通过烷基化Kelch样ECH相关蛋白1(Keap1)半胱氨酸残基来激活Nrf2,增加参与GSH代谢的酶活性,从而降低氧化应激标志物如细胞8-oxo-2'-脱氧鸟苷(8-oxo-dG)、线粒体丙二醛(MDA)、蛋白质羰基和3-NT的含量,使SH-SY5Y细胞免受甲基乙二醛、过氧化氢(H2O2)诱导的脂质过氧化、蛋白质硝化和蛋白质羰基化损伤,从而达到抗氧化效果[20-23]。Alkahtane等[24]研究发现,通过口服强饲法给小鼠30、60 mg/(kg BW·d)的鼠尾草酸,呈剂量依赖性改善非酶(GSH)和酶[谷胱甘肽过氧化物酶(GPX)、SOD和过氧化氢酶(CAT)]抗氧化防御系统,降低小鼠组织中MDA和一氧化氮的水平,从而对有机磷农药“毒死蜱”诱导的小鼠眼睛和脑组织氧化损伤具有保护作用。综上所述,鼠尾草酸主要通过调控Nrf2-ARE途径,促进GSH合成,降低MDA、3-NT等过氧化标志物水平来发挥抗氧化作用,从而保护细胞和组织免受氧化损伤。

3.2 抗炎作用

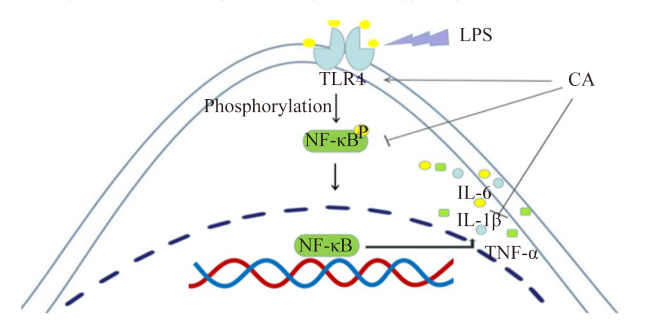
炎症是机体对有害刺激的自然反应,由于创伤、感染、缺血、中毒或自身免疫损伤而在组织中发生。鼠尾草酸通过抑制炎症信号通路、促炎相关酶类活性,下调促炎因子及相关蛋白表达等,发挥抗炎作用。Maione等[25]研究发现,100 μg鼠尾草酸对角叉菜胶溶液诱导的CD-1雄性小鼠爪急性炎症有缓解作用,其抑制了有关炎症性疼痛的2种关键酶的合成:微粒体前列腺素合成酶-1(mPGES-1)和5-脂氧合酶,以达到抗炎效果。向小鼠耳部施用2~20 μg/cm2鼠尾草酸,呈剂量依赖性降低了环氧合酶-2(COX-2)、白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α)的表达,使白细胞浸润和表皮溃疡明显减少,从而缓解肉豆蔻酸酯诱导的皮肤炎症[26]。Yang等[27]研究发现,小鼠灌胃50和100 mg/kg BW的鼠尾草酸降低半胱氨酸天冬氨酸特异性蛋白酶1(Caspase 1)活性来抑制NLRP3炎症小体的激活,显著降低了小鼠结肠中促炎细胞因子TNF-αIL-1β、白细胞介素-6(IL-6)、白细胞介素-17A(IL-17A)和干扰素-γ(IFN-γ)的mRNA和蛋白水平、血清髓过氧化物酶活性和F4/80+巨噬细胞的浸润,改善了免疫细胞的浸润、隐窝结构和杯状细胞损伤,从而抑制右旋糖酐硫酸钠(DSS)诱导的急性结肠炎。脂多糖(LPS)抑制中性粒细胞凋亡、高迁移率族Box1/Toll样受体4(TLR4)通路,促进核转录因子-κB(NF-κB)磷酸化以及IL-1βIL-6和TNF-α等促炎因子的表达。而Li等[28]研究表明,LPS+CA组腹腔注射10、20、40 mg/kg BW鼠尾草酸,可以抑制LPS的作用,来保护急性肺损伤小鼠。Kim等[29]研究发现,对于LPS诱导的小鼠肾炎,腹腔注射40 mg/kg BW鼠尾草酸可显著降低血清和肝脏中TNF-αIL-6和单核细胞趋化蛋白-1(MCP-1)等促炎因子mRNA表达水平,以缓解炎症过程中的细胞因子过度产生和免疫细胞大量浸润,从而改善组织学异常和肾功能障碍。Xie等[30]使小鼠肾小球系膜细胞系SV40MES13细胞至于高糖环境下,造成诱导型一氧化氮合酶(iNOS)、COX-2、MCP-1和TNF-α蛋白及相应mRNA的表达上调,在2.5~15 μmol/L鼠尾草酸给药后,细胞中炎症相关基因的表达呈剂量依赖性下降,表明鼠尾草酸发挥出有效的抗炎作用。Liu等[31]研究了鼠尾草酸对胶原诱导的类风湿关节炎大鼠模型中炎症反应的抑制作用,发现0.5~20 μmol/L鼠尾草酸抑制NF-κB受体活化因子配体(RANKL)的产生以及其诱导的NF-κB激活,并呈浓度依赖性显著降低TNF-αIL-1βIL-6、白细胞介素-8(IL-8)、白细胞介素-17(IL-17)和MMP-3等促炎因子的表达,以达到抗炎效果。另外,体外试验中添加20 μg/mL鼠尾草酸能减少LPS诱导的皮肤炎症(LPS激活的RAW264.7细胞),降低角质形成细胞HaCaT分泌的炎性细胞因子和趋化因子水平,包括IL-6、IL-8和MCP-1 ;抑制引起皮炎的革兰氏阳性痤疮丙酸杆菌、金黄色葡萄球菌和革兰氏阴性铜绿假单胞菌的生长,还显著降低iNOSCOX-2和TNF-α的基因水平,阻断NF-κB的核转位及其上游SYK/Src、磷脂酰肌醇-3-羟激酶(PI3K)信号通路,从而通过SYK/Src通路-T靶向抑制皮肤炎症反应[32]。综上所述,鼠尾草酸主要通过抑制某些炎症信号通路,减少相应炎症因子的表达以显示抗炎特性;图2展示了鼠尾草酸通过调控TLR4/NF-κB信号通路,减少IL-6等细胞因子表达的作用示意图。
图2 鼠尾草酸调控TLR4/NF-κB信号通路发挥抗炎作用的示意图

CA:鼠尾草酸 carnosic acid;IL-6:白细胞介素-6 interleukin-6;IL-1β:白细胞介素-1β interleukin-1β;LPS:脂多糖 lipopolysaccharide;NF-κB:核转录因子-κB nuclear factor-kappa B;Phosphorylation:磷酸化作用;TLR4:Toll样受体4 Toll like receptor 4;TNF-α:肿瘤坏死因子-α tumor necrosis factor-alpha。

Fig.2 Sketch map of anti-inflammatory effects of carnosic acid through LR4/NF-κB signal pathway

3.3 抑菌作用

研究表明,鼠尾草酸具有广谱抑菌活性,对多种细菌具有较强的抑制和杀灭作用。鼠尾草酸可以直接杀死引起皮肤炎症的微生物,19.5 μg/mL鼠尾草酸抑制假单胞菌的生长,而125~2 000 μg/mL鼠尾草酸能抑制铜绿假单胞菌、大肠杆菌、金黄色葡萄球菌、白色念珠菌和黑杆菌生长[32]。Vázquez等[33]和袁干军等[34]分别测定鼠尾草酸对耐甲氧西林金黄色葡萄球菌(MRSA)作用,发现其对耐药MRSA临床分离株显示出良好的抑菌活性,最低抑菌浓度分别为12~16 μg/mL和8~16 μg/mL,最低杀菌浓度分别为32 μg/mL和36~48 μg/mL。Pavić等[35]对铜绿假单胞菌、金黄色葡萄球菌、大肠杆菌以及枯草芽孢杆菌进行了鼠尾草提取物的抑菌性能测试,发现鼠尾草酸和鼠尾草酚含量分别为116、60.6 μg/mg的提取物抑菌活性最高,尤其是对枯草芽孢杆菌抑制效果最佳。Bernardes等[36]体外评估了迷迭香提取物(鼠尾草酸与鼠尾草酚)对引发龋齿的微生物的抑制情况,包括变形链球菌、唾液链球菌、Sobrinus链球菌、Mitis链球菌、血链球菌和粪肠球菌,发现鼠尾草酸与鼠尾草酚对以上各口腔病原体的最低抑菌浓度分别为:70 μg/mL鼠尾草酸和100 μg/mL鼠尾草酚、30 μg/mL鼠尾草酸和35 μg/mL鼠尾草酚、50 μg/mL鼠尾草酸和35 μg/mL鼠尾草酚、15 μg/mL鼠尾草酸和35 μg/mL鼠尾草酚、30 μg/mL鼠尾草酸和75 μg/mL鼠尾草酚以及40 μg/mL鼠尾草酸和50 μg/mL鼠尾草酚。综上所述,鼠尾草酸和鼠尾草酚协同抑菌的有效范围分别为12~70 μg/mL、35~100 μg/mL,并且与鼠尾草酚相比,鼠尾草酸更能在低剂量发挥抑菌作用。

3.4 脂肪代谢调节作用

因饲喂不当、氧化应激等因素,畜禽会出现腹脂过高、机体过肥等状况,鼠尾草酸作为天然物质,具有脂肪代谢调节作用,是改善此类问题的一种潜在营养方法。Gao等[37]研究发现,30 mg/(kg BW·d)鼠尾草酸可以显著降低雄性大鼠血清转氨酶活性及甘油三酯和总胆固醇含量,还通过激活蛋白去乙酰化酶1(SIRT1),降低脂蛋白碳水化合物反应元件结合蛋白(ChREBP)和生长因子连接蛋白(p66shc)的表达,来降低脂质的合成和积累,减少脂肪肝的发生频率[38]。在脂肪肝模型中,30、60 mg/(kg BW·d)鼠尾草酸对高脂饲料喂养大鼠的血清谷丙转氨酶、谷草转氨酶活性及甘油三酯与总胆固醇、低密度脂蛋白胆固醇含量升高和高密度脂蛋白胆固醇含量降低有剂量依赖性抑制作用,可有效减轻高脂饲料所致的脂质堆积和肝脏损伤[39]。Hasei等[40]用10 μmol/L鼠尾草酸处理HepG2肝癌细胞,发现其显著抑制乙酰辅酶A羧化酶1(ACC1)、脂肪酸合成酶(FAS)、固醇调节元件结合蛋白-1C(SREBP-1C)等脂肪生成基因的表达,同时上调了脂肪酸氧化相关基因如过氧化物酶体增殖物激活受体-γ共激活因子-1α(PGC-1α)、肉毒碱棕榈酰转移酶1α(CPT1α)的表达。综上所述,鼠尾草酸可能通过抑制脂肪生成和增强脂肪酸氧化来防止脂肪的过量积累。

3.5 其他生物学功能

除以上生物学功能外,鼠尾草酸还有许多其他生物学功能,如抗纤维化、抗衰老、神经保护和抗肿瘤等作用。研究表明,30、60 mg/(kg BW·d)鼠尾草酸通过转录后调节因子miR-29b-3p介导抑制TLR4信号通路,上调大鼠肝脏组织中与肝脏纤维化相关的高迁移率族蛋白-1(HMGB-1)和TLR4的表达,以减轻胆管结扎诱导的大鼠肝脏纤维化[41]。此外,60、120和180 μmol/L鼠尾草酸呈剂量依赖性上调对抗应激诱导的衰老有关基因(skn-1、sek-1和sod-5)以及增强抗逆性,稳定错误折叠蛋白质有关基因(hsf-1、hsp-16.1和hsp-16.2)的表达,实现对秀丽隐杆线虫寿命的延长[42]。Lin等[43]研究表明,1 μmol/L鼠尾草酸对6-羟基多巴胺诱导的SH-SY5Y细胞凋亡发挥神经保护作用,其主要通过恢复Parkin(与帕金森病等神经退行性疾病的发病机制有关)和自噬相关标记物的蛋白水平,促进Parkin和Beclin1的相互作用诱导自噬,保护6-羟基多巴胺诱导的细胞凋亡,这一作用可用于帕金森病的预防。鼠尾草酸还可以抑制癌细胞的增殖、迁移以及增强细胞凋亡,其抗肿瘤作用已在多种肿瘤模型中得到证实。Liu等[44]研究表明,10~40 μmol/L鼠尾草酸通过抑制丝裂原活化蛋白激酶(MAPK)信号通路来抑制乳腺癌、口腔癌和黑色素瘤细胞的增殖和迁移。Zhang等[45]表示,50、100 μmol/L鼠尾草酸(呈剂量依赖性)通过调控氧化应激线粒体凋亡通路,显著降低肝癌细胞(HCC)和肿瘤组织中HepG2和SMMC-7721癌细胞活力,抑制癌细胞增殖和迁移;增加半胱氨酸蛋白酶(Caspase-3、Caspase-8和Caspase-9)活性,增强细胞凋亡。Liu等[46]研究发现,5 mg/mL鼠尾草酸-脂质体-转铁蛋白复合物促进了线粒体介导的肝癌细胞内源性凋亡,抑制HepG2和SMMC-7721异种移植小鼠肝脏、脾脏和肾脏中肿瘤生长。

4 鼠尾草酸以及主要来源物及其提取物在畜禽生产中的应用

随着畜禽饲料添加剂中抗生素的禁用、畜禽产业的迅速发展以及人们对动物产品需求的提高,各类植物提取物因具有较好的抗氧化、抗炎、调节脂质代谢等生物学功能被作为一种新型高效饲料添加剂应用于畜禽生产中,可以提高动物的生产性能、免疫能力和产品品质,展现出良好的应用前景。目前为止,探究鼠尾草酸直接作用于畜禽生产中的研究较少,但鼠尾草酸主要来源迷迭香、鼠尾草及相关提取物对畜禽的生长、繁殖、免疫和产品品质等方面的作用,已有较广泛的研究。

4.1 鼠尾草酸在畜禽生产中的应用

鼠尾草酸的抗氧化功能可应用促进猪胚胎发育。Peng等[47]用10 μmol/L鼠尾草酸添加到体外培养的孤雌基因激活猪胚胎中,发现其可提高GSH含量和线粒体膜电位,降低活性氧(ROS)水平,上调多能相关基因(NanogSox2)、孵化相关基因(Cox2、Gata4、Itga5)的表达,下调凋亡相关基因(Caspase3、Birc5)的表达,并抑制ROS的积累,通过调节氧化应激促进早期猪胚胎发育,从而提高早期胚胎的囊胚率和孵化率。

4.2 迷迭香及其提取物在畜禽生产中的应用

Rostami等[48]研究表明,饲粮含0.5%、1%迷迭香粉(主要成分为鼠尾草酸)可以显著提高24日龄罗斯(Ross)308肉鸡血浆球蛋白含量,调节免疫功能。Borghei-Rad等[49]研究发现,在70周龄种公鸡饲粮中添加0.5%迷迭香叶粉,可以减少氧化应激对精子的影响,显著提高精液浓度、总精子产量、精子前驱活力、精子活力和精子穿透孔数量,并在不影响其孵化率的情况下获得较高的繁殖率。在京粉1号蛋鸡饲粮中分别添加0.3%、0.6%和0.9%的迷迭香草粉,结果显示,0.3%迷迭香粉更能使蛋鸡产蛋率、平均日总蛋重、蛋黄颜色以及血清白蛋白含量显著提高[50]。王晓慧等[51]研究表明,0.6%迷迭香草粉可降低京粉蛋鸡心脏、肺、肾脏等组织中热应激蛋白70(HSP70)、溶菌酶(LYZ)基因的表达量,从而缓解热应激对蛋鸡生产性能造成的影响,延长鸡蛋的保存时间。综上所述,迷迭香粉可以通过调节免疫、提高繁殖性能、改善蛋品质以及提高生产性能等在畜禽生产中发挥重要作用。
脂溶性迷迭香提取物的主要成分是鼠尾草酸和鼠尾草酚,其中鼠尾草酸含量占总含量的15%[52]。刘亚楠等[52]研究发现,在1日龄京海黄鸡饲粮中添加100、150、200 mg/kg脂溶性、水溶性或混合迷迭香提取物,均能显著改善京海黄鸡生长性能,提高京海黄鸡胸腺指数,同时,200 mg/kg脂溶性和混合迷迭香提取物还提高试鸡血清的抗氧化能力。鼠尾草酸具有强抗氧化和抗炎功能,因此可有效缓解各种因素造成的畜禽应激。Tang等[53]研究表明,3%迷迭香提取物(主要成分为鼠尾草酸和鼠尾草酚)作用于热应激肉鸡心肌细胞,通过降低乳酸脱氢酶(LDH)、肌酸激酶(CK)活性,诱导晶体蛋白αB(CRYAB)和HSP70表达,减轻热应激损伤。此外,1 g/kg迷迭香提取物(主要成分为鼠尾草酸)还可以显著提高尼禄西西里猪肉中多不饱和脂肪酸的含量,表明其具有改善猪肉品质的应用潜力[54]
迷迭香精油对畜禽的生产性能、胴体性状和肉品质等具有促进作用。Elazab等[55]的研究表明,饲粮添加0.5%迷迭香精油可显著提高7~13周龄新西兰大白兔的体重与平均日增重,并增加肝脏重量,另外,还显著降低兔肉和血浆中胆固醇的含量和肌肉的脂肪含量,对生长兔的生产和肉品质发挥有益作用。Mathlouthi等[56]研究发现,在雄性爱拔益加肉鸡饲粮中添加100 mg/kg迷迭香精油,可提高饲料效率,改善肉鸡生产性能。Mahgoub等[57]在日本鹌鹑饲粮中分别添加1和2 mL/kg迷迭香冷榨油,结果发现,血清总蛋白、代谢激素含量以及抗氧化酶活性增加,血清胆固醇和低密度脂蛋白胆固醇、8-oxo-dG和蛋白质羰基含量降低,鹌鹑肝脏中的脂质过氧化减少;添加2 mL/kg迷迭香冷榨油还可减少回肠中总培养细菌、大肠杆菌和沙门氏菌的数量,表明迷迭香冷榨油可作为日本鹌鹑抗菌和促进生长的饲料添加剂。

4.3 鼠尾草及其提取物在畜禽生产中的应用

鼠尾草酸另一主要来源鼠尾草对畜禽生长性能、抗氧化状态和肉品质等具有积极作用。研究表明,饲粮中添加0.2%鼠尾草提取物可降低Ross 308雏鸡冷应激状态下的脂质过氧化程度、肺动脉高压指数,增加SOD、CAT和GPX活性,并改善肠黏膜形态(提高回肠绒毛长度、宽度和表面积)[58]。Vlaicu等[59]研究发现,在饲粮中添加1%鼠尾草可增加科宝(Cobb)肉鸡腿肌中锌、多酚、VE的含量及抗氧化能力,并提高腿肌总多不饱和脂肪酸比例、n-6与n-3脂肪酸比例、多不饱和脂肪酸与饱和脂肪酸比例,从而有效改善肉品质。Piesova等[60]在感染肠炎沙门氏菌的伊莎(ISA)褐鸡饲粮中添加8 g/kg鼠尾草提取物,结果表明,其可显著减少肝脏、脾脏和盲肠中沙门氏菌的数量,同时降低鸡肠道中黏液的产量,从而有效地缓解肠炎沙门氏菌感染损伤。Placha等[61]研究发现,饲粮中添加0.1 g/kg鼠尾草精油可提高ISA褐蛋鸡十二指肠黏膜、肝脏、肾脏组织GPX活性、全血吞噬(PA)活性、十二指肠跨上皮电阻(TEER)值,降低血浆和肝脏MDA含量;而0.25 g/kg鼠尾草精油可提高肝脏组织中GPX活性、血浆总抗氧化能力、血液PA活性和十二指肠TEER值,提高抗氧化能力,改善试鸡健康状况。
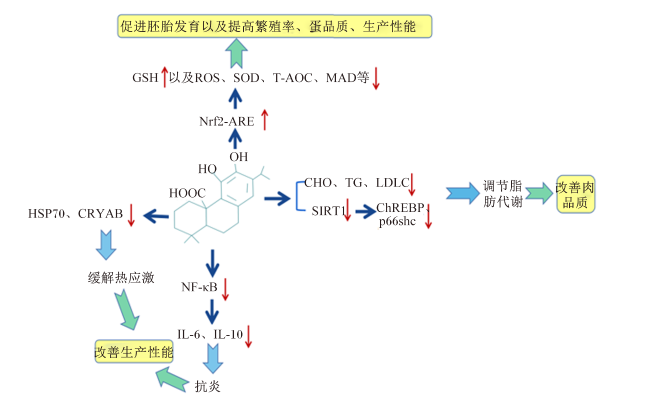
综上所述,鼠尾草酸或以鼠尾草酸为主要活性成分的迷迭香、鼠尾草及相关提取物,应用于肉鸡、蛋鸡、鹌鹑、猪和肉兔等畜禽生产,具有促进生长和产蛋、提高精子和胚胎质量、调节免疫功能、改善肉品质的作用。鼠尾草酸调控畜禽生产的可能机理如图3所示。
图3 鼠尾草酸调控畜禽生产的可能机理

CHO:胆固醇cholesterol;ChREBP:碳水化合物反应元件结合蛋白carbohydrate responsive element binding protein;CRYAB:晶体蛋白-αB crystallin-αB;GSH:还原型谷胱甘肽reduced glutathione;HSP70:热应激蛋白70 heat shock protein 70;IL-6:白细胞介素-6 interleukin-6;IL-10:白细胞介素-10 interleukin-10;LDLC:低密度脂蛋胆固醇 low density lipoprotein cholesterol;MDA:丙二醛malondialdehyde;NF-κB:核转录因子-κB nuclear factor-kappa B;Nrf2-ARE:核因子E2相关因子-DNA内的抗氧化反应元件 nuclear factor E2-related factor-antioxidant reaction elements in DNA;p66shc:生长因子连接蛋白;ROS:活性氧reactive oxygen species;SOD:超氧化物歧化酶superoxide dismutase;SIRT1:沉默信息调节因子2相关酶1 silent mating-type information regulation 2 homolog 1;T-AOC:总抗氧化能力total antioxidant capacity;TG:甘油三酯triglyceride。

Fig.3 Possible mechanism of carnosic acid in regulation of livestock and poultry production

5 小结与展望

综上所述,鼠尾草酸具有多种生物学功能,可以抑制细胞的氧化应激,对炎症也具有显著的抑制作用,还可以抑制细菌增长,调节脂质代谢、抑制脂肪过度沉积等。随着科技的进步,对鼠尾草酸的生物学功能及其潜在作用机理的探究还在不断深入。
到目前为止,鼠尾草酸在畜禽生产上的应用研究仍然较为缺乏,还未有关于其作为新型饲料添加剂的应用效果的试验报告,鼠尾草酸在体内发挥各种生理功能的分子机制尚待持续深入研究。另外,目前针对以鼠尾草酸为主要成分的迷迭香、鼠尾草等植物提取物在畜禽生产上的研究也相对有限,在猪以及反刍动物生产中的研究较匮乏;同时,因为提取物成分复杂,在不同畜禽饲粮中的最适添加量也有待明确。
今后的研究可围绕鼠尾草酸在畜禽生产中的应用重点展开,深入而全面地了解和掌握鼠尾草酸在动物体内发挥生物学功能的作用机理,为后续鼠尾草酸作为一种新型绿色饲料添加剂在畜禽生产中的应用提供理论依据,从而推动我国畜牧业的健康、绿色、高效发展。
[1]
张洪伟, 王亚男, 张磊, 等. 微生态制剂在肉牛无抗饲养过程中的应用及展望[J]. 粮食与饲料工业, 2022(2):55-59.

ZHANG H W, WANG Y N, ZHANG L, et al. Application and prospect of probiotics in beef cattle without resistance[J]. Cereal & Feed Industry, 2022(2):55-59. (in Chinese)

[2]
LINDE H. Ein neues diterpen aus Salvia officinalis L.und eine notiz zur konstitution von pikrosalvin[J]. Helvetica, 1964, 47(5):1234-1239.

[3]
李大伟, 毕良武, 赵振东. 鼠尾草酸提取和纯化方法研究进展[J]. 林产化学与工业, 2010, 30(5):122-126.

LI D, BI L W, ZHAO Z D. Research progress on extraction and purification of carsonic acid[J]. Chemistry and Industry of Forest Products, 2010, 30(5):122-126. (in Chinese)

[4]
WENKERT E, FUCHS A, MCCHESNEY J D. Chemical artifacts from the family Labiatae[J]. Organic Chemistry, 1965, 30(9):2931-2934.

DOI

[5]
ERCAN P, El S N. Bioaccessibility and inhibitory effects on digestive enzymes of carnosic acid in sage and rosemary[J]. International Journal of Biological Macromolecules, 2018, 115:933-939.

DOI PMID

[6]
TOUNEKIT T, MUNNÉ-BOSCH S. Enhanced phenolic diterpenes antioxidant levels through non-transgenic approaches[J]. Critical Reviews in Plant Sciences, 2012, 31(6):505-519.

DOI

[7]
BIRTiĆ S, DUSSORT P, PIERRE FX, et al. Carnosic acid[J]. Phytochemistry, 2015, 115:9-19.

DOI PMID

[8]
魏静, 王尚文, 于浩飞, 等. 迷迭香叶中鼠尾草酸的提取工艺研究[J]. 昆明医科大学学报, 2015, 36(1):58-61.

WEI J, WANG S W, YU H F, et al. Study on the extraction process for carnosic acid from Rosmarinus officinalis linn[J]. Journal of Kunming Medical University, 2015, 36(1):58-61. (in Chinese)

[9]
杨磊, 肖长文, 赵春建, 等. pH控制匀浆法从迷迭香中提取鼠尾草酸[J]. 黑龙江大学自然科学学报, 2008, 25(4):514-518.

YANG L, XIAO C W, ZHAO C J, et al. Extraction of murine oxalic acid from rosemary by pH controlled homogenization[J]. Journal of Natural Science of Heilongjiang University, 2008, 25(4):514-518. (in Chinese)

[10]
吕岱竹, 王明月, 袁宏球, 等. 高效液相色谱法测定迷迭香超临界提取物中的鼠尾草酸和鼠尾草酚[J]. 分析测试学报, 2006, 25(3):109-111.

LV D L, WANG M Y, YUAN H Q, et al. Determination of carnosic acid and carnosol in supercritical fluid extract of rosemary by high performance liquid chromatography[J]. Journal of Instrumental Analysis, 2006, 25(3):109-111. (in Chinese)

[11]
程贤, 毕良武, 赵振东, 等. 迷迭香酸的提取纯化及生物活性研究进展[J]. 林产化学与工业, 2015, 35(4):151-158.

CHENG X, BI L W, ZHAO Z D, et al. Research progress on extraction purification and biological activities of rosmarinic acid[J]. Chemistry and Industry of Forest Products, 2015, 35(4):151-158. (in Chinese)

[12]
LIU T, SUI X, ZHANG R, et al. Application of ionic liquids based microwave-assisted simultaneous extraction of carnosic acid,rosmarinic acid and essential oil from Rosmarinus officinalis[J]. Journal of Chromatography A, 2011, 1218(47):8480-8489.

DOI

[13]
IBAÑEZ E, KUBÁTOVÁ A, SEÑORÁNS F J, et al. Subcritical water extraction of antioxidant compounds from rosemary plants[J]. Journal of Agricultural and Food Chemistry, 2003, 51(2):375-382.

PMID

[14]
李大伟. 迷迭香叶活性成分超声辅助提取与分离的研究[D]. 硕士学位论文. 北京: 中国林业科学研究院, 2012.

LI D W. Study on ultrasonic assisted extraction and separation of active components from rosemary leaves[D]. Master’s Thesis. Beijing: Chinese Academy of Forestry, 2012. (in Chinese)

[15]
闫海霞. 鼠尾草酸在大鼠体内的药物动力学及代谢研究[D]. 博士学位论文. 沈阳: 沈阳药科大学, 2008.

YAN H X. Pharmacokinetics and metabolism of oxalic acid in rats[D]. Ph.D.Thesis. Shenyang: Shenyang Pharmaceutical University, 2008. (in Chinese)

[16]
CHEN X, HUANG M, LIU D, et al. Absorption and transport characteristics and mechanisms of carnosic acid[J]. Biology, 2021, 10(12):1278.

DOI

[17]
夏田娟, 毕良武, 赵振东, 等. 鼠尾草酸的抗氧化活性及抑菌活性研究[J]. 天然产物研究与开发, 2015, 27(1):35-40.

XIA T J, BI L W, ZHAO Z D, et al. Study on antioxidant and antibacterial activities of carnosic acid[J]. Natural Product Research and Development, 2015, 27(1):35-40. (in Chinese)

[18]
杨磊, 刘芳, 王化, 等. 鼠尾草酸的抗氧化活性及对鱼油的氧化稳定性[J]. 中国食品学报, 2010, 10(3):33-39.

YANG L, LIU F, WANG H, et al. Antioxidant activity and oxidative stability to fish oil of carnosic acid[J]. Journal of Chinese Institute of Food Science and Technology, 2010, 10(3):33-39. (in Chinese)

[19]
MILLER D M, SINGH I N, WANG J A, et al. Nrf2-ARE activator carnosic acid decreases mitochondrial dysfunction,oxidative damage and neuronal cytoskeletal degradation following traumatic brain injury in mice[J]. Experimental Neurology, 2015, 264:103-110.

DOI

[20]
DE OLIVEIRA M R, FERREIRA G C, SCHUCK P F, et al. Role for the PI3K/Akt/Nrf2 signaling pathway in the protective effects of carnosic acid against methylglyoxal-induced neurotoxicity in SH-SY5Y neuroblastoma cells[J]. Chemico-Biological Interactions, 2015, 242:396-406.

DOI PMID

[21]
DE SOUZA I C C, GOBBO R C B, DE ALMEIDA F J S, et al. Carnosic acid depends on glutathione to promote mitochondrial protection in methylglyoxal-exposed SH-SY5Y cells[J]. Metabolic Brain Disease, 2021, 36(3):471-481.

DOI PMID

[22]
DE OLIVEIRA M R, FERREIRA G C, SCHUCK P F. Protective effect of carnosic acid against paraquat-induced redox impairment and mitochondrial dysfunction in SH-SY5Y cells:role for PI3K/Akt/Nrf2 pathway[J]. Toxicology In Vtro, 2016, 32:41-54.

[23]
DE OLIVEIRA M R, DA COSTA FERREIRA G, PERES A, et al. Carnosic acid suppresses the H2O2-induced mitochondria-related bioenergetics disturbances and redox impairment in SH-SY5Y cells:role for Nrf2[J]. Molecular Neurobiology, 2018, 55(2):968-979.

DOI

[24]
AlKAHTANE A A, GHANEM E, BUNGAU S G, et al. Carnosic acid alleviates chlorpyrifos-induced oxidative stress and inflammation in mice cerebral and ocular tissues[J]. Environmental Science and Pollution Research, 2020, 27(11):11663-11670.

DOI

[25]
MAIONE F, CANTONE V, PACE S, et al. Anti-inflammatory and analgesic activity of carnosol and carnosic acid in vivo and in vitro and in silico analysis of their target interactions[J]. British Journal of Pharmacology, 2017, 174(11):1497-1508.

DOI

[26]
MENGONI E S, VICHERA G, RIGANO L A, et al. Suppression of COX-2,IL-1β and TNF-α expression and leukocyte infiltration in inflamed skin by bioactive compounds from Rosmarinus officinalis L[J]. Fitoterapia, 2011, 82(3):414-421.

DOI

[27]
YANG N, XIA Z, SHAO N, et al. Carnosic acid prevents dextran sulfate sodium-induced acute colitis associated with the regulation of the Keap1/Nrf2 pathway[J]. Scientific Reports, 2017, 7(1):11036.

DOI PMID

[28]
LI Q, LIU L, SUN H, et al. Carnosic acid protects against lipopolysaccharide-induced acute lung injury in mice[J]. Experimental and Therapeutic Medicine, 2019, 18(5):3707-3714.

DOI PMID

[29]
KIM J Y, HONG H L, KIM G M, et al. Protective effects of carnosic acid on lipopolysaccharide-induced acute kidney injury in mice[J]. Molecules, 2021, 26(24):7589.

DOI

[30]
XIE Z, ZHONG L, WU Y, et al. Carnosic acid improves diabetic nephropathy by activating Nrf2/ARE and inhibition of NF-κB pathway[J]. Phytomedicine, 2018, 47:161-173.

DOI PMID

[31]
LIU M, ZHOU X, ZHOU L, et al. Carnosic acid inhibits inflammation response and joint destruction on osteoclasts,fibroblast-like synoviocytes,and collagen-induced arthritis rats[J]. Journal of Cellular Physiology, 2018, 233(8):6291-6303.

DOI

[32]
OH J, YU T, CHOI SJ, et al. Syk/Src pathway-targeted inhibition of skin inflammatory responses by carnosic acid[J]. Mediators of Inflammation, 2012, 2012:781375.

[33]
VÁZQUEZ N M, FIORILLI G, CÁCERES GUIDO P A, et al. Carnosic acid acts synergistically with gentamicin in killing methicillin-resistant Staphylococcus aureus clinical isolates[J]. Phytomedicine, 2016, 23(12):1337-1343.

DOI

[34]
袁干军, 李沛波, 杨慧. 迷迭香中鼠尾草酸的抗MRSA活性研究[J]. 中国现代应用药学, 2012, 29(7):571-574.

YUAN G J, LI P B, YANG H. Study on anti MRSA activity of rattail oxalic acid in rosemary[J]. Chinese Journal of Modern Applied Pharmacy, 2012, 29(7):571-574. (in Chinese)

[35]
PAVIĆ V, JAKOVLJEVIĆ M, MOLNAR M, et al. Extraction of carnosic acid and carnosol from sage (Salvia officinalis L.) leaves by supercritical fluid extraction and their antioxidant and antibacterial Activity[J]. Plants, 2019, 8(1):16.

DOI

[36]
BERNARDES W A, LUCARINI R, TOZATTI M G, et al. Antimicrobial activity of rosmarinus officinalis against oral pathogens:relevance of carnosic acid and carnosol[J]. Chemistry & Biodiversity, 2010, 7(7):1835-1840.

[37]
GAO L, SHAN W, ZENG W, et al. Carnosic acid alleviates chronic alcoholic liver injury by regulating the SIRT1/ChREBP and SIRT1/p66shc pathways in rats[J]. Molecular Nutrition & Food Research, 2016, 60(9):1902-1911.

[38]
WANG R H, LI C, DENG C X. Liver steatosis and increased ChREBP expression in mice carrying a liver specific SIRT1 null mutation under a normal feeding condition[J]. International Journal of Biological Sciences, 2010, 6(7):682-690.

[39]
SHAN W, GAO L, ZENG W, et al. Activation of the SIRT1/p66shc antiapoptosis pathway via carnosic acid-induced inhibition of miR-34a protects rats against nonalcoholic fatty liver disease[J]. Cell Death & Disease, 2015, 6(7):e1833.

[40]
HASEI S, YAMAMOTOYA T, NAKATSU Y, et al. Carnosic acid and carnosol activate AMPK,suppress expressions of gluconeogenic and lipogenic genes,and inhibit proliferation of HepG2 cells[J]. International Journal of Molecular Sciences, 2021, 22(8):4040.

DOI

[41]
ZHANG S, WANG Z, ZHU J, et al. Carnosic acid alleviates BDL-induced liver fibrosis through miR-29b-3p-mediated inhibition of the high-mobility group Box 1/Toll-like receptor 4 signaling pathway in rats[J]. Frontiers in Pharmacology, 2018, 8:976.

DOI

[42]
LIN C, ZHANG X, XIAO J, et al. Effects on longevity extension and mechanism of action of carnosic acid in caenorhabditis elegans[J]. Food & Function, 2019, 10(3):1398-1410.

[43]
LIN C Y, TSAI C W. Carnosic acid attenuates 6-hydroxydopamine-induced neurotoxicity in SH-SY5Y cells by inducing autophagy through an enhanced interaction of parkin and Beclin1[J]. Molecular Neurobiology, 2017, 54(4):2813-2822.

DOI

[44]
LIU Y, ZHANG Y, HU M, et al. Carnosic acid alleviates brain injury through NF-κB regulated inflammation and caspase 3 associated apoptosis in high fat induced mouse models[J]. Molecular Medicine Reports, 2019, 20(1):495-504.

[45]
ZHANG X, CHEN Y, CAI G, et al. Carnosic acid induces apoptosis of hepatocellular carcinoma cells via ROS-mediated mitochondrial pathway[J]. Chemico-Biological Interactions, 2017, 277:91-100.

DOI PMID

[46]
LIU X, DONG S, DONG M, et al. Transferrin-conjugated liposomes loaded with carnosic acid inhibit liver cancer growth by inducing mitochondria-mediated apoptosis[J]. International Journal of Pharmaceutics, 2021, 607:121034.

DOI

[47]
PENG Y X, CHEN C Z, LUO D, et al. Carnosic acid improves porcine early embryonic development by inhibiting the accumulation of reactive oxygen species[J]. Journal of Reproduction and Development, 2020, 66(6):555-562.

DOI

[48]
ROSTAMI H, SEIDAVI A, DADASHBEIKI M, et al. Supplementing dietary rosemary (Rosmarinus officinalis L.) powder and vitamin E in broiler chickens:evaluation of humoral immune response,lymphoid organs,and blood proteins[J]. Environmental Science and Pollution Research, 2018, 25(9):8836-8842.

DOI

[49]
BORGHEI-RAD S M, ZEINOALDINI S, ZHANDI M, et al. Feeding rosemary leaves powder ameliorates rooster age-related subfertility[J]. Theriogenology, 2017, 101:35-43.

DOI

[50]
杨建生, 林雨鑫, 安婷婷, 等. 迷迭香草粉对高温蛋鸡产蛋性能、蛋品质和血清指标的影响[J]. 中国饲料, 2016(19):9-11,25.

YANG J S, LIN Y X, AN T T, et al. Effects of dietary rosemary on serum antioxidant indexes of laying hens at high temperature[J]. China Feed, 2016(19):9-11,25. (in Chinese)

[51]
王晓慧, 辛世杰, 邹文斌, 等. 日粮中添加迷迭香及维生素E、维生素C和大豆油的组合对高温期蛋鸡不同组织HSP70、LYZ基因表达量的影响[J]. 中国兽医学报, 2019, 39(4):767-773.

WANG X H, XIN S J, ZOU W B, et al. Effects of combination adding rosemary, vitamin E, vitamin C and soybean oil to diet on the amount of expression of HSP70 and LYZ genes in different tissues of laying hens in high temperature period[J]. Chinese Journal of Veterinary Science, 2019, 39(4):767-773. (in Chinese)

[52]
刘亚楠, 李爱华, 谢恺舟, 等. 迷迭香提取物对京海黄鸡生长性能、免疫器官指数和血清抗氧化性的影响[J]. 中国兽医学报, 2016, 36(7):1218-1223,1272.

LIU Y N, LI A H, XIE K Z, et al. Effect of rosemary extract on Jinghai yellow chickens growth performance,immune organ index and antioxidant capacity of serum[J]. Chinese Journal of Veterinary Science, 2016, 36(7):1218-1223,1272. (in Chinese)

[53]
TANG S, YIN B, XU J, et al. Rosemary reduces heat stress by inducing CRYAB and HSP70 expression in broiler chickens[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:7014126.

[54]
LIOTTA L, CHIOFALO V, D’ALESSANDRO E, et al. Supplementation of rosemary extract in the diet of Nero Siciliano pigs:evaluation of the antioxidant properties on meat quality[J]. Animal. 2015, 9(6):1065-1072.

DOI

[55]
ELAZAB M A, KHALIFAH A M, ELOKIL A A, et al. Effect of dietary rosemary and ginger essential oils on the growth performance,feed utilization,meat nutritive value,blood biochemicals,and redox status of growing NZW rabbits[J]. Animals, 2022, 12(3):375.

DOI

[56]
MATHLOUTHI N, BOUZAIENNE T, OUESLATI I, et al. Use of rosemary,oregano,and a commercial blend of essential oils in broiler chickens:in vitro antimicrobial activities and effects on growth performance[J]. Journal of Animal Science, 2012, 90(3):813-823.

DOI

[57]
MAHGOUB S A M, EL-HACK M E A, SAADELDIN I M, et al. Impact of Rosmarinus officinalis cold-pressed oil on health,growth performance,intestinal bacterial populations,and immunocompetence of Japanese quail[J]. Poultry Science, 2019, 98(5):2139-2149.

DOI

[58]
BAHADORAN S, TEYMOURI Y, HASSANPOUR H, et al. Effect of sage (Salvia officinalis L.) extract in antioxidant status and intestinal morphology of pulmonary hypertensive chickens[J/OL]. Veterinary Medicine and Science.(2022-04-11).https://onlinelibrary.wiley.com/doi/10.1002/vms3.804. DOI:10.1002/vms3.804.

DOI

[59]
VLAICU P A, UNTEA A E, TURCU R P, et al. Nutritional composition and bioactive compounds of basil,thyme and sage plant additives and their functionality on broiler thigh meat quality[J]. Foods, 2022, 11(8):1105.

DOI

[60]
PIESOVA E, MAKOVA Z, LEVKUT M, et al. The effects of sage extract feed supplementation on biochemical parameters,weight of internal organs and Salmonella counts in chickens[J]. Research in Veterinary Science, 2012, 93(3):1307-1308.

DOI

[61]
PLACHA I, RYZNER M, COBANOVA K, et al. Effects of dietary supplementation with sage (Salvia officinalis L.) essential oil on antioxidant status and duodenal wall integrity of laying strain growers[J]. Polish Journal of Veterinary Sciences, 2015; 18(4):741-749.

DOI

Outlines

/