REVIEW

Research Progress on Biological Functions of Red Clover Isoflavones and Their Metabolism in Rumen

  • BU Ying ,
  • ZHENG Nan ,
  • WANG Jiaqi ,
  • ZHAO Shengguo , *
Expand
  • State Key Laboratory of Animal Nutrition, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
*associate professor, E-mail:

Received date: 2022-11-11

  Online published: 2023-06-08

Abstract

Red clover extract contains phytoestrogens, mainly isoflavones. Previous studies have shown that isoflavones are beneficial for immune and nervous system as well as skeletal development. At the same time, they also have an effect on rumen microflora in ruminants. In this review, the composition and biological functions of red clover isoflavones, as well as their metabolism in rumen and the regulation of rumen function by isoflavones were summarized, in order to provide a reference for the development of new feed additives.

Cite this article

BU Ying , ZHENG Nan , WANG Jiaqi , ZHAO Shengguo . Research Progress on Biological Functions of Red Clover Isoflavones and Their Metabolism in Rumen[J]. Chinese Journal of Animal Nutrition, 2023 , 35(6) : 3508 -3516 . DOI: 10.12418/CJAN2023.326

近年来,随着我国豆粕减量替代方案的推进,越来越多的蛋白质类饲料受到大众的关注。蛋白质类饲料来源众多[1],其中豆科植物蛋白质含量高,适口性好,且可与根瘤菌共生固氮为自身提供氮源[2]。红三叶草作为一种被广泛用于添加到动物饲粮中的豆科植物,含有大量的植物雌激素,主要以异黄酮为主。植物雌激素是一种天然的多酚类非甾体植物化合物,具有类似于雌激素的生物活性[3],结构与哺乳动物的雌激素17β-雌二醇相似[4],可以发挥雌激素作用[5],与动物的健康密切相关。异黄酮作为一种次级代谢物,有利于骨骼发育以及预防骨质疏松[6],可影响神经内分泌功能,增强免疫系统[7],还可提高动物的抗应激反应能力[8]
但目前对异黄酮的研究大部分集中在其生物学功能方面,且研究对象多为大豆异黄酮,对红三叶草异黄酮及其对瘤胃微生物区系影响的报道较少,且目前缺乏瘤胃内异黄酮的完整代谢途径。因此,本综述将结合现有研究,对红三叶草异黄酮的生物学功能,以及其在瘤胃内的代谢和功能调节进行阐述,以期为异黄酮在反刍动物瘤胃代谢调控方面的应用提供参考。

1 红三叶草异黄酮的主要成分与生物学功能

1.1 主要成分
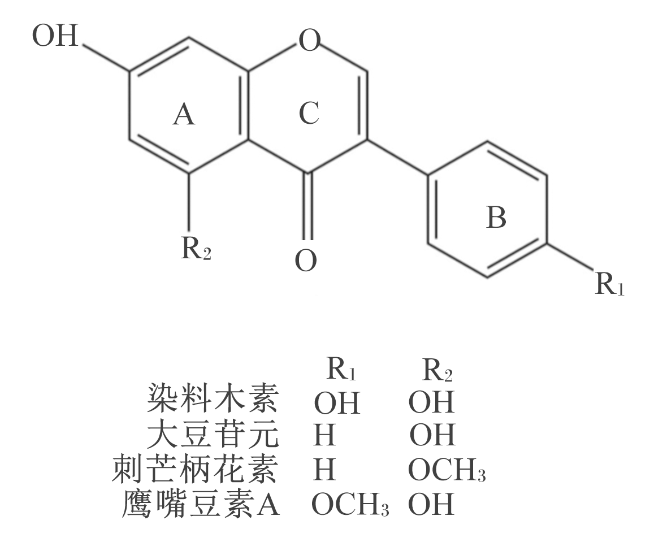
豆类及豆科植物是异黄酮的主要来源,如大豆、红三叶草和白三叶草等,异黄酮的化学结构如图1所示。大豆中异黄酮含量为1.2~4.2 mg/g(干重),红三叶草中异黄酮含量为10~25 mg/g(干重)[9]。异黄酮主要成分有鹰嘴豆素A、刺芒柄花素、大豆苷元、染料木素等,在红三叶草异黄酮中,刺芒柄花素含量最高,为11.0 mg/g(干重)[10],鹰嘴豆素A的含量次之,其在红三叶草叶和芽的含量分别为10.30和1.62 mg/g(干重)[11]。豆科植物中异黄酮的含量取决于植物部位、生长阶段、品种、生长条件和保存方法等[12]
图1 异黄酮的化学结构

Fig.1 Chemical structure of isoflavones[13]

1.2 生物学功能

红三叶草提取物主要成分为异黄酮,其作为一种植物雌激素,具有多种生物学功能,如抗炎、抗氧化、预防骨质疏松等。

1.2.1 抗炎

炎症是一种由病原体、受损细胞或刺激物刺激所产生的生物应答,是对机体的一种保护过程,以缓解感染,清除坏死细胞,并促进组织修复[14]
最近的研究表明,来源于植物的多酚类物质,特别是黄酮类[15],在体外和体内都具有抗炎活性[16]。异黄酮可以抑制与肠道炎症相关的金属硫蛋白的产生,并通过调节促炎症细胞因子白细胞介素(interleukin,IL)-6的产生来抑制肠道的炎症反应[17]。同时,异黄酮可以清除多种含氧、氮和氯的活性物,但其对过氧化氢和次氯酸的氧化作用相对较弱[18]。Lai等[19]研究发现,异黄酮可以清除体内由一氧化氮与超氧化物反应形成的强效氧化剂——过氧亚硝酸盐,以防止酪氨酸的硝化,而染料木素和大豆苷元作为红三叶草异黄酮的成分,可以抑制过氧化亚硝酸盐介导的低密度脂蛋白(low density lipoprotein,LDL)氧化。染料木素能够增加链脲霉素诱导的Ⅰ型糖尿病小鼠中超氧阴离子数量和硝基酪氨酸的形成正常化[20]。富含异黄酮的红三叶草提取物能减少过氧化亚硝酸盐介导的蛋白质修饰,减慢血小板中脂质的过氧化[21]。此外,异黄酮可降低脂多糖(lipopolysaccharide endotoxin,LPS)诱导大鼠血清中亚硝酸盐、硝酸盐和硝基酪氨酸的浓度[22]。上述这些结果表明,异黄酮可以清除炎症时因激活巨噬细胞而产生的多余自由基,从而防止一氧化氮与自由基的反应以及随后产生的过氧化亚硝酸盐,过氧化亚硝酸盐可以直接氧化LDL,导致细胞膜的不可逆损伤。

1.2.2 抗氧化

各种研究表明,氧化应激是一种破坏活性氧(reactive oxygen species,ROS)产生和消失之间平衡的反应,对衰老和包括癌症在内的许多疾病有重大影响[23]。在体内产生的主要ROS,如羟基自由基、过氧自由基和过氧亚硝酸盐,能够氧化核酸、蛋白质和不饱和脂肪酸[24]。细胞免受氧化损伤机制由2类小分子抗氧化剂介导,即直接抗氧化剂和间接抗氧化剂。直接抗氧化剂可以直接清除ROS,缺点是寿命短,可能引发促氧化作用[25]。间接抗氧化剂可激活核因子E2相关因子2(Nrf2)-抗氧化反应元件(ARE)抗氧化信号通路,进而诱导一系列细胞保护蛋白表达,如NAD(P)H醌氧化还原酶-1(quinone oxidoreductase-1,NQO-1)、血红素氧化酶-1(heme oxygenase-1,HO-1)和谷氨酸-半胱氨酸连接酶催化亚单位(glutamate-cysteine ligase catalytic subunit,GCLC)[26]。有研究表明,异黄酮是潜在的Nrf2-ARE激活剂,可以通过激活Nrf2信号,从而诱导下游的细胞保护酶表达,包括NQO1、HO-1、GCLC[13]。因此,异黄酮对氧化损伤的保护机制可能通过调节Nrf2-ARE信号传导途径来增强细胞内的抗氧化反应系统。
内源性抗氧化酶,如过氧化氢酶(catalase,CAT)、超氧化物歧化酶(superoxide dismutase,SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)、谷胱甘肽还原酶(glutathione reductase,GR)和过氧化物酶(peroxidase,PRX),在氧化期间发挥抗氧化功能[27]。酚类化合物也可能调节抗氧化酶的活性,已发现染料木素可提高抗氧化酶的活性,以及降低脑中过氧化脂以及肝脏中链脲佐菌素(streptozocin,STZ)的含量,从而避免产生过多ROS,增加肝脏中还原型谷胱甘肽(reduced glutathione,GSH)含量以及GSH与氧化型谷胱甘肽(oxidized glutathione,GSSH)比例[28]。此外,从红三叶草中提取的异黄酮的有效成分染料木素还能提高STZ诱导的糖尿病大鼠血液、肝脏、肾脏以及心脏中SOD、PRX和GSH-Px的活性[29]。染料木素和大豆苷元减少了肝脏中丙二醛(malondialdehyde,MDA)的产生,以应对缺氧-葡萄糖减少症和灌注引起的大鼠膀胱损伤[30],从而发挥体内的抗氧化剂活性。
有研究表明,鹰嘴豆素A通过降低肝脏中MDA含量,提高肝脏中CAT、SOD活性以及总抗氧化能力来减少糖尿病大鼠的氧化应激[31]。Jalaludeen等[32]研究了鹰嘴豆素A对砷引起的大鼠肾脏和心脏损伤的影响,结果表明,鹰嘴豆素A减轻了砷处理大鼠肾脏的氧化应激。此外,鹰嘴豆素A对患帕金森病大鼠也起到抗氧化作用,可抑制烟酰胺腺嘌呤二核苷酸磷酸酯氧化酶(NADPH氧化酶)的激活和MDA的产生,增加大脑中SOD和GSH-Px的活性[33]

1.2.3 其他生物学功能

近年来,有研究表明,异黄酮可以减缓绝经后妇女更年期症状,如潮热、夜间多汗、抑郁以及焦虑等症状[34]。此外,异黄酮还可以预防骨质疏松症,减缓骨质流失[9]。有研究以切除卵巢大鼠为试验动物,分别饲喂20和40 mg异黄酮,并以未饲喂异黄酮组为对照组,2周后,饲喂异黄酮大鼠骨微量物质含量、股骨重量和股骨密度显著增加,且血清碱性磷酸酶活性升高被抑制,同时破骨细胞的数量显著减少[35]。这些结果表明,红三叶草异黄酮可以有效地减少卵巢切除术引起的骨质流失。此外,异黄酮还有助于降低餐后血糖水平,维持血糖稳定[36]

2 红三叶草异黄酮在瘤胃内的代谢

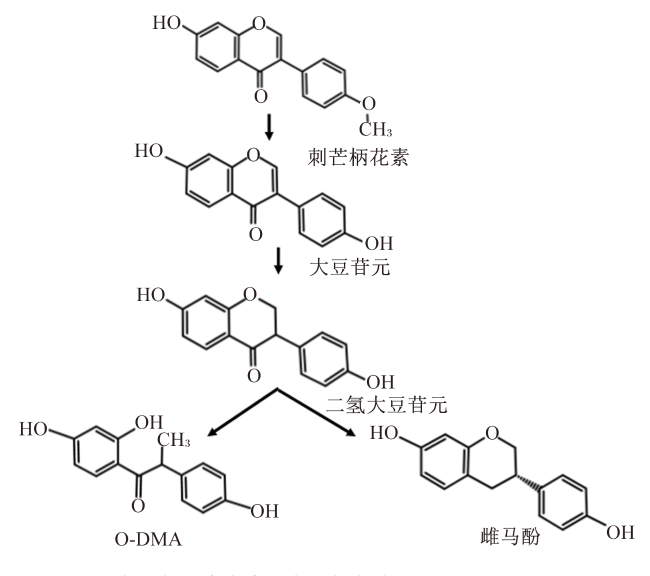
动物摄入红三叶草提取物后,胃肠道是异黄酮的主要吸收部位,胃肠道内β-葡萄糖苷酶催化糖水解,在胃肠道菌群的作用下进一步代谢为苷元形式[37]。反刍动物体内异黄酮的代谢转化主要发生在瘤胃中,由微生物将糖苷水解为苷元。鹰嘴豆素A被去甲基化为染料木素和二氢染料木素,染料木素通过环裂解进一步代谢为对乙基苯酚和对羟基-苯丙酸,二氢染料木素代谢生成5-羟基-雌马酚(图2)。刺芒柄花素去甲基化生成大豆苷元[38],在厌氧条件下,不仅发生水解,同时杂环还原裂解,大豆苷元生成二氢大豆苷元,随后再生成去氧甲基安哥拉紫檀素(O-desmethylangolensin,O-DMA)和雌马酚[39],而雌马酚则在羰基消除后生成(图3)。与大豆苷元和雌马酚相比,O-DMA对雌激素受体(estrogen receptors,ERs)[40]的亲和力较弱。
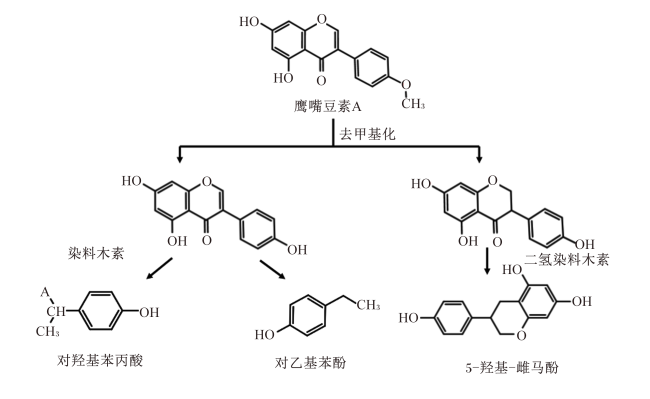
图2 鹰嘴豆素A在瘤胃内的代谢过程

Fig.2 Metabolic processes of biochanin A in rumen[44]

图3 刺芒柄花素在瘤胃内的代谢过程

Fig.3 Metabolic processes of formononetin in rumen[37-39]

有研究表明,给反刍动物饲喂异黄酮1 h后,大豆苷元和染料木素浓度下降,而在饲喂2.5 h后,在血液中检测到了雌马酚和对乙基苯酚[41]。还有研究探究了异黄酮在妊娠早期和妊娠晚期母牛中的代谢情况,与对照组相比,发情中期、妊娠早期和妊娠晚期母牛的血浆中有较低浓度的大豆苷元和染料木素;妊娠早期母牛的血浆中异黄酮的浓度在喂食3 h后开始下降,可能是因为异黄酮的代谢加速,导致其代谢物雌马酚和对乙基苯酚的浓度增加;妊娠晚期母牛血浆中异黄酮的浓度没有增加[42]。因此,异黄酮的吸收和代谢取决于各种因素,如消化条件的差异、妊娠早期和妊娠晚期动物激素调节的差异,以及不同妊娠阶段的免疫条件差异[43]。该试验还表明,在妊娠早期,由于免疫系统的迅速变化,异黄酮的代谢方式不同,导致β-葡萄糖苷酸酶的激活,进而导致异黄酮的活性形式释放到血浆中[42]。β-葡萄糖苷酸酶是负责异黄酮代谢和生物转化的酶,它能激活异黄酮的自由基形式从非活性的与硫酸和葡萄糖醛酸共轭的形式中释放出来。妊娠早期或妊娠晚期动物的异黄酮吸收及其在血浆中的代谢物浓度完全不同。因此,可能存在一些激素机制导致异黄酮吸收减少,导致奶牛妊娠晚期血浆中的异黄酮代谢物浓度/积累降低。
Dickinson等[44]通过体外试验发现瘤胃中刺芒柄花素的半衰期为4.3 h,大豆苷元的半衰期为9.8 h,鹰嘴豆素A和染料木素的半衰期分别为3.9和5.5 h。

3 红三叶草异黄酮对瘤胃微生物组成与功能的调控

红三叶草异黄酮的主要有效成分有刺芒柄花素、鹰嘴豆素A、染料木素等,但目前关于鹰嘴豆素A对瘤胃菌群影响的研究较多,而关于刺芒柄花素和染料木素的研究相对较少,因此本部分内容主要阐述鹰嘴豆素A对瘤胃内脱氨代谢、尿素代谢、淀粉分解以及纤维分解的影响。

3.1 脱氨代谢(高产氨菌)

瘤胃微生物介导氨基酸脱氨,在该过程中其主要作用的细菌有两类,第1类是普通产氨细菌,呈数量优势,即数量多但活性较差,如栖瘤胃普雷沃菌(Pievotell ruminicola)[45]和布氏普雷沃氏菌(Prevotella bryantii)等[46];第2类是高效产氨菌(HAB),即数量少但活性较高,主要有厌氧消化链球菌(Peptostreptococcus anaerobius)、斯氏梭菌(Clostridium sticklandii)和嗜胺梭菌(Clostridium aminophilum)等[47]
HAB在瘤胃内主要负责氨基酸的脱氨,HAB的产氨能力是其他细菌的100~300倍,它会分解瘤胃内氨基酸并将它们转化为氨,因此HAB被认为是瘤胃脱氨的主要原因[48]。HAB通常对离子载体敏感,当HAB被抑制时,更多的氨基态氮会残留在瘤胃里。离子载体是细菌的衍生代谢物,可以用莫能菌素等离子载体控制,从而降低氨的产生,提高氮利用效率[49]
虽然鹰嘴豆素A不是离子载体,但体外培养试验结果表明鹰嘴豆素A主要对牛和山羊的高产氨菌具有抗菌活性,可以降低氨基酸脱氨基产生的氨[50]。Flythe等[51]探究了鹰嘴豆素A对山羊瘤胃内HAB的影响,试验结果表明添加2 mg/kg鹰嘴豆素A时HAB的作用受到抑制。由此可见,鹰嘴豆素A可以抑制HAB的活性,起到降低瘤胃内产氨量的作用。还有研究表明添加异黄酮可以降低瘤胃内HAB的丰度[47]。鹰嘴豆素A可以抑制HAB的活性,提高粗蛋白质的消化率和肉牛的平均日增重(ADG),这主要归因于HAB受到抑制后瘤胃消化所需的氨基酸增加和可供动物吸收的蛋白质质量提高[52]

3.2 尿素代谢(尿素分解菌)

尿素是一种优质的非蛋白氮饲料,目前已经被用作牛、羊等反刍动物的非蛋白氮来源[53],可部分代替饲粮中的豆粕,从而降低生产成本。然而,由于尿素的分解速度过快,而瘤胃微生物合成微生物蛋白缺少能量的供应,降低了反刍动物对尿素氮的利用效率,导致大量的氨随着粪、尿排出体外,造成了氮的浪费和环境的污染[54]。瘤胃微生物将蛋白质分解为氨基酸和氨,微生物能利用氨基酸和肽以及部分氨合成微生物蛋白,过量的氨会进入血液,通过尿液排出体外[50]。Liu等[55]的研究结果表明,添加鹰嘴豆素A使得脲酶活性降低了50%,同时可使总氨基酸、缬氨酸、赖氨酸、蛋氨酸和亮氨酸的降解率分别降低18%、56%、37%、13%和12%,因此导致氨态氮(NH3-N)的浓度显著降低,由此推测鹰嘴豆素A对氨基酸降解率的影响可能会有助于瘤胃内氮代谢;此外,该研究还发现鹰嘴豆素A显著降低了蛋白质分解菌和尿素分解菌的丰度[55]
综上可知,鹰嘴豆素A可以通过抑制蛋白质分解菌和尿素分解菌以及脲酶的活性抑制蛋白质和尿素的分解,提高瘤胃内微生物合成效率,表明鹰嘴豆素A可能是一种新型的脲酶抑制剂。

3.3 淀粉分解(淀粉分解菌)

鹰嘴豆素A可以影响牛瘤胃微生物区系发酵,改变淀粉分解菌的菌群组成,抑制淀粉分解菌的活性和淀粉分解,增加乳酸利用菌的活性和乳酸代谢,抑制乳酸的生成,使pH下降,导致乙酸、丙酸和总挥发性脂肪酸的浓度升高[56]。除此之外,鹰嘴豆素A还可以有效地减缓瘤胃酸中毒,表明鹰嘴豆素A可作为预防和控制瘤胃急性酸中毒的调控剂[57]

3.4 纤维分解(纤维分解菌)

牛作为食草动物,需饲喂富含结构性碳水化合物(如纤维素和半纤维素)的饲粮。结构性碳水化合物分解需要相应的微生物和酶,因此,纤维素分解菌的功能对瘤胃的影响重大[58]。而红三叶草提取物有效成分鹰嘴豆素A被证实对纤维分解有积极影响作用。Harlow等[59]探究了鹰嘴豆素A对纤维分解菌的影响,试验结果表明,加入鹰嘴豆素A后,纤维分解菌的数量增加了10倍,还促进了纤维素分解菌的生长和纤维素分解,增强了热灭活黄化瘤胃球菌FD1对黄化瘤胃球菌8的抗菌活性,但是鹰嘴豆素A会选择性地抑制产琥珀酸丝状杆菌S85、黄化瘤胃球菌8和白色瘤胃球菌8的生长。

3.5 瘤胃菌群

异黄酮主要有效成分鹰嘴豆素A已被证明具有抗菌活性,主要针对革兰氏阳性菌,如梭状芽孢杆菌和链球菌[50]。有研究采用体外发酵法探究了异黄酮在2种不同饲粮条件下(干草和高精料饲粮)对瘤胃代谢的影响,相比之下,大豆苷元和染料木素在高精料饲粮中降解更快,6和12 h后大豆苷元和染料木素的浓度显著低于干草饲粮,添加异黄酮导致雌马酚产量下降[60];此外,添加较高浓度的异黄酮对瘤胃菌群起到了抑制作用,只有极少被水解的异黄酮直接从瘤胃吸收到血液中,大多数先与葡萄糖醛酸结合,该过程主要在胃肠道上皮中发生,只有一小部分在肝脏结合[61]。还有研究表明,添加异黄酮后,瘤胃内γ-变形菌纲(Gammaproteobacteria)和琥珀酸菌科(Succinivibrionaceae)的生长受到抑制,这2种细菌是瘤胃中已知用于产生乙酸盐和琥珀酸盐的菌,推测异黄酮可能影响乙酸盐的产生,但该试验也验证了鹰嘴豆素A不是异黄酮中影响这2种菌的主要有效成分,而是其他成分[62]。因此,导致γ-变形菌纲和琥珀酸菌科细菌生长受到抑制的异黄酮有效成分有待进一步研究,这也为之后研究提供了新的思路。

4 小结与展望

目前已证实异黄酮对动物有多种生物学功能,并且已验证了异黄酮在反刍动物瘤胃内的基本代谢过程,以及与瘤胃微生物的交互作用,但目前对异黄酮的研究多集中于大豆异黄酮,对红三叶草异黄酮及其对瘤胃微生物区系影响的报道较少,且异黄酮在动物体内的部分代谢机制还有待研究,目前仍需继续探求其在瘤胃内的完整代谢途径,为新型饲料开发提供理论参考。
[1]
麻龙腾, 吴聪, 王丽芬, 等. 不同蛋白质来源的饲料原料饲喂生长猪有效能值和氨基酸消化率评定[J]. 动物营养学报, 2022, 34(10):6469-6482.

DOI

MA L T, WU C, WANG L F, et al. Evaluation of effective energy value and amino acid digestibility of feed materials with different protein sources of growing pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6469-6482. (in Chinese)

DOI

[2]
FOYER C H, NGUYEN H, LAM H M. Legumes-the art and science of environmentally sustainable agriculture[J]. Plant Cell and Environment, 2019, 42(1):1-5.

[3]
WOCŁAWEK-POTOCKA I, MANNELLI C, BORUSZEWSKA D, et al. Diverse effects of phytoestrogens on the reproductive performance:cow as a model[J]. International Journal of Endocrinology, 2013, 2013:650984.

[4]
KUHNLE G G C, VOGIATZOGLOU A, WARD H A, et al. Dietary phytoestrogens and health—a population study[J]. Proceedings of the Nutrition Society, 2011, 70:E254.

DOI

[5]
DADÁKOVÁ K, TRNKOVÁ A, KAŠPAROVSKÁ J, et al. In vitro metabolism of red clover isoflavones in rumen fluid[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(6):1647-1654.

DOI

[6]
KENNY A M, MANGANO K M, ABOURIZK R H, et al. Soy proteins and isoflavones affect bone mineral density in older women:a randomized controlled trial[J]. American Journal of Clinical Nutrition, 2009, 90(1):234-242.

DOI

[7]
JEMINIWA B O, KNIGHT R M, BRADEN T D, et al. Regulation of the neuroendocrine axis in male rats by soy-based diets is independent of age and due specifically to isoflavone action[J]. Biology of Reproduction, 2020, 103(4):892-906.

DOI

[8]
霍星华, 王胜林, 程忠刚, 等. 大豆异黄酮对过氧化氢诱导IPEC-J2细胞氧化应激的影响[J]. 广东畜牧兽医科技, 2021, 46(5):37-40,49.

HUO X H, WANG S L, CHENG Z G, et al. Effects of soy isoflavones on oxidative stress of IPEC-J2 cells induced by hydrogen peroxide[J]. Guangdong Journal of Animal and Veterinary Science, 2021, 46(5):37-40,49. (in Chinese)

[9]
KURZER M S, XU X. Dietary phytoestrogens[J]. Annual Review of Nutrition, 1997, 17:353-381.

PMID

[10]
SALONIEMI H, WÄHÄLÄ K, NYKÄNEN-KURKI P, et al. Phytoestrogen content and estrogenic effect of legume fodder[J]. Proceedings of the Society for Experimental Biology and Medicine, 1995, 208(1):13-17.

PMID

[11]
KIM M R, KIM H J, YU S H, et al. Combination of red clover and hops extract improved menopause symptoms in an ovariectomized rat model[J]. Evidence-Based Complementary and Alternative Medicine, 2020, 2020:7941391.

[12]
ADLER S A, PURUP S, HANSEN-MØLLER J, et al. Phytoestrogens and their metabolites in bulk-tank milk:effects of farm management and season[J]. PLoS One, 2015, 10(5):e0127187.

DOI

[13]
LIANG F Q, CAO W W, HUANG Y T, et al. Isoflavone biochanin A,a novel nuclear factor erythroid 2-related factor 2 (Nrf2)-antioxidant response element activator,protects against oxidative damage in HepG2 cells[J]. BioFactors, 2019, 45(4):563-574.

[14]
BARTON G M. A calculated response:control of inflammation by the innate immune system[J]. The Journal of Clinical Investigation, 2008, 118(2):413-420.

DOI

[15]
BO Y, YUAN L P, ZHANG J J, et al. Total flavonoids of Bidens bipinnata L. a traditional Chinese medicine inhibits the production of inflammatory cytokines of vessel endothelial cells stimulated by sera from Henoch-Schönlein purpura patients[J]. Journal of Pharmacy and Pharmacology, 2012, 64(6):882-887.

DOI

[16]
DOWER J I, GELEIJNSE J M, GIJSBERS L, et al. Supplementation of the pure flavonoids epicatechin and quercetin affects some biomarkers of endothelial dysfunction and inflammation in (pre)hypertensive adults:a randomized double-blind,placebo-controlled,crossover trial[J]. The Journal of Nutrition, 2015, 145(7):1459-1463.

DOI

[17]
PARADKAR P N, BLUM P S, BERHOW M A, et al. Dietary isoflavones suppress endotoxin-induced inflammatory reaction in liver and intestine[J]. Cancer Letters, 2004, 215(1):21-28.

PMID

[18]
PATEL R P, BOERSMA B J, CRAWFORD J H, et al. Antioxidant mechanisms of isoflavones in lipid systems:paradoxical effects of peroxyl radical scavenging[J]. Free Radical Biology & Medicine, 2001, 31(12):1570-1581.

DOI

[19]
LAI H H, YEN G C. Inhibitory effect of isoflavones on peroxynitrite-mediated low-density lipoprotein oxidation[J]. Bioscience,Biotechnology,and Biochemistry, 2002, 66(1):22-28.

DOI

[20]
TIE L, AN Y, HAN J, et al. Genistein accelerates refractory wound healing by suppressing superoxide and FoxO1/iNOS pathway in type 1 diabetes[J]. Journal of Nutritional Biochemistry, 2013, 24(1):88-96.

DOI PMID

[21]
KOLODZIEJCZYK-CZEPAS J, WACHOWICZ B, MONIUSZKO-SZAJWAJ B, et al. Antioxidative effects of extracts from Trifolium species on blood platelets exposed to oxidative stress[J]. Journal of Physiology and Biochemistry, 2013, 69(4):879-887.

DOI

[22]
YEN G C, LAI H H. Inhibition of reactive nitrogen species effects in vitro and in vivo by isoflavones and soy-based food extracts[J]. Journal of Agricultural and Food Chemistry, 2003, 51(27):7892-7900.

DOI

[23]
DAIBER A. Redox signaling (cross-talk) from and to mitochondria involves mitochondrial pores and reactive oxygen species[J]. Biochimica et Biophysica Acta, 2010, 1797(6/7):897-906.

[24]
NAIK E, DIXIT V M. Mitochondrial reactive oxygen species drive proinflammatory cytokine production[J]. Journal of Experimental Medicine, 2011, 208(3):417-420.

DOI

[25]
DINKOVA-KOSTOVA A T, TALALAY P. Direct and indirect antioxidant properties of inducers of cytoprotective proteins[J]. Molecular Nutrition & Food Research, 2008, 52(Suppl.1):S128-S138.

[26]
LIU Q, HU Y Y, CAO Y F, et al. Chicoric acid ameliorates lipopolysaccharide-induced oxidative stress via promoting the Keap1/Nrf2 transcriptional signaling pathway in BV-2 microglial cells and mouse brain[J]. Journal of Agricultural and Food Chemistry, 2017, 65(2):338-347.

DOI PMID

[27]
ZHANG H, TSAO R. Dietary polyphenols,oxidative stress and antioxidant and anti-inflammatory effects[J]. Current Opinion in Food Science, 2016, 8:33-42.

DOI

[28]
KARALE S, KAMATH J V. Effect of daidzein on cisplatin-induced hematotoxicity and hepatotoxicity in experimental rats[J]. Indian Journal of Pharmacology, 2017, 49(1):49-54.

[29]
MU H, BAI Y H, WANG S T, et al. Research on antioxidant effects and estrogenic effect of formononetin from Trifolium pratense (red clover)[J]. Phytomedicine, 2009, 16(4):314-319.

DOI

[30]
LI S L, CAO R, HU X F, et al. Daidzein ameliorated concanavalin A-induced liver injury through the Akt/GSK-3β/Nrf2 pathway in mice[J]. Annals of Translational Medicine, 2021, 9(15):1228.

DOI

[31]
AMRI J, ALAEE M, BABAEI R, et al. Biochanin-A has antidiabetic,antihyperlipidemic,antioxidant,and protective effects on diabetic nephropathy via suppression of TGF-β1 and PAR-2 genes expression in kidney tissues of STZ-induced diabetic rats[J]. Biotechnology and Applied Biochemistry, 2022, 69(5):2112-2121.

DOI

[32]
JALALUDEEN A M, LEE W Y, KIM J H, et al. Therapeutic efficacy of biochanin A against arsenic-induced renal and cardiac damage in rats[J]. Environmental Toxicology and Pharmacology, 2015, 39(3):1221-1231.

DOI PMID

[33]
WANG J, HE C, WU W Y, et al. Biochanin A protects dopaminergic neurons against lipopolysaccharide-induced damage and oxidative stress in a rat model of Parkinson’s disease[J]. Pharmacology Biochemistry and Behavior, 2015, 138:96-103.

DOI

[34]
GHAZANFARPOUR M, SADEGHI R, ROUDSARI R L, et al. Red clover for treatment of hot flashes and menopausal symptoms:a systematic review and meta-analysis[J]. Journal of Obstetrics and Gynaecology, 2016, 36(3):301-311.

DOI

[35]
OCCHIUTO F, PASQUALE R D, GUGLIELMO G, et al. Effects of phytoestrogenic isoflavones from red clover (Trifolium pratense L.) on experimental osteoporosis[J]. Phytotherapy Research, 2007, 21(2):130-134.

DOI

[36]
KANG S J, CHOI B R, KIM S H, et al. Dried pomegranate potentiates anti-osteoporotic and anti-obesity activities of red clover dry extracts in ovariectomized rats[J]. Nutrients, 2015, 7(4):2622-2647.

DOI PMID

[37]
DAY A J, DUPONT M S, RIDLEY S, et al. Deglycosylation of flavonoid and isoflavonoid glycosides by human small intestine and liver beta-glucosidase activity[J]. FEBS Letters, 1998, 436(1):71-75.

PMID

[38]
NILSSON A, HILL J L, DAVIES H L. An in vitro study of formononetin and biochanin A metabolism in rumen fluid from sheep[J]. Biochimica et Biophysica Acta:General Subjects, 1967, 148(1):92-98.

DOI

[39]
BARNES S. The biochemistry,chemistry and physiology of the isoflavones in soybeans and their food products[J]. Lymphatic Research and Biology, 2010, 8(1):89-98.

DOI

[40]
HWANG C S, KWAK H S, LIM H J, et al. Isoflavone metabolites and their in vitro dual functions:they can act as an estrogenic agonist or antagonist depending on the estrogen concentration[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2006, 101(4/5):246-253.

DOI

[41]
LUNDH T J, PETTERSSON H, KIESSLING K H. Liquid chromatographic determination of the estrogens daidzein,formononetin,coumestrol,and equol in bovine blood plasma and urine[J]. Journal-Association of Official Analytical Chemists, 1988, 71(5):938-941.

[42]
WOCLAWEK-POTOCKA I, PISKULA M K, BAH M, et al. Concentrations of isoflavones and their metabolites in the blood of pregnant and non-pregnant heifers fed soy bean[J]. The Journal of Reproduction and Development, 2008, 54(5):358-363.

DOI

[43]
KELEMEN K, PALDI A, TINNEBERG H, et al. Early recognition of pregnancy by the maternal immune system[J]. American Journal of Reproductive Immunology, 1998, 39(6):351-355.

PMID

[44]
DICKINSON J M, SMITH G R, RANDEL R D, et al. In vitro metabolism of formononetin and biochanin A in bovine rumen fluid[J]. Journal of Animal Science, 1988, 66(8):1969-1973.

DOI

[45]
WANG Z B, XIN H S, BAO J, et al. Effects of hainanmycin or monensin supplementation on ruminal protein metabolism and populations of proteolytic bacteria in Holstein heifers[J]. Animal Feed Science and Technology, 2015, 201:99-103.

DOI

[46]
FERME D, BANJAC M, CALSAMIGLIA S, et al. The effects of plant extracts on microbial community structure in a rumen-simulating continuous-culture system as revealed by molecular profiling[J]. Folia Microbiologica, 2004, 49(2):151-155.

DOI PMID

[47]
PASTER B J, RUSSELL J B, YANG C M, et al. Phylogeny of the ammonia-producing ruminal bacteria Peptostreptococcus anaerobius,Clostridium sticklandii,and Clostridium aminophilum sp. nov.[J]. International Journal of Systematic Bacteriology, 1993, 43(1):107-110.

DOI

[48]
BENTO C B P, DE AZEVEDO A C, DETMANN E, et al. Biochemical and genetic diversity of carbohydrate-fermenting and obligate amino acid-fermenting hyper-ammonia-producing bacteria from Nellore steers fed tropical forages and supplemented with casein[J]. BMC Microbiology, 2015, 15:28.

DOI PMID

[49]
HARLOW B E, FLYTHE M D, KAGAN I A, et al. Biochanin A (an isoflavone produced by red clover) promotes weight gain of steers grazed in mixed grass pastures and fed dried-distillers’ grains[J]. Crop Science, 2017, 57(1):506-514.

DOI

[50]
FLYTHE M, KAGAN I. Antimicrobial effect of red clover (Trifolium pratense) phenolic extract on the ruminal hyper ammonia-producing bacterium,Clostridium sticklandii[J]. Current Microbiology, 2010, 61(2):125-131.

DOI

[51]
FLYTHE M D, HARRISON B, KAGAN I A, et al. Antimicrobial activity of red clover (Trifolium pratense L.) extract on caprine hyper ammonia-producing bacteria[J]. Agriculture,Food and Analytical Bacteriology, 2013, 3(3):176-185.

[52]
HARLOW B E, FLYTHE M D, KAGAN I A, et al. Isoflavone supplementation,via red clover hay,alters the rumen microbial community and promotes weight gain of steers grazing mixed grass pastures[J]. PLoS One, 2020, 15(3):e0229200.

DOI

[53]
SWEENY J P A, SURRIDGE V, HUMPHRY P S, et al. Benefits of different urea supplementation methods on the production performances of Merino sheep[J]. Veterinary Journal, 2014, 200(3):398-403.

DOI PMID

[54]
GETAHUN D, ALEMNEH T, AKEBEREGN D, et al. Urea metabolism and recycling in ruminants[J]. Biomedical Journal of Scientific & Technical Research, 2019, 20(1):14790-14796.

[55]
LIU S J, ZHANG Z Y, HAILEMARIAM S, et al. Biochanin A inhibits ruminal nitrogen-metabolizing bacteria and alleviates the decomposition of amino acids and urea in vitro[J]. Animals, 2020, 10(3):368.

DOI

[56]
HARLOW B E, FLYTHE M D, AIKEN G E. Effect of biochanin A on corn grain (Zea mays) fermentation by bovine rumen amylolytic bacteria[J]. Journal of Applied Microbiology, 2017, 122(4):870-880.

DOI PMID

[57]
HARLOW B E, FLYTHE M D, KLOTZ J L, et al. Effect of biochanin A on the rumen microbial community of Holstein steers consuming a high fiber diet and subjected to a subacute acidosis challenge[J]. PLoS One, 2021, 16(7):e0253754.

DOI

[58]
KRAUSE D O, DENMAN S E, MACKIE R I, et al. Opportunities to improve fiber degradation in the rumen:microbiology,ecology,and genomics[J]. FEMS Microbiology Reviews, 2003, 27(5):663-693.

DOI

[59]
HARLOW B E, FLYTHE M D, AIKEN G E. Biochanin A improves fibre fermentation by cellulolytic bacteria[J]. Journal of Applied Microbiology, 2018, 124(1):58-66.

DOI PMID

[60]
TRNKOVÁ A, ŠANCOVÁ K, ZAPLETALOVÁ M, et al. Determination of in vitro isoflavone degradation in rumen fluid[J]. Journal of Dairy Science, 2018, 101(6):5134-5144.

DOI

[61]
LUNDH T. Metabolism of estrogenic isoflavones in domestic animals[J]. Proceedings of the Society for Experimental Biology and Medicine, 1995, 208(1):33-39.

PMID

[62]
MELCHIOR E A, SMITH J K, SCHNEIDER L G, et al. Effects of endophyte-infected tall fescue seed and red clover isoflavones on rumen microbial populations and physiological parameters of beef cattle[J]. Translational Animal Science, 2019, 3(1):315-328.

DOI PMID

Outlines

/