RESEARCH PAPER

Effects of Hericium erinaceus Polysaccharide on Growth Performance, Blood Indices and Substance Metabolism of Broilers under Heat Stress

  • ZHENG Yuxuan , 1 ,
  • HUANG Jialiang 1 ,
  • WANG Xiang 1 ,
  • WANG Chenfang 1 ,
  • ZHANG Feng 1 ,
  • ZHAO Chunfang 1 ,
  • REN Man 1, 2 ,
  • JIN Erhui , 1, 2, *
Expand
  • 1 College of Animal Science, Anhui University of Science and Technology, Chuzhou 233100, China
  • 2 Anhui Key Laboratory of Animal Nutrition Regulation and Health, Chuzhou 233100, China
*professor, E-mail:

Received date: 2022-11-11

  Online published: 2023-06-08

Abstract

This experiment was conducted to investigate the effects of different proportions of dietary Hericium erinaceus polysaccharide (HEP) on growth performance, blood physiological and biochemical indices, immune and antioxidant functions and substance metabolism of broilers under heat stress. A total of 144 healthy white feathered broilers of 28-day-old were randomly divided into 6 groups with 3 replicates per group and 8 broilers per replicate (half male and half female). Broilers in normal temperature control group and heat stress group were fed a basal diet, and those in experimental groups Ⅰ, Ⅱ, Ⅲ and Ⅳ were fed the basal diet supplemented with 0.4%, 0.8%, 1.2% and 1.6% HEP, respectively. Broilers in normal temperature control group were reared at temperature of (21±1) ℃ and relative humidity of (60±5)%, and those in heat stress group and experimental groups were given 12 h heat stress every day. The experiment lasted for 14 days. The results showed as follows: 1) compared with normal temperature control group, the heat stress significantly decreased the average daily gain (ADG) and average daily feed intake (ADFI) of broilers (P<0.05), significantly increased the feed to gain ratio (F/G) (P<0.05), significantly decreased the number of white blood cells (WBC), the number of red blood cells (RBC), the hemoglobin (HGB) content in blood and the albumin (ALB) content in serum (P<0.05), significantly increased the contents of heat shock protein 70 (HSP70), interleukin-1β (IL-1β), interleukin-6 (IL-6) and tumor necrosis factor-α in serum (P<0.05), significantly decreased the contents of interleukin-2 (IL-2) and interferon-γ (IFN-γ) in serum and the activities of glutathione peroxidase (GSH-Px), total superoxide dismutase (T-SOD) and catalase (CAT) in serum (P<0.05), and significantly increased the malondialdehyde (MDA) content in serum (P<0.05). 2) Compared with heat stress group, the ADG and ADFI of broilers in experimental groups Ⅲ and Ⅳ were significantly increased (P<0.05), the F/G was significantly decreased (P<0.05), and the WBC number, RBC number and HGB content in blood on day 7 of heat stress were significantly increased (P<0.05); the ALB content in serum in experimental group Ⅳ on days of 7 and 14 of heat stress was significantly increased (P<0.05), the contents of IL-2 and IFN-γ in serum on days of 7 and 14 of heat stress were significantly increased (P<0.05), the contents of HSP70, IL-6 and TNF-α in serum on day 7 of heat stress and the contents of IL-1β and TNF-α in serum on day 14 of heat stress were significantly decreased (P<0.05); the GSH-Px activity in serum on days of 7 and 14 of heat stress in experimental group Ⅳ was significantly increased (P<0.05), the MDA content in serum was significantly decreased (P<0.05), and the activities of T-SOD and CAT in serum on day 14 of heat stress were significantly increased (P<0.05). 3) Metabolome analysis of serum showed that, on day 7 of heat stress, a total of 5 significant differential metabolites were identified between normal temperature control group and heat stress group [variable importance in projection (VIP)>0, P<0.05], compared with heat stress group, the phosphatidylcholine content in serum of broilers in normal temperature control group was significantly decreased (P<0.05), and the contents of four different metabolites such as free acid in serum were significantly increased (P<0.05). A total of 10 significant differential metabolites were identified in experimental group Ⅳ and heat stress group (VIP>0, P<0.05), compared with heat stress group, the contents of phosphatidylcholine, N-methylethanolamine phosphate and methionine sulfoxide in serum of broilers in experimental group Ⅳ were significantly decreased (P<0.05), and the contents of 7 different metabolites such as cytidine and choline were significantly increased (P<0.05). Compared with heat stress group, the contents of intermediate products involved in pyrimidine metabolism, glycine, serine and threonine metabolism and glycerophospholipid metabolism in serum of broilers in experimental group Ⅳ were changed. In conclusion, dietary HEP can improve the growth performance of broilers under heat stress, improve the immune and antioxidant functions, and affect the substance metabolism in serum through metabolic pathways such as pyrimidine metabolism, amino acid metabolism and glycerophospholipid metabolism, so as to alleviate the damage of heat stress on broilers. In this experiment, dietary 1.6% HEP is appropriate.

Cite this article

ZHENG Yuxuan , HUANG Jialiang , WANG Xiang , WANG Chenfang , ZHANG Feng , ZHAO Chunfang , REN Man , JIN Erhui . Effects of Hericium erinaceus Polysaccharide on Growth Performance, Blood Indices and Substance Metabolism of Broilers under Heat Stress[J]. Chinese Journal of Animal Nutrition, 2023 , 35(6) : 3708 -3723 . DOI: 10.12418/CJAN2023.344

随着畜禽养殖模式的转变,集约化和规模化养殖模式对环境的要求越来越高。温度是影响畜禽养殖的重要环境因素之一,温度过高会对畜禽诸多生理功能产生负面影响,进而导致热应激发生。家禽自身温度较高,缺乏汗腺且被覆羽毛,散热难度较大,对环境温度变化较为敏感,外界环境温度升高极易对家禽机体产生损伤。在温度较高的炎热地区,环境温度和相对湿度之间的相互作用容易导致家禽热应激发生,致使家禽机体免疫力和抗氧化能力降低,生长发育和繁殖性能受阻,肌肉品质下降,给养禽业带来了较大损失[1]。研究发现,高温会引起家禽生理生化功能出现障碍,采食量和生长速度降低,机体有氧代谢、糖降解和氧化状态改变[2]。在热应激情况下,家禽机体酸碱平衡失衡,容易出现呼吸性碱中毒和代谢性酸中毒,导致生产性能下降[3]。Wen等[4]研究表明,热应激显著降低肉鸡采食量、产肉量和肌肉品质,导致生产性能明显异常。Surai等[5]研究发现,热应激可引起细胞氧化和抗氧化系统之间不平衡,导致细胞处于氧化应激状态,损害细胞中蛋白质、脂质和DNA合成。Lauridsen等[6]研究证实,热应激诱导的氧化应激能够损伤家禽肠道组织结构,破坏肠道消化吸收功能,导致家禽出现腹泻和肠炎。此外,热应激会破坏动物正常防御机制,导致机体免疫器官重量下降,抗体分泌减少,促进炎症细胞因子表达水平升高,巨噬细胞活性降低,T细胞和B细胞发育受阻[7]。这些结果充分表明,热应激能够对家禽生产性能、免疫功能、抗氧化功能和消化功能产生损伤,进而影响家禽养殖效益。因此,为了缓解热应激对家禽不利影响,在禁抗压力下,通过营养调控方法减弱热应激对家禽机体的危害正逐渐成为畜牧业研究的重点。中草药是我国特有的医药资源,中草药提取物具有低毒性、副作用小等独特优点,是养禽生产中常用的抗热应激绿色饲料添加剂[8]。许多种类的中草药或中草药提取物被证实能够调节热应激情况下家禽抗氧化活性、免疫功能、消化功能,提高家禽生产性能,克服高温带来的不利影响[9]
猴头菇作为中草药的一种,本身富含多种生物活性物质,在食品和工业上被广泛使用,迄今为止有35种多糖从猴头菇中提取出来。药理研究表明,猴头菇具有很大的药用潜力,在抗癌、抗氧化、降血脂、调节免疫及增强消化功能方面有很多帮助[10]。从猴头菇中提取的猴头菇多糖(Hericium erinaceus polysaccharide,HEP)可以促进神经生长因子表达,是一种新型的治疗抑郁症的潜在药物[11]。Ren等[12]研究发现,HEP可以通过炎症相关信号通路抑制葡聚糖硫酸钠(DSS)诱导的小鼠促炎症细胞因子表达,减弱氧化应激,保护小鼠胃肠功能,从而减轻结肠炎症状。在饲粮中添加HEP,能降低感染番鸭呼肠孤病毒(muscovy duck reovirus,MDRV)番鸭免疫器官损害程度,提高血清蛋白质水平和抗体分泌,降低MDRV感染带来的免疫抑制[13]。同时,HEP还能够显著提高番鸭肠道黏膜免疫水平,增强抗氧化能力,降低脂质过氧化反应,增强肠道免疫水平及抗氧化能力[14]。综合以上研究结果可知,添加HEP能够对动物机体许多生理功能产生有益作用。但到目前为止,关于HEP对热应激状态下肉鸡生理功能的研究报道较少。为此,本试验通过在肉鸡饲粮中添加不同比例的HEP,研究其对热应激肉鸡生长性能、血液生理生化指标、免疫和抗氧化功能及物质代谢的影响,以期为HEP应用于养鸡生产中缓解热应激提供科学资料。

1 材料与方法

1.1 试验材料

试验所用HEP由西安某生物科技有限公司提供,其中多糖含量为50%。

1.2 试验设计

试验选用购自蚌埠市亿耀农业科技发展有限公司的144只健康28日龄白羽肉鸡,随机分为6个组,每组3个重复,每个重复8只鸡(公母各占1/2),饲喂于同一个笼子(90 cm×90 cm×38 cm)中。常温对照组和热应激组饲喂基础饲粮,试验Ⅰ、Ⅱ、Ⅲ和Ⅳ组分别在基础饲粮中添加0.4%、0.8%、1.2%和1.6%的HEP。基础饲粮组成及营养水平见表1。试验期14 d。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 62.00
豆粕 Soybean meal 27.50
大豆油 Soybean oil 3.50
鱼粉 Fish meal 2.00
预混料 Premix1) 5.00
合计 Total 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 12.73
粗蛋白质 CP 19.08
赖氨酸 Lys 1.04
蛋氨酸Met 0.31
钙 Ca 1.02
总磷 TP 0.44

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 200 000 IU,VD3 50 000 IU,VE 480 IU,VK3 50 mg,VB1 16 mg,VB2 90 mg,VB6 18 mg,VB12 0.12 mg,烟酸 niacin 600 mg,泛酸 pantothenic acid 240 mg,叶酸 folic acid 8 mg,氯化胆碱 choline chloride 10 g,Cu 100~200 mg,Fe 400 mg,Zn 960~1 200 mg,Mn 960 mg,I 10 mg,Se 10 mg,Ca 8 g,总磷 TP 1.15 g,NaCl 2.5 g,水分 moisture 6 g。

2)代谢能为计算值,其他为实测值。ME was a calculated value, while the others were measured values.

1.3 饲养管理

试验在安徽科技学院兽医院4楼实验动物房进行,采用层叠式笼养,试验鸡自由采食和饮水。试验肉鸡分别在7和27日龄接种新城疫疫苗,14和21日龄接种法氏囊疫苗,均采用饮水免疫。根据常玉等[15]采用的热应激方法,使用暖风机加热升温,雾状喷水方法加湿,并采用温湿度仪测定环境温度和相对湿度,每天给予12 h热应激。具体包括:每天08:00开始升温,到09:00升至33 ℃左右,09:00—21:00维持在(33±2) ℃,从21:00开始降温,到22:00降至22 ℃左右,然后维持在(22±1) ℃直至次日08:00。常温对照组饲养于温度为(21±1) ℃和相对湿度为(60±5)%的环境中。采用人工光照和自然光照相结合的方法进行光照控制。试验期间,每天07:00之前称量添加的饲粮量,每天20:00称量剩余饲粮量,计算肉鸡平均日采食量(ADFI)。

1.4 样品的采集与处理

分别在试验第7和14天,每组随机挑选6羽肉鸡(每个重复2羽),禁食不禁水12 h后称重,颈动脉放血致死,采用肝素抗凝无菌采血管和促凝采血管(山东省成武县医用制品厂)分别采集抗凝血和促凝血。促凝血室温静置4 h后,在4 ℃条件下3 000 r/min离心15 min,分离血清保存于-80 ℃备用。

1.5 测定指标及方法

1.5.1 生长性能

试验开始和结束时,对肉鸡进行空腹称重,计算平均日增重(ADG);试验期间,每天07:00之前称量添加的饲粮量,每天20:00称量剩余的饲粮量,计算肉鸡平均日采食量(ADFI);根据ADG和ADFI,计算料重比(F/G)。

1.5.2 血液生理生化指标

采集的抗凝血借助BC-2800 Vet型全自动动物血液细胞分析仪(深圳迈瑞动物医疗科技股份有限公司)测定血液生理指标;促凝血血清在室温条件下融化后,采用卓越450型全自动血清生化分析仪(上海科华生物工程股份有限公司)测定血清生化指标,测定试剂盒购自上海科华生物工程股份有限公司。

1.5.3 血清免疫指标

血清在室温条件下融化后,采用酶联免疫吸附测定(ELISA)试剂盒(北京达科美科技有限公司)测定血清中白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、肿瘤坏死因子-α(TNF-α)、白细胞介素-2(IL-2)、干扰素-γ(IFN-γ)和热休克蛋白70(HSP70)含量,操作步骤按照试剂盒操作说明书进行,借助全波长酶标仪(Multiskan Go,赛默飞世尔科技)测定吸光度。

1.5.4 血清抗氧化指标

血清在室温条件下融化后,采用氧化指标测定试剂盒测定血清中总超氧化物歧化酶(T-SOD)、谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)活性及丙二醛(MDA)含量,试剂盒均购自南京建成生物工程研究所。

1.5.5 血清代谢组学

血清样品从-80 ℃冰箱取出后置于干冰中,运送至青岛科标检测研究院进行代谢组学分析。色谱检测采用液相色谱-质谱联用(LC-MS)平台(Ultimate 3000LC,Q Exactive HF,Thermo)进行分析,色谱柱为C18色谱柱(ZORBAX Eclipse C18,Agilent Technologies,1.8 μm×2.1 mm×100 mm),色谱分离条件为柱温30 ℃、流速0.3 mL/min。质谱检测分别采用电喷雾电离(ESI)正离子和负离子模式进行分析。检测过程使用Compound Discover 3.2进行保留时间矫正、峰识别、峰提取、峰积分及峰对齐等校正工作,同时利用Thermo mzCloud在线数据库、Thermo mzValut本地数据库和ChemSpider数据库等进行物质鉴定。
检测结果采用SIMCA 14.1软件进行无监督的主成分分析(PCA)和有监督的正交偏最小二乘法-判别分析(OPLS-DA),分析过后的差异代谢物通过PubChem、ClassFire数据库进行鉴定,然后将经过鉴定的内源代谢物利用京都基因与基因组百科全书(KEGG)数据库对差异代谢物进行注释。

1.6 数据统计与分析

试验数据采用SPSS 26.0软件中的one-way ANOVA程序进行方差分析,对差异显著的数据进行LSD多重比较;同时,对HEP添加比例效应进行线性和二次多项式分析。试验结果以平均值和均值标准误(SEM)表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 HEP对热应激肉鸡生长性能的影响

表2可知,热应激14 d时,与常温对照组相比,热应激组、试验Ⅰ组和试验Ⅱ组肉鸡ADG和ADFI显著降低(P<0.05),F/G显著提高(P<0.05)。与热应激组相比,试验Ⅲ组和试验Ⅳ组肉鸡ADG显著提高(P<0.05),F/G显著降低(P<0.05);试验Ⅰ、Ⅱ、Ⅲ和Ⅳ组ADFI显著提高(P<0.05)。随着HEP添加比例的提高,热应激条件下肉鸡ADG呈线性提高(P<0.05),F/G呈线性降低(P<0.05)。
表2 HEP对热应激肉鸡生长性能的影响

Table 2 Effects of HEP on growth performance of broilers under heat stress

项目
Items
常温对照组
Normal temperature
control group
热应激组
Heat stress
group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
试验Ⅲ组
Experimental
group Ⅲ
试验Ⅳ组
Experimental
group Ⅳ
均值
标准误
SEM
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
平均日增重 ADG/g 60.71a 28.04c 36.57c 40.18bc 52.50ab 55.71a 2.93 0.001 0.012 0.971
平均日采食量 ADFI/g 105.51a 72.92c 86.96b 88.73b 94.63ab 94.16ab 2.26 0.001 0.146 0.785
料重比 F/G 1.74b 2.60a 2.38a 2.21a 1.80b 1.69b 0.07 <0.001 <0.001 0.765

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 HEP对热应激肉鸡血液生理指标的影响

表3可知,热应激7 d时,与常温对照组相比,热应激组肉鸡血液白细胞(WBC)数量、红细胞(RBC)数量、血红蛋白(HGB)含量和血细胞比容(HCT)显著降低(P<0.05);与热应激组相比,试验Ⅲ组和试验Ⅳ组肉鸡血液WBC数量、RBC数量、HGB含量和HCT显著提高(P<0.05),试验Ⅰ组和试验Ⅱ组血液WBC数量也显著提高(P<0.05),试验Ⅱ组血液HGB含量和HCT显著提高(P<0.05)。热应激14 d时,与常温对照组相比,热应激组肉鸡血液WBC数量和红细胞平均体积(MCV)显著降低(P<0.05);与热应激组相比,试验Ⅰ、Ⅱ、Ⅲ和Ⅳ组肉鸡血液WBC数量和MCV显著提高(P<0.05)。
表3 HEP对热应激肉鸡血液生理指标的影响

Table 3 Effects of HEP on blood physiological indices of broilers under heat stress

项目
Items
常温对照组
Normal temperature
control group
热应激组
Heat stress
group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
试验Ⅲ组
Experimental
group Ⅲ
试验Ⅳ组
Experimental
group Ⅳ
均值
标准误
SEM
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
第7天 Day 7
白细胞 WBC/(×109个/L) 228.95a 194.08c 211.80b 221.18ab 213.08b 219.78ab 2.65 <0.001 0.298 0.688
红细胞 RBC/(×1012个/L) 2.88a 2.37b 2.64ab 2.67ab 2.78a 2.80a 0.06 0.120 0.306 0.954
血红蛋白 HGB/(g/L) 128.25a 105.50b 117.50ab 122.00a 118.50a 124.25a 2.17 0.001 0.268 0.880
血细胞比容 HCT/% 39.55a 31.10c 34.55bc 34.75b 36.23ab 37.25ab 0.68 0.003 0.073 0.712
红细胞平均体积 MCV/fL 133.23 131.50 131.43 134.33 130.73 133.20 0.85 0.883 0.653 0.671
平均血红蛋白含量 MCH/pg 44.53 43.75 44.55 43.93 42.68 44.30 0.31 0.424 0.533 0.133
血小板 PLT/(×109个/L) 19.25 9.50 16.00 13.00 13.00 16.25 1.22 0.271 0.959 0.352
第14天 Day 14
白细胞 WBC/(×109个/L) 214.03a 189.75b 215.30a 208.20a 208.15a 215.43a 2.75 0.037 0.990 0.251
红细胞 RBC/(×1012个/L) 2.79 2.18 2.55 2.62 2.61 2.64 0.06 0.130 0.707 0.877
血红蛋白 HGB/(g/L) 126.25 108.00 116.25 113.75 116.00 115.00 2.19 0.311 0.987 0.891
血细胞比容 HCT/% 38.70 33.83 35.00 34.75 34.70 35.15 0.71 0.480 0.963 0.858
红细胞平均体积 MCV/fL 137.95a 125.65b 132.80a 133.05a 136.75a 136.10a 1.05 0.001 0.058 0.762
平均血红蛋白含量 MCH/pg 43.98 43.53 45.68 43.43 45.03 43.60 0.39 0.487 0.337 0.697
血小板 PLT/(×109个/L) 18.75 18.75 16.75 14.50 14.75 14.75 1.70 0.962 0.987 0.825

2.3 HEP对热应激肉鸡血清生化指标的影响

表4可知,热应激7 d时,与常温对照组相比,热应激组、试验Ⅰ组和试验Ⅲ组肉鸡血清白蛋白(ALB)含量显著降低(P<0.05);与热应激组相比,试验Ⅱ组和试验Ⅳ组肉鸡血清ALB含量显著提高(P<0.05)。热应激14 d时,与常温对照组相比,热应激组肉鸡血清ALB含量显著降低(P<0.05);与热应激组相比,试验Ⅳ组肉鸡血清ALB含量显著提高(P<0.05)。随着HEP添加比例的提高,热应激7 d时,肉鸡血清ALB含量呈线性提高(P<0.05)。
表4 HEP对热应激肉鸡血清生化指标的影响

Table 4 Effects of HEP on serum biochemical indices of broilers under heat stress

项目
Items
常温对照组
Normal temperature
control group
热应激组
Heat stress
group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
试验Ⅲ组
Experimental
group Ⅲ
试验Ⅳ组
Experimental
group Ⅳ
均值
标准误
SEM
PP-value
方差分析
ANOVA
线性
Linear
二次
Quadratic
第7天 Day 7
总蛋白 TP/(g/L) 29.00 31.00 27.75 32.50 28.25 31.25 0.79 0.382 0.490 0.664
球蛋白 GLB/(g/L) 20.75 22.75 20.00 24.00 20.25 22.50 0.68 0.498 0.654 0.640
白蛋白 ALB/(g/L) 9.25a 7.50c 7.75bc 8.50ab 8.00bc 9.25a 0.18 0.001 0.002 0.295
白蛋白/球蛋白 ALB/GLB 0.42 0.34 0.39 0.36 0.41 0.42 0.14 0.168 0.367 0.439
第14天 Day 14
总蛋白 TP/(g/L) 31.75 35.00 31.50 30.25 32.00 35.00 0.94 0.641 0.260 0.377
球蛋白 GLB/(g/L) 23.25 26.25 22.25 21.5 23.25 25.25 0.78 0.525 0.222 0.476
白蛋白 ALB/(g/L) 9.75a 7.25b 8.50ab 8.75ab 8.75ab 9.50a 0.21 0.002 0.115 0.539
白蛋白/球蛋白 ALB/GLB 0.42 0.29 0.40 0.41 0.38 0.38 0.15 0.109 0.621 0.729

2.4 HEP对热应激肉鸡血清免疫指标的影响

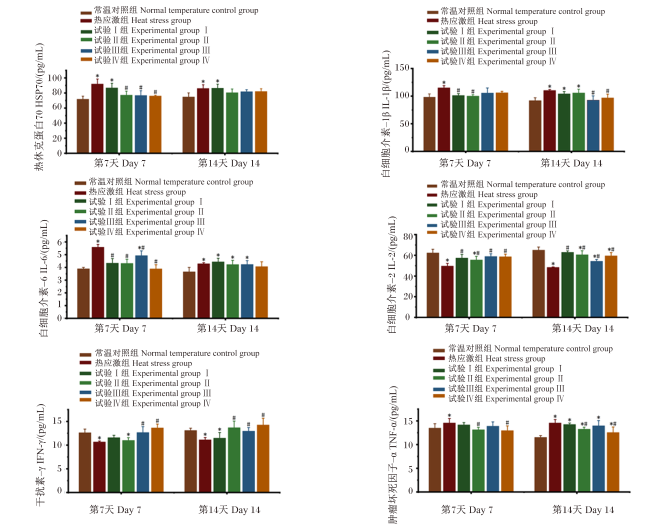
图1可知,热应激7 d时,与常温对照组相比,热应激组肉鸡血清HSP70、IL-1β、IL-6和TNF-α含量显著提高(P<0.05),血清IL-2和IFN-γ含量显著降低(P<0.05);与热应激组相比,试验Ⅰ、Ⅱ、Ⅲ和Ⅳ组肉鸡血清IL-2含量均显著提高(P<0.05),血清IL-6含量均显著降低(P<0.05),试验Ⅱ组、试验Ⅲ组和试验Ⅳ组血清HSP70含量显著降低(P<0.05),试验Ⅰ组和试验Ⅱ组血清IL-1β含量显著降低(P<0.05),试验Ⅲ组和试验Ⅳ组血清IFN-γ含量显著提高(P<0.05),试验Ⅱ组和试验Ⅳ组血清TNF-α含量显著降低(P<0.05)。热应激14 d时,与常温对照组相比,热应激组肉鸡HSP70、IL-1β、IL-6和TNF-α含量显著提高(P<0.05),血清IL-2和IFN-γ含量显著降低(P<0.05);与热应激组相比,试验Ⅰ、Ⅱ、Ⅲ和Ⅳ组肉鸡血清IL-2含量均显著提高(P<0.05),试验Ⅱ组、试验Ⅲ组和试验Ⅳ组血清IFN-γ含量显著提高(P<0.05),试验Ⅲ组和试验Ⅳ组肉鸡IL-1β含量显著降低(P<0.05),试验Ⅱ组和试验Ⅳ组血清TNF-α含量显著降低(P<0.05)。
图1 HEP对热应激肉鸡血清免疫指标的影响

与常温对照组相比,*表示差异显著(P<0.05);与热应激组相比,#表示差异显著(P<0.05)。图2同。

Fig.1 Effects of HEP on serum immune indices of broilers under heat stress

Compared with normal temperature control group, * mean significant difference (P<0.05), and compared with heat stress group, # mean significant difference (P<0.05). The same as Fig.2.

2.5 HEP对热应激肉鸡血清抗氧化指标的影响

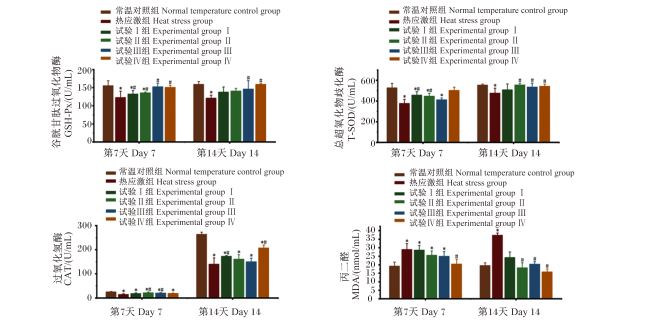
图2可知,热应激7 d时,与常温对照组相比,热应激组肉鸡血清GSH-Px、T-SOD和CAT活性显著降低(P<0.05),血清MDA含量显著提高(P<0.05);与热应激组相比,试验Ⅰ、Ⅱ、Ⅲ和Ⅳ组肉鸡血清GSH-Px活性均显著提高(P<0.05),试验Ⅰ组和试验Ⅱ组血清T-SOD活性显著提高(P<0.05),试验Ⅱ组和试验Ⅲ组血清CAT活性显著提高(P<0.05),试验Ⅳ组血清MDA含量显著降低(P<0.05)。热应激14 d时,与常温对照组相比,热应激组肉鸡血清GSH-Px、T-SOD和CAT活性显著降低(P<0.05),血清MDA含量显著提高(P<0.05);与热应激组相比,试验Ⅲ组和试验Ⅳ组肉鸡血清GSH-Px活性显著提高(P<0.05),试验Ⅱ组、试验Ⅲ组和试验Ⅳ组血清T-SOD活性显著提高(P<0.05),试验Ⅰ组和试验Ⅳ组血清CAT活性显著提高(P<0.05),试验Ⅱ组、试验Ⅲ组和试验Ⅳ组血清MDA含量显著降低(P<0.05)。
图2 HEP对热应激肉鸡血清抗氧化指标的影响

Fig.2 Effects of HEP on serum antioxidant indices of broilers under heat stress

2.6 HEP对热应激肉鸡血清代谢组学的影响

2.6.1 PCA

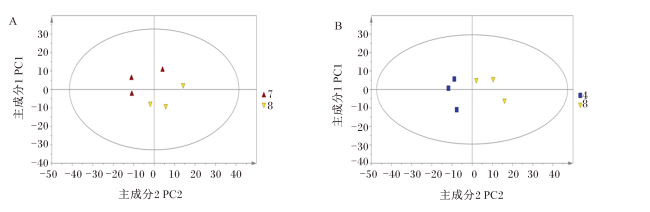
图3可知,热应激7 d时,常温对照组、热应激组和试验Ⅳ组肉鸡血清所有样本属于95%的有效置信区间范围内。由图3-A可知,常温对照组和热应激组血清样本分别位于图的上下2侧,存在明显的分离,表明热应激建模成功;由图3-B可知,试验Ⅳ组和热应激组血清样本分别位于图的左右2侧,存在明显的分离,表明与热应激组相比,试验Ⅳ组肉鸡血清代谢物发生了明显变化,且组间的差异性真实存在。
图3 血清样本液相色谱-质谱联用PCA得分图

4代表试验Ⅳ组样本,7代表常温对照组样本,8代表热应激组样本。图4同。

Fig.3 PCA score diagram of serum samples by LC-MS

4 represented samples in experimental group Ⅳ, 7 represented samples in normal temperature control group, and 8 represented samples in heat stress group. The same as Fig.4.

2.6.2 OPLS-DA

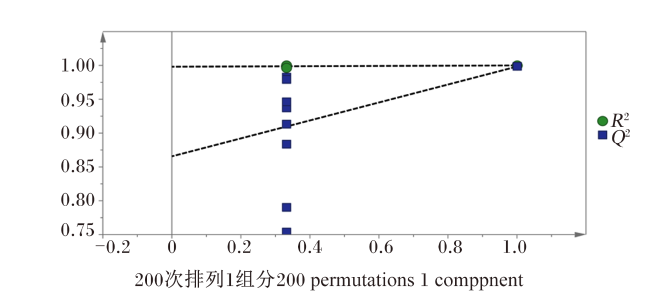
由于相关变量的影响,差异变量会分散到更多的主成分上,无法进行更好的可视化和后续分析,所以采用OPLS-DA。评价OPLS-DA模型的预测参数有R2XR2YQ2,其中R2XR2Y分别表示所建模型对XY矩阵的解释率,Q2表示模型的预测能力,这3个指标越接近于1时表示模型越稳定可靠,Q2>0.5时可认为是有效的模型,Q2>0.9时为出色的模型。
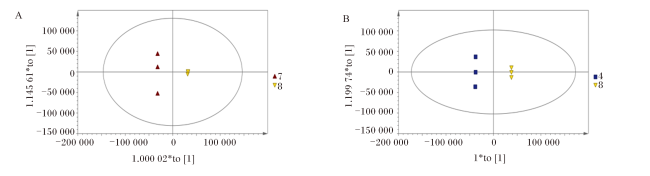
热应激7 d时,由图4-A可知,常温对照组和热应激组肉鸡血清样品OPLS-DA得分图R2X=0.897、R2Y=1.000、Q2=0.993,2组血清样品在坐标轴上分离较好,表明差异真实存在;由图4-B可知,试验Ⅳ组和热应激组肉鸡血清样品OPLS-DA得分图R2X=0.887、R2Y=1.000、Q2=0.994,同样2组血清样品在坐标轴上分离较好,进一步表明热应激和热应激添加HEP造成了肉鸡血清代谢物的变化。
图4 血清样本液相色谱-质谱联用OPLS-DA得分图

Fig.4 OPLS-DA score diagram of serum samples by LC-MS

2.6.3 OPLS-DA模型的200次响应验证图

图5可知,为检查OPLS-DA模型可靠性,进一步开展200次排列验证。结果表明,OPLS-DA模型可以很好解释2组样本之间差异。同时,随着置换保留度逐渐降低,置换的Y变量比例增大,随机模型的R2Q2均逐渐下降,说明OPLS-DA模型不存在过拟合现象。由此可见,模型稳健性良好,可根据变量重要性投影(VIP)值分析筛选其差异代谢物。
图5 使用200次响应法对OPLS-DA模型验证图

Fig.5 OPLS-DA model verification diagram using 200 times response method

2.6.4 血清差异代谢物鉴定

通过OPLS-DA分析后,采取差异倍数(FC)和P值相结合的方法来筛选差异代谢物。代谢物在对照组和试验组中差异倍数为1.2倍以上或0.8以下,则认为差异显著(P<0.05)。在上述的基础上一共筛选出13种差异代谢物。
表5可知,热应激7 d时,常温对照组和热应激组之间共鉴定出5种显著性差异代谢物(VIP>0,P<0.05),其中,与热应激组相比,常温对照组肉鸡血清差异代谢物大豆卵磷脂含量显著下降(P<0.05),血清游离酸等4种差异代谢物含量显著上升(P<0.05)。
表5 常温对照组和热应激组肉鸡血清差异代谢物鉴定

Table 5 Identification of differential metabolites in serum of broilers between normal temperature control group and heat stress group

代谢物
Metabolites
结构式
Structural
formula
保留时间
Retention
time/min
变量重
要性投影
VIP
差异倍数
FC
P
P-value
变化趋势
Change
trend
大豆卵磷脂 Phosphatidylcholine C46H84NO8P 14.65 1.68 -6.99 <0.001
植物鞘氨醇 2-amino-1,3,4-octadecanetriol C18H39NO3 10.63 1.02 1.50 0.005
L-精氨酰-L-谷氨酰胺基-D-色氨酰-L-
苯丙氨酸基-D-色氨酰-L-亮氨酸基-
L-去甲亮氨酸胺
L-arginyl-L-glutaminyl-D-tryptophyl-L-
phenylalanyl-D-tryptophyl-L-leucyl-L-
norleucinamide
C54H74N14O8 12.88 0.47 0.27 0.026
尿嘧啶核苷
1-pentofuranosyl-2,4(1H,3H)-
pyrimidinedione
C9H12N2O6 12.26 0.34 0.36 0.005
游离酸 Free acid C6H6O8S2 0.85 0.50 1.34 0.045

↓和↑分别表示常温对照组与热应激组相比该代谢物含量的上升与下降。P值由t检验获得。

↓ and ↑ represented increase and decrease of the metabolite content in normal temperature control group compared with heat stress group, respectively. P-value was obtained by t-test.

表6可知,热应激7 d时,试验Ⅳ组和热应激组共鉴定出10种显著性差异代谢物(VIP>0,P<0.05),其中,与热应激组相比,试验Ⅳ组肉鸡血清大豆卵磷脂、N-甲基乙醇胺磷酸盐和蛋氨酸亚砜3种差异代谢物含量显著下降(P<0.05),血清胞苷、胆碱等7种差异代谢物含量显著上升(P<0.05)。
表6 试验Ⅳ组和热应激组肉鸡血清差异代谢物鉴定

Table 6 Identification of serum differential metabolites of broilers between experimental group Ⅳ and heat stress group

代谢物
Metabolites
结构式
Structural
formula
保留时间
Retention
time/min
变量重
要性投影
VIP
差异倍数
FC
P
P-value
变化趋势
Change
trend
胆碱 Choline C5H13NO 0.78 2.56 0.48 0.031
1-硬脂酰-2-羟基-sn-甘油-3-PE
1-stearoyl-2-hydroxy-sn-glycero-3-PE
C23H48NO7P 14.05 1.48 0.50 0.005
2-(2-苯并噻唑基硫代)乙醇
2-(2-benzothiazolyl thio) ethanol
C9H9NOS2 9.74 2.07 10.46 0.011
大豆卵磷脂 Phosphatidylcholine C46H84NO8P 14.65 1.51 -7.45 <0.001
N-甲基乙醇胺磷酸盐
N-methylethanolamine phosphate
C3H10NO4P 0.77 1.31 -1.20 0.041
蛋氨酸亚砜 Methionine sulfoxide C5H11NO3S 1.14 0.63 -0.48 0.033
胞嘧啶核苷 Cytidine C9H13N3O5 0.84 0.62 0.75 0.018
尿嘧啶核苷
1-pentofuranosyl-2,4(1H,3H)-
pyrimidinedione
C9H12N2O6 1.16 0.46 0.60 0.020
3-巯基-5,6-二苯基-1,2,4-三嗪
3-mercapto-5,6-diphenyl-1,2,4-triazine
C15H11N3S 0.83 0.45 0.62 0.021
苯并[a]蒽 12-azabenz[a]anthracene C17H11N 0.84 0.46 1.50 0.007

↓和↑分别表示试验Ⅳ组与热应激组相比该代谢物含量的上升与下降。P值由t检验获得。

↓ and ↑ represented increase and decrease of the metabolite content in experimental group Ⅳ compared with heat stress group, respectively. P-value was obtained by t-test.

2.6.5 代谢通路

表7可知,与常温对照组相比,热应激组肉鸡血清参与嘧啶代谢通路的中间产物含量发生显著变化,其中胞苷一磷酸含量显著下降(P<0.05);与热应激组相比,试验Ⅳ组肉鸡血清参与嘧啶代谢(胞苷、胞苷一磷酸),甘氨酸、丝氨酸和苏氨酸代谢(胆碱)以及甘油磷脂代谢(N-甲基乙醇胺磷酸盐)等通路的中间产物含量发生变化,出现显著上升或下降(P<0.05)。
表7 各组肉鸡血清代谢通路

Table 7 Serum metabolic pathways of broilers in each group

代谢通路
Metabolic
pathway
差异代谢物
Differential
metabolites
保留时间
Retention
time/min
变化趋势 Change trend
热应激组vs
常温对照组
Heat stress group
vs normal
temperature
control group
试验Ⅳ组vs
热应激组
experimental group
Ⅳ vs heat
stress group
嘧啶代谢 胞苷 0.84 - ↑#
Pyrimidine metabolism 胞苷一磷酸 14.65 ↓** ↓##
甘氨酸、丝氨酸、苏氨酸代谢
Glycine, serine and threonine metabolism
胆碱 0.78 - ↑#
甘油磷脂代谢 胆碱 0.78 - ↑#
Glycerophospholipid metabolism N-甲基乙醇胺磷酸盐 14.66 - ↓#

↓和↑分别代表代谢物含量的上升和下降,-表示没有变化。与常温对照组相比,**表示P<0.01;与热应激组相比,#表示P<0.05,##表示P<0.01。

↓and ↑ represented increase and decrease of metabolite content, respectively, and - mean no change. Compared with normal temperature control group, ** mean P<0.01; compared with heat stress group, # mean P<0.05, and ## mean P<0.01.

3 讨论

3.1 HEP对热应激肉鸡生长性能的影响

高温环境会使家禽处于热应激状态,导致家禽饲粮摄入量降低,生长发育受阻,从而降低肉鸡的生长性能[16]。Liu等[17]研究发现,肉鸡生长性能的下降是由于热应激环境下生理代谢紊乱所引起,且热应激会导致肉鸡ADG和ADFI显著降低。Ibtisham等[18]研究表明,饲粮中添加中草药提取物可显著增加热应激肉鸡ADFI,并提高肉鸡生长性能。本试验中,热应激导致肉鸡ADG和ADFI显著降低,F/G显著提高;同时,饲粮中添加1.6%的HEP可使热应激肉鸡ADG和ADFI显著提高,F/G显著降低,这与前人研究结果一致,由此说明HEP对热应激状态下肉鸡生长发育有一定的改善作用,从而可维持其生长性能。

3.2 HEP对热应激肉鸡血液生理生化指标的影响

血液是动物机体物质运输的重要载体,血液生理生化指标则是机体器官组织正常生理功能的重要反映。相关研究表明,热应激情况下,家禽血液生理生化指标发生明显改变,组织细胞可能出现线粒体功能损伤进而诱导发生氧化应激[19]。RBC是血液中数量最多的细胞,其作为血液抗氧化重要的组成部分,能够通过自己的细胞防御机制来有效终止自由基反应[20]。本研究发现,与常温对照组相比,热应激7 d时,热应激组肉鸡血液RBC数量显著降低,这可能是高温导致RBC失去一些中间代谢物和参与抗氧化所需要的一些酶,导致细胞膜扭曲,从而加速RBC溶解,进而致使RBC数量下降[21]。同时,本研究还发现,热应激7 d时,热应激组肉鸡血液HGB含量较常温对照组显著降低,这也可能是机体在热应激条件下,处于一种高温缺氧环境,为了满足机体的供氧需求,需要大量的氧合HGB产生,进而导致HGB含量降低[22]。然而,饲粮中添加1.2%和1.6%HEP后,热应激7 d时肉鸡血清RBC数量和HGB含量都显著提高,这表明HEP能够改善细胞氧化应激状态,清除氧化生成的自由基,减少氧化对红细胞的损害,增加RBC数量和HGB含量,从而减少热应激对机体带来的不利影响。WBC是动物机体血液中重要的免疫细胞,对血液免疫功能发挥有着重要作用,任何炎症感染和急性疾病都有减少或增加WBC数量的可能[23]。Kamel等[24]研究发现,热应激能够降低WBC活性和数量,降低血液免疫功能。本研究发现,热应激7和14 d,热应激组肉鸡血液WBC数量较常温对照组显著降低,这进一步证实了前人的研究结果,这可能是由于高温致使淋巴细胞的凋亡增加而引起的[25]。然而,饲粮中添加1.6%HEP可使热应激肉鸡血液WBC数量显著提高,这表明HEP能够促进肉鸡WBC生产,增强机体防御能力,调节机体免疫功能。
血清蛋白质主要通过肝脏合成,能够参与机体许多生理功能。血清蛋白质主要包括球蛋白和白蛋白2种,其中血清球蛋白与机体免疫力密切相关,当体内出现病原微生物感染时,血清球蛋白含量明显升高;血清白蛋白则是一种急性反应物和营养状态标志物,主要参与调节血浆渗透压以及各种内源性或外源性化合物的运输,由于独特的生化结构,其还是机体最有效的防御蛋白之一[26]。本研究发现,与常温对照组相比,热应激7和14 d时,热应激组肉鸡血清总蛋白和球蛋白含量无显著差异,但血清ALB含量却显著降低,这主要是由于热应激导致干细胞合成ALB功能受阻,造成ALB含量降低[27]。然而,饲粮中添加1.6%HEP可提高热应激肉鸡血清ALB含量,这表明HEP在一定程度上改善了肝细胞的氧化稳定性,减轻了热应激导致的肝脏损伤,并增加了淋巴细胞产生免疫球蛋白的能力。

3.3 HEP对热应激肉鸡血清免疫指标的影响

细胞因子作为调节机体免疫反应的重要介质,在免疫功能中发挥着关键作用,它不仅可以调节机体防御机制,还可以维持生理稳态。在大多数情况下,细胞因子的分泌受到应激因子、炎症反应、机械损伤和细胞因子本身的刺激所影响[28]。在高温情况下,机体产生应激反应,应激状态引起动物机体消化功能异常,并诱导肠道内有害菌大量释放内毒素,从而促进炎性细胞因子产生[29]。本试验结果显示,与常温对照组相比,热应激7和14 d时,热应激组肉鸡血清中炎性细胞因子IL-1β、IL-6和TNF-α含量显著提高,这进一步证实了前人的研究结论,同时也暗示热应激可能导致免疫系统中巨噬细胞增殖,进而分泌多种炎性因子用于缓解机体的炎症反应,加强对机体的保护。不过,本试验也发现,与常温对照组相比,热应激7和14 d时,热应激组肉鸡血清中抗炎细胞因子IL-2和IFN-γ含量显著降低,这可能是因为高温热应激状态下,肉鸡炎性细胞因子的大量释放抑制了抗炎细胞因子的分泌[30]。HEP是从猴头菇中提取的多糖,其能够调节动物机体多种细胞因子的分泌,进而影响机体免疫功能状态。已有研究表明,HEP能够通过促进T和B淋巴细胞的增殖,进而促进细胞因子IL-2和IFN-γ的分泌,改善机体适应性免疫[31]。本试验发现,饲粮中添加1.6%HEP可显著降低热应激肉鸡血清炎性细胞因子含量,这进一步证明HEP可以减轻机体的炎症反应,缓解热应激带来的免疫抑制。热休克蛋白是细胞暴露在应激环境下产生的一种蛋白质,主要功能是纠正折叠、提供保护及增强细胞活力[32]。其中,HSP70是动物机体热应激情况下产生保护作用的主要蛋白,被认为是衡量生物体热应激程度的关键指标[33]。在热应激期间,随着蛋白表达的增加或热休克转录因子的活性增强,导致HSP70含量升高。早期的研究证明,暴露于高温环境的肉鸡,血清和组织中的HSP70含量都普遍较高[34]。本试验发现,与常温对照组相比,热应激7和14 d时,热应激组肉鸡血清HSP70含量显著提高,这与前人的研究结果一致。同时,与热应激组相比,饲粮中添加1.6%HEP可显著降低肉鸡血清HSP70含量,这说明HEP可通过影响HSP70分泌进而改善处在热应激环境中的肉鸡的健康状况。

3.4 HEP对热应激肉鸡血清抗氧化指标的影响

研究证实,家禽长时间在高温环境下饲养,容易出现热应激,造成机体抗氧化系统受损,产生过量的活性氧和自由基,进而损伤细胞结构,影响蛋白质功能。动物机体的抗氧化系统包括酶促体系和非酶促体系,其中酶促体系主要由GSH-Px、超氧化物歧化酶(SOD)和CAT等组成,而非酶促体系包括维生素、氨基酸和金属蛋白质等。酶促体系是机体抗氧化功能发挥的主要体系,抗氧化酶通过催化超氧化物、分解过氧化氢及消除氧自由基进而调节机体氧化损伤的速度和进程,维持细胞处于“氧化还原稳态”,保护细胞免受热应激带来的氧化损伤[35]。MDA是细胞脂质过氧化的标志性产物,组织细胞中MDA含量的多少可直接反映脂质过氧化状态,因此其是评价机体氧化程度的重要指标之一[36]。本试验发现,与常温对照组相比,热应激7和14 d时,热应激组肉鸡血清MDA含量均显著提高,而血清GSH-Px、T-SOD和CAT活性均显著降低;但饲粮中添加1.6%HEP可提高热应激肉鸡血清GSH-Px、T-SOD和CAT活性,降低血清MDA含量,其数值基本接近甚至优于常温对照组。杜志强等[37]研究表明,HEP可以显著提高小鼠血清T-SOD和GSH-Px活性,降低血清MDA含量,且提高水平与HEP的添加水平呈正相关,这充分表明添加适量的HEP可增强机体抗氧化功能,减少热应激造成的氧化损伤。

3.5 HEP对热应激肉鸡血清物质代谢的影响

嘧啶代谢是机体重要的代谢途径之一,嘧啶合成后被整合到核酸当中,而胞苷一磷酸是含有嘧啶碱基的核苷酸,其在动物机体细胞增殖过程中具有重要的调节作用[38]。相关研究表明,热应激会导致嘧啶代谢通路上胞苷一磷酸含量下降,阻碍糖和蛋白质的合成,影响细胞增殖[39]。本研究表明,与常温对照组相比,热应激组肉鸡血清嘧啶代谢途径中胞苷一磷酸含量显著下降,这与前人的研究结果相一致。然而,在持续热应激7 d后,与热应激组相比,饲粮中添加1.6%HEP可显著提高肉鸡血清嘧啶代谢途径中胞苷的含量,暗示HEP能够通过改善嘧啶代谢,缓解热应激对糖和脂类合成的影响。胞苷是连接嘧啶碱基上部分核糖基或脱氧核糖基的化合物,与尿苷、胸苷同为嘧啶核苷,它们除在核酸合成中起基本作用外,也是碳水化合物和脂质代谢所必需的物质,可影响肉鸡脂质代谢,减少脂肪生成[40]。已有研究表明,在饲粮中添加HEP可降低肉鸡的腹部脂肪[41],其主要是由于HEP通过促进嘧啶代谢途径上胞苷的分泌进而降低腹部脂肪。另外,有研究发现,胆碱在人和动物机体细胞之间的信号转导、神经递质合成和脂质代谢调节中起着重要作用[42]。胆碱分子可通过调节单碳代谢来调节免疫反应,对宿主抗菌免疫反应具有促进作用及对细胞感染具有诊断作用[43]。本试验发现,适量补充HEP可改善由热应激7 d导致的肉鸡血清氨基酸代谢和脂质代谢异常,这提示HEP可通过提高热应激肉鸡血清胆碱和胞苷含量,改善氨基酸代谢和脂质代谢,进而调节机体的免疫功能,增强动物体抗炎、抗菌和抗应激的能力。

4 结论

① 热应激会导致肉鸡生长性能、免疫和抗氧化功能降低,血液WBC、RBC数量及HGB含量减少,血清ALB含量降低。
② 饲粮中添加HEP可改善热应激肉鸡生长性能的降低,提高热应激肉鸡机体免疫和抗氧化功能,提高血液WBC、RBC数量和HGB含量以及血清ALB含量,并通过血清嘧啶代谢、氨基酸代谢和甘油磷脂代谢等代谢通路影响血清物质代谢,进而缓解热应激对肉鸡的损伤。
③ 在本试验条件下,肉鸡饲粮中以添加1.6%HEP效果较佳。
[1]
SAEED M, ABBAS G, ALAGAWANY M, et al. Heat stress management in poultry farms:a comprehensive overview[J]. Journal of Thermal Biology, 2019, 84:414-425.

DOI

[2]
ZABOLI G, HUANG X, FENG X, et al. How can heat stress affect chicken meat quality?-A review[J]. Poultry Science, 2019:1551-1556.

[3]
FARAG M R, ALAGAWANY M. Physiological alterations of poultry to the high environmental temperature[J]. Journal of Thermal Biology, 2018, 76:101-106.

DOI PMID

[4]
WEN C, LIU Y, YE Y W, et al. Effects of gingerols-rich extract of ginger on growth performance,serum metabolites,meat quality and antioxidant activity of heat-stressed broilers[J]. Journal of Thermal Biology, 2020, 89:102544.

DOI

[5]
SURAI P F, KOCHISH I I, FISININ V I, et al. Antioxidant defence systems and oxidative stress in poultry biology:an update[J]. Antioxidants, 2019, 8(7):235.

DOI

[6]
LAURIDSEN C. From oxidative stress to inflammation:redox balance and immune system[J]. Poultry Science, 2019, 98(10):4240-4246.

DOI

[7]
QUINTEIRO-FILHO W M, RIBEIRO A, FERRAZ-DE-PAULA V, et al. Heat stress impairs performance parameters,induces intestinal injury,and decreases macrophage activity in broiler chickens[J]. Poultry Science, 2010, 89(9):1905-1914.

DOI

[8]
AKBARIAN A, MICHIELS J, DEGROOTE J, et al. Association between heat stress and oxidative stress in poultry;mitochondrial dysfunction and dietary interventions with phytochemicals[J]. Journal of Animal Science and Biotechnology, 2016, 7:37.

DOI

[9]
ABD EL-HACK M E, ABDELNOUR S A, TAHA A E, et al. Herbs as thermoregulatory agents in poultry:an overview[J]. Science of the Total Environment, 2020, 703:134399.

DOI

[10]
HE X R, WANG X X, FANG J C, et al. Structures,biological activities,and industrial applications of the polysaccharides from Hericium erinaceus (Lion’s Mane) mushroom:a review[J]. International Journal of Biological Macromolecules, 2017, 97:228-237.

DOI

[11]
CHONG P S, FUNG M L, WONG K H, et al. Therapeutic potential of Hericium erinaceus for depressive disorder[J]. International Journal of Molecular Sciences, 2019, 21(1):163.

DOI

[12]
REN Y L, GENG Y, DU Y, et al. Polysaccharide of Hericium erinaceus attenuates colitis in C57BL/6 mice via regulation of oxidative stress,inflammation-related signaling pathways and modulating the composition of the gut microbiota[J]. Journal of Nutritional Biochemistry, 2018, 57:67-76.

DOI

[13]
LIU Z N, LIAO L Y, CHEN Q, et al. Effects of Hericium erinaceus polysaccharide on immunity and apoptosis of the main immune organs in muscovy duck reovirus-infected ducklings[J]. International Journal of Biological Macromolecules, 2021, 171:448-456.

DOI

[14]
黄丽娜, 姜慧慧, 王洁, 等. 猴头菇多糖对呼肠孤病毒感染番鸭肠道黏膜免疫及抗氧化能力的影响[J]. 畜牧兽医学报, 2015, 46(9):1671-1677.

HUANG L N, JANG H H, WANG J, et al. Effects of Hericium erinaceus polysaccharide on intestinal mucosal immune and antioxidant capacity of muscovy ducks infected with reovirus[J]. Acta Veterinaria et Zootechnica Sinica, 2015, 46(9):1671-1677.

[15]
常玉, 冯京海, 张敏红. 环境温度、湿度等因素对家禽体温调节的影响及评估模型[J]. 动物营养学报, 2015, 27(5):1341-1347.

CHANG Y, FENG J H, ZHANG M H. Effects of ambient temperature,humidity on poultry thermoregulation and the evaluation model[J]. Chinese Journal of Animal Nutrition, 2015, 27(5):1341-1347. (in Chinese)

[16]
LUO J X, SONG J, LIU L Z, et al. Effect of epigallocatechin gallate on growth performance and serum biochemical metabolites in heat-stressed broilers[J]. Poultry Science, 2018, 97(2):599-606.

DOI PMID

[17]
LIU L L, HE J H, XIE H B, et al. Resveratrol induces antioxidant and heat shock protein mRNA expression in response to heat stress in black-boned chickens[J]. Poultry Science, 2014, 93(1):54-62.

DOI PMID

[18]
IBTISHAM F, NAWAB A, NIU Y F, et al. The effect of ginger powder and Chinese herbal medicine on production performance,serum metabolites and antioxidant status of laying hens under heat-stress condition[J]. Journal of Thermal Biology, 2019, 81:20-24.

DOI

[19]
HUANG C, JIAO H, SONG Z, et al. Heat stress impairs mitochondria functions and induces oxidative injury in broiler chickens[J]. Journal of Animal Science, 2015, 93(5):2144-2153.

DOI PMID

[20]
PINHO D, RODRIGUES R O, FAUSTINO V, et al. Red blood cells radial dispersion in blood flowing through microchannels:the role of temperature[J]. Journal of Biomechanics, 2016, 49(11):2293-2298.

DOI

[21]
TSANTES A E, BONOVAS S, TRAVLOU A, et al. Redox imbalance,macrocytosis,and RBC homeostasis[J]. Antioxidants & Redox Signaling, 2006, 8(7/8):1205-1216.

[22]
DADGAR S, GREENE E, DHAMAD A, et al. Diffuse reflectance spectroscopy reveals heat stress-induced changes in hemoglobin concentration in chicken breast[J]. Scientific Reports, 2021, 11(1):3649.

DOI PMID

[23]
CARRICK J B, BEGG A P. Peripheral blood leukocytes[J]. The Veterinary Clinics of North America Equine Practice, 2008, 24(2):239-259.

DOI

[24]
KAMEL N N, AHMED A M H, MEHAISEN G M K, et al. Depression of leukocyte protein synthesis, immune function and growth performance induced by high environmental temperature in broiler chickens[J]. International Journal of Biometeorology, 2017, 61(9):1637-1645.

DOI PMID

[25]
蔡亚非, 杜娟, 张利军, 等. 热应激奶牛外周血淋巴细胞凋亡相关基因表达及血液学分析[J]. 动物学报, 2005, 51(2):286-293.

CAI Y F, DU J, ZHANG L J, et al. Expression of apoptosis-related genes and blood index in lymphocytes in peripheral blood of dairy cows[J]. Acta Zoologica Sinica, 2005, 51(2):286-293. (in Chinese)

[26]
SITAR M E, AYDIN S, CAKATAY U. Human serum albumin and its relation with oxidative stress[J]. Clinical Laboratory, 2013, 59(9/10):945-952.

[27]
ARTIGAS A, WERNERMAN J, ARROYO V, et al. Role of albumin in diseases associated with severe systemic inflammation:pathophysiologic and clinical evidence in sepsis and in decompensated cirrhosis[J]. Journal of Critical Care, 2016, 33:62-70.

DOI

[28]
RAHMAN M M, EO S K. Prospects and challenges of using chicken cytokines in disease prevention[J]. Vaccine, 2012, 30(50):7165-7173.

DOI PMID

[29]
DE BOEVER S, BEYAERT R, VANDEMAELE F, et al. The influence of age and repeated lipopolysaccharide administration on body temperature and the concentration of interleukin-6 and IgM antibodies against lipopolysaccharide in broiler chickens[J]. Avian Pathology, 2008, 37(1):39-44.

DOI PMID

[30]
GADDE U D, OH S, LEE Y, et al. Dietary Bacillus subtilis-based direct-fed microbials alleviate LPS-induced intestinal immunological stress and improve intestinal barrier gene expression in commercial broiler chickens[J]. Research in Veterinary Science, 2017, 114:236-243.

DOI

[31]
WU F F, ZHOU C H, ZHOU D D, et al. Structure characterization of a novel polysaccharide from Hericium erinaceus fruiting bodies and its immunomodulatory activities[J]. Food & Function, 2018, 9(1):294-306.

[32]
AL-ZGHOUL M B. Thermal manipulation during broiler chicken embryogenesis increases basal mRNA levels and alters production dynamics of heat shock proteins 70 and 60 and heat shock factors 3 and 4 during thermal stress[J]. Poultry Science, 2018, 97(10):3661-3670.

DOI

[33]
HUMAM A M, LOH T C, FOO H L, et al. Supplementation of postbiotic RI11 improves antioxidant enzyme activity,upregulated gut barrier genes,and reduced cytokine,acute phase protein,and heat shock protein 70 gene expression levels in heat-stressed broilers[J]. Poultry Science, 2021, 100(3):100908.

DOI

[34]
BAXTER M F A, GREENE E S, KIDD M T, et al. Water amino acid-chelated trace mineral supplementation decreases circulating and intestinal HSP70 and proinflammatory cytokine gene expression in heat-stressed broiler chickens[J]. Journal of Animal Science, 2020, 98(3):skaa049.

DOI

[35]
HE L, HE T, FARRAR S, et al. Antioxidants maintain cellular redox homeostasis by elimination of reactive oxygen species[J]. Cellular Physiology and Biochemistry, 2017, 44(2):532-553.

DOI PMID

[36]
AYALA A, MUÑOZ M F, ARGÜELLES S. Lipid peroxidation:production,metabolism,and signaling mechanisms of malondialdehyde and 4-hydroxy-2-nonenal[J]. Oxidative Medicine and Cellular Longevity, 2014, 2014:360438.

[37]
杜志强, 杨晨晨, 王建英. 猴头菇多糖对小鼠血清抗氧化能力的影响[J]. 食品研究与开发, 2011, 32(9):56-58.

DU Z Q, YANG C C, WANG J Y. The Influence of Hericium erinaceus polysaccharide to the antioxitation capacity of mice serum[J]. Food Research and Development, 2011, 32(9):56-58. (in Chinese)

[38]
TIWARI K, DUBEY V K. Fresh insights into the pyrimidine metabolism in the trypanosomatids[J]. Parasites & Vectors, 2018, 11(1):87.

[39]
HUANG M, GRAVES L M. De novo synthesis of pyrimidine nucleotides;emerging interfaces with signal transduction pathways[J]. Cellular and Molecular Life Sciences CMLS, 2003, 60(2):321-336.

DOI

[40]
应国清, 石陆娥, 陈建澍. 高效液相色谱法测定胞苷酸混合液中各组分的含量[J]. 中国生化药物杂志, 2005, 26(1):41-42.

YING G Q, SHI L E, CHEN J S. Determination of cytidylates by HPLC[J]. Chinese Journal of Biochemical Pharmaceutics, 2005, 26(1):41-42. (in Chinese)

[41]
WANG C, ZHAO F, LI Z, et al. Effects of resveratrol on growth performance,intestinal development,and antioxidant status of broilers under heat stress[J]. Animals, 2021, 11(5):1427.

DOI

[42]
HOLLENBECK C B. An introduction to the nutrition and metabolism of choline[J]. Central Nervous System Agents in Medicinal Chemistry, 2012, 12(2):100-113.

DOI PMID

[43]
SNIDER S A, MARGISON K D, GHORBANI P, et al. Choline transport links macrophage phospholipid metabolism and inflammation[J]. Journal of Biological Chemistry, 2018, 293(29):11600-11611.

DOI PMID

Outlines

/