RESEARCH PAPER

Plasma Metabolomics Analysis of Yili Horses at Different Race Distances after Racing

  • WANG Jianwen , 1, 2 ,
  • YAO Xinkui 1, 2 ,
  • ZENG Yaqi 1, 2 ,
  • WANG Chuankun 1 ,
  • REN Wanlu 1 ,
  • MA Chaoxin 1 ,
  • MENG Jun , 1, 2, *
Expand
  • 1 Research Institute of Horse Industry, College of Animal Science, Xinjiang Agricultural University, Urumqi 830052, China
  • 2 Xinjiang Key Laboratory of Equine Breeding and Exercise Physiology, Urumqi 830052, China
*associate professor, E-mail:

Received date: 2022-12-09

  Online published: 2023-06-08

Abstract

The aim of this study was to analyze post-race plasma metabolite differences in Yili horses at different race distances using non-targeted metabolomics. The four fastest horses participating in the 2 000 and 12 000 m Yili horses specialized series were selected respectively and plasma was prepared from jugular venous blood collected within 5 min after racing. Non-targeted metabolomic assays based on LC-MS were performed to screen for differential metabolites after different race distances and to perform pathway enrichment analysis. The results showed that a total of 53 differential metabolites were screened in the plasma of the 2 000 m group compared with the 12 000 m group, of which 14 differential metabolites were significantly up-regulated (P<0.05) and 39 differential metabolites were significantly down-regulated (P<0.05). The differential metabolites were significantly enriched to the pathway of ubiquinone and other terpenoid-quinone biosynthesis, and trans-cinnamic acid and L-tyrosine contents in this metabolic pathway were down-regulated. This shows that plasma contents of threonine and DL-lysine are higher in 12 000 m race horses, while plasma content of N ε-acetyll-lysine were higher in 2 000 m race horses. The use of metabolomics can guide the development of special training programs for Yili horses over different distances, post-race fatigue recovery and selection of excellent horses.

Cite this article

WANG Jianwen , YAO Xinkui , ZENG Yaqi , WANG Chuankun , REN Wanlu , MA Chaoxin , MENG Jun . Plasma Metabolomics Analysis of Yili Horses at Different Race Distances after Racing[J]. Chinese Journal of Animal Nutrition, 2023 , 35(6) : 3832 -3842 . DOI: 10.12418/CJAN2023.356

运动对代谢途径的影响已在人类和动物模型中得到广泛研究。马匹在比赛过程中,由于运动强度较大,使得肌肉运动强度及持续时间均较平时会有所提升,能量消耗也会急剧上升,马匹将会面临较高的代谢压力[1]。在比赛后,由于经过剧烈运动,马匹代谢物将会发生变化,导致马机体内的环境也发生改变[2],将会引起运动疲劳等现象发生,如果不能得到有效恢复,将会面临一定的运动损伤风险。在耐力赛马中,有30%~70%的参赛马匹会因为各种健康状况而被淘汰[3]。因此,研究不同比赛途程马匹代谢组差异,将有助于更好地了解赛马运动生理机能,并根据比赛距离制定专项训练、赛后恢复及健康养殖与营养调控方案,降低马匹运动损伤风险,提高赛马福利。以往研究结果显示,运动必然会消耗营养和能量,提高新陈代谢,产生更多代谢产物,内源性代谢产物含量也会发生变化[4],引起生物体液(如血液、尿液、唾液等)代谢发生改变[5]。代谢物变化会受到运动量、持续时间、运动强度等因素的影响,纯血马剧烈运动增加了糖酵解途径中的许多代谢物[2]。当马匹比赛距离过长或比赛强度过高时,其能量消耗将会超过机体负荷[6],从而打破机体内的代谢动态平衡[7],严重时将可能影响到赛马健康及比赛寿命。代谢组分析是一种用于代谢物综合分析的方法,在体育科学领域已得到普遍应用。开展运动马代谢组学研究,区别不同运动类型、力量、强度下代谢物变化,识别与运动相关的代谢组学特征,能更好理解比赛过程中的能量来源[8],进一步识别出与运动表现、疲劳等相关的标志物。目前,关于不同比赛强度马匹代谢通路变化的报道较少,伊犁马是我国自主培育的优秀运动马品种,其比赛性能在国产马中处于领先水平[9],但关于其运动生理机制还尚不完全清楚。因此,本研究以参加不同比赛距离为切入点,利用代谢组学技术,在不同比赛途程中筛选差异代谢物,旨在比较不同比赛途程马匹赛后代谢组差异,探索使用代谢组学评估和监测比赛强度的可行性,为不同比赛途程伊犁马专项训练方案制定及提高赛马福利提供技术参考。

1 材料与方法

1.1 试验方法

本研究以2021年5—10月每周末进行的伊犁马常态化赛事12 000和2 000 m速度赛马匹为研究对象,每周比赛获奖马匹参加当月底举行的月度赛,月度赛获奖马匹参加季度赛,季度赛获奖马匹参加年度决赛。在每场比赛结束后5 min内采集马匹颈静脉血液样本,并离心获得血浆,将获得的血浆置于-80 ℃中保存待用。在年底决赛结束后,挑选全年比赛所有场次中成绩最好的马匹比赛后血液作为本次研究的样本,其中12 000 m组和2 000 m组各4匹。所选马匹之间无亲缘关系,所有马匹均为公马,年龄3~4岁。所有比赛在同一沙地环形跑道进行,跑道长2 000 m。

1.2 液相色谱串联质谱(LC-MS/MS)分析

通过有机试剂沉淀蛋白法对样本进行代谢物提取,通过液相色谱串联质谱进行非靶向代谢组检测。色谱条件为:样品使用HypesilGoldcolumn(C18)色谱柱进行分离,柱温为40 ℃,流速为0.2 mL/min。正离子模式下采用的流动相为A相:0.1%甲酸;负离子模式下采用的流动相为A相:5 mmol/L醋酸铵(pH 9.0),流动相B相均为甲醇;洗脱梯度为0~3 min,2% B;3~10 min,100% B;10.1~12 min,2% B。质谱条件为:扫描范围选择质荷比(m/z)100~1 500;电喷雾电离源的设置如下:喷雾电压为3.5 kV;鞘气流速为35 psi;辅助气流速为10 L/min;离子传输管温度为320 ℃;辅助气加热器温度为350 ℃。

1.3 数据统计分析

下机原始数据使用CD 3.1软件,根据保留时间、质荷比等参数进行数据预处理,通过进行分子离子峰和碎片离子进行分子式预测,并与mzCloud、mzVault和Masslist数据库进行比对,用空白样本去除背景离子,并对原始定量结果进行标准化处理,计算相对定量结果。
使用KEGG、HMDB和LIPIDMaps数据库对鉴定到的代谢物进行注释。使用metaX软件对数据进行主成分分析(PCA)和偏最小二乘法判别分析(PLS-DA),得到变量重要性投影(VIP)值,并计算2组代谢物差异倍数(FC)值,以VIP>1,P<0.05且FC≥2或FC≤0.5为标准进行组间差异代谢物的筛选。
使用KEGG数据库进行代谢途径富集,当x/n>y/n时,认为该代谢途径富集;当代谢途径的P<0.05时,认为该代谢途径是显著富集。

2 结果

2.1 差异代谢物PCA

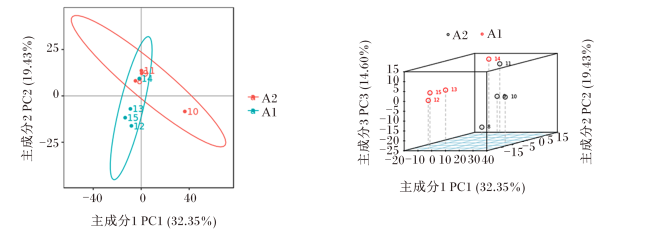
为了验证组内样本的重复性,对检测结果进行PCA,结果如图1所示,其主成分1(PC1)可以解释原始数据集的32.25%特征,主成分2(PC2)可以解释原始数据集的19.43%特征,主成分3(PC3)可以解释原始数据集的14.60%特征。差异代谢离子的PCA识别出的散点聚集,离散性较好,代表相似性好。PCA结果中2组样本组间分离明显,表明组间代谢物发生了明显变化。
图1 血浆代谢物主成分分析

A1为12 000 m组,A2为2 000 m组。下图同。

Fig.1 Principal component analysis of plasma metabolites

A1 was the 12 000 m group; A2 was the 2 000 m group.The same as below.

2.2 差异代谢物PLS-DA

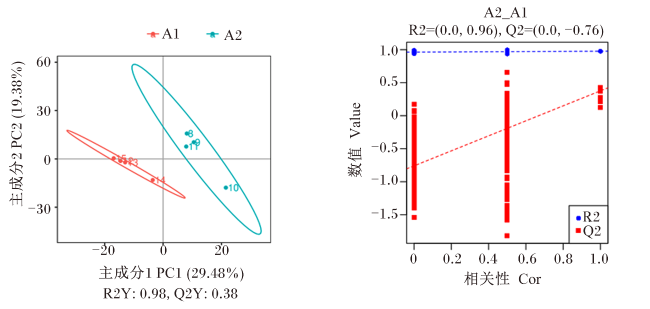
PLS-DA结果如图2所示,2 000 m组和12 000 m组的主成分模式分离显著,无重叠现象。通过分析血浆差异代谢物获得的R2Y为0.98(图2中左图所示),表明该模型能够反映2组马匹之间98%的差异;对该模型参数R2和Q2进行置换检验,结果显示(图2中右图所示)差异代谢物的R2Y值均高于Q2Y值,且Q2与Y轴的截距小于0,说明样本数据描述良好,没有过拟合现象,2组样品检测结果间存在差异。
图2 血浆代谢物偏最小二乘法判别分析

左图中R2Y代表该模型解释率;Q2Y代表该模型预测能力;右图中R2、Q2代表运用偏最小二乘回归方法建立模型的评价参数,Cor代表R2与Q2的相关性。

Fig.2 PLS-DA of plasma metabolites

R2Y in the left figure represents the explanatory rate of the model; Q2Y represents the predictive power of the model; R2 and Q2 in the right figure are the evaluation parameters of this model using the partial least squares regression method, and Cor represents the correlation between R2 and Q2.

2.3 差异代谢物分析

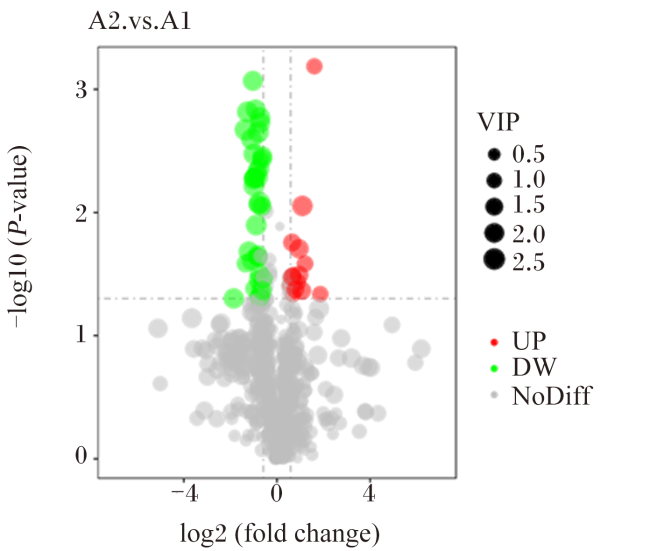
本研究中共注释到739种代谢产物,根据多变量统计分析PLS-DA获得的变量重要性VIP值,结合单变量分析FC和t检验结果,按照变量重要性VIP>1,P<0.05且FC≥2或FC≤0.5为标准进行差异代谢物筛选,2组马匹血浆样本间共筛选出53种差异代谢物。由表1可知,与12 000 m比赛马匹血浆检测结果相比,2 000 m比赛马匹血浆检测结果中含量上调的差异代谢物有14种,含量下调的差异代谢物有39种,表明这些差异代谢物可能受到马匹运动途程的影响,是不同途程赛马赛后进行监测的可能指标。这些差异代谢物主要为氨基酸、甘油磷脂类、糖类和有机酸类等及其衍生物,其中与12 000 m组血浆检测结果相比,2 000 m组血浆中氨基酸及其衍生物(2-甲基谷氨酸、Nε-乙酰左旋赖氨酸)、甘油磷脂类及其衍生物[血溶性磷脂胆碱(17∶0/18∶1)、血溶性磷脂胆碱(18∶1/19∶2)、血溶性磷脂胆碱(14∶0e/19∶1)、血溶性磷脂胆碱(14∶0e/20∶1)、7-酮基胆固醇、血溶性磷脂胆碱(18∶1e/18∶2)]、糖类及其衍生物(葡萄糖-1-磷酸二钠盐、D-核糖-1-磷酸盐)、有机酸类及其衍生物(曲酸)及核苷类(尿苷、黄嘌呤核苷、尿嘧啶)、芳香类(喹啉)等代谢产物显著上调(P<0.05),进一步揭示这些物质机体内合成增多或利用减少。火山图中每个点代表1个代谢物,显著上调的代谢物用红色点表示,显著下调的代谢物用绿色点表示,圆点大小代表VIP值,横轴表示P值,纵轴表示该组对比各物质的倍数变化,如图3所示。
表1 差异代谢物分布

Table 1 Distribution of differential metabolites

差异代谢物
Differential
metabolites
质荷比
m/z
保留时间
RT/min
变量重要
性投影值
VIP value
P
P-value
差异倍数值
FC value
上调/下调
Up/down
2-甲基谷氨酸 2-methylglutaric acid 146.06 3.32 1.19 0.000 7 3.04
(+)-α-硫辛酸 (+)-alpha-lipoic acid 206.04 1.14 2.13 0.000 9 0.49
甲硫氨酸 Methionine 149.05 1.88 2.09 0.001 5 0.53
天冬氨酰-苯丙氨酸甲基酯
Asp-Phe methyl ester
294.12 5.34 2.38 0.001 5 0.42
L-苯丙氨酸 L-phenylalanine 165.08 4.84 2.22 0.001 7 0.61
4-乙基苯甲醛 4-ethylbenzaldehyde 134.07 4.85 2.11 0.001 9 0.61
γ-谷氨酰亮氨酸
Gamma-glutamylleucine
260.14 5.33 2.53 0.002 1 0.39
N-乙酰葡糖胺-1-磷酸
N-acetylglucosamine-1-phosphate
301.06 4.85 2.40 0.002 2 0.58
2-[(3S)-1-苄基-3-吡咯烷基]-
1,3-苯并噻唑
2-[(3S)-1-benzyl-3-pyrrolidinyl]-
1,3-benzothiazole
294.12 5.34 2.33 0.002 5 0.47
腺苷酰硫酸
Adenosine-5-phosphosulfate
449.00 1.19 2.27 0.003 3 0.50
3,4-二羟基苯丙酸
3,4-dihydroxyphenylpropionic acid
164.05 2.34 1.99 0.003 5 0.65
L-酪氨酸 L-tyrosine 181.07 2.33 2.00 0.003 7 0.64
4-羟基苯甲醛 4-hydroxybenzaldehyde 122.04 2.33 1.19 0.003 8 0.61
反式肉桂酸 Trans-cinnamic acid 148.05 4.85 2.26 0.004 4 0.59
苏氨酸 Threonine 119.06 1.26 1.88 0.004 6 0.56
L-β-咪唑乳酸
L-beta-imidazolelactic acid
156.05 1.61 2.22 0.005 2 0.56
DL-赖氨酸 DL-lysine 146.11 1.10 2.19 0.005 2 0.51
L-甲基哌啶 L-pipecolate 129.08 1.10 2.19 0.005 2 0.51
天冬酰胺 Asparagine 132.05 1.23 2.17 0.005 4 0.50
维生素B6 Vitamin B6 168.09 1.13 2.34 0.006 1 0.50
3-(3,4-二羟基苯基)-2-甲基丙氨酸
3-(3,4-dihydroxyphenyl)-2-methylalanine
211.09 4.85 2.50 0.008 3 0.59
甲氯环素 Meclocycline 476.10 3.22 1.81 0.008 7 0.57
Nε-乙酰左旋赖氨酸 Nε-acetyl-L-lysine 188.12 3.93 2.23 0.008 8 2.13
N-苄基甲酰胺 N-benzylformamide 135.07 2.34 1.89 0.008 9 0.64
三(2-羧乙基)膦
Tris(2-carboxyethyl)phosphine
286.04 3.24 2.35 0.012 7 0.54
血溶性磷脂胆碱(17∶0/18∶1)
PC(17∶0/18∶1)
773.59 9.69 1.56 0.017 5 1.57
血溶性磷脂胆碱(18∶1/19∶2)
PC (18∶1/19∶2)
797.59 10.59 1.89 0.019 7 1.93
牛磺酸 Taurine 125.02 1.25 2.20 0.020 8 0.43
N-甲基乙内酰脲 N-methylhydantoin 114.04 1.34 1.90 0.022 0 0.56
肌酸 Creatine 131.07 1.34 1.89 0.023 0 0.57
4-羟基-5,8-二甲基喹啉-3-羧酸
4-hydroxy-5,8-dimethylquinoline-3-
carboxylic acid
217.07 5.15 1.90 0.023 2 0.57
γ-谷氨酰酪氨酸
Gamma-glutamyltyrosine
310.12 4.89 1.83 0.024 7 0.47
3-噻吩-2-基噌啉-4-羧酸
3-(2-thienyl)cinnoline-4-carboxylic acid
256.03 6.43 1.57 0.026 0 0.39
葡萄糖-1-磷酸二钠盐
Glucose-1-phosphate
260.03 1.31 1.27 0.026 0 2.31
3-甲基吲哚 3-methylindole 131.07 5.14 1.98 0.031 6 0.59
曲酸 Kojic acid 142.02 1.33 1.08 0.032 1 1.61
血溶性磷脂胆碱(14∶0e/19∶1)
PC (14∶0e/19∶1)
731.58 10.75 1.66 0.032 2 1.94
血溶性磷脂胆碱(14∶0e/20∶1)
PC(14∶0e/20∶1)
745.60 10.55 1.59 0.033 4 1.58
3-吲哚乙酸 3-indoleacetic acid 175.06 5.78 1.74 0.034 4 0.66
原亮氨酸 Prolylleucine 228.15 1.46 1.98 0.035 3 0.58
D-核糖-1-磷酸盐 D-ribose-1-phosphate 230.02 1.33 1.06 0.036 8 1.89
7-酮基胆固醇 7-ketocholesterol 400.33 10.77 1.63 0.039 0 1.52
黄豆黄苷 Glycitin 446.13 5.14 1.56 0.041 5 0.51
4-羟基-3-甲氧基苯乙胺-乙二醇硫酸盐
4-hydroxy-3-methoxyphenyl glycol sulfate
264.03 2.35 1.59 0.041 8 0.61
尿苷 Uridine 244.07 2.16 1.46 0.042 2 1.73
喹啉 Quinoline 129.06 5.78 1.88 0.043 0 0.65
血溶性磷脂胆碱(18∶1e/18∶2)
PC(18∶1e/18∶2)
815.61 9.79 1.69 0.043 1 2.10
黄嘌呤核苷 Xanthosine 284.08 4.59 1.21 0.045 9 3.63
尿嘧啶 Uracil 112.03 2.13 1.19 0.046 2 1.60
5-羟基吲哚 5-hydroxyindole 133.05 5.67 1.19 0.048 3 0.56
牛胆酸钠 Taurocholic acid 515.29 8.10 1.04 0.048 9 0.64
5-羟基色氨酸 L-5-hydroxytryptophan 220.08 5.15 1.82 0.049 3 0.60
1,7-双(4-羟基苯基)-5-甲氧基-3-庚酮
1,7-bis(4-hydroxyphenyl)-5-
methoxyheptan-3-one
350.15 5.85 2.22 0.049 8 0.28

变量重要性投影值由PLS-DA模型计算得出。差异倍数值根据2 000 m组代谢物平均值相对于12 000 m组代谢物平均值的比率计算得出。表中↑代表含量上调,↓代表含量下调。表2同。

VIP value is obtained from the PLS-DA model. FC value is calculated based on the ratio of the average value of metabolites in the 2 000 m to the average value of the metabolites in the 12 000 m. In the table, ↑ represents content upward adjustment, and ↓represents content downward adjustment. The same as Table 2.

图3 差异代谢物火山图

P-value:P值;VIP: 变量重要性投影 variable importance in the projection; UP: 上调 up regulation;DW: 下调 down regulation ;NoDiff: 无差异 no differences;fold change:差异倍数。

灰色代表无显著差异的代谢物,红色代表上调代谢物,绿色代表下调代谢物,图中点的大小代表VIP值。

Fig.3 Volcano plot of differential metabolites

Grey dots represent no significantly differential metabolites, red dots represent up-regulated differential metabolites, green dots represent down-regulated differential metabolites, and the size of the dots in the figure represents the VIP value.

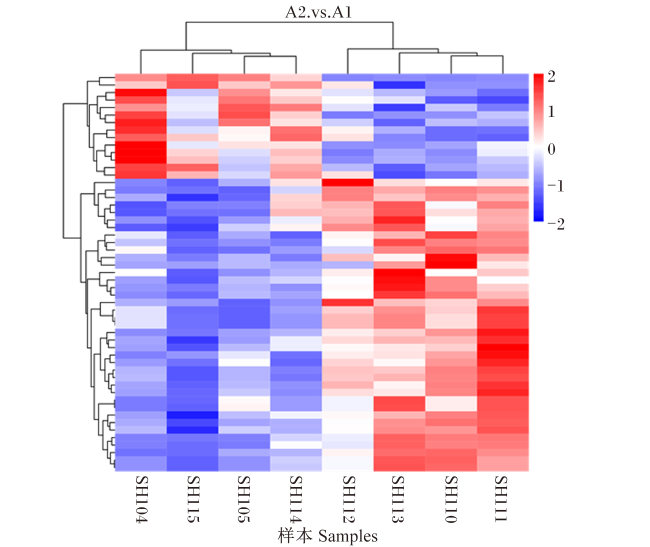
对获得的2组差异代谢物进行层次聚类分析,得出同一比较对2组之间和组内代谢表达模式的差异情况(图4)。各组样品可以很好地聚集在一起,并且具有相似代谢变化的代谢物聚集在同一簇,表明组间代谢物相对定量值层次聚类区分明显。
图4 差异代谢物聚类热图

Fig.4 Heat map of differential metabolites

2.4 差异代谢物通路富集分析

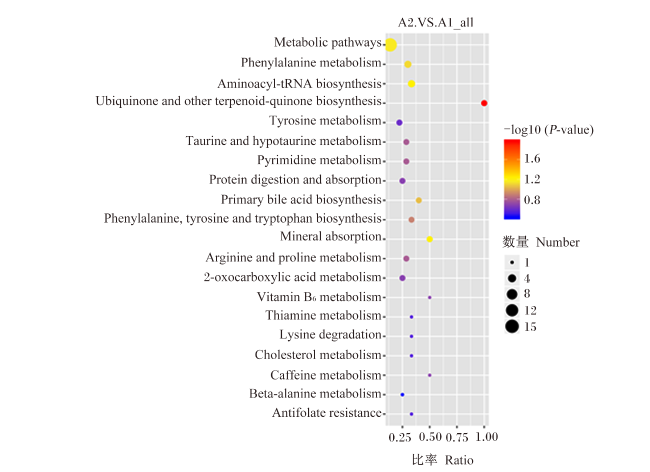
为研究差异代谢物所涉及的代谢途径和代谢物之间的关联性,对筛选出的53种具有显著差异性的代谢物进行通路富集分析,结果如表2所示,上述差异代谢物显著富集到泛醌等萜醌生物合成途径,表明该代谢通路可能是调节伊犁马运动的关键通路,在该代谢通路中差异代谢物反式肉桂酸和L-酪氨酸下调;主要涉及到通路还包括矿物质吸收、氨酰tRNA的生物合成、代谢途径、苯丙氨酸代谢和初级胆汁酸合成等途径。根据富集结果,选取P值由小到大排序前20的通路绘制气泡图(图5)。
表2 代谢通路及相关差异代谢物

Table 2 Metabolic pathways and associated differential metabolites

序号
No.
代谢途径
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 泛醌等萜醌生物合成 反式肉桂酸↓;L-酪氨酸↓ 0.010 9
2 矿物质吸收 甲硫氨酸↓;L-苯丙氨酸↓ 0.057 3
3 氨酰tRNA的生物合成 甲硫氨酸↓;L-苯丙氨酸↓;L-酪氨酸↓ 0.057 5
4 代谢途径 尿嘧啶↑;甲硫氨酸↓;黄嘌呤核苷↑;肌酸↓;N-甲基乙
内酰脲↓;L-甲基哌啶↓;L-苯丙氨酸↓;牛磺酸↓;
4-羟基苯甲醛↓;反式肉桂酸↓;L-酪氨酸↓;
牛胆酸钠↓;3-吲哚乙酸↓;维生素B6↓;尿苷↑
0.070 2
5 苯丙氨酸代谢 L-苯丙氨酸↓;反式肉桂酸↓;L-酪氨酸↓ 0.076 6
6 初级胆汁酸合成 牛磺酸↓;牛胆酸钠↓ 0.089 5
7 苯丙氨酸、酪氨酸和色氨酸生物合成 L-苯丙氨酸↓;L-酪氨酸↓ 0.125 8
8 嘧啶代谢 尿嘧啶↑;尿苷↑ 0.165 1
9 精氨酸和脯氨酸代谢 肌酸↓;N-甲基乙内酰脲↓ 0.165 1
10 牛磺酸和亚牛磺酸代谢 牛磺酸↓;牛胆酸钠↓ 0.165 1
11 咖啡因代谢 黄嘌呤核苷↑ 0.203 9
12 维生素B6代谢 维生素B6 0.203 9
13 2-氧代羧酸代谢 甲硫氨酸↓;L-苯丙氨酸↓ 0.206 4
14 蛋白质消化与吸收 甲硫氨酸↓;L-苯丙氨酸↓ 0.206 4
15 酪氨酸代谢 3,4-二羟基苯丙酸↓;L-酪氨酸↓ 0.248 9
16 赖氨酸降解 L-甲基哌啶↓ 0.290 5
17 硫胺素代谢 L-酪氨酸↓ 0.290 5
18 抗逆转录病毒抗体 甲硫氨酸↓ 0.290 5
19 胆固醇代谢 牛胆酸钠↓ 0.290 5
20 β-丙氨酸代谢 尿嘧啶↑ 0.368 3
图5 差异代谢物KEGG通路富集分析

P-value:P值;Metabolic pathways:代谢途径;Phenylalanine metabolism:苯丙氨酸代谢;Aminoacyl-tRNA biosynthesis:氨酰tRNA的生物合成;Ubiquinone and other terpenoid-quinone biosynthesis:泛醌等萜醌生物合成;Tyrosine metabolism :酪氨酸代谢;Taurine and hypotaurine metabolism:牛磺酸和亚牛磺酸代谢;Pyrimidine metabolism:嘧啶代谢;Protein digestion and absorption:蛋白质消化与吸收;Primary bile acid biosynthesis:初级胆汁酸合成;Phenylalanine, tyrosine and tryptophan biosynthesis:苯丙氨酸、酪氨酸和色氨酸生物合成;Mineral absorption:矿物质吸收;Arginine and proline metabolism:精氨酸和脯氨酸代谢;2-oxocarboxylic acid metabolism:2-氧代羧酸代谢;Vitamin B6 metabolism:维生素B6代谢;Thiamine metabolism:硫胺素代谢;Lysine degradation:赖氨酸降解;Cholesterol metabolism:胆固醇代谢;Caffeine metabolism:咖啡因代谢;Beta-alanine metabolism:β-丙氨酸代谢;Antifolate resistance:抗逆转录病毒抗体。

Fig.5 KEGG pathway enrichment analysis of differential metabolites

3 讨论

代谢物的变化反映了机体对遗传、转录组、蛋白组及环境等各种因素影响下的生物学反应,相关技术已广泛应用于描述动物由于各种因素变化而产生的代谢模式,并发现了一系列与动物疾病和健康相关的生物标记物[10],因此,代谢生物标记物的筛选被认为是改善动物健康与福利的有效技术方法。
马匹运动能力非常优秀,特别是经过人工选择与训练的马匹。赛马具有优秀的有氧能力、肌肉内储存能量、线粒体体积和血液载氧能力[11]。从生理学特性来看,大多数关于运动马的代谢研究主要集中在糖原储备方面,关于蛋白质和脂肪的研究相关较少。在运动过程中,马能够被动员的肌糖原储备较多,但运动后其肌糖原恢复速度较其他动物和人运动员慢[12]。另外,运动能引起血液中氨基酸发生变化,长时间亚极限运动的马血液中支链氨基酸含量增加,这可能是由于运动过程中肝脏分解蛋白质速度加快,从而增加了氨基酸的产量[13]。有研究认为,马在剧烈运动过程中一些氨基酸含量的增加可能是由于蛋白质氧化供能所致,但运动中蛋白质氧化供能消耗情况尚不完全清楚[14]。本研究结果显示,不同比赛距离将会影响到马匹血浆中的氨基酸代谢过程,与12 000 m比赛马匹血浆检测结果相比,2 000 m比赛后血浆中天冬酰胺含量发生下调,这与前人的研究结果[15]基本一致,天冬酰胺与天冬氨酸结构类似,作为一种能量氨基酸,在克雷布斯循环(Krebs cycles)中,碳水化合物被分解为能源,天冬氨酸有助于输送能量进入线粒体的激活过程[16],从而在马匹比赛过程中提供能量,随着比赛距离的延长,马匹所需能量更多,天冬酰胺含量的增加将有利于提高能量利用效率。谷氨酰胺通过分解生成γ-谷氨酰亮氨酸,可以作为能量的补充物,间接参与供能[17];在2 000 m比赛中,由于比赛时间短且运动强度高,会增加支链氨基酸的分解,促进谷氨酰胺合成与分解[18],从而影响到血浆中γ-谷氨酰亮氨酸的含量。在2 000 m比赛马匹血浆中甲硫氨酸和牛磺酸含量较12 000 m比赛马匹血浆中含量低,12 000 m比赛过程中甲硫氨酸和牛磺酸含量较高,能够更好促进细胞摄取和利用葡萄糖,加速葡萄糖的分解提供能量,该过程主要受到2-氧代羧酸代谢、蛋白质消化与吸收及矿物质吸收等通路的影响。苏氨酸在机体内能够代谢生成丙酮酸,参与糖代谢,增加神经传递质乙酰胆碱的产量,更好调控马匹兴奋性[19],12 000 m比赛马匹血浆中苏氨酸含量较高,能够更好调节马匹的神经活动和兴奋性,从而能够保证马匹在比赛过程中取得更好的成绩。与12 000 m比赛马匹血浆检测结果相比,检测到2 000 m比赛马匹血浆中Nε-乙酰左旋赖氨酸含量较高,DL-赖氨酸含量相对较低,这与Hallen[20]的研究结果基本一致,在较长时间的运动过程中,将会增加DL-赖氨酸的合成,促进矿物质更好的重吸收,保障肌肉能够维持较高强度的收缩与舒张。L-苯丙氨酸分解代谢的产物儿茶酚胺[21],通过影响2-氧代羧酸代谢和矿物质吸收等通路来增强心脏活动,比赛距离较长时,心脏压力较大,L-苯丙氨酸含量较高能够更好地保障心脏的正常工作。马匹在比赛过程中,由于运动强度较大,能量消耗多,可以在比赛前适当补充易消化的蛋白质饲料,降低运动对蛋白质的分解,促进糖异生和脂肪氧化供能。
在运动过程中,糖原的氧化是一种主要的供能方式,其在磷酸化酶的作用下生成葡萄糖-1-磷酸二钠盐,葡萄糖-1-磷酸二钠盐在己糖磷酸异构酶的作用下生成葡萄糖-6-磷酸二钠盐,后经有氧代谢或无氧代谢途径产生ATP[22]。在本次试验中,与12 000 m比赛马匹血浆检测结果相比,2 000 m比赛马匹血浆中葡萄糖-1-磷酸二钠盐含量较高,这可能是由于2 000 m比赛时间更短,在此过程中,短时间内运动强度更大,所需要的能量也更多,而该比赛途程中以无氧代谢为主,糖原利用效率较低,在该过程中需要动员的糖原会更多,因此葡萄糖-1-磷酸二钠盐含量更高。硫辛酸是机体细胞利用糖类等能源物质产生能量所需的一种限制性必需营养物质[23],在2 000 m比赛马匹血浆中检测到硫辛酸含量较低,表明机体为了适应短距离高强度的运动,代谢能力有所增强,从而使血糖能够维持相对的动态平衡状态。肌酸是肌酐代谢的产物[24-25],在剧烈运动过程中,ATP消耗过快,肌酸能够快速地再合成ATP以供给能量,在2 000 m比赛后马匹血浆中肌酸含量较12 000 m比赛后马匹血浆中含量低,这可能是由于短距离比赛过程中马匹能量消耗过快,肌酐代谢增强,从而为肌肉和神经细胞提供能量,维持马匹高速奔跑。
在中长跑运动中对速度素质的要求随着跑动距离的增加而逐渐降低,运动供能也主要以有氧代谢为主[26]。在运动过程中,首先动员的能源物质为糖原,随着运动持续和强度的降低,脂肪的氧化逐渐成为主要来源[27]。在本研究中,与12 000 m比赛马匹血浆检测结果相比,2 000 m比赛马匹血浆中血溶性磷脂胆碱(17∶0/18∶1)、血溶性磷脂胆碱(18∶1/19∶2)、血溶性磷脂胆碱(14∶0e/19∶1)、血溶性磷脂胆碱(14∶0e/20∶1)和血溶性磷脂胆碱(18∶1e/18∶2)含量均较高,这表明12 000 m比赛马匹在比赛过程中脂肪代谢增强,需要消耗更多的脂类物质,从而释放出大量能量,维持马匹在比赛过程中的能量供应。
辅酶Q是一类脂溶性物质,其在呼吸中起到了氢传递的作用,哺乳动物细胞内主要存在的辅酶Q为辅酶Q10,是一种内源性的酶辅助因子,在人类的所有活细胞中都会产生。它在线粒体和溶酶体中作为质子/电子转移的催化剂[28],保护线粒体免受自由基的损害[29],可能在线粒体内膜的通透性转换中发挥作用。已有证据表明,辅酶Q10可与α-生育酚一起发挥保护生物膜功能的作用[30],可通过疏散或再生来回收α-生育酚[31],可防止α-生育酚的促氧化作用[32],并可使脂蛋白增加抗氧化能力,因此其总浓度中的比例也被认为可能是氧化压力的生物标志[33]。在本研究中发现,反式肉桂酸和L-酪氨酸参与了该通路,这2种物质在2 000 m比赛后马匹血浆中含量均较12 000 m比赛后马匹血浆中含量低,这必将影响到该通路的生物进程,从而对马匹的代谢产生影响,表明这2种物质可能可以作为赛马氧化压力的生物标志物,在马匹健康及赛后恢复的过程中加以监测,为提高赛马福利提供依据。

4 结论

综上所述,12 000 m比赛马匹血浆中苏氨酸和DL-赖氨酸含量较高,2 000 m比赛马匹血浆中Nε-乙酰左旋赖氨酸含量较高;利用代谢组学能够指导伊犁马不同途程的专项调教训练方案制定、赛后疲劳恢复及优秀马匹选择。
[1]
LUCK M M, LE MOYEC L, BARREY E, et al. Energetics of endurance exercise in young horses determined by nuclear magnetic resonance metabolomics[J]. Frontiers in Physiology, 2015, 6:198.

DOI PMID

[2]
OHMURA H, MUKAI K, TAKAHASHI Y, et al. Metabolomic analysis of skeletal muscle before and after strenuous exercise to fatigue[J]. Scientific Reports, 2021, 11(1):11261.

DOI PMID

[3]
HALAMA A, OLIVEIRA J M, FILHO S A, et al. Metabolic predictors of equine performance in endurance racing[J]. Metabolites, 2021, 11(2):82.

DOI

[4]
SELLAMI M, ELRAYESS M A, PUCE L, et al. Molecular big data in sports sciences:state-of-art and future prospects of OMICS-based sports sciences[J]. Frontiers in Molecular Biosciences, 2021, 8:815410.

DOI

[5]
WANG F Q, HAN J, HE Q, et al. Applying 1H NMR spectroscopy to detect changes in the urinary metabolite levels of Chinese half-pipe snowboarders after different exercises[J]. Journal of Analytical Methods in Chemistry, 2015, 2015:315217.

[6]
MOWRY K C, THOMSON-PARKER T L, MORALES C, et al. Effects of crude rice bran oil and a flaxseed oil blend in young horses engaged in a training program[J]. Animals, 2022, 12(21):3006.

DOI

[7]
PASQUIET B, BIAU S, TRÉBOT Q, et al. Detection of horse locomotion modifications due to training with inertial measurement units:a proof-of-concept[J]. Sensors, 2022, 22(13):4981.

DOI

[8]
LE MOYEC L, ROBERT C, TRIBA M N, et al. Protein catabolism and high lipid metabolism associated with long-distance exercise are revealed by plasma NMR metabolomics in endurance horses[J]. PLoS One, 2014, 9(3):e90730.

DOI

[9]
刘律, 李晓斌, 马艳, 等. 补喂胍基乙酸对伊犁马运动性能、糖代谢以及抗氧化能力的影响[J]. 动物营养学报, 2021, 33(9):5162-5173.

DOI

LIU L, LI X B, MA Y, et al. Effects of supplementary feeding guanidinoacetic acid on movement performance,glucose metabolism and antioxidant capacity of Yili horses[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):5162-5173. (in Chinese)

[10]
O’BRIEN D M, SAGI-KISS V, PALMA-DURAN S A, et al. An evaluation of the serum carbon isotope ratio as a candidate predictive biomarker of the dietary animal protein ratio (animal protein/total protein) in a 15-day controlled feeding study of US adults[J]. American Journal of Clinical Nutrition, 2022, 115(4):1134-1143.

DOI

[11]
JOHNSON A J, SCHMITT E E, FRENCH J R, et al. Uneven but conservative pacing is associated with performance during uphill and downhill running[J]. International Journal of Sports Physiology and Performance, 2022, 17(8):1170-1178.

DOI

[12]
VIGH-LARSEN J F, ØRTENBLAD N, SPRIET L L, et al. Muscle glycogen metabolism and high-intensity exercise performance:a narrative review[J]. Sports Medicine, 2021, 51(9):1855-1874.

DOI

[13]
VERVUERT I, COENEN M, BICHMANN M. Comparison of the effects of fructose and glucose supplementation on metabolic responses in resting and exercising horses[J]. Journal of Veterinary Medicine Series A, 2004, 51(4):171-177.

DOI

[14]
JANG H J, KIM D M, KIM K B, et al. Analysis of metabolomic patterns in thoroughbreds before and after exercise[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(11):1633-1642.

DOI

[15]
OTT E C, CAVINDER C A, WANG S S, et al. Oxidative stress biomarkers and free amino acid concentrations in the blood plasma of moderately exercised horses indicate adaptive response to prolonged exercise training[J]. Journal of Animal Science, 2022, 100(4):skac086.

DOI

[16]
VAN DEN HOVEN R, BAUER A, HACKL S, et al. Changes in intramuscular amino acid levels in submaximally exercised horses—a pilot study[J]. Journal of Animal Physiology and Animal Nutrition, 2010, 94(4):455-464.

[17]
PETERS L W E, SMIET E, DE SAIN-VAN DER VELDEN M G M, et al. Amino acid utilization by the hindlimb of warmblood horses at rest and following low intensity exercise[J]. Veterinary Quarterly, 2013, 33(1):20-24.

DOI

[18]
WESTERMANN C M, DORLAND L, WIJNBERG I D, et al. Amino acid profile during exercise and training in Standardbreds[J]. Research in Veterinary Science, 2011, 91(1):144-149.

DOI PMID

[19]
HACKL S, VAN DEN HOVEN R, ZICKL M, et al. The effects of short intensive exercise on plasma free amino acids in standardbred trotters[J]. Journal of Animal Physiology and Animal Nutrition, 2009, 93(2):165-173.

DOI PMID

[20]
HALLEN A, JAMIE J F, COOPER A J L. Lysine metabolism in mammalian brain:an update on the importance of recent discoveries[J]. Amino Acids, 2013, 45(6):1249-1272.

DOI

[21]
BANSE H E, WHITEHEAD A E, MCFARLANE D, et al. Markers of muscle atrophy and impact of treatment with pergolide in horses with pituitary pars intermedia dysfunction and muscle atrophy[J]. Domestic Animal Endocrinology, 2021, 76:106620.

DOI PMID

[22]
BAXTER N J, OLGUIN L F, GOLICNIK M, et al. A Trojan horse transition state analogue generated by MgF3- formation in an enzyme active site[J]. Proceedings of the National Academy of Sciences of the United States of America, 2006, 103(40):14732-14737.

DOI PMID

[23]
KINNUNEN S, HYYPPÄ S, OKSALA N, et al. α-Lipoic acid supplementation enhances heat shock protein production and decreases post exercise lactic acid concentrations in exercised standardbred trotters[J]. Research in Veterinary Science, 2009, 87(3):462-467.

DOI

[24]
DE SOLIS C N, SAMPSON S N, MCKAY T, et al. Standardised exercise testing in 17 reining horses:musculoskeletal,respiratory,cardiac and clinicopathological findings[J]. Equine Veterinary Education, 2018, 30(5):262-267.

DOI

[25]
STOPYRA A, ŻARCZYÑSKA K, SNARSKA A, et al. Selected electrolytic,haematological and enzymatic parameters in horses during endurance races[J]. Journal of Elementology, 2016, 21(4):1151-1159.

[26]
KLEIN D J, MCKEEVER K H, MIREK E T, et al. Metabolomic response of equine skeletal muscle to acute fatiguing exercise and training[J]. Frontiers in Physiology, 2020, 11:110.

DOI PMID

[27]
PLANCADE S, CLARK A, PHILIPPE C, et al. Unraveling the effects of the gut microbiota composition and function on horse endurance physiology[J]. Scientific Reports, 2019, 9(1):9620.

DOI PMID

[28]
RUDRESHKUMAR K J, MAJUMDAR V, NAGARAJA D, et al. Relevance of plasma levels of free homocysteine and methionine as risk predictors for ischemic stroke in the young[J]. Clinical Nutrition, 2018, 37(5):1715-1721.

DOI PMID

[29]
SALARI A, ASHOURI A, MOGHTADER A J, et al. The relationship between depression symptoms and severity of coronary artery disease in patients undergoing angiography[J]. Iranian Journal of Psychiatry, 2020, 15(4):370-376.

DOI PMID

[30]
COLOMÉ C, ARTUCH R, VILASECA M A, et al. Ubiquinone-10 content in lymphocytes of phenylketonuric patients[J]. Clinical Biochemistry, 2002, 35(1):81-84.

PMID

[31]
MANCINI A, BALERCIA G. Coenzyme Q10 in male infertility:physiopathology and therapy[J]. BioFactors, 2011, 37(5):374-380.

DOI

[32]
NIKLOWITZ P, MENKE T, WIESEL T, et al. Coenzyme Q10 in plasma and erythrocytes:comparison of antioxidant levels in healthy probands after oral supplementation and in patients suffering from sickle cell anemia[J]. Clinica Chimica Acta, 2002, 326(1/2):155-161.

DOI

[33]
YOSHINA S, IZUHARA L, KAMATANI N, et al. Regulation of aging by balancing mitochondrial function and antioxidant levels[J]. The Journal of Physiological Sciences, 2022, 72(1):28.

DOI

Outlines

/