REVIEW

Research Progress of Nitrogen Metabolism and Nutrient Regulation in Dairy Cows

  • ZHANG Shiqi ,
  • ZHAO Shengguo ,
  • ZHENG Nan ,
  • WANG Jiaqi , *
Expand
  • State Key Laboratory of Animal Nutrition, Institute of Animal Husbandry and Veterinary Medicine, Chinese Academy of Agricultural Sciences, Beijing 100193, China
* professor, E-mail:

Received date: 2022-11-22

  Online published: 2023-07-11

Abstract

Dairy cow production is characterized by high protein feed consumption, high nitrogen excretion and low nitrogen utilization efficiency, which increases the cost of dairy farming and produces problems such as waste of nitrogen resources and environment pollution. Improving the nutrition composition of diet is a direct way to regulate nitrogen metabolism in dairy cows. This paper reviewed the nitrogen metabolism pathways in dairy cows and recent research on nutrition regulation of nitrogen utilization efficiency in dairy cows, in order to provide reference for regulating nitrogen metabolism in dairy cows through nutrition methods from the perspectives of improving forage species, finding soybean meal substitutes and developing additives to promote nitrogen metabolism.

Cite this article

ZHANG Shiqi , ZHAO Shengguo , ZHENG Nan , WANG Jiaqi . Research Progress of Nitrogen Metabolism and Nutrient Regulation in Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2023 , 35(7) : 4119 -4126 . DOI: 10.12418/CJAN2023.381

氮是动物必需营养素的组成部分,氮的代谢对于动物生长、发育和动物产品质量具有重要作用。与非反刍动物相比,奶牛饲粮氮利用率相对较低。有报道指出,饲粮氮转化为牛乳氮或体增重的效率分别为27%和14%[1],70%~80%的氮(未保留在机体组织中或未分泌在牛奶中的氮)随着尿液和粪便排出,其中尿排出氮约占50%、粪排出氮占25%~30%,从而导致资源浪费以及水污染(尿氮)和大气污染(气态氮排放和大气中小颗粒物质的形成)[2-4]。随着全球人口的快速增长,这对氮资源和健康环境的要求不断提升。乳产业奶牛养殖过程中的氮排泄,可能对生态系统的可持续发展和人类健康产生不利影响,同时价格日益增长的豆粕饲料为奶牛生产成本带来负荷。节约氮资源、提高氮代谢以及减少对环境的氮排放是奶牛养殖亟需解决的问题。本文主要综述了奶牛氮来源、体内氮代谢过程以及近5年饲粮调控奶牛氮代谢的研究进展,为通过营养手段调控奶牛氮代谢、节约成本和减少环境污染提供参考依据。

1 奶牛氮代谢

1.1 氮来源

饲粮是奶牛氮的主要来源,也是影响机体氮代谢(粪、尿氮排放)的主要因素[5-6]。饲粮粗蛋白质主要包括真蛋白质和非蛋白氮(non protein nitrogen,NPN)。真蛋白质根据瘤胃是否降解分为瘤胃降解蛋白(rumen degradable protein,RDP)和瘤胃非降解蛋白(rumen non-degradable protein,RUDP)[7]。饲粮粗蛋白质水平、蛋白质组成、过瘤胃氨基酸、碳水化合物水平和能氮平衡等因素对奶牛氮代谢利用效率有重要影响。不同的粗蛋白质水平对奶牛氮代谢、氮利用效率的影响由于试验动物的生理阶段、饲粮组成和环境等条件不同得出结果略有不同。整体结果提示,饲粮粗蛋白质水平升高会增加粪、尿氮排泄量,而降低饲粮粗蛋白质水平(从18%~20%降至13%~15%)可提升氮利用率,且饲粮粗蛋白质水平为14%时奶牛饲粮氮利用率最高[8-11]。奶牛生产中应用低氮饲粮的前提是需要满足奶牛氨基酸平衡或者蛋白质平衡。对于奶牛而言,赖氨酸和蛋氨酸已被证实是奶牛第一和第二限制性氨基酸,饲粮添加蛋氨酸和赖氨酸对奶牛泌乳性能和氮代谢产生了积极作用[12-13],而不同的过瘤胃氨基酸以及组合在奶牛饲粮中的应用以及能氮平衡等因素对奶牛氮代谢利用效率的影响也正在成为研究的热点。

1.2 胃肠道中氮吸收和氮代谢

饲粮RDP、RUDP和碳水化合物进入瘤胃后,在微生物的作用下最终生成挥发性脂肪酸(volatile fatty acid,VFA)、微生物蛋白(microprotein,MCP)和铵根离子($\text{NH}_{4}^{+}$)等物质[14](图1)。在此过程中,细菌贡献度约50%,原虫贡献度20%~50%,相较于前两者真菌贡献较小,主要提供纤维素水解酶[15]。产生的VFA大部分通过瘤胃上皮细胞吸收进入门静脉排流组织,而RUDP和MCP进入小肠吸收利用[16]。$\text{NH}_{4}^{+}$的吸收可能需要转运蛋白介导,且$\text{NH}_{4}^{+}$在瘤胃上皮中的移动受到化学和电梯度的双重调节。瘤胃壁对氨的吸收随着瘤胃pH和总氨氮浓度的提高而增加[17]。瘤胃微生物同化生成MCP和RUDP后送至小肠与内源性蛋白质混合,经由蛋白酶和肽酶消化产生的寡肽和氨基酸,一部分参与小肠供能[18],其余部分由肠细胞刷状边界和基底侧膜中的各类转运体运输到门静脉进入肝脏代谢[19]。大肠同样存在氮吸收作用。小肠消化后仍然有大量未消化的和内源性的含氮化合物,通过回盲交界处进入大肠。但是大肠菌群分解蛋白质和多肽的研究较少,有研究指出后肠道可以进行氮的再吸收和氮在体液的转运,吸收的氮可以用于合成非必需氨基酸,或再循环到瘤胃合成MCP[20]。反刍动物后肠道MCP的合成对于机体的意义尚需探讨。
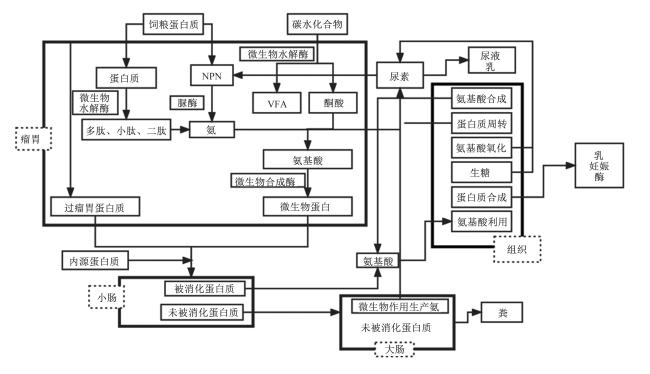
图1 奶牛饲粮氮代谢途径

NPN:非蛋白氮 non protein nitrogen;VFA:挥发性脂肪酸 volatile fatty acid。

Fig.1 Dietary nitrogen metabolism pathways in dairy cows

1.3 尿素氮再循环

尿素氮再循环即胃肠道吸收的$\text{NH}_{4}^{+}$在肝脏生成尿素后,又通过唾液或消化道上皮重新进入消化道进行利用的过程。牛肝脏内产生的尿素33%随尿液排出、10%随粪便排出,再循环至消化道中约57%,而尿中氮约95%都是以尿素的形式排出[21-22]。尿素氮的转运受到肾脏和胃肠道组织中尿素转运蛋白表达的调控。唾液对进入瘤胃的尿素氮的贡献在15%~100%,并主要取决于饲粮类型,唾液尿素氮与饲粮粗饲料比例呈正相关变化[23]。通过不同层面调节尿素氮再循环改善氮代谢,进而调节机体组织生长代谢,对于改善奶牛养分利用和优化奶牛生产性能至关重要。

2 饲粮调控奶牛氮代谢研究进展

近年来蛋白质饲料资源严重短缺,国家统计局数据显示,2020年中国豆类进口量依赖度高达87%[24]。通过调控饲粮进而改善奶牛氮代谢是最直接的途径。因此,改善饲粮组成、寻找可替代型蛋白质饲料资源以及开发促进氮代谢的添加剂是当前奶牛乳产业可持续发展的重要研究内容。本节就近5年饲粮调控奶牛氮利用率主要的研究进展进行总结,并对丰富牧草种类、寻找豆粕替代物和促进氮代谢添加剂的研发等方面进行综述。

2.1 丰富牧草种类

牧草是反刍动物的重要饲料成分,牧草类型和品质直接影响动物养分消化利用率,进而影响动物生长和产品品质。紫花苜蓿是反刍动物饲粮中重要的粗饲料来源之一。作为豆科牧草,紫花苜蓿粗蛋白质含量较高,但在瘤胃中蛋白质被迅速降解,导致反刍动物对氮的利用效率降低,并且价格较高[25]。因此,有学者开展了不同牧草替代苜蓿的研究。
百脉根干草是一种含有缩合单宁的粗饲料,百脉根中的缩合单宁可以附着在瘤胃中的可溶性蛋白质上,形成不溶性缩合单宁-蛋白质复合物,在瘤胃中不容易被降解,进而进入小肠后释放,从而提高小肠蛋白质的吸收量。Ghelichkhan等[26]以紫花苜蓿干草为基础的混合饲粮和以百脉根干草为基础的混合饲粮饲喂泌乳中期的多胎荷斯坦奶牛[泌乳天数(150±22.3) d],发现相较于紫花苜蓿干草,百脉根干草不影响泌乳性能,但减少了尿氮排出,增加了粪氮排出。因为相较于粪氮,尿氮更容易挥发,对环境污染更大。因此,百脉根干草替代苜蓿干草对奶牛饲养环境污染有一定减缓作用,是可行的苜蓿替代产品之一,但是替代比例有待进一步研究。如果联合使用酶制剂促进缩合单宁-蛋白质复合物小肠释放率,可能利用效果会更好。
Wilson等[27]比较了黑麦草-苜蓿混合草、豆科牧草和含有车前草和菊苣的混合牧草对放牧奶牛生产性能和乳品质的影响,结果表明摄入含有车前草和菊苣等混合牧草对奶牛生产性能未产生影响,但减少了氮排放和甲烷(CH4)的排放。车前草是一味中药,具有清热利尿和解毒的功能,与传统牧草品种相比有更高的非纤维碳水化合物含量与可溶性氮的比例[28]。研究表明,相对于喂养黑麦草的奶牛,喂养含有车前草饲粮的奶牛,排泄的尿液中的氮含量降低,而牛奶产量相似或提高。在车前草占干物质采食量30%~100%的研究中,观察到的尿氮含量降低了20%~75%,且随着车前草在饲粮中比例的提高而提高[29-32]。甜叶菊是一种多年生草本植物,含有丰富的氨基酸和蛋白质,并具有抗炎杀菌和抗氧化等作用。Jiang等[33]用甜叶菊干草等氮、等能量替代苜蓿干草发现,甜叶菊干草替代苜蓿干草并不影响奶牛干物质、总能量和其他营养物质的摄入量,但提高了中性洗涤纤维和酸性洗涤纤维的消化率;且饲喂6%甜叶菊干草的奶牛有更高的产奶量和乳脂含量,提出饲喂6%甜叶菊干草替代部分苜蓿干草,可以提高泌乳期奶牛的泌乳性能和对氮的利用率。
全球牧草作物价格飙升,长期依赖苜蓿干草进口无法维持中国乳业的快速发展。车前草、甜菊叶和百脉根等植物可在不影响采食量和产奶量的前提下部分替代苜蓿干草,并且对于奶牛氮利用或者奶牛饲养环境污染等问题具有积极效果。结合当地气候特点和地理优势,可参考上述牧草替代苜蓿干草,以节约养殖成本,减少奶牛养殖中的环境污染。

2.2 增加杂粕和NPN饲料

奶牛饲粮中主要的蛋白质饲料是豆粕,豆粕也是奶牛饲粮高成本的主要原因之一。为了控制成本,寻找豆粕替代饲料是可行途径之一。花生粕价格相较于豆粕价格低廉,国内产量丰富。Dos Santos等[34]研究表明,用花生粕(0、330、670和1 000 g/kg DM)替代豆粕对奶牛干物质摄入量和消化率无显著影响,且氮平衡和氮保留率在各组间相近。黄酒酒糟的粗蛋白质含量高,价格相对较低。Yao等[35]通过微生物预处理,提高黄酒酒糟发酵混合物的粗蛋白质含量,使用发酵黄酒酒糟和未发酵黄酒酒糟分别等氮替代约60%豆粕,结果表明发酵黄酒酒糟和未发酵黄酒酒糟均可作为蛋白质源饲料用于泌乳期奶牛的饲粮,而添加发酵黄酒酒糟在对泌乳性能和氮利用无不良影响的同时具有较高的效益。Kuoppala等[36]比较了等氮量的菜籽粕、蚕豆和蓝罗平籽(分别为2.62、3.19和2.82 kg DM/d)对奶牛氮消化和利用的影响,发现摄入添加蚕豆饲粮的奶牛微生物氮流量更大。Cherif等[37]用磨碎和压片蚕豆等氮替代豆粕,对奶牛干物质采食量、产奶量、氮排泄和肠道CH4排放均无影响,表明蚕豆可以在玉米-豆粕型饲粮中替代豆粕,而不会对奶牛产生不利影响。另有研究指出,蚕豆联合使用富含蛋氨酸的微藻[38]或过瘤胃蛋氨酸[39],对于提升奶牛产奶量效果更好。因此,充分利用当地的特色产业的副产物用于替代豆粕,具有价格低廉、交通便利等优势,是控制成本较好的选择。而优质的替代物应是能够提高饲粮氮的利用效率或至少减少氮的排泄,而并不影响乳产量或具有提高乳产量的作用。此外,目前寻找到合适的豆粕替代物后,豆粕替代物的抗营养因子含量、氨基酸平衡和毒素水平等问题的优化也是豆粕替代物在生产中使用的关键。
在反刍动物饲粮中尿素可作为NPN,用于替代部分蛋白质饲料以降低成本。但在瘤胃中,尿素被脲酶水解为氨的速度高于瘤胃细菌利用氨的速度,因此导致瘤胃氨积累至一定浓度后进入循环,容易造成氮浪费甚至氨中毒[40]。因此需要对尿素进行不同处理或添加尿酶抑制剂,以减慢尿素在瘤胃中的释放速度。利用涂层技术可在不改变尿素本身化学结构的前提下制备缓释尿素,降低尿素释放或者分解变成氨的速度,同步增强氨的产生速度与被利用的速度。研究表明,缓释尿素可在不影响泌乳奶牛生产性能的前提下替代饲粮中的尿素[41]。饲粮中添加0.58% DM缓释尿素可部分替代植物蛋白质来源饲料,提高饲料效率和乳氮利用率;此外,添加缓释尿素可减少牛奶生产使用饲料的碳足迹和粪氮排泄量[42]。因此,在奶牛饲粮中可考虑使用缓释尿素替代豆粕等植物蛋白质饲料以降低成本。但是,缓释尿素产品的效果不稳定、包被材料过于单一以及没有完整的缓释尿素产品的评价体系等问题依然存在,这限制了缓释尿素在反刍动物生产中的应用,仍然需要对准需求进行深入研究。

2.3 研发促进氮代谢添加剂

2.3.1 氨基酸

反刍动物饲粮营养成分差异大,加之瘤胃微生物的影响,原料的氨基酸平衡模式很难匹配反刍动物饲粮。氨基酸营养是反刍动物蛋白质营养的核心,尤其是限制性氨基酸,其平衡与否会直接影响含氮物质的利用效率。通过外源补充氨基酸可以平衡氨基酸比例,提升氮利用效率以及减少氮排泄,补充过瘤胃氨基酸效果更优。蛋氨酸和赖氨酸作为奶牛主要限制性氨基酸,提高其过瘤胃率、改善氮利用率的方法仍在研究,一些物理和化学保护方法在研究中被使用[43-44]。King等[45]使用微胶囊技术,采用多层涂层材料包裹蛋氨酸[46]饲喂奶牛,有助于奶牛克服可代谢蛋氨酸的不足,同时减少了粪便中氮的排泄。Amaro等[47]在奶牛饲粮中添加乙酰化的蛋氨酸,发现饲粮中添加15或30 g/头的乙酰化的蛋氨酸可显著提高奶牛的饲料效率,且不影响奶牛泌乳早期至泌乳中期的氮代谢。不论是物理包备还是化学包备,现有的包备技术已经相对成熟。但是,现有评价过瘤胃氨基酸的生物利用率的方法具有一定局限性,对于过瘤胃氨基酸效果的评价不够完全,结合更方便、准确的生物利用率测定或评价方法,对于过瘤胃氨基酸在生产中准确使用更具指导意义。

2.3.2 单宁

单宁作为天然植物多酚,根据其结构和反应性,单宁被分为可水解单宁和缩合单宁。缩合单宁可与饲粮蛋白质结合,降低在瘤胃中的降解性。基于此,有研究在奶牛饲粮中添加单宁以改善奶牛氮利用率,但是研究结果不一。Gerlach等[48]在泌乳牛饲粮中添加0.203 g/kg DM缩合单宁,使含氮化合物从尿液向粪便的轻微转移,不仅未提高生产性能,且造成氮的利用效率降低,指出单宁在高产奶牛上使用会造成不利影响。Zhang等[49]在奶牛饲粮中添加不同来源的单宁(3% DM杨梅缩合单宁、3% DM马槐缩合单宁和3% DM缬草水解单宁),发现添加单宁可不同程度地降低奶牛的养分表观全消化道消化率,显著降低奶和血液中尿素氮含量;其中,添加杨梅缩合单宁改变了泌乳奶牛的氮排泄途径,显著降低了尿氮排泄,且氮保留率和氮保留/可消化氮值最高,但氮利用效率相似。Herremans等[50]在青贮打捆之前喷洒橡木单宁提取物(水解单宁)制作青贮后饲喂奶牛,氮从尿液向粪便转移(尿氮降低8%、粪氮提高5%)。一项分析比较了摄入含单宁或不含单宁饲粮的哺乳期奶牛的奶产量、奶成分和氮代谢,结果表明,单宁能够减少16%瘤胃氨态氮的产生,减少9%牛奶尿素氮和11%尿氮的排泄,并且单宁对氮代谢参数的影响随着单宁添加量的增加而增加。综上可知,单宁可以改变奶牛氮流向,使得尿氮向粪氮转变,可能有利于保护环境。但是从经济效益角度来看,单宁似乎无法提高脂肪和蛋白质校正的牛奶产量或减少饲粮蛋白质需求,因此没有直接的经济效益。

2.3.3 脲酶抑制剂

反刍动物中的尿素作为植物和动物蛋白质的廉价替代品已经研究了一个多世纪,已经产生了与瘤胃微生物利用尿素机制有关的大量信息。瘤胃中的脲酶活性和尿素分解微生物群是瘤胃中尿素利用的基础,使用脲酶抑制剂是缓解尿素在瘤胃中分解的另一途径。一些物质被证明可以降低脲酶活性,如乙酰异羟肟酸、磷酸苯基酯二酰胺、N(正丁基)硫代磷酸三酰胺、硼酸、铋化合物和氢醌等。这些抑制剂在体外测试时通常非常有效,但是在体内试验时可能会影响到某些细菌的生长,进而影响碳水化合物的发酵,并且其中一些化合物对动物和人类健康构成潜在风险,无法在生产中使用[51]。目前,我国批准的作为饲料添加剂使用的脲酶抑制剂只有乙酰氧肟酸(农牧函[1998]27号)。
与此同时,植物生物活性化合物逐渐成为探索目标。研究表明,一些植物提取物可能通过抑制尿素分解细菌种群生长或脲酶之间的相互作用降低瘤胃或粪便中脲酶活性。Díaz Carrasco等[52]以1∶2(质量比)在饲粮中添加2 g/kg DM的栗子树(含78%水解单宁)和白坚树(含84%缩合单宁)单宁混合物,降低了荷斯坦牛瘤胃液中的脲酶活性,尿素分解菌种群减少,包括丁弧菌和密螺旋体菌。但是上文提到饲粮中添加单宁对于奶牛生产的经济效益提升效果并不显著,单宁的具体使用方式还有待进一步研究。
本研究团队以脲酶蛋白的催化活性中心为靶点,通过分子对接技术从植物源天然化合物库中筛选,进一步利用脲酶活性试验以及体外发酵试验进行评价,目前得到鹰嘴豆芽素A、黄连碱和白屈菜赤碱等化合物对脲酶活性有抑制作用。
鹰嘴豆芽素A具有抗菌活性、抗氧化、抗炎和抗癌等作用。体外试验表明,鹰嘴豆芽素A、黄连碱和白屈菜赤碱对奶牛瘤胃液的粗酶提取物中的脲酶活性有抑制作用。体外发酵试验中,鹰嘴豆芽素A使得蛋白质分解细菌Prevotella ruminicola和尿素分解细菌月形单胞菌属(Selenomonas)的相对丰度显著下降;鹰嘴豆芽素A可能通过降低瘤胃蛋白质水解菌的丰度,来抑制瘤胃脲酶活性和氨基酸和尿素的分解,进而减少氨的产生速率[53]。黄连碱和白屈菜赤碱是具有抗菌、抑菌作用的生物碱类物质。添加黄连碱显著降低了氨的释放和尿素的分解速率,并改善了瘤胃发酵系统中的微生物发酵,通过与脲酶活性中心对接结果来看,黄连碱对细菌脲酶活性的抑制作用是通过与脲酶活性中心的镍离子、活性中心以及flap区域的关键氨基酸残基相结合来实现的[54]。通过圆二色光谱法测定UreG的二级结构发现,添加白屈菜赤碱改变了UreG的二级结构,抑制了镍和辅助蛋白UreG的结合,并与UreG G1基序中的Thy19和G2基序的Asp41(影响UreG的GTP酶活性和镍传递的关键残基)发生作用,进而影响脲酶活性[55]。综上可知,鹰嘴豆芽素A、黄连碱和白屈菜赤碱均可成为一种具有潜力的脲酶抑制剂,但动物生产应用的参数仍需要进一步的探索。同时,这也说明天然植物提取物作为脲酶抑制剂可以成为调控脲酶新途径。但是,在应用植物源化合物抑制脲酶活性时需要综合考虑植物源化合物对奶牛瘤胃发酵、生产性能和机体健康等方面的影响,上述植物提取物在奶牛生产中应用研究较少,是否能够成为合格的饲料添加剂仍需进行有效性和耐受性试验的验证。

3 小结

奶牛氮利用率低、排放量大是牛乳产业可持续发展道路上的亟需解决的一大问题。通过剖析奶牛氮代谢规律,了解饲粮和瘤胃微生物等氮代谢影响因素可知,寻找经济有效的蛋白质饲料(无论是豆粕还是牧草)替代物和开发新型绿色添加剂以改善奶牛氮效率是有效途径之一。但值得注意得是,奶牛大部分氮仍随着粪、尿液的排泄和CH4、二氧化碳(CO2)等温室气体的排出,排泄氮的有效循环利用对于节约资源、保护环境同样重要。
[1]
HUHTANEN P, AHVENJÄRVI S, BRODERICK G A, et al. Quantifying ruminal digestion of organic matter and neutral detergent fiber using the omasal sampling technique in cattle-a meta-analysis[J]. Journal of Dairy Science, 2010, 93(7):3203-3215.

DOI

[2]
KÜLLING D R, MENZI H, KRÖBER T F, et al. Emissions of ammonia,nitrous oxide and methane from different types of dairy manure during storage as affected by dietary protein content[J]. The Journal of Agricultural Science, 2001, 137(2):235-250.

DOI

[3]
HRISTOV A N, LEE C, HRISTOVA R, et al. A meta-analysis of variability in continuous-culture ruminal fermentation and digestibility data[J]. Journal of Dairy Science, 2012, 95(9):5299-5307.

DOI PMID

[4]
CAMERON K C, DI H J, MOIR J L. Nitrogen losses from the soil/plant system:a review[J]. Annals of Applied Biology, 2013, 162(2):145-173.

DOI

[5]
ARCHIBEQUE S L, BURNS J C, HUNTINGTON G B. Nitrogen metabolism of beef steers fed endophyte-free tall fescue hay:effects of ruminally protected methionine supplementation[J]. Journal of Animal Science, 2002, 80(5):1344-1351.

DOI

[6]
YAN T, FROST J P, AGNEW R E, et al. Relationships among manure nitrogen output and dietary and animal factors in lactating dairy cows[J]. Journal of Dairy Science, 2006, 89(10):3981-3991.

DOI PMID

[7]
BLACHIER F, MARIOTTI F, HUNEAU J F, et al. Effects of amino acid-derived luminal metabolites on the colonic epithelium and physiopathological consequences[J]. Amino Acids, 2007, 33(4):547-562.

DOI PMID

[8]
DANES M A C, CHAGAS L J, PEDROSO A M, et al. Effect of protein supplementation on milk production and metabolism of dairy cows grazing tropical grass[J]. Journal of Dairy Science, 2013, 96(1):407-419.

DOI PMID

[9]
SINCLAIR K D, GARNSWORTHY P C, MANN G E, et al. Reducing dietary protein in dairy cow diets:implications for nitrogen utilization,milk production,welfare and fertility[J]. Animal, 2014, 8(2):262-274.

DOI

[10]
张峰, 邱伟, 刘小静, 等. 日粮蛋白水平对奶牛生产性能及氮表观消化率的影响[J]. 饲料研究, 2012(7):51-53.

ZHANG F, QIU W, LIU X J, et al. Effects of dietary protein levels on performance and nitrogen apparent digestibility of dairy cows[J]. Feed Research, 2012(7):51-53. (in Chinese)

[11]
王星凌, 刘春林, 赵红波, 等. 饲粮粗蛋白质水平对中国荷斯坦奶牛产奶性能、氮利用及血液激素的影响[J]. 动物营养学报, 2012, 24(4):669-680.

DOI

WANG X L, LIU C L, ZHAO H B, et al. Dietary crude protein levels affect milk production,nitrogen utilization and blood hormones of Chinese Holstein dairy cows[J]. Chinese Journal of Animal Nutrition, 2012, 24(4):669-680. (in Chinese)

[12]
PEGOLO S, MACH N, RAMAYO-CALDAS Y, et al. Integration of GWAS,pathway and network analyses reveals novel mechanistic insights into the synthesis of milk proteins in dairy cows[J]. Scientific Reports, 2018, 8(1):566.

DOI

[13]
HARLOW B E, FLYTHE M D, AIKEN G E. Biochanin A improves fibre fermentation by cellulolytic bacteria[J]. Journal of Applied Microbiology, 2018, 124(1):58-66.

DOI PMID

[14]
BACH A, CALSAMIGLIA S, STERN M D. Nitrogen metabolism in the rumen[J]. Journal of Dairy Science, 2005, 88:E9-E21.

[15]
HUHTANEN P, HETTA M, SWENSSON C. Evaluation of canola meal as a protein supplement for dairy cows:a review and a meta-analysis[J]. Canadian Journal of Animal Science, 2011, 91(4):529-543.

DOI

[16]
HUUSKONEN A K, PESONEN M, JOKI-TOKOLA E. Effects of supplementary concentrate level and separate or total mixed ration feeding on performance of growing dairy bulls[J]. Agricultural and Food Science, 2014, 23(4):257-265.

DOI

[17]
WILKINSON J M, GARNSWORTHY P C. Impact of diet and fertility on greenhouse gas emissions and nitrogen efficiency of milk production[J]. Livestock, 2017, 22(3):140-144.

DOI

[18]
MACFARLANE G T, MACFARLANE S. Fermentation in the human large intestine:its physiologic consequences and the potential contribution of prebiotics[J]. Journal of Clinical Gastroenterology, 2011, 45:S120-S127.

[19]
XIE Y M, XU Q B, WU Y M, et al. Duodenum has the greatest potential to absorb soluble non-ammonia nitrogen in the nonmesenteric gastrointestinal tissues of dairy cows[J]. Journal of Zhejiang University:Science B, 2015, 16(6):503-510.

DOI

[20]
MCDONALD I W. The absorption of ammonia from the rumen of the sheep[J]. Biochemical Journal, 1948, 42(4):584-587.

PMID

[21]
JIN D, ZHAO S G, ZHENG N, et al. Urea metabolism and regulation by rumen bacterial urease in ruminants-a review[J]. Annals of Animal Science, 2018, 18(2):303-318.

DOI

[22]
HAILEMARIAM S, ZHAO S G, HE Y, et al. Urea transport and hydrolysis in the rumen:a review[J]. Animal Nutrition, 2021, 7(4):989-996.

DOI

[23]
LAPIERRE H, LOBLEY G E. Nitrogen recycling in the ruminant:a review[J]. Journal of Dairy Science, 2001, 84:E223-E236.

[24]
国家统计局. 中国统计年鉴-2020[M]. 北京: 中国统计出版社, 2020.

National Bureau of Statistics. China statistical yearbook-2020[M]. Beijing: China Statistics Press, 2020. (in Chinese)

[25]
BRITO A F, BRODERICK G A. Effect of varying dietary ratios of alfalfa silage to corn silage on production and nitrogen utilization in lactating dairy cows[J]. Journal of Dairy Science, 2006, 89(10):3924-3938.

PMID

[26]
GHELICHKHAN M, EUN J S, CHRISTENSEN R G, et al. Urine volume and nitrogen excretion are altered by feeding birdsfoot trefoil compared with alfalfa in lactating dairy cows[J]. Journal of Animal Science, 2018, 96(9):3993-4001.

DOI

[27]
WILSON R L, BIONAZ M, MACADAM J W, et al. Milk production,nitrogen utilization,and methane emissions of dairy cows grazing grass,forb,and legume-based pastures[J]. Journal of Animal Science, 2020, 98(7):skaa220.

[28]
LEE J M, HEMMINGSON N R, MINNEE E M K, et al. Management strategies for chicory (Cichorium intybus) and plantain (Plantago lanceolata):impact on dry matter yield,nutritive characteristics and plant density[J]. Crop and Pasture Science, 2015, 66(2):168-183.

DOI

[29]
BRYANT R H, WELTEN B G, COSTALL D, et al. Milk yield and urinary-nitrogen excretion of dairy cows grazing forb pasture mixtures designed to reduce nitrogen leaching[J]. Livestock Science, 2018, 209:46-53.

DOI

[30]
DODD M, DALLEY D, WIMS C, et al. A comparison of temperate pasture species mixtures selected to increase dairy cow production and reduce urinary nitrogen excretion[J]. New Zealand Journal of Agricultural Research, 2019, 62(4):504-527.

DOI

[31]
MANGWE M C, BRYANT R H, BECK M R, et al. Forage herbs as an alternative to ryegrass-white clover to alter urination patterns in grazing dairy systems[J]. Animal Feed Science and Technology, 2019, 252:11-22.

DOI

[32]
MINNÉE E M K. LEACH C M T, DALLEY D E. Substituting a pasture-based diet with plantain (Plantago lanceolata) reduces nitrogen excreted in urine from dairy cows in late lactation[J]. Livestock Science, 2020, 239:104093.

DOI

[33]
JIANG M C, DATSOMOR O, CHENG Z Q, et al. Partial substitution of alfalfa hay by stevia (Stevia rebaudiana) hay can improve lactation performance,rumen fermentation, and nitrogen utilization of dairy cows[J]. Frontiers in Veterinary Science, 2022, 9:899148.

DOI

[34]
DOS SANTOS F S, SIGNORETTI R D, DE OLIVEIRA J S, et al. Nitrogen balance and microbial protein synthesis in dairy cows fed with peanut meal to replace soybean meal[J]. Tropical Animal Health and Production, 2022, 54(5):335.

DOI PMID

[35]
YAO K Y, WEI Z H, XIE Y Y, et al. Lactation performance and nitrogen utilization of dairy cows on diets including unfermented or fermented yellow wine lees mix[J]. Livestock Science, 2020, 236:104025.

DOI

[36]
KUOPPALA K, JAAKKOLA S, GARRY B, et al. Effects of faba bean,blue lupin and rapeseed meal supplementation on nitrogen digestion and utilization of dairy cows fed grass silage-based diets[J]. Animal, 2021, 15(7):100300.

DOI

[37]
CHERIF C, HASSANAT F, CLAVEAU S, et al. Faba bean (Vicia faba) inclusion in dairy cow diets:effect on nutrient digestion,rumen fermentation,nitrogen utilization,methane production,and milk performance[J]. Journal of Dairy Science, 2018, 101(10):8916-8928.

DOI

[38]
LAMMINEN M, HALMEMIES-BEAUCHET-FILLEAU A, KOKKONEN T, et al. The effect of partial substitution of rapeseed meal and faba beans by Spirulina platensis microalgae on milk production,nitrogen utilization,and amino acid metabolism of lactating dairy cows[J]. Journal of Dairy Science, 2019, 102(8):7102-7117.

DOI

[39]
PEREIRA A B D, MOURA D C, WHITEHOUSE N L, et al. Production and nitrogen metabolism in lactating dairy cows fed finely ground field pea plus soybean meal or canola meal with or without rumen-protected methionine supplementation[J]. Journal of Dairy Science, 2020, 103(4):3161-3176.

DOI PMID

[40]
JIN D, ZHAO S G, ZHENG N, et al. Urea nitrogen induces changes in rumen microbial and host metabolic profiles in dairy cows[J]. Livestock Science, 2018, 210:104-110.

DOI

[41]
VEENA N, SINGH K C, PRABHU T M, et al. Effect of supplementing slow release nitrogen product on the lactation performance of dairy cows[J]. Animal Nutrition and Feed Technology, 2018, 18(2):205-214.

DOI

[42]
SALAMI S A, MORAN C A, WARREN H E, et al. Meta-analysis and sustainability of feeding slow-release urea in dairy production[J]. PLoS One, 2021, 16(2):e0246922.

[43]
FAGUNDES M A, HALL J O, EUN J S. Effects of feeding different forms of lysine supplements on lactational performance and nitrogen utilization by mid- to late-lactation dairy cows[J]. Applied Animal Science, 2022, 38(1):1-12.

DOI

[44]
ZANG Y, SILVA L H P, GENG Y C, et al. Dietary starch level and rumen-protected methionine,lysine,and histidine:effects on milk yield,nitrogen,and energy utilization in dairy cows fed diets low in metabolizable protein[J]. Journal of Dairy Science, 2021, 104(9):9784-9800.

DOI

[45]
KING L, WICKRAMASINGHE J, DOOLEY B, et al. Effects of microencapsulated methionine on milk production and manure nitrogen excretions of lactating dairy cows[J]. Animals, 2021, 11(12):3545.

DOI

[46]
AMARAL P H R D, ANDRADE P L. DE CONTO L C.Microencapsulation and its uses in food science and technology:a review[M]//SALAÜN F.Microencapsulation-processes,technologies and industrial applications. London:IntechOpen, 2019.

[47]
AMARO F X, KIM D, RESTELATTO R, et al. Lactational performance of dairy cows in response to supplementing N-acetyl-L-methionine as source of rumen-protected methionine[J]. Journal of Dairy Science, 2022, 105(3):2301-2314.

DOI

[48]
GERLACH K, PRIES M, THOLEN E, et al. Effect of condensed tannins in rations of lactating dairy cows on production variables and nitrogen use efficiency[J]. Animal, 2018, 12(9):1847-1855.

DOI PMID

[49]
ZHANG J, XU X F, CAO Z J, et al. Effect of different tannin sources on nutrient intake,digestibility,performance,nitrogen utilization,and blood parameters in dairy cows[J]. Animals, 2019, 9(8):507.

DOI

[50]
HERREMANS S, DECRUYENAERE V, CANTALAPIEDRA-HIJAR G, et al. Effects of hydrolysable tannin-treated grass silage on milk yield and composition, nitrogen partitioning and nitrogen isotopic discrimination in lactating dairy cows[J]. Animal, 2020, 14(4):771-779.

DOI PMID

[51]
PATRA A K, ASCHENBACH J R. Ureases in the gastrointestinal tracts of ruminant and monogastric animals and their implication in urea-N/ammonia metabolism:a review[J]. Journal of Advanced Research, 2018, 13:39-50.

DOI

[52]
DÍAZ CARRASCO J M, CABRAL C, REDONDO L M, et al. Impact of chestnut and quebracho tannins on rumen microbiota of bovines[J]. BioMed Research International, 2017, 2017:9610810.

[53]
LIU S J, ZHANG Z Y, HAILEMARIAM S, et al. Biochanin a inhibits ruminal nitrogen-metabolizing bacteria and alleviates the decomposition of amino acids and urea in vitro[J]. Animals, 2020, 10(3):368.

DOI

[54]
HE Y, ZHANG X Y, LI M, et al. Coptisine:a natural plant inhibitor of ruminal bacterial urease screened by molecular docking[J]. Science of the Total Environment, 2022, 808:151946.

DOI

[55]
ZHANG X Y, HE Y, XIONG Z B, et al. Chelerythrine chloride:a potential rumen microbial urease inhibitor screened by targeting UreG[J]. International Journal of Molecular Sciences, 2021, 22(15):8212.

DOI

Outlines

/