RESEARCH PAPER

Comparative Studies on Growth Performance, Digestion and Metabolism of Energy and Protein and Serum Immune Parameters of Different Breed Lambs

  • LIU Jie , 1 ,
  • LI Wei 1 ,
  • LI Xin 1 ,
  • REN Erjun 1 ,
  • LIU Jinjun 1 ,
  • WANG Pengran 1 ,
  • HAN Xueliang 1 ,
  • ZHANG Yingjie , 2, *
Expand
  • 1 Shijiazhuang Academy of Agriculture and Forestry Sciences, Shijiazhuang 050041, China
  • 2 College of Animal Science and Technology, Hebei Agricultural University, Baoding 071000, China
* professor, E-mail:

Received date: 2023-01-16

  Online published: 2023-07-11

Abstract

This experiment was conducted to investigate the difference of growth performance, digestion and metabolism of energy and protein and serum immune parameters of Dorset lambs, Hu lambs and small tail Han lambs, to provide basic data for precise breeding and management of different breed lambs. Thirty 1-day-old lambs with same fetal times and born in the same maternity barn were selected, each ten of Dorset lambs, Hu lambs and small tail Han lambs were reared for 120 days under the same feeding management mode. The growth performance was measured and the digestion and metabolism experiment was carried out one month after weaning, and the blood sample was collected and the serum immune parameters were analyzed at 1, 10, 20, 70, 90 and 120 days of age. The results showed as follows: 1) the body weight at each day of age of Dorset lambs was significantly higher than that of Hu lambs and small tail Han lambs (P<0.05). 2) The gross energy, methane energy, digestible energy and metabolizable energy of Dorset lambs and Hu lambs were significantly higher than those of small tail Han lambs (P<0.05), and the nitrogen retention of Dorset lambs was significantly higher than that of Hu lambs and small tail Han lambs (P<0.05). 3) The diarrhea rates of lambs from low to high were Dorset lambs, Hu lambs and small tail Han lambs. 4) At 20 days of age, the contents of interleukin-2 (IL-2), interleukin-18 (IL-18), interferon-γ (IFN-γ), immunoglobulin A (IgA), immunoglobulin G (IgG) and immunoglobulin M (IgM) and activity of lysozyme (LZM) in serum of Dorset lambs were significantly higher than those of Hu lambs (P<0.05), and the contents of IL-18 and IgG in serum of Dorset lambs were significantly higher than those of small tail Han lambs (P<0.05); at 90 days of age, the contents of interleukin-1β (IL-1β), IL-2 and IgA in serum of Hu sheep were significantly higher than those of small tail Han lambs (P<0.05), and the contents of interleukin-6 (IL-6), IFN-γ, IgG and IgM in serum of Dorset lambs and Hu lambs were significantly higher than those of small tail Han lambs (P<0.05); at 120 days of age, the contents of IL-1β, IL-6, IL-18, IFN-γ, IgA and IgG in serum of Dorset lambs were significantly higher than those of Hu lambs and small tail Han lambs (P<0.05). It is concluded that compared with Hu lambs and small tail Han lambs, the Dorset lambs have higher nutrient utilization rate and immune level, so its show better growth performance and lower diarrhea rate.

Cite this article

LIU Jie , LI Wei , LI Xin , REN Erjun , LIU Jinjun , WANG Pengran , HAN Xueliang , ZHANG Yingjie . Comparative Studies on Growth Performance, Digestion and Metabolism of Energy and Protein and Serum Immune Parameters of Different Breed Lambs[J]. Chinese Journal of Animal Nutrition, 2023 , 35(7) : 4442 -4452 . DOI: 10.12418/CJAN2023.413

随着羊肉需求的逐年增加,传统粗放型的肉羊饲养方式逐渐向规模化集约型舍饲养殖方向转变,养殖标准化水平和规模化程度提高,产业提质增效潜力释放[1]。规模化集约型舍饲养殖使饲料成本和人力成本大幅上升,为提高经济效益,精细化饲养管理尤为关键。羔羊是规模化羊场经济效益的主要来源,加强羔羊饲养管理是提高规模化羊场经济效益的重要保障[2]
羔羊生长发育迅速,但组织器官发育不完善,体温调节能力差,免疫力低下,消化能力弱,此时期若饲养管理不到位,易导致发病甚至死亡。研究表明,环境变化、饲粮改变、断奶应激等因素均会影响羔羊成活,饲养管理不当极易引发高死亡率和生长势能受损[3-7]。研究发现,不同品种绵羊具有不同的生产特性,在生长发育和疾病易感性或抗性方面存在遗传上的差异[8-9]。道赛特羊原产于澳大利亚,具有早熟、生长速度快、较强抗病力等特点,是世界公认优秀肉羊品种之一,常作为终端父本杂交改良低产品种[10]。湖羊原产于我国太湖平原地区,具有早熟多胎、抗逆性强、宜舍饲、母性好等特性[11]。小尾寒羊原产于黄河流域的山东、河北及河南一带,具有繁殖力高、生长发育快、体格大等特点[12]。湖羊和小尾寒羊均是我国著名的多胎绵羊品种,但生长速度相对国外引进专门化肉羊品种较慢。
随着集约化方式的改变和饲料端的全面禁抗,养殖端出现畜禽尤其是幼龄动物生长性能和饲料利用率降低、发病率增加等情况[13]。从出生到断奶前后是羔羊生长和消化系统发育的关键阶段,降低发病率、提高生长潜力是规模化羊场的当务之急。虽然羔羊体质较弱、抵抗力差、易发生腹泻等疾病,但不同品种羔羊在生长速度、养分消化率和疾病易感性等方面均存在差异,导致在出生、补料和断奶3个关键环节表现出的生长潜力和抗逆性不同,为了提高养殖效益,需要针对不同品种羔羊特点实施不同策略的精准饲养措施,目前有关不同品种羔羊早期发育的比较研究较少,了解不同品种羔羊生长、消化和免疫差异,有助于在饲养管理过程中设计有效的干预策略以提高羔羊成活率和发挥生长潜力。因此,本研究以道赛特羊、湖羊和小尾寒羊羔羊为研究对象,比较其生长性能、能量和蛋白质消化代谢及血清免疫指标的差异性,初步阐明不同品种羔羊生长性能差异的原因,为不同品种羔羊提质增效提供理论基础。

1 材料与方法

1.1 试验设计

试验于2020年10月至2021年1月在河北省衡水市志豪牧业进行,试验羔羊均来自同一批次开展同期发情和人工授精的纯种繁育母羊,选取同一产房、胎次和出生日期的1日龄不同品种羔羊各10窝,均为单羔,其中道赛特羊、湖羊和小尾寒羊羔羊各10只,15日龄时从产房转入母子圈,并开始补饲相同商品羔羊料(购自联英饲料公司,主要由玉米、豆粕、玉米胚芽粕、石粉、氯化钠、预混料等组成。营养水平实测值为:总能16.72 MJ/kg,粗蛋白质含量18.03%,中性洗涤纤维含量23.16%,酸性洗涤纤维含量11.99%)。75日龄时一次性断奶,母羊转移,羔羊留在母子圈,饲喂全混合日粮(TMR),直至120日龄试验结束。TMR组成及营养水平见表1。试验期内,所有试验羊均由固定人员进行专门饲养,每日分别在07:00和16:00各饲喂1次,自由采食和饮水。
表1 全混合日粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the TMR (DM basis) %

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 12.50
花生秧Peanut vine 37.50
玉米Corn 20.00
麸皮Wheat bran 3.30
玉米胚芽饼Corn germ meal 8.00
豆粕Soybean meal 6.70
干酒糟及其可溶物DDGS 8.00
食盐NaCl 0.75
小苏打NaHCO3 0.75
预混料Premix1) 2.50
合计Total 100.00
营养水平Nutrient levels2)
总能GE/(MJ/kg) 16.97
粗蛋白质CP 12.27
中性洗涤纤维NDF 49.29
酸性洗涤纤维ADF 32.70
钙Ca 0.86
磷P 0.33

1)预混料为每千克全混合日粮提供 The premix provided the following per kg of the TMR:VA 7 650 IU,VD 2 750 IU,VE 40 mg,Fe 30 mg,Zn 50 mg,Mn 20 mg,Cu 6 mg,Se 0.30 mg,I 0.40 mg,Co 0.2 mg。

2)营养水平均为实测值。Nutrient levels were all measured values.

1.2 检测指标

1.2.1 体重

每10 d于晨饲前空腹称量体重,计算平均日增重。

1.2.2 消化代谢

羔羊断奶后1个月每组随机选取3只羔羊进行消化代谢试验,采用全收粪尿法连续3 d分别收集粪和尿。每天称取并记录每只羊排粪量和尿液体积,粪样按10%取样加入10 mL 10% H2SO4,尿样用盛有100 mL 10% H2SO4的塑料桶收集,按10%比例取样,将每只羊3 d的粪样、尿样分别混合后冷冻保存。依据GB/T 6432—2018和《饲料分析及饲料质量检测技术》[14]测定饲料样、粪样和尿样中粗蛋白质(CP)含量和总能(GE)等,甲烷能参照Blaxter等[15]的公式推算计算营养物质表观消化率及氮代谢和能量代谢指标。相关计算公式如下:
营养物质表观消化率(%)=100×(日食入
饲粮量×饲粮中营养物质含量-日排粪量×
粪中营养物质含量)/(日食入饲粮量×
饲粮中营养物质含量);
氮沉积(g/d)=食入氮-粪氮-尿氮;
净蛋白质利用率(%)=100×氮沉积/食入氮;
蛋白质生物学价值(%)=100×氮沉积/(食入氮-粪氮);
摄入总能(MJ/d)=试验动物每日采食量×饲粮总能;
消化能(MJ/d)=摄入总能-粪能;
代谢能(MJ/d)=摄入总能-粪能-尿能-甲烷能;
总能消化率(%)=100×(消化能/摄入总能);
总能代谢率(%)=100×(代谢能/摄入总能);
消化能代谢率(%)=100×(代谢能/消化能;
甲烷能占总能百分比(%)=3.67+0.062D+0.050D-2.37;
甲烷能(MJ/d)=摄入总能×甲烷能占总能百分比。
式中:D为试验羊采食TMR的总能消化率。

1.2.3 腹泻率

观察记录试验期间每天每组羔羊腹泻情况,颗粒状为正常,糊状、不成型或液体为腹泻,腹泻率计算方法如下:
腹泻率(%)=100×试验期腹泻只次数/(试验天数×试验只数)。

1.2.4 血清免疫指标

在羔羊1、10、20、70、90和120日龄(分别为出生当天、补料前、补料后、断奶前、断奶后、4月龄),空腹颈静脉采血5 mL,静置后3 000 r/min离心20 min,分离出的血清分装于1.5 mL离心管中,于-20 ℃保存,采用酶联免疫吸附测定法分析主要先天性免疫指标白细胞介素-1β(IL-1β)、白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-18(IL-18)、干扰素-γ(IFN-γ)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)含量及溶菌酶(LZM)活性。各免疫指标测定试剂盒均购自南京建成生物工程研究所。

1.3 数据统计分析

试验数据采用Excel 2019进行初步整理,统计分析采用SPSS 22.0统计软件进行单因子方差分析(one-way ANOVA),差异显著者用Duncan氏法进行多重比较检验,结果以平均值±标准差表示,P<0.05为差异显著,P>0.05为差异不显著。

2 结果

2.1 不同品种羔羊的生长性能

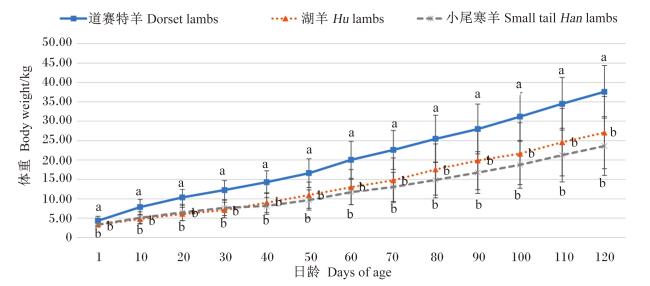
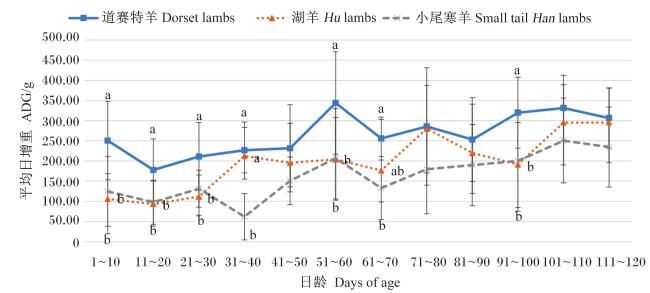
图1图2所示,道赛特羊各日龄体重均显著高于湖羊和小尾寒羊(P<0.05);湖羊和小尾寒羊各日龄体重差异不显著(P>0.05)。道赛特羊的1~10日龄、11~20日龄、21~30日龄、51~60日龄、91~100日龄平均日增重显著高于湖羊和小尾寒羊(P<0.05),湖羊和小尾寒羊之间差异不显著(P>0.05);道赛特羊和湖羊的31~40日龄平均日增重显著高于小尾寒羊(P<0.05),道赛特羊和小尾寒羊之间差异不显著(P>0.05);道赛特羊的61~70日龄平均日增重显著高于小尾寒羊(P<0.05),与湖羊之间差异不显著(P>0.05);各品种之间其他阶段平均日增重差异均不显著(P>0.05)。生长速度按照从高到低依次为:道赛特羊>湖羊>小尾寒羊。
图1 不同品种羔羊不同日龄体重

数据标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Body weight of different breed lambs at different days of age

Values with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

图2 不同品种羔羊的平均日增重

Fig.2 ADG of different breed lambs

2.2 不同品种羔羊的能量消化代谢指标

表2可见,道赛特羊和湖羊每天摄入的总能、排出的甲烷能、可利用的消化能和代谢能均显著高于小尾寒羊(P<0.05);不同品种羔羊的粪能、尿能、粪能占总能百分比、尿能占总能百分比、甲烷能占总能百分比、总能消化率、总能代谢率和消化能代谢率差异不显著(P>0.05)。
表2 不同品种羔羊的能量消化代谢指标

Table 2 Energy digestion and metabolism indexes of different breed lambs

项目
Items
道赛特羊
Dorset lambs
湖羊
Hu lambs
小尾寒羊
Small tail Han lambs
总能GE/(MJ/d) 22.01±0.82a 21.07±0.65a 18.17±0.80b
粪能FE/(MJ/d) 5.72±1.88 4.89±0.61 4.58±0.65
尿能UE/(MJ/d) 0.16±0.10 0.38±0.12 0.21±0.14
甲烷能ECH4/(MJ/d) 2.11±0.11a 2.09±0.07a 1.76±0.06b
消化能DE/(MJ/d) 16.28±1.09a 16.18±0.59a 13.59±0.47b
代谢能ME/(MJ/d) 14.02±1.04a 13.72±0.57a 11.63±0.52b
粪能占总能百分比FE/GE/% 25.83±7.53 23.17±2.51 25.13±2.72
尿能占总能百分比UE/GE/% 0.71±0.42 1.78±0.49 1.17±0.74
甲烷能占总能百分比ECH4/GE/% 9.61±0.84 9.91±0.28 9.69±0.30
总能消化率DE/GE/% 74.17±7.53 76.83±2.51 74.87±2.72
总能代谢率ME/GE/% 63.86±6.89 65.14±2.71 64.01±3.01
消化能代谢率ME/DE/% 86.06±0.70 84.77±0.78 85.48±1.10

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。表3表5同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as Table 3 and Table 5.

2.3 不同品种羔羊的蛋白质消化代谢指标

表3可见,道赛特羊和湖羊的食入氮显著高于小尾寒羊(P<0.05);湖羊的尿氮显著高于道赛特羊(P<0.05),与小尾寒羊差异不显著(P>0.05);道赛特羊的氮沉积显著高于湖羊和小尾寒羊(P<0.05);道赛特羊的蛋白质生物学价值显著高于湖羊(P<0.05),与小尾寒羊差异不显著(P>0.05);不同品种羔羊的粪氮、总氮排出量、蛋白质消化率和净蛋白质利用率差异均不显著(P>0.05)。
表3 不同品种羔羊的蛋白质消化代谢指标

Table 3 Protein digestion and metabolism indexes of different breed lambs

项目
Items
道赛特羊
Dorset lambs
湖羊
Hu lambs
小尾寒羊
Small tail Han lambs
食入氮IN/(g/d) 34.27±1.10a 32.68±0.69a 28.19±1.20b
粪氮FN/(g/d) 7.92±2.13 7.44±0.58 6.70±1.81
尿氮UN/(g/d) 1.51±0.76b 3.88±1.29a 1.89±2.13ab
总排出氮TN/(g/d) 9.43±2.76 11.31±1.61 8.59±0.62
氮沉积RN/(g/d) 24.84±1.72a 21.37±1.04b 19.59±1.11b
蛋白质消化率CPD/% 77.00±5.44 77.26±1.36 76.37±5.57
净蛋白质利用率NPU/% 72.62±7.18 65.43±4.28 69.69±6.47
蛋白质生物学价值BV of protein/% 94.20±3.04a 84.67±4.95b 91.24±5.13ab

2.4 不同品种羔羊的腹泻率

表4可见,与道赛特羊相比,湖羊和小尾寒羊的腹泻率分别增加了0.55和1.73个百分点。
表4 不同品种羔羊的腹泻率

Table 4 Diarrhea rate of different breed lambs %

项目
Item
道赛特羊
Dorset lambs
湖羊
Hu lambs
小尾寒羊
Small tail Han lambs
腹泻率Diarrhea rate 0.08 0.63 1.81

2.5 不同品种羔羊的血清免疫指标

表5可见,20日龄时,道赛特羊的血清IL-2、IL-18、IFN-γ、IgA、IgG、IgM含量和LZM活性显著高于湖羊(P<0.05),道赛特羊的血清IL-18和IgG含量显著高于小尾寒羊(P<0.05);90日龄时,湖羊的血清IL-1β、IL-2和IgA含量显著高于小尾寒羊(P<0.05),道赛特羊和湖羊的血清IL-6、IFN-γ、IgG、IgM含量显著高于小尾寒羊(P<0.05);120日龄时,道赛特羊的血清IL-1β、IL-6、IL-18、IFN-γ、IgA、IgG含量显著高于湖羊和小尾寒羊(P<0.05),道赛特羊的血清IL-2和IgM含量显著高于湖羊(P<0.05),小尾寒羊的血清IL-2含量显著高于湖羊(P<0.05)。不同品种羔羊其他日龄的血清免疫指标均差异不显著(P>0.05)。

3 讨论

3.1 不同品种羔羊的生长性能

生长性能是肉羊最重要的经济性能,直接影响经济效益[16]。影响生长性能的主要因素有品种、性别、产羔类型等内因,以及饲养管理水平和营养条件等外因,其中品种作为遗传因素起主导作用[17-18]。湖羊和小尾寒羊这2个地方品种具有较高的生长性能以及生产潜力,在我国肉羊生产中发挥较大作用,但与道赛特羊这种生长发育快的专门化肉用绵羊品种相比,仍有明显差距[19]。刘明等[18]通过对杜泊羊、湖羊和滩羊3个不同肉用绵羊品种生长性能进行比较发现,杜泊羊每个阶段的体重、平均日增重显著高于湖羊和滩羊。本试验中,在相同饲粮与饲养管理条件下,不同品种羔羊生长曲线明显不同,道赛特羊从出生开始一直处于优势,道赛特羊体重和平均日增重也明显优于湖羊和小尾寒羊。这与Wildeus等[20]的研究结果一致,其也证实不同品种绵羊的生长性能不同,发现Katahdin、Blackbelly和St.Croix 3个绵羊品种羔羊的始重和末重存在显著差异,Katahdin和St.Croix羔羊的平均日增重显著高于Blackbelly羔羊。由于不同遗传基础的纯种肉羊生长性能存在显著差异,建议羊场应根据不同品种羔羊生长发育特点,实施不同策略的精准饲养措施,对于生长速度较快的肉羊品种,可以通过早期断奶缩短母羊繁殖周期以提高繁殖效率,对于生长速度较慢的品种可以通过与专门化肉羊品种进行杂交或加强饲养管理水平,以提高商品羊生长性能。本试验为了剔除产羔类型因素对结果的影响,3个品种羔羊均选择单羔作为试验动物,但实际生产中湖羊和小尾寒羊双羔数较多,后续试验中将增加不同品种之间其他产羔数羔羊生长性能的比较,从而更加全面地了解不同品种羔羊的生长性能,为羔羊精细化饲养管理和商品羊杂交策略提供更加详实的依据。
表5 不同品种羔羊的血清免疫指标

Table 5 Serum immune parameters of different breed lambs

项目
Items
日龄
Days of age
道赛特羊
Dorset lambs
湖羊
Hu lambs
小尾寒羊
Small tail Han lambs
白细胞介素-1β
IL-1β/(ng/L)
1 19.31±3.12 20.03±2.80 21.63±2.46
10 21.99±3.96 24.48±2.60 24.78±5.50
20 25.25±1.06 20.11±5.70 22.96±5.03
70 24.71±4.87 25.46±2.93 25.48±4.01
90 23.54±2.56ab 26.52±5.29a 20.41±4.02b
120 25.51±5.22a 18.92±2.45b 20.89±2.85b
白细胞介素-2
IL-2/(ng/L)
1 28.42±3.40 30.53±3.53 28.77±7.91
10 30.77±7.39 31.06±3.27 32.79±5.75
20 30.29±3.91a 24.57±4.15b 29.08±4.83ab
70 31.18±5.94 29.28±5.31 29.51±5.84
90 30.83±7.05ab 33.45±6.13a 26.51±3.54b
120 31.87±4.49a 23.19±4.55b 28.35±4.24a
白细胞介素-6
IL-6/(ng/L)
1 48.34±5.49 57.31±9.38 55.17±18.17
10 65.01±16.51 66.90±7.21 62.30±18.11
20 66.61±11.00 46.68±10.71 56.25±12.45
70 74.99±11.92 72.95±20.07 63.87±11.73
90 72.41±12.79a 75.89±15.74a 55.84±7.25b
120 79.06±17.44a 47.10±9.00b 55.28±11.71b
白细胞介素-18
IL-18/(ng/L)
1 65.23±12.04 71.11±3.81 63.29±8.75
10 78.07±12.96 79.46±9.23 82.84±17.44
20 82.77±4.42a 62.88±7.22b 71.99±13.28b
70 85.22±14.08 84.96±18.48 82.57±9.96
90 80.04±11.80a 64.04±17.52b 61.59±8.81b
120 56.07±13.47a 39.41±5.62b 39.55±5.34b
干扰素-γ
IFN-γ/(ng/L)
1 54.87±10.89 60.20±8.82 57.57±10.38
10 75.90±15.10 82.81±14.87 78.28±19.20
20 89.66±13.12a 58.54±14.93b 70.53±18.67ab
70 92.64±14.10 97.50±28.11 88.89±18.21
90 82.30±17.30a 89.21±19.34a 62.63±12.17b
120 82.74±20.70a 47.48±8.67b 52.96±16.25b
溶菌酶
LZM/(U/mL)
1 96.97±24.24 135.76±35.75 125.25±54.66
10 136.36±20.70 131.31±27.01 157.58±51.43
20 145.45±15.33a 107.08±20.88b 117.17±31.30ab
70 123.23±28.08 115.15±34.92 117.17±34.29
90 137.37±28.34 113.64±28.20 109.09±32.82
120 123.23±29.11 128.79±22.39 135.76±14.90
免疫球蛋白A
IgA/(mg/mL)
1 2.09±0.50 2.31±0.35 1.86±0.20
10 2.12±0.41 2.21±0.54 2.33±0.60
20 2.24±0.52a 1.55±0.51b 1.88±0.53ab
70 2.17±0.60 1.88±0.42 1.85±0.49
90 1.91±0.45ab 2.24±0.42a 1.44±0.49b
120 2.06±0.39a 1.25±0.24b 1.52±0.27b
免疫球蛋白G
IgG/(mg/mL)
1 11.74±1.07 13.51±1.41 12.18±2.48
10 13.39±2.26 13.14±1.38 13.84±2.12
20 13.23±1.25a 9.83±1.54b 11.16±1.67b
70 13.66±2.03 13.38±2.49 12.43±2.17
90 13.32±2.02a 13.47±2.07a 11.24±1.13b
120 12.63±1.40a 9.65±0.97b 10.76±2.23b
免疫球蛋白M
IgM/(mg/mL)
1 2.11±0.67 2.19±0.71 2.28±1.31
10 1.58±0.70 2.17±0.61 2.24±0.43
20 2.82±0.30a 1.77±0.65b 2.48±1.20ab
70 2.81±0.76 2.80±0.76 2.33±0.80
90 3.02±0.57a 3.07±0.96a 1.93±0.85b
120 2.90±0.48a 1.96±0.70b 2.20±1.02ab

3.2 不同品种羔羊的能量和蛋白质消化代谢

营养物质消化代谢反映了动物消化和利用饲粮中营养物质的能力,动物的生长发育与自身消化吸收能力密切相关,品种是影响绵羊营养物质需要量和利用率的重要因素之一,因此了解不同品种绵羊消化代谢特点可以有效发挥品种优势和生长潜力,为实现不同品种绵羊的精准营养和提质增效奠定基础。刘明等[18]研究3种不同肉用绵羊品种对羔羊营养物质表观消化率的影响,发现杜泊羊总体营养物质表观消化率均高于湖羊和滩羊,认为这可能是杜泊羊生长性能优于湖羊和滩羊的原因之一。Wildeus等[20]比较了3种不同粗毛绵羊品种羔羊消化代谢的差异,发现Katahdin羔羊的营养物质表观消化率和氮沉积及吸收利用率高于Blackbelly羔羊和St.Croix羔羊,不同品种羔羊的氮代谢存在显著差异。本试验中,在相同饲粮和饲养管理条件下,不同品种羔羊对能量和蛋白质表观消化率差异不显著,但是氮代谢和能量代谢呈明显差异,道赛特羊的氮沉积显著高于湖羊和小尾寒羊,而且消化能和代谢能也较高,主要原因是由于湖羊和小尾寒羊的尿氮和尿能较高,降低了对能量和蛋白质的利用率。研究表明,代谢能比消化能更为精准体现羊只对营养物质的利用率,而氮代谢相比消化率也能更为直接准确反映动物体内对饲粮蛋白质消化、吸收和利用程度,是因为未被瘤胃微生物利用的过量氨通过瘤胃壁吸收并在肝脏转化为尿素后,大部分从尿中排出,氮损失较大,而在计算消化率时,氮的可消化部分还包括从尿中排出的氮损失,所以氮代谢更能准确说明氮被消化利用的程度[21-23]。建议羔羊生产中针对不同品种特点采取更适宜的营养需要标准和管理策略,对于营养物质利用率较低的品种,可以通过调整精粗比例、进行饲料发酵等加工处理或使用过瘤胃产品等添加剂以提高营养物质利用率,降低饲料的浪费。

3.3 不同品种羔羊的免疫功能

动物抗病力一般受先天性免疫和后天性免疫所协调,在无人工干预情况下,先天性免疫是组成机体防御的第1道防线,决定机体处于外界环境中的抗病力和对疾病的易感性,是机体抵抗疾病的基础。动物机体内的白细胞介素、干扰素、LZM、免疫球蛋白等是体现先天性免疫水平的重要指标[24]。白细胞介素是细胞产生的因子,其中白细胞介素-1(IL-1)和IL-6可作用于免疫细胞,增强免疫反应,减轻应激损伤[25]。IL-2是机体免疫调节网络中的核心物质,反映机体免疫应答启动情况,在细胞及体液免疫中均有重要的调节作用[26]。IFN-γ是介导细胞免疫的重要细胞因子,IL-18是IFN-γ诱生因子,可用于判定羊的免疫水平[27]。LZM是体内重要的溶解细菌的酶类,与补体、干扰素等协同作用,发挥机体先天免疫的重要功能[28-32]。免疫球蛋白主要包括IgA、IgG和IgM,协作抵御外源病原微生物入侵,当应激持续作用于机体时,免疫球蛋白含量升高,机体免疫功能增强,反映机体的抗病潜能[33-34]。本试验中,在相同饲粮和饲养管理条件下,不同品种羔羊在出生后和补料前免疫指标差异不显著,但在20日龄(补料后)和90日龄(断奶后),道赛特羊的血清白细胞介素、IFN-γ、LZM和免疫球蛋白均处于相对较高水平。这与张潆月等[8]和王国明等[28]研究结果一致。张潆月等[8]通过比较欧拉羊、白藏羊和无角道赛特羊先天性免疫水平和品种特性,发现本地绵羊品种的先天性免疫水平低于引进绵羊品种,表明引进品种道赛特羊的先天性免疫基础好,抗病力强,具有很好的抗逆性和适应性。王国明等[28]通过对小尾寒羊、敖汉细毛羊、道赛特羊、萨福克羊的主要先天性免疫指标进行比较,发现不同品种绵羊的先天性免疫水平存在显著差异,表明引进品种萨福克羊和无角道赛特羊的先天性免疫水平较高。本试验选用的3个品种纯种肉羊是从2013年开始陆续引入本场,经过多年的饲养管理和风土驯化,均已较好的适应当地舍饲养殖环境,自饲料端禁抗后,断奶前羔羊的腹泻发病率呈现出品种差异。本试验中,羔羊在补料和断奶应激状态下,道赛特羊的先天免疫水平高于湖羊和小尾寒羊,不同品种间腹泻率也存在较大差异,表明先天性免疫指标可以体现品种的抗病力,且可能是导致不同品种羔羊腹泻率存在差异的原因。由于不同品种羔羊在应激状态下表现出不同的抗逆性,建议羔羊生产中针对不同品种抗病力特点及时采取相应的管理策略,对于抗病力较差的品种,发生应激之前可以通过在饲粮中添加替抗添加剂以预防疾病的发生或降低疾病对羔羊生长性能的影响。

4 结论

本试验条件下,与湖羊和小尾寒羊相比,道赛特羊的氮沉积以及血清IL-2、IL-18、IFN-γ、免疫球蛋白含量和LZM活性均较高,尿能、尿氮和腹泻率较低,说明道赛特羊具有较高的能量和蛋白质利用率以及先天性免疫水平和疾病抵抗力,因此表现出较好的生长性能。
[1]
甘春艳, 李军, 金海. 2021年我国肉羊产业发展概况、未来发展趋势及建议[J]. 中国畜牧杂志, 2022, 58(3):258-263.

GAN C Y, LI J, JIN H. Development situation,future development trends and suggestions of China’s meat sheep industry in 2021[J]. Chinese Journal of Animal Science, 2022, 58(3):258-263. (in Chinese)

[2]
李鹏伟, 韩战强. 规模化羊场提高羔羊成活率的综合技术探讨[J]. 畜牧与兽医, 2019, 51(10):138-141.

LI P W, HAN Z Q. Study on comprehensive technology of raising the survival rate of lamb in scale sheep farm[J]. Animal Husbandry & Veterinary Medicine, 2019, 51(10):138-141. (in Chinese)

[3]
史晨迪, 赵晓雅, 田沛知, 等. 羔羊断奶应激期饲喂方式对其生长性能和血清生化指标的影响[J]. 动物营养学报, 2022, 34(6):3799-3813.

DOI

SHI C D, ZHAO X Y, TIAN P Z, et al. Effects of feeding methods on growth performance and serum biochemical indices of lambs during weaning stress period[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3799-3813. (in Chinese)

DOI

[4]
柴建民, 王海超, 刁其玉, 等. 断奶时间对羔羊生长性能和器官发育及血清学指标的影响[J]. 中国农业科学, 2015, 48(24):4979-4988.

DOI

CHAI J M, WANG H C, DIAO Q Y, et al. Effects of weaning stress on growth performance, organ development and serological parameters in lambs[J]. Scientia Agricultura Sinica, 2015, 48(24):4979-4988. (in Chinese)

[5]
李冲. 断奶应激对羔羊消化道结构与功能发育的影响及其机理研究[D]. 博士学位论文. 兰州: 兰州大学, 2019.

LI C. Effects of weaning stress on the structural and functional development of digestive tract of lamb and its mechanism[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2019. (in Chinese)

[6]
李睿. 围产期冷热应激对新生羔羊糖稳态调控的影响[D]. 硕士学位论文. 重庆: 西南大学, 2020.

LI R. Effects of perinatal heat and cold stress on glucose homeostasis regulation in newborn[D]. Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[7]
李晓锐. 冬季羊舍环境调控对绵羊生长性能和生理生化指标的影响[D]. 硕士学位论文. 合肥: 安徽农业大学, 2019.

LI X R. Effects of environmental regulation on growth performance and physiological and biochemical indexes of sheep sheds in winter[D]. Master’s Thesis. Hefei: Anhui Agricultural University, 2019. (in Chinese)

[8]
张潆月, 汪文强, 马利青, 等. 青海省绵羊品种与引进品种先天性免疫研究[J]. 中国畜牧兽医, 2018, 45(7):1873-1880.

ZHANG Y Y, WANG W Q, MA L Q, et al. Study on the innate immunity of local and introduced breeds in Qinghai province[J]. China Animal Husbandry & Veterinary Medicine, 2018, 45(7):1873-1880. (in Chinese)

[9]
杨华, 杨永林, 冯建丽, 等. 绵羊品种间部分血液免疫指标比较分析[J]. 新疆农业科学, 2013, 50(11):2118-2124.

YANG H, YANG Y L, FENG J L, et al. The comparison of some blood immune parameters in sheep[J]. Xinjiang Agricultural Sciences, 2013, 50(11):2118-2124. (in Chinese)

[10]
周喜荣, 玛尔孜亚·亚森, 阿米妮古丽·阿不来孜, 等. 引进肉羊品种资源利用与生产适应性研究概况[J]. 草食家畜, 2022(3):6-11.

ZHOU X R, YASEN M E Z Y, ABULAIZI A M N G L, et al. Study on resource utilization and production adaptability of imported mutton sheep breeds[J]. Grass-Feeding Livestock, 2022(3):6-11. (in Chinese)

[11]
何茂昌, 董和, 杨军祥, 等. 湖羊杂交组合筛选试验研究[J]. 畜牧与兽医, 2022, 54(1):22-26.

HE M C, DONG H, YANG J X, et al. Screening hybrid combinations of Hu sheep[J]. Animal Husbandry & Veterinary Medicine, 2022, 54(1):22-26. (in Chinese)

[12]
渠珂, 许晓彤, 范敬常, 等. 浅析小尾寒羊品种发展问题与建议[J]. 山东畜牧兽医, 2022, 43(12):28-31.

QU K, XU X T, FAN J C, et al. Analysis of variety development problem and suggestions of small tail Han sheep[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2022, 43(12):28-31. (in Chinese)

[13]
柏凡. 无抗饲料元年我国饲料质量安全形势分析[J]. 四川畜牧兽医, 2021, 48(7):9-13.

BAI F. Analysis on situation of feed quality and safety in the first year of antibiotic-free feed[J]. Sichuan Animal & Veterinary Sciences, 2021, 48(7):9-13. (in Chinese)

[14]
张丽英. 饲料分析及饲料质量检测技术[M]. 3版. 北京: 中国农业大学出版社, 2007.

ZHANG L Y. Feed analysis and feed quality inspection technology[M]. 3rd ed. Beijing: China Agricultural University Press, 2007. (in Chinese)

[15]
BLAXTER K L, CLAPPERTON J L. Prediction of the amount of methane produced by ruminants[J]. British Journal of Nutrition, 1965, 19(4):511-522.

PMID

[16]
江喜春, 范恒功, 刘晓东, 等. 杜泊羊与湖羊杂交组合的生长与繁殖性能研究[J]. 安徽农学通报, 2022, 28(4):70-72.

JIANG X C, FAN H G, LIU X D, et al. Studies on growth and reproductive performance of cross combinations of Doper and Hu sheep[J]. Anhui Agricultural Science Bulletin, 2022, 28(4):70-72. (in Chinese)

[17]
周营, 周荣艳, 岳巧娴, 等. 特克赛尔羊和哈萨克羊不同杂交后代羔羊生长性能的比较分析[J/OL]. 中国畜牧杂志:1-14[2022-10-28].https://doi.org/10.19556/j.0258-7033.

ZHOU Y, ZHOU R Y, YUE Q X, et al. Comparative analysis of growth performance of lambs from different progeny of Texel and Kazakh sheep[J/OL]. Chinese Journal of Animal Science:1-14[2022-10-28].https://doi.org/10.19556/j.0258-7033.20220519-03. (in Chinese)

[18]
刘明, 赵新钢, 张灿, 等. 不同品种绵羊羔羊小肠形态和消化酶活性差异的研究[J]. 动物营养学报, 2020, 32(11):5322-5330.

DOI

LIU M, ZHAO X G, ZHANG C, et al. Differences in small intestinal morphology and digestive enzyme activities of different breed lambs[J]. Chinese Journal of Animal Nutrition, 2020, 32(11):5322-5330. (in Chinese)

[19]
SUN X P, LIU J B, ZHANG W L, et al. Comparison of growth and development traits among crossbreds of Dorset and local sheep varieties in Gansu province[J]. Agricultural Science & Technology, 2016, 17(1):117-121,143.

[20]
WILDEUS S, TURNER K E, COLLINS J R. Growth,intake,diet digestibility,and nitrogen use in three hair sheep breeds fed alfalfa hay[J]. Small Ruminant Research, 2007, 69(1/3):221-227.

DOI

[21]
梁本聪, 杨改青, 王福州, 等. 零余子对绵羊生长性能、营养物质消化代谢、血清生化指标及免疫功能的影响[J]. 动物营养学报, 2022, 34(6):3814-3823.

DOI

LIANG B C, YANG G Q, WANG F Z, et al. Effects of bulbil on growth performance,nutrient digestion and metabolism,serum biochemical indices and immune function of sheep[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3814-3823. (in Chinese)

[22]
刘洁, 李伟, 王武兵, 等. 不同牧草青贮对绵羊生长性能和消化代谢的影响[J]. 饲料研究, 2019, 42(10):18-21.

LIU J, LI W, WANG W B, et al. Effect of different forage silage on growth performance,digestion and metabolism in sheep[J]. Feed Research, 2019, 42(10):18-21. (in Chinese)

[23]
XU G S, MA T, JI S K, et al. Energy requirements for maintenance and growth of early-weaned Dorper crossbred male lambs[J]. Livestock Science, 2015, 177:71-78.

DOI

[24]
SALAK-JOHNSON J L, MCGLONE J J. Making sense of apparently conflicting data:stress and immunity in swine and cattle[J]. Journal of Animal Science, 2007, 85(13 Suppl.):E81-E88.

[25]
YANG Z J, LIU C, ZHENG W J, et al. The functions of antioxidants and heat shock proteins are altered in the immune organs of selenium-deficient broiler chickens[J]. Biological Trace Element Research, 2016, 169(2):341-351.

DOI PMID

[26]
李倜宇. 壳聚糖对奶牛免疫功能的影响及其调节机理的研究[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2018.

LI T Y. Effects of chitosan on immune function in dairy cows and the underlying regulation mechanism[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2018. (in Chinese)

[27]
SATO K, HIDA S, TAKAYANAGI H, et al. Antiviral response by natural killer cells through TRAIL gene induction by IFN-alpha/beta[J]. European Journal of Immunology, 2001, 31(11):3138-3146.

DOI PMID

[28]
王国明, 毕崇亮, 王秋菊, 等. 不同品种绵羊和山羊主要先天性免疫指标的比较[J]. 中国兽医学报, 2013, 33(9):1467-1469,1480.

WANG G M, BI C L, WANG Q J, et al. Comparison of the important innate immune parameters in sheep and goats[J]. Chinese Journal of Veterinary Science, 2013, 33(9):1467-1469,1480. (in Chinese)

[29]
CHARLEY B, MCCULLOUGH K, MARTINOD S. Antiviral and antigenic properties of recombinant porcine interferon gamma[J]. Veterinary Immunology and Immunopathology, 1988, 19(2):95-103.

PMID

[30]
潘晓梅, 窦永喜, 才学鹏. 猪干扰素-γ的研究进展[J]. 生物技术通报, 2008(6):36-39.

PAN X M, DOU Y X, CAI X P. The advance in porcine interferon-gamma[J]. Biotechnology Bulletin, 2008(6):36-39. (in Chinese)

[31]
王国明. 羊主要先天性免疫指标的检测与分析[D]. 硕士学位论文. 泰安: 山东农业大学, 2012.

WANG G M. Determination and analysis of the main innate immune parameters of sheep and goats[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2012. (in Chinese)

[32]
叶繁翔, 谭佳丽, 何锦艳, 等. 畜禽干扰素-γ研究进展[J]. 湖北农业科学, 2017, 56(16):3001-3004,3041.

YE F X, TAN J L, HE J Y, et al. Research progress of interferon-γ in livestock and poultry[J]. Hubei Agricultural Sciences, 2017, 56(16):3001-3004,3041. (in Chinese)

[33]
王玲, 罗宗刚, 蔡明成, 等. 热应激对肉牛血清离子、酶活性、抗氧化及免疫指标的影响[J]. 西南师范大学学报(自然科学版), 2017, 42(12):37-41.

WANG L, LUO Z G, CAI M C, et al. Effect of heat stress on serum ionic concentration,enzymatic activity,antioxidant and immune index in beef cattle[J]. Journal of Southwest China Normal University(Natural Science Edition), 2017, 42(12):37-41. (in Chinese)

[34]
贾斌, 申红, 余智勇, 等. 多浪羊和中国美利奴羊MHC-DRB1基因多态性与包虫病的遗传易感性[J]. 中国人兽共患病学报, 2007, 23(10):1004-1008,1012.

JIA B, SHEN H, YU Z Y, et al. Polymorphism of the ovine major histocompatibility complex class Ⅱ DRB1 gene and the genetic susceptibility to hydatidosis[J]. Chinese Journal of Zoonoses, 2007, 23(10):1004-1008,1012. (in Chinese)

Outlines

/