

体内高浓度自由基的积累导致氧化还原系统失衡以及乳腺的异常炎性反应,从而导致奶牛乳腺炎发病率增加。一氧化氮(nitric oxide,NO)是体内重要的活性氮类自由基(reactive nitrogen species,RNS),一氧化氮合成酶(nitric oxide synthases,NOS)在多种细胞中参与催化L-精氨酸(L-arginine,L-Arg)与氧气(oxygen,O2)的多步骤氧化还原反应,并不断产生低浓度的内源性NO分子[1]。然而,当NO产生过量时,它可以与超氧阴离子( )反应,形成有害的自由基,导致炎症,而炎症又可以引起细胞凋亡和组织损伤。因此,有效地控制奶牛乳腺上皮细胞(bovine mammary epithelial cells,BMEC)中NO的过量生产,以防止乳腺组织中RNS积累造成氧化损伤是非常重要的。研究表明,炎性因子白细胞介素-1(interleukin-1,IL-1)的产生是触发目标基因诱导型一氧化氮合酶(inducible nitric oxide synthase,iNOS)表达增加和NO产生过多的重要原因。例如,激活的滑膜细胞和软骨细胞中IL-1β的过度产生介导了前列腺素活性和NO相关的酶如环氧化酶-2和iNOS活性的增加,导致NO的蓄积[2⇓-4]。IL-1主要包括IL-1α、IL-1β,是调节体内免疫和炎症反应的核心介质[5],IL-1α或IL-1β与各自的受体结合,激活相关信号通路[6]。白细胞介素-1受体拮抗剂(interleukin-1 receptor antagonist,IL-1Ra)是一种内源性的细胞因子,能选择性地与IL-1型受体(如IL-1α和IL-1β受体)结合,阻断细胞内信号传导途径体内IL-1与IL-1Ra之间的平衡对免疫状态和内环境的稳定很重要[7]。IL-1表达高,IL-1Ra表达低,机体处于病理状态。研究发现,添加外源性IL-1Ra可以抑制IL-1的生成,促进机体恢复IL-1与IL-1Ra之间的平衡[8]。革兰氏阴性杆菌细胞壁的主要组分之一脂多糖(lipopolysaccharide,LPS)作为诱导机体发生氧化损伤的一种毒素,已经被广泛地用于建立动物炎症和细菌感染模型[9]。本课题组的前期研究已经以BMEC为研究对象成功建立了LPS诱导的氧化应激模型,确定了LPS适宜的作用浓度(1.0 μg/mL)和作用时间(6 h)[10]。当巨噬细胞受到过量的LPS刺激时,会产生大量的肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)和IL-1β等炎性因子[11]。研究发现,0.1 mg/kg的IL-1Ra显著减弱了LPS诱导的成年大鼠慢性神经炎症及损伤[12]。在人和小鼠的星形胶质细胞中,IL-1可以诱导产生过量的iNOS[13],这在人的软骨细胞中也得到了证实[14]。以上研究提示,IL-1Ra通过阻断IL-1信号对细胞氧化损伤发挥保护作用,但关于其作用剂量各研究结果不一,且针对BMEC的报道甚少。鉴于此,本试验以LPS为应激源诱导建立的BMEC氧化损伤模型为基础[15],探究IL-1Ra对LPS诱导的BMEC氧化损伤的保护作用以及抑制IL-1活性的最佳作用浓度,为进一步深入探讨BMEC的氧化应激机制及抗氧化机理奠定基础。
1 材料与方法
1.1 试剂配制
工作液的制备:将IL-1Ra溶于含0.1%牛血清白蛋白(BSA)的磷酸盐缓冲液(PBS)中,配制成浓度为1.0 μg/mL的母液,再按照试验要求配制成浓度分别为0、2.5、5.0、10.0、50.0、100.0 ng/mL的IL-1Ra贮备液。试验开始前经饥饿培养基进一步稀释配制成不同浓度(0、0.25、0.50、1.00、5.00、10.00 ng/mL)的工作液。工作液经过滤器(0.22 μm)过滤后避光保存。
取1 mg的LPS粉末溶于1 mL DMEM/F12中,配成1 mg/mL的LPS母液。继续稀释10倍配制成0.1 mg/mL的LPS贮备液。试验开始前,用0.1 mg/mL的LPS贮备液和饥饿培养基配制成1 μg/mL的LPS细胞工作液。配制好的工作液用0.22 μm过滤器过滤,每次换液体时现配并且避光保存。
1.2 细胞培养
细胞培养采用胶原酶消化法。于内蒙古自治区呼和浩特市北亚清真冷库采集荷斯坦奶牛的乳腺组织,切除外层,用含有3×双抗的PBS冲洗3次,用75%的医用酒精冲洗30 s,接着用含有1×双抗的PBS冲洗3次,冲洗后的组织切除表面,从腺体的深部滤泡中切下1 mm3的碎片装入离心管中。反复剪碎后加入0.5%的Ⅱ型胶原酶于37 ℃下消化1 h,每20 min轻轻摇晃1次以确保完全消化。然后用孔径为180 μm的细胞滤网过滤组织,收集于新的离心管中,400×g离心5 min。去除上清液并清洗细胞,将细胞重新悬浮在PBS中,再次离心5 min(400×g)。将重悬于PBS的细胞接种到培养瓶中,置于培养箱(37 ℃、5% CO2)培养。当BMEC在培养瓶底部生长到80%~90%时,采用差速法纯化细胞。本试验采用第3代细胞进行研究,细胞经荧光免疫细胞染色法鉴定[16]。
1.3 试验设计
采用单因子完全随机试验设计,将第3代贴壁生长的BMEC随机分为12个组,第1组为对照组,工作液中不添加LPS和IL-1Ra;第2组为LPS组,工作液中LPS浓度为1.0 μg/mL;第3~7组为单独添加IL-1Ra组,工作液中IL-1Ra浓度分别为0.25、0.50、1.00、5.00、10.00 ng/mL,依次命名为ra0.25、ra0.5、ra1、ra5、ra10组;第8~12组为同时添加LPS和IL-1Ra组,工作液中LPS浓度均为1.0 μg/mL,IL-1Ra浓度分别为0、0.25、0.50、1.00、5.00、10.00 ng/mL,依次命名为Lra0.25、Lra0.5、Lra1、Lra5、Lra10组。每组设6个重复。不同处理的工作液作用于细胞6 h后,测定细胞相对增殖率(relative growth rate,RGR),并收集细胞和培养液测定抗氧化指标和炎性因子含量。
1.4 样品采集
BMEC经不同处理的工作液处理6 h后,以重复为单位收集细胞培养液于离心管中,15 455×g离心10 min,收集上清液用于后续指标的测定。接着,将培养瓶置于冰上,经PBS清洗后加入1 mL动物细胞裂解液,30 min后用细胞刮刀刮取贴壁细胞,收集于离心管中离心10 min(15 455×g,4 ℃),收集上清用于后续指标的测定。
1.5 测定指标及方法
RGR采用四甲基偶氮唑盐[MTT]法测定,通过吸光度(OD)值的大小反映细胞的存活数量,OD值越高,说明细胞的存活数量越多。RGR(%)=(试验组OD490 nm/对照组OD490 nm)×100。谷胱甘肽过氧化物酶1(GPx1)活性采用二硫代二硝基苯甲酸法测定,过氧化氢酶(CAT)活性采用比色法测定;超氧化物歧化酶(superoxide dismutase,SOD)活性采用黄嘌呤氧化酶法测定;丙二醛(malondialdehyde,MDA)含量采用硫代巴比妥酸法测定;总抗氧化能力(total antioxidant capacity,T-AOC)采用比色法测定,以上试剂盒均购自南京建成生物工程研究所。硫氧还蛋白还原酶1(thioredoxin reductase 1,TrxR1)活性以及IL-1、白细胞介素-6(IL-6)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、活性氧(reactive oxygen species,ROS)、iNOS、NO含量均采用酶联免疫吸附试验(ELISA)法测定,试剂盒均购自美国RD公司。上述指标的测定依照各自试剂盒说明书进行操作。细胞内的抗氧化指标的活性或含量换算为以总蛋白含量基础,总蛋白含量采用二喹啉甲酸(BCA)法测定,试剂盒购自北京碧云天科技有限公司。
1.6 数据处理与分析
试验数据经Excel 2010进行初步整理和计算后,采用SAS 9.0软件的单因素方差分析(one-way ANOVA)程序进行显著性检验和Duncan氏法多重比较,P<0.05为显著性判断标准。
2 结果与分析
2.1 IL-1Ra对LPS诱导的BMEC RGR的影响
由图1可见,与对照组相比,LPS组的RGR显著降低(P<0.05),而ra0.25、ra0.5、ra1、ra5、ra10组的RGR均无显著变化(P>0.05)。与LPS组相比,Lra0.25、Lra0.5、Lra1、Lra5、Lra10组的RGR均显著提高(P<0.05),并且,其提高的水平随着IL-1Ra浓度的增加呈现先升高后降低的变化趋势,在浓度为1.00 ng/mL时最高。
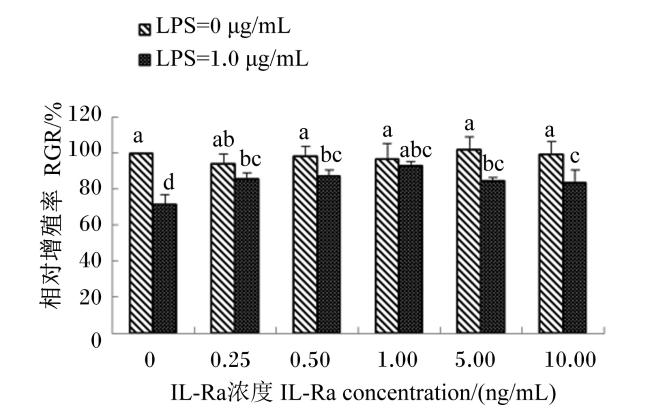


图1 IL-1Ra对LPS诱导的奶牛乳腺上皮细胞相对增殖率的影响数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。 Fig.1 Effects of IL-1Ra on RGR of BMEC induced by LPS Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). |
2.2 IL-1Ra对LPS诱导的BMEC内抗氧化指标的影响
由表1可知,与对照组相比,LPS组的GPx1、SOD、CAT活性与T-AOC均显著降低(P<0.05),MDA含量显著增加(P<0.05);ra0.25、ra0.5、ra1、ra5、ra10组的GPx1、CAT活性及T-AOC、MDA含量均无显著变化(P>0.05),但SOD活性显著降低(P<0.05),且5个单独添加IL-1Ra组之间,ra0.25组显著高于ra1组(P<0.05),其他各组之间差异均不显著(P>0.05)。5个同时添加LPS和IL-1Ra组之间,GPx1、TrxR1、SOD、CAT活性与T-AOC随IL-1Ra浓度的增加呈先升高后降低的变化趋势,MDA含量呈先降低后升高趋势,当IL-1Ra的浓度为1.00 ng/mL时,GPx1、TrxR1、SOD、CAT活性与T-AOC均达到最大值,MDA含量达到最小值。与LPS组相比,Lra0.5组、Lra1组、Lra5组的GPx1活性显著升高(P<0.05),Lra0.25组、Lra0.5组、Lra1组、Lra5组、Lra10组的SOD活性显著升高(P<0.05),Lra1组的CAT活性显著升高(P<0.05),Lra0.5组、Lra1组、Lra5组的T-AOC显著升高(P<0.05),Lra0.25组、Lra0.5组、Lra1组、Lra5组、Lra10组的MDA含量显著降低(P<0.05)。
表1 IL-1Ra对LPS诱导的BMEC内抗氧化指标的影响Table 1 Effects of IL-1Ra on antioxidant indices in BMEC induced by LPS |
| 项目 Items | 组别Groups | SEM | P值 P-value | |||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 对照 Control | 脂多糖 LPS | ra0.25 | ra0.5 | ra1 | ra5 | ra10 | Lra0.25 | Lra0.5 | Lra1 | Lra5 | Lra10 | |||
| 谷胱甘肽过氧化物酶1 GPx1/(U/mg prot) | 80.00a | 50.96b | 73.67ab | 72.48ab | 75.68ab | 75.72ab | 75.41ab | 51.70b | 79.71a | 98.73a | 81.68a | 77.31ab | 6.42 | 0.002 3 |
| 硫氧还蛋白还原酶1 TrxR1/(U/g prot) | 9.79 | 8.87 | 9.38 | 9.63 | 9.64 | 9.35 | 9.51 | 9.19 | 9.22 | 9.75 | 9.22 | 9.21 | 0.21 | 0.343 1 |
| 超氧化物歧化酶SOD/(U/mL) | 17.05a | 7.01i | 16.33bc | 15.79cd | 15.57d | 15.66cd | 15.90cd | 8.93h | 10.20g | 16.64ab | 14.53e | 13.32f | 0.23 | <0.000 1 |
| 过氧化氢酶CAT/(U/mL) | 3.18a | 1.66b | 2.84a | 2.81a | 2.91a | 3.06a | 2.94a | 1.87b | 1.94b | 3.09a | 1.63b | 1.60b | 0.13 | <0.000 1 |
| 总抗氧化能力T-AOC/(U/mL) | 1.56a | 0.69d | 1.38a | 1.41a | 1.43a | 1.44a | 1.41a | 0.77cd | 1.09b | 1.48a | 0.90bc | 0.89bc | 0.06 | <0.000 1 |
| 丙二醛MDA/(nmol/mg prot) | 3.21d | 4.33a | 3.36cd | 3.22d | 3.23d | 3.12d | 3.12d | 3.78b | 3.41bcd | 3.14d | 3.64bc | 3.66bc | 0.11 | <0.000 1 |
同行数据肩标中不含有相同小写字母表示组间差异显著(P<0.05),反之差异不显著(P>0.05)。下表同。 | |
Values within a row without the same lowercase letter superscripts mean significant difference between groups (P<0.05). Conversely, the difference was not significant (P>0.05). The same as below. |
2.3 IL-1Ra对LPS诱导的BMEC内炎性因子、iNOS、NO及ROS含量的影响
由表2可知,与对照组相比,除IL-6含量变化不显著(P>0.05)外,LPS组的IL-1、TNF-α、iNOS、NO和ROS含量均显著增加(P<0.05);除IL-1显著降低(P<0.05)外,ra0.25、ra0.5、ra1、ra5和ra10组的IL-6、TNF-α、iNOS、NO和ROS含量均无显著变化(P>0.05),且5个单独添加IL-1Ra组之间IL-1、IL-6、TNF-α、iNOS、NO和ROS含量均无显著差异(P>0.05)。5个同时添加LPS和IL-1Ra组之间,IL-1、IL-6、TNF-α、iNOS、NO和ROS含量均随IL-1Ra浓度的增加呈先降低后升高的变化趋势,当IL-1Ra的浓度为1.00 ng/mL时,上述指标的含量均降到最低值。与LPS组相比,Lra0.25、Lra0.5、Lra1、Lra5和Lra10组的IL-1、IL-6和NO含量显著降低(P<0.05),Lra0.5、Lra1组的iNOS含量显著降低(P<0.05),Lra1组的TNF-α和ROS含量显著降低(P<0.05)。
表2 IL-1Ra对LPS诱导的BMEC内炎性因子、iNOS、NO及ROS含量的影响Table 2 Effects of IL-1Ra on inflammatory factors, iNOS, NO and ROS contents in BMEC induced by LPS |
| 项目 Items | 组别Groups | SEM | P值 P-value | |||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 对照 Control | 脂多糖 LPS | ra0.25 | ra0.5 | ra1 | ra5 | ra10 | Lra0.25 | Lra0.5 | Lra1 | Lra5 | Lra10 | |||
| 白细胞介素-1 IL-1/(pg/mL) | 42.40e | 98.62a | 35.77f | 35.17f | 34.04f | 34.07f | 31.87f | 65.19bc | 61.73cd | 34.97f | 59.22d | 69.96b | 1.82 | <0.000 1 |
| 白细胞介素-6 IL-6/(pg/mL) | 251.26ab | 256.21a | 239.18bc | 239.29bc | 236.84bcd | 239.62bc | 238.54bc | 236.43bcd | 230.48cd | 221.46d | 237.75bc | 238.49bc | 3.96 | 0.014 2 |
| 肿瘤坏死因子-α TNF-α/(pg/mL) | 224.94b | 241.51a | 226.16b | 226.40b | 225.43b | 227.44b | 229.16ab | 234.24ab | 230.47ab | 225.58b | 235.12ab | 237.54ab | 3.58 | 0.036 0 |
| 诱导型一氧化氮合酶 iNOS/(ng/mL) | 21.77cde | 23.53ab | 21.33de | 21.34de | 20.97e | 20.73e | 20.78e | 23.00abc | 21.95cde | 21.77cde | 22.37bcd | 23.66a | 0.33 | <0.000 1 |
| 一氧化氮 NO/(μmol/L) | 152.54cde | 168.12a | 147.48de | 148.29de | 148.53de | 146.92de | 144.58e | 154.33bcd | 154.02bcd | 149.81de | 160.09abc | 161.87ab | 2.00 | <0.000 1 |
| 活性氧ROS/(ng/mL) | 1.478b | 2.432a | 1.340b | 1.375b | 1.467b | 1.389b | 1.367b | 2.366a | 1.850ab | 1.266b | 1.634ab | 1.901ab | 0.224 | 0.028 9 |
3 讨论
LPS诱导氧化应激已经是氧化应激研究中有效并且常用的方法之一。为了开发临床抗炎性药物,在关于小鼠成软骨细胞中促炎症信号通路的研究中,LPS作为刺激源诱导氧化损伤,导致细胞活力显著下降、细胞凋亡增加,同时一些促炎性细胞因子如IL-1β、IL-6、白细胞介素-8(interleukin-8,IL-8)、TNF-α的含量和mRNA相对表达量均显著升高[16]。在Xue等[17]的研究中也有类似的发现。有研究指出,NO的蓄积以及iNOS的基因表达增加也源于LPS的刺激诱导;IL-1的刺激会导致iNOS基因和蛋白的大量表达,进而催化生成过量的NO[14]。本课题组先前的研究表明,添加维生素A可以有效缓解NO诱发的氧化应激,究其原因可能与维生素A抑制IL-1的过量生成有关[10]。
氧化应激参数的变化是确定细胞是否发生了氧化损伤以及细胞氧化应激模型是否构建成功的重要依据。动物体内有2个主要系统在清除自由基方面非常活跃,包括酶促防御系统和非酶促防御系统;SOD、GPx、CAT等抗氧化酶可以有效地清除ROS自由基并结束自由基连锁反应,属于酶促防御系统;维生素A、维生素C、α-生育酚、巯基化合物、辅酶Q等抗氧化物质[18],属于非酶促防御系统。抗氧化酶如SOD、CAT和GPx是内源性酶,可以通过清除各种ROS自由基、脂质过氧化物和过氧化物醛类以缓解组织损伤[19]。因此,除细胞活力外,GPx、SOD、CAT活性和MDA含量被认为可以反映机体清除自由基的能力和脂质过氧化损伤的程度[20-21],也可作为判断细胞是否发生氧化应激的重要指标。在本试验中,LPS组的GPx1、SOD和CAT活性与T-AOC均较对照组显著下降,说明BMEC发生了氧化应激,细胞内氧化还原水平遭到破坏。当添加IL-1Ra后,上述抗氧化酶的活性明显升高,LPS诱导的氧化损伤得到有效缓解,且这种调控作用呈现剂量依赖效应。
IL-1Ra是临床医学上用于抗炎症的一种有效方法[22],它没有激动剂的活性,通常不触发任何信号就可以阻断细胞因子IL-1的活性,其治疗效果与用量密切相关。IL-1Ra属于IL-1的一种内源性的抑制因子,竞争性的拮抗IL-1的受体,阻止IL-1与其受体相结合,继而阻断了IL-1诱导的其他下游炎性因子的释放以及与之关联的炎症信号通路的进一步激发[23]。促炎性细胞因子IL-1主要由巨噬细胞产生,与其受体结合后形成复合蛋白IL-1RacP,接着靠近细胞质附近的区域被激活,包括核因子-κB(nuclear factor-κB,NF-κB)、c-Jun氨基末端激酶(N-terminal protein kainse,JNK)/转录因子激活蛋白-1(activator protein-1,AP-1)和p38丝裂原活化蛋白激酶(p38 mitogen-activated protein kinase,p38MAPK)等途径[24]。研究发现,受到LPS刺激后的间质干细胞在添加IL-1Ra后,减少了上清液中IL-1等炎症细胞因子的产生,Toll样受体4(Toll-like receptor 4,TLR4)和核因子-κB抑制因子α(inhibitor α of nuclear factor-κB,IκBα)的mRNA相对表达量急剧下降,逆转了LPS诱导的TLR4/NF-κB信号通路的激活,IL-1Ra以时间和剂量依赖的方式有效削弱了LPS诱导的细胞损伤[25]。IL-1Ra可以显著降低处于应激状态的雄性大鼠脑部及血液中IL-1的含量,同时抑制其下游基因iNOS的表达[26]。
在本试验中,LPS组的炎性因子IL-1、TNF-α与脂质过氧化产物MDA、ROS以及iNOS和NO的含量均显著高于对照组,而IL-1Ra的添加则有效地降低了上述指标的含量,但其作用效果随着IL-1Ra浓度的增加先增加后降低,说明LPS诱导产生过量的IL-1并且诱发其他炎性因子的大量生成,加剧细胞的氧化损伤,一旦IL-1被有效拮抗,上述氧化应激将显著缓解,但是过高浓度的IL-1Ra会产生相反的调控趋势。因此,诱导生成的炎性因子被降低的最多,最接近对照组时,该浓度即为IL-1Ra的最佳作用浓度。在本试验条件下,根据试验结果可知,IL-1Ra的最佳作用浓度为1.00 ng/mL。
综合本研究所得结果可以看出,IL-1Ra能有效地抑制LPS诱导的细胞氧化损伤,而本课题组前期添加维生素A的研究也显示出类似的效果[10]。基于本研究,IL-1Ra缓解LPS诱导的BMEC内大量NO释放的具体机制在基因和蛋白表达水平及信号通路激活的层面需要进一步研究,以明确维生素A缓解BMEC氧化损伤的机制。
4 结论
IL-1Ra可以阻断IL-1的信号通路,进而抑制iNOS和NO生成,缓解LPS引起的BMEC氧化损伤,且本试验条件下1.00 ng/mL IL-1Ra的作用效果最好。