RESEARCH PAPER

Effects of Resveratrol on Proliferation and Apoptosis of Spleen Lymphocytes in Broilers under Heat Stress

  • LIU Fengcheng ,
  • MENG Tiantian ,
  • ZHI Kexin ,
  • GONG Fanwen ,
  • LI Zezheng ,
  • CHEN Lele ,
  • HE Jianhua , *
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
* professor, E-mail:

Received date: 2023-01-06

  Online published: 2023-07-11

Abstract

This experiment was conducted to study the effects of resveratrol on proliferation and apoptosis of spleen lymphocytes in broilers under heat stress. In this study, primary lymphocytes were successfully cultured by isolating and digesting spleen tissues from white-feathered broilers and were stably passaged. Under the normal cell model (37 ℃) and heat stress model (42 ℃ for 3 h), different doses of resveratrol (15, 30, 60 μg/mL) were cell added, respectively. CCK8 assay was used to measure cell viability rate of splenic lymphocytes in heat. The activity of lactate dehydrogenase(LDH)in splenic lymphocyte supernatant was measured by LDH method. TdT-mediated dUTP nick-end labeling(TUNEL)staining was used to detect the apoptosis level of spleen cells. The content of apoptotic protein was detected by enzyme linked immunosorbent assay (ELISA)kit. Total RNA was extracted and changes in heat shock proteins 70(HSP70)gene relative expression level were measured by real-time fluorescence quantitative PCR. Total proteins were extracted, and the protein expression levels of HSP70, tumor suppressor 53(p53), apoptotic protease activating factor-1(APAF-1), tumor suppressor 65(p65), nuclear factor κB inhibitory protein (IκB)and tumor suppressor 38(p38)were detected by Western blot. The results showed that heat stress significantly decreased lymphocyte proliferation (P<0.05) and significantly increased activity of LDH (P<0.05). Treatment of spleen lymphocytes with 15, 30, and 60 μg/mL resveratrol significantly increased cell proliferation in a dose-dependent manner (P<0.05) and significantly decreased LDH activity (P<0.05). Heat stress induced apoptosis and damaged lymphocytes (P<0.05), and resveratrol significantly reduced apoptosis (P<0.05). Heat stress significantly increased content and expression level of p53 protein (P<0.05), decreased Bcl-2 content (P<0.05), and increased Bax content in lymphocytes (P<0.05). Resveratrol significantly increased Bcl-2 content under heat stress or normal conditions (P<0.05), Bax content was significantly decreased (P<0.05), cysteinyl aspartate specific proteinase 9(Caspase 9)content was decreased (P<0.05), and APAF-1 protein expression was significantly decreased (P<0.05). Resveratrol did not affect expression of p53 protein under heat stress (P>0.05). In conclusion, resveratrol increases cell viability in a dose-dependent manner, attenuates cell apoptosis, thereby reducing the damage to splenic lymphocytes induced by heat stress.

Cite this article

LIU Fengcheng , MENG Tiantian , ZHI Kexin , GONG Fanwen , LI Zezheng , CHEN Lele , HE Jianhua . Effects of Resveratrol on Proliferation and Apoptosis of Spleen Lymphocytes in Broilers under Heat Stress[J]. Chinese Journal of Animal Nutrition, 2023 , 35(7) : 4604 -4616 . DOI: 10.12418/CJAN2023.428

家禽因其无汗腺、全身覆被羽毛等特点,主要依赖呼吸来散热。在家禽生产中,长期的生产性能选育计划及集群饲养导致家禽产生更高的代谢热,也提高了机体本身对热应激的敏感性[1]。热应激来源于机体热能循环不平衡,即体内热能产生大于机体流向环境的能值[2]。热应激严重影响家禽的生产性能,造成神经内分泌代谢紊乱,甚至造成应激不耐受死亡。在这种情况下,体温、呼吸频率和心跳速度的升高均会影响动物的采食量和生产效率,造成产业经济损失[3]。热应激会导致免疫器官损伤并且萎缩,从而抑制肉鸡的免疫功能,影响机体的生长发育。研究表明,热应激肉鸡在体液反应期间循环抗体水平较低,免疫球蛋白G(IgG)水平下降[4]。此外,热应激会增加肉鸡黏膜通透性,损伤黏膜屏障,进而导致嗜异细胞浸润和淋巴细胞数量减少,给机体造成损伤[5]。嗜异细胞与淋巴细胞的比值(H/L)被认为是家禽应激的可靠指标,多项研究表明,热应激导致H/L显著升高,原因是淋巴细胞数量减少,嗜异细胞数量增多[6-8]。本课题组前期研究表明,热应激诱导乌骨鸡肠道氧化损伤,抑制热休克蛋白(HSPs)和核因子-κB(NF-κB)的过表达,降低热应激肠道炎症,热应激导致肠道淋巴细胞和杯状细胞数量降低[9]
白藜芦醇化学名3,5,4-三羟基-1,2-二苯乙烯,是天然的多酚类植物提取物,广泛存在于花生、虎杖、葡萄等植物中[10]。已有大量研究报道,白藜芦醇具有抗氧化[11]、抗衰老[12]、抗炎症[13]等作用。白藜芦醇作为一种优良高效植物提取物,可以作为解毒剂缓解热应激导致的负面影响。He等[14]研究表明,饲粮中添加白藜芦醇可通过恢复受损的绒毛-隐窝结构,改变肠道HSPs、分泌型免疫球蛋白A和紧密连接相关基因的mRNA表达,抑制促炎因子分泌,部分减轻了热应激对肠道屏障功能的不利影响。Zhang等[15]报道,肉鸡饲粮中添加白藜芦醇可以通过重建氧化还原状态和抑制细胞凋亡,部分扭转热应激对免疫器官生长的不利影响。重要的是,白藜芦醇可以通过抑制肉鸡脾脏中模式识别受体(PRRs)信号的激活,缓解热应激引起的先天免疫和炎症反应[16]
脾脏是家禽最大的外周免疫器官,是机体免疫应答发生的重要器官。在热应激条件下,白藜芦醇可以缓解脾脏损伤,然而关于其相关机制鲜有报道。为深入探讨白藜芦醇缓解热应激的作用机制,本试验利用肉鸡脾脏淋巴细胞在细胞水平验证其对脾脏淋巴细胞增殖及凋亡的影响。

1 材料与方法

1.1 试验材料

试验动物: 42~49日龄健康的白羽肉鸡。
试验药剂:白藜芦醇(纯度≥98%)由国家植物成分利用工程技术研究中心提供;二甲基亚砜(DMSO)购自Sigma公司(美国);青霉素、链霉素、磷酸盐缓冲溶液(PBS)购自HyClone公司(美国);植物血凝素(PHA)、鸡脾脏淋巴细胞分离试剂盒购自索莱宝公司;培养基RPMI-1640、胎牛血清(FBS)、胰蛋白酶购自Gibco公司(美国);CCK8试剂盒、Trizol试剂盒购自上海碧云天生物技术有限公司(中国);细胞毒性检测试剂盒[乳酸脱氢酶(LDH)法]购自Abbkin公司(中国);原位细胞死亡检测试剂盒购自Servicebio(中国);反转录试剂盒购自TaKaRa公司(日本);鸡专用酶联免疫吸附试验(ELISA)试剂盒购自ZCIBIO科技有限公司(中国)。

1.2 试验设计

采用生长良好的脾脏淋巴细胞用于试验。调整细胞数量为2×10⁵个/mL,分为以下几组:
①对照组(Con组),细胞置于基础培养基37 ℃培养;②15 μg/mL白藜芦醇组(R15组),基础培养基+15 μg/mL白藜芦醇37 ℃培养;③30 μg/mL白藜芦醇组(R30组),基础培养基+30 μg/mL白藜芦醇37 ℃培养;④60 μg/mL白藜芦醇组(R60组),基础培养基+60 μg/mL白藜芦醇37 ℃培养;⑤热应激组(HT-Con组),基础培养24 h,然后细胞置于42 ℃培养3 h;⑥热应激+15 μg/mL白藜芦醇组(HT-R15组),15 μg/mL白藜芦醇预处理24 h,然后置于42 ℃培养3 h;⑦热应激+30 μg/mL白藜芦醇组(HT-R30组),30 μg/mL白藜芦醇预处理24 h,然后置于42 ℃培养3 h;⑧热应激+60 μg/mL白藜芦醇组(HT-R60组),60 μg/mL白藜芦醇预处理24 h,然后置于42 ℃培养3 h,⑨热应激+DMSO处理组(DMSO组,0.1%);⑩ PHA-组:细胞不加PHA。

1.3 试验处理

鸡脾脏淋巴细胞的分离、培养包括以下步骤:
1)静脉放血宰杀,用70%乙醇浸泡1~2 min,无菌取出脾脏(将鸡固定用70%乙醇喷洒腹部进行消毒,分批剪开外皮、内皮,取出脾脏),用灭菌生理盐水冲洗3次,放入冷的PBS(5%青链霉素混合液)中。
2)用含双抗的PBS清洗新鲜脾脏2遍后,去除表面筋膜,转入新培养皿中。放入PBS中剪碎,PBS清洗2次,置于细胞过滤器内过滤,收集细胞悬液并加入有淋巴细胞分离液的离心管中(按照鸡脾脏淋巴细胞分离试剂盒说明书分离细胞悬液)。
3)2 000 r/min离心20 min。
4)吸取中间白色云雾状淋巴细胞层,加入红细胞裂解液碎解红细胞。
5)用PBS洗涤上清液至澄清。
6)1 500 r/min离心(重复2次)回收细胞。
7)用培养液(RPMI-1640+10%胎牛血清FBS+1%双抗P/S)重悬成细胞液,并加入5 μg/mL PHA,用计数板在倒置显微镜下计数,调节浓度为6×10⁶个/mL,接种于6孔培养板中,每孔加入2.5 mL,放入培养箱中。淋巴细胞的鉴定可用Giemsa染色法和非特异性酯酶染色法鉴定。细胞呈球形,核圆,胞质很少。
非热处理:非热应激组用含不同浓度(0、15、30、60 μg/mL)的白藜芦醇处理,置于37℃ 5%二氧化碳(CO2)的细胞培养箱中培养27 h。
热处理:热应激组用含不同浓度(0、15、30、60 μg/mL)的白藜芦醇处理,首先在37 ℃ 5% CO2的细胞培养箱中培养24 h,然后转入42 ℃ 5% CO2的细胞培养箱中热处理3 h。

1.4 CCK8法细胞增殖试验

根据制造商的说明书,使用CCK8检测试剂盒测定脾脏淋巴细胞上清液中的吸光度(OD)值,每组5个重复。细胞存活率计算公式如下:
细胞存活率(%)=[(试验组-空白组)/(对照组-空白组)]×100。

1.5 LDH活性检测

根据制造商的说明书,使用细胞毒性检测试剂盒(LDH法)测定脾脏淋巴细胞上清液中的LDH活性,每组3个重复。

1.6 脾脏淋巴细胞凋亡水平

采用脱氧核糖核苷酸末端转移酶介导的缺口末端标记(TUNEL)染色法检测脾脏细胞的凋亡水平。固定后的脾脏样本经过包埋和切片处理后,通过终端脱氧核苷酸转移酶介导的缺口末端标记,用原位细胞死亡检测试剂盒在单细胞水平上检测DNA断裂[17]

1.7 脾脏淋巴细胞凋亡蛋白含量检测

1)向24孔培养板加入不同浓度的药物以及150 μL的PHA,每组3个重复。
2)用培养液(RPMI-1640+10% FBS+1%双抗P/S)将细胞浓度(活细胞)调整为5×106个/mL,每孔150 μL接种于24孔培养板中,每孔为600 μL体系。接种完后轻轻平晃培养板。
3)将培养板放入5% CO2的培养箱中37 ℃培养48 h。
4)用移液枪将培养液吸出至1.5 mL离心管中,经3 000 r/min离心20 min,取细胞上清液,于-20 ℃保存备用。
5)细胞上清液凋亡蛋白含量测定。根据制造商的说明书,使用市面上的鸡专用ELISA试剂盒测定脾脏淋巴细胞上清液中B淋巴细胞瘤-2 (Bcl-2)、肿瘤抑制因子53(p53)、Bcl-2相关X蛋白(Bax)及半胱氨酸天冬氨酸蛋白酶9 (Caspase 9)的含量。

1.8 基因表达量检测

应用Trizol法提取脾脏淋巴细胞上清液总RNA,使用实时荧光定量PCR法(RT-PCR)检测基因相对表达量。使用Trizol试剂盒从匀浆中分离出总RNA。然后使用反转录试剂盒合成第一链cDNA。所有引物都是在NCBI中使用鸡基因序列设计的,引物序列如表1所示。按照文献[18]中的描述进行RT-PCR。使用2-ΔΔCt方法计算基因相对表达量,然后用甘油醛-3-磷酸脱氢酶(GAPDH)作为看家基因进行归一化。
表1 RT-PCR引物序列

Table 1 Primer sequence for RT-PCR

基因
Genes
登录号
Accession No.
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
热休克蛋白70
HSP70
NM_001006685.1 F: CTGGCAATAAGCGAGCAGTGAGG
R: AATGCTGGCTTGCGTGGAAGAG
86
甘油醛-3-磷酸脱氢酶
GAPDH
NM_204305.1 F: CGATCTGAACTACATGGTTTAC
R: TCTGCCCATTTGATGTTGC
153

1.9 总蛋白提取与Western blot

按照BCA试剂盒说明书进行细胞蛋白抽提和蛋白含量测定。蛋白含量调整为1 mg/mL,进行Western blot[19],所使用的抗体如表2所示。
表2 抗体信息

Table 2 Antibodies information

代号
Code number
一抗名称
Primary antibody
公司
Company
物种
Species
稀释比
Dilution ratio
YM3042 热休克蛋白70 Hsp70 Immunoway 1∶2 000
2524 肿瘤抑制因子53 p53 CST 1∶1 000
RLT5378 凋亡激活因子-1 APAF-1 睿赢 1∶4 000
8242 肿瘤抑制因子65 p65 CST 1∶1 000
4814 核因子κB抑制蛋白IκB CST 1∶1 000
YT5662 肿瘤抑制因子38 p38 Immunoway 1∶2 000
YM3028 β-肌动蛋白β-actin Immunoway 1∶10 000

1.10 数据处理与统计分析

统计分析均使用SPSS 22.0软件进行,数据以平均值±标准误表示。分别使用Shapiro-Wilk检验和Levene检验检查数据方差的正态性和同方差性。除Western blot检测结果外,其他检测结果使用单因素方差分析和Duncan氏法的多范围检验比较。Western blot检测后的结果使用一般线性模型的two-way ANOVA进行分析,该模型包括白藜芦醇和热应激2个主效应以及它们的交互作用。通过Kruskal-Wallis检验和Duncan氏法的多重比较检验分析非参数数据。P<0.05为差异显著。

2 结果与分析

2.1 白藜芦醇对热应激脾脏淋巴细胞增殖的影响

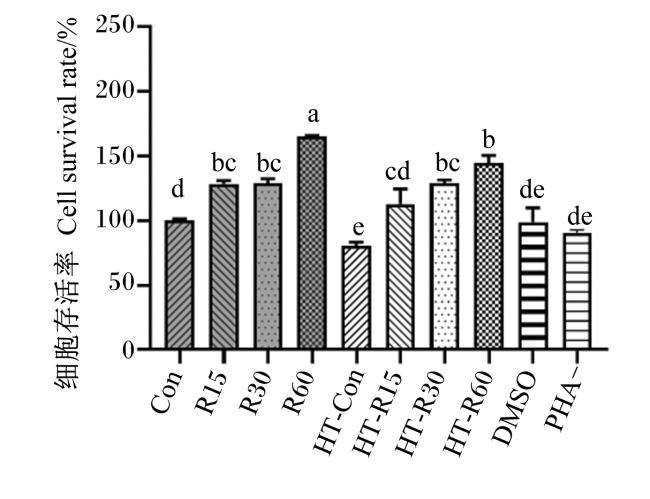
当细胞处于正常温度进行培养时,与Con组相比,添加15、30、60 μg/mL白藜芦醇都会显著增加脾脏淋巴细胞存活率(P<0.05)。热应激会导致淋巴细胞存活率显著下降(P<0.05)。用15、30、60 μg/mL白藜芦醇处理脾脏淋巴细胞并且热应激培养时,细胞存活率呈剂量依赖性增加(P<0.05)。DMSO组和PHA-组的细胞存活率与Con组相比无显著差异(P>0.05)(图1)。
图1 热应激和白藜芦醇对脾脏淋巴细胞增殖的影响

Con:对照组;R15:15 μg/mL白藜芦醇组;R30:30 μg/mL白藜芦醇组;R60:60 μg/mL白藜芦醇组;HT-Con:热应激组;HT-R15:热应激+15 μg/mL白藜芦醇组;HT-R30:热应激+30 μg/mL白藜芦醇组;HT-R60:热应激+60 μg/mL白藜芦醇组;DMSO:热应激+DMSO组;PHA-:细胞不加PHA组。数据柱标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of heat stress and resveratrol on proliferation of spleen lymphocytes

Con: control group; R15:15 μg/mL resveratrol group; R30:30 μg/mL resveratrol group; R60:60 μg/mL resveratrol group; HT-Con: heat stress group; HT-R15: heat stress+15 μg/mL resveratrol group; HT-R30: heat stress+30 μg/mL resveratrol group; HT-R60: heat stress+60 μg/mL resveratrol group; DMSO: heat stress+DMSO group; PHA-: cells without PHA group. The data column marked with different lowercase letters mean significant difference (P<0.05). The same as below.

2.2 热应激和白藜芦醇对脾脏淋巴细胞LDH活性的影响

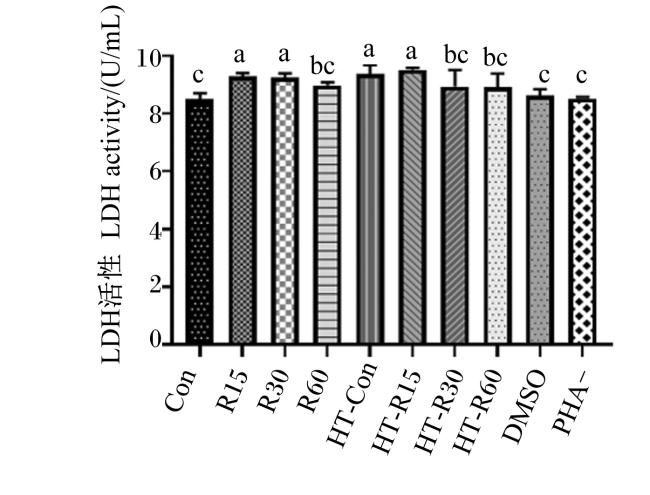
与Con组相比,热应激导致淋巴细胞的LDH活性显著增加(P<0.05)。与HT-Con组相比,当脾脏淋巴细胞添加30或60 μg/mL白藜芦醇并且热应激培养时,LDH活性显著下降(P<0.05)。出乎意料的是,当细胞处于正常温度进行培养时,与Con组相比,添加15或30μg/mL白藜芦醇显著增加了脾脏淋巴细胞的LDH活性(P<0.05)。而与R15和R30组相比,添加60 μg/mL白藜芦醇则又显著降低LDH活性(P<0.05)(图2)。
图2 热应激和白藜芦醇对脾脏淋巴细胞LDH活性的影响

Fig.2 Effects of heat stress and resveratrol on LDH activity of spleen lymphocytes

2.3 热应激和白藜芦醇对脾脏淋巴细胞凋亡的影响

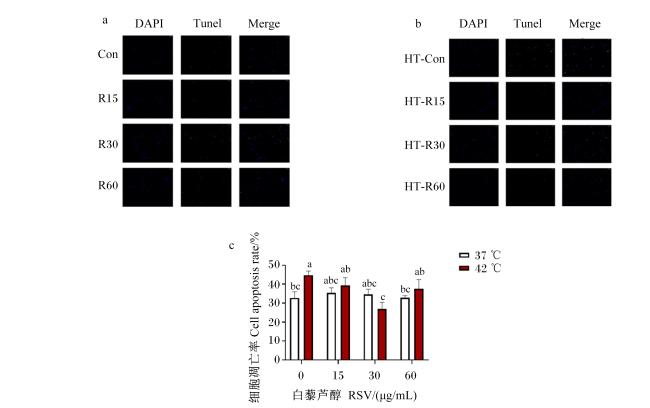
当细胞处于正常温度进行培养时,添加不同水平的白藜芦醇对脾脏淋巴细胞凋亡率无显著影响(P>0.05)。与Con组相比,热应激会导致淋巴细胞凋亡率显著上升(P<0.05)。与HT-Con组相比,用30 μg/mL白藜芦醇处理脾脏淋巴细胞24 h后,细胞凋亡率显著下降(P<0.05)(图3)。
图3 热应激和白藜芦醇对脾脏淋巴细胞凋亡的影响

a:常温组和常温+RSV组TUNEL染色;b:热应激组和热应激+RSV组TUNEL染色;c:细胞凋亡率。

Fig.3 Effects of heat stress and resveratrol on apoptosis rate of splenic lymphocytes

a: normal temperature group and normal temperature+RSV group TUNEL staining; b: heat stress group and heat stress +RSV group TUNEL staining; c: cell apoptosis rate.

2.4 热应激和白藜芦醇对热应激脾脏淋巴细胞凋亡蛋白含量的影响

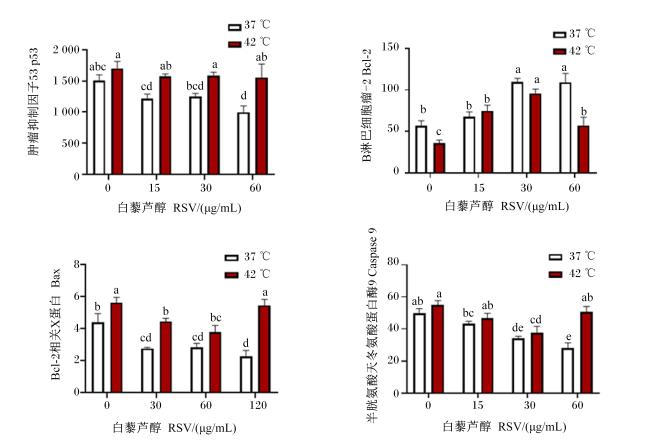
试验结果表明,与非热应激组相比,整体上可以看出热应激导致淋巴细胞的p53蛋白含量显著增加(P<0.05)。与Con组相比,热应激会导致Bcl-2含量显著降低(P<0.05)。与HT-Con组相比,HT-R15、HT-R30和HT-R60组的Bcl-2含量显著增加(P<0.05)。同时,与Con组相比,R30组和R60组的Bcl-2含量显著升高(P<0.05)。与Con组相比,热应激会导致Bax含量显著增加(P<0.05)。与HT-Con组相比,HT-R15和HT-R30组的Bax含量显著降低(P<0.05)。与Con组相比,R15、R30和R60组的Bax含量显著降低(P<0.05)。热应激处理对Caspase 9含量没有显著影响(P>0.05)。正常温度和热应激状态下,与HT-Con组相比,HT-R30组的Caspase 9含量显著降低(P<0.05)。与Con组相比,R30组和R60组的Caspase 9含量显著降低(P<0.05)(图4)。
图4 热应激和白藜芦醇对脾脏淋巴细胞凋亡蛋白含量的影响

Fig.4 Effects of heat stress and resveratrol on apoptosis protein content of splenic lymphocytes

2.5 热应激和白藜芦醇对脾脏淋巴细胞HSP70基因表达的影响

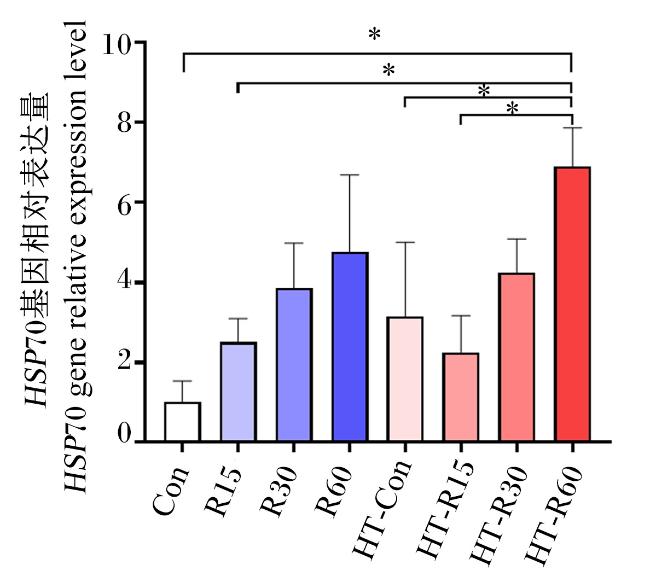
与Con、R15、HT-Con和HT-R15组相比,HT-R60组的HSP70基因相对表达量显著升高(P<0.05)(图5)。
图5 热应激和白藜芦醇对脾脏淋巴细胞HSP70基因表达的影响

数据柱标注*表示不同培养条件下脾脏淋巴细胞HSP70基因表达差异显著(P<0.05)。

Fig.5 Effects of heat stress and resveratrol on HSP70 gene expression of splenic lymphocytes

* indicated significant differences in HSP70 gene expression in spleen lymphocytes under different culture conditions (P<0.05).

2.6 热应激和白藜芦醇对脾脏淋巴细胞HSP70、凋亡和免疫信号通路相关蛋白表达的影响
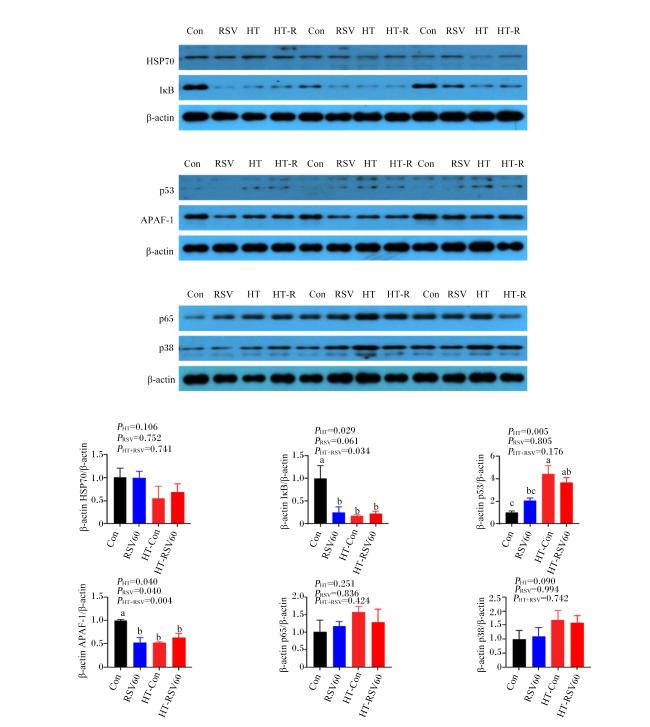
热应激会显著降低核因子κB抑制蛋白(IκB)和凋亡激活因子-1(APAF-1)的蛋白表达,显著升高p53蛋白表达量(P<0.05)。白藜芦醇会显著降低APAF-1的蛋白表达量(P<0.05)。热应激和白藜芦醇的交互作用会显著降低IκB和APAF-1的蛋白表达量(P<0.05)(图6)。
图6 热应激和白藜芦醇对脾脏淋巴细胞HSP70、凋亡和免疫信号通路相关蛋白表达的影响

HSP70:热休克蛋白70 heat shock protein 70;IκB:核因子κB抑制蛋白 nuclear factor κB inhibitory protein;β-action:β-肌动蛋白;p53:肿瘤抑制因子53 tumor suppressor factor 53;APAF-1:凋亡激活因子-1 apoptosis activator-1;p65:肿瘤抑制因子65 tumor suppressor factor 65;p38:肿瘤抑制因子38 tumor suppressor factor 38。

Fig.6 Effects of heat stress and resveratrol on expression of HSP70, apoptosis and immune signaling pathway-related proteins in splenic lymphocytes

与Con组相比,HT-Con和HT-RSV60组的淋巴细胞的p53蛋白表达量显著增加(P<0.05)。热应激下添加白藜芦醇会缓解p53蛋白表达量的升高,但没有达到显著差异(P>0.05)。与Con组相比,RSV60、HT-Con及HT-RSV60组的APAF-1和IκB蛋白表达量显著降低(P<0.05)(图6)。

3 讨论

淋巴细胞增殖是机体免疫系统受到抗原刺激后产生的正常保护性生理反应,是机体免疫力提高的代表性指标,对机体抵抗外来微生物的感染具有十分重要的意义[20-21]。其中T淋巴细胞能识别和提呈抗原,具有介导细胞免疫及调节免疫的双重功能[22]。PHA作为有丝分裂原,在体外可以刺激T淋巴细胞转化为淋巴母细胞,进入有丝分裂[22]。因此,通常将药物单独刺激和PHA协同刺激T细胞增殖作为判定药物活性和作用机制的基本指标。
热应激可能会破坏细胞膜电位,同时热应激过程中产生的变性或聚合蛋白的积累,对细胞有毒害作用,阻滞细胞周期的正常进行,最终导致细胞增殖降低[23]。研究发现,42 ℃重度热应激后,奶牛原代培养细胞PBMC、商业化细胞系MDBK、猪肾细胞LLC-PK1和奶牛原代小肠上皮细胞细胞增殖都极显著下降[24-26]。因此,42 ℃被认为是影响细胞活力的临界温度,当环境温度大于或等于42 ℃时,细胞活力无法恢复,最终引发细胞死亡。42 ℃高温处理奶牛乳腺上皮细胞(MAC-T),4 h后细胞增殖显著降低[27]。研究发现,随着热应激时间的延长,鸡胚小肠上皮细胞增殖逐渐降低,42 ℃热应激3 h后细胞增殖极显著下降,细胞凋亡率达35.96%,极显著高于对照组[28]。综上所述,本研究选用42 ℃高温处理脾脏淋巴细胞3 h作为建立细胞热应激模型的条件,试验结果表明热应激会导致鸡脾脏淋巴细胞的细胞增殖下降。
白藜芦醇对脾脏淋巴细胞的增殖能力表现为显著的剂量依赖关系,低剂量时随着浓度的升高刺激指数随之升高,当剂量达到一定浓度,刺激指数随浓度升高而降低,表明白藜芦醇对脾脏淋巴细胞增殖呈现出双重调节作用[29]。试验表明,白藜芦醇可通过促进脾脏淋巴细胞增殖、促进细胞因子分泌、提高脾脏淋巴细胞CD4+/CD8+的比值、提高进入S期细胞比率来增强机体的细胞免疫和体液免疫功能[29]。白藜芦醇处理以剂量依赖的方式逆转了过氧化氢(H2O2)诱导的人脐静脉内皮细胞增殖的降低[30]。因此,当脾脏受到热应激发生免疫应答时,白藜芦醇能够促进淋巴细胞迅速大量增殖,从而提高机体对外界环境的免疫能力。本研究结果同上面文献一致,用不同水平的白藜芦醇处理脾脏淋巴细胞后,细胞增殖呈剂量依赖性增加,表明白藜芦醇可以提高细胞的免疫力。
LDH是一种可以由坏死细胞分泌的胞质酶,细胞质LDH的释放被用作判定细胞是否受损的一个重要指标[31]。研究表明,热应激会引起蛋鸡心肌细胞颗粒变性、空泡变性和坏死,导致LDH和谷草转氨酶(AST)活性上调[32]。本研究结果也表明,热应激引起鸡脾脏淋巴细胞中LDH活性增加,说明细胞出现受损甚至坏死。热应激情况下,白藜芦醇可以一定程度上减少LDH释放,说明白藜芦醇对热应激刺激的淋巴细胞具有一定的保护作用。和本研究结果一致的是,白藜芦醇显著抑制了溶血磷脂酰胆碱对LDH活性以及促炎细胞因子分泌的影响[33]。通过1,1-二苯基-2-三硝基苯肼(DPPH)、2,2'-联氮-双-3-乙基苯并噻唑啉-6-磺酸(ABTS)自由基清除法和氧化自由基吸收能力(ORAC)测定,白藜芦醇显示出很高的抗氧化潜力,并通过提高过氧化氢酶(CAT)、超氧化物歧化酶(SOD)活性和谷胱甘肽含量,以及减少活性氧(ROS)的生成、LDH活性和丙二醛(MDA)含量来保护HepG2细胞免受氧化损害[34]
细胞凋亡对维持细胞生长和内环境稳定有重要作用,在早期属于可逆过程[35]。本试验结果表明,热应激会导致淋巴细胞凋亡率显著升高。同时研究表明,热应激会促进奶牛小肠上皮细胞的凋亡,42 ℃培养6 h的奶牛原代小肠上皮细胞细胞核形态不规则,染色质浓缩,LDH的漏出量显著升高,S期细胞比率显著减低;促凋亡基因BaxCaspase 9、Caspase 3的mRNA和蛋白相对表达量显著升高,而抑凋亡基因Bcl-2的蛋白含量显著降低[26]。研究发现,热应激组蛋鸭肝细胞中凋亡相关蛋白BaxCaspase 3、Bax/Bcl-2的相对表达量显著升高[36]。热处理通过线粒体途径诱导小鼠颗粒细胞凋亡,其中涉及Caspase 3和Bax[37]。热应激时MAC-T细胞凋亡标志物Bax/Bcl-2比值和Caspase 3也升高[38]。热应激暴露增加了睾丸组织中促凋亡因子Bax、B淋巴细胞瘤-2基因相关启动子(BAD)和活化的Caspase 3的蛋白水平,降低了抗凋亡的Bcl-2和B淋巴细胞瘤-XL基因(BCL-XL)的表达[39]。p53在大多数细胞和组织中低水平表达,是研究最广泛的凋亡标志物,是调节细胞凋亡的重要蛋白[40]。p53可以促进促凋亡蛋白[如Bax、BH3相互作用域死亡激动剂(Bid)、FasL和p53上调凋亡调控因子(PUMA)]的表达,抑制抗凋亡蛋白Bcl-2表达,从而激活Caspase信号级联放大,导致细胞凋亡。本研究结果显示,热应激会导致Bcl-2含量显著降低,Bax含量显著增加,p53含量显著增加,Caspase 9含量升高。研究结果表明,热应激通过线粒体途径诱导淋巴细胞凋亡。
此外,本试验结果表明,热应激时用30 μg/mL白藜芦醇处理脾脏淋巴细胞24 h后,细胞凋亡率显著下降。一致的是,单独使用H2O2可显著增加细胞凋亡和ROS生成水平,而白藜芦醇也可降低这些作用,且呈剂量依赖性[30]。白藜芦醇可能通过沉默信息调节因子1(SIRT1)介导的过氧化物酶体增殖激活受体γ辅助激活因子-1α(PGC-1α)去乙酰化信号通路(SIRT1/PGC-1α)减轻高氧诱导的线粒体功能障碍和肺泡上皮细胞的凋亡[41]。白藜芦醇显著上调抗凋亡蛋白Bcl-2的表达,下调促凋亡蛋白Bax的表达[42-43]。在体外细胞基础的试验中,发现乙醇增加了ESC-B5胚胎干细胞中ROS的产生,导致细胞内细胞质游离钙离子(Ca2+)和一氧化氮(NO)浓度增加,线粒体膜电位丧失,线粒体释放细胞色素c、Caspase 9和Caspase 3激活,并导致细胞凋亡,而白藜芦醇预处理可阻断这些变化[44],这和本研究结果一致。本试验结果显示,热应激或非热应激状态下,添加一定浓度的白藜芦醇后Bcl-2含量显著增加,Bax含量显著降低,APAF-1的蛋白表达显著降低。非热应激状态下,一定浓度的白藜芦醇可以显著降低Bax和Caspase 9含量。热应激下添加白藜芦醇能够一定程度上缓解p53蛋白表达的升高,表明白藜芦醇可能通过调控线粒体凋亡通路来降低细胞凋亡。
高热、缺氧、机械刺激、射线等不良刺激均可诱导细胞热应激蛋白(特别是HSP70)的产生[45]。在细胞的稳定状态中,细胞内HSP70蛋白的表达量很低,主要发挥分子伴侣功能。当细胞遭受热应激时,通过热休克因子及热激元件的辅助,HSP70转录激活,表达水平增加[46]。在PBMC及MDBK细胞上研究发现,中度及重度热应激都可提高HSP70 mRNA的表达水平[24],其他的细胞也有类似的结果。作为经典的抗凋亡蛋白之一,HSP70可保护细胞免受应激条件所带来的损害,在炎症过程中,HSP70也有抵抗ROS的作用[47]。不一致的是,本试验结果显示,热应激组的HSP70的基因和蛋白表达都不显著,原因可能是HSP70对热应激响应的时间更迅速,为了逐步适应热应激带来的影响,细胞本身的调节机制会在上调HSP70表达后又逐步下调它的表达。
而且,与热应激组相比,热应激时添加60 μg/mL白藜芦醇组的HSP70基因相对表达量显著升高。白藜芦醇可以调节热应激诱导山羊小肠上皮细胞GIE细胞炎性模型中HSP70基因表达和炎症因子的产生及表达,促进抗氧化酶活性,具有显著的抗炎活性,其抑炎作用可能与抑制NF-κB信号通路有关[48]。接着本研究调查了NF-κB信号通路的关键信号因子p65和IκB蛋白以及p38-丝裂原活化蛋白激酶(MAPK)信号通路的p38蛋白。研究显示,与Con组相比,RSV60、HT-Con及HT-RSV60组的IκB蛋白表达量显著降低,而且,组间p38和p65的蛋白表达量差异不显著。
当家禽受到热应激时,生产性能会显著下降,导致生产成本上升,对禽业生产造成严重危害[49]。暴露在高环境温度中,鸡的免疫反应等生物防御机制失调,脾脏会发生萎缩[50-51]。本课题组前期研究表明,白藜芦醇能通过提高脾脏器官指数来缓解热应激造成的脾脏损伤,提高生长性能[9,19]。此外,白藜芦醇可以通过抑制肉鸡脾脏中模式识别受体(PRRs)信号的激活,缓解热应激引起的先天免疫和炎症反应[48]。先前研究表明,在热应激处理的肉鸡中,脾脏白细胞介素-1β、白细胞介素-4和白细胞介素-6 mRNA的相对表达量急剧上调,而白细胞介素-2的mRNA相对表达量则显著下调[52]。研究发现,白藜芦醇可在体外诱发对白细胞介素-1α、白细胞介素-6和肿瘤坏死因子-α产生的剂量依赖性抑制,并下调白细胞介素-17的mRNA表达相对表达量和蛋白质分泌[53]。因此,白藜芦醇能够通过缓解热应激造成的脾脏损伤,恢复家禽生长性能。

4 结论

热应激会导致淋巴细胞增殖显著下降,LDH活性显著增加,细胞凋亡率升高,显著增加p53含量和p53蛋白表达,降低Bcl-2含量,增加Bax含量。白藜芦醇以剂量依赖性增加细胞增殖,降低LDH活性,减轻细胞凋亡等。试验结果表明,白藜芦醇可以促进细胞增殖,降低LDH活性,调控凋亡蛋白的表达,从而减轻热应激诱导的脾脏淋巴细胞的损伤。
[1]
NARINÇ D, ERDOĞAN S, TAHTABIÇEN E, et al. Effects of thermal manipulations during embryogenesis of broiler chickens on developmental stability,hatchability and chick quality [J]. Animal,2016,10(8):1328-1335.

[2]
LARA L J, ROSTAGNO M H. Impact of heat stress on poultry production[J]. Animals, 2013, 3(2):356-369.

DOI PMID

[3]
ZABOLI G R, RAHIMI S, SHARIATMADARI F, et al. Thermal manipulation during Pre and post-hatch on thermotolerance of male broiler chickens exposed to chronic heat stress[J]. Poultry Science, 2017, 96(2):478-485.

DOI

[4]
HOSSEINI-VASHAN S J, GOLIAN A, YAGHOBFAR A. Growth,immune,antioxidant,and bone responses of heat stress-exposed broilers fed diets supplemented with tomato pomace[J]. International Journal of Biometeorology, 2016, 60(8):1183-1192.

DOI

[5]
ABDELQADER A M, ABUAJAMIEH M, HAMMAD H M, et al. Effects of dietary butyrate supplementation on intestinal integrity of heat-stressed cockerels[J]. Journal of Animal Physiology and Animal Nutrition, 2017, 101(6):1115-1121.

DOI PMID

[6]
GITOEE A, SADEGHI G, KARIMI A. Combination effects of organic and inorganic chromium on production performance,reproductive response,immune status,and maternal antibody transmission in breeder quails under heat stress[J]. Biological Trace Element Research, 2018, 184(2):508-516.

DOI

[7]
AKHAVAN-SALAMAT H, GHASEMI H A. Alleviation of chronic heat stress in broilers by dietary supplementation of betaine and turmeric rhizome powder:dynamics of performance,leukocyte profile,humoral immunity,and antioxidant status[J]. Tropical Animal Health and Production, 2016, 48(1):181-188.

DOI

[8]
SCHMIDT K L, FURLONGER A A, LAPIERRE J M, et al. Regulation of the HPA axis is related to song complexity and measures of phenotypic quality in song sparrows[J]. Hormones and Behavior, 2012, 61(4):652-659.

DOI PMID

[9]
刘丽莉. 白藜芦醇对乌骨鸡热应激损伤的修复机制研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2014.

LIU L L. Research on the repair mechanisms of resveratrol to heat stress-induced damages in black-boned chicken[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2014. (in Chinese)

[10]
FRANCIOSO A, MASTROMARINO P, MASCI A, et al. Chemistry,stability and bioavailability of resveratrol[J]. Medicinal Chemistry, 2014, 10(3):237-245.

DOI

[11]
LANÇON A, FRAZZI R, LATRUFFE N. Anti-oxidant,anti-inflammatory and anti-angiogenic properties of resveratrol in ocular diseases[J]. Molecules, 2016, 21(3):304.

DOI

[12]
DE LA LASTRA C A, VILLEGAS I. Resveratrol as an anti-inflammatory and anti-aging agent:mechanisms and clinical implications[J]. Molecular Nutrition & Food Research, 2005, 49(5):405-430.

[13]
MENG T T, XIAO D F, MUHAMMED A, et al. Anti-inflammatory action and mechanisms of resveratrol[J]. Molecules, 2021, 26(1):229.

DOI

[14]
HE S P, CHEN L, HE Y J, et al. Resveratrol alleviates heat stress-induced impairment of intestinal morphology,barrier integrity and inflammation in yellow-feather broilers[J]. Animal Production Science, 2020, 60(12):1547-1556.

DOI

[15]
ZHANG C, CHEN K K, ZHAO X H, et al. Protective effects of resveratrol against high ambient temperature-induced spleen dysplasia in broilers through modulating splenic redox status and apoptosis[J]. Journal of the Science of Food and Agriculture, 2018, 98(14):5409-5417.

DOI PMID

[16]
HE S P, YU Q F, HE Y J, et al. Dietary resveratrol supplementation inhibits heat stress-induced high-activated innate immunity and inflammatory response in spleen of yellow-feather broilers[J]. Poultry Science, 2019, 98(12):6378-6387.

DOI PMID

[17]
LI G Y, XIE C Y, WANG Q H, et al. Uridine/UMP metabolism and their function on the gut in segregated early weaned piglets[J]. Food & Function, 2019, 10(7):4081-4089.

[18]
MENG T T, GAO L M, XIE C Y, et al. Manganese methionine hydroxy analog chelated affects growth performance,trace element deposition and expression of related transporters of broilers[J]. Animal Nutrition, 2021, 7(2):481-487.

DOI

[19]
何邵平. 白藜芦醇对热应激黄羽肉鸡免疫功能调控及分子机制研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2019.

HE S P. Research on the regulation and molecular mechanism of resveratrol on immune function of yellow-feather broilers under heat stress[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2019. (in Chinese)

[20]
NACE G, EVANKOVICH J, EID R, et al. Dendritic cells and damage-associated molecular patterns:endogenous danger signals linking innate and adaptive immunity[J]. Journal of Innate Immunity, 2012, 4(1):6-15.

DOI

[21]
孙芝源, 郭亚鸣, 戈兴, 等. 脂质体二甲基姜黄素体内体外抑制大鼠脾淋巴细胞增殖并调节细胞周期[J]. 常州大学学报(自然科学版), 2020, 32(4):63-70.

SUN Z Y, GUO Y M, GE X, et al. Liposomal dimethyl curcumin inhibits cell proliferation and reg-ulates cell cycle of rat spleen lymphocytes in vivo and in vitro[J]. Journal of Changzhou University (Natural Science Edition), 2020, 32(4):63-70. (in Chinese)

[22]
陈清华. 牛膝多糖对猪的营养效应和免疫调控机理研究[D]. 博士学位论文. 长沙: 湖南农业大学, 2008.

CHEN Q H. Study on the mechanism of nutrition and immunomodultion of Achyranthes bidentata polysaccharide in pigs[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2008. (in Chinese)

[23]
RIEZMAN H. Why do cells require heat shock proteins to survive heat stress?[J]. Cell Cycle, 2004, 3(1):60-62.

DOI

[24]
康玲, 胡丽蓉, 李玮, 等. 冷热应激对牛PBMC和MDBK细胞活力及HSP70表达的影响[J]. 中国兽医学报, 2018, 38(7):1359-1365.

KANG L, HU L R, LI W, et al. Effect of cold and heat stress on cell vitality and HSP70 expression in PBMC and MDBK of cattle[J]. Chinese Journal of Veterinary Science, 2018, 38(7):1359-1365. (in Chinese)

[25]
王若冰, 朱雨凝, 丰艳妮, 等. 葛根素通过抑制线粒体凋亡通路和调节HSP72表达缓解热应激诱导的LLC-PK1细胞凋亡[J]. 农业生物技术学报, 2019, 27(11):2004-2012.

WANG R B, ZHU Y N, FENG Y N, et al. Puerarin attenuates heat stress-induced apoptosis in LLC-PK1 cells by inhibiting mitochondrial apoptotic pathway and regulating HSP72 expression[J]. Journal of Agricultural Biotechnology, 2019, 27(11):2004-2012. (in Chinese)

[26]
豆梦莹, 张才, 李元晓, 等. 精氨酸对热应激处理的奶牛原代小肠上皮细胞增殖和凋亡的影响[J]. 畜牧兽医学报, 2022, 53(2):493-504.

DOU M Y, ZHANG C, LI Y X, et al. Effects of L-arginine on proliferation and apoptosis of primary intestinal epithelial cells of dairy cows treated with heat stress in vitro[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(2):493-504. (in Chinese)

[27]
史素荣, 宋志恒, 周亚星, 等. 褪黑素对热应激奶牛乳腺上皮细胞及育成牛血清HSP70含量的影响[J]. 黑龙江畜牧兽医, 2022(15):68-73.

SHI S R, SONG Z H, ZHOU Y X, et al. Effect of melatonin on dairy cow mammary epithelial cells and serum HSP70 of bred cattle under heat stress[J]. Heilongjiang Animal Science and Veterinary Medicine, 2022(15):68-73. (in Chinese)

[28]
王菊花, 张粟子, 刘丹丹, 等. 鸡胚小肠上皮细胞的分离培养及其热应激效应[J]. 西北农林科技大学学报(自然科学版), 2020, 48(3):9-15,22.

WANG J H, ZHANG L Z, LIU D D, et al. Isolation,culture and heat stress effect of chicken intestinal epithelial cells[J]. Journal of Northwest A&F University (Natural Science Edition), 2020, 48(3):9-15,22. (in Chinese)

[29]
刘英博, 付越, 郝璐, 等. 白藜芦醇对小鼠脾淋巴细胞免疫调节活性的影响[J]. 食品工业科技, 2016, 37(8):335-339.

LIU Y B, FU Y, HAO L, et al. The influence of resveratrol on immunoregulatory activity of mouse splenic lymphocyte[J]. Science and Technology of Food Industry, 2016, 37(8):335-339. (in Chinese)

[30]
LOU Z K, LI X G, ZHAO X L, et al. Resveratrol attenuates hydrogen peroxide-induced apoptosis,reactive oxygen species generation,and PSGL-1 and VWF activation in human umbilical vein endothelial cells,potentially via MAPK signalling pathways[J]. Molecular Medicine Reports, 2018, 17(2):2479-2487.

[31]
OUSINGSAWAT J, SCHREIBER R, KUNZELMANN K. TMEM16F/anoctamin 6 in ferroptotic cell death[J]. Cancers, 2019, 11(5):625.

DOI

[32]
连锐锐, 李桂明, 孙传熙, 等. HSP在热应激条件下调控鸡心肌细胞损伤的功能分析[J]. 动物医学进展, 2021, 42(2):33-40.

LIAN R R, LI G M, SUN C X, et al. Functional analysis of HSP regulating chicken myocardial cell damage under heat stress[J]. Progress in Veterinary Medicine, 2021, 42(2):33-40. (in Chinese)

[33]
CHEN J S, CAO X C, CUI Y H, et al. Resveratrol alleviates lysophosphatidylcholine-induced damage and inflammation in vascular endothelial cells[J]. Molecular Medicine Reports, 2018, 17(3):4011-4018.

DOI PMID

[34]
LI Z W, CHEN X M, LIU G, et al. Antioxidant activity and mechanism of resveratrol and polydatin isolated from mulberry (Morus alba L.)[J]. Molecules, 2021, 26(24):7574.

DOI

[35]
胡善明, 王亚楠, 许正茂, 等. Bcl-2家族分子在细胞凋亡中的作用研究进展[J]. 动物医学进展, 2021, 42(10):85-89.

HU S M, WANG Y N, XU Z M, et al. Progress on Bcl-2 family molecular function in apoptosis[J]. Progress in Veterinary Medicine, 2021, 42(10):85-89. (in Chinese)

[36]
周婉婷, 杨晨, 彭翠甜. 白藜芦醇对急性热应激条件下鸭肝抗氧化能力和细胞凋亡的影响[J]. 畜牧兽医学报, 2023, 54(1):239-251.

ZHOU W T, YANG C, PENG C T, et al. Effects of resveratrol on anti-oxidation and anti-apoptosis of hepatocytes of ducks on exposure to acute heat stress[J]Acta Veterinaria et Zootechnica Sinica, 2023, 54(1):239-251. (in Chinese)

[37]
LUO M, LI L, XIAO C, et al. Heat stress impairs mice granulosa cell function by diminishing steroids production and inducing apoptosis[J]. Molecular and Cellular Biochemistry, 2016, 412(1/2):81-90.

DOI

[38]
LI C M, WANG Y R, LI L, et al. Betaine protects against heat exposure-induced oxidative stress and apoptosis in bovine mammary epithelial cells via regulation of ROS production[J]. Cell Stress and Chaperones, 2019, 24(2):453-460.

DOI

[39]
LIU W, LENG J, HOU J G, et al. Saponins derived from the stems and leaves of Panax ginseng attenuate scrotal heat-induced spermatogenic damage via inhibiting the MAPK mediated oxidative stress and apoptosis in mice[J]. Phytotherapy Research, 2021, 35(1):311-323.

DOI

[40]
MÉPLAN C, RICHARD M J, HAINAUT P. Redox signalling and transition metals in the control of the p53 pathway[J]. Biochemical Pharmacology, 2000, 59(1):25-33.

PMID

[41]
ZHU X D, WANG F, LEI X P, et al. Resveratrol alleviates alveolar epithelial cell injury induced by hyperoxia by reducing apoptosis and mitochondrial dysfunction[J]. Experimental Biology and Medicine, 2021, 246(5):596-606.

DOI

[42]
RATAJCZAK K, GLATZEL-PLUCIÑSKA N, RATAJCZAK-WIELGOMAS K, et al. Effect of resveratrol treatment on human pancreatic cancer cells through alterations of Bcl-2 family members[J]. Molecules, 2021, 26(21):6560.

DOI

[43]
EL-BOGHDADY N A, ABDELTAWAB N F, NOOH M M. Resveratrol and montelukast alleviate paraquat-induced hepatic injury in mice:modulation of oxidative stress,inflammation,and apoptosis[J]. Oxidative Medicine and Cellular Longevity, 2017, 2017:9396425.

[44]
HUANG L H, SHIAO N H, HSUUW Y D, et al. Protective effects of resveratrol on ethanol-induced apoptosis in embryonic stem cells and disruption of embryonic development in mouse blastocysts[J]. Toxicology, 2007, 242(1/2/3):109-122.

DOI

[45]
MOSSER D D, CARON A W, BOURGET L, et al. Role of the human heat shock protein hsp70 in protection against stress-induced apoptosis[J]. Molecular and Cellular Biology, 1997, 17(9):5317-5327.

DOI PMID

[46]
SONNA L A, FUJITA J, GAFFIN S L, et al. Invited review:effects of heat and cold stress on mammalian gene expression[J]. Journal of Applied Physiology, 2002, 92(4):1725-1742.

DOI

[47]
FUJIKAWA T, MUNAKATA T, KONDO S I, et al. Stress response in the ascidian Ciona intestinalis:transcriptional profiling of genes for the heat shock protein 70 chaperone system under heat stress and endoplasmic reticulum stress[J]. Cell Stress and Chaperones, 2010, 15(2):193-204.

DOI

[48]
张宇, 徐子洁, 黄晓瑜, 等. 白藜芦醇对热应激诱导的山羊小肠上皮细胞炎性反应调节作用的研究[J]. 畜牧兽医学报, 2020, 51(8):1886-1894.

ZHANG Y, XU Z J, HUANG X Y, et al. Regulatory effect of resveratrol on inflammatory response induced by heat stress in goat small intestinal epithelial cells[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(8):1886-1894. (in Chinese)

[49]
万根, 黎观红, 许兰娇, 等. 饲粮中添加包被丁酸钠对循环热应激条件下肉鸡生长性能、抗氧化能力和炎性反应的影响[J]. 动物营养学报, 2023, 35(1):211-220.

DOI

WAN G, LI G H, XU L J, et al. Effects of dietary coated sodium butyrate on growth performance,antioxidant capacity and inflammatory response of broilers under cyclically heat-stress condition[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):211-220. (in Chinese)

DOI

[50]
何晓芳, 张林, 李蛟龙, 等. 饲粮中添加牛磺酸对慢性热应激肉鸡血清内分泌激素水平、下丘脑形态及食欲相关基因表达的影响[J]. 畜牧与兽医, 2022, 54(12):24-30.

HE X F, ZHANG L, LI J L, et al. Effect of dietary taurine supplementation on the serum endocrine hormone level,hypothalamus morphology, appetite-related genes expression in broilers under chronic heat stress[J]. Animal Husbandry & Veterinary Medicine, 2022, 54(12):24-30. (in Chinese)

[51]
LIU L L, FU C X, YAN M L, et al. Resveratrol modulates intestinal morphology and HSP70/90,NF-κB and EGF expression in the jejunal mucosa of black-boned chickens on exposure to circular heat stress[J]. Food & Function, 2016, 7(3):1329-1338.

[52]
LI T, SONG Y P, BAO X Y, et al. The mediation of miR-34a/miR-449c for immune cytokines in acute cold/heat-stressed broiler chicken[J]. Animals, 2020, 10(11):2168.

DOI

[53]
FUGGETTA M P, BORDIGNON V, COTTARELLI A, et al. Downregulation of proinflammatory cytokines in HTLV-1-infected T cells by resveratrol[J]. Journal of Experimental & Clinical Cancer Research, 2016, 35(1):118.

Outlines

/