RESEARCH PAPER

Mitigative Effects of Bioactive Peptide on Intestinal Injury of Mice Induced by Enterotoxigenic Escherichia coli

  • WANG Zhaoyu , 1, 2 ,
  • WU Xiaoyu 1, 2 ,
  • PEI Xiaoqi 1, 2 ,
  • WEI Hongkui , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Huazhong Agricultural University, Wuhan 430070, China
  • 2 The Cooperative Innovation Center for Sustainable Pig Production, Wuhan 430070, China
* associate professor, E-mail:

Received date: 2023-01-05

  Online published: 2023-07-11

Abstract

This experiment was conducted to investigate the mitigative effects of bioactive peptide (BTP) on intestinal injury of mice induced by enterotoxigenic Escherichia coli (ETEC). Forty 6-week-old C57BL/6 mice with body weight of (18±2) g were randomly divided into 4 groups, which were blank control group, negative control group, experiment group Ⅰ and experiment group Ⅱ, each group contained 10 mice. The experiment lasted for 15 days, during days 8 to 14, mice in blank control group and negative control group were received 0.1 mL phosphate buffer solution (PBS) by gavage every day, and mice in experiment group Ⅰ and experiment group Ⅱ were received 150 and 300 mg/kg BTP (dissolved in 0.1 mL PBS) by gavage every day, respectively; on day 15, mice in the blank control group were received 0.2 mL PBS by gavage, and mice in negative control group, experiment group Ⅰ and experiment group Ⅱ were received 5×10⁹ CFU/mL ETEC bacterial suspension (resuspended in 0.2 mL PBS) by gavage, slaughter after continuous observation for 8 h. The results showed as follows: 1) compared with the blank control group, the survival rate of mice of negative control group was significantly decreased (P<0.05), and the diarrhea index was significantly increased (P<0.05); the jejunum tumor necrosis factor-α (TNF-α) mRNA relative expression level was significantly increased (P<0.05), and the interleukin-1β (IL-1β) and interleukin-6 (IL-6) contents were significantly increased (P<0.05); the mRNA relative expression levels of Occludin, zonula occludens-1 (ZO-1), zonula occludens-2 (ZO-2) and nuclear receptor 77 (Nur77) in jejunum were significantly decreased (P<0.05); the serum glutathione peroxidase (GSH-Px) activity was significantly decreased (P<0.05), and the malondialdehyde (MDA) content was significantly increased (P<0.05). 2) Compared with the negative control group, the survival rate of mice of experiment group Ⅰ and experiment group Ⅱ was significantly increased (P<0.05), and the diarrhea index was significantly decreased (P<0.05); the jejunum TNF-α mRNA relative expression level of experiment group Ⅰ and experiment group Ⅱ was significantly decreased (P<0.05), and the IL-1β and IL-6 contents were significantly decreased (P<0.05); the mRNA relative expression levels of Occludin and Nur77 in jejunum of experiment group Ⅱ were significantly increased (P<0.05); the serum MDA content of experiment group Ⅰ and experiment group Ⅱ was significantly decreased (P<0.05), and the serum GSH-Px activity of experiment group Ⅱ was significantly increased (P<0.05). In conclusion, BTP can alleviate intestinal inflammation and barrier function damage caused by ETEC infection in mice, and this effect may be related to the up-regulation of Nur77 expression and inhibition of intestinal epithelial cell apoptosis, necroptosis and pyroptosis by BTP.

Cite this article

WANG Zhaoyu , WU Xiaoyu , PEI Xiaoqi , WEI Hongkui . Mitigative Effects of Bioactive Peptide on Intestinal Injury of Mice Induced by Enterotoxigenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2023 , 35(7) : 4659 -4667 . DOI: 10.12418/CJAN2023.432

肠道作为消化、营养吸收和矿物质交换的主要场所,拥有庞大的微生物群落和高度进化的黏膜免疫系统[1]。仔猪早期断奶是集约化养猪生产中常用的生产技术,可以大大提高生产效率。但是,由于仔猪早期胃肠道发育不完善,被动免疫力差,易受到外部病原微生物感染,从而发生多种肠道类疾病。腹泻作为最多发的猪肠道疾病,同时也是造成初生仔猪死亡的常见病[2]。产肠毒素大肠杆菌(enterotoxigenic Escherichia coli,ETEC)是动物生产过程中造成动物腹泻主要的病原菌之一[2]。研究表明,ETEC感染后会破坏肠道屏障功能,引起仔猪腹泻和肠道炎症,甚至导致仔猪死亡[3]。针对仔猪ETEC感染一般会采用抗生素治疗,但长期、超量使用抗生素不仅会引起致病菌产生耐药性,而且可能导致抗生素残留超标和环境污染[4]
生物活性肽(bioactive tripeptide,BTP)是对动物有益或具有生理调节作用的特异性小肽片段[5],它们一般由2~20个氨基酸残基构成[6]。研究表明,BTP具有抗氧化、抗炎、抗高血压和抗菌活性[7]。与饲喂对照饲粮(含有喷雾干燥血浆或干燥乳清的饲粮)的断奶仔猪相比,饲喂含有6%含肽肝素渣水解物(肝素生产副产物)的饲粮可以显著提高断奶仔猪的生长性能[8]。在饲粮中添加0.03%的异亮氨酸-谷氨酰胺-色氨酸(IQW)三肽或异亮氨酸-精氨酸-色氨酸(IRW)三肽,可以缓解小鼠ETEC感染引起的肠道损伤和炎症[9]。BTP可以改善动物肠道功能,并增加对致病微生物的抵抗能力[10],从而减少预防和治疗用抗生素在动物生产中的使用。本实验室前期从鱼皮明胶酶解产物中鉴定得到一种BTP,发现其可通过转录因子核受体77(nuclear receptor 77,Nur77)来调节细胞程序性死亡,从而抑制肠道炎症和氧化应激[11]。因此,本试验通过建立ETEC感染小鼠肠道炎症模型,研究BTP对小鼠肠道炎性细胞因子、紧密连接蛋白表达和血清抗氧化指标以及肠上皮细胞程序性死亡的影响,探究BTP对肠道的保护作用及其机制,为解决生产中因ETEC感染引起的仔猪腹泻问题寻找新的解决方式。

1 材料与方法

1.1 试验动物

试验选用健康无特定病原体(SPF)级6周龄雌性C57BL/6小鼠40只,体重(18±2) g,购自三峡大学实验动物中心。小鼠基础饲粮由武汉春玉红实验动物饲料有限公司提供。试验小鼠饲养于温湿度适宜的鼠笼中,提供充足的饮水和饲粮。

1.2 试验材料

试验选用的菌株为ETEC K88(CVCC 196),购买于中国兽药监察所。主要试验材料如下:BTP(上海吉尔生化有限公司)、伊红美蓝培养基(广东环凯生物科技有限公司)、多聚甲醛(国药集团化学试剂有限公司)、TRizol试剂(南京诺唯赞生物科技股份有限公司)、反转录试剂盒(武汉爱博泰克生物科技有限公司)、SYBR Green Master Mix(南京诺唯赞生物科技股份有限公司)、白细胞介素-1β(interleukin-1β,IL-1β)试剂盒(南京建成生物工程研究所)、白细胞介素-6(interleukin-6,IL-6)试剂盒(南京建成生物工程研究所)、丙二醛(malondialdehyde,MDA)试剂盒(南京建成生物工程研究所)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)试剂盒(南京建成生物工程研究所)、4',6-二脒基-2-苯基吲哚(DAPI)封片剂(C1005,上海碧云天生物技术有限公司)、IL-1β(63124,美国Cell Signaling Technology公司)、受体相互作用蛋白3(RIP3)(A5431,武汉爱博泰克生物科技有限公司)和半胱氨酸蛋白酶-3(Caspase-3)(A2156,武汉爱博泰克生物科技有限公司)。

1.3 试验设计

选择体重相近的6周龄雌性C57BL/6小鼠40只,随机分为4组,即空白对照组、阴性对照组、试验Ⅰ组、试验Ⅱ组,每组10只。试验期共15 d,小鼠到达试验场地后适应7 d;在第8~14天,空白对照组和阴性对照组小鼠每天灌胃0.1 mL的磷酸盐缓冲液(PBS),试验Ⅰ组和试验Ⅱ组小鼠每天灌胃150和300 mg/kg的BTP(溶于0.1 mL PBS中);在第15天,空白对照组小鼠灌胃0.2 mL的PBS,阴性对照组、试验Ⅰ组和试验Ⅱ组小鼠灌胃5×10⁹ CFU/mL的ETEC菌悬液(重悬于0.2 mL PBS中),连续观察8 h后进行屠宰。所有试验流程通过了华中农业大学动物伦理委员会审批。

1.4 指标测定

1.4.1 小鼠存活率测定方法

每小时观察小鼠死亡情况,记录8 h内每组小鼠的死亡数量,计算死亡率,计算公式为:
死亡率(%)=100×每组死亡小鼠数量/每组小鼠总数量。

1.4.2 腹泻指数的观测和计算方法

记录第15天灌胃后8 h内小鼠的总排便数、稀便次数;根据稀便污染滤纸直径,稀便级分为4级,1级:<1 cm;2级:1~2 cm;3级:2~3 cm;4级:>4 cm。计算稀便率、平均稀便级和腹泻指数,计算公式如下:
稀便率(%)=(每只动物每日稀便量/每日总便量)×该组动物数量×100;
平均稀便级=所有稀便级数/稀便次数;
腹泻指数=稀便率×平均稀便级。

1.4.3 血清氧化应激指标测定

血清MDA含量和GSH-Px活性按照试剂盒说明书进行测定。

1.4.4 空肠IL-1β和IL-6含量测定

空肠IL-1β和IL-6含量按照试剂盒说明书进行测定。

1.4.5 空肠氧化应激指标、炎性因子及肠道屏障相关因子表达测定

使用Trizol法提取肠道组织总RNA,采用反转录试剂盒将总RNA反转录为cDNA。实时荧光定量PCR(RT-qPCR)引物序列见表1。qPCR采用SYBR Green Master Mix PCR试剂进行,过程如下:95 ℃ 30 s,95 ℃ 5 s,60 ℃ 30 s,40个循环。最后,用β-肌动蛋白(β-actin)作为内参进行样品间的校正,使用2-ΔΔCt法计算目的基因[肿瘤坏死因子-α(TNF-α)、IL-1βIL-6、闭锁小带蛋白-1(ZO-1)、闭锁小带蛋白-2(ZO-2)、闭合蛋白(Occludin)、过氧化氢酶(CAT)和超氧化物歧化酶(SOD)]的mRNA相对表达量,每个样品重复2次。
表1 RT-qPCR引物序列

Table 1 RT-qPCR primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
β-肌动蛋白 F:GTCAGGTCATCACTATCGGCAAT
β-actin R:AGAGGTCTTTACGGATGTCAACGT
肿瘤坏死因子-α F:CCTGTAGCCCACGTCGTAG
TNF-α R:GGAGTAGACAAGGTACAACCC
白细胞介素-1β F:TGGTGTGTGACGTTCCCATT
IL-1β R:CAGCACGAGGCTTTTTTGTTG
白细胞介素-6 F:CCGGAGAGGAGACTTCACAG
IL-6 R:AGAATTGCCATTGCACAAC
闭锁小带蛋白-1 F:TCATCCCAAATAAGAACAGAGC
ZO-1 R:GAAGAACAACCCTTTCATAAGC
闭锁小带蛋白-2 F:GCTGTGGACCTGCTCAACTAC
ZO-2 R:GGACTCAACCTCTGCCTTATGG
闭合蛋白 F:GCTACGGAGGTGGCTATGGA
Occludin F:GCTACGGAGGTGGCTATGGA
过氧化氢酶 F:TGTTGAACGAGGAGGAGAGGAA
CAT R:CCTTCGCAGCCATGTGAGAG
超氧化物歧化酶 F:GAACCATCCACTTCGAGCAGAA
SOD R:ACCGTCCTTTCCAGCAGTCA

1.4.6 免疫荧光检测

采用4%多聚甲醛固定空肠组织,切片后再脱蜡,加入乙二胺四乙酸(EDTA,1 mol/L,pH 9.0)修复抗原。0.5% Triton X-100透化组织,再用3%牛血清白蛋白(BSA)封闭处理,然后依次用一抗和二抗孵育,最后加入DAPI染核。将染好的切片用Leica&TCS SP8共聚焦显微镜进行观察,拍照。

1.5 数据统计分析

试验数据经过Excel 2016初步处理后,采用SAS 8.4软件的GLM程序进行单因素方差分析,采用Duncan氏法进行多重比较,并用GraPhad Prism 8.0做图。数据以平均值±标准误表示,P<0.05代表显著差异。

2 结果与分析

2.1 BTP对ETEC诱导小鼠存活率和腹泻指数的影响

图1可知,在灌胃后5~8 h,与空白对照组相比,阴性对照组的小鼠存活率显著降低(P<0.05),腹泻指数显著升高(P<0.05)。与阴性对照组相比,试验Ⅰ组和试验Ⅱ组的小鼠存活率显著升高(P<0.05),腹泻指数显著降低(P<0.05)。以上结果表明,BTP可缓解ETEC诱导的小鼠腹泻,提高小鼠存活率。
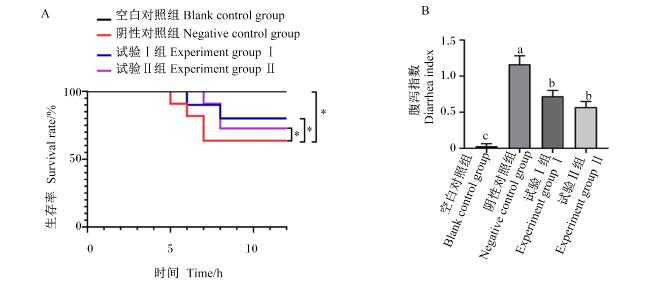
图1 BTP对ETEC诱导小鼠存活率和腹泻指数的影响

*表示差异显著(P<0.05)。数据柱标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of BTP on survival rate and diarrhea index of mice induced by ETEC

* mean significant difference (P<0.05). Value columns with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.2 BTP对ETEC诱导小鼠空肠形态结构的影响

图2可知,与空白对照组相比,阴性对照组的小鼠空肠组织出现炎性浸润、绒毛间隙变宽、绒毛断裂和绒毛水肿。通过对空肠病变范围、病变深度和炎症进行总体的切片评分发现,与空白对照组相比,阴性对照组小鼠的切片评分显著升高(P<0.05);与阴性对照组相比,试验Ⅰ组和试验Ⅱ组小鼠的切片评分显著降低(P<0.05)。以上结果表明,BTP缓解了ETEC诱导的小鼠空肠形态损伤。
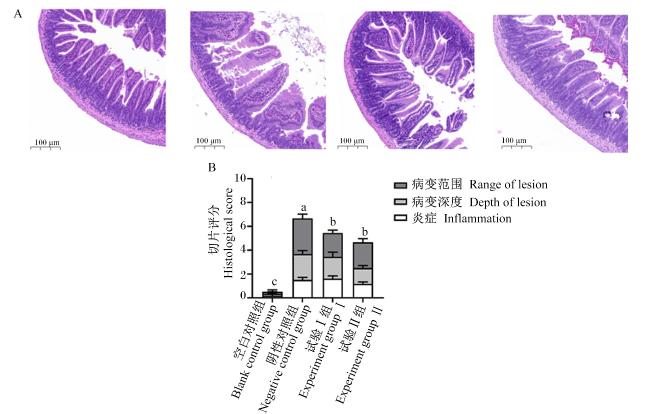
图2 BTP对ETEC诱导小鼠空肠形态学的影响

Fig.2 Effects of BTP on jejunum morphology of mice (100×)

2.3 BTP对ETEC诱导小鼠肠道炎性细胞因子表达和含量的影响

图3可知,与空白对照组相比,阴性对照组的小鼠空肠TNF-α的mRNA相对表达量显著升高(P<0.05),IL-1β、IL-6含量显著升高(P<0.05)。与阴性对照组相比,试验Ⅰ组和试验Ⅱ组的小鼠空肠TNF-α的mRNA相对表达量显著降低(P<0.05),IL-1β、IL-6含量显著降低(P<0.05)。
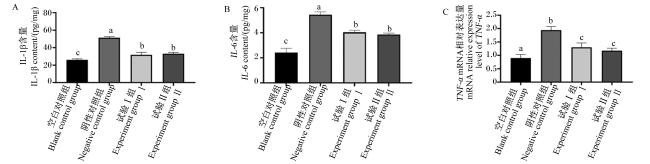
图3 BTP对ETEC诱导小鼠肠道炎性因子表达的影响

Fig.3 Effects of BTP on intestinal inflammatory cytokine expression of mice induced by ETEC

2.4 BTP对小鼠肠道紧密连接蛋白表达的影响

图4可知,与空白对照组相比,阴性对照组的小鼠空肠OccludinZO-1、ZO-2的mRNA相对表达量显著降低(P<0.05)。与阴性对照组相比,试验Ⅱ组的小鼠空肠Occludin的mRNA相对表达量显著增加(P<0.05),试验Ⅰ组和试验Ⅱ组的小鼠空肠ZO-1和ZO-2的mRNA相对表达量无显著差异(P>0.05)。以上结果表明,BTP可提高ETEC感染后小鼠空肠Occludin的mRNA相对表达量,维护肠道屏障。
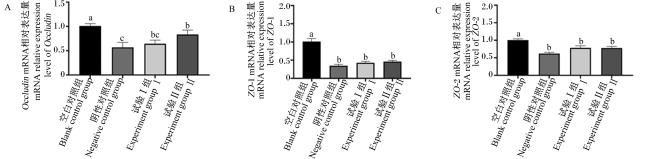
图4 BTP对ETEC诱导小鼠肠道紧密连接蛋白表达的影响

Fig.4 Effects of BTP on intestinal tight junction protein expression of mice induced by ETEC

2.5 BTP对ETEC诱导小鼠血清和空肠氧化应激指标的影响

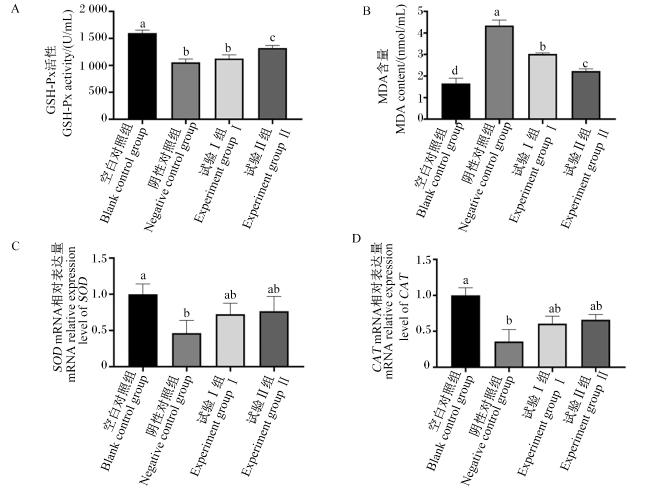
图5可知,与空白对照组相比,阴性对照组的小鼠血清GSH-Px活性显著降低(P<0.05),MDA含量显著升高(P<0.05)。与阴性对照组相比,试验Ⅰ组和试验Ⅱ组的小鼠血清MDA含量显著降低(P<0.05),试验Ⅱ组的小鼠血清GSH-Px活性显著升高(P<0.05)。与空白对照组相比,阴性对照组的小鼠空肠CATSOD的mRNA相对表达量显著降低(P<0.05)。与阴性对照组相比,试验Ⅰ组和试验Ⅱ组的小鼠空肠CATSOD的mRNA相对表达量有所升高(P>0.05)。
图5 BTP对ETEC诱导小鼠血清和空肠氧化应激指标的影响

Fig.5 Effects of BTP on serum and jejunum oxidative stress indexes of mice induced by ETEC

2.6 BTP对ETEC诱导小鼠空肠上皮细胞程序性死亡及Nur77 mRNA相对表达量的影响

图6可知,与空白对照组相比,阴性对照组的小鼠空肠Nur77的mRNA相对表达量显著降低(P<0.05)。与阴性对照组相比,试验Ⅱ组的小鼠空肠Nur77的mRNA相对表达量显著升高(P<0.05)。
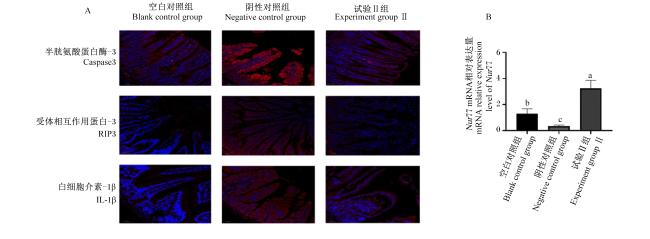
图6 BTP对ETEC诱导小鼠空肠上皮细胞程序性死亡及Nur77 mRNA相对表达量的影响

Fig.6 Effects of BTP on jejunal epithelial cell programmed death and Nur77 mRNA relative expression level of mice induced by ETEC

此外,与空白对照组相比,阴性对照组小鼠空肠固有层及隐窝处与凋亡相关的Caspase-3、与坏死性凋亡相关的RIP3和与焦亡相关的IL-1β表达水平增加(图中暗红色区域),表明ETEC可引起小鼠空肠上皮细胞发生程序性死亡。值得注意的是,BTP处理后小鼠空肠固有层及隐窝处Caspase-3、RIP3和IL-1β表达水平下降,说明BTP可以缓解ETEC感染引起的空肠细胞凋亡、坏死性凋亡和焦亡。

3 讨论

ETEC是导致仔猪腹泻的主要病原菌,猪在感染ETEC后会出现采食量下降、腹泻、精神萎靡等症状,严重者甚至出现死亡,因此给养殖业带来了巨大的经济损失[3]。最近的研究发现,BTP具有抗菌、抗炎和抗氧化的作用[12],因此BTP有希望在一定程度上替代抗生素。本研究发现,BTP可抑制ETEC感染引起的小鼠氧化应激、肠道炎症以及肠道细胞程序性死亡,从而维持肠道屏障功能。
许多研究报道ETEC感染可诱导肠道炎症反应,表现为肠道IL-1β、IL-6、白细胞介素-12(IL-12)、TNF-α含量升高[13]。ETEC定植于肠道后产生的耐热肠毒素和不耐热肠毒素会导致细胞水盐代谢紊乱,并引起肠道炎症与腹泻[14]。ETEC细胞壁中含有的脂多糖(LPS)可直接诱导炎症反应,并可通过激活丝裂原活化蛋白激酶(MAPK)信号通路来进一步促进炎性细胞因子的产生[15-16]。本试验发现,BTP可降低ETEC诱导小鼠的空肠IL-1β、IL-6含量,并降低空肠TNF-α的mRNA相对表达量,说明BTP可有效缓解ETEC感染引起的肠道炎症。
细胞的坏死性凋亡及焦亡是炎性的细胞死亡方式,此外过度的凋亡也会导致炎性反应[17-18]。在发育过程中,细胞凋亡是一种稳态机制,也是发生免疫反应或细胞受损时的一种防御策略[19]。在大多数情况下,细胞凋亡是一种默认的细胞死亡方式,而当关键的凋亡介质被药物抑制,或当细胞发生应激以及被某些病毒感染后,凋亡就会转变为坏死性凋亡[20]。本试验发现,BTP减少了细胞凋亡、坏死性凋亡及焦亡的发生,且空肠组织Nur77的mRNA相对表达量上调了8.9倍。已有研究表明,在葡聚糖硫酸钠(DSS)诱导的结肠炎模型中,BTP可通过上调Nur77的表达,阻断固有层巨噬细胞炎性小体核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)组装,从而抑制细胞焦亡,降低炎性细胞因子释放,进而缓解肠道炎症[21]。对于BTP抑制细菌感染引起的肠黏膜细胞过度凋亡和坏死性凋亡的发生,本研究为首次报道。由于Nur77在调控细胞凋亡中的重要作用[22],本研究的证据暗示,BTP对上述细胞凋亡的调控可能也与Nur77有关。
肠道的氧化应激与炎性反应的产生和发展密切相关。MDA、SOD、GSH-Px都是反映氧化应激程度的重要标志物。SOD和GSH-Px是人体抗氧化系统的主要成员,可以有效分解过氧化物;因此,SOD和GSH-Px活性可以反映机体清除氧自由基的能力[23]。GSH-Px可以利用还原形态的谷胱甘肽(GSH)将过氧化氢(H2O2)转化为水,维持细胞稳定性,保护细胞结构[24]。MDA是一种脂质代谢产物,可以直接反映体内脂质过氧化的强度和速率,也可以间接反映自由基对组织损伤的程度[25]。本研究发现,BTP可降低血清MDA含量,并提高血清GSH-Px活性,说明BTP可以缓解ETEC感染引起的氧化应激。
紧密连接蛋白作为构成肠道屏障的重要结构,是抵御外来抗原、微生物和其他异物的主要参与者[26]。ETEC感染可导致肠道紧密连接蛋白的表达下调[27]。为了验证BTP是否通过降低炎症反应和氧化应激来缓解ETEC感染引起的肠道损伤,我们检测了肠道紧密连接蛋白的表达。300 mg/kg BTP处理上调了ETEC感染后空肠Occludin的表达,表明BTP维护了肠道紧密连接蛋白的功能。上述结果表明,BTP可通过抑制肠道炎性细胞因子释放、提高肠道抗氧化能力以及抑制肠上皮细胞程序性死亡来缓解肠道炎症和损伤。当肠道黏膜的通透性达到一定程度,大分子物质(例如细菌和毒素)可透过肠上皮进入固有层,并进一步易位到血液、肝脏、淋巴等,从而引发肠源性感染,甚至导致多器官功能衰竭;因此,内脏器官中的细菌载量可以反映机体的健康状况[28]。本研究发现,经BTP处理后的小鼠空肠组织切片评分显著降低,说明BTP可在一定程度上缓解小鼠ETEC感染引起的空肠损伤,对黏膜形态起到保护作用。BTP缓解ETEC感染引起的肠道损伤的机制可能是通过促进Nur77表达来抑制炎性细胞因子释放、缓解氧化应激,抑制肠上皮细胞程序性死亡。
本试验结果表明,BTP能够有效缓解小鼠ETEC感染引起的空肠损伤。许多研究表明,小鼠在感染ETEC后会出现明显的体重下降情况,在本试验中也出现了此类情况但不明显,这可能是因为在给小鼠灌服ETEC后较短时间内就进行了屠宰。

4 结论

BTP可缓解小鼠ETEC感染引起的腹泻,并且与阴性对照组相比,试验Ⅰ组和试验Ⅱ组小鼠的存活率显著提高。此外,BTP可以缓解小鼠ETEC感染引起的空肠形态结构受损,增加空肠紧密连接蛋白表达,缓解氧化应激和肠道炎症;该作用可能与BTP上调Nur77表达,抑制肠上皮细胞发生凋亡、坏死性凋亡和焦亡有关。
[1]
KONSTANTINOV S R, FAVIER C F, ZHU W Y, et al. Microbial diversity studies of the porcine gastrointestinal ecosystem during weaning transition[J]. Animal Research, 2004, 53(4):317-324.

DOI

[2]
黄登桂, 周加义, 高春起, 等. 产肠毒素大肠杆菌对仔猪肠道黏膜屏障功能的影响及其损伤修复研究进展[J]. 动物营养学报, 2019, 31(1):48-56.

HUANG D G, ZHOU J Y, GAO C Q, et al. Research progress of effects of enterotoxigenic Escherichia coli on intestinal mucosal barrier function and injury repair of piglets[J]. Chinese Journal of Animal Nutrition, 2019, 31(1):48-56. (in Chinese)

[3]
DUBREUIL J D, ISAACSON R E, SCHIFFERLI D M. Animal enterotoxigenic Escherichia coli[J]. EcoSal Plus, 2016, 7(1):59-98.

[4]
SPELLBERG B, BARTLETT J G, GILBERT D N. The future of antibiotics and resistance[J]. New England Journal of Medicine, 2013, 368(4):299-302.

DOI

[5]
CLARE D A, SWAISGOOD H E. Bioactive milk peptides:a prospectus[J]. Journal of Dairy Science, 2000, 83(6):1187-1195.

DOI

[6]
BHAT Z, KUMAR S, BHAT H F. Bioactive peptides of animal origin:a review[J]. Journal of Food Science and Technology, 2015, 52(9):5377-5392.

DOI

[7]
HERNÁNDEZ-LEDESMA B, DEL MAR CONTRERAS M, RECIO I. Antihypertensive peptides:production,bioavailability and incorporation into foods[J]. Advances in Colloid and Interface Science, 2011, 165(1):23-35.

DOI

[8]
ZIMMERMAN D. The duration of carry-over growth response to intestinal hydrolysate fed to weanling pigs[J]. Iowa State University,Ames,IA,Experiment, 1996, 9612(1):8-14.

[9]
LIU N Y, ZHOU L S, FANG J, et al. Effects of IQW and IRW on inflammation and gut microbiota in ETEC-induced diarrhea[J]. Mediators of Inflammation, 2021, 2021:2752265.

[10]
HOU Y Q, WU Z L, DAI Z L, et al. Protein hydrolysates in animal nutrition:industrial production,bioactive peptides,and functional significance[J]. Journal of Animal Science and Biotechnology, 2017, 8:24.

DOI

[11]
DENG Z, LIU Q, WANG M M, et al. GPA peptide-induced Nur77 localization at mitochondria inhibits inflammation and oxidative stress through activating autophagy in the intestine[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:4964202.

[12]
TULIPANO G. Role of bioactive peptide sequences in the potential impact of dairy protein intake on metabolic health[J]. International Journal of Molecular Sciences, 2020, 21(22):8881.

DOI

[13]
XIE W C, SONG L Y, WANG X Y, et al. A bovine lactoferricin-lactoferrampin-encoding Lactobacillus reuteri CO21 regulates the intestinal mucosal immunity and enhances the protection of piglets against enterotoxigenic Escherichia coli K88 challenge[J]. Gut Microbes, 2021, 13(1):1956281.

DOI

[14]
ZHANG Y C, TAN P, ZHAO Y, et al. Enterotoxigenic Escherichia coli:intestinal pathogenesis mechanisms and colonization resistance by gut microbiota[J]. Gut Microbes, 2022, 14(1):2055943.

DOI

[15]
REN C X, WANG Y J, LIN X F, et al. A combination of formic acid and monolaurin attenuates enterotoxigenic Escherichia coli induced intestinal inflammation in piglets by inhibiting the NF-κB/MAPK pathways with modulation of gut microbiota[J]. Journal of Agricultural and Food Chemistry, 2020, 68(14):4155-4165.

DOI

[16]
WANG X G, GAO X F, HARDWIDGE P R. Heat-labile enterotoxin-induced activation of NF-κB and MAPK pathways in intestinal epithelial cells impacts enterotoxigenic Escherichia coli (ETEC) adherence[J]. Cellular Microbiology, 2012, 14(8):1231-1241.

DOI

[17]
JIA L X, ZHANG W M, ZHANG H J, et al. Mechanical stretch-induced endoplasmic reticulum stress,apoptosis and inflammation contribute to thoracic aortic aneurysm and dissection[J]. The Journal of Pathology, 2015, 236(3):373-383.

DOI

[18]
PATANKAR J V, BECKER C. Cell death in the gut epithelium and implications for chronic inflammation[J]. Nature Reviews.Gastroenterology & Hepatology, 2020, 17(9):543-556.

[19]
GENG J F, ITO Y, SHI L Y, et al. Regulation of RIPK1 activation by TAK1-mediated phosphorylation dictates apoptosis and necroptosis[J]. Nature Communications, 2017, 8(1):359.

DOI PMID

[20]
CHAN F K M, SHISLER J, BIXBY J G, et al. A role for tumor necrosis factor receptor-2 and receptor-interacting protein in programmed necrosis and antiviral responses[J]. Journal of Biological Chemistry, 2003, 278(51):51613-51621.

DOI PMID

[21]
DENG Z, ZHENG L F, XIE X W, et al. GPA peptide enhances Nur77 expression in intestinal epithelial cells to exert a protective effect against DSS-induced colitis[J]. The FASEB Journal, 2020, 34(11):15364-15378.

DOI

[22]
WU L J, CHEN L Q. Characteristics of Nur77 and its ligands as potential anticancer compounds (Review)[J]. Molecular Medicine Reports, 2018, 18(6):4793-4801.

DOI PMID

[23]
LEHOUX S. Redox signalling in vascular responses to shear and stretch[J]. Cardiovascular Research, 2006, 71(2):269-279.

PMID

[24]
FRIDLYAND L E, PHILIPSON L H. Oxidative reactive species in cell injury:mechanisms in diabetes mellitus and therapeutic approaches[J]. Annals of the New York Academy of Sciences, 2005, 1066:136-151.

DOI

[25]
HO E, KARIMI GALOUGAHI K, LIU C C, et al. Biological markers of oxidative stress:applications to cardiovascular research and practice[J]. Redox Biology, 2013, 1(1):483-491.

DOI

[26]
SUZUKI T. Regulation of the intestinal barrier by nutrients:the role of tight junctions[J]. Animal Science Journal, 2020, 91(1):e13357.

[27]
LIU L, CHEN D W, YU B, et al. Fructooligosaccharides improve growth performance and intestinal epithelium function in weaned pigs exposed to enterotoxigenic Escherichia coli[J]. Food & Function, 2020, 11(11):9599-9612.

[28]
SYMONDS E L, O’MAHONY C, LAPTHORNE S, et al. Bifidobacterium infantis 35624 protects against salmonella-induced reductions in digestive enzyme activity in mice by attenuation of the host inflammatory response[J]. Clinical and Translational Gastroenterology, 2012, 3(5):e15.

Outlines

/