REVIEW

Physiological Function and Mechanism of Polyamines in Lipid Metabolism

  • WANG Xiaoyan ,
  • CHEN Dong , *
Expand
  • College of Animal Science and Technology, Agricultural University of Hunan, Changsha 410128, China
*associate professor, E-mail:

Received date: 2023-02-13

  Online published: 2023-08-10

Abstract

Polyamines are widely found in plant and animal cells. They affect the metabolism of sugar, lipid and energy, and play important physiological and biochemical functions. Based on extensive reference to relevant literature at home and abroad, this paper reviews and analyzes representative studies, introduces the source, content determination, synthesis and metabolic pathways of polyamines, systematically summarizes the physiological role of polyamines in lipid metabolism, the regulation of polyamines on lipid metabolism and the possible signaling pathways, to provide reference for the scientific application of polyamines and the treatment of obesity and related metabolic diseases.

Cite this article

WANG Xiaoyan , CHEN Dong . Physiological Function and Mechanism of Polyamines in Lipid Metabolism[J]. Chinese Journal of Animal Nutrition, 2023 , 35(8) : 4891 -4898 . DOI: 10.12418/CJAN2023.454

多胺是一种脂肪胺,在生理pH下带正电荷,能够与细胞内DNA、RNA和蛋白质等带负电荷的大分子物质之间产生静电而相互作用,是细胞生长、分化和凋亡的关键调节因素[1]。多胺主要包括腐胺、亚精胺和精胺,除了古菌域的甲烷杆菌目和嗜盐菌目外,多胺存在于所有物种中[2]。腐胺、亚精胺和精胺按照化学结构划分,分别属于二元胺、三元胺和四元胺。由于多胺独特的生理功能,以及存在的广泛性和重要性,决定了其在糖、脂肪和能量稳态的调节中也发挥重要作用。多胺分解代谢的增强改变白色脂肪组织质量、能量消耗和葡萄糖代谢的稳态控制[3]。多胺参与细胞的成脂作用,精胺与亚精胺的比例和多胺代谢酶活性都可能影响脂肪形成[4]。以上研究提示多胺在脂质代谢中发挥重要作用,因此深入了解多胺对脂质代谢的影响和调控机制,并应用于畜禽脂肪沉积的调控,可有效改善肉品质,降低饲养成本,提高畜牧业效益,也对治疗肥胖及其相关代谢疾病具有借鉴意义。

1 多胺的来源、功能以及测定

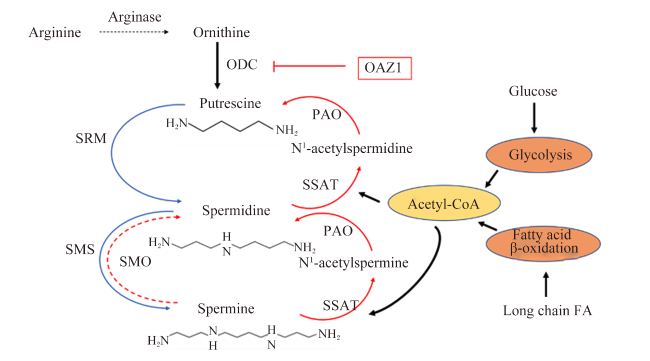
哺乳动物体内的多胺主要来自食物、细胞合成和肠道微生物合成。不同食物中的多胺总量存在差异,人类食用的主要植物源性食品中,玉米籽粒的多胺总量最高,其次是大豆、红薯、开心果、土豆、花生、小麦粉和白米[5]。不同食物中,不同类型的多胺含量也存在差异,水果和奶酪的腐胺含量较高,蔬菜和肉类的精胺和亚精胺含量较高[6]。哺乳动物补充多胺或其前体物能够提高其体内多胺含量。L-脯氨酸是鸟氨酸的前体物,鸟氨酸在体内经过合成转化为多胺。研究表明,妊娠母猪饲粮中添加1%的L-脯氨酸,可以调节动物体内多胺的合成和生物利用度,有利于促进胎儿生长和肠道上皮细胞的增殖[7]。细胞可以合成多胺,细胞以鸟氨酸为底物,在一系列多胺合成相关酶的作用下合成腐胺、亚精胺和精胺,详细过程见图1[1,8]。肠道微生物可通过代谢未消化的蛋白质,产生小分子代谢物多胺[9]
图1 多胺的生物合成、分解代谢等关键途径

Arginine:精氨酸;Arginase:精氨酸酶;Ornithine:鸟氨酸;ODC:鸟氨酸脱羧酶 ornithine decarboxylase;OAZ1:鸟氨酸脱羧酶抗酶1 ornithine decarboxylase antizyme1;Putrescine:腐胺;SRM:亚精胺合成酶 spermidine synthase;Spermidine:亚精胺;SMS:精胺合成酶 spermine synthase;SMO:精胺氧化酶 spermine oxidase;Spermine:精胺;SSAT:亚精胺/精胺-N1-乙酰基转移酶 spermidine/spermine N1-acetyltransferase;N1-acetylspermine:N1-乙酰精胺;PAO:多胺氧化酶 polyamine oxidase;N1-acetylspermidine:N1-乙酰亚精胺;Acetyl-CoA:乙酰辅酶A;Glucose:葡萄糖;Glycolysis:糖酵解;Long chain FA:长链脂肪酸;Fatty acid β-oxidation:脂肪酸β氧化。

Fig.1 Polyamine biosynthesis, catabolism and other key related pathways[1,8]

膳食多胺是调控小肠和结肠黏膜生长发育的必需生长因子[10],在哺乳动物的健康和肠道组织的发育、修复中发挥重要作用。精胺含有2个氨基和2个亚氨基,是体内多胺合成的末端胺。长期供应富含多胺的食物会逐渐提高人类血液中精胺含量[11]。研究表明,人类膳食多胺的摄入量与患结直肠癌存在一定关系,总多胺、腐胺和亚精胺的摄入量越高,精胺的摄入量越低,则患结直肠癌的风险越低[12]。在哺乳仔猪的基础配方乳中添加0.4 mmol/kg的精胺可通过增强其抗氧化能力、改善回肠屏障功能、调节代谢特征和维持大肠微生物平衡来保障回肠健康[13]。此外,饮水中添加精胺还可以促进哺乳仔猪肠道发育,保护其肠道屏障的完整性[14-15]
多胺负责细胞生长、分化、凋亡、蛋白质合成、离子通道、基因调控和其他生物学功能[16-17],检测和监测细胞内多胺含量具有重要的意义。细胞内多胺含量的改变被认为是癌症早期的生物标志物[18]。目前,已有多种多胺检测方法,如高效液相色谱法(HPLC)、酶联免疫吸附分析法(ELISA)、质谱法(MS)与气相色谱(GC)或液相色谱(LC)联用、荧光法等[19-21],HPLC常用于畜禽肉及其制品中多胺含量的检测。随着检测方法的不断改进,研究人员开发出了一种电喷雾-四极杆-飞行时间质谱联用(ESI-Q-TOF-MS)技术[22],该方法通过利用稳定同位素内标来确定细胞多胺池的组成和多胺代谢相关酶的活性[23-24],全面分析多胺代谢途径中涉及的代谢物和酶,以获得多胺代谢的概貌和多胺的动力学信息。

2 多胺的代谢与调节

哺乳动物细胞中合成的多胺主要包括腐胺、亚精胺和精胺[25]。鸟氨酸脱羧酶(ornithine decarboxylase,ODC)和S-腺苷甲硫氨酸脱羧酶(S-adenosylmethionine decarboxylase,AdoMetDC)是多胺合成代谢的关键酶。ODC是合成腐胺的关键酶,AdoMetDC是合成亚精胺和精胺的关键酶。腐胺是以鸟氨酸为底物,在ODC的作用下脱羧生成。ODC作为同源二聚体发挥作用,2种单体都为催化中心提供残基,其调节部分属于负反馈机制,且很大程度上是翻译后和间接的调节,这种负反馈机制能够维持细胞中多胺的动态平衡[26]。研究发现,ODC活性缺陷的细胞系在不加入腐胺培养的条件下,其ODC合成率显著增加,但与ODC mRNA水平的变化并不相关,这可能与ODC的合成受到反馈机制调节有关[27]。鸟氨酸脱羧酶抗酶1(ornithine decarboxylase antizyme 1,OAZ1)抑制ODC的活性,OAZ1与ODC亚基之一结合形成异源二聚体,然后呈递至26S蛋白酶体进行非泛素依赖性蛋白降解[28]。OAZ1还调节多胺的摄入,多胺通过提高阅读OAZ1 mRNA终止密码子所需的+1移码效率,从而允许合成全长OAZ1蛋白质,全长OAZ1蛋白质与多胺形成(OAZ1)2-多胺复合体,抑制多胺摄入[29]。鸟氨酸脱羧酶1(ornithine decarboxylase 1,ODC1)基因编码ODC,杂合基因敲除小鼠ODC1缺失,小鼠的体重和脂肪含量将显著降低[30-31]
腐胺在亚精胺合成酶(spermidine synthase,SRM)的作用下转化为亚精胺,后者在精胺合成酶(spermine synthase,SMS)作用下转化为精胺。SRM和SMS均属于氨丙基转移酶,高级多胺合成所需的氨丙基是由S-腺苷蛋氨酸在AdoMetDC作用下产生的脱羧S-腺苷蛋氨酸提供[32],AdoMetDC影响氨丙基供体的供应,进而影响腐胺向高级多胺的转化[30]。腐胺可刺激AdoMetDC酶原向其2个亚基的转化,在AdoMetDC表达的调节中具有生理作用[27]。植物AdoMetDC上游开放阅读框介导的翻译控制缺失导致多胺中断和生长干扰[33]
亚精胺/精胺-N1-乙酰基转移酶(spermidine/spermine N1-acetyltransferase,SSAT)是多胺分解代谢的关键酶。亚精胺和精胺被SSAT乙酰化,乙酰化的多胺直接从尿液排出或被多胺氧化酶(PAO)氧化生成腐胺或亚精胺[1,34-35],然后再次返回多胺代谢流。精胺还可以被精胺氧化酶(SMO)直接氧化生成亚精胺[30]。亚精胺和精胺在SSAT的催化下发生乙酰化反应,乙酰辅酶A(CoA)作为乙酰基供体[1]。多胺生物合成和总通量的增加,需要增加乙酰化多胺,导致乙酰CoA的消耗增多,从而影响机体的葡萄糖利用、脂肪氧化和能量平衡。

3 多胺在脂质代谢中的生理功能

3.1 影响脂肪细胞分化

多胺在细胞分化过程中发挥重要的生理作用。精胺抑制小鼠脂肪细胞分化[36],亚精胺促进3T3-L1成纤维细胞分化为脂肪细胞[37]。Lee等[38]研究发现,多胺可以调节人骨髓间充质干细胞的成骨和成脂分化,其通过调节成骨和成脂相关基因的mRNA表达,进而促进成骨分化,抑制成脂分化。

3.2 影响脂质代谢

多胺对脂质代谢的调控涉及多个途径,与机体全身代谢系统的改变密切相关。高脂饮食诱导的肥胖小鼠口服亚精胺,基于高脂和亚精胺诱导的细胞紊乱的相互作用,增强了高脂饮食引起的心肌细胞脂质堆积和间质纤维化[39]。口服亚精胺减轻高脂饮食小鼠的肥胖、胰岛素抵抗和肝脏脂肪变性,可能是由于亚精胺增加了神经细胞中酪氨酸羟化酶的表达和去甲肾上腺素的产生,然后通过下丘脑依赖或非下丘脑依赖的棕色脂肪组织的激活和骨骼肌适应来减轻肥胖和代谢紊乱[40]。注射亚精胺对正常营养状况小鼠的代谢影响很小,但促进高脂饮食小鼠内脏脂肪脂解,调节其代谢以抵抗肥胖[41]。亚精胺对脂质代谢的调节可能还具有饮食依赖性,正常、高蔗糖和高脂饮食的小鼠分别饲喂亚精胺后,正常饮食的小鼠脂肪组织和体重降低,高蔗糖和高脂饮食的小鼠均未观察到脂肪组织的改变,不同营养方案下产生的不同结果,可能与饮食中过量的碳水化合物和脂肪额外刺激了肝脏的脂质平衡,口服亚精胺剂量较小,可能不能达到影响脂质代谢特定所需的多胺含量[42]。综上表明,亚精胺可以影响高脂诱导肥胖小鼠的脂质代谢,促进心肌细胞的脂质堆积,减轻肝脏组织的脂肪变性和抵制小鼠肥胖,具有组织特异性。同时,亚精胺对脂质代谢的调节可能还具有饮食依赖性和剂量需求性。
精胺通过增加脂肪分解和游离脂肪酸的释放来促进脂质分解[43]。高脂小鼠腹膜腔注射精胺,观察到小鼠肝脏和肌肉脂肪酸氧化关键基因、白色脂肪组织有关脂解基因上调,显著降低附睾脂肪质量和体重,提高葡萄糖利用率和改变代谢表型,这可能与加速多胺分解代谢循环有关[43]。前人研究发现,多胺可能在大鼠脂肪组织甘油三酯的形成中也发挥重要作用,且精胺激活甘油三酯合成的作用强于亚精胺,腐胺则不诱导甘油三酯合成[44]。精氨酸是多胺合成的前体物,精氨酸在精氨酸酶的催化下转化成鸟氨酸,以鸟氨酸作为底物进行后续的多胺合成[45]。在大西洋鲑鱼幼鱼饲料中添加不同比例的精氨酸,可增加鱼体内蛋白质和脂肪的积累,但不影响肝体或内脏的肉体指数;激活鲑鱼肝脏中的多胺代谢和β-氧化,可能改善鱼类的代谢状况[46]。综上表明,精胺对脂质代谢的调节具有双重作用,既可以促进脂质分解,又可以激活脂肪组织甘油三脂的合成。多胺前体物能影响多胺代谢,进而影响脂质代谢。
糖代谢和脂质代谢密切相关,糖和脂肪在一定条件下可以相互转化,多胺可通过改变糖代谢,间接影响脂质代谢。在糖尿病大鼠腹腔注射10 μmol/L的亚精胺,有利于24 h后血糖、高脂血、脂质过氧化和糖化血红蛋白的正常化,对脂质过氧化和糖化血红蛋白具有抑制作用[47]。以10 mg/kg精胺灌服高脂饮食诱导的肥胖小鼠发现,小鼠的葡萄糖利用率提高,空腹血糖和体重分别降低18%和24%,这可能与上调组织中脂肪酸氧化基因和脂解白色脂肪组织密切相关[43]。本文对体内研究中有关多胺对代谢途径影响的证据进行了总结,详见表1
表1 多胺对代谢途径的影响

Table 1 Effects of polyamine on metabolic pathways

模型
Models
干预措施(药物/剂量)
Interventions(drug/dose)
结果
Result
参考文献
References
C57BL/6N雄性小鼠
C57BL/6N male mice
饮水,3 mmol/L亚精胺 增强了心肌细胞的脂肪堆积和间质
纤维化,但这一作用被自愿活动所抵消
[39]
C57BL/6雄性小鼠
C57BL/6 male mice
饮水,4 mmol/L亚精胺 降低高脂饮食小鼠的增重,减轻胰岛素抵抗、
肝脏脂肪变性和白色脂肪组织的炎症
[40]
C57BL/6小鼠
C57BL/6 mice
注射50 mg/(kg·d)亚精胺 通过增加内脏脂肪的脂解作用
来对抗高脂饮食导致的肥胖
[41]
C57BL/6N雄性小鼠
C57BL/6N male mice
饮水,3 mmol/L亚精胺 在生理营养条件下显著降低体脂和体重,在高蔗糖
摄入量条件下对体重和血糖有积极作用
[42]
C57B6J雄性小鼠
C57B6J male mice
灌服,5和10 mg/kg精胺 提高葡萄糖利用率,
降低血糖和体重
[43]
大鼠
Rats
精胺或亚精胺 精胺刺激三酰甘油的生成作用强于亚精胺,
腐胺不能刺激三酰甘油的生成
[44]
SD雄性大鼠
SD male rats
4 mmol/L亚精胺 亚精胺在体内对糖化血红蛋白和脂质
过氧化具有抑制作用
[47]

4 多胺调控脂质代谢的机制

4.1 多胺代谢酶调节脂肪形成

机体内多胺水平受到参与代谢的酶和机体的反馈机制调节。多胺代谢在调节能量消耗和肥胖方面发挥着重要作用。SSAT是多胺分解代谢的限速酶,其控制亚精胺和精胺的分解代谢,通过调节多胺的输出和分解代谢参与多胺的动态平衡。Yuan等[48]将SAT1-FLOX/FLOX小鼠与脂联素-Cre小鼠杂交产生了脂肪特异SSAT基因敲除小鼠,并对该基因敲除小鼠的腹股沟脂肪组织进行原代细胞的分离,在体内外研究中均发现SSAT激活在米色脂肪细胞生物发生和低度炎症中起关键作用。在SSAT过表达小鼠的白色脂肪组织中,激活的多胺代谢影响能量代谢,增加线粒体数量,降低白色脂肪组织的重量,并保护小鼠免受高脂饮食诱导的肥胖[49]。在SSAT基因过表达或敲除的小鼠模型中发现,SSAT通过组织乙酰CoA和丙二酰CoA来改变体内脂肪的积累,进而影响脂肪酸的生物合成和氧化[50]。SSAT还能够通过调节乙酰CoA来调节小鼠白色脂肪组织的葡萄糖动态平衡,进而改变体内脂肪的积累[51]。综上所述,SSAT作为多胺代谢和脂肪生成之间重要且新的代谢联系,可能作为多胺调控脂质代谢的分子靶点。
多胺合成过程中的关键酶(ODC、SRM和SMS)影响果蝇甘油三酯的储存。ODC杂合子果蝇甘油三酯的储存增加,与脂肪合成相关基因的表达增加以及脂肪细胞数量增加有关[52]。在SRM和SMS果蝇突变体中,突变基因表达量减少,并改变甘油三酯的储存[53]。在果蝇脂肪体(果蝇的主要脂肪储存器官)中使用RNA干扰SRM和SMS,结果表明,脂肪体均有较小的脂肪体细胞的产生和甘油三酯在腹部非脂肪体组织中积累[53]。综上所述,多胺途径在调节脂质代谢中发挥作用。

4.2 多胺影响脂质代谢通路

4.2.1 腺苷酸活化蛋白激酶(AMPK)

长链脂肪酸在线粒体基质中发生β氧化生成乙酰CoA,乙酰CoA进入Krebs循环降解或者转化成丙二酰CoA用于脂肪酸合成[45]。多胺分解代谢循环的增加,乙酰CoA外流,导致脂肪分解增加和游离脂肪酸的释放[43],从而大大减少细胞的能量储备,较低的能量状态将激活能量消耗调节因子AMPK[54]。过氧化物酶体增殖物激活受体-γ共激活因子-1α(PGC-1α)是线粒体生物发生和能量消耗调节因子,在SSAT过表达的小鼠模型中发现,多胺分解代谢的持续激活,刺激AMPK激活,进而导致白色脂肪组织中的PGC-1α激活,从而使白色脂肪组织质量减轻,线粒体数量增加,基础代谢率提高,保护小鼠免受高脂饮食诱导的肥胖[49]

4.2.2 哺乳动物雷帕霉素靶蛋白(mTOR)

mTOR通路参与脂肪生成[55],在上游氨基酸通路、AMPK通路、环磷酸腺苷(cAMP)通路等多种信号通路介导下影响脂肪生成[8],哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)可能直接或间接调节多胺途径的各个方面,因此,mTORC1可能通过调节多胺代谢对脂肪生成产生影响[56]。但mTOR通路通过调节多胺代谢而影响脂肪生成的研究结果尚未报道,最近发现在骨骼肌中SMS部分以mTORC1依赖方式调节,多胺可能在骨骼肌对应激源的适应反应中发挥作用[57]

4.2.3 转录因子CCAAT区/增强子结合蛋白(C/EBP)

多胺代谢似乎与C/EBP具有密切的关系。3T3-L1前脂肪细胞分化过程中多胺缺乏会抑制有丝分裂和脂肪形成主要调节因子过氧化物酶体增殖物激活受体γ(PPARγ)和C/EBPα的表达,其结果与多胺耗竭导致C/EBPβ失活有关[58]。外源性精胺具有抑制小鼠脂肪细胞分化的作用,可能是精胺抑制了脂肪细胞分化重要转录因子C/EBPα mRNA的表达,延迟了细胞分化[36]。亚精胺在3T3-L1细胞分化中直接或间接地阻止酸性核酸蛋白32A(acidic nuclear phosphoprotein 32,ANP32)与RNA结合蛋白人类抗原R(human antigen,HuR)和蛋白磷酸酶2A(protein phosphatase 2A,PP2A)的联系,进而促进C/EBPβ翻译,从而促进3T3-L1细胞的脂肪生成[59]。Ⅰ型糖尿病大鼠外源给予精胺,可以通过抑制内质网应激相关蛋白(例如C/EBP),改善多胺代谢紊乱带来的负面影响,发挥心肌保护作用[60]

5 小结与展望

体内和体外研究结果一致表明,在生理(非肥胖)条件下和饮食诱导的肥胖模型中,多胺的分解代谢增强对代谢途径具有有益影响。这些有益的影响通过多种机制发挥作用,包括调节基因表达、改善葡萄糖和脂质代谢、增强能量代谢。同时,进一步的研究应该更深入地探索多胺代谢与畜禽体内脂肪沉积的关系。SSAT作为多胺代谢和脂肪生成之间重要且新的代谢联系,是否通过改变该基因的表达来调节肌内脂肪的沉积。添加精胺或亚精胺是否影响动物机体内的多胺代谢,并对机体内脂质代谢和能量代谢产生影响。多胺代谢与脂质代谢密切相关,通过研究的深入和完善,有望实现利用多胺代谢调节畜禽脂肪沉积。
[1]
WALLACE H M, FRASER A V, HUGHES A. A perspective of polyamine metabolism[J]. Biochemical Journal, 2003, 376(1):1-14.

DOI

[2]
HAMANA K, MATSUZAKI S. Polyamines as a chemotaxonomic marker in bacterial systematics[J]. Critical Reviews in Microbiology, 1992, 18(4):261-283.

PMID

[3]
PIRINEN E, KUULASMAA T, PIETILÄ M, et al. Enhanced polyamine catabolism alters homeostatic control of white adipose tissue mass,energy expenditure,and glucose metabolism[J]. Molecular and Cellular Biology, 2007, 27(13):4953-4967.

DOI

[4]
ISHII I, IKEGUCHI Y, MANO H, et al. Polyamine metabolism is involved in adipogenesis of 3T3-L1 cells[J]. Amino Acids, 2012, 42(2/3):619-626.

DOI

[5]
HOU Y Q, HE W L, HU S D, et al. Composition of polyamines and amino acids in plant-source foods for human consumption[J]. Amino Acids, 2019, 51(8):1153-1165.

DOI PMID

[6]
ATIYA ALI M, POORTVLIET E, STRÖMBERG R, et al. Polyamines in foods:development of a food database[J]. Food & Nutrition Research, 2011, 55:5572.

[7]
WANG J, TAN B E, LI J J, et al. Regulatory role of L-proline in fetal pig growth and intestinal epithelial cell proliferation[J]. Animal Nutrition, 2020, 6(4):438-446.

DOI

[8]
CHOKSOMNGAM Y, PATTANAKUHAR S, CHATTIPAKORN N, et al. The metabolic role of spermidine in obesity:evidence from cells to community[J]. Obesity Research & Clinical Practice, 2021, 15(4):315-326.

[9]
BEKEBREDE A F, KEIJER J, GERRITS W J J, et al. The molecular and physiological effects of protein-derived polyamines in the intestine[J]. Nutrients, 2020, 12(1):197.

DOI

[10]
LÖSER C, EISEL A, HARMS D, et al. Dietary polyamines are essential luminal growth factors for small intestinal and colonic mucosal growth and development[J]. Gut, 1999, 44(1):12-16.

PMID

[11]
SODA K, KANO Y, SAKURAGI M, et al. Long-term oral polyamine intake increases blood polyamine concentrations[J]. Journal of Nutritional Science and Vitaminology, 2009, 55(4):361-366.

PMID

[12]
HUANG C Y, FANG Y J, ABULIMITI A, et al. Dietary polyamines intake and risk of colorectal cancer:a case-control study[J]. Nutrients, 2020, 12(11):3575.

DOI

[13]
LIU G M, MO W W, CAO W, et al. Effects of spermine on ileal physical barrier,antioxidant capacity,metabolic profile and large intestinal bacteria in piglets[J]. RSC Advances, 2020, 10(45):26709-26716.

DOI

[14]
LIU G M, XU X M, WU C M, et al. Spermine protects intestinal barrier integrity through ras-related C3 botulinum toxin substrate 1/phospholipase C-γ1 signaling pathway in piglets[J]. Animal Nutrition, 2022, 8:135-143.

DOI PMID

[15]
FANG T T, LIU G M, CAO W, et al. Spermine:new insights into the intestinal development and serum antioxidant status of suckling piglets[J]. RSC Advances, 2016, 6(37):31323-31335.

DOI

[16]
CASERO R A,Jr, MARTON L J. Targeting polyamine metabolism and function in cancer and other hyperproliferative diseases[J]. Nature Reviews Drug Discovery, 2007, 6(5):373-390.

DOI PMID

[17]
PEGG A E. Functions of polyamines in mammals[J]. Journal of Biological Chemistry, 2016, 291(29):14904-14912.

DOI PMID

[18]
SÁNCHEZ-JIMÉNEZ F, MEDINA M Á, VILLALOBOS-RUEDA L, et al. Polyamines in mammalian pathophysiology[J]. Cellular and Molecular Life Sciences, 2019, 76(20):3987-4008.

DOI

[19]
LU B L, WANG L Y, RAN X G, et al. Recent advances in fluorescent methods for polyamine detection and the polyamine suppressing strategy in tumor treatment[J]. Biosensors, 2022, 12(8):633.

DOI

[20]
YU Z R, HUANG H L, ZHANG H L, et al. Improved profiling of polyamines using two-dimensional gas chromatography mass spectrometry[J]. Talanta, 2019, 199:184-188.

DOI PMID

[21]
BALCERZAK W, POKAJEWICZ K, WIECZOREK P P. A useful procedure for detection of polyamines in biological samples as a potential diagnostic tool in cancer diagnosis[J]. Applied Cancer Research, 2017, 37(1):23.

DOI

[22]
MORIYA S S, SAMEJIMA K, TAIRA H, et al. ESI-Q-TOF-MS determination of polyamines and related enzyme activity for elucidating cellular polyamine metabolism[J]. Analytical Biochemistry, 2020, 607:113831.

DOI

[23]
SAMEJIMA K, HIRAMATSU K, TAKAHASHI K, et al. Identification and determination of urinary acetylpolyamines in cancer patients by electrospray ionization and time-of-flight mass spectrometry[J]. Analytical Biochemistry, 2010, 401(1):22-29.

DOI PMID

[24]
MORIYA S, IWASAKI K, SAMEJIMA K, et al. A mass spectrometric method to determine activities of enzymes involved in polyamine catabolism[J]. Analytica Chimica Acta, 2012, 748:45-52.

DOI PMID

[25]
BAE D H, LANE D J R, JANSSON P J, et al. The old and new biochemistry of polyamines[J]. Biochimica et Biophysica Acta:General Subjects, 2018, 1862(9):2053-2068.

DOI

[26]
ZONG L, CHENG G R, ZHAO J W, et al. Inhibitory effect of ursolic acid on the migration and invasion of doxorubicin-resistant breast cancer[J]. Molecules, 2022, 27(4):1282.

DOI

[27]
SVENSSON F, PERSSON L. Regulation of ornithine decarboxylase and S-adenosylmethionine decarboxylase in a polyamine auxotrophic cell line[J]. Molecular and Cellular Biochemistry, 1996, 162(2):113-119.

PMID

[28]
MURAKAMI Y, MATSUFUJI S, KAMEJI T, et al. Ornithine decarboxylase is degraded by the 26S proteasome without ubiquitination[J]. Nature, 1992, 360(6404):597-599.

DOI

[29]
HYVÖNEN M T, SMIRNOVA O A, MITKEVICH V A, et al. Role of polyamine-induced dimerization of antizyme in its cellular functions[J]. International Journal of Molecular Sciences, 2022, 23(9):4614.

DOI

[30]
PEGG A E. Mammalian polyamine metabolism and function[J]. IUBMB Life, 2009, 61(9):880-894.

DOI PMID

[31]
MEEHAN T F, CONTE N, WEST D B, et al. Disease model discovery from 3 328 gene knockouts by the International Mouse Phenotyping Consortium[J]. Nature Genetics, 2017, 49(8):1231-1238.

DOI

[32]
沈永娟, 张辉, 王倩, 等. 植物中多胺的合成代谢及其分子生物学水平研究进展[J]. 保鲜与加工, 2018, 18(6):157-161.

SHEN Y J, ZHANG H, WANG Q, et al. Research progress on synthesis metabolism and molecular biology of polyamines in plants[J]. Storage and Process, 2018, 18(6):157-161. (in Chinese)

[33]
HANFREY C, FRANCESCHETTI M, MAYER M J, et al. Abrogation of upstream open reading frame-mediated translational control of a plant S-adenosylmethionine decarboxylase results in polyamine disruption and growth perturbations[J]. Journal of Biological Chemistry, 2002, 277(46):44131-44139.

DOI PMID

[34]
PEGG A E. Spermidine/spermine-N1-acetyltransferase:a key metabolic regulator[J]. American Journal of Physiology:Endocrinology and Metabolism, 2008, 294(6):E995-E1010.

DOI

[35]
CASERO R A, PEGG A E. Polyamine catabolism and disease[J]. Biochemical Journal, 2009, 421(3):323-338.

DOI PMID

[36]
NAKATANI S, HORIMOTO Y, NAKABAYASHI N, et al. Spermine suppresses adipocyte differentiation and exerts anti-obesity effects in vitro and in vivo[J]. International Journal of Molecular Sciences, 2022, 23(19):11818.

DOI

[37]
ERWIN B G, BETHELL D R, PEGG A E. Role of polyamines in differentiation of 3T3-L1 fibroblasts into adipocytes[J]. American Journal of Physiology-Cell Physiology, 1984, 246(3):C293-C300.

DOI

[38]
LEE M J, CHEN Y, HUANG Y P, et al. Exogenous polyamines promote osteogenic differentiation by reciprocally regulating osteogenic and adipogenic gene expression[J]. Journal of Cellular Biochemistry, 2013, 114(12):2718-2728.

DOI

[39]
MÜHLFELD C, PFEIFFER C, SCHNEIDER V, et al. Voluntary activity reverses spermidine-induced myocardial fibrosis and lipid accumulation in the obese male mouse[J]. Histochemistry and Cell Biology, 2021, 155(1):75-88.

DOI PMID

[40]
WANG D, YIN J L, ZHOU Z X, et al. Oral spermidine targets brown fat and skeletal muscle to mitigate diet-induced obesity and metabolic disorders[J]. Molecular Nutrition & Food Research, 2021, 65(19):2100315.

[41]
LIAO C Y, KUMMERT O M P, BAIR A M, et al. The autophagy inducer spermidine protects against metabolic dysfunction during overnutrition[J]. The Journals of Gerontology:Series A, 2021, 76(10):1714-1725.

DOI

[42]
PANKOKE S, PFARRER C, GLAGE S, et al. Oral supplementation with the polyamine spermidine affects hepatic but not pulmonary lipid metabolism in lean but not obese mice[J]. Nutrients, 2022, 14(20):4318.

DOI

[43]
SADASIVAN S K, VASAMSETTI B, SINGH J, et al. Exogenous administration of spermine improves glucose utilization and decreases bodyweight in mice[J]. European Journal of Pharmacology, 2014, 729:94-99.

DOI PMID

[44]
JAMDAR S C. Glycerolipid biosynthesis in rat adipose tissue effect of polyamines on triglyceride synthesis[J]. Archives of Biochemistry and Biophysics, 1977, 182(2):723-731.

PMID

[45]
BÜYÜKUSLU N, ÖZTÜRK R Ī. Polyamine metabolism and obesity:polyamine metabolic enzymes involved in obesity[J]. Acta Pharmaceutica Sciencia, 2018, 56(2):85-91.

[46]
ANDERSEN S M, HOLEN E, AKSNES A, et al. Dietary arginine affects energy metabolism through polyamine turnover in juvenile Atlantic salmon (Salmo salar)[J]. British Journal of Nutrition, 2013, 110(11):1968-1977.

DOI

[47]
MÉNDEZ J D, BALDERAS F L. Inhibition by L-arginine and spermidine of hemoglobin glycation and lipid peroxidation in rats with induced diabetes[J]. Biomedicine & Pharmacotherapy, 2006, 60(1):26-31.

DOI

[48]
YUAN F, ZHANG L, CAO Y, et al. Spermidine/spermine N1-acetyltransferase-mediated polyamine catabolism regulates beige adipocyte biogenesis[J]. Metabolism, 2018, 85:298-304.

DOI

[49]
KOPONEN T, CERRADA-GIMENEZ M, PIRINEN E, et al. The activation of hepatic and muscle polyamine catabolism improves glucose homeostasis[J]. Amino Acids, 2012, 42(2/3):427-440.

DOI

[50]
JELL J, MERALI S, HENSEN M L, et al. Genetically altered expression of spermidine/spermine N1-acetyltransferase affects fat metabolism in mice via acetyl-CoA[J]. Journal of Biological Chemistry, 2007, 282(11):8404-8413.

DOI PMID

[51]
LIU C L, PEREZ-LEAL O, BARRERO C, et al. Modulation of polyamine metabolic flux in adipose tissue alters the accumulation of body fat by affecting glucose homeostasis[J]. Amino Acids, 2014, 46(3):701-715.

DOI PMID

[52]
LEON K E, FRUIN A M, NOWOTARSKI S L, et al. The regulation of triglyceride storage by ornithine decarboxylase (Odc1) in Drosophila[J]. Biochemical and Biophysical Research Communications, 2020, 523(2):429-433.

DOI

[53]
MORALES T S, AVIS E C, PASKOWSKI E K, et al. The role of spermidine synthase (SpdS) and spermine synthase (Sms) in regulating triglyceride storage in Drosophila[J]. Medical Sciences, 2021, 9(2):27.

DOI

[54]
CERRADA-GIMENEZ M, TUSA M, CASELLAS A, et al. Altered glucose-stimulated insulin secretion in a mouse line with activated polyamine catabolism[J]. Transgenic Research, 2012, 21(4):843-853.

DOI

[55]
HAN J B, WANG Y G. mTORC1 signaling in hepatic lipid metabolism[J]. Protein & Cell, 2018, 9(2):145-151.

[56]
MOSSMANN D, PARK S, HALL M N. mTOR signalling and cellular metabolism are mutual determinants in cancer[J]. Nature Reviews Cancer, 2018, 18(12):744-757.

DOI PMID

[57]
TABBAA M, RUZ GOMEZ T, CAMPELJ D G, et al. The regulation of polyamine pathway proteins in models of skeletal muscle hypertrophy and atrophy:a potential role for mTORC1[J]. American Journal of Physiology:Cell Physiology, 2021, 320(6):C987-C999.

DOI

[58]
BRENNER S, BERCOVICH Z, FEILER Y, et al. Dual regulatory role of polyamines in adipogenesis[J]. Journal of Biological Chemistry, 2015, 290(45):27384-27392.

DOI PMID

[59]
HYVÖNEN M T, KOPONEN T, WEISELL J, et al. Spermidine promotes adipogenesis of 3T3-L1 cells by preventing interaction of ANP32 with HuR and PP2A[J]. Biochemical Journal, 2013, 453(3):467-474.

DOI PMID

[60]
HU J, LU X X, ZHANG X Y, et al. Exogenous spermine attenuates myocardial fibrosis in diabetic cardiomyopathy by inhibiting endoplasmic reticulum stress and the canonical Wnt signaling pathway[J]. Cell Biology International, 2020, 44(8):1660-1670.

DOI PMID

Outlines

/