REVIEW

Research Progress on Molecular Mechanism of Muscle-Adipose Tissue Interaction Regulating Intramuscular Fat Deposition

  • SHI Hanjing , 1, 2 ,
  • GUO Liu 1 ,
  • GUO Qiuping 1 ,
  • LI Fengna , 1, *
Expand
  • 1 Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, Key Laboratory of Agro-Ecological Processes in Subtropical Region, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 Hunan Provincial Key Laboratory of Animal Intestinal Function and Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China
*professor, E-mail:

Received date: 2023-02-28

  Online published: 2023-08-10

Abstract

Muscle and adipose are important components of porcine organism, which are connected with each other. They are endocrine organs that secrete cytokines, exosomes and so on. The interaction between muscle and adipose can play a role in regulating intramuscular fat deposition, insulin secretion and muscle regeneration. In this paper, the latest research progress of the interaction between muscle and adipose tissue is reviewed in terms of adipokines, myokines, miRNA, exosomes and metabolites, in order to provide reference for the exploration of the regulation mechanism of intramuscular fat deposition in pigs and the in-depth study of the nutritional regulation of meat quality.

Key words: muscle; adipose; cytokines; miRNA; exosome

Cite this article

SHI Hanjing , GUO Liu , GUO Qiuping , LI Fengna . Research Progress on Molecular Mechanism of Muscle-Adipose Tissue Interaction Regulating Intramuscular Fat Deposition[J]. Chinese Journal of Animal Nutrition, 2023 , 35(8) : 4910 -4919 . DOI: 10.12418/CJAN2023.456

我国是全球最大的猪肉生产国和消费国,生产优质猪肉产品已成为养猪业高质量发展的重要目标。猪肉中肌肉和脂肪组织的含量与分布是影响肉品质的重要因素,而肌内脂肪的积累可使肌肉出现“大理石花纹”,并影响猪肉感官品质指标,如嫩度、风味以及多汁性等,肌内脂肪的适度沉积对于改善肉品质十分关键。近年来,肌肉-脂肪组织的互作及其调节机制广受关注,肌肉组织分泌的肌细胞因子和脂肪组织分泌的脂肪细胞因子能通过自分泌、内分泌和旁分泌的方式调节并重塑肌肉和脂肪组织代谢[1];外泌体最初被认为是细胞中的废物[2],后来研究发现,外泌体可以执行多种生物学功能,如介导肌肉组织中细胞之间的通信、促进脂肪转移等[3];miRNA、代谢产物也能参与肌肉-脂肪组织的互作机制,并且可以调节肌内脂肪的沉积[4-5]。基于此,本文从细胞因子、外泌体、miRNA和代谢产物等方面综述肌肉-脂肪组织互作调节肌内脂肪沉积的分子机制研究进展。

1 肌内脂肪是优良肉品质形成的关键

脂肪是猪肉的重要组成部分之一,与猪肉品质密切相关,沉积在不同部位的脂肪组织可影响猪的产肉性能和肉的感官品质与营养价值。
根据类型的不同,可将脂肪分为白色脂肪组织、棕色脂肪组织和米色脂肪组织。白色脂肪组织是人体或哺乳动物分布最广的脂肪组织,它的细胞由大的单室脂滴组成,可将多余的能量储存为甘油三酯[6]。棕色脂肪组织细胞由小的多室脂滴组成,可通过解偶联蛋白1产生热量来维持体温[7]。但肥胖会影响棕色脂肪组织的功能,降低其活性。研究证明,在猪的脂肪细胞中检测不到解偶联蛋白1,在进化过程中棕色脂肪组织发生丢失[8]。米色脂肪组织是一类特殊的脂肪组织,它具有白色脂肪组织和棕色脂肪组织的混合特征,其主要作用是储存能量;长期在寒冷环境中或长期使用肾上腺素会使得米色脂肪组织的细胞形态发生改变[9]。白色脂肪细胞、棕色脂肪细胞和米色脂肪细胞都来源于不同的间充质干细胞(mesenchymal stem cells,MSCs)谱系,由生肌因子5+(Myf5+)前体细胞和生肌因子5-(Myf5-)前体细胞经过诱导最终形成白色脂肪细胞、棕色脂肪细胞和米色脂肪细胞[10]。根据部位的不同,可将脂肪分为皮下脂肪、内脏脂肪和肌内脂肪。研究发现,皮下脂肪是猪的主要脂肪组织部位,可占全身脂肪的70%以上,主要分布在皮肤下层,有保护、隔热、储存能量等功能。内脏脂肪是指分布在内脏周围的脂肪,包括肠系膜和网膜周围的腹部脏器脂肪,具有支撑、稳定、保护等功能。肌内脂肪包括肌纤维内的脂滴以及沉积在肌纤维之间和肌束之间肌细胞膜、肌内膜和肌束膜上的脂肪,它是用于评估肉品质的标准之一,与肉的嫩度、风味、多汁性密切相关[11]。研究表明,在去脂肉中添加一定数量的皮下脂肪或肌内脂肪,发现添加肌内脂肪的去脂肉挥发性风味成分脂肪醛等物质的含量显著增加,且相比于添加皮下脂肪,添加肌内脂肪去脂肉的风味明显改善[12]。因此,肌内脂肪及其含量对肉品质尤其是风味起着关键作用。

2 肌肉-脂肪组织互作在肌内脂肪沉积过程中的作用机制

肌细胞和脂肪细胞相互依存,二者的平衡与互作是影响肌内脂肪沉积的关键因素。骨骼肌来源干细胞的成脂潜能,为增加肌内脂肪含量进而改善动物肉品质提供了理论依据。在胎儿和新生仔猪阶段,肌肉组织中含有大量的MSCs,随着生长发育的进行,MSCs逐渐发育为肌源性干细胞和少数脂肪细胞,这是肌内脂肪沉积的基础。与此同时,MSCs会经过系谱定向形成成肌细胞和成脂细胞,再进一步分化为肌细胞和脂肪细胞;而成肌细胞大多包括激活态的卫星细胞,成脂细胞大多包括成纤维/成脂祖细胞(FAPs),成肌细胞和成脂细胞的上游细胞包括侧群细胞、肌肉来源的干细胞和MSCs[13]。成肌分化主要与成肌调控因子家族有关,包括生肌决定因子(MyoD)、生肌因子5(Myf5)、肌细胞生成素(MyoG)和生肌调节因子4(MRF4);成脂分化主要与前脂肪细胞因子-1(preadipocyte factor-1,Pref-1)、CCAAT增强子结合蛋白家族(CCAAT enhancer-binding proteins,CCAAT/EBPs)和过氧化物酶体增殖物激活受体(peroxisome proliferator-activated receptors,PPARs)等有关[14](图1)。与其他组织数量接近稳定的脂肪细胞相比,肌内脂肪细胞数量可通过营养调控在沉积的窗口期前改变,脂肪细胞中的脂滴充盈、膨胀,从而促进肌内脂肪的沉积[15-16]。肌内脂肪细胞与肌细胞在肌肉组织内的距离极近,它们通过细胞间通讯相互作用,调节细胞的增殖、分化和脂质沉积。脂肪组织除了储存能量和释放游离脂肪酸外,还可以分泌多种具有生物活性的细胞因子,介导多种生物学过程。
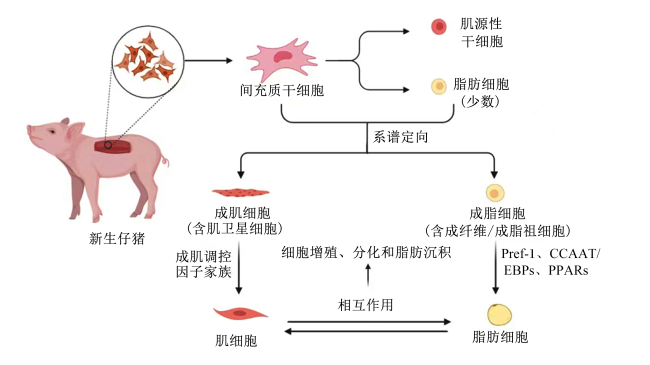
图1 肌内脂肪细胞来源示意图

Pref-1:前脂肪细胞因子-1 preadipocyte factor-1;CCAAT/EBPs:CCAAT增强子结合蛋白家族 CCAAT enhancer-binding proteins;PPARs:过氧化物酶体增殖物激活受体 peroxisome proliferator-activated receptors。

Fig.1 Schematic diagram of intramuscular adipocyte source

2.1 脂肪细胞因子和肌细胞因子分泌对脂肪沉积的调节

脂类是生物体重要的组成成分,脂肪组织不只是传统意义上的能量储存器官,也是内分泌器官,可通过合成和分泌多种脂肪源性细胞因子影响机体的代谢与健康。同时,脂肪组织通过自分泌、内分泌和旁分泌方式与其他组织发挥互作功能,响应来自脂肪组织本身和肌肉组织所分泌细胞因子的调节作用,通过激活关键信号通路来调控组织之间的能量平衡与脂肪、蛋白质的沉积以及外周组织的能量稳态[17],最终影响脂肪沉积。细胞因子的分泌功能取决于细胞来源和作用靶点,同时也取决于细胞外的营养、能量和应激等环境因素。

2.1.1 脂肪细胞因子

自Halaas等[18]发现了脂肪组织特异性分泌的蛋白——瘦素(leptin)以来,继续发现了更多的脂肪组织来源的物质,并将其命名为脂肪细胞因子,如瘦素、脂联素(adiponectin)、趋化素(chemerin)、内脂素(visfatin)、Ⅲ型纤连蛋白结构域包含蛋白(fibronectin type Ⅲ domain-containing protein,FNDC)4、白细胞介素-6(interleukin-6,IL-6)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等,是一类多效性的细胞因子,成为一群活跃的、精细调节机体代谢的重要内分泌因子,更好地维持机体的能量稳态[17]
瘦素作为脂肪组织分泌的重要细胞因子,对动物的摄食、神经内分泌功能、能量代谢等发挥着关键作用[19]。血清瘦素含量与机体脂肪含量直接相关;脂联素主要与脂联素受体[脂联素受体1(AdipoR1)、脂联素受体2(AdipoR2)]结合而调节能量代谢,并抑制脂质沉积,调节胰岛素抵抗和抗炎。脂联素和瘦素的比例还可作为评估脂肪组织功能的重要指数[20]。脂肪型卡塞塔纳猪脂肪组织中瘦素、脂联素受体以及一些关键的能量代谢分子的表达水平显著低于瘦肉型大白猪[21],这可能与卡塞塔纳猪更丰富的脂肪沉积有关。Cai等[22]ob/ob小鼠皮下脂肪组织测序,发现了一种新的长链非编码RNA(lncRNA),命名为lnc-ORA(与肥胖相关的lncRNA),其在ob/ob小鼠中的表达比野生型小鼠高7倍,且lnc-ORA通过调节磷脂酰肌醇3-激酶(phosphatidylinositol 3-kinase,PI3K)/蛋白激酶B(protein kinase B,AKT)/哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路抑制脂肪细胞分化;同样作为脂肪细胞因子的C1q/肿瘤坏死因子相关蛋白6(C1q and tumor necrosis factor related protein 6,CTRP6),不仅在脂肪细胞分化中起重要作用,而且以不同的调控机制抑制猪皮下和肌内前体脂肪细胞的增殖,CTRP6通过AdipoR1/丝裂原活化蛋白激酶(mitogen activated protein kinase,MAPK)信号通路调控猪脂肪细胞的增殖和分化[23]。FNDC4是新发现的一种脂肪细胞因子,其与鸢尾素(irisin)的前体FNDC5属于同一个家族。Frühbeck等[24]研究表明,FNDC4可降低脂肪组织的生成,促进脂肪组织棕色化。趋化素和TNF-α主要参与脂肪组织的炎症反应,趋化素可促进脂肪细胞的分化,改善葡萄糖耐受和胰岛素敏感性[25],而TNF-α可促进脂质发生水解代谢,从而导致大量游离脂肪酸释放,部分引起胰岛素抵抗、高脂血症和脂毒性[26]。因此,脂肪细胞因子通过多种信号途径调控脂肪沉积,可作为评估机体脂肪组织功能和脂质代谢的重要参数。

2.1.2 肌细胞因子

除了脂肪组织,肌肉组织也能作为内分泌器官分泌IL-6、白细胞介素-15(interleukin-15,IL-15)、TNF-α、鸢尾素和肌生长抑制素(myostatin)等肌细胞因子。这些肌细胞因子参与调节脂肪组织的能量代谢,并在肌肉-脂肪轴的相互调控中发挥桥梁枢纽作用。无论是体外培养的成肌细胞、动物试验还是临床试验,均提示肌细胞因子在降低脂肪沉积中发挥着重要作用。IL-6是研究最为深入的肌细胞因子之一。有研究发现,运动可导致血液IL-6含量升高,并促进脂质水解、脂质氧化和胰岛素分泌[27]。IL-15也是一种重要的肌肉细胞调节因子[28],其转录和表达的主要部位是肌肉组织。IL-15既能促进脂肪酸氧化和脂质降解,也表现出明显的抑制白色脂肪组织沉积的作用[29]。鸢尾素是2012年发现的过氧化物酶体增殖物激活受体γ辅激活因子-1α(peroxisome proliferator-activated receptor γ coactivator-1α,PGC-1α)依赖性肌细胞因子,可通过激活激素敏感脂酶(hormone-sensitive triglyceride lipase,HSL)促进脂质水解,进而抑制脂质沉积[30],并介导p38丝裂原活化蛋白激酶(p38 mitogen activated protein kinase,p38 MAPK)和细胞外信号相关激酶(extracellular signal-regulated kinases,ERK)的激活。肌生长抑制素可抑制杜洛克猪背最长肌的肌内脂肪沉积,减少肌内脂肪细胞中甘油的释放[31],还可通过miR-124-3p抑制糖皮质激素受体的表达[32],而糖皮质激素受体与猪肌内脂肪的沉积紧密相关。由此可见,肌细胞因子也可通过旁分泌调控肌内脂肪沉积,其对脂肪组织的调节作用通过多种途径来实现。
脂肪和肌肉组织相互调节,通过各自分泌的细胞因子(信号分子)激活关键信号通路相互作用,维持机体能量平衡和脂质代谢。趋化素通过激活ERK1/2和mTOR信号通路促进肌细胞的增殖,同时抑制其分化[33];脂肪细胞与肌细胞共培养的分化阶段,IL-15表达上调,并抑制脂肪细胞的分化[34];IL-15在不同生理阶段仔猪肌肉组织中的表达存在差异[35]。上述结果提示,细胞因子可作为有效介质不同程度地调节机体脂肪沉积,从而调控肌肉与脂肪组织的比例。此外,功能性的支链氨基酸可改善血液中瘦素含量[36-37],且IL-15表达上调,并调节IL-15-腺苷酸激活蛋白激酶α(adenosine 5'-monophosphate activated protein kinase α,AMPKα)-mTORC1信号通路促进脂肪组织的脂质分解代谢[38],抑制皮下脂肪沉积。此外,还有研究表明,功能性氨基酸、功能性脂肪酸和生物活性物质的添加能够调节多种细胞因子[IL-6、白细胞介素-1β(interleukin-1β,IL-1β)、TNF-α、鸢尾素、瘦素、脂联素等]分泌,进而调节机体脂质代谢[39-41]。因此,脂肪细胞因子和肌细胞因子均能响应关键营养素的调控作用,从而调节机体的脂质代谢。

2.2 miRNA对肌内脂肪沉积的调节

脂肪组织还分泌miRNA和外泌体等其他类型的细胞因子,作为载体发挥调节脂肪组织脂质代谢的作用。1993年,Lee等[42]发现了一类小型非编码RNA,并将其称为miRNA。miRNA大约由22个核苷酸组成,可与mRNA的3'非翻译编码区(3'UTR)内互补位点结合来调节基因表达[43]。miRNA不仅存在于机体的组织中、体循环中,还存在于外泌体中[44]。虽然miRNA的种类庞大,但只有少数的miRNA被确认为通讯分子,它们也在肌肉和脂肪互作方面有着不可或缺的作用。研究发现,miR-29a、miR-221-5p、miR-146a-5p和miR-130b等均能参与肌肉-脂肪组织的互作过程并发挥重要作用[45-46]
有些肌肉组织中的miRNA可对肌内脂肪沉积相关过程进行调节,能促进或抑制动物的脂肪形成(图2)。在胎牛背阔肌中,miR-100可通过调节胰岛素样生长因子受体1(insulin-like growth factor-1 receptor,IGF1R)减少胎牛肌肉卫星细胞生成,并增强肌内脂肪沉积[47]。皖南花猪背最长肌中的miR-196a/b刺激脂肪细胞因子信号通路,可增强肌内脂肪沉积[48]。仔猪背最长肌中的miR-146a-5p可以靶向SMAD家族成员4(SMAD family member 4,SMAD4),通过转化生长因子-β(transforming growth factor-β,TGF-β)信号通路抑制猪肌内前脂肪细胞增殖;还可以靶向肿瘤坏死因子受体相关因子6(tumor necrosis factor receptor associated factor 6,TRAF6)通过AKT/mTORC1信号通路抑制成脂分化,减少脂肪生成[49]。仔猪骨骼肌中的miR-425-5p可能通过靶向蛋白质编码基因Kruppel样因子13(Kruppel-like factor 13,KLF13)并随后下调PPARγ,抑制肌肉内的前脂肪细胞生成,从而减少脂肪产生[50]。巴克夏猪×安庆六白杂交猪的背最长肌中,miR-381-3p通过抑制PPARs信号通路中脂肪酸结合蛋白3(fatty acid binding protein 3,FABP3)的表达,抑制前脂肪细胞分化和脂滴沉积,从而抑制肌内脂肪沉积[51]。Wang等[52]通过荧光素酶检测等方法发现,双基因敲除小鼠(dKO小鼠)肌肉中2种关键酶脂肪甘油三酯脂酶(adipose triglyceride lipase,ATGL)和HSL的mRNA以及蛋白质水平显著升高,进一步证明miR-183和miR-96通过调节三酰甘油分解和脂肪酸氧化控制骨骼肌中的脂肪利用,使得ATGL作用的肌内脂肪分解,从而控制骨骼肌线粒体氧化的脂肪酸供应。由于miR-183和miR-96的缺乏导致骨骼肌脂肪利用率增加,可能引起高脂饮食诱导小鼠的肥胖的发生。
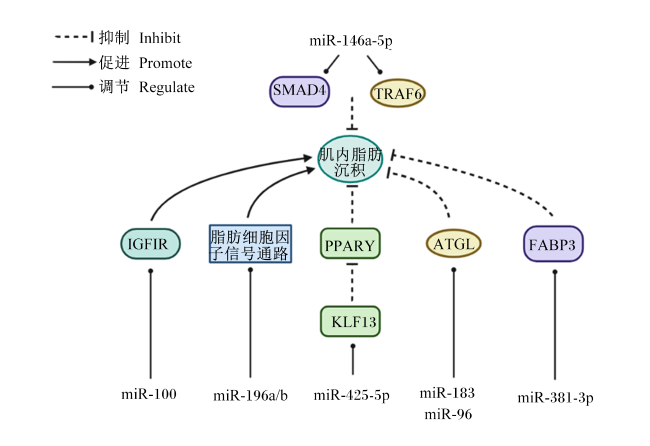
图2 miRNA调节肌内脂肪沉积示意图

SMAD4:SMAD家族成员4 SMAD family member 4;TRAF6:肿瘤坏死因子受体相关因子6 tumor necrosis factor receptor associated factor 6;IGF1R:胰岛素样生长因子受体1 insulin-like growth factor 1 receptor;PPARγ:过氧化物酶体增殖物激活受体γ peroxisome proliferators-activated receptor γ;KLF13:Kruppel样因子13 Kruppel-like factor 13;ATGL:脂肪甘油三酯脂肪酶 adipose triglyceride lipase;FABP3:脂肪酸结合蛋白3 fatty acid binding protein 3。

Fig.2 Schematic diagram of miRNA regulating intramuscular fat deposition

2.3 参与肌肉-脂肪组织互作的外泌体

外泌体是由多泡体衍生的细胞外囊泡,在电子显微镜下呈杯形,直径为50~150 nm[53]。和细胞因子一样,外泌体也被认为是细胞间通讯的新型和有效的载体,它由多种类型的细胞分泌,如神经细胞、免疫细胞、癌细胞和脂肪细胞等[54]。外泌体是由多泡体腔内形成的囊泡,多泡体与细胞膜融合后,被释放到细胞外环境中发挥作用[55]。研究发现,外泌体中特定物质成分具有功能性、靶向性等特点,表明它们在调节细胞间通信中能够发挥作用[56]。除此之外,外泌体可以将细胞质中的miRNA、lncRNA、mRNA、细胞因子、酶、脂质等物质封装到囊泡中再输送到靶细胞中[57],有效改变靶细胞的生理反应。
脂肪细胞分泌的外泌体可被骨骼肌吸收。研究发现,高脂饮食诱导的肥胖小鼠脂肪细胞分泌外泌体miR-27a之后,检测到小鼠骨骼肌中的miR-27a含量会相应升高[58]。脂肪细胞的外泌体可调节骨骼肌胰岛素信号转导、葡萄糖代谢。脂肪来源的外泌体miR-27a和脂肪组织巨噬细胞来源的外泌体miR-155通过下调PPARγ基因的表达,促进骨骼肌中的胰岛素抵抗,抑制了葡萄糖消耗和摄取[58-59]。脂肪细胞来源的外泌体能在某些情况下发挥心脏保护作用。肥胖小鼠脂肪细胞分泌的外泌体含有线粒体以及线粒体蛋白,它们能被心肌细胞吸收,从而产生活性氧,结果是心脏中的代偿性抗氧化信号传导,保护心肌细胞免受急性氧化应激,对损伤的心脏具有保护作用[60]。来自脂肪组织间充质干细胞(adipose tissue derived mesenchymal stem cells,AD-MSC)的外泌体可使肌肉恢复再生。Zimowska等[61]认为,AD-MSC通过分泌参与骨骼肌修复的因子来促进肌肉再生。Byun等[62]对小鼠的股四头肌进行组织学分析后,发现AD-MSC分泌的外泌体上调了肌细胞相关基因的表达,肌原蛋白的免疫荧光结果也趋于一致。由于撕裂而受伤的骨骼肌中富含肌源性生长因子的外泌体,随后刺激AD-MSC向肌源谱系分化,骨骼肌肌动蛋白A1(ACTA1)、肌营养不良蛋白关联糖蛋白1(DAG1)、结蛋白(DES)、骨骼肌慢肌肌钙蛋白T1(TNNT1)和肌球蛋白重链1/2(MYH1/2)等基因表达上调,帮助肌肉再生[63]。脂肪组织来源的外泌体在肌肉减少症中发挥关键作用。研究发现,老年小鼠脂肪性来源的外泌体miRNA Let-3d-2p可抑制转录因子高迁移率族蛋白A2(HMGA2)表达,从而减少肌肉干细胞的增殖[64]

2.4 代谢产物对肌内脂肪沉积的调节

正常代谢过程产生的中间产物或最终产物被称为代谢产物,包括某些氨基酸、蛋白质、脂类等[65],代谢产物也能参与肌肉-脂肪组织的互作过程。
在运动的时候,骨骼肌中支链氨基酸成员之一的缬氨酸分解产生的代谢产物β-氨基异丁酸(BAIBA)可作用于脂肪组织,使得白色脂肪组织褐变[66]。在骨骼肌中,缬氨酸产生的3-羟基异丁酸酯(3-HIB)可促进骨骼肌脂肪酸的吸收,导致未完全氧化的脂肪在骨骼肌中积累,引起骨骼肌胰岛素抵抗[67]。骨骼肌产生的亮氨酸代谢产物α-酮异酮己酸(KIC)和β-羟基-β-丁酸甲酯(HMB)能够下调PPARγ基因的表达,同时也能促进脂肪酸氧化,减少猪肌内脂肪的生成[68]。异亮氨酸通过上调脂肪酸合成酶和PPARg的表达,导致肌管内脂肪堆积增多,促进肌内脂肪沉积,并通过骨骼肌线粒体功能障碍促进肌内脂肪沉积[69]。虽然骨骼肌中的氨基酸分解代谢可能促进或抑制肥胖的发生,但目前的调控机制仍然不清楚。丙酮酸是参与机体内代谢过程的重要中间代谢产物之一,研究发现,用1∶3的丙酮酸和二羟基丙酮混合物替代4%的玉米淀粉,可使育肥猪的平均背膘厚度减少12%,但肌内脂肪含量也同时减少6%[70]。脂肪细胞释放的脂肪酸能对肌肉组织产生影响。在运动的时候,使用药物阻断游离脂肪酸的释放,肌肉会消耗更多的葡萄糖[71],这说明由脂肪细胞释放的游离脂肪酸能为肌肉细胞供能。乳酸是糖酵解的产物,也是线粒体呼吸的底物,它通过与羟基羧酸受体1(hydroxy-carboxylic acid receptor 1,HCAR1)结合、环磷腺苷效应元件结合蛋白(cAMP-response element binding protein,CREB)活化来抑制脂肪分解,并且可以通过丙二酰辅酶A和肉碱棕榈酰转移酶1(carnitine palmotoyltransferase 1,CPT1)抑制肌肉线粒体脂肪酸摄取[72]。因此,多种代谢产物也在机体不同部位的脂肪沉积过程中发挥着重要的调节作用。

3 小结与展望

综上所述,脂肪细胞因子、肌细胞因子、miRNA、外泌体和代谢产物等多种因素均可参与肌肉和脂肪组织之间的互作作用。大部分的miRNA可以调控肌内脂肪沉积,且能被外泌体分泌参与肌肉-脂肪组织的互作,所以极有可能存在大量的外泌体miRNA可以通过肌肉-脂肪组织的互作方式调控肌内脂肪沉积。但目前相关研究主要集中在细胞因子,具体的调节机制尚不清楚,大部分在临床医学方向,结果也不尽一致,而在畜牧领域的研究较少,且均侧重于从肌纤维、脂肪或肌内脂肪单一角度开展。在揭示细胞、组织器官间的代谢互作模式和信息交流机制基础上,深入解析其调节途径和调控网络对解决当前商品猪肉品质下降和优良地方猪种质资源利用不足的问题均具有重要的理论价值。
[1]
KIRK B, FEEHAN J, LOMBARDI G, et al.Muscle,bone, and fat crosstalk:the biological role of myokines,osteokines,and adipokines[J]. Current Osteoporosis Reports, 2020, 18(4):388-400.

DOI

[2]
JOHNSTONE R M. The Jeanne Manery-fisher memorial lecture 1991.Maturation of reticulocytes:formation of exosomes as a mechanism for shedding membrane proteins[J]. Biochemistry and Cell Biology:Biochimie et Biologie Cellulaire, 1992, 70(3/4):179-190.

DOI

[3]
ASWAD H, FORTERRE A, WIKLANDER O P B, et al. Exosomes participate in the alteration of muscle homeostasis during lipid-induced insulin resistance in mice[J]. Diabetologia, 2014, 57(10):2155-2164.

DOI PMID

[4]
DUMORTIER O, HINAULT C, VAN OBBERGHEN E. MicroRNAs and metabolism crosstalk in energy homeostasis[J]. Cell Metabolism, 2013, 18(3):312-324.

DOI PMID

[5]
温舒磊, 孙加节, 陈婷, 等. 猪肌肉和脂肪组织间对话机制的研究进展[J]. 畜牧兽医学报, 2018, 49(12):2543-2549.

WEN S L, SUN J J, CHEN T, et al. Research progress in the mechanism of cross-talk between muscle and adipose tissues in pig[J]. Acta Veterinaria et Zootechnica Sinica, 2018, 49(12):2543-2549. (in Chinese)

[6]
HEINONEN S, JOKINEN R, RISSANEN A, et al. White adipose tissue mitochondrial metabolism in health and in obesity[J]. Obesity Reviews, 2020, 21(2):e12958.

[7]
CHOUCHANI E T, KAZAK L, SPIEGELMAN B M. New advances in adaptive thermogenesis:UCP1 and beyond[J]. Cell Metabolism, 2019, 29(1):27-37.

DOI

[8]
HOU L J, SHI J, CAO L B, et al. Pig has no uncoupling protein 1[J]. Biochemical and Biophysical Research Communications, 2017, 487(4):795-800.

DOI PMID

[9]
SEALE P, BJORK B, YANG W L, et al. PRDM16 controls a brown fat/skeletal muscle switch[J]. Nature, 2008, 454(7207):961-967.

DOI

[10]
GIRALT M, VILLARROYA F. White,brown,beige/brite:different adipose cells for different functions?[J]. Endocrinology, 2013, 154(9):2992-3000.

DOI

[11]
HAUSMAN G J, BASU U, DU M, et al. Intermuscular and intramuscular adipose tissues:bad vs. good adipose tissues[J]. Adipocyte, 2014, 3(4):242-255.

DOI

[12]
黄业传, 贺稚非, 李洪军, 等. 皮下脂肪和肌内脂肪对猪肉风味的作用[J]. 中国农业科学, 2011, 44(10):2118-2130.

DOI

HUANG Y C, HE Z F, LI H J, et al. The flavor contribution of subcutaneous and intramuscular fat to pork[J]. Scientia Agricultura Sinica, 2011, 44(10):2118-2130. (in Chinese)

[13]
孙文娟. 猪骨骼肌来源成肌和成脂细胞分化差异的分子机制[D].博士学位论文. 北京: 中国农业大学, 2017:2-5.

SUN W J. Potential regulatory mechanisms underlying distinct fate commitment of myogenic and adipogenic cells in skeletal muscle[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2017:2-5. (in Chinese)

[14]
ZAMMIT P S. Function of the myogenic regulatory factors Myf5,MyoD,Myogenin and MRF4 in skeletal muscle,satellite cells and regenerative myogenesis[J]. Seminars in Cell & Developmental Biology, 2017, 72:19-32.

[15]
HOCQUETTE J F, GONDRET F, BAÉZA E, et al. Intramuscular fat content in meat-producing animals:development,genetic and nutritional control,and identification of putative markers[J]. Animal, 2010, 4(2):303-319.

DOI

[16]
YUE F, OPRESCU S N, QIU J M, et al. Lipid droplet dynamics regulate adult muscle stem cell fate[J]. Cell Reports, 2022, 38(3):110267.

DOI

[17]
LI F N, LI Y H, DUAN Y H, et al. Myokines and adipokines:involvement in the crosstalk between skeletal muscle and adipose tissue[J]. Cytokine & Growth Factor Reviews, 2017, 33:73-82.

[18]
HALAAS J L, GAJIWALA K S, MAFFEI M, et al. Weight-reducing effects of the plasma protein encoded by the obese gene[J]. Science, 1995, 269(5223):543-546.

DOI PMID

[19]
CHRYSAFI P, PERAKAKIS N, FARR O M, et al. Leptin alters energy intake and fat mass but not energy expenditure in lean subjects[J]. Nature Communications, 2020, 11(1):5145.

DOI PMID

[20]
FRÜHBECK G, CATALÁN V, RODRÍGUEZ A, et al. Adiponectin-leptin ratio:a promising index to estimate adipose tissue dysfunction.Relation with obesity-associated cardiometabolic risk[J]. Adipocyte, 2018, 7(1):57-62.

DOI

[21]
DE ROSA A, MONACO M L, NIGRO E, et al. Tissue-specific downregulation of the adiponectin"system":possible implications for fat accumulation tendency in the pig[J]. Domestic Animal Endocrinology, 2013, 44(3):131-138.

DOI

[22]
CAI R, TANG G R, ZHANG Q, et al. A novel lnc-RNA,named lnc-ORA,is identified by RNA-Seq analysis,and its knockdown inhibits adipogenesis by regulating the PI3K/AKT/mTOR signaling pathway[J]. Cells, 2019, 8(5):477.

DOI

[23]
WU W J, ZHANG J, ZHAO C, et al. CTRP6 regulates porcine adipocyte proliferation and differentiation by the AdipoR1/MAPK signaling pathway[J]. Journal of Agricultural and Food Chemistry, 2017, 65(27):5512-5522.

DOI PMID

[24]
FRÜHBECK G, FERNÁNDEZ-QUINTANA B, PANIAGUA M, et al. FNDC4,a novel adipokine that reduces lipogenesis and promotes fat browning in human visceral adipocytes[J]. Metabolism, 2020, 108:154261.

DOI

[25]
HELFER G, WU Q F. Chemerin:a multifaceted adipokine involved in metabolic disorders[J]. Journal of Endocrinology, 2018, 238(2):R79-R94.

DOI

[26]
RENOVATO-MARTINS M, MOREIRA-NUNES C, ATELLA G C, et al. Obese adipose tissue secretion induces inflammation in preadipocytes:role of Toll-like receptor-4[J]. Nutrients, 2020, 12(9):2828.

DOI

[27]
SEVERINSEN M C K, PEDERSEN B K. Muscle-organ crosstalk:the emerging roles of myokines[J]. Endocrine Reviews, 2020, 41(4):594-609.

DOI

[28]
李颖慧, 李凤娜, 林彬彬, 等. IL-15参与调控肌肉与脂肪组织代谢的新进展[J]. 细胞与分子免疫学杂志, 2014, 30(11):1217-1220,1227.

LI Y H, LI F N, LIN B B, et al. New progress of IL-15 involved in regulation of muscle and adipose tissue metabolism[J]. Chinese Journal of Cellular and Molecular Immunology, 2014, 30(11):1217-1220,1227. (in Chinese)

[29]
CARBÓ N, LÓPEZ-SORIANO J, COSTELLI P, et al. Interleukin-15 mediates reciprocal regulation of adipose and muscle mass:a potential role in body weight control[J]. Biochimica et Biophysica Acta:General Subjects, 2001, 1526(1):17-24.

DOI

[30]
GONZALEZ-GIL A M, ELIZONDO-MONTEMAYOR L. The role of exercise in the interplay between myokines,hepatokines,osteokines,adipokines,and modulation of inflammation for energy substrate redistribution and fat mass loss:a review[J]. Nutrients, 2020, 12(6):1899.

DOI

[31]
SUN W X, DODSON M V, JIANG Z H, et al. Myostatin inhibits porcine intramuscular preadipocyte differentiation in vitro[J]. Domestic Animal Endocrinology, 2016, 55:25-31.

DOI

[32]
LIU K Q, ZHANG X B, WEI W, et al. Myostatin/SMAD4 signaling-mediated regulation of miR-124-3p represses glucocorticoid receptor expression and inhibits adipocyte differentiation[J]. American Journal of Physiology:Endocrinology and Metabolism, 2019, 316(4):E635-E645.

DOI

[33]
YANG H S, LI F N, KONG X F, et al. Chemerin regulates proliferation and differentiation of myoblast cells via ERK1/2 and mTOR signaling pathways[J]. Cytokine, 2012, 60(3):646-652.

DOI PMID

[34]
LI Y H, LI F N, LIN B B, et al. Myokine IL-15 regulates the crosstalk of co-cultured porcine skeletal muscle satellite cells and preadipocytes[J]. Molecular Biology Reports, 2014, 41(11):7543-7553.

DOI PMID

[35]
DUAN Y H, LI F N, TAN B, et al. Myokine interleukin-15 expression profile is different in suckling and weaning piglets[J]. Animal Nutrition, 2015, 1(1):30-35.

DOI PMID

[36]
LI Y H, WEI H K, LI F N, et al. Effects of low-protein diets supplemented with branched-chain amino acid on lipid metabolism in white adipose tissue of piglets[J]. Journal of Agricultural and Food Chemistry, 2017, 65(13):2839-2848.

DOI PMID

[37]
ZHANG L Y, LI F N, GUO Q P, et al. Different proportions of branched-chain amino acids modulate lipid metabolism in a finishing pig model[J]. Journal of Agricultural and Food Chemistry, 2021, 69(25):7037-7048.

DOI PMID

[38]
DUAN Y H, ZHANG L Y, LI F N, et al. β-hydroxy-β-methylbutyrate modulates lipid metabolism in adipose tissues of growing pigs[J]. Food & Function, 2018, 9(9):4836-4846.

[39]
JIMOH A, TANKO Y, AHMED A, et al. Resveratrol prevents high-fat diet-induced obesity and oxidative stress in rabbits[J]. Pathophysiology, 2018, 25(4):359-364.

DOI

[40]
SHIRVANI H, RAHMATI-AHMADABAD S. Irisin interaction with adipose tissue secretions by exercise training and flaxseed oil supplement[J]. Lipids in Health and Disease, 2019, 18(1):15.

DOI PMID

[41]
KUO Y F, YEH C L, SHIH J M, et al. Arginine pretreatment enhances circulating endothelial progenitor cell population and attenuates inflammatory response in high-fat diet-induced obese mice with limb ischemia[J]. Nutrition Research, 2018, 53:67-76.

DOI

[42]
LEE R C, FEINBAUM R L, AMBROS V. The C. elegans heterochronic gene lin-4 encodes small RNAs with antisense complementarity to lin-14[J]. Cell, 1993, 75(5):843-854.

DOI

[43]
LAGOS-QUINTANA M, RAUHUT R, LENDECKEL W, et al. Identification of novel genes coding for small expressed RNAs[J]. Science, 2001, 294(5543):853-858.

DOI

[44]
THOMOU T, MORI M A, DREYFUSS J M, et al. Adipose-derived circulating miRNAs regulate gene expression in other tissues[J]. Nature, 2017, 542(7642):450-455.

DOI

[45]
MATHES S, FAHRNER A, GHOSHDASTIDER U, et al. FGF-2-dependent signaling activated in aged human skeletal muscle promotes intramuscular adipogenesis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2021, 118(37):e2021013118.

[46]
LI W T, WEN S L, WU J H, et al. Comparative analysis of microRNA expression profiles between skeletal muscle- and adipose-derived exosomes in pig[J]. Frontiers in Genetics, 2021, 12:631230.

DOI

[47]
MIR B A, ALBRECHT E, ALI A, et al. MicroRNA-100 reduced fetal bovine muscle satellite cell myogenesis and augmented intramuscular lipid deposition by modulating IGF1R[J]. Cells, 2022, 11(3):451.

DOI

[48]
LIU L Q, QIAN K, WANG C L. Discovery of porcine miRNA-196a/b may influence porcine adipogenesis in longissimus dorsi muscle by miRNA sequencing[J]. Animal Genetics, 2017, 48(2):175-181.

DOI

[49]
ZHANG Q, CAI R, TANG G R, et al. MiR-146a-5p targeting SMAD4 and TRAF6 inhibits adipogenensis through TGF-β and AKT/mTORC1 signal pathways in porcine intramuscular preadipocytes[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):12.

DOI PMID

[50]
CHEN F F, XIONG Y, PENG Y, et al. miR-425-5p inhibits differentiation and proliferation in porcine intramuscular preadipocytes[J]. International Journal of Molecular Sciences, 2017, 18(10):2101.

DOI

[51]
JIANG Y, LIU J L, LIU H T, et al. miR-381-3p inhibits intramuscular fat deposition through targeting FABP3 by ceRNA regulatory network[J]. Biology, 2022, 11(10):1497.

DOI

[52]
WANG H, MA M, LI Y Y, et al. miR-183 and miR-96 orchestrate both glucose and fat utilization in skeletal muscle[J]. EMBO Reports, 2021, 22(9):e52247.

DOI

[53]
WITWER K W, THÉRY C. Extracellular vesicles or exosomes?On primacy,precision,and popularity influencing a choice of nomenclature[J]. Journal of Extracellular Vesicles, 2019, 8(1):1648167.

DOI

[54]
WANG W, ZHU N, YAN T, et al. The crosstalk:exosomes and lipid metabolism[J]. Cell Communication and Signaling, 2020, 18(1):119.

DOI

[55]
MAKLER A, ASGHAR W. Exosomal biomarkers for cancer diagnosis and patient monitoring[J]. Expert Review of Molecular Diagnostics, 2020, 20(4):387-400.

DOI PMID

[56]
KALLURI R, LEBLEU V S. The biology,function,and biomedical applications of exosomes[J]. Science, 2020, 367(6478):eaau6977.

DOI

[57]
JIANG H X, ZHAO H Q, ZHANG M Z, et al. Hypoxia induced changes of exosome cargo and subsequent biological effects[J]. Frontiers in Immunology, 2022, 13:824188.

DOI

[58]
YU Y, DU H W, WEI S N, et al. Adipocyte-derived exosomal miR-27a induces insulin resistance in skeletal muscle through repression of PPARγ[J]. Theranostics, 2018, 8(8):2171-2188.

DOI PMID

[59]
YING W, RIOPEL M, BANDYOPADHYAY G, et al. Adipose tissue macrophage-derived exosomal miRNAs can modulate in vivo and in vitro insulin sensitivity[J]. Cell, 2017, 171(2):372-384.e12.

DOI

[60]
CREWE C, FUNCKE J B, LI S J, et al. Extracellular vesicle-based interorgan transport of mitochondria from energetically stressed adipocytes[J]. Cell Metabolism, 2021, 33(9):1853-1868.e11.

DOI PMID

[61]
ZIMOWSKA M, ARCHACKA K, BRZOSKA E, et al. IL-4 and SDF-1 increase adipose tissue-derived stromal cell ability to improve rat skeletal muscle regeneration[J]. International Journal of Molecular Sciences, 2020, 21(9):3302.

DOI

[62]
BYUN S E, SIM C, CHUNG Y, et al. Skeletal muscle regeneration by the exosomes of adipose tissue-derived mesenchymal stem cells[J]. Current Issues in Molecular Biology, 2021, 43(3):1473-1488.

DOI

[63]
CHOI J S, YOON H I, LEE K S, et al. Exosomes from differentiating human skeletal muscle cells trigger myogenesis of stem cells and provide biochemical cues for skeletal muscle regeneration[J]. Journal of Controlled Release, 2016, 222:107-115.

DOI PMID

[64]
ITOKAZU M, ONODERA Y, MORI T, et al. Adipose-derived exosomes block muscular stem cell proliferation in aged mouse by delivering miRNA Let-7d-3p that targets transcription factor HMGA2[J]. Journal of Biological Chemistry, 2022, 298(7):102098.

DOI

[65]
JAMES K D. Chapter 19-Animal metabolites:from amphibians,reptiles,aves/birds, and invertebrates[M]// BADALS, DELGODAR. Pharmacognosy:fundamentals,applications and strategies. London: Academic Press, 2017:401-411.

[66]
ROBERTS L D, BOSTRÖM P, O’SULLIVAN J F, et al. β-aminoisobutyric acid induces browning of white fat and hepatic β-oxidation and is inversely correlated with cardiometabolic risk factors[J]. Cell Metabolism, 2014, 19(1):96-108.

DOI PMID

[67]
SHOU J, CHEN P J, XIAO W H. The effects of BCAAs on insulin resistance in athletes[J]. Journal of Nutritional Science and Vitaminology, 2019, 65(5):383-389.

DOI PMID

[68]
ZHONG Y Z, SONG B, ZHENG C B, et al. α-ketoisocaproate and β-hydroxy-β-methyl butyrate regulate fatty acid composition and lipid metabolism in skeletal muscle of growing pigs[J]. Journal of Animal Physiology and Animal Nutrition, 2019, 103(3):846-857.

DOI PMID

[69]
LIU S G, SUN Y M, ZHAO R, et al. Isoleucine increases muscle mass through promoting myogenesis and intramyocellular fat deposition[J]. Food & Function, 2021, 12(1):144-153.

[70]
STANKO R T, FERGUSON T L, NEWMAN C W, et al. Reduction of carcass fat in swine with dietary addition of dihydroxyacetone and pyruvate[J]. Journal of Animal Science, 1989, 67(5):1272-1278.

PMID

[71]
FRAYN K N, ARNER P, YKI-JÄRVINEN H. Fatty acid metabolism in adipose tissue,muscle and liver in health and disease[J]. Essays in Biochemistry, 2006, 42:89-103.

DOI

[72]
BROOKS G A. Lactate as a fulcrum of metabolism[J]. Redox Biology, 2020, 35:101454.

DOI

Outlines

/