RESEARCH PAPER

Effects of Retinoic Acid on Semen Quality of Boars during Summer High Temperature and Expression of Genes Related to Spermatogenesis Disorder in Heat-Treated Testicular Tissue

  • SHI Yifan ,
  • LI Xiaotong ,
  • SUO Yunpeng ,
  • LIU Junze ,
  • LI Chunmei ,
  • LI Yansen , *
Expand
  • Research Center for Livestock Environmental Control and Smart Production, College of Animal Science and Technology, Nanjing Agriculture University, Nanjing 210095, China
*associate professor, E-mail:

Received date: 2023-02-23

  Online published: 2023-08-10

Abstract

This experiment was conducted to investigate the effects of retinoic acid (RA) on semen quality of boars during summer high temperature period and the related molecular mechanism. Fifteen (500.40±3.90) day-old large white boars with similar performance were randomly divided into 3 groups, which were RA0 group, RA5 group and RA10 group, with 5 boars in each group, and each boar was fed in a single pen during high temperature in summer. The control group (RA0 group) was fed a basal diet, and the experimental groups (RA5 and RA10 groups) were fed the basal diet supplemented with 5 and 10 mg/kg BW RA every day, respectively. After feeding for one week, semen was collected for three consecutive times (once a week) to determine semen quality. In order to explore the molecular mechanism of RA affecting the semen quality of boars, the in vitro tissue culture experiment was further designed in this study, and the testicular tissue blocks after cutting were randomly divided into 3 groups as control group (CON group), heat treatment group (HT group) and heat treatment+RA treatment group (HT+RA group), in which 10 μmol/L RA was added into the medium in HT+RA group, while the medium in CON group and HT group did not contain RA. After 24 h incubation at 34 ℃, HT group and HT+RA group were transferred to 39 ℃ for 4 h, and CON group was incubated at 34 ℃ for the whole process. The results showed as follows: 1) the lowest temperature and humidity index (THI) was 75.3, indicating that the boars were in a state of heat stress during the experiment. 2) Compared with RA0 group, RA had a significant effect on the reduction of abnormal sperm rate of boars (P<0.05), and the seminal plasma glutathione peroxidase (GSH-Px) activity in RA5 and RA10 groups was significantly increased (P<0.05). 3) Compared with CON group, the testicular tissue morphology in HT group was damaged and spermatogenic cell nucleus was significantly smaller (P<0.05); compared with HT group, the testicular tissue morphology was improved and spermatogenic cell nucleus was significantly enlarged in HT+RA group (P<0.05). 4) Compared with CON group, the relative expression levels of nuclear factor E2-related factor 2 (Nrf2) and glutamate-cysteine ligase catalytic subunit (GCLC) in testicular tissue in HT group were significantly increased (P<0.05); compared with HT group, the Nrf2 relative expression level in testicular tissue in HT+RA group was significantly decreased (P<0.05). 5) Compared with CON group, the relative expression levels of light chain protein 3 (LC3), autophagy-related gene 3 (Atg3) and autophagy-related gene 7 (Atg7) in testicular tissue in HT group were significantly increased (P<0.05), and the selective autophagy junction protein p62 (p62) relative expression level in testicular tissue was significantly decreased (P<0.05); compared with HT group, the relative expression levels of LC3 and Atg7 in testicular tissue in HT+RA group were significantly decreased (P<0.05), and the p62 relative expression level in testicular tissue was significantly increased (P<0.05). 6) Compared with CON group, the connexin 43 (Cx43) relative expression level in testicular tissue in HT group was significantly increased (P<0.05); compared with HT group, the Cx43 relative expression level in testicular tissue in HT+RA group was significantly decreased (P<0.05). 7) Compared with CON group, the relative expression levels of stimulated by retinoic acid gene 8 (Stra8) and DNA meiotic recombinase 1 (Dmc1) in testicular tissue in HT group were significantly decreased (P<0.05); compared with HT group, the Stra8 relative expression level in testicular tissue in HT+RA group was significantly increased (P<0.05). In conclusion, RA can improve the abnormal sperm rate and seminal plasma antioxidant performance of boars during summer high temperature, and improve the testicular tissue morphology after heat treatment in vitro, which may be achieved by improving the testicular antioxidant performance, reducing autophagy, and maintaining the integrity of the blood-testis barrier and normal spermatogenesis.

Cite this article

SHI Yifan , LI Xiaotong , SUO Yunpeng , LIU Junze , LI Chunmei , LI Yansen . Effects of Retinoic Acid on Semen Quality of Boars during Summer High Temperature and Expression of Genes Related to Spermatogenesis Disorder in Heat-Treated Testicular Tissue[J]. Chinese Journal of Animal Nutrition, 2023 , 35(8) : 5333 -5348 . DOI: 10.12418/CJAN2023.492

夏季高温期间公猪精液品质下降,严重影响公猪种用价值。公猪汗腺不发达,且皮下有一层较厚的脂肪组织,散热性能差,对温度升高非常敏感。高温环境下,公猪精液品质较差,主要表现为精子数量、精子活力和精液量明显降低[1-2]。研究发现,睾丸生精细胞功能和精液抗氧化能力与高温导致的雄性精液品质降低关系密切[3]。公猪的精液品质低下会直接影响母猪的妊娠率和产仔数[4],因此维持夏季公猪精液品质对提高猪场经济效益至关重要。
视黄酸(retinoic acid,RA)是维生素A在体内的活性代谢物质。研究表明,RA缺乏会引起生精过程紊乱,这说明RA对维持正常精子发生发挥着重要作用[5-6]。RA能够诱导培养的小鼠精原干细胞分化为精母细胞,并且通过视黄酸刺激基因8(Stra8)在减数分裂的启动中起到关键作用[7]。维生素A缺乏的大鼠和小鼠精子发生异常,补充维生素A或RA后得到恢复[8]。研究还发现,RA能维持精子的氧化还原平衡,经过RA处理的精子具有较高的抗氧化酶活性,对氧化应激具有更好的耐受性[9]。此外,RA还能够维护隐睾症大鼠睾丸的血睾屏障完整性,提升精子密度。这提示RA可能是缓解夏季高温导致的公猪精液品质下降的潜在物质。
成熟公猪体型较大、价值高,一般不会用来屠宰采集样品。研究发现,利用睾丸组织块[10]、睾丸间质细胞[11]或精原细胞[12]进行体外培养都是研究睾丸功能的常用模型。然而,与单独培养间质细胞或生精细胞相比,体外睾丸组织培养一定程度上保留了睾丸组织中不同类型细胞互作的系统性和完整性,维持了睾丸中立体结构及各类细胞之间的相互关系,这为研究公猪生精功能障碍提供更为便捷的途径。为了更全面地研究RA对公猪睾丸生精障碍相关分子机制,本试验采用体内试验和体外睾丸组织培养方法相结合,研究饲喂RA对夏季高温期公猪精液品质的影响,收集高温和RA处理后的公猪睾丸组织块,检测生精障碍相关基因表达,探讨夏季高温期饲喂RA对公猪精液品质的有效性和相关分子调控机制。

1 材料与方法

1.1 试验设计

在夏季高温期间,选取15头生产性能相似(表1)的(500.40±3.90)日龄大白公猪,随机分成3个组,分别RA0组、RA5组和RA10组,每组5头公猪,每头公猪单个限位栏饲喂,配有独立的料槽和饮水器。对照组(RA0组)饲喂基础饲粮;试验组(RA5组和RA10组)在饲喂基础饲粮的同时,每天分别补饲5和10 mg/kg BW的RA(购自湖南某生物工程有限公司,纯度>99%)。公猪每天定量饲喂2次,分别于09:30和16:30各饲喂1.25 kg饲粮;试验组补饲的RA也分2次与基础饲粮混匀后,同时喂给公猪。公猪饲喂1周后,连续采集3次精液(每周1次),测定精液品质,并收集样品于-20 ℃保存,待后续测定相关指标。基础饲粮参考NRC(2012)推荐的种公猪营养需求进行配制,其组成及营养水平见表2
表1 试验前不同组公猪连续5次精液品质测定结果

Table 1 Results of semen quality of boars in different groups determined for 5 consecutive times before experiment (n=5)

项目
Items
组别Groups P
P-value
RA0 RA5 RA10
精液量Semen volume/mL 350.29±30.06 344.93±16.43 349.21±16.20 0.983
精子活力Sperm motility 0.66±0.02 0.66±0.01 0.67±0.01 0.981
精子密度Sperm density/(×108个/mL) 4.27±0.48 4.18±0.48 4.59±0.17 0.748
精子畸形率Abnormal sperm rate/% 28.43±5.61 25.65±2.96 27.29±4.36 0.907
头份数Head copies/头份 58.96±4.47 56.60±4.73 58.57±3.53 0.916

同行数据肩标不同小写字母表示差异显著(P<0.05),相同小写字母或无字母表示差异不显著(P>0.05)。表4表8同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same small letter or no letter superscripts mean no significant difference (P>0.05). The same as Table 4 to Table 8.

表2 基础饲粮组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 30.58
三级硬质小麦Tertiary durum wheat 20.00
皮大麦Barley 30.00
豆粕Soybean meal 6.97
葵花籽粕Sunflower seed meal 5.79
鱼粉Fish meal 3.00
磷酸氢钙CaHPO4 0.58
石粉Limestone 1.51
氯化钠NaCl 0.28
L-赖氨酸硫酸盐L-Lys·H2SO4 (70%) 0.49
苏氨酸Thr (98%) 0.06
色氨酸Trp (25%) 0.02
氯化胆碱Choline chloride (60%) 0.12
预混料Premix1) 0.60
合计Total 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 13.24
粗蛋白质CP 15.35
钙Ca 0.90
总磷TP 0.56
标准全消化道可消化磷STTD P 0.32
标准回肠可消化赖氨酸SID Lys 0.80
标准回肠可消化蛋氨酸+标准回肠
可消化半胱氨酸
SID Met+SID Cys
0.51
标准回肠可消化苏氨酸SID Thr 0.51
标准回肠可消化色氨酸SID Trp 0.17

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:VA 5 000 IU,VD3 1 000 IU,VE 48 mg,VK 2.5 mg,VB2 4.8 mg,VB6 3.2 mg,VB12 0.03 mg,烟酸 nicotinic acid 7.5 mg,泛酸 pantothenic acid 17.6 mg,生物素 biotin 0.3 mg,叶酸 folic acid 1.5 mg,Fe 88 mg,Cu 20 mg,Zn 90 mg,Se 0.3 mg,Mn 39 mg,I 0.55 mg。

2)粗蛋白质为实测值,其他为计算值。CP was a measured value, while the others were calculated values.

1.2 舍内环境条件评估

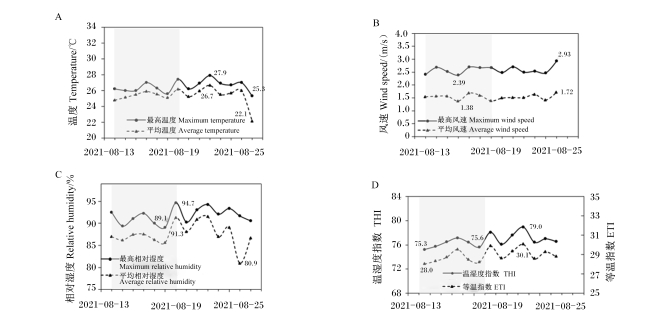
试验期间,每天于07:00、11:00和17:00分别采用RC-4HC型温湿度记录仪(江苏省精创电气股份有限公司)测量猪舍内温度和相对湿度;同时,采用DFA-3型风速仪(鞍山市高科光学仪表有限公司)测量猪舍内风速。参考García-Ispierto等[13]和Cao等[14]试验中描述的计算方法,对环境温湿度指数(temperature-humidity index,THI)和等温指数(equivalent temperature index,ETI)进行计算,公式如下:
THI=0.8×T+(RH/100)×(T-14.4)+46.4;
ETI=T+0.000 6×(RH-50)×T-0.313 2×u0.682 7×(38-T)-4.79×(1.008 6×38-T)+4.895 7×10⁻⁸×[(38+273.15)4-(T+273.15)4]。
式中:T为干球温度,单位为℃;RH为相对湿度,单位为%;u为风速,单位为m/s。

1.3 公猪阴囊和肛门温度测量

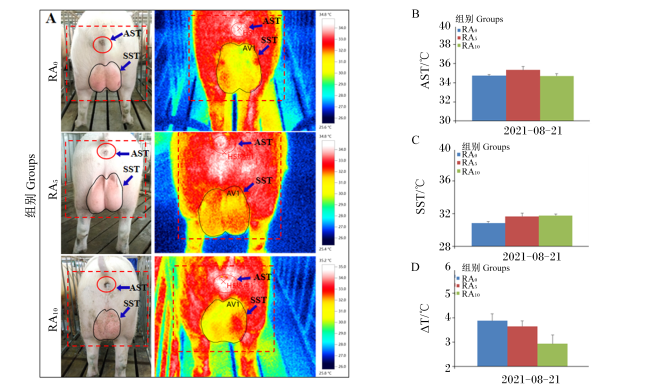
公猪连续7 d饲喂RA后,采用Testo-865型红外热成像仪[德图仪器国际贸易(上海)有限公司]测量公猪阴囊表面温度(scrotal surface temperature,SST)和肛门表面温度(anal surface temperature,AST),并使用IRSoft软件对热成像图像进行分析,计算AST与SST之间的差值(ΔT),评估饲喂RA对公猪AST和SST的影响。

1.4 精液品质测定

采用手握法采集公猪精液,采集完成后,立刻检测精液品质,并收集10 mL精液于-20 ℃保存用于后续相关指标的测定。用称重法测定公猪精液量,1 g精液按1 mL计。取50 μL精液于37 ℃预热的玻片上,加盖盖玻片,采用计算机辅助精子分析系统(computer-aided sperm analysis,CASA)进行精子活力和密度的分析。取100 μL精液,加入900 μL的6%氯化钾溶液,混匀稀释后取10 μL用于测定精子畸形率。总精子数和有效精子数通过计算得到,计算公式如下:
总精子数=精子密度×精液量;
有效精子数=总精子数×精子活力。

1.5 公猪精子丙二醛(MDA)含量和精清抗氧化指标测定

将公猪精液在1 000×g条件下离心15 min,精清用于测定抗氧化指标;精子用磷酸盐缓冲液(PBS)洗2遍后测定MDA含量。采用硫代巴比妥酸(TBA)法测定精子MDA含量,分别采用羟胺法、钼酸铵法、比色法和铁离子还原/抗氧化能力(FRAP)法测定精清中总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)活性以及总抗氧化能力(T-AOC)。试剂盒均购自南京建成生物工程研究所。

1.6 体外睾丸组织培养

前期研究发现,环境高温能直接影响公猪阴囊散热能力,导致公猪睾丸温度升高和精液品质改变[15]。为了进一步探究RA改变公猪精液品质的相关分子机制,且又在不损伤试验公猪的情况下,本文进行了体外睾丸组织培养试验。参考高小燕等[16]和李照见[17]试验中描述的培养条件和方法,将21日龄的公猪睾丸用预冷的含1%双抗的PBS清洗干净,将睾丸白膜除去,用眼科剪把睾丸剪至3 mm×3 mm大小的组织块,然后放入12孔板内,每孔加入适量含15%胎牛血清和1%双抗的DMEM/F12高糖培养基(以刚好覆盖组织块),34 ℃培养12 h以建立稳定状态。然后去除培养基,用PBS清洗组织块并更换为含5%胎牛血清的DMEM/F12高糖培养基。
各培养板随机分为3组,分别为对照组(CON组)、热处理组(HT组)和热处理+RA处理组(HT+RA组),每组5个重复。其中HT+RA组培养基中加入10 μmol/L RA,CON组和HT组培养基中不含RA;34 ℃环境培养24 h后,HT组和HT+RA组转入39 ℃环境下培养4 h,CON组全程于34 ℃环境培养。于热处理4 h后收集睾丸组织块。组织块一部分于4%多聚甲醛固定,另一部分存放于-80 ℃冰箱储存备用。

1.7 睾丸组织形态学观察和抗氧化指标测定

取固定于4%多聚甲醛中的睾丸组织块,经过脱水、透明及透蜡等处理后,进行石蜡包埋,然后用切片机切取5 μm厚的石蜡切片,选取苏木精-伊红(HE)进行染色,然后用中性树胶封片,在显微镜下观察拍照。使用Image J软件对生精小管内生精细胞核的直径和面积进行测定,每组随机选择3个样本,每个样本至少选择5个生精小管,每组共统计50个生精细胞核。睾丸组织样品抗氧化指标测定方法参照1.5。

1.8 睾丸组织RNA提取、cDNA制备和PCR检测

采用TRIzol试剂(南京诺唯赞生物科技股份有限公司)从睾丸组织匀浆中提取总RNA,使用分光光度计(NanoDrop 2000)测定RNA浓度及纯度,将RNA浓度调整至500 ng/μL。参考cDNA合成试剂ABScript Ⅲ RT Master Mix for qPCR with gDNA Remover(武汉爱博泰克生物科技有限公司)说明书将RNA反转录为cDNA。使用荧光定量PCR试剂(武汉爱博泰克生物科技有限公司)进行荧光定量PCR,反应程序为:95 ℃预变性3 min,95 ℃变性5 s,60 ℃退火30 s,40个循环。PCR引物序列见表3。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,采用2-△△Ct法计算目的基因的相对表达量。
表3 引物序列

Table 3 Primer sequences

基因
Genes
GenBank登录号
GenBank accession No.
引物序列
Primer sequences (5'—3')
抗氧化相关基因Antioxidant-related genes
核因子E2相关因子2 Nrf2 XM_021075133.1 F:GGAGCTGTTGATCTGTTGCG
R:TCCATGTCCCTTGACAGCAA
血红素加氧酶1 HO1 NM_001004027.1 F:AGCTGTTTCTGAGCCTCCAA
R:CAAGACGGAAACACGAGACA
谷氨酰半胱氨酸连接酶催化亚基GCLC XM_021098555.1 F:GGCGACGAGGTGGAATACAT
R:GTTTGGGTTTGTCCTTTCCCC
醌氧化还原酶1 NQO1 NM_001159613.1 F:GATCATACTGGCCCACTCCG
R:GAGCAGTCTCGGCAGGATAC
过氧化氢酶CAT XM_021081498.1 F:AGCTTTGCCCTTGCACAAAC
R:ACATCCTGAACAAGAAGGGGC
超氧化物歧化酶SOD NM_214127.2 F:TTGTAGGAGCGCCGAATAC
R:TAACCTCCTGGCTCTTTCCA
凋亡相关基因Apoptosis-related genes
半胱氨酸天冬氨酸蛋白酶3 Caspase3 NM_214131.1 F:GCAGTTTTATTTGCGTGCTTC
R:TCCGTCTCAATCCCACAGTC
B淋巴细胞瘤2相关X蛋白Bax XM_013998624.2 F:AAGCGCATTGGAGATGAACT
R:GGCCTTGAGCACCAGTTTAC
B淋巴细胞瘤2 Bcl2 NM_214285.1 F:CTTACCTGAATGACCACCTAGAGC
R:CGACTGAAGAGCGAACCCA
血睾屏障相关基因Blood-testis barrier related genes
闭锁小带蛋白-1 ZO-1 XM_021098896.1 F:CGGCGAAGGTAATTCAGTGT
R:TCTTCTCGGTTTGGTGGTCT
闭合蛋白Occludin NM_001163647.2 F:AACTTCCACTGATGTCCCCCGT
R:CCTAGACTTTCCTGCTCTGCCC
间隙连接蛋白43 Cx43 NM_001244212.1 F:GGTGGACTGTTTCCTCTCTCG
R:GGAGCAGCCATTGAAATAAGC
少突胶质细胞跨膜蛋白/封闭蛋白11 Cld11 NM_001161641.1 F:TGGTGTCATGCTCATTCTGC
R:GGAGTAGCCAAAGCTCACGA
自噬相关基因Autophagy-related genes
轻链蛋白3 LC3 NM_001170827.1 F:CCTTCTTCCTGCTGGTGAAC
R:GGGAGGCGTAGACCATGTAG
选择性自噬接头蛋白p62 p62 XM_003123639.4 F:GGGTTACACCAGCAGTCCA
R:CCATTCAGAGTACATCCGTTT
苄氯素1 Beclin1 NM_001044530.1 F:GATAGTGGCGGAAAATCTCG
R:CATCTGGGCATAACGCATCT
自噬相关基因3 Atg3 XM_003132682.6 F:CACGACTATGGTTGTTTGGCTATG
R:GGTGGAAGGTGAGGGTGATTT
自噬相关基因5 Atg5 NM_001037152.2 F:GCCATCAATCGGAAACTCAT
R:TGAAGCCACAGGACGAAAG
自噬相关基因7 Atg7 XM_013990938.2 F:AAGCTGTGGGCTTTCCAGTA
R:TCCTTTGTGGTGATCCTTCC
精子发生相关基因Spermatogenesis-related genes
视黄酸刺激基因8 Stra8 NM_001285970.1 F:TTTGAAGATGCCTTTGATGTGG
R:TCTCCTCGGGCTTTTCTGG
联会复合体蛋白3 Sycp3 XM_003126677.4 F:AGTGGTTCAGAGGAGGATGTC
R:ACTGCTGAGAATACTCCTGGTT
跨膜酪氨酸激酶受体蛋白C-kit NM_001044525.1 F:CGCAGCGGGTATGATGTGTAT
R:AAGGAAGTTGCGTTGGGTCTAT
早幼粒细胞白血病锌指蛋白PLZF XM_021062870.1 F:CTGTGCAAGGCCAACCAGAT
R:CTGCTGGAAGGTCTTTGGAGA
类无精症缺失基因Dazl XM_003358321.3 F:ACAGTGGCCTGCTGGGGAAC
R:TGTGGGCCATTTCCAGAGGA
DNA减数分裂重组酶1 Dmc1 XM_021091488.1 F:TCTCTCATACCCTCTGTGTG
R:TTGTCCAGGACTGCATCATG
内参基因Reference gene
甘油醛-3-磷酸脱氢酶GAPDH NM_001206359.1 F:AGTATGATTCCACCCACGGC
R:TACGTAGCACCAGCATCACC

1.9 数据统计分析

试验数据采用Excel 2010进行初步整理,使用SPSS 25.0软件对时间和RA对精液品质的互作效应进行双因素方差分析,对AST、SST、抗氧化指标、生精细胞核大小和相关基因表达水平进行单因素方差分析(one-way ANOVA),多重比较采用Duncan氏法进行。试验结果数据均用“平均值±标准误”表示,P<0.05表示差异显著。

2 结果与分析

2.1 公猪舍内环境条件评估

图1可知,测定期间猪舍内最高温度最高为27.9 ℃,最低为25.3 ℃;平均温度最高为26.7 ℃,最低为22.1 ℃。最大相对湿度在89.1%~94.7%变化,平均相对湿度在80.9%~91.3%变化。最大风度在2.39~2.93 m/s变化,平均风速在1.38~1.72 m/s变化。THI、ETI的最低值和最高值分别是75.3、28.0和79.0、30.1,且分别出现在8月14日和8月23日。
图1 公猪舍内环境条件评估

图中阴影部分时间段表示饲喂RA期间。

Fig.1 Assessment of environmental conditions in boar barn

Shaded area in figure indicated RA feeding period.

2.2 RA对公猪SST和AST的影响

图2可知,公猪AST明显高于SST,公猪AST平均值在34~36 ℃变化,公猪SST平均值在30~32 ℃变化,ΔT平均值在2~4 ℃变化。不同组间公猪AST、SST和ΔT均无显著差异(P>0.05)。
图2 公猪SST和AST

SST为阴囊表面温度,AST为肛门表面温度,ΔT为AST和SST之间的差值。

Fig.2 SST and AST of boars

SST was scrotal surface temperature, AST was anal surface temperature, and ΔT was difference between AST and SST.

2.3 RA对公猪精液品质的影响

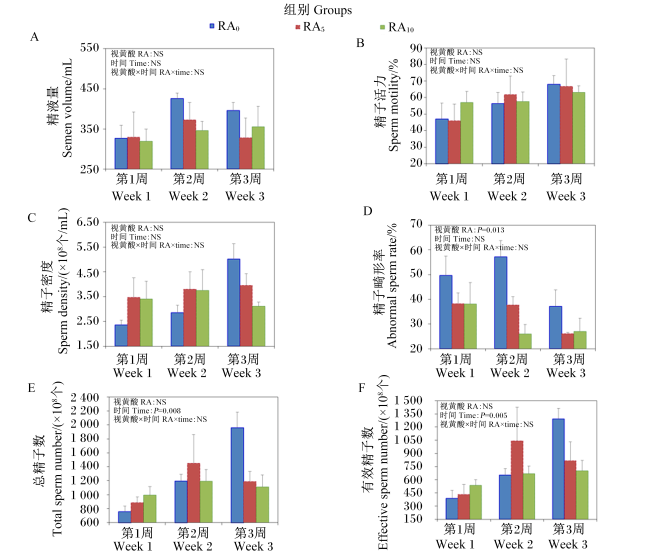
图3可知,双因素方差分析结果表明,RA对公猪精子畸形率的降低具有显著作用(P<0.05),RA饲喂组(试验组)公猪精子畸形率低于对照组。精液采集时间对公猪精液有效精子数和总精子数的升高具有显著作用(P<0.05),试验后第3周采集的公猪精液有更高的有效精子数和总精子数。在6个精液品质指标中,精液采集时间与RA间的交互作用都不显著(P>0.05)。
图3 RA对公猪精液品质的影响

NS表示无显著差异(P>0.05)。

Fig.3 Effects of RA on semen quality of boars

NS represented no significant difference (P>0.05).

2.4 RA对公猪精子MDA含量和精清抗氧化指标的影响

表4可知,与RA0组相比,RA5组和RA10组公猪精清GSH-Px活性显著提高(P<0.05)。不同组间精子MDA含量以及精清T-AOC和T-SOD、CAT活性均无显著差异(P>0.05)。
表4 RA对公猪精子MDA含量和精清抗氧化指标的影响

Table 4 Effects of RA on sperm MDA content and seminal plasma antioxidant indices of boars (n=5)

项目
Items
组别Groups P
P-value
RA0 RA5 RA10
丙二醛MDA/(nmol/mg prot) 1.47±0.12 1.31±0.18 1.24±0.22 0.524
总抗氧化能力T-AOC/(nmol/mL) 0.63±0.07 0.71±0.08 0.65±0.06 0.767
总超氧化物歧化酶T-SOD/(U/mL) 426.71±35.80 424.88±30.48 425.00±33.27 0.999
过氧化氢酶CAT/(U/mL) 22.28±1.76 24.63±2.66 22.68±4.27 0.837
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 102.38±21.37b 131.23±16.63a 141.69±18.03a 0.017

2.5 RA对热处理公猪睾丸组织形态的影响

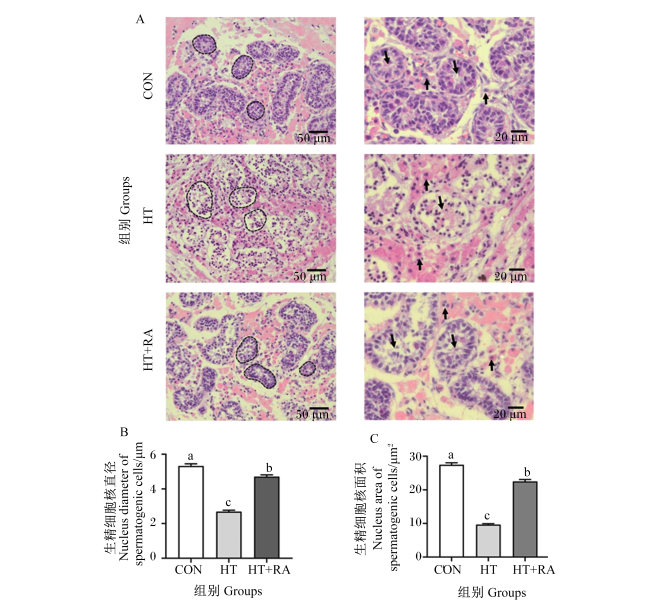
图4可知,对公猪睾丸组织块进行HE染色发现,CON组睾丸生精细胞均匀地分布在生精小管内。在39 ℃热处理4 h后,HT组睾丸精原细胞脱落,散乱的分布在管腔内,细胞核明显减小;HT+RA组睾丸组织块形态接近CON组。对细胞核进一步分析发现,与CON相比,HT组细胞核直径和面积显著降低(P<0.05);与HT组相比,HT+RA组细胞核直径和面积显著提高(P<0.05)。
图4 RA对热处理公猪睾丸组织形态的影响

睾丸组织HE染色图中黑色虚线圈为1个生精小管,向上箭头指向间质细胞,向下箭头指向生精小管管腔。数据柱形标注不同小写字母表示差异显著(P<0.05)。

Fig.4 Effects of RA on morphology of heat-treated testicular tissue of boars

In HE staining figure of testicular tissue, the black dotted circle indicated a seminiferous tubule, the upward arrows pointed to leydig cells, and the downward arrows pointed to lumen of seminiferous tubule. Value columns with different small letters mean significant difference (P<0.05).

2.6 RA对热处理公猪睾丸组织抗氧化指标的影响

表5可知,不同组间公猪睾丸组织MDA含量和T-SOD、GSH-Px活性以及T-AOC均无显著差异(P>0.05)。
表5 RA对热处理公猪睾丸组织抗氧化指标的影响

Table 5 Effects of RA on antioxidant indices in heat-treated testicular tissue of boars (n=5)

项目
Items
组别Groups P
P-value
CON HT HT+RA
丙二醛MDA/(nmol/mg prot) 11.77±0.38 12.58±0.49 11.81±0.56 0.433
总超氧化物歧化酶T-SOD/(U/mg prot) 290.35±16.47 255.80±10.68 289.87±9.98 0.130
总抗氧化能力T-AOC/(nmol/mg prot) 0.11±0.01 0.10±0.01 0.10±0.01 0.462
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 92.05±9.17 78.54±5.70 90.97±18.12 0.692

2.7 RA对热处理公猪睾丸组织抗氧化相关基因表达的影响

表6可知,与CON组相比,HT组公猪睾丸组织核因子E2相关因子2(Nrf2)和谷氨酰半胱氨酸连接酶催化亚基(GCLC)相对表达量显著提高(P<0.05);与HT组相比,HT+RA组睾丸组织Nrf2相对表达量显著降低(P<0.05),且睾丸组织Nrf2和GCLC相对表达量与CON组相比无显著差异(P>0.05)。热处理和RA处理对公猪睾丸组织血红素加氧酶1(HO1)、醌氧化还原酶1(NQO1)、CAT和超氧化物歧化酶(SOD)相对表达量均无显著影响(P>0.05)。
表6 RA对热处理公猪睾丸组织抗氧化相关基因表达的影响

Table 6 Effects of RA on expression of antioxidant-related genes in heat-treated testicular tissue of boars (n=5)

项目
Items
组别Groups P
P-value
CON HT HT+RA
核因子E2相关因子2 Nrf2 1.00±0.09b 1.51±0.18a 0.88±0.13b 0.014
血红素加氧酶1 HO1 1.00±0.09 1.28±0.13 1.18±0.17 0.347
谷氨酰半胱氨酸连接酶催化亚基GCLC 1.00±0.12b 1.24±0.07a 1.08±0.07ab 0.049
醌氧化还原酶1 NQO1 1.00±0.08 0.94±0.11 0.96±0.30 0.973
过氧化氢酶CAT 1.00±0.25 0.52±0.16 0.80±0.34 0.351
超氧化物歧化酶SOD 1.00±0.08 1.35±0.21 1.15±0.10 0.261

2.8 RA对热处理公猪睾丸组织凋亡、自噬和血睾屏障相关基因表达的影响

表7可知,与CON组相比,HT组公猪睾丸组织轻链蛋白3(LC3)、自噬相关基因3(Atg3)和自噬相关基因7(Atg7)相对表达量显著提高(P<0.05),选择性自噬接头蛋白p62(p62)相对表达量显著降低(P<0.05)。与HT组相比,HT+RA组睾丸组织LC3和Atg7相对表达量显著降低(P<0.05),p62相对表达量显著提高(P<0.05);且Atg3和Atg7相对表达量与CON组相比无显著差异(P>0.05)。
表7 RA对热处理公猪睾丸组织凋亡、自噬和血睾屏障相关基因表达的影响

Table 7 Effects of RA on expression of apoptosis, autophagy and blood-testis barrier related genes in heat-treated testicular tissue of boars (n=5)

项目
Items
组别Groups P
P-value
CON HT HT+RA
凋亡相关基因Apoptosis-related genes
B淋巴细胞瘤2相关X蛋白Bax 1.00±0.03 1.01±0.05 0.94±0.07 0.620
B淋巴细胞瘤2 Bcl2 1.00±0.08 0.90±0.12 1.01±0.14 0.495
半胱氨酸天冬氨酸蛋白酶3 Caspase3 1.00±0.03 1.00±0.01 0.92±0.09 0.592
自噬相关基因Autophagy-related genes
轻链蛋白3 LC3 1.00±0.07c 1.88±0.08a 1.31±0.12b <0.001
选择性自噬接头蛋白p62 p62 1.00±0.03a 0.66±0.04c 0.81±0.03b <0.001
苄氯素1 Beclin1 1.00±0.12 1.20±0.13 0.93±0.03 0.224
自噬相关基因3 Atg3 1.00±0.08b 1.35±0.07a 1.25±0.12ab 0.048
自噬相关基因5 Atg5 1.00±0.06 0.98±0.05 0.86±0.05 0.205
自噬相关基因7 Atg7 1.00±0.06b 1.40±0.11a 1.10±0.06b 0.013
血睾屏障相关基因Blood-testis barrier related genes
闭锁小带蛋白-1 ZO-1 1.00±0.06 1.07±0.12 0.98±0.08 0.768
闭合蛋白Occludin 1.00±0.03 1.00±0.04 0.93±0.11 0.697
间隙连接蛋白43 Cx43 1.00±0.07b 1.44±0.19a 0.72±0.05b 0.004
少突胶质细胞跨膜蛋白/封闭蛋白11 Cld11 1.00±0.04 1.22±0.08 0.98±0.09 0.073
与CON组相比,HT组公猪睾丸组织间隙连接蛋白43(Cx43)相对表达量显著提高(P<0.05);与HT组相比,HT+RA组睾丸组织Cx43相对表达量显著降低(P<0.05),且与CON组相比无显著差异(P>0.05)。
不同组间公猪睾丸组织B淋巴细胞瘤2相关X蛋白(Bax)、B淋巴细胞瘤2(Bcl2)、半胱氨酸天冬氨酸蛋白酶3(Caspase3)、苄氯素1(beclin1)、自噬相关基因5(Atg5)、闭锁小带蛋白-1(ZO-1)和闭合蛋白(occludin)相对表达量均无显著差异(P>0.05)。

2.9 RA对热处理公猪睾丸组织精子发生相关基因表达的影响

表8可知,与CON组相比,HT组公猪睾丸组织视黄酸刺激基因8(Stra8)和DNA减数分裂重组酶1(Dmc1)相对表达量显著降低(P<0.05);与HT组相比,HT+RA组睾丸组织Stra8相对表达量显著提高(P<0.05),且睾丸组织Stra8和Dmc1相对表达量与CON组相比无显著差异(P>0.05)。热处理和RA处理对公猪睾丸组织联会复合体蛋白3(Sycp3)、跨膜酪氨酸激酶受体蛋白(C-kit)、类无精症缺失基因(Dazl)和早幼粒细胞白血病锌指蛋白(PLZF)相对表达量均无显著影响(P>0.05)。
表8 RA对热处理公猪睾丸组织精子发生相关基因表达的影响

Table 8 Effects of RA on expression of spermatogenesis-related genes in heat-treated testicular tissue of boars (n=5)

项目
Items
组别Groups P
P-value
CON HT HT+RA
视黄酸刺激基因8 Stra8 1.00±0.10a 0.59±0.03b 0.88±0.05a 0.003
联会复合体蛋白3 Sycp3 1.00±0.12 0.91±0.10 1.08±0.10 0.539
DNA减数分裂重组酶1 Dmc1 1.00±0.02a 0.53±0.10b 0.82±0.17ab 0.034
跨膜酪氨酸激酶受体蛋白C-kit 1.00±0.11 0.96±0.04 0.91±0.06 0.707
类无精症缺失基因Dazl 1.00±0.08 1.05±0.04 1.10±0.08 0.624
早幼粒细胞白血病锌指蛋白PLZF 1.00±0.11 0.90±0.12 1.24±0.13 0.173

3 讨论

3.1 夏季高温期间公猪热应激评估

环境温湿度升高是造成家畜热应激的主要因素,影响家畜的繁殖性能[18]。研究表明,国外引进品种公猪(如大白和长白品种)最适环境温度上限一般不超过22 ℃[19]。对65头PIC公猪全年的精液数据进行统计,发现当环境温度从19 ℃逐渐升高时,公猪有效精子数呈逐渐减少的趋势,当环境温度超过25 ℃以后有效精子数保持较低水平[16]。Vitali等[20]研究表明,奶牛开始发生热应激时的临界THI值为72。在本试验中,测定期间猪舍内最高温度最高为27.9 ℃,最低为25.3 ℃,超过25 ℃,THI值最低为75.3,考虑公猪较少的汗腺和较厚的皮脂,其体表显热散热和潜热散热都可能弱于奶牛,提示试验期间公猪在全天较热的时段,处于热应激状态的可能性较大。ETI是结合气温、气湿和风速变量评定畜舍炎热程度的指标,据估测ETI低于33,母猪较为舒适[14]。本试验中ETI所测值在33以内,可见能否利用ETI作为评估公猪热应激程度指标,需要进一步研究确定。
猪的睾丸位于阴囊内,比体核温度低2~8 ℃,以维持正常的精子发生过程[21]。当环境温度升高时,提睾肌和内膜肌使睾丸远离腹部,阴囊皮肤松弛,增加总表面积。同时,阴囊通过血管舒张、血流量增加,促进热量散失[22]。研究表明,夏季高温期间通过营养调控,能降低公猪SST,使SST和AST的差值增加[20]。本试验中,公猪睾丸温度比肛门温度低,说明睾丸散热作用明显,但RA饲喂组与对照组之间睾丸温度无显著差异,表明RA对试验公猪阴囊散热影响不大。

3.2 RA对公猪精液品质和睾丸组织形态的影响

睾丸温度升高会使睾丸重量减轻、组织受损,同时也会损害精子发生和精子质量[23-24]。研究表明,夏季高温热应激会降低公猪的精液品质[25]。营养调控是提高夏季公猪繁殖性能的重要手段之一。Chen等[26]研究表明,夏季公猪补饲精氨酸后精子活力、总精子数、有效精子数及精子形态都显著改善。本试验中,饲喂RA后公猪精子畸形率显著降低。体外睾丸组织培养试验中,HT组睾丸组织形态受损,生精细胞核显著变小;RA处理后形态改善,生精细胞核变大,说明RA对公猪的睾丸组织形态和精液品质有一定的积极影响。研究表明,高温造成睾丸损伤的分子机制包括生殖细胞凋亡[27]、精子DNA损伤[21]、自噬[28]、血睾屏障损伤[29]和氧化应激[30]等。考虑到RA对阴囊温度的调节作用不大,本试验中精液品质的改变,可能是由于RA改善了精液抗氧化能力或者睾丸生精功能。

3.3 RA对公猪精液和睾丸组织抗氧化指标的影响

氧化应激是热应激导致损伤的主要原因之一。细胞中超氧化物可以被SOD歧化为过氧化物,再由GSH-Px催化,最后将过氧化物转化为水[31]。MDA为作脂质过氧化的最终产物,是评估氧化应激的生物标志物[32]。热应激能改变氧化应激标志物如SOD、CAT和GSH-Px的活性[33]。饲粮添加精氨酸能显著降低夏季公猪精子MDA含量,显著提高公猪精清T-AOC以及GSH-Px、SOD和CAT活性[34]。通过猪睾丸组织块体外培养发现,热处理能显著升高睾丸组织MDA含量,显著降低睾丸组织T-SOD活性[17]。本试验中,夏季高温环境饲喂RA的公猪精子MDA含量有所降低,精清GSH-Px活性显著提高。体外睾丸组织块培养试验结果虽然无显著差异,但是HT+RA组睾丸组织MDA含量和GSH-Px活性与HT组相比有一定改善。Nrf2是激活抗氧化酶以促进自由基清除的关键信号[35],它可通过调节下游靶基因,如GSH-PxCATSODHO1、GCLCNQO1等的表达,从而降低细胞活性氧(ROS)和脂质过氧化物含量[36]。谷胱甘肽(GSH)是一种具有亲核、抗氧化和解毒功能的三肽,在哺乳动物细胞中通过谷氨酸半胱氨酸连接酶(GCL)和GSH合成酶(GSS)作用合成[37]。GCL是一种异二聚体酶,该酶具有催化亚基和修饰亚基[37]。在本试验中,睾丸组织热处理后,Nrf2和GCLC相对表达量显著提高,表明热处理可能激活了Nrf2及下游靶基因GCLC,进而维持睾丸正常的氧化还原平衡。在RA处理后,睾丸组织Nrf2相对表达量显著降低,说明RA可能通过降低睾丸组织的氧化应激水平,缓解了Nrf2信号通路的进一步激活。

3.4 RA对热处理公猪睾丸组织凋亡和自噬相关基因表达的影响

温度升高除了会导致睾丸内的氧化应激,还会引发细胞凋亡。抗凋亡基因Bcl2表达的升高有利于细胞存活的延长,而促凋亡基因Bax表达的升高可加速细胞死亡。Caspase3是细胞凋亡过程中的关键酶,在细胞凋亡过程中起着重要作用[38]。Fan等[39]研究发现,高温环境下公猪睾丸组织Bcl2蛋白和基因表达量都显著升高,Bax蛋白和基因表达量无显著变化。在本试验中,热处理和RA处理没有显著改变睾丸组织块中Bcl2、BaxCaspase3相对表达量,说明高温处理可能还未达到使睾丸细胞显著凋亡的程度。
自噬,又称为Ⅱ型程序性细胞死亡,是去除受损细胞器和蛋白质聚集体的过程[40],受多种自噬相关基因(Atg)和蛋白质的调控[41]。beclin1是一种自噬起始因子,可触发包括Atg在内的相关蛋白质以促进自噬体形成[42]。当自噬被激活时,LC3被切割成蛋白水解衍生的LC3-Ⅱ。作为自噬的标记物,p62可通过与LC3结合,将特定的细胞器和蛋白质聚集体递送到自噬体进行降解[43]。睾丸热应激不仅会诱导细胞凋亡,而且还会诱导生殖细胞自噬[44]。在本试验中,检测到热处理后睾丸组织LC3、Atg3和Atg7相对表达量显著提高,p62相对表达量显著降低,表明自噬活性增强。而在RA处理后,睾丸组织LC3和Atg7相对表达量显著下调,p62相对表达量显著上调,表明RA可能通过干预高温引起的自噬,进而降低睾丸细胞自噬水平。

3.5 RA对热处理公猪睾丸组织血睾屏障和精子发生相关基因表达的影响

除了生殖细胞会受到高温的影响外,睾丸体细胞比如支持细胞,也会受影响。睾丸支持细胞有支持生殖细胞及形成血睾屏障等功能[29],血睾屏障中特异性紧密连接蛋白较为丰富,包括ZO-1、occludin和封闭蛋白(claudin)家族的某些成员[45]。Cx43是一种形成血睾屏障的缝隙连接标志物,大鼠阴囊热处理后,其睾丸组织中紧密连接蛋白表达较对照组显著降低[46]。本试验中,与CON组相比,HT组睾丸组织Cx43相对表达量显著提高;与HT组相比,HT+RA组睾丸组织Cx43相对表达量显著降低,提示RA可能通过调节紧密连接相关蛋白的表达,一定程度上缓解了热处理诱导的血睾屏障损伤过程。
阴囊温度升高会影响精子发生,导致隐睾大鼠Stra8、Sycp3、C-kitPLZF基因和蛋白表达均显著降低,而RA处理后上述指标显著提高,且与对照组相比无显著差异,表明RA能促进隐睾大鼠精子发生[47]Stra8作为RA的靶基因,参与减数分裂启动[48],Dmc1和Sycp3在减数分裂过程中特异性表达,可作为减数分裂的标志物[49]。本试验中,与CON组相比,HT组公猪睾丸组织Stra8和Dmc1相对表达量显著降低;而与HT组相比,HT+RA组睾丸组织Stra8和Dmc1相对表达量提高,表明热处理影响了减数分裂的启动,而RA可能通过调控减数分裂相关基因表达,进而改善精子生成。

4 结论

综上所述,本试验通过体内试验发现RA能改善夏季高温期公猪精子畸形率和精清抗氧化性能,通过体外试验发现RA能改善热处理睾丸组织形态,这可能是通过提升睾丸抗氧化性能、降低细胞自噬以及维护血睾屏障完整和正常精子发生实现的。
[1]
CIERESZKO A, OTTOBRE J S, GLOGOWSKI J. Effects of season and breed on sperm acrosin activity and semen quality of boars[J]. Animal Reproduction Science, 2000, 64(1/2):89-96.

DOI

[2]
SMITAL J. Effects influencing boar semen[J]. Animal Reproduction Science, 2009, 110(3/4):335-346.

DOI

[3]
ZHU B, WALKER S K, OAKEY H, et al. Effect of paternal heat stress on the development in vitro of preimplantation embryos in the mouse[J]. Andrologia, 2004, 36(6):384-394.

DOI

[4]
MURASE T, IMAEDA N, YAMADA H, et al. Seasonal changes in semen characteristics,composition of seminal plasma and frequency of acrosome reaction induced by calcium and calcium ionophore A23187 in Large White boars[J]. Journal of Reproduction and Development, 2007, 53(4):853-865.

DOI

[5]
CHEN Y, MA L, HOGARTH C, et al. Retinoid signaling controls spermatogonial differentiation by regulating expression of replication-dependent core histone genes[J]. Development, 2016, 143(9):1502-1511.

DOI PMID

[6]
CHEN Y L, REESE D H. Disruption of retinol (vitamin A) signaling by phthalate esters:SAR and mechanism studies[J]. PLoS One, 2016, 11(8):e0161167.

DOI

[7]
LORD T, OATLEY M J, OATLEY J M. Testicular architecture is critical for mediation of retinoic acid responsiveness by undifferentiated spermatogonial subtypes in the mouse[J]. Stem Cell Reports, 2018, 10(2):538-552.

DOI PMID

[8]
VAN PELT A M. DE ROOIJ D G. The origin of the synchronization of the seminiferous epithelium in vitamin A-deficient rats after vitamin A replacement[J]. Biology of Reproduction, 1990, 42(4):677-682.

PMID

[9]
MALIVINDI R, RAGO V, DE ROSE D, et al. Influence of all-trans retinoic acid on sperm metabolism and oxidative stress:its involvement in the physiopathology of varicocele-associated male infertility[J]. Journal of Cellular Physiology, 2018, 233(12):9526-9537.

DOI

[10]
REDA A, ALBALUSHI H, MONTALVO S C, et al. Knock-out serum replacement and melatonin effects on germ cell differentiation in murine testicular explant cultures[J]. Annals of Biomedical Engineering, 2017, 45(7):1783-1794.

DOI PMID

[11]
SKURIKHIN E G, PAKHOMOVA A V, PERSHINA O V, et al. Role of Sertoli and Leydig cells in the regulation of spermatogonial stem cell and development of reproductive disorders in male C57Bl/6 mice with type 1 diabetes mellitus[J]. Bulletin of Experimental Biology and Medicine, 2017, 164(2):127-131.

DOI PMID

[12]
DIAO R Y, CAI X Y, LIU L, et al. In vitro chemokine (C-C motif) receptor 6-dependent non-inflammatory chemotaxis during spermatogenesis[J]. Biological Research, 2018, 51(1):12.

DOI

[13]
GARCÍA-ISPIERTO I, LÓPEZ-GATIUS F, BECH-SABAT G, et al. Climate factors affecting conception rate of high producing dairy cows in northeastern Spain[J]. Theriogenology, 2007, 67(8):1379-1385.

DOI

[14]
CAO M B, ZONG C, WANG X S, et al. Modeling of heat stress in sows-part 1:establishment of the prediction model for the equivalent temperature index of the sows[J]. Animals, 2021, 11(5):1472.

DOI

[15]
LI Y S, WANG A H, TAYA K Z Y I, et al. Declining semen quality and steadying seminal plasma ions in heat-stressed boar model[J]. Reproductive Medicine and Biology, 2015, 14(4):171-177.

DOI PMID

[16]
高小燕, 孙燕, 王鲜忠, 等. 仔猪睾丸组织体外培养方法的建立[J]. 中国兽医科学, 2007, 37(7):623-626.

GAO X Y, SUN Y, WANG X Z, et al. Establishment of culturing method for piglet testis tissue in vitro[J]. Chinese Veterinary Science, 2007, 37(7):623-626. (in Chinese)

[17]
李照见. 高温导致猪和鼠睾酮合成紊乱与睾丸组织损伤的作用机制研究[D].博士学位论文. 南京: 南京农业大学, 2021:33-35.

LI Z J. Study on the mechanism of high ambient temperature induced steroidogenic disorder and testicular damage in boar and mouse[D]. Ph.D. Thesis. Nanjing: Nanjing Agricultural University, 2021:33-35. (in Chinese)

[18]
SINHA R, LONE S S, RANJAN A, et al. The impact of climate change on livestock production and reproduction:ameliorative management[J]. International Journal of Livestock Research, 2017, 7(6):1-8.

[19]
BONET S, CASAS I, HOLT W V, et al. Boar reproduction:fundamentals and new biotechnological trends[M]. Berlin:Springer, 2013:109-110.

[20]
VITALI A, SEGNALINI M, BERTOCCHI L, et al. Seasonal pattern of mortality and relationships between mortality and temperature-humidity index in dairy cows[J]. Journal of Dairy Science, 2009, 92(8):3781-3790.

DOI PMID

[21]
BANKS S, KING S A, IRVINE D S, et al. Impact of a mild scrotal heat stress on DNA integrity in murine spermatozoa[J]. Reproduction, 2005, 129(4):505-514.

DOI PMID

[22]
SENGER P L. Pathways to pregnancy and parturition[M]. 2nd Revised Edition. Pullman: Current Conceptions, Inc., 2003.

[23]
RASOOLI A, JALALI M T, NOURI M, et al. Effects of chronic heat stress on testicular structures,serum testosterone and cortisol concentrations in developing lambs[J]. Animal Reproduction Science, 2010, 117(1/2):55-59.

DOI

[24]
SETCHELL B P, PLÖEN L, RITZEN E M. Effect of local heating of rat testes after suppression of spermatogenesis by pretreatment with a GnRH agonist and an anti-androgen[J]. Reproduction, 2002, 124(1):133-140.

PMID

[25]
KENNEDY B W, WILKINS J N. Boar,breed and environmental factors influencing semen characteristics of boars used in artificial insemination[J]. Canadian Journal of Animal Science, 1984, 64(4):833-843.

DOI

[26]
CHEN J Q, LI Y S, LI Z J, et al. Dietary L-arginine supplementation improves semen quality and libido of boars under high ambient temperature[J]. Animal, 2018, 12(8):1611-1620.

DOI

[27]
SETCHELL B P. The parkes lecture.Heat and the testis[J]. Journal of Reproduction and Fertility, 1998, 114(2):179-194.

DOI

[28]
EISENBERG-LERNER A, BIALIK S, SIMON H U, et al. Life and death partners:apoptosis,autophagy and the cross-talk between them[J]. Cell Death & Differentiation, 2009, 16(7):966-975.

[29]
KIM B, PARK K, RHEE K. Heat stress response of male germ cells[J]. Cellular and Molecular Life Sciences, 2013, 70(15):2623-2636.

DOI PMID

[30]
PAUL C, TENG S, SAUNDERS P T K. A single,mild,transient scrotal heat stress causes hypoxia and oxidative stress in mouse testes,which induces germ cell death[J]. Biology of Reproduction, 2009, 80(5):913-919.

DOI

[31]
TURNER T T, BOMGARDNER D, JACOBS J P, et al. Association of segmentation of the epididymal interstitium with segmented tubule function in rats and mice[J]. Reproduction, 2003, 125(6):871-878.

DOI PMID

[32]
SHIRAISHI K. Heat and oxidative stress in the germ line[M]// AGARWALA, AITKENR J, ALVAREZJ G. Studies on men’s health and fertility. Totowa: Humana Press, 2012:149-178.

[33]
AGARWAL A, HAMADA A, ESTEVES S C. Insight into oxidative stress in varicocele-associated male infertility:part 1[J]. Nature Reviews Urology, 2012, 9(12):678-690.

DOI

[34]
陈佳钦. 日粮添加精氨酸对夏季高温时期种公猪繁殖性能的影响[D].硕士学位论文. 南京: 南京农业大学, 2018:35-36.

CHEN J Q. Effects of L-arginine on reproductive performance of boars during high temperature in summer[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2018:35-36. (in Chinese)

[35]
YAMAMOTO T, SUZUKI T, KOBAYASHI A, et al. Physiological significance of reactive cysteine residues of Keap1 in determining Nrf2 activity[J]. Molecular and Cellular Biology, 2008, 28(8):2758-2770.

DOI PMID

[36]
SAHIN K. Modulation of NF-κB and Nrf2 pathways by lycopene supplementation in heat-stressed poultry[J]. World’s Poultry Science Journal, 2015, 71(2):271-284.

DOI

[37]
MEISTER A. Glutathione metabolism and its selective modification[J]. Journal of Biological Chemistry, 1988, 263(33):17205-17208.

PMID

[38]
PAASCH U, GRUNEWALD S, FITZL G, et al. Deterioration of plasma membrane is associated with activated caspases in human spermatozoa[J]. Journal of Andrology, 2003, 24(2):246-252.

PMID

[39]
FAN X R, XI H M, ZHANG Z, et al. Germ cell apoptosis and expression of Bcl-2 and Bax in porcine testis under normal and heat stress conditions[J]. Acta Histochemica, 2017, 119(3):198-204.

DOI PMID

[40]
RAVANAN P, SRIKUMAR I F, TALWAR P. Autophagy:the spotlight for cellular stress responses[J]. Life Sciences, 2017, 188:53-67.

DOI

[41]
WESSELBORG S, STORK B. Autophagy signal transduction by ATG proteins:from hierarchies to networks[J]. Cellular and Molecular Life Sciences, 2015, 72(24):4721-4757.

DOI

[42]
SUN Y X, CAI Y, ZANG Q S. Cardiac autophagy in sepsis[J]. Cells, 2019, 8(2):141.

DOI

[43]
KANG R, LIVESEY K M, ZEH H J Ⅲ, et al. HMGB1 as an autophagy sensor in oxidative stress[J]. Autophagy, 2011, 7(8):904-906.

PMID

[44]
OBERLEY T D, SWANLUND J M, ZHANG H J, et al. Aging results in increased autophagy of mitochondria and protein nitration in rat hepatocytes following heat stress[J]. Journal of Histochemistry & Cytochemistry, 2008, 56(6):615-627.

DOI

[45]
SINGH A P, CUMMINGS C A, MISHINA Y, et al. SOX8 regulates permeability of the blood-testes barrier that affects adult male fertility in the mouse[J]. Biology of Reproduction, 2013, 88(5):133.

DOI PMID

[46]
胡素芹, 胡珂, 刘殿龙, 等. 急性热应激对睾丸免疫微环境相关蛋白的影响[J]. 中国免疫学杂志, 2022, 38(5):521-524,530.

HU S Q, HU K, LIU D L, et al. Effects of acute heat stress on related proteins of testicular immune microenvironment[J]. Chinese Journal of Immunology, 2022, 38(5):521-524,530. (in Chinese)

[47]
彭金普. 视黄酸促隐睾大鼠生精功能修复的作用及机制研究[D].博士学位论文. 重庆: 重庆医科大学, 2016:66-68.

PENG J P. Retinoic acid enhances recorvery of spermatogenesis in cryptorchidism rats model[D]. Ph.D. Thesis. Chongqing: Chongqing Medical University, 2016:66-68. (in Chinese)

[48]
ANDERSON E L, BALTUS A E, ROEPERS-GAJADIEN H L, et al. Stra8 and its inducer,retinoic acid,regulate meiotic initiation in both spermatogenesis and oogenesis in mice[J]. Proceedings of the National Academy of Sciences, 2008, 105(39):14976-14980.

DOI

[49]
WOLGEMUTH D J. Insights into regulation of the mammalian cell cycle from studies on spermatogenesis using genetic approaches in animal models[J]. Cytogenetic and Genome Research, 2003, 103(3/4):256-266.

DOI

Outlines

/