RESEARCH PAPER

Effects of Transcription Factor GATA Binding Protein 2 on Urea Transporters-B Gene Promoter in Rumen Epithelial Cells of Dairy Cows

  • ZHANG Chuankai ,
  • LIU Yifan ,
  • HE Liukuan ,
  • ZHANG Liyang ,
  • FU Tong ,
  • GAO Tengyun ,
  • LIAN Hongxia , **
Expand
  • International Joint Laboratory of Nutrition Regulation and Ecological Raising of Domestic Animal, College of Animal Science, Henan Agricultural University, Zhengzhou 450046, China
**associate professor, E-mail:

*Contributed equally

Received date: 2023-02-06

  Online published: 2023-08-10

Abstract

The purpose of this study was to explore the effects of transcription factor GATA binding protein 2 (GATA2) on urea transporters-B (UT-B) gene promoter in bovine rumen epithelial cells. Firstly, the promoter vector of UT-B gene and GATA2 eukaryotic expression vector were constructed, and they were co-transfected into the rumen epithelial cells of dairy cows. The regulatory effects of GATA2 overexpression on the transcriptional activity of UT-B promoter was studied by luciferase reporter gene. The real-time quantitative fluorescent PCR (qRT-PCR) was performed under different concentrations (0.5, 1.0 and 1.5 mmol/L) of urea to detect the expression levels of nitrogen transport-related genes of UT-B, GATA2 and aquaporin-3 (AQP3), and Western blotto detect their protein expression levels. The results showed as follows: 1) 1.0 mmol/L urea significantly increased the genes and protein expression levels of UT-B, GATA2 and AQP3 in rumen epithelial cells of dairy cows cultured in vitro (P<0.05). 2) In the rumen epithelial cells of dairy cows, GATA2 significantly upregulated the activities of the UT-B-1 and UT-B-2 gene promoters (P<0.05). In conclusion, the GATA 2 affects the transcriptional changes of nitrogen transport-related genes (AQP3 and UT-B) and regulates the promoter of UT-B gene, which is of great significance for exploring the mechanism of ruminal nitrogen recycling and enriching the theory of nitrogen nutrition of dairy cows.

Cite this article

ZHANG Chuankai , LIU Yifan , HE Liukuan , ZHANG Liyang , FU Tong , GAO Tengyun , LIAN Hongxia . Effects of Transcription Factor GATA Binding Protein 2 on Urea Transporters-B Gene Promoter in Rumen Epithelial Cells of Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2023 , 35(8) : 5349 -5358 . DOI: 10.12418/CJAN2023.493

哺乳动物尿素转运因子(urea transporters,UTs)是高选择性快速通透尿素的膜通道蛋白分子,介导尿素顺浓度梯度的跨膜转运。UTs对于尿素氮进入瘤胃的再循环过程起着关键的调控作用[1]。近年来,UTs的研究主要集中在肾脏,其在尿液浓缩中的关键作用已被探明[2-4],UTs由UT-A(SLC14A2)基因和UT-B(SLC14A1)基因编码,UT-A主要分布于肾脏,而UT-B广泛分布于肾脏、胃肠道、心脏等组织[5],在牛瘤胃中表达的UT-B对于进入到瘤胃的尿素氮起关键调控作用。UT-B介导的牛瘤胃中尿素氮的转运构成了牛尿素氮再循环过程的重要机制,对于维持其氮平衡至关重要[6]
UT-B介导的经上皮细胞的尿素转运是经刺激后产生的,且不受已知UT-A调控因子的影响[7]。目前,关于反刍动物UT-B调控因子的研究认为,饲粮氮水平及瘤胃因子[如挥发性脂肪酸(volatile fatty acid,VFA)、氨态氮(NH3-N)等]调控反刍动物瘤胃尿素氮转运。也有研究表明,低饲粮氮水平条件下,再循环至瘤胃的尿素氮含量显著增加[8]。探明氮再循环过程中尿素转运的调控机制将促进不同饲粮和生理条件下反刍动物的氮利用研究[9]。但因畜种、研究条件等不同,研究结果并不一致,由于尿素氮再循环对于氮的再利用起关键作用,亟待阐明瘤胃因子对于反刍动物尿素氮再循环的调控机制[10]
据此,假设奶牛瘤胃上皮细胞UT-B基因启动子区存在上游转录调控因子,从而调控转录。本试验通过构建不同长度的缺失牛UT-B 5’部分侧翼序列的荧光素酶报告基因表达载体,在奶牛瘤胃上皮细胞内研究转录因子GATA结合蛋白2(GATA2)对UT-B基因启动子区域的调控作用;采用实时荧光定量PCR(qRT-PCR)测定尿素作用前后奶牛瘤胃上皮细胞中潜在的转录因子的表达;从而阐明奶牛瘤胃UT-B基因的启动机制,对探明奶牛瘤胃氮再循环启动的机制、丰富反刍动物氮素营养的基础理论内容具有重要意义,以期为奶牛生产中低氮饲粮应用、降低氮排放提供理论依据。

1 材料与方法

1.1 启动子载体构建及活性检测

1.1.1 启动子载体构建

根据GenBank中公布的UT-B序列(AY838799.1),利用JASPAR数据库[11]对奶牛UT-B启动子的核酸片段进行生物学信息分析,分别设计3对启动子缺失片段序列引物,引物信息见表1。在引物的两端加上XhoⅠ和HindⅢ的酶切位点。采集成年荷斯坦奶牛瘤胃上皮组织,利用动物基因组DNA小量制备试剂盒(G1N70-1KT,美国Sigma公司)提取基因组DNA并定量,随后进行PCR反应,PCR产物电泳后割取目的条带用凝胶回收试剂盒纯化(NA1111,美国Sigma公司),纯化后PCR产物进行吸光度(OD)质检并定量;将目的片段和PGL3-basic载体双酶切后进行连接反应,将连接产物转化至感受态细菌,用菌检PCR方法检测,挑取阳性克隆PGL3-basic测序验证。测序正确的菌液放大培养,利用Axygen质粒抽提试剂盒和方法抽提质粒,抽提的质粒进行OD测定[12]
表1 引物信息

Table 1 Primer information

基因
Genes
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
尿素转运因子-B-1
UT-B-1
F:CCGCTCGAGATTCCTTTCACTCCTATGCCAG-
R:GGGAAGCTTCTAAACCTGTGATGAGAAACAGA
2 173
尿素转运因子-B-2
UT-B-2
F:CCGCTCGAGTTCTGCCCATTAGTTGCTTTTC
R:GGGAAGCTTCTAAACCTGTGATGAGAAACAGA
1 546
尿素转运因子-B-3
UT-B-3
F:CCGCTCGAGTTTACCCAAATCACAGGCTTCT
R:GGGAAGCTTCTAAACCTGTGATGAGAAACAGA
478

下划线表示酶切位点。

The underline represents the enzyme cleavage site.

1.1.2 启动子载体活性检测

在二氧化碳(CO2)培养箱中用DMEM+10%胎牛血清(fetal bovine serum,FBS)培养基按常规培养293细胞,维持良好生长状态。在转染前1天接种6孔板,每孔细胞量约5×10⁵个,培养过夜。待细胞融合度达90%以上时,按Lipofectamine 2000转染试剂盒(11668030,美国Invitrogen公司)说明将构建的启动子载体进行转染,同时设立空质粒转染载体作为对照。转染过夜后换液,并继续培养36 h。将细胞用磷酸盐缓冲液(phosphate buffer solution,PBS)洗2遍,最后在荧光显微镜下观察空质粒转染载体及UT-B启动子载体表达活性。

1.2 瘤胃上皮细胞原代培养

奶牛瘤胃上皮细胞原代分离培养方法按照本实验室前期建立的方法[13],在无菌条件下,取出新生荷斯坦奶牛瘤胃组织,用剪刀剪开瘤胃并将其胃内层外置,然后用75%乙醇浸泡瘤胃组织10 min,最后用含双抗的Hank’s缓冲液轻轻清洗瘤胃组织5次,重复3遍;用剪刀轻轻剪下瘤胃内层组织,将其剪成1 mm3大小,在37 ℃、5% CO2培养箱中,用50 mL离心管和0.5%链霉蛋白酶E+0.5%胶原酶Ⅱ消化被剪碎瘤胃内层组织1.5 h左右,消化期间摇动离心管数次,以利用于组织充分消化;在显微镜下看到细胞脱落后,用100目细胞筛过滤消化液,将过滤后消化液放置于离心管中吹打数次,之后200×g离心10 min获取细胞沉淀;将获得的细胞沉淀用完全培养液重悬并接种于I型鼠尾胶原包培养瓶中,置于37 ℃、5% CO2细胞培养箱中培养;24 h后换用新鲜完全培养基继续培养。

1.3 不同浓度尿素对奶牛瘤胃上皮细胞氮转运相关基因及蛋白表达的影响

1.3.1 细胞培养试验

当细胞融合度为70%~80%时,利用PBS溶解尿素(U5378,纯度98%,美国Sigma公司),并稀释成4种不同浓度的处理液,添加到培养基中处理细胞24 h,具体细胞培养试验设计见表2。每组3个重复,提取处理后的细胞中RNA和蛋白,用于后续试验。
表2 细胞培养试验设计

Table 2 Experiment design of cell culture mmol/L

项目
Item
组别Groups
对照CK
添加量Addition 0 0.5 1.0 1.5

1.3.2 qRT-PCR检测

将细胞培养液吸出后,用PBS洗细胞2次,加入1 mL TRIzol室温裂解细胞5 min,用移液器均匀吹下细胞并置于EP管中,上下轻柔颠倒10次,室温静置10 min。使用RNA提取试剂盒提取瘤胃上皮细胞总RNA,根据第一链cDNA合成试剂盒(天根生物技术工程有限公司)说明书将RNA反转录成cDNA。以甘油醛-3-磷酸脱氢酶(GAPDH)基因为内参,采用SYBR Green相对定量法进行相对定量分析,实时定量反应体系为:12.5 μL SuperMix,上、下游引物各0.5 μL,Passive Reference Dye 0.5 μL,cDNA 2 μL,ddH2O 9 μL。反应条件:95 ℃ 2 min、95 ℃ 20 s、56 ℃ 20 s、72 ℃ 20 s、72 ℃ 5 min、95 ℃ 15 s、60 ℃ 15 s、60~95 ℃ 20 min、95 ℃ 15 s,40个循环。引物序列见表3[14-15]
表3 引物序列

Table 3 Primer sequences

基因
Genes
登录号
Accession No.
引物序列
Primer sequences (5’—3’)
产物大小
Product size/bp
甘油醛-3-磷酸脱氢酶
GAPDH
AB098934 F:GTCGGAGTGAACGGATTTGG
R:CAATGTCCACTTTGCCAGAGTTAA
76
尿素转运因子-B
UT-B
NM_001008666 F:TATGTCCATGACGTGTCCAGTCT
R:GCAGGTCCCATTTGCTCAAC
65
水通道蛋白3
AQP3
NM_001079794 F:CGCGAGCCCTGGATCA
R:CCCAGATCGCATCGTAATACAA
103
GATA结合蛋白2
GATA2
NM_001192114 F:GCCCTTGCTGTGGAACAAAG
R:AGTTACTTCCGGCTGTGGTG
310

1.3.3 Western blot试验

配制细胞裂解液:每15 mL基础裂解液中加入1片蛋白酶抑制剂(5892970001,美国Sigma公司)并混匀。取原代培养的奶牛瘤胃上皮细胞,以细胞裂解液裂解后提取总蛋白,检测浓度及纯度。进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)(12%分离胶,5%浓缩胶),100 V转膜45 min,放入5%脱脂奶粉+TBST缓冲液(PPB002,美国Sigma公司)室温封闭1 h,加入一抗杂交:水通道蛋白3(AQP3)(1∶500)、UT-B(1∶500)、GATA2(1∶500)、GAPDH(1∶2 000),4 ℃孵育过夜后加入二抗杂交:山羊抗兔二抗(1∶2 000)、兔抗山羊二抗(1∶2 000)、山羊抗小鼠二抗(1∶5 000),室温孵育1 h,显影、定影,半定量分析各蛋白表达量。

1.4 GATA2对UT-B启动子的作用

根据牛的GATA2(GenBank登录号:NM_001192114)基因序列,进行全基因合成。与T载体(PCDNA3.1)连接转化、测序验证载体PCDNA 3.1-GATA2,将PCDNA3.1-GATA2分别与不同缺失片段的UT-B基因启动子载体共转染奶牛瘤胃上皮细胞,对照组转染空白载体PCDNA3.1-NC,继续培养、裂解并收集细胞,共转染试验设计见表4。使用荧光素酶报告基因活性检测试剂盒(RG027,碧云天生物技术有限公司)检测荧光活性:每个样品取100 μL裂解液,加100 μL萤火虫荧光素酶检测试剂,记录相对光单位(relative light unit,RLU)值;再加100 μL海肾荧光素酶检测工作液,记录第2个RLU值。最后计算萤火虫荧光酶素RLU和海肾荧光素酶素RLU比值;计算3个平行样的RLU比值[16]
表4 共转染试验设计

Table 4 Experimental design of cotransfection

项目
Item
组别Groups
质粒
Plasmid
UTB-1+PCDNA
3.1-GATA2
UTB-1+PCDNA
3.1-NC
UTB-2+PCDNA
3.1-GATA2
UTB-2+PCDNA
3.1-NC
UTB-3+PCDNA
3.1-GATA2
UTB-3+PCDNA
3.1-NC

1.5 数据统计分析

采用Excel 2019建立数据库,采用SPSS 17.0软件对数据进行单因素方差分析(one-way ANOVA)。方差分析采用一般线性模型,显著性检验采用LSD法,以P<0.05作为差异显著判断标准,数据以平均值±标准误表示。

2 结果

2.1 奶牛瘤胃上皮细胞UT-B核心启动子区域的确定

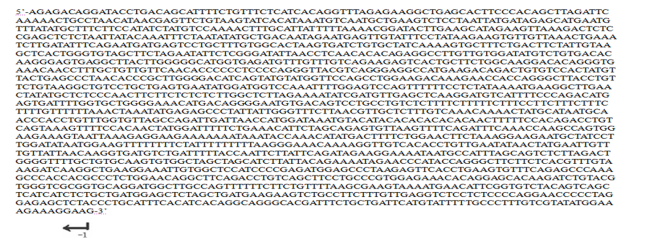
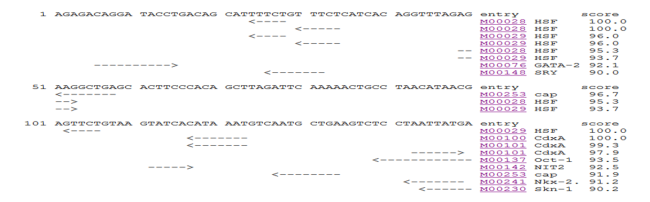
根据GenBank中公布的UT-B序列(AY838799.1),利用生物信息学方法对奶牛UT-B启动子的核酸片段进行了生物学信息分析,初步确定潜在的转录因子结合位点,如GATA2及热休克转录因子(heat shock factor,HSF)等(图1图2)。
图1 牛UT-B基因转录起始位点前2 kb正义链序列

Fig.1 Sense strand sequence of 2 kb before transcription start site of UT-B gene of cattle

图2 牛UT-B 5’侧翼2 kb区潜在转录因子结合位点预测

HSF:热休克转录因子 heat shock factor;GATA-2:GATA2结合蛋白2 GATA binding protein 2;SRY:性别决定基因 sex determination region of Y chromosome;Cap:加帽蛋白 capping protein;CdxA:尾侧型同源盒基因A caudal type homeobox A;Oct-1:有机阳离子转运蛋白1 organic cation transporter 1;NIT2g:腈水解酶2 nitrilase family member 2;Nkx-2:NK型同源盒2 NK2 homeobox;Skn-1:protein skinhead-1。

Fig.2 Potential transcription factor binding site in 2 kb region of UT-B 5’-flanking region

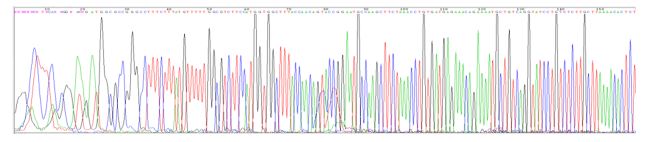
从奶牛的瘤胃上皮组织中提取基因组DNA,根据GenBank中公布的UT-B序列(AY838799.1)分别设计3段引物,在引物的两端加上XhoⅠ和HindⅢ的酶切位点,以DNA为模板扩增包含不同区域的UT-B启动子序列,分别采用XhoⅠ和HindⅢ进行双酶切,克隆进入PGL3-basic荧光素酶报告基因载体,测序验证重组序列正确(图3),获得正确的载体:UT-B-1、UT-B-2和UT-B-3。
图3 部分UT-B-1基因测序结果

Fig.3 Partial sequencing result of UT-B-1 gene

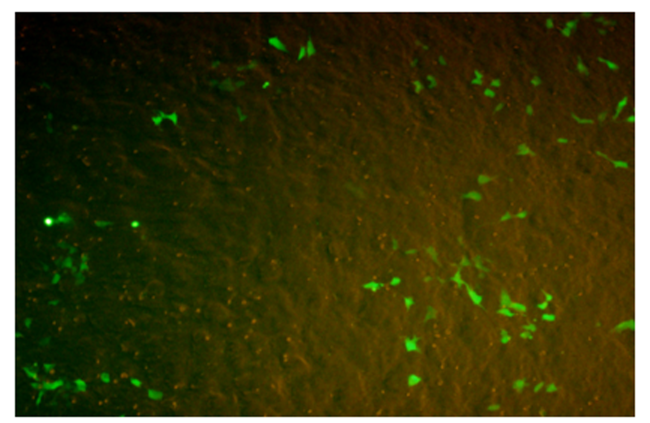
在荧光显微镜下观察空质粒转染载体及UT-B启动子载体(图4图5),可见构建的质粒转染效果较好,转染效率较高,可用于后续试验。
图4 空质粒转染载体图

Fig.4 Figure of empty plasmid vector

图5 UT-B启动子载体图

Fig.5 Figure of UT-B promoter vector

2.2 奶牛瘤胃上皮细胞原代培养结果

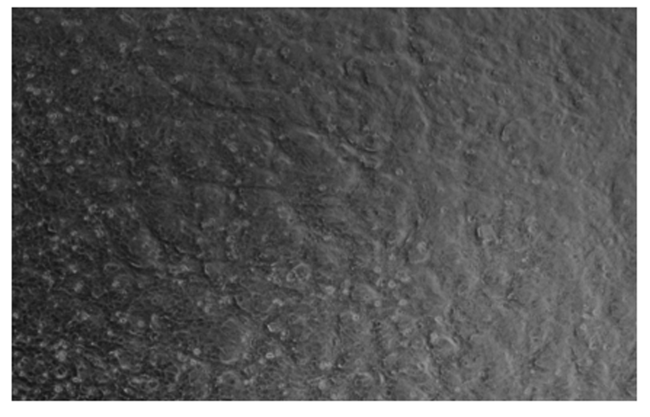
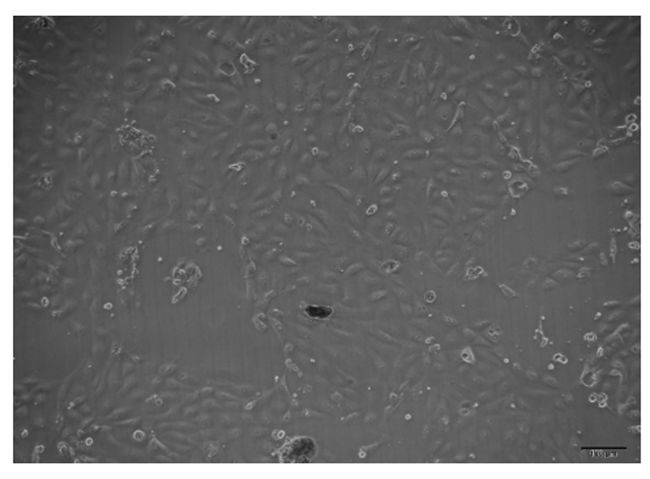
成功分离了奶牛瘤胃上皮细胞(图6),可用于后续试验。
图6 奶牛瘤胃上皮细胞96 h光镜图

Fig.6 Optical mirror diagram of rumen epithelial cells of dairy cow at 96 h (100×)

2.3 尿素对奶牛瘤胃上皮细胞UT-BGATA2及AQP3基因表达量的影响

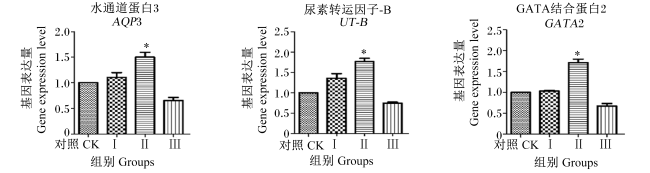
尿素对奶牛瘤胃上皮细胞UT-BGATA2及AQP3基因表达量的影响见图7,随着尿素浓度的增高,UT-BGATA2及AQP3基因表达量均出现先升后降的趋势,Ⅱ组UT-BGATA2及AQP3基因表达量显著高于CK组(P<0.05)。以上结果表明,在本试验条件下,1.0 mmol/L尿素可显著提高体外培养条件下奶牛瘤胃上皮细胞UT-BGATA2及AQP3基因表达量。
图7 尿素对奶牛瘤胃上皮细胞UT-BGATA2及AQP3基因表达量的影响

数据柱标*表示与对照组相比差异显著(P<0.05)。图8同。

Fig.7 Effects of urea on gene expression levels of UT-B, GATA2 and AQP3 in rumen epithelial cells of dairy cow

Value columns with mean significant difference compared with the control group (P<0.05). The same as Fig.8.

2.4 尿素对奶牛瘤胃上皮细胞UT-B、GATA2及AQP3蛋白表达量的影响
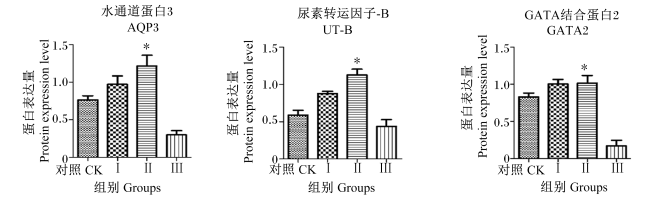
尿素对奶牛瘤胃上皮细胞UT-B、GATA2及AQP3蛋白表达量的影响见图8,随着尿素浓度的增高,UT-B、GATA2及AQP3蛋白表达量均出现先升后降的趋势,Ⅱ组UT-B、GATA2及AQP3蛋白表达量显著高于CK组(P<0.05)。以上结果表明,在本试验条件下,1.0 mmol/L尿素可显著提高体外培养条件下奶牛瘤胃上皮细胞的UT-B、GATA2及AQP3蛋白表达量。
图8 尿素对奶牛瘤胃上皮细胞UT-B、GATA2及AQP3蛋白表达量的影响

Fig.8 Effects of urea on protein expression levels of UT-B, GATA2 and AQP3 in rumen epithelial cells of dairy cow

2.5 GATA2转录因子对UT-B启动子的作用

2.5.1 GATA2载体测序
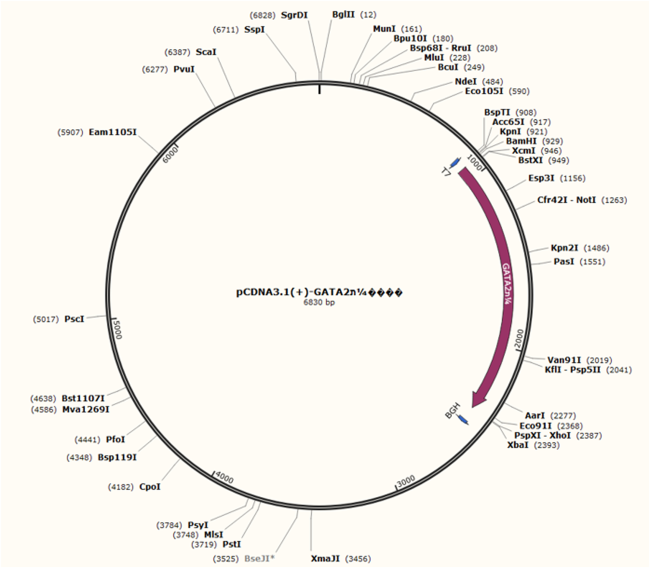
全基因合成牛GATA2基因(1 464 bp),与骨架载体(PCDNA3.1)连接、测序验证获得正确的载体PCDNA3.1-GATA2(图9图10),可用于后续试验。
图9 PCDNA3.1-GATA2载体图

Fig.9 Figure of PCDNA3.1-GATA2 vector

图10 部分PCDNA3.1-GATA2测序结果

Fig.10 Ppartial sequencing result of PCDNA3.1-GATA2

2.5.2 GATA2对UT-B启动子的作用

GATA2对UT-B启动子的影响见表5,从荧光素酶结果上纵向比较,启动子越长萤火虫荧光素酶/海肾荧光素酶比值(F/R ratio)越高,横向UT-B-1、UT-B-2启动子活性显著升高(P<0.05),说明GATA2的转录因子对UT-B启动子一号和二号区域存在调控作用。
表5 GATA2真核表达载体对不同缺失片段UT-B启动子载体的影响

Table 5 Effects of GATA2 eukaryotic expression vector on UT-B promoter vector of different deletion fragments

项目
Items
有GATA2 With GATA2 无GATA2 Without GATA2 P
P-value
萤火虫荧
光素酶
FLuc
海肾荧
光素酶
Rluc
萤火虫荧光素
酶/海肾荧光
素酶比值
F/R Ratio
萤火虫荧
光素酶
FLuc
海肾荧
光素酶
Rluc
萤火虫荧光素
酶/海肾荧光
素酶比值
F/R Ratio
尿素转运因子-B-1
UT-B-1
13 827 39 118 0.35 11 310 33 921 0.33 0.020
尿素转运因子-B-2
UT-B-2
12 603 41 482 0.30 11 369 44 836 0.25 0.038
尿素转运因子-B-3
UT-B-3
13 637 48 121 0.28 10 976 40 830 0.27 0.423

3 讨论

周建伟[17]通过给藏羊饲喂低氮饲粮,结果显示,其肝脏产生的尿素有88%可重新循环进入消化道,从而为微生物蛋白质合成提供氮源,以保证反刍动物氮代谢正常进行。尿素因为极性较高,其本身很难通过磷脂膜,因此借助膜通道蛋白才能被转运。研究报道,尿素循环进入消化道不仅依靠UTs的介导,水通道蛋白(AQP)也发挥重要作用[18-19]。Røjen等[20]研究表明,AQP3、AQP7、AQP9、AQP10在牛的瘤胃上皮细胞均有所表达,基因和蛋白表达量受饲粮氮水平的影响。Stewart等[21]推测AQP蛋白可能也参与瘤胃上皮尿素的转运。Walpole等[19]通过饲喂荷斯坦犊牛可发酵饲粮,结果表明,AQP抑制剂氯化镍(NiCl2)可以显著抑制瘤胃上皮的尿素流量,且多个AQP基因在瘤胃上皮都有表达,这表明犊牛瘤胃上皮细胞能够通过调控UTBAQP3基因,从而影响由浆膜到肌膜的尿素转运。前人研究表明,在小鼠饲粮中添加300 μmol/kg尿素,结果表明AQP3和UT-B基因表达量显著增加,其中UT-B介导的尿素转运比例高于AQP3[22]。本试验中,培养液中添加1.0 mmol/L尿素能够显著提高体外培养条件下奶牛瘤胃上皮细胞的UTBGATA2及AQP3基因和蛋白表达量,结果与前人研究一致。
转录因子是一类细胞核蛋白,通常将能与转录因子结合的DNA片段被称为转录因子结合位点,转录因子可以与启动子的调控位点结合或者是与DNA共价结合来调控转录起始,对转录调控有着重要的意义[23]。对于转录因子GATA2的结构,已经有研究分析了一些哺乳类的动物体内的GATA2的生物性能,表明GATA2对有些密码子结合能力很强,只要有这类密码子出现将不考虑率其他密码子[24]。这些为选择适合的表达体系和了解GATA2生物功能提供了重要的理论参考。
已有研究表明,GATA在人脑、肠道等部位均有表达[25-26],参与新型隐球酵母细胞内氮周转与利用的启动调控[27]。GATA2是1种对多种功能基因都可进行调控的转录因子,研究共发现GATA2基因有25种单倍型,其多样性发生率较高,说明GATA2基因在种间和种内会发生较大变异[28]。对于GATA2调控功能基因的研究较多的都是在造血干细胞、胚胎器官、神经系统、泌尿系统、免疫等方面。最近研究表明,在生物体胚胎发育过程中,外胚层和中胚层的发育都与GATA2有着密切的关系。GATA家族在胃肠道生长发育过程中也起到一定的作用[29]。在哺乳动物中,转录因子GATA2对脂肪组织的发育也具有重要的调控作用[30-32],但是对于在瘤胃内调控UT-B基因的研究还鲜有报道,UT-B基因的转录调控机制也尚不清晰。本试验中,首先利用生物学信息分析,预测在UT-B基因启动子区域可能存在GATA2调控区域,进一步进行荧光素酶试验,结果显示,GATA2对UT-B启动子一号和二号区域存在调控作用,但调控机制仍需进一步研究。

4 结论

① 1.0 mmol/L尿素可显著提高体外培养条件下奶牛瘤胃上皮细胞UT-BGATA2及AQP3基因和蛋白表达量。
② 奶牛瘤胃上皮细胞中,GATA2对UT-B基因启动子区域存在调控作用。
[1]
STEWART G S, SMITH C P. Urea nitrogen salvage mechanisms and their relevance to ruminants,non-ruminants and man[J]. Nutrition Research Reviews, 2005, 18(1):49-62.

DOI

[2]
BANKIR L, CHEN K, YANG B X. Lack of UT-B in vasa recta and red blood cells prevents urea-induced improvement of urinary concentrating ability[J]. American Journal of Physiology:Renal Physiology, 2004, 286(1):F144-F151.

DOI

[3]
FENTON R A, CHOU C L, STEWART G S, et al. Urinary concentrating defect in mice with selective deletion of phloretin-sensitive urea transporters in the renal collecting duct[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(19):7469-7474.

PMID

[4]
UCHIDA S, SOHARA E, RAI T, et al. Impaired urea accumulation in the inner medulla of mice lacking the urea transporter UT-A2[J]. Molecular and Cellular Biology, 2005, 25(16):7357-7363.

PMID

[5]
LI X C, CHEN G P, YANG B X. Urea transporter physiology studied in knockout mice[J]. Frontiers in Physiology, 2012, 3:217.

DOI PMID

[6]
SIMMONS N L, CHAUDHRY A S, GRAHAM C, et al. Dietary regulation of ruminal bovine UT-B urea transporter expression and localization[J]. Journal of Animal Science, 2009, 87(10):3288-3299.

DOI PMID

[7]
TICKLE P, THISTLETHWAITE A, SMITH C P, et al. Novel bUT-B2 urea transporter isoform is constitutively activated[J]. American Journal of Physiology:Regulatory, Integrative and Comparative Physiology, 2009, 297(2):R323-R329.

DOI

[8]
DORANALLI K, PENNER G B, MUTSVANGWA T. Feeding oscillating dietary crude protein concentrations increases nitrogen utilization in growing lambs and this response is partly attributable to increased urea transfer to the rumen[J]. The Journal of Nutrition, 2011, 141(4):560-567.

DOI

[9]
SUNNY N E, OWENS S L, BALDWIN R L 6TH, et al. Salvage of blood urea nitrogen in sheep is highly dependent on plasma urea concentration and the efficiency of capture within the digestive tract[J]. Journal of Animal Science, 2007, 85(4):1006-1013.

PMID

[10]
DORANALLI K. Factors regulating urea-nitrogen recycling in ruminants[D]. Ph.D.Thesis. Saskatoon: University of Saskatchewan, 2010.

[11]
SANDELIN A, ALKEMA W, ENGSTRÖM P, et al. JASPAR:an open-access database for eukaryotic transcription factor binding profiles[J]. Nucleic Acids Research, 2004, 32(Database Issue):D91-D94.

DOI

[12]
刘芳. 转录因子GT和GATA对于甘蓝型油菜BnaFAD2基因启动子的作用分析[D].博士学位论文. 长沙: 湖南农业大学, 2019.

LIU F. Analysis of the function of transcription factors GT and GATA on BnaFAD 2 gene promoter in Brassica napus L.[D].Ph.D.Thesis. Changsha: Hunan Agricultural University, 2019. (in Chinese)

[13]
LIAN H X, ZHANG C K, LIU Y F, et al. In vitro gene expression responses of bovine rumen epithelial cells to different pH stresses[J]. Animals, 2022, 12(19):2621.

DOI

[14]
张利环, 贾浩, 王燕飞, 等. 基于转录组测序研究健康三益菌对肉鸡脂质代谢的影响[J]. 畜牧兽医学报, 2022, 53(4):1154-1164.

ZHANG L H, JIA H, WANG Y F, et al. Effects of healthy tribeneficial bacteria on lipid metabolism in broilers based on transcriptome sequencing[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(4):1154-1164. (in Chinese)

[15]
贾金美, 冯建豪, 阳美霞, 等. RFRP-3对猪卵母细胞体外成熟的影响[J]. 畜牧兽医学报, 2022, 53(4):1133-1142.

JIA J M, FENG J H, YANG M X, et al. Effect of RFRP-3 on in vitro maturation of porcine oocytes[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(4):1133-1142. (in Chinese)

[16]
邢海燕, 贾玉娇, 唐克晶, 等. 转录因子GATA-2对iASPP基因的转录调控研究[J]. 中国实验血液学杂志, 2013, 21(3):550-555.

XING H Y, JIA Y J, TANG K J, et al. Effects of transcription factor GATA-2 on transcriptive regulation of iASPP gene[J]. Journal of Experimental Hematology, 2013, 21(3):550-555. (in Chinese)

[17]
周建伟. 藏羊对青藏高原氮素营养胁迫的适应性研究[D].博士学位论文. 兰州: 兰州大学, 2015.

ZHOU J W. The adaptation of Tibetan sheep to the dietary nitrogen stress on the Qinghai-Tibet Plateau[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2015. (in Chinese)

[18]
BANKIR L. Active urea transport in lower vertebrates and mammals[J]. Sub-Cellular Biochemistry, 2014, 73:193-226.

DOI PMID

[19]
WALPOLE M E, SCHURMANN B L, GÓRKA P, et al. Serosal-to-mucosal urea flux across the isolated ruminal epithelium is mediated via urea transporter-B and aquaporins when Holstein calves are abruptly changed to a moderately fermentable diet[J]. Journal of Dairy Science, 2015, 98(2):1204-1213.

DOI PMID

[20]
RØJEN B A, POULSEN S B, THEIL P K, et al. Short communication :effects of dietary nitrogen concentration on messenger RNA expression and protein abundance of urea transporter-B and aquaporins in ruminal papillae from lactating Holstein cows[J]. Journal of Dairy Science, 2011, 94(5):2587-2591.

DOI

[21]
STEWART G S, GRAHAM C, CATTELL S, et al. UT-B is expressed in bovine rumen:potential role in ruminal urea transport[J]. American Journal of Physiology.Regulatory,Integrative and Comparative Physiology, 2005, 289(2):R605-R612.

[22]
ZHAO D, BANKIR L, QIAN L M, et al. Urea and urine concentrating ability in mice lacking AQP1 and AQP3[J]. American Journal of Physiology:Renal Physiology, 2006, 291(2):F429-F438.

DOI

[23]
郭文婕. 鸡转录因子GATA2影响单糖转运蛋白基因GLUT2、GLUT5和SGLT1表达的研究[D].硕士学位论文. 晋中: 山西农业大学, 2015.

GUO W J. Study on influence of the chicken transcription factor GATA2 on monosaccharide transporter gene GLUT2,GLUT5 and SGLT 1 expression[D].Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2015. (in Chinese)

[24]
张天, 李祥龙, 周荣艳, 等. 不同物种GATA-2基因编码区生物信息学分析[J]. 湖北农业科学, 2013, 52(24):6182-6186.

ZHANG T, LI X L, ZHOU R Y, et al. Bioinformatics analysis of coding regions of GATA-2 gene among different species[J]. Hubei Agricultural Sciences, 2013, 52(24):6182-6186. (in Chinese)

[25]
徐令, 陈小, 赖文玉, 等. 转录因子GATA2在TNF-α介导的炎症反应中调节Tie2基因的表达[J]. 中国病理生理杂志, 2010, 26(6):1198-1202.

XU L, CHEN X, LAI W Y, et al. Transcription factor GATA2 regulates the expression of Tie2 gene in TNF-α mediated inflammatory response[J]. Chinese Journal of Pathophysiology, 2010, 26(6):1198-1202. (in Chinese)

[26]
BABA Y, MAEDA K, YASHIRO T, et al. GATA 2 is a critical transactivator for the human IL1RL1/ST2 promoter in mast cells/basophils:opposing roles for GATA2 and GATA1 in human IL1RL1/ST2 gene expression[J]. Journal of Biology Chemistry, 2012, 287(39):32689-32696.

DOI

[27]
LEE I R, LIM J W, ORMEROD K L, et al. Characterization of an Nmr homolog that modulates GATA factor-mediated nitrogen metabolite repression in Cryptococcus neoformans[J]. PLoS One, 2012, 7(3):e32585.

DOI

[28]
OHNEDA K, YAMAMOTO M. Roles of hematopoietic transcription factors GATA-1 and GATA-2 in the development of red blood cell lineage[J]. Acta Haematologica, 2002, 108(4):237-245.

DOI PMID

[29]
MOLKENTIN J D. The zinc finger-containing transcription factors GATA-4,-5,and -6.Ubiquitously expressed regulators of tissue-specific gene expression[J]. Journal of Biological Chemistry, 2000, 275(50):38949-38952.

DOI

[30]
TSAI J, TONG Q, TAN G, et al. The transcription factor GATA2 regulates differentiation of brown adipocytes[J]. EMBO Reports, 2005, 6(9):879-884.

PMID

[31]
TONG Q, DALGIN G, XU H, et al. Function of GATA transcription factors in preadipocyte-adipocyte transition[J]. Science, 2000, 290(5489):134-138.

DOI PMID

[32]
KARAM S, ALEXANDER G, FAROOK V, et al. Characterization of the rabbit gastric epithelial lineage progenitors in short-term culture[J]. Cell and Tissue Research, 2001, 306(1):65-74.

PMID

Outlines

/