REVIEW

Research Progress on Physiological Function of Butyric Acid and Its Application in Ruminants

  • WANG Qiang ,
  • WAN Fachun ,
  • LIU Lei , * ,
  • LIU Hu
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
* associate professor, E-mail:

Received date: 2023-03-17

  Online published: 2023-09-13

Abstract

As the harm caused by the abuse of antibiotics is becoming more and more serious, the use of antibiotics to treat diseases of farmed animals is controversial in the world. Butyric acid, as a widely used non-antibiotic growth-promoting additive, can promote the development of gastrointestinal tract, enhance immunity, anti-inflammation and anti-oxidation, and can effectively improve the production performance of animals. This paper summarizes the application effects of butyric acid in ruminants from the aspects of synthesis, transformation, absorption and physiological function of butyric acid, in order to provide reference information for the research and application of butyric acid in ruminants in the future.

Cite this article

WANG Qiang , WAN Fachun , LIU Lei , LIU Hu . Research Progress on Physiological Function of Butyric Acid and Its Application in Ruminants[J]. Chinese Journal of Animal Nutrition, 2023 , 35(9) : 5513 -5522 . DOI: 10.12418/CJAN2023.508

近年来,由于“中美贸易战”“新冠疫情”“俄乌战争”等多重因素的影响,传统畜牧养殖业遭受到巨大的冲击。如何“节本增效”成为当前畜牧养殖业的热点话题之一。虽然饲用抗生素在疾病防控与促生长方面发挥了巨大作用,但其滥用也导致了细菌耐药性和药物残留问题,对人类的健康与生产造成巨大危害[1]。欧盟早在2006年起便开始全面禁抗。自2020年元旦起,我国国家农业农村部明确发文规定,禁止在饲料中添加任何形式的抗生素,这无疑对畜牧业的发展提出更高的要求。
丁酸具有促进动物胃肠道发育、增强免疫力、调节体内菌群、提高生产性能等作用,是一种理想的替抗产品。由于丁酸易挥发且气味难闻,通常将其制成化学结构相对稳定的产品,如丁酸盐、包被丁酸盐、三丁酸甘油酯等[2]。其中最典型的丁酸钠具有无耐药性且易吸收分解等特点,我国《饲料添加剂品种目录》早在2003年便将丁酸钠列为新型饲料添加剂。本文主要归纳了丁酸在动物体内的合成转化与吸收利用、生理功能,并阐明了其在生产应用中的研究效果,为其在反刍动物中的合理利用提供理论参考。

1 丁酸在动物体内的合成转化与吸收利用

1.1 丁酸的合成转化
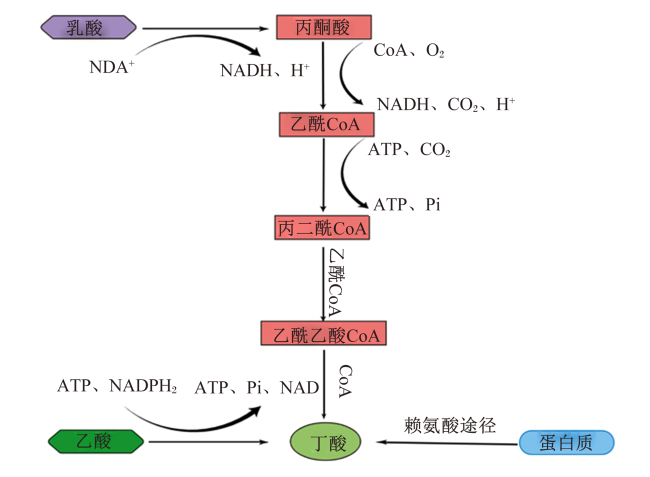
丁酸是胃肠道内常见的短链脂肪酸(short-chain fatty acids,SCFA)之一,占总短链脂肪酸的10%~20%[3]。不可溶纤维素、抗性淀粉(resistant starch,RS)等难以消化的碳水化合物是生成丁酸的主要原料。厚壁菌门作为产丁酸的主要菌群,常见于反刍家畜瘤胃、结肠以及盲肠。目前丁酸的合成途径共有3种(图1):1)丙二酰辅酶A途径,2分子乙酰辅酶A缩合还原成丁酰辅酶A,再通过磷酸丁酰转移酶和丁酸酯激酶转化为丁酸。2)肠道中某些微生物可以利用乳酸盐和乙酸盐合成丁酸。3)通过赖氨酸途径从蛋白质中进行合成。
图1 丁酸的合成途径

CoA:辅酶A coenzyme A;O2:氧气 oxygen;NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide;ATP:三磷酸腺苷 adenosine triphosphate;CO2:二氧化碳 carbon dioxide;ADP:二磷酸腺苷 adenosine diphosphate;H+:氢离子 hydrogen ion;NADPH2:还原型烟酰胺腺嘌呤二核苷酸磷酸 nicotinamide adenine dinucleotide phosphate;Pi:无机磷酸盐 inorganic phosphate;NAD+:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide。

Fig.1 Synthesis pathway of butyric acid[4]

1.2 丁酸的吸收利用

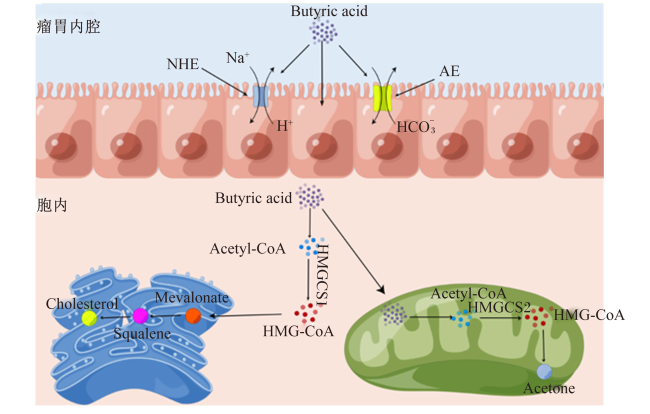
丁酸以解离与非解离2种形式存在于胃肠道中,主要通过被动扩散与特异性载体运输被瘤胃上皮细胞和肠上皮细胞吸收,在瘤胃内丁酸可通过以下2条途径为机体供能(图2):1)部分丁酸被瘤胃上皮细胞吸收直接进入血液,通过糖异生途径生成葡萄糖为机体供能。2)剩余部分丁酸经酰基辅酶A与3-羟基3-甲基戊二酰辅酶A合成酶缩合成3-羟基-3-甲基戊二酰辅酶(3-hydroxy-3-methylglutaryl coenzyme A,HMG-CoA),并分别在线粒体中转化为酮体以及通过内质网和细胞质生成胆固醇,进入血液循环为机体功能。在肠道中丁酸的吸收主要以非离子弥散性为主,不需要通过肝脏、胆囊吸收以及三羧酸循环便可直接被肠上皮细胞吸收并进行能量代谢,从而实现快速供能[6]
图2 瘤胃上皮细胞内丁酸的转运吸收与代谢

Butyric acid:丁酸;NHE:钠离子/氢离子交换体 Na+/H+ exchanger;Na+:钠离子 sodium ion;H+:氢离子 hydrogen ion;AE:阴离子交换剂 anion exchangers;HC O 3 -:碳酸氢根 hydrogen carbonate;Acetyl-CoA:乙酰辅酶A acetyl coenzyme A;HMG-CoA:3-羟基-3-甲基戊二酰辅酶A 3-hydroxy-3-methylglutaryl coenzyme A;Mevalonate:甲羟戊酸;Squalene:角鲨烯;Cholesterol:胆固醇;Acetone:酮体;HMGCS:3-羟基-3-甲基戊二酰辅酶A合成酶 3-hydroxy-3-methylglutaryl-CoA synthase。

Fig.2 Transport absorption and metabolism of butyric acid in rumen epithelial cells[5]

2 影响丁酸产量的因素

反刍动物体内各短链脂肪酸比例与瘤胃发酵类型息息相关,环境温度、饲粮组成、饲料加工方式、瘤胃pH等均可通过影响瘤胃微生物组分改变发酵类型,进而影响丁酸产量。
饲料加工处理能够改变原料的物理结构和化学特性,改善动物对碳水化合物的利用情况。相较于全谷物玉米,采用蒸汽压片技术不仅能够使玉米淀粉微粒胶样化,改善其在瘤胃内的消化,而且能够改变瘤胃发酵类型,减少乙酸产量,增加丙酸和丁酸产量[7]。荷斯坦犊牛断奶前饲喂玉米蛋白粉能够改善瘤胃发酵,增加玉米蛋白粉的瘤胃可发酵性,提高乳酸浓度,加快乳酸向丁酸的转变[8]。瘤胃pH与添加剂通过选择性地促进或抑制某些类型的微生物增殖来影响丁酸的产生。瘤胃内pH保持在适宜区间(6.2~6.8)有利于内环境的稳定,促进短链脂肪酸形成。早期研究表明,脲酶抑制剂对苯二酚通过抑制氨的爆发式释放,维持了较为稳定的瘤胃pH,有利于瘤胃微生物在稳定的环境中生长繁殖,并提高了对饲料纤维的消化率,显著增加了瘤胃乙酸、丙酸和丁酸产量[9]
除上述因素外,饲粮组成也对瘤胃短链脂肪酸含量有明显作用,从目前多数研究结果来看,高精料饲粮可以显著降低瘤胃乙酸/丙酸的比例,但对丁酸含量的影响报道不一[10-11]

3 丁酸的主要生理作用

3.1 缓解氧化应激

氧化应激是指机体受到内外界有害刺激时,机体氧化还原系统被破坏,未能及时清除产生的自由基,从而对细胞、组织和器官造成氧化损伤的现象[12]。酶类抗氧化系统是由谷胱甘肽过氧化物酶(glutathione peroxidas,GSH-Px)、超氧化物歧化酶(superoxide dismutase,SOD)、过氧化氢酶(catalase,CAT)等抗氧化酶所构成的初级抗氧化防御系统,丁酸可通过提高体内抗氧化酶活性来缓解氧化应激。研究发现,给荷斯坦犊牛液体饲料中添加3种水平(15、30、45 g/d)丁酸钠后,血清中GSH-Px活性随着丁酸钠添加水平增加呈线性升高,同时血清中丙二醛(malondialdehyde,MDA)含量明显低于未添加组[13]。此外,在高谷物饲粮诱发的泌乳期萨能奶山羊亚急性瘤胃酸中毒(subacute ruminal acidosis,SARA)研究中发现,添加0.1 g/kg丁酸钠可增加肝脏中抗氧化基因SOD1、SOD2、SOD3、GSH-Px1、CAT、尿苷二磷酸葡萄糖醛酸基转移酶1A1(uridine diphosphate glucuronic acid transferase 1 A1,UGT1A1)、依赖还原型辅酶Ⅰ(Ⅱ)醌氧化还原酶1[NAD(P)H:quinine oxidoreductase 1,NQO1]和微粒体谷胱甘肽S转移酶3(microsomal glutathione S-transferase 3,MGST3)的mRNA表达量,提高抗氧化酶活性,增强肝脏抗氧化能力[14]
除此以外,丁酸的抗氧化机制还与多种信号通路有关。在围产期,奶牛的氧化应激会使核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)的核易位和转录活性显著下降,从而引起乳腺上皮细胞(bovine mammary epithelial cell,BMEC)的氧化损伤,并破化蛋白质、脂质和DNA结构,最终导致BMEC死亡,破坏机体氧化还原平衡[15]。丁酸钠可作用于Kelch样环氧氯丙烷相关蛋白(Kelch-like epichlorohydrin-associated protein 1,Keap1)-Nrf2信号通路,促使牛BMEC中Nrf2由细胞质移位至细胞核,提高血红素加氧酶-1、还原型烟酰胺腺嘌呤二核苷酸磷酸醌氧化还原酶的mRNA表达量,增强SOD、GSH-Px、CAT的活性,促进对过量活性氧的清除,提高线粒体膜电位,缓解细胞氧化损伤[16]。体外试验结果表明,丁酸可通过G蛋白偶联受体109a(G-protein-coupled receptor 109a,GPR109a)激活腺苷酸激活蛋白激酶(adenosine 5’-monophosphate activated protein kinase,AMPK)信号通路,促进Nrf2核积聚和组蛋白H3的第9/14位赖氨酸(H3K9/14)乙酰化,同时H3K9/14乙酰化能够进一步推动Nrf2转录,提高下游抗氧化蛋白的表达,增强细胞的抗氧化能力[17]

3.2 改善炎症反应

核因子-κB(nuclear factor kappa-B,NF-κB)与丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)信号不仅是细胞存活的关键调节因子,也是炎症反应的有效诱导者,与动物体的多项炎症疾病相关。脂多糖(lipopolysaccharide,LPS)作为革兰氏阴性细菌细胞壁的活性成分,能与免疫细胞和上皮细胞等表面Toll样受体4(Toll-like receptor 4,TLR4)结合,激活下游NF-κB和MAPK信号通路,刺激炎症因子生成,引发机体炎症[18]。丁酸已被证实具有改善机体炎症的作用,其表现在可降低哺乳期奶牛瘤胃与血浆中细菌细胞壁组分LPS、肽聚糖(peptidoglycan,PGN)和脂磷壁酸(lipoteichoic acid,LTA)的浓度,并通过抑制乳腺中模式识别受体核苷酸结合寡聚化域蛋白1(nucleotide-binding oligomerization domain-containing protein 1,NOD1)和NOD1介导的炎症分子的体外表达减少高精料饮食导致的机体炎症[19]。Chandra等[20]进一步探讨了丁酸对高精料饲粮诱导奶山羊肝脏炎症的影响,饲粮中添加1%丁酸钠可有效减少炎症基因受体结合丝氨酸苏氨酸激酶2(receptor-interacting serine-threonine kinase 2,RIPK2)等的mRNA表达量,进而阻断NF-κB和MAPK信号通路,减少炎症因子白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(interleukin-6,IL-6)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)产生。
通过转录组测序和16S rRNA基因测序的综合方法发现,瘤胃中发酵产生的丁酸盐摩尔浓度与组蛋白去乙酰化酶(histone deacetylase,HDAC)1的表达呈负相关性,表明丁酸能够有效抑制HDAC活性,调控组蛋白乙酰化过程[21]。丁酸(5 μg/mL)作为HDAC抑制剂,能够提高牛巨噬细胞中组蛋白组蛋白H3的第9/位赖氨酸(H3K9)乙酰化水平,并抑制炎性小体NLRP3的蛋白表达与核因子-κB抑制蛋白(inhibitor of NF-κB,IκB)和p65磷酸化,阻断NF-κB信号通路[22]。另有研究表明,丁酸可通过增加血浆中胰高血糖素样肽-2(glucagon-like peptide-2,GLP-2)以及β-羟基丁酸(β-hydroxybutyric acid,BHBA)浓度,抑制肽聚糖识别蛋白(peptidoglycan recognition proteins,PRRs)的激活,进而抑制NK-κB信号通路,减少促炎细胞因子的释放,间接改善机体炎症[23-24]

3.3 刺激胃肠道发育

相较于丙酸和乙酸,丁酸具有更高的活性与能值,被认为是瘤胃上皮发育的主要刺激物[25]。生产中常使用丁酸补充剂来促进瘤胃发育。有多项研究表明,丁酸能够上调参与瘤胃上皮细胞有丝分裂相关蛋白的表达,进而缩短细胞周期,促进瘤胃上皮细胞增殖,加快瘤胃乳头生长,从而增大瘤胃表面积;值得注意的是,除增殖以外,丁酸还会激活B细胞淋巴瘤/白血病-2相关X蛋白(B-cell lymphoma/leukaemia-2-associated X protein,Bax)、半胱天冬蛋白酶-3(cysteinyl aspartate specific proteinase-3,Caspase-3)和半胱天冬蛋白酶-3(cysteinyl aspartate specific proteinase-3,Caspase-3)诱导瘤胃上皮细胞凋亡,但从总体来看,细胞增殖比率高于细胞凋亡率[26-27]。胰岛素样生长因子-1(insulin like growth factor-1,IGF-1)已经被证实具有提高细胞周期蛋白D1(cyclin D1)的表达,促进瘤胃上皮细胞的增殖[28]。经对羔羊口腔灌服丁酸钠的试验发现,1.8 mL/kg丁酸钠有助于提高瘤胃上皮中IGF-1和胰岛素样生长因子-1受体(insulin like growth factor-1 receptor,IGF-1R)的mRNA表达量,抑制相关凋亡基因如Bax的mRNA表达量,从而促进瘤胃上皮细胞增殖发育,改善羔羊瘤胃发酵功能[29]
肠道完整性可以通过观察肠道绒毛的高度与隐窝深度来进行判断。丁酸作为肠道上皮细胞的重要供能物质,据报道,在酸化乳中添加0.3%丁酸可有效刺激犊牛十二指肠与空肠绒毛增长,并提高肠黏膜厚度[30]。Koch等[31]研究也表明,在犊牛饲粮中添加丁酸可通过调控局部胰岛素样生长因子系统参与肠道生长调节,显著提高十二指肠绒毛高度和回肠消化率。丁酸还可以刺激肠内L细胞分泌GLP-2,增强全肠道消化能力,促进肠道生长发育[32]。此外,丁酸在瘤胃上皮代谢所产生的BHBA被证实能促进GLP-2在血液中的释放,表明丁酸也可通过代谢途径间接参与肠道的发育[24]

3.4 调节微生物区系

动物胃肠道内存在数以万计的微生物,经过长期的适应与选择形成一个相对稳定的微生物区系。丁酸具有水脂两亲的特性,当扩散穿过细菌细胞膜时,可分解成丁酸根离子和氢离子,导致沙门氏菌、大肠杆菌和梭状芽孢杆菌等对氢离子耐受性较差的细菌死亡,乳酸杆菌等则由于其较强的耐酸性而大量增殖[33]。在为期22 d的饲养研究中发现,每日往犊牛代乳粉中添加4 g/kg包被丁酸钠可提高结肠中短链脂肪酸生产菌的数量,并减少盲肠中变形杆菌的数量,保护肠道健康[34]。Shen等[35]研究发现,在对山羊瘤胃连续灌注丁酸钠后,瘤胃中硬壁菌门和拟杆菌门的数量明显减少。研究中所选取的动物以及输注丁酸盐浓度会导致试验结果产生差异。在此之前,Li等[36]通过对奶牛进行为期168 h的瘤胃丁酸盐灌注试验发现,外源性丁酸盐的灌注造成了瘤胃微生物6个门、19个属、43个操作分类单元的变化,如在门的水平上,拟杆菌门相对丰度从输注前的70.87%降低到60.42%,厚壁菌门相对丰度显著提高。在属水平上,产丁酸细菌的相对丰度提高。
LPS与γ-D-谷氨酸-内消旋-二氨基庚二酸(IE-DAP)是革兰氏阴性细菌细胞壁的重要活性成分。研究表明,丁酸能够减少瘤胃与血浆中LPS与IE-DAP含量[19]。其原因可能是由于丁酸减少了革兰氏阴性细菌的死亡。除此以外,有研究已证实瘤胃中甲烷产气菌属AbM4株数量随着丁酸浓度提高明显增加,两者之间存在显著的正相关性[37]。反刍动物排放的甲烷占世界甲烷排放总量的15%~25%,丁酸虽能提高有益菌的相对丰度,但也使饲料利用率降低,增加了甲烷的产量,加剧了温室效应。

3.5 增强免疫功能

除上述生理功能外,丁酸在动物体内的代谢还能够增强动物体免疫系统三大防线功能,进而提高机体免疫力。
在屏障功能方面,丁酸钠可有效缓解高精料饲粮导致的瘤胃低pH,并通过抑制蛋白激酶C(protein kinase C,PKC)和MAPK信号通路,提高瘤胃上皮细胞内闭合蛋白(occludin)、封闭蛋白(claudin)、闭锁小带蛋白-1(zonula occludens protein-1,ZO-1)的mRNA表达量,降低DNA甲基化,促进细胞间的紧密连接,逆转高精料饲粮导致的瘤胃上皮损伤[38]。GLP-2作为肠道衍生的激素,可以通过提高调节胃黏膜血流量和亚油酸代谢途径来防止胃黏膜受损,同时可有效降低动物肠道屏障通透性,保护肠道健康[39-40]。丁酸钠被证实能够上调小肠中GLP-2蛋白表达量,刺激肠道内分泌L细胞合成分泌GLP-2,并提高相关连接蛋白表达,增强胃肠道屏障功能[41]
体外研究发现,将牛中性粒细胞移入丁酸溶液中孵育,可提高细胞中CD63基因表达,诱导分泌基质金属蛋白酶-9(matrix metalloproteinase-9,MMP-9)和乳铁蛋白,增强牛中性粒细胞的吞噬功能,并诱导中性粒细胞外陷阱(neutrophil extracellular traps,NET)的形成,这表明丁酸可以调节反刍动物的先天免疫反应[42]。NET主要通过捕获病毒微生物、抑制其传播和灭活毒力因子来发挥免疫作用,但NET的过度形成会对组织造成免疫损伤[43]。NET及其组分组蛋白会显著增加BMEC的细胞毒性,诱导BMEC的坏死、焦亡与凋亡[44]。除诱导NET合成外,丁酸钠被证实可通过抑制自噬等途径有效减少金黄色葡萄球菌诱导的NET过度形成,减轻BMEC受到的损伤[45]。丁酸一方面可诱导NET的形成增强细胞免疫功能,另一方面又可防止NET过度形成导致的损伤,且似乎还可通过区别于自噬的途径来抑制NET形成,其对NET的影响机制仍值得深入研究。
免疫器官的健康是第3道防线的基础。赵会利等[46]报道,饲粮中添加丁酸钠有利于断奶犊牛免疫器官发育,促进了肠道黏膜内淋巴细胞增殖与分化,并提高了血清中免疫球蛋白G(immunoglobulin,IgG)和免疫球蛋白M(immunoglobulin,IgM)含量,增强了肠道免疫系统免疫应答的灵敏性。

4 丁酸在反刍动物生产中的应用

丁酸存在于绝大部分动物乳汁中[47],且在反刍动物初乳中约为干物质的2.1%[48]。目前其产品如丁酸钠、三丁酸甘油酯、包被丁酸盐被广泛应用到开食料中,通过促进胃肠道的发育以及免疫系统的完善,有利于幼龄反刍动物的生长发育并提高其存活率(表1)。对成年反刍动物而言,饲粮中添加适量的丁酸有助于缓解外界刺激所导致的不良反应,减少炎症的发生,以及提高乳脂产量(表2)。
表1 丁酸产品在幼龄反刍动物中的应用效果

Table 1 Application effects of butyric acid products in juvenile ruminants

动物种类
Animal species
丁酸产品 Butyric acid products 主要效果
Main effects
参考文献
References
丁酸来源
Butyrate
source
添加水平
Adding
level
杂交汉普郡×萨福克羔羊
Hampshire×Suffolk lamb
丁酸钙 0.625% DM 提高平均日增重和干物质采食量,
降低糖异生酶活性
Chishti等[49]
荷斯坦犊牛
Holstein calf
丁酸钠 45 g/d 提高平均日增重、饲料转化率,增强
抗氧化能力,增加肩高和体长
Liu等[13]
荷斯坦犊牛
Holstein calf
丁酸钠 0.3%开食料 降低血清中皮质醇含量,减少体内
蛋白质和脂肪的分解,提高机体的免疫力,
有效缓解了犊牛的断奶应激
王彦东[50]
湖羊羔羊
Lake lamb
丁酸钠 0.36 g/kg BW 促进羔羊瘤胃上皮细胞增殖,同时抑制
细胞凋亡,加快瘤胃乳头生长,并提高
瘤胃上皮挥发性脂肪酸吸收代谢相关
基因的表达,提高生产性能
Liu等[27]
荷斯坦犊牛
Holstein calf
丁酸钠 0.3% DM 刺激胰腺分泌,增加胰消化酶产量,
提高脂肪、蛋白质、钙、灰分等的消化率
Guilloteau等[51]
荷斯坦犊牛
Holstein calf
丁酸钠 1%开食料 增加断奶过渡期平均日采食量,
并提高平均日增重
Mccurdy等[52]

DM:干物质 dry matter;BW:体重 body weight。下表同 the same as bolow。

表2 丁酸产品在成年反刍动物中的应用效果

Table 2 Application effects of butyric acid products in adult ruminants

动物种类
Animal species
丁酸产品 Butyric acid products 主要效果
Main effects
参考文献
References
丁酸来源
Butyrate
source
添加水平
Adding
level
荷斯坦奶牛
Holstein cow
丁酸钠 1.1% DM 增强哺乳期奶牛乳脂合成能力,提高乳脂
产量与浓度,降低牛奶尿素氮浓度
Izumi等[53]
湖羊母羊
Female lake sheep
丁酸钠 5 g/d 增加湖羊母羊的采食量,提高养分表观
消化率,有效增强机体抗氧化能力与免疫力,
降低母羊的死淘率
张昕妍等[54]
荷斯坦奶牛
Holstein cow
丁酸钠 0.175% DM 提高奶牛的泌乳性能,在一定程度上缓解
产后的能量供需负平衡,对奶牛的
产后恢复具有积极作用
黄文明[55]
荷斯坦奶牛
Holstein cow
丁酸钠 1% DM 提高牛奶合成效率与乳脂含量,减少瘤胃
与血浆中细菌细胞壁成分,抑制体内
促炎细胞因子的基因表达,有效缓解高
精料饲粮造成的负面影响
Wu等[19]
荷斯坦奶牛
Holstein cow
丁酸钠 1 g/kg BW 提高奶牛乳脂产量,刺激胰腺分泌
胰岛素,加快血浆葡萄糖的储存与转化
Herrick等[56]

5 小结与展望

丁酸不仅可以作为反刍动物体内重要的能源物质,还具有改善机体肠道健康、抗炎、抗氧化、调节微生物区系以及增强免疫功能的作用。丁酸作为饲料添加剂,具有绿色无污染、易吸收的特点,目前被使用来代替部分抗生素,在反刍动物生产中也表现出良好的应用效果。但丁酸在反刍动物体内的作用效果受到添加形式、使用剂量、试验对象等多种因素的影响,因此进一步研究丁酸在机体内的作用机制以及动物不同阶段适宜添加剂量等方面仍将是未来研究工作的重点。

致谢

感谢湖南农业大学动物科学技术学院高骞博士对文稿所提的宝贵意见。

[1]
EL-SAYED A, KAMEL M. Bovine mastitis prevention and control in the post-antibiotic era[J]. Tropical Animal Health and Production, 2021, 53(2):236.

DOI

[2]
吴东霖, 徐萍, 邵凯, 等. 丁酸在幼龄反刍动物中的作用机理及其产品应用的研究进展[J]. 动物营养学报, 2020, 32(3):1034-1046.

DOI

WU D L, XU P, SHAO K, et al. Mechanism of butyric acid and application of its products in young ruminants[J]. Chinese Journal of Animal Nutrition, 2020, 32(3):1034-1046. (in Chinese)

[3]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[4]
张晨, 敖日格乐, 王纯洁, 等. 短链脂肪酸介导的肠上皮和抗炎调节研究进展[J]. 中国畜牧杂志, 2021, 57(1):32-37.

ZHANG C, AO R G L, WANG C J, et al. Research progress on short chain fatty acid mediated intestinal epithelium and anti-inflammatory regulation[J]. Chinese Journal of Animal Science, 2021, 57(1):32-37. (in Chinese)

[5]
唐文浩, 张养东, 郑楠, 等. 短链脂肪酸的生理功能及其在奶牛生产中的研究进展[J]. 饲料工业, 2021, 42(15):43-48.

TANG W H, ZHANG Y D, ZHENG N, et al. Physiological function of short-chain fatty acids and its application in dairy production[J]. Feed Industry, 2021, 42(15):43-48. (in Chinese)

[6]
郜飞燕, 邹君彪. 丁酸钠的生理功能及其在养殖业中的应用研究进展[J]. 国外畜牧学(猪与禽), 2017, 37(6):94-96.

GAO F Y, ZOU J B. Research progress on the physiological function of sodium butyrate and its application in aquaculture[J]. Animal Science Abroad (Pigs and Poultry), 2017, 37(6):94-96. (in Chinese)

[7]
GHOLAMI M A, FOROUZMAND M, KHAJAVI M, et al. Effect of different corn processing methods on enzyme producing bacteria,protozoa,fermentation and histomorphometry of rumen in fattening lambs[J]. Veterinary Research Forum, 2018, 9(1):43-48.

[8]
JIANG X, MA G M, CUI Z Q, et al. Effects of fermented corn gluten meal on growth performance,plasma metabolites,rumen fermentation and bacterial community of Holstein calves during the pre-weaning period[J]. Livestock Science, 2020, 231:103866.

DOI

[9]
李杰, 李大刚. 不同种类脲酶抑制剂对山羊饲粮养分瘤胃消失率和挥发性脂肪酸浓度的影响[J]. 动物营养学报, 2004, 16(4):58-62.

LI J, LI D G. Effects of urease inhibitors on the diet nutrient degradability and VFA concentration in the rumen of goats[J]. Chinese Journal of Animal Nutrition, 2004, 16(4):58-62. (in Chinese)

[10]
JIANG Y H, DAI P, DAI Q D, et al. Effects of the higher concentrate ratio on the production performance,ruminal fermentation,and morphological structure in male cattle-yaks[J]. Veterinary Medicine and Science, 2022, 8(2):771-780.

DOI

[11]
ZHU X Y, LIU B S, XIAO J N, et al. Effects of different roughage diets on fattening performance,meat quality,fatty acid composition,and rumen microbe in steers[J]. Frontiers in Nutrition, 2022, 9:885069.

DOI

[12]
TANG M H, FANG R J, XUE J J, et al. Effects of catalase on growth performance,antioxidant capacity,intestinal morphology,and microbial composition in yellow broilers[J]. Frontiers in Veterinary Science, 2022, 9:802051.

DOI

[13]
LIU W H, A L T Z L, EVANS A, et al. Supplementation with sodium butyrate improves growth and antioxidant function in dairy calves before weaning[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):2.

DOI PMID

[14]
MA N N, ABAKER J A, BILAL M S, et al. Sodium butyrate improves antioxidant stability in sub-acute ruminal acidosis in dairy goats[J]. BMC Veterinary Research, 2018, 14(1):275.

DOI PMID

[15]
宝华, 宋利文, 张航, 等. 围产后期亚临床酮病对奶牛氧化应激、免疫功能和生产性能的影响[J]. 饲料工业, 2019, 40(15):49-56.

BAO H, SONG L W, ZHANG H, et al. Effects of subclinical ketosis on oxidative stress,immune function and production performance of dairy cows in postpartum[J]. Feed Industry, 2019, 40(15):49-56. (in Chinese)

[16]
ALI I, LI C M, KUANG M Q, et al. Nrf2 activation and NF-Kb & caspase/bax signaling inhibition by sodium butyrate alleviates LPS-induced cell injury in bovine mammary epithelial cells[J]. Molecular Immunology, 2022, 148:54-67.

DOI

[17]
GUO W J, LIU J X, SUN J X, et al. Butyrate alleviates oxidative stress by regulating NRF2 nuclear accumulation and H3K9/14 acetylation via GPR109A in bovine mammary epithelial cells and mammary glands[J]. Free Radical Biology and Medicine, 2020, 152:728-742.

DOI PMID

[18]
樊磊, 莘余, 尤留超, 等. 脂多糖致奶牛糖脂代谢异常研究进展[J]. 畜牧兽医学报, 2023, 54(2):484-493.

FAN L, SHEN Y, YOU L C, et al. Research progress on abnormal glucose and lipid metabolism in dairy cows induced by lipopolysaccharide (LPS)[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(2):484-493. (in Chinese)

[19]
WU Y J, SUN Y W, ZHANG R M, et al. Sodium butyrate more effectively mitigates the negative effects of high-concentrate diet in dairy cows than sodium β-hydroxybutyrate via reducing free bacterial cell wall components in rumen fluid and plasma[J]. Toxins, 2021, 13(5):352.

DOI

[20]
CHANDRA R A, WANG Y, ZHANG H M, et al. Sodium butyrate mitigates iE-DAP induced inflammation caused by high-concentrate feeding in liver of dairy goats[J]. Journal of Agricultural and Food Chemistry, 2018, 66(34):8999-9009.

DOI PMID

[21]
SHEN H, LU Z Y, XU Z H, et al. Associations among dietary non-fiber carbohydrate,ruminal microbiota and epithelium G-protein-coupled receptor,and histone deacetylase regulations in goats[J]. Microbiome, 2017, 5(1):123.

DOI

[22]
JIANG L Q, WANG J J, LIU Z Y, et al. Sodium butyrate alleviates lipopolysaccharide-induced inflammatory responses by down-regulation of NF-κB,NLRP3 signaling pathway,and activating histone acetylation in bovine macrophages[J]. Frontiers in Veterinary Science, 2020, 7:579674.

DOI

[23]
吴泳江. 丁酸钠和β-羟丁酸钠缓解瘤胃细菌细胞壁成分对奶牛炎症和泌乳影响的研究[D].博士学位论文. 重庆: 西南大学, 2021.

WU Y J. A study on the roles of sodium butyrate and sodium β-hydroxybutyrate in mitigating the effects of rumen bacterial cell-wall components on inflammation and lactation in dairy cows[D]. Ph.D.Thesis. Chongqing: Southwest University, 2021. (in Chinese)

[24]
ELSABAGH M, INABU Y, OBITSU T, et al. Response of plasma glucagon-like peptide-2 to feeding pattern and intraruminal administration of volatile fatty acids in sheep[J]. Domestic Animal Endocrinology, 2017, 60:31-41.

DOI PMID

[25]
NIWIÑSKA B, HANCZAKOWSKA E, ARCISZEWSKI M B, et al. Review:exogenous butyrate:implications for the functional development of ruminal epithelium and calf performance[J]. Animal, 2017, 11(9):1522-1530.

DOI

[26]
SOOMRO J, LU Z Y, GUI H B, et al. Synchronous and time-dependent expression of cyclins,cyclin-dependant kinases,and apoptotic genes in the rumen epithelia of butyrate-infused goats[J]. Frontiers in Physiology, 2018, 9:496.

DOI

[27]
LIU L X, SUN D M, MAO S Y, et al. Infusion of sodium butyrate promotes rumen papillae growth and enhances expression of genes related to rumen epithelial VFA uptake and metabolism in neonatal twin lambs[J]. Journal of Animal Science, 2019, 97(2):909-921.

DOI PMID

[28]
张雅丽, 刘理想, 孙大明, 等. 基于胰岛素样生长因子-Ⅰ信号通路体外研究丁酸钠促进羔羊瘤胃上皮细胞增殖的机理[J]. 动物营养学报, 2021, 33(3):1687-1698.

DOI

ZHANG Y L, LIU L X, SUN D M, et al. Mechanism of sodium butyrate promoting rumen epithelial cell proliferation in vitro based on insulin-like growth factor Ⅰ signaling pathway[J]. Chinese Journal of Animal Nutrition, 2021, 33(3):1687-1698. (in Chinese)

[29]
纪雯雯, 云燕, 张艳芳, 等. 丁酸钠对哺乳期湖羊羔羊生长性能、血浆指标和瘤胃发育的影响[J]. 动物营养学报, 2023, 35(3):1803-1815.

DOI

JI W W, YUN Y, ZHANG Y F, et al. Effects of sodium butyrate on growth performance,plasma indexes,rumen development of Hu lambs during suckling period[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1803-1815. (in Chinese)

[30]
SUN Y Y, LI J, MENG Q S, et al. Effects of butyric acid supplementation of acidified milk on digestive function and weaning stress of cattle calves[J]. Livestock Science, 2019, 225:78-84.

DOI

[31]
KOCH C, GERBERT C, FRIETEN D, et al. Effects of ad libitum milk replacer feeding and butyrate supplementation on the epithelial growth and development of the gastrointestinal tract in Holstein calves[J]. Journal of Dairy Science, 2019, 102(9):8513-8526.

DOI

[32]
FUKUMORI R, OBA M, IZUMI K, et al. Effects of butyrate supplementation on blood glucagon-like peptide-2 concentration and gastrointestinal functions of lactating dairy cows fed diets differing in starch content[J]. Journal of Dairy Science, 2020, 103(4):3656-3667.

DOI PMID

[33]
梁胜男, 柯楚新, 黄鹤, 等. 肠道内产丁酸细菌及其产物丁酸生理功能的研究进展[J]. 微生物学通报, 2021, 48(3):948-959.

LIANG S N, KE C X, HUANG H, et al. Butyrate-producing bacteria in the intestinal tract and the physiological function of their metabolite butyrate:a review[J]. Microbiology, 2021, 48(3):948-959. (in Chinese)

[34]
O’HARA E, KELLY A, MCCABE M S, et al. Effect of a butyrate-fortified milk replacer on gastrointestinal microbiota and products of fermentation in artificially reared dairy calves at weaning[J]. Scientific Reports, 2018, 8(1):14901.

DOI PMID

[35]
SHEN H, CHEN Z, SHEN Z M, et al. Maintaining stability of the rumen ecosystem is associated with changes of microbial composition and epithelial TLR signaling[J]. MicrobiologyOpen, 2017, 6(3):e00436.

DOI

[36]
LI R W, WU S T, BALDWIN R L 6TH, et al. Perturbation dynamics of the rumen microbiota in response to exogenous butyrate[J]. PLoS One, 2012, 7(1):e29392.

DOI

[37]
DONG L F, MA J N, TU Y, et al. Weaning methods affect ruminal methanogenic archaea composition and diversity in Holstein calves[J]. Journal of Integrative Agriculture, 2019, 18(5):1080-1092.

DOI

[38]
ZHANG K, MENG M J, GAO L P, et al. Sodium butyrate improves high-concentrate-diet-induced impairment of ruminal epithelium barrier function in goats[J]. Journal of Agricultural and Food Chemistry, 2018, 66(33):8729-8736.

DOI PMID

[39]
ABDALQADIR N, ADELI K. GLP-1 and GLP-2 orchestrate intestine integrity,gut microbiota,and immune system crosstalk[J]. Microorganisms, 2022, 10(10):2061.

DOI

[40]
ZHANG J, NING J, HAO X Y, et al. Glucagon-like peptide-2 protects the gastric mucosa via regulating blood flow and metabolites[J]. Frontiers in Endocrinology, 2022, 13:1036559.

DOI

[41]
邴新帅. 丁酸钠与沙蒿多糖对断奶羔羊肠道发育及胰高血糖素样肽-2的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2018.

BING X S. Effect of sodium butyrate and Artemisia seed polysaccharides on intestinal development and glucagon-like peptide-2 of weaning lambs[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2018. (in Chinese)

[42]
CARRETTA M D, HIDALGO A I, BURGOS J, et al. Butyric acid stimulates bovine neutrophil functions and potentiates the effect of platelet activating factor[J]. Veterinary Immunology and Immunopathology, 2016, 176:18-27.

DOI PMID

[43]
LIANG X F, LIU L, WANG Y, et al. Autophagy-driven NETosis is a double-edged sword-review[J]. Biomedicine & Pharmacotherapy, 2020, 126:110065.

DOI

[44]
WEI Z K, WANG J J, WANG Y N, et al. Effects of neutrophil extracellular traps on bovine mammary epithelial cells in vitro[J]. Frontiers in Immunology, 2019, 10:1003.

DOI

[45]
LI Y H, LIU J X, CUI Y Y, et al. Sodium butyrate attenuates bovine mammary epithelial cell injury by inhibiting the formation of neutrophil extracellular traps[J]. International Immunopharmacology, 2022, 110:109009.

DOI

[46]
赵会利, 高艳霞, 李建国, 等. 丁酸钠对断奶犊牛生长、血液生化指标及胃肠道发育的影响[J]. 畜牧兽医学报, 2013, 44(10):1600-1608.

ZHAO H L, GAO Y X, LI J G, et al. Effect of sodium butyrate on growth,serum biochemical parameters and gastrointestinal development of weaning calves[J]. Acta Veterinaria et Zootechnica Sinica, 2013, 44(10):1600-1608. (in Chinese)

[47]
BEDFORD A, GONG J. Implications of butyrate and its derivatives for gut health and animal production[J]. Animal Nutrition, 2018, 4(2):151-159.

DOI PMID

[48]
JOLAZADEH A R, MOHAMMADABADI T, DEHGHAN-BANADAKY M, et al. Effect of supplementing calcium salts of n-3 and n-6 fatty acid to pregnant nonlactating cows on colostrum composition,milk yield,and reproductive performance of dairy cows[J]. Animal Feed Science and Technology, 2019, 247:127-140.

DOI

[49]
CHISHTI G A, FELIX T L. Effects of supplemental calcium butyrate on lamb growth,plasma metabolites,and hepatic gluconeogenic and inflammatory gene expression changes[J]. Animal Feed Science and Technology, 2020, 270:114678.

DOI

[50]
王彦东. 丁酸钠释放速率对犊牛抗氧化功能、免疫机能和断奶应激的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2020.

WANG Y D. Effects of release rate of sodium butyrate on anti-oxidative function,immune function and weaning stress of calves[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2020. (in Chinese)

[51]
GUILLOTEAU P, SAVARY G, JAGUELIN-PEYRAULT Y, et al. Dietary sodium butyrate supplementation increases digestibility and pancreatic secretion in young milk-fed calves[J]. Journal of Dairy Science, 2010, 93(12):5842-5850.

DOI PMID

[52]
MCCURDY D E, WILKINS K R, HILTZ R L, et al. Effects of supplemental butyrate and weaning on rumen fermentation in Holstein calves[J]. Journal of Dairy Science, 2019, 102(10):8874-8882.

DOI PMID

[53]
IZUMI K, FUKUMORI R, OIKAWA S, et al. Short communication:effects of butyrate supplementation on the productivity of lactating dairy cows fed diets differing in starch content[J]. Journal of Dairy Science, 2019, 102(12):11051-11056.

DOI

[54]
张昕妍, 段春辉, 杨若晨, 等. 妊娠后期添加丁酸钠对湖羊母羊生长性能、养分表观消化率、血清抗氧化和免疫指标及羔羊生长性能的影响[J]. 动物营养学报, 2022, 34(10):6550-6564.

DOI

ZHANG X Y, DUAN C H, YANG R C, et al. Effects of sodium butyrate supplementation during late gestation on growth performance,nutrient apparent digestibility,serum antioxidant and immune indices of Hu sheep ewes and growth performance of lambs[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6550-6564. (in Chinese)

[55]
黄文明. 围产前期日粮能量水平对奶牛能量代谢和瘤胃适应性影响的研究[D].博士学位论文. 北京: 中国农业大学, 2014.

HUANG W M. Studies on different energy density of close-up diets on energy metabolism and ruminal adaption in multiparous Holstein cows[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2014. (in Chinese)

[56]
HERRICK K J, HIPPEN A R, KALSCHEUR K F, et al. Single-dose infusion of sodium butyrate,but not lactose,increases plasma β-hydroxybutyrate and insulin in lactating dairy cows[J]. Journal of Dairy Science, 2017, 100(1):757-768.

DOI

Outlines

/