RESEARCH PAPER

Effects of Sodium Selenite on Gene Expression in Ovary of Apis mellifera Queen

  • SHI Wenkai , 1, 2 ,
  • LI Lizhi 1 ,
  • ZHANG Haibo 1 ,
  • HE Xujiang 2 ,
  • GUO Dongsheng , 1, 2, * ,
  • GUAN Weikun 1 ,
  • YUAN An 1
Expand
  • 1 Engineering Technology Research Center of Jiangxi Universities and Colleges for Selenium Agriculture, College of Life Science and Resources and Environment, Yichun University, Yichun 336000, China
  • 2 Honeybee Research Institute, Jiangxi Agricultural University, Nanchang 330001, China
* professor, E-mail:

Received date: 2023-03-29

  Online published: 2023-09-13

Abstract

This experiment was conducted to investigate the effects of dietary sodium selenite supplementation on gene expression in ovary of Apis mellifera queen by transcriptome sequencing. The larvae were obtained by control the queen pawning and then conduct to artificial migration, from the next day, the larvae in the queen cells were feed with 5 μL of double distilled water as the control group (CON group) and 5 μL of 3.2 mg/L sodium selenite as the sodium selenite group (SS group) using a micro injector every day, continuous feeding for 3 days. After the queen left the house, the ovarian tissue was taken for transcriptome sequencing. The results showed as follows: 1) there was no significant difference in basic morphological characteristics, out-chamber rate and pupation rate of queen between the two groups (P>0.05). 2) Compared with CON group, SS group had 214 differentially significantly up-regulated genes [log2 fold change (FC)≥1 and P≤0.05], and had 60 differentially significantly down-regulated genes(log2FC≤-1 and P≤0.05). 3) The differentially expressed genes were mainly related to cellular component and molecular function, and a few of them were involved in biological metabolic process; the differentially expressed genes were enriched in 14 metabolic pathways including retinol metabolism, phenylalanine metabolism and oxidative phosphorylation etc. Compared with CON group, the expression levels of differentially expressed genes of gene-CPR1, gene-LOC552689 and gene-LOC100576637 of SS group were significantly down-regulated (P<0.05), and the expression levels of other differentially expressed genes were significantly up-regulated (P<0.05). In conclusion, dietary supplemented with 3.2 mg/L sodium selenite have no significant effects on basic morphological characteristics, out-chamber rate and pupation rate of Apis mellifera queen, by affects the expression of differentially expressed genes of gene-LOC100577156, gene-100577725, gene-ATP6, gene-ND1, gene-ND3 and gene-ND4 in ovarian tissue of sodium selenite, acts on retinol metabolism, phenylalanine metabolism, oxidative phosphorylation and other pathways to regulate the antioxidant capacity and chitin renewal of Apis mellifera.

Cite this article

SHI Wenkai , LI Lizhi , ZHANG Haibo , HE Xujiang , GUO Dongsheng , GUAN Weikun , YUAN An . Effects of Sodium Selenite on Gene Expression in Ovary of Apis mellifera Queen[J]. Chinese Journal of Animal Nutrition, 2023 , 35(9) : 5974 -5982 . DOI: 10.12418/CJAN2023.548

硒作为机体生长发育不可缺少的微量元素,具有提高机体抗氧化能力[1]、调节免疫[2]和内分泌[3]等生物学功能。目前外源硒主要分为有机硒和无机硒,无机硒价格普遍相对低廉,其中亚硒酸钠为最常见的生产所用无机硒源。研究表明,饲粮中添加0.57 mg/L的亚硒酸钠可以显著提高意大利蜜蜂离群工蜂寿命,并增强工蜂幼虫抗氧化能力和免疫能力[4]。苏中渠等[5]研究表明,在幼虫人工饲粮中添加0.21 mg/kg亚硒酸钠饲喂意大利蜜蜂工蜂幼虫直至化蛹后,与对照组相比,工蜂幼虫总抗氧化能力及酚氧化酶、超氧化物歧化酶活性显著上升,丙二醛含量显著下降;且工蜂幼虫初生重、化蛹前后重和化蛹率显著增加。Jiang等[6]研究发现,用50 μmol/L硒溶液浸泡桑叶30~45 min后饲喂家蚕幼虫可显著增加幼虫、茧和蛹重量,并显著增加成虫产卵能力。这表明亚硒酸钠不但具有提高昆虫幼虫抗氧化能力和免疫功能的作用,而且具有增强成虫繁殖能力的功能。
转录组学通过对基因表达情况和调控规律进行全面研究,从而揭示复杂的生物学通路以及性状调控网络分子机制,目前广泛应用于动植物研究中。刘一名等[7]利用高通量转录组测序(RNA-seq)技术揭示了西方蜜蜂通过提高自身抗氧化能力与减缓自身发育速度来应对低温环境。候梦赏等[8]利用转录组测序技术研究发现,亚致死剂量吡虫啉胁迫意大利蜜蜂成年工蜂可显著降低意大利蜜蜂的嗅觉学习能力,影响意大利蜜蜂脑部免疫功能等相关基因的表达和酶活性以及氧化还原等生物代谢过程,并刺激意大利蜜蜂的嗅觉感觉过程及神经信号传导过程。目前,已有大量亚硒酸钠作用于单胃动物、反刍动物及水产动物的研究[9-11],但鲜见关于亚硒酸钠对蜜蜂影响的研究,而将亚硒酸钠用于优质蜂王人工培育方面则未见报道。因此,本试验通过转录组测序,挖掘意大利蜜蜂蜂王卵巢组织中显著差异表达的基因,并对其功能进行预测,探究亚硒酸钠对蜂王生长发育及抗氧化能力影响,以期为意大利蜜蜂蜂王的人工培育提供理论依据。

1 材料与方法

1.1 试验材料

试验选用亚硒酸钠(化学纯,纯度≥99.5%)作为硒源。

1.2 试验蜂群

试验所用意大利蜜蜂均来自于江西省宜春市万载县株潭镇多多蜜蜂园。随机选取3群,其中1群作为产卵群,产卵蜂王为自然交尾蜂王,提供育王的虫源,平箱饲养,其余群作为哺育群,为继箱饲养。试验蜂群按照标准化养蜂技术饲养[12],蜂群无螨害和病害,均为强群,蜜粉及子脾充足,且试验进行时为大流蜜期,主要蜜源植物为紫云英。

1.3 试验设计和饲养管理

在产卵群中放置巢脾进行隔王,3 d后,获得幼虫。按照标准人工育王方法[12]在哺育群中培育蜂王,每个哺育群放入2框育王框,一框为对照组(CON组),另一框为亚硒酸钠组(SS组),每个育王框共有2根育王条,每个育王条上有12~13个人工蜡台,共移虫100只。参考苏中渠等[5]研究结果,选择3.2 mg/L的亚硒酸钠溶液进行试验研究。自移虫之后次日,即幼虫孵化第2天,使用微量进样器(5 μL,上海高鸽工贸有限公司)在SS组幼虫的王台中每日滴加5 μL的3.2 mg/L的亚硒酸钠溶液,在CON组幼虫的王台中每日滴加5 μL的双蒸水,连续喂养3 d,即在幼虫孵化之后的第2、3、4天进行喂养。本次试验在人工移虫之后,除添加亚硒酸钠溶液和双蒸水之外,其余均为工蜂自行哺育。在蜂王出房的前1天,取出育王框,加上王台保护罩,放入恒温箱[相对湿度(75±5)%],等待蜂王羽化。

1.4 蜂王基础形态和出房率、化蛹率测定

在蜂王出房后,会出现因进食或水分丧失而导致体重变化,因此每30 min观察1次,待蜂王出房后,立即使用电子天平(精度为0.000 1 g)称量蜂王初生重和胸重。使用电子游标卡尺(精度0.01 mm)测定蜂王体长、翅长、胸长、胸宽,并记算出房率和化蛹率,计算公式如下:
出房率(%)=(出房数/化蛹数)×100;
化蛹率(%)=(化蛹数/移虫接受数)×100。

1.5 卵巢样品的采集

分别选取CON组和SS组中的8只蜂王卵巢,合并作为测序单样本,每组重复3次取样,共24只。使用昆虫解剖针固定蜂王的尾部和胸部于蜡盘上,用手术剪沿背部中线剪开,露出消化道、蜜囊和卵巢,去除消化道和蜜囊,取出卵巢放入被液氮浸没的1.5 mL RNase-free的冻存管中,置入液氮冷冻保存。

1.6 RNA的提取、文库构建和测序

从组织样品中提取总RNA,利用Nanodrop 2000对所提RNA的浓度和纯度进行检测,琼脂糖凝胶电泳检测RNA完整性,Agilent 2100测定RNA完整值(RIN)。使用带有多聚胸腺嘧啶(oligo-dT)的磁珠于多聚腺苷酸(ployA)进行A-T碱基配对,从总RNA中分离mRNA。加入Fragmentation buffer,将mRNA随机断裂成300 bp左右的小片段。在逆转录酶的作用下,以片段化的RNA为模板反转合成第1链cDNA,随后进行第2链合成,形成稳定的双链结构,加入End Repair Mix将其补成平末端,随后在3’末端加A碱基并连接测序接头,对连接接头之后的产物进行纯化和分段分选,用分选产物进行PCR扩增,纯化得到最终文库。文库构建成功之后,使用QuantiFluords DNA System定量,按数据比例混合上机。使用定量PCR(q-PCR)对文库有效浓度进行准确定量,在文库质检合格之后使用Illumina测序平台进行测序。整个RNA提取及测序过程由上海美吉生物有限公司完成。

1.7 数据分析

采用SPSS 26.0统计软件对试验数据进行独立样本t检验,数据以平均值±标准差表示,P<0.05表示差异显著。

2 结果与分析

2.1 亚硒酸钠对蜂王基础形态指标及出房率、化蛹率的影响

本试验共移虫100只,工蜂接受92只,化蛹79只,出房77只。如表1所示,2组蜂王的基础形态指标及出房率、化蛹率均无显著差异(P>0.05)。
表1 亚硒酸钠对蜂王基础形态指标及出房率、化蛹率的影响

Table 1 Effects of sodium selenite on basic morphological characteristics, out-chamber rate and pupation rate of Apis mellifera

项目
Items
组别 Groups
CON SS
体重 Body weight/mg 237.995±22.848 233.570±21.326
翅长 Wing length/mm 9.638±0.350 9.635±0.363
体长 Body length/mm 18.092±1.054 18.397±0.947
胸长 Chest length/mm 4.417±0.255 4.165±0.619
胸宽 Chest breadth/mm 4.605±0.208 4.613±0.080
胸重 Chest weight/mg 63.367±3.118 60.816±2.941
化蛹率 Pupation rate/% 83.937±10.512 91.107±7.708
出房率 Out-chamber rate/% 96.620±0.686 98.810±2.061

同行数据肩标无字母表示差异不显著(P>0.05)。

In the same row, values with no letter superscripts mean no significant difference (P>0.05).

2.2 亚硒酸钠对蜂王卵巢的共表达基因和特表达基因的分析

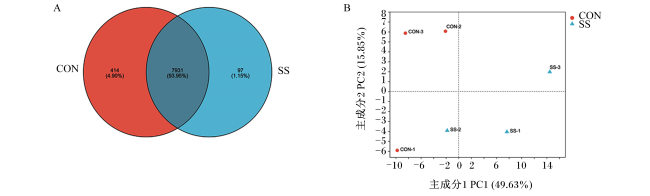
为获得组间共表达基因和特表达基因,绘制了样本间Venn图(图1-A),用以分析编码基因在2组的表达。CON组和SS组分别有414和97个特表达基因,共表达基因则有7 931个(占总编码基因的93.95%)。基于基因表达量对样本进行主成分分析(图1-B),结果表明,主成分1(PC1)占总方差的49.63%,主成分2(PC2)占总方差的15.85%,CON组和SS组的总变异系数为65.48%。SS组和CON组组内相似度高,而组间具有明显差异。
图1 Venn图(A)和主成分分析图(B)

CON:对照组 control group;SS:亚硒酸钠组:sodium selenite group。

Fig.1 Venn diagram (A) and principal component analysis diagram (B)

2.3 亚硒酸钠对蜂王卵巢基因组的差异表达基因分析

本试验使用基于负二项分布的DESeq2软件对测序数据进行分析,以|log2差异倍数(FC)|≥1、P≤0.05为筛选条件,对组间差异表达基因进行筛选,绘制了火山图(图2)。火山图中每个点都代表1个基因,蓝色代表差异显著下调基因(log2FC≤-1、P≤0.05),红色代表差异显著上调基因(log2FC≥1、P≤0.05),灰色则代表差异不显著基因(|log2FC|<1、P>0.05)。结果表明,与CON组相比,SS组共有274个差异显著基因(|log2FC|≥1、P≤0.05),其中有214个差异显著上调基因(log2FC≥1、P≤0.05),60个差异显著下调基因(log2FC≤-1、P≤0.05)。
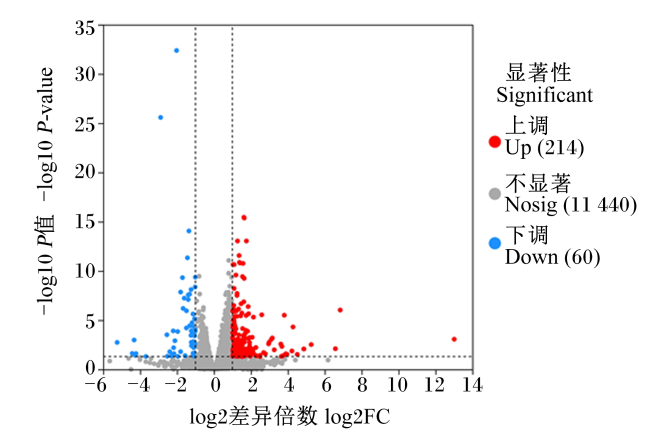
图2 意大利蜜蜂蜂王卵巢基因组的差异表达基因火山图

Fig.2 Volcanic map of differentially expressed genes in ovarian genome of Apis mellifera

2.4 亚硒酸钠对蜂王卵巢基因组的差异表达基因GO富集分析

GO分析通过3个层面对基因进行分类注释,即生物过程(biological process)、细胞组分(cellular component)和分子功能(molecular function)。通过观察GO富集分析柱形图(图3)可以发现,与生物过程有关的基因数目较少,与细胞组分和分子功能相关的基因数目较多。其中,主要涉及NADH脱氢酶(醌)活性、NAD(P)H脱氢酶(醌)活性、电子转移活动、线粒体膜、氧化还原驱动活性跨膜转运蛋白活性等,说明这些基因在线粒体跨膜运输、能量代谢及氧化还原等方面起着重要作用。
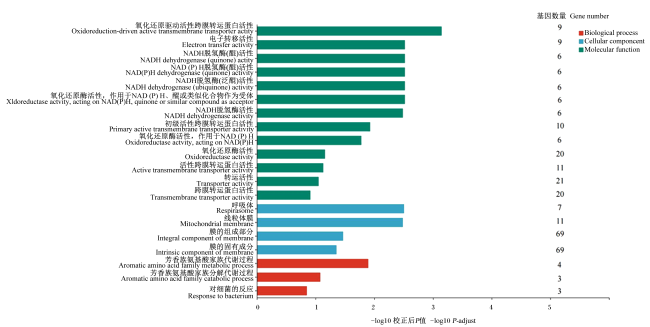
图3 意大利蜜蜂蜂王卵巢基因组的差异表达基因GO富集分析柱形图

Biological process:生物过程;Cellular component:细胞组分;Molecular function:分子功能。

Fig.3 GO enrichment analysis column diagram of differentially expressed genes in ovarian genome of Apis mellifera

2.5 亚硒酸钠对蜂王卵巢基因组的差异表达基因KEGG富集分析

通过使用R脚本对注释到的差异表达基因进行KEGG富集分析,通过观察KEGG富集分析柱形图(图4)可以发现,SS组和CON组差异表达基因分别富集到14条通路上,分别为视黄醇代谢,苯丙氨酸代谢,氧化磷酸化,苯丙氨酸、酪氨酸和色氨酸生物合成,戊糖和葡萄糖醛酸相互转化,细胞色素P450对异种生物的代谢作用,类固醇激素生物合成,抗坏血酸和醛酸代谢等代谢通路。通过对上述通路进行分析,筛选差异表达基因(表2),差异表达基因gene-CPR1、gene-LOC552689和gene-LOC100576637表达量显著下调(P<0.05),其他差异表达基因表达量均显著上调(P<0.05)。对筛选基因ID及功能注释进行查询,确立各基因在蜂王体内作用,证实亚硒酸钠对蜂王在繁殖、抗氧化及生长发育方面具有显著促进作用。
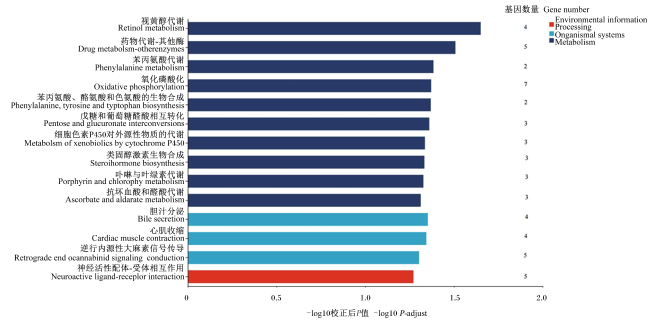
图4 意大利蜜蜂蜂王卵巢基因组的差异表达基因KEGG富集分析柱形图

Environmental information:环境信息;Processing:过程;Onganismal systems:生物体系统;Metabolism:代谢。

Fig.4 KEGG enrichment analysis column diagram of differentially expressed genes in the ovarian genome of Apis mellifera

表2 差异表达基因详情

Table 2 Details of differentially expressed genes

基因ID
Gene ID
组别 Groups log2差异倍数
log2FC
校正后P
P-adjust
上调/下调
Up-regulated/
down-regulated
SS CON
gene-ATP6 23.503±10.554 11.890±4.276 1.346 52 0.008 982 740 上调
gene-COX2 4 249.463±947.220 2 652.723±689.468 1.072 43 0.000 044 500 上调
gene-COX3 94.080±34.053 48.003±14.848 1.332 39 0.000 086 700 上调
gene-LOC100577156 13.867±7.384 5.593±2.378 1.723 17 0.004 147 019 上调
gene-LOC100577725 732.180±196.939 464.950±90.579 1.187 61 0.000 000 118 上调
gene-LOC113219028 3.260±1.416 1.223±0.375 1.925 75 0.013 926 563 上调
gene-LOC408788 15.073±5.171 8.993±1.837 1.086 58 0.000 098 200 上调
gene-LOC409801 2 942.203±548.128 1 484.75±313.496 1.411 29 0.000 000 012 上调
gene-LOC409203 43.933±22.658 26.150±6.718 1.140 64 0.186 991 173 上调
gene-LOC411021 1.420±0.786 0.837±0.330 1.023 44 0.206 614 473 上调
gene-ND1 165.810±61.809 59.110±24.267 1.821 23 0.004 786 532 上调
gene-ND2 72.367±26.473 29.447±9.352 1.634 75 0.000 000 195 上调
gene-ND3 24.050±10.600 11.820±4.078 1.575 61 0.035 110 027 上调
gene-ND4 165.037±55.147 69.980±16.669 1.574 98 0.000 000 012 上调
gene-ND4L 75.893±39.165 21.547±5.105 2.585 75 0.000 236 996 上调
gene-ND6 56.477±29.386 22.327±7.894 1.741 66 0.000 266 260 上调
gene-LOC726297 1 139.653±222.363 764.273±132.757 1.086 59 0.000 001 740 上调
gene-CPR1 11.170±7.942 30.760±5.249 -1.130 22 0.027 648 890 下调
gene-LOC552689 17.583±7.629 63.480±15.960 -1.437 19 0.000 000 005 下调
gene-LOC100576637 3.267±1.406 8.633±1.686 -1.055 11 0.010 342 925 下调

3 讨论

目前,已有大量亚硒酸钠作为营养性添加剂作用于家畜、家禽或水产动物的相关研究。尚未见补充亚硒酸钠用于优质蜂王人工培育方面的报道。但已有研究发现,当饲粮中亚硒酸盐浓度达到1.0 mg/L时,硒易对蜜蜂造成胁迫作用,使幼虫受到巨大损伤[13]。本试验饲粮中亚硒酸盐浓度为2.56×10-4~3.20×10-4 mg/L,远远低于亚硒酸盐对蜜蜂的胁迫阈值,幼虫出房体重等形态指标未发生显著差异,这与Amini等[14]研究结果一致。
此外,本试验通过转录组测序分析,成功筛选出在亚硒酸钠作用下蜂王繁殖和生长发育相关差异表达基因并进行分析。其中,氧化磷酸化在线粒体中发生,调节除成熟红细胞以外的所有真核细胞能量产生,生物体中90%以上的能量均来自氧化磷酸化[15]。本试验中,差异表达基因gene-ATP6、gene-ND1、gene-ND3和gene-ND4富集于氧化磷酸化通路且均显著上调,促进复合物Ⅰ、复合物Ⅳ、复合物Ⅴ的基因表达,促进动物体内ATP的合成。线粒体复合物表达量的上升,可直接促进抗氧化系统中超氧化物歧化酶的表达,进而增加过氧化氢酶、锰超氧化物歧化酶和过氧化氢酶的表达,清除机体过量过氧化氢,影响机体抗氧化防御系统[16-17]。在生热作用代谢通路中,解耦联蛋白-1(UCP-1)可以通过线粒体内膜转运质子,使得ATP与氧化磷酸化解偶联,能量可以以热量方式进行释放,维持机体的正常体温,同时UCP-1可以调节线粒体活性氧的产生[18-19]。本试验中,线粒体复合物表达量上升,电子传递链递氢能力增强,ATP表达量上升,促进ATP的合成;同时,电子传递链产生质子,可以促进UCP-1接受质子,维持机体体温。研究发现,在视黄醇新陈代谢通路中,全反式视黄醇脱氢酶表达显著下调,导致全反式视黄醛的合成降低,在感光细胞中,全反式视黄醛可诱导活性氧的产生,进而导致c-Jun氨基端激酶通路的激活而损伤线粒体[20];同时,全反式视黄醛还可通过释放活性氧,激活核苷酸结合寡聚化结构域样受体通路,诱导视网膜色素上皮细胞死亡[21]。本试验中,全反式视黄醛脱氢酶基因(gene-LOC552689)表达量显著下调,证明硒可能具有降低机体过氧化物的潜力,对减少蜂王体内氧化应激、调控细胞凋亡等具有积极作用。
在昆虫变态发育过程中,需要进行不止一次的蜕皮和化蛹,其中保幼激素和蜕皮激素共同控制着组织凋亡和重建以及蜕皮等变态生理过程[22]。研究发现,当保幼激素显著高于蜕皮激素时,幼虫则会被诱导进行蜕皮;当保幼激素显著低于蜕皮激素时,幼虫则会进入化蛹阶段;当保幼激素趋近于0时,昆虫则会进行羽化[23]。保幼激素酯酶则是降解保幼激素的关键酶之一,促进或抑制保幼激素酯酶可以调节昆虫的蜕皮、化蛹和生殖[24]。本试验中,保幼激素酯酶基因(gene-LOC409801)表达量显著上调,降低了保幼激素表达量,促进蜂王进行化蛹羽化,说明饲粮中添加亚硒酸钠可以通过增加保幼激素酯酶表达促进蜂王化蛹羽化。几丁质是昆虫机体的重要结构组成部分,它保护着昆虫免受脱水、机械损伤和天敌捕食的侵害。但坚固的几丁质缺少延展性,阻碍了昆虫的正常生长发育。因此,昆虫需要不断的溶解几丁质并重新构建[25]。在这个过程中,旧几丁质的溶解尤为关键,而几丁质酶则可以通过内切型裂解将几丁质水解为壳寡糖并进行正确组装,同时还可充当生长因子,调节腹部收缩和翅膀扩张[26]。本试验中,差异表达基因gene-LOC100577156、gene-100577725富集于壳聚糖生物合成通路,提高了几丁质酶的表达量,促进几丁质转化为壳寡糖,推动几丁质重构的进程。此外,几丁质还是昆虫中肠围食膜的重要组成部分,几丁质酶表达量升高,可促进昆虫中肠围食膜几丁质的降解,平衡昆虫围食膜几丁质更新[27]。因此,本试验中差异表达基因gene-LOC100577156、gene-100577725表达量增加可能对于蜂王围食膜几丁质更新平衡具有积极作用。
在抗坏血酸和醛酸代谢通路中,葡萄糖醛酸基转移酶通过催化D-尿苷二磷酸葡萄糖生成D-葡萄糖醛酸,而后逐渐转化为L-抗坏血酸,即维生素C[28]。研究发现,维生素C是蜜蜂体内重要的抗氧化因子,同时,维生素C还可有效刺激蜜蜂取食并促进幼虫及成蜂腺体发育[29]。本试验中,葡萄糖醛酸基转移酶基因(gene-LOC408788、gene-LOC411021、gene-LOC409203)表达量显著上调,说明补充硒可以通过影响抗坏血酸合成进而促进蜂王抗氧化能力的提升和腺体的发育。此外,在脂肪和维生素的消化与吸收通路中,本试验发现胰腺三酰甘油脂肪酶基因(gene-LOC113219028)表达量显著上调,说明饲粮中添加亚硒酸钠可能会增强蜂王对脂肪的利用率,同时促进脂溶性维生素的吸收与消化。硒和维生素E均可调节血脂代谢,降低体重,降低血液游离脂肪酸含量,减少氧化应激带来的机体损伤[30-32]。同时,硒与维生素E具有协同作用,共同增强蜂王的抗氧化能力,延缓蜂王衰老,提升蜂王使用寿命[33]

4 结论

饲粮中添加3.2 mg/L亚硒酸钠对意大利蜜蜂蜂王基础形态指标及出房率、化蛹率无显著影响,但在转录组水平上可影响卵巢组织中gene-LOC100577156、gene-100577725、gene-ATP6、gene-ND1、gene-ND3和gene-ND4等差异表达基因的表达,作用于视黄醇代谢、苯丙氨酸代谢和氧化磷酸化等通路,以此来调控意大利蜜蜂抗氧化能力和机体几丁质更新。
[1]
BJØRKLUND G, SHANAIDA M, LYSIUK R, et al. Selenium:an antioxidant with a critical role in anti-aging[J]. Molecules, 2022, 27(19):6613.

DOI

[2]
PECORARO B M, LEAL D F, FRIAS-DE-DIEGO A, et al. The health benefits of selenium in food animals:a review[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):58.

DOI

[3]
LOSSOW K, RENKO K, SCHWARZ M, et al. The nutritional supply of iodine and selenium affects thyroid hormone axis related endpoints in mice[J]. Nutrients, 2021, 13(11):3773.

DOI

[4]
CHI X P, WEI W, ZHANG W X, et al. Sodium selenium enhances the antioxidative activities and immune functions of Apis mellifera (Hymenoptera:Apidae) and increases the selenium content in royal jelly[J]. Environmental Entomology, 2020, 49(1):169-177.

DOI

[5]
苏中渠, 张卫星, 郗学鹏, 等. 意大利蜜蜂工蜂幼虫饲粮的适宜亚硒酸钠添加水平[J]. 中国农业科学, 2016, 49(20):4047-4055.

DOI

SU Z Q, ZHANG W X, XI X P, et al. Appropriate level of sodium selenite for Apis mellifera ligustica worker bee larvae feed[J]. Scientia Agricultura Sinica, 2016, 49(20):4047-4055. (in Chinese)

[6]
JIANG L, PENG L L, CAO Y Y, et al. Effect of dietary selenium supplementation on growth and reproduction of silkworm Bombyx mori L.[J]. Biological Trace Element Research, 2020, 193(1):271-281.

DOI

[7]
刘一名, 徐新建, 周姝婧, 等. 西方蜜蜂工蜂蛹响应低温胁迫的差异表达基因分析[J]. 昆虫学报, 2022, 65(4):469-479.

LIU Y M, XU X J, ZHOU S J, et al. Analysis of differentially expressed genes in response to low temperature stress in Apis mellifera worker pupae[J]. Acta Entomologica Sinica, 2022, 65(4):469-479. (in Chinese)

[8]
候梦赏, 邱园妹, 赵必安, 等. 亚致死剂量吡虫啉胁迫对意大利蜜蜂工蜂嗅觉学习行为的影响及其脑部转录组分析[J]. 昆虫学报, 2021, 64(7):817-827.

HOU M S, QIU Y M, ZHAO B A, et al. Effects of a sublethal dose of imidacloprid on the olfactory learning behavior of Apis mellifera ligustica workers and an analysis of their brain transcriptomes[J]. Acta Entomologica Sinica, 2021, 64(7):817-827. (in Chinese)

[9]
CONWAY E, SWEENEY T, DOWLEY A, et al. Selenium-enriched mushroom powder enhances intestinal health and growth performance in the absence of zinc oxide in post-weaned pig diets[J]. Animals, 2022, 12(12):1503.

DOI

[10]
JIA X T, LI J, LI S, et al. Effects of dietary supplementation with different levels of selenium yeast on growth performance,carcass characteristics,antioxidant capacity,and meat quality of Tan sheep[J]. Livestock Science, 2022, 255:104783.

DOI

[11]
WANG L, SAGADA G, WANG R, et al. Different forms of selenium supplementation in fish feed:the bioavailability,nutritional functions,and potential toxicity[J]. Aquaculture, 2022, 549:737819.

DOI

[12]
曾志将. 养蜂学[M]. 3版. 北京: 中国农业出版社, 2017.

ZENG Z J. Apiculture[M]. 3rd ed. Beijing: China Agriculture Press, 2017. (in Chinese)

[13]
HLADUN K R, KAFTANOGLU O, PARKER D R, et al. Effects of selenium on development,survival,and accumulation in the honeybee (Apis mellifera L.)[J]. Environmental Toxicology and Chemistry, 2013, 32(11):2584-2592.

DOI

[14]
AMINI M B, SADEGHI A A, SHAWRANG P, et al. Nano-selenium and nano-zinc oxide supplementation in syrup on laying area,population size and HSP gene expression of honey bees in hot climate[J]. Acta Scientiarum Animal Sciences, 2021, 43:e48574.

DOI

[15]
顾霞. Nrf2通过MRPL12调控线粒体氧化磷酸化在糖尿病肾病中的作用及机制研究[D].硕士学位论文. 济南: 山东大学, 2021.

GU X. The effects of Nrf2 on mitochondrial OXPHOS mediated by MRPL12 in diabetic kidney disease[D].Master’s Thesis. Ji’nan: Shandong University, 2021. (in Chinese)

[16]
洪奇华, 李鑫, 徐求文, 等. 姜黄素对断奶仔猪肠道屏障、抗氧化和线粒体功能的影响[J]. 中国畜牧杂志, 2022, 58(6):251-255.

HONG Q H, LI X, XU Q W, et al. Effects of curcumin on intestinal barrier,oxidative stress and mitochondrial function in weaned piglets[J]. Chinese Journal of Animal Science, 2022, 58(6):251-255. (in Chinese)

[17]
牛波, 王切, 刘风藏, 等. 过氧化物酶Ⅰ、过氧化氢酶、超氧化物歧化酶在大鼠肝缺血再灌注损伤小肠内的表达变化[J]. 解剖学杂志, 2017, 40(6):651-655.

NIU B, WANG Q, LIU F C, et al. Expression changes of peroxiredoxin,catalase and superoxide dismutase in the small intestine of rats with hepatic ischemia reperfusion injury[J]. Chinese Journal of Anatomy, 2017, 40(6):651-655. (in Chinese)

[18]
FEDORENKO A, LISHKO P V, KIRICHOK Y. Mechanism of fatty-acid-dependent UCP1 uncoupling in brown fat mitochondria[J]. Cell, 2012, 151(2):400-413.

DOI PMID

[19]
CHOUCHANI E T, KAZAK L, SPIEGELMAN B M. New advances in adaptive thermogenesis:UCP1 and beyond[J]. Cell Metabolism, 2019, 29(1):27-37.

DOI

[20]
廖春燕. JNK信号的激活促进全反式视黄醛诱导的感光细胞凋亡[D].博士学位论文. 厦门: 厦门大学, 2020.

LIAO C Y. Activation of JNK signaling promotes all-trans-retinal-induced photoreceptor apoptosis[D].Ph.D.Thesis. Xiamen: Xiamen University, 2020. (in Chinese)

[21]
张厚检. 全反式视黄醛通过激活NLRP3炎症小体诱导视网膜色素上皮细胞死亡[D].硕士学位论文. 厦门: 厦门大学, 2019.

ZHANG H J. NLRP3 inflammasome activation by all-trans-retinal underlies the death of retinal pigment epithelium cells[D].Master’s Thesis. Xiamen: Xiamen University, 2019. (in Chinese)

[22]
柳鹏飞, 王伟伟, 凌晓霏, 等. 保幼激素和蜕皮激素调控昆虫变态发育机制的进展[J]. 基因组学与应用生物学, 2021, 40(5):2054-2062.

LIU P F, WANG W W, LING X F, et al. Advances in molecular mechanism of juvenile hormone and molting hor-mone-mediated metamorphosis[J]. Genomics and Applied Biology, 2021, 40(5):2054-2062. (in Chinese)

[23]
王涛, 李秀璋, 梁静, 等. 昆虫保幼激素的合成、信号转导和形态调节作用研究进展[J]. 青海畜牧兽医杂志, 2022, 52(3):54-64.

WANG T, LI X Z, LIANG J, et al. Advances in the synthesis,signal transduction and morphological regulation of juvenile hormone in insects[J]. Chinese Qighai Journal of Animal and Veterinary Sciences, 2022, 52(3):54-64. (in Chinese)

[24]
张欢, 郭博智, 樊东. 苜蓿夜蛾保幼激素酯酶cDNA的克隆、序列分析及表达研究[J]. 应用昆虫学报, 2015, 52(1):143-152.

ZHANG H, GUO B Z, FAN D. cDNA cloning,sequence analysis and expression of JHE gene in Heliothis viriplaca[J]. Chinese Journal of Applied Entomology, 2015, 52(1):143-152. (in Chinese)

[25]
MUTHUKRISHNAN S, MUN S, NOH M Y, et al. Insect cuticular chitin contributes to form and function[J]. Current Pharmaceutical Design, 2020, 26(29):3530-3545.

DOI PMID

[26]
NOH M Y, MUTHUKRISHNAN S, KRAMER K J, et al. A chitinase with two catalytic domains is required for organization of the cuticular extracellular matrix of a beetle[J]. PLoS Genetics, 2018, 14(3):e1007307.

DOI

[27]
王李. 意大利蜜蜂几丁质酶基因AmCht11的表达特征及功能初探[D].硕士学位论文. 重庆: 重庆师范大学, 2018.

WANG L. Expression patterns and functional analysis of chitinase gene AmCht11 in honey bee Apis mellifera ligustica[D].Master’s Thesis. Chongqing: ChongQing Normal University, 2018. (in Chinese)

[28]
HORIO F, KIMURA M, YOSHIDA A. Effect of several xenobiotics on the activities of enzymes affecting ascorbic acid synthesis in rats[J]. Journal of Nutritional Science and Vitaminology, 1983, 29(3):233-247.

PMID

[29]
韩旭. 中蜂幼虫蛋白和脂肪测定以及Vc对中蜂发育影响[D].硕士学位论文. 南昌: 江西农业大学, 2014.

HAN X. Analysis of protein and fat of larvae and the effect of Vc on the development of Apis cerana cerana[D].Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2014. (in Chinese)

[30]
刘为民, 刘忠英, 李广生, 等. 硒、维生素E对心肌缺血大鼠血浆与心肌游离脂肪酸的影响[J]. 营养学报, 1995(3):269-273.

LIU W M, LIU Z Y, LI G S, et al. Effects of selenium and vitamin E on free fatty acids in rats of experimental myocardial ischemia[J]. Acta Nutrimenta Sinica, 1995(3):269-273. (in Chinese)

[31]
郑奕迎, 刘声远, 刘海霞, 等. 硒维生素E和碘对营养性肥胖小鼠的影响[J]. 微量元素与健康研究, 2006, 23(5):3-5.

ZHENG Y Y, LIU S Y, LIU H X, et al. Effect of selenium,vitamin E and iodine on diet-induced obese mices[J]. Studies of Trace Elements and Health, 2006, 23(5):3-5. (in Chinese)

[32]
蔡梅雪, 祝寿嵩. 硒、维生素E对血脂及脂质过氧化作用的影响[J]. 营养学报, 1997(1):19-25.

CAI M X, ZHU S S. Effects of selenium and/or vitamin E on serum lipids and lipoperoxides in experimental hyperlipidemic rats[J]. Acta Nutrimenta Sinica, 1997(1):19-25. (in Chinese)

[33]
WANG M M, LI Y, MOLENAAR A, et al. Vitamin E and selenium supplementation synergistically alleviate the injury induced by hydrogen peroxide in bovine granulosa cells[J]. Theriogenology, 2021, 170:91-106.

DOI PMID

Outlines

/